Ten artykuł opisuje, jak przeprowadzić metodę chirurgiczną hamującą powstawanie naskórka ran podczas regeneracji kończyn aksolotla poprzez natychmiastowe zszycie skóry o pełnej grubości na płaszczyźnie amputacji. Metoda ta pozwala badać funkcjonalne role naskórka rany we wczesnych etapach regeneracji kończyn.
Artykuł metodologiczny
Hamowanie tworzenia się naskórka rany poprzez pełną operację płata skóry podczas regeneracji kończyn aksolotla
W tym artykule
Podsumowanie
Streszczenie
Klasyczne eksperymenty w biologii regeneracyjnej salamander w ciągu ostatniego stulecia już dawno ustaliły, że naskórek rany jest kluczową strukturą sygnalizacyjną, która tworzy się szybko po amputacji i jest niezbędna do regeneracji kończyn. Jednak metody badania jego dokładnej funkcji na poziomie molekularnym w ciągu ostatnich dziesięcioleci były ograniczone ze względu na niedostatek precyzyjnych technik funkcjonalnych i informacji genomicznych dostępnych w systemach modelowych salamandry. Ekscytujące jest to, że niedawny mnogość technologii sekwencjonowania w połączeniu z ujawnieniem różnych genomów salamandry i pojawieniem się funkcjonalnych metod badań genetycznych, w tym CRISPR, umożliwia ponowne przyjrzenie się tym fundamentalnym eksperymentom w niespotykanej dotąd rozdzielczości molekularnej. W tym miejscu opisuję, jak przeprowadzić klasycznie opracowaną operację pełnego płata skóry (FSF) u dorosłych aksolotli w celu zahamowania tworzenia się naskórka rany bezpośrednio po amputacji. Naskórek rany zwykle tworzy się w wyniku dystalnej migracji komórek nabłonka w skórze proksymalnie do płaszczyzny amputacji, aby uszczelnić ranę od środowiska zewnętrznego. Operacja polega na natychmiastowym zszyciu skóry o pełnej grubości (która obejmuje zarówno warstwę naskórka, jak i skóry właściwej) na płaszczyźnie amputacji, aby utrudnić migrację komórek nabłonka i kontakt z leżącymi pod nią uszkodzonymi tkankami mezenchymalnymi. Udane operacje skutkują zahamowaniem powstawania blastema i regeneracją kończyny. Łącząc tę metodę chirurgiczną ze współczesnymi analizami molekularnymi i funkcjonalnymi, naukowcy mogą zacząć odkrywać molekularne podstawy funkcji i biologii naskórka ran podczas regeneracji kończyn.
Wprowadzenie
Odkąd Lazzaro Spallanzani opisał to w 1768 roku1, regeneracja kończyn salamandry jest jednym z najlepiej zbadanych naturalnych zjawisk regeneracyjnych, które od wieków fascynuje biologów. Skuteczna regeneracja kończyn zależy od powstawania, wyrastania, a następnie kształtowania niezróżnicowanej struktury komórkowej znanej jako blastema. Naukowcy poczynili znaczne postępy w zrozumieniu składu komórkowego blastemy, a także tego, jakie tkanki podporowe i typy komórek są niezbędne do jej powstania2,3,4,5,6,7,8,9, 10,11,12,13. Jednak skoordynowane mechanizmy sygnalizacyjne między różnymi tkankami i typami komórek, które prowadzą do inicjacji powstawania blastemy, pozostają słabo poznane.
Kluczowym wymogiem dla udanego tworzenia i regeneracji blastemy jest naskórek rany, przejściowy i wyspecjalizowany nabłonek, który pokrywa płaszczyznę amputacji w ciągu 12 godzin po amputacji10. Po amputacji komórki nabłonkowe z nienaruszonej skóry proksymalnie do urazu szybko migrują przez płaszczyznę amputacji, tworząc cienki nabłonek rany14. Gdy blastema tworzy się w kolejnych tygodniach, wczesny naskórek rany rozwija się w grubszą strukturę sygnalizacyjną nabłonka zwaną czapeczką nabłonka wierzchołkowego (AEC)15. Podczas gdy normalna skóra o pełnej grubości zawiera zarówno warstwę nabłonkową, jak i skórną oddzieloną blaszką podstawną, naskórek/AEC rany składa się tylko z warstwy nabłonkowej i nie ma blaszki podstawnej16,17. Brak blaszki podstawnej i skóry właściwej pozwala na bezpośredni kontakt między komórkami nabłonka rany a leżącymi poniżej tkankami, co ułatwia dwukierunkową sygnalizację między dwoma przedziałami, co ma kluczowe znaczenie zarówno dla powstawania, jak i utrzymania blastemy17,18.
Klasyczne badania eksperymentalne opracowały różne innowacyjne metody chirurgiczne do badania funkcji i konieczności uszkodzenia naskórka/AEC poprzez hamowanie jego powstawania. Metody te obejmowały zszywanie19 lub szczepienie skóry o pełnej grubości20,21 na płaszczyźnie amputacji, natychmiastowe wszycie amputowanej kończyny do jamy ciała22, oraz ciągłe codzienne usuwanie lub napromienianie naskórka wczesnej rany i AEC23,24. Podsumowując, eksperymenty te nie tylko ustaliły znaczenie naskórka/AEC rany, ale także dodatkowo określiły jego rolę we wczesnej histolizie tkanek, a także w utrzymaniu proliferacji komórek progenitorowych i wzrostu blastemalnego13 podczas regeneracji.
Jednak te poprzednie badania były w dużej mierze ograniczone do barwienia histologicznego, jak również do trytiowanych impulsów tymidyny w celu śledzenia proliferacji komórek. W rzeczywistości ponowne przyjrzenie się tym klasycznym eksperymentom z nowoczesnymi technologiami sekwencjonowania i technikami funkcjonalnymi u salamander zostało przeprowadzone dopiero niedawno i doprowadziło do odkrycia dodatkowych ról naskórka rany w modulowaniu stanu zapalnego i degradacji/odkładaniu ECM we wczesnych stadiach regeneracji25. Wraz z wydaniem różnych 26,27,28,29,30,31,32,33,34, a także rosnąca liczba dostępnych metod funkcjonalnych w gatunku salamander 11,35,36,37,38, naukowcy są teraz dobrze przygotowani, aby rozpocząć odkrywanie mechanizmów molekularnych kierujących powstawaniem, funkcjonowaniem i rozwojem AEC naskórka rany.
Niestety, kilka z tych klasycznych metod stosowanych do hamowania powstawania naskórka ran jest technicznie trudne, stwarzając trudności w odtwarzalności między powtórzeniami biologicznymi w tym samym eksperymencie. Na przykład utrzymanie przeszczepów skóry może być trudne, ponieważ przeszczepy mogą w końcu spaść z kończyny gospodarza, a codzienne usuwanie naskórka/AEC rany jest trudne bez uszkodzenia leżących poniżej tkanek. Ponadto zszycie amputowanej kończyny do jamy ciała jest wyzwaniem, a także wymaga dodatkowego urazu w miejscu wprowadzenia. Z drugiej strony, zszycie pełnej grubości skóry bezpośrednio nad płaszczyzną amputacji jest stosunkowo proste, technicznie powtarzalne i wprowadza minimalne uszkodzenia tkanek. Ta metoda chirurgiczna pełnego płata skóry (FSF) została wcześniej opracowana przez Anthony'ego Meschera w 1976 roku u dorosłych traszek (Notophthalmus viridiscens). Wykazał, że operacja FSF hamuje tworzenie i funkcjonowanie naskórka rany, uniemożliwiając zarówno migrację komórek nabłonka na płaszczyźnie amputacji, jak i bezpośredni kontakt między komórkami nabłonka a leżącymi pod nimi tkankami.
Tutaj ta procedura chirurgiczna jest pokazana krok po kroku przy użyciu kończyny aksolotl. W połączeniu z nowoczesnymi technologiami molekularnymi i sekwencjonowania, technika ta może okazać się bardzo pomocna dla naukowców w pogłębianiu naszej wiedzy na temat powstawania i funkcjonowania naskórka rany/AEC podczas regeneracji kończyn.
Protokół
Wszystkie eksperymenty na zwierzętach zostały przeprowadzone zgodnie z wytycznymi IACUC (Protokół #: 11-32) i AAALAC na Uniwersytecie Harvarda.
1. Przygotowanie roztworów i przygotowanie do znieczulenia i rekonwalescencji
- Przygotuj świeży 0,1% roztwór trikainy do znieczulenia i 0,5% roztwór soli sodowej sulfamerazyny do rekonwalescencji. Roztwory należy przygotować przy użyciu wody odpowiedniej do hodowli aksolotl37 zgodnie z zatwierdzonymi protokołami IACUC w odpowiedniej instytucji badawczej (na przykład zmodyfikowane rozwiązanie Holtfretera). Upewnij się, że roztwory są dobrze wymieszane i że przygotowana jest wystarczająca objętość, aby zanurzyć całego aksolotla.
- Aby przygotować 0,1% roztwór tricainy, wymieszaj 1 g tricainy i 1 g wodorowęglanu sodu z 1 l wody. Rozwiązanie można skalować w górę zgodnie z tym przepisem.
- Aby przygotować 0,5% roztwór soli sodowej sulfamerazyny, należy wymieszać 5 g soli sodowej sulfamerazyny z 1 litrem wody. Rozwiązanie można skalować w górę zgodnie z tym przepisem. Roztwór sulfamerazyny jest antybiotykiem, który zapobiegnie infekcji bakteryjnej podczas rekonwalescencji chirurgicznej.
- Zdezynfekuj obszar operacyjny, spryskując go Clidox-S lub 70% etanolem. Sterylizuj narzędzia chirurgiczne (kleszcze, nożyczki preparacyjne, nożyczki sprężynowe) przez autoklawowanie. Jeśli wykonujesz wiele operacji, upewnij się, że sterylizujesz narzędzia chirurgiczne za pomocą sterylizatora z gorącymi kulkami między zwierzętami.
- Aby ustawić obszar rekonwalescencji, umieść szalkę Petriego o średnicy 15 cm lub dowolny pojemnik, w którym zmieści się aksolotl, na wiadrze wypełnionym mokrym lodem. Napełnij szalkę Petriego roztworem soli sodowej o niskim poziomie 0,5% sulfamerazyny, wystarczającym tak, aby aksolotl nie był całkowicie zanurzony. Rekonwalescencja na lodzie po operacji spowolni ruchy zwierzęcia podczas wybudzenia się ze znieczulenia, pozwalając zszytemu obszarowi zagoić się stosunkowo niezakłócony.
UWAGA: Ta konfiguracja może być dostosowywana przez badaczy w zależności od dostępnych materiałów.
2. Wykonanie zabiegu chirurgicznego pełnego płata skóry
- Znieczulić aksolotl, zanurzając go w pojemniku z 0,1% roztworem trikainy. Zajmie to około 15-20 minut. Upewnij się, że aksolotl jest rzeczywiście w pełni znieczulony, wykonując uszczypnięcie ogona. Jeśli nie ma odpowiedzi ze strony aksolotla, przystąp do operacji.
UWAGA: Do tej operacji użyj starszych, większych aksolotli (o wielkości co najmniej 15 cm). Upewnij się, że aksolotl pozostaje dobrze nawodniony przez cały czas trwania zabiegu, okresowo zwilżając skórę wodą z systemu aksolotla za pomocą plastikowej pipety. Upewnij się, że aseptycznie przygotowałeś miejsce operowane, nawadniając obszar sterylnym PBS przed zabiegiem. Zwierzę powinno być również umieszczone na sterylnej serwety chirurgicznej do zabiegu. - Wykonaj amputację kończyny na dystalnym końcu elementów szkieletu zeugopodialnego za pomocą nożyczek preparacyjnych (Rysunek 1.1).
- Za pomocą nożyczek sprężynowych wykonaj małe nacięcie (około 2 mm) na brzusznej części skóry (Rysunek 1.2).
- Za pomocą kleszczy ostrożnie oderwij skórę do mniej więcej linii środkowej elementów szkieletu zeugopodialnego, odsłaniając leżące poniżej tkanki kończyny (mięśnie, kości itp.) (Rysunek 1.3). Uważaj, aby nie uszkodzić skóry. Patrz uwaga po kroku 2.8.
- Amputuj odsłonięte tkanki kończyny w linii środkowej zeugopoda za pomocą nożyczek chirurgicznych (Ryc. 1.4).
- Odepchnij tkankę mięśniową nożyczkami chirurgicznymi i przytnij odsłoniętą kość.
UWAGA: Jest to konieczne, aby zapewnić lepsze gojenie, a także zwiększyć powodzenie operacji, ponieważ wystająca kość może zostać postrzępiona o zszyty płat i później zakłócić integralność nienaruszonego płata skóry. - Za pomocą kleszczy ostrożnie przeciągnij skórę o dodatkowej pełnej grubości przez płaszczyznę amputacji, aby zakryć odsłonięte tkanki leżące pod spodem i zszyć na miejscu, łącząc się z brzuszną skórą o pełnej grubości (Rysunek 1.5).
- Zszyj pozostałą prawą i lewą stronę płata skóry w leżące poniżej brzuszne części nienaruszonej skóry. Można to zrobić albo poprzez zszycie boków płata na "krzyż" (zalecane) (Ryc. 1.6-1.9), albo po prostu zszycie prosto w skórę brzuszną. Do szycia używaj kleszczy i zakrzywionych nożyczek sprężynowych. Upewnij się, że nie widać żadnych odsłoniętych tkanek pod spodem i że szwy są mocno zawiązane (zawiązane co najmniej trzy razy).
UWAGA: Bardzo ważne jest, aby nieuszkodzona skóra nie została uszkodzona w krokach 2.4, 2.7-2.8. Odkryliśmy, że uszkodzenie skóry o pełnej grubości jest skorelowane z nieudanymi operacjami, ponieważ obszary uszkodzenia mogą nadal tworzyć mały naskórek rany. Jeśli to możliwe, staraj się używać pary kleszczy podczas podawania płata skóry o pełnej grubości. - Wykonaj amputację kończyny przeciwległej (opcjonalnie wewnętrzna kontrola zwierząt), amputując ją na środkowym poziomie zeugopoda za pomocą nożyczek chirurgicznych. Odepchnij tkankę mięśniową nożyczkami chirurgicznymi i przytnij odsłoniętą kość.
UWAGA: Można przeprowadzić wewnętrzną kontrolę kończyny przeciwległej, aby lepiej ocenić powodzenie operacji podczas kroku 4 u tego samego zwierzęcia. Jednak amputacja tej samej kończyny u innego zwierzęcia może być również stosowana jako kontrola.
3. Rekonwalescencja i opieka pooperacyjna
- Po zakończeniu operacji umieść Kimwipe lub sterylny ręcznik papierowy na dnie pojemnika lub szalki Petriego, aby go zwilżyć. Umieść zwierzę w pojemniku na mokrym lodzie i delikatnie owiń odsłonięte końce Kimwipe lub ręcznika papierowego wokół górnej części zwierzęcia, aby było dobrze nawodnione roztworem sulfamerazyny. Pozostaw na mokrym lodzie na 30 minut do 1 godziny, aby zapewnić minimalny ruch podczas rekonwalescencji po znieczuleniu.
- Umieścić zwierzę w statycznym pojemniku z 0,5% roztworem sulfamerazyny. Aksolotle muszą pozostać w tym roztworze przez pierwsze 24 godziny, aby zapobiec infekcji.
- Umieść aksolotla w normalnej wodzie systemowej i codziennie monitoruj stan zdrowia. Upewnij się, że żadne szwy nie wypadają każdego dnia, ponieważ może to spowodować powstanie małego naskórka rany, co zakłóci wyniki.
UWAGA: Upewnij się, że pojemnik w pomieszczeniu ma wystarczająco dużo miejsca, aby aksolotl mógł się poruszać i zminimalizować szanse, że zszyta kończyna aksolotla może zetknąć się z bokami pojemnika. Pomoże to zapewnić, że szwy pozostaną na swoim miejscu, szczególnie w pierwszym tygodniu po operacji.
4. Ocena powodzenia operacji pod mikroskopem stereoskopowym
UWAGA: Zalecamy badanie zwierząt pod mikroskopem stereoskopowym przynajmniej raz w tygodniu, aby ocenić integralność całego płata skóry i powodzenie operacji.
- Znieczulić aksolotla 0,1% trikainą, jak w kroku 2.1. Upewnij się, że w pojemniku jest wystarczająco dużo miejsca, aby aksolotl mógł się poruszać.
- W przypadku kontroli w ciągu pierwszych dwóch tygodni po operacji, należy sprawdzić zszytą kończynę za pomocą mikroskopu stereoskopowego, aby upewnić się, że nie wyskoczyły żadne szwy i że nigdzie nie widać przezroczystego, cienkiego naskórka rany. W przypadku kontroli w trzecim tygodniu po operacji lub później, upewnij się, że blastema nie powstała i porównaj, jak postępowała normalna kończyna kontrolna amputowana (od tego samego zwierzęcia lub innego zwierzęcia) podczas regeneracji (tj. czy blastema się uformowała).
- Po zakończeniu przywróć aksolotla do normalnych warunków wody systemowej i hodowli.
Wyniki
Niniejszy protokół chirurgiczny pozwoli na całkowite zahamowanie tworzenia się naskórka rany (Rysunek 1), a w konsekwencji na zahamowanie regeneracji kończyny. Pomyślna operacja skutkuje brakiem formowania się blastemy w ciągu około 2-3 tygodni, w zależności od wielkości zwierzęcia, podczas gdy w kontrolnych regenerujących się kończynach blastema powinna uformować się prawidłowo.
Badacze powinni kontrolować zaszytą kończynę gołym okiem co 2-3 dni, aby upewnić się, że szwy nie wyszły i że nie tworzy się blastema. Jeśli jeden lub więcej szwów pęknie, może dojść do powstania nabłonka rany, co doprowadzi do utworzenia małej lub dużej blastemy i niepowodzenia operacji (Rysunek 2). Dodatkowo badacze powinni kontrolować zaszytą kończynę co najmniej raz w tygodniu pod stereomikroskopem, aby upewnić się, że w żadnym miejscu powierzchni amputacji nie jest widoczny cienki nabłonek rany. Dla porównania badacze powinni badać również kontrolną regenerującą się kończynę, która powinna posiadać nabłonek rany nad płaszczyzną amputacji i wytworzyć blastemę w ciągu 2-3 tygodni. Nabłonek rany będzie wydawał się cienki i przezroczysty, podczas gdy normalna skóra będzie bardziej nieprzezroczysta i bladoróżowa (prawie biała), jasnoyellow lub ciemnozielona odpowiednio u aksolotli leucystycznych, albinosów lub dzikich.
Jeśli badacze chcą pobrać tkankę przed etapami formowania blastemy w 2-3 tygodniu, powinni obejrzeć zszyte kończyny przed pobraniem próbek, aby upewnić się, że szwy pozostały na miejscu i nie utworzył się niewielki naskórek rany. Dodatkowo, wykonanie przekrojów strzałkowych tkanki zszytej kończyny oraz analiza histologiczna w dowolnym punkcie czasowym mogą również potwierdzić obecność skóry właściwej z pełnego płata skóry otaczającego całą płaszczyznę amputacji oraz brak naskórka rany (Rysunek 3).

Rysunek 1: Schemat etapów pełnej operacji płata skórnego.
Kroki protokołu zostały tutaj ponumerowane i przedstawione schematycznie. Linie przerywane oznaczają płaszczyzny amputacji w krokach 1 i 3 protokołu. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
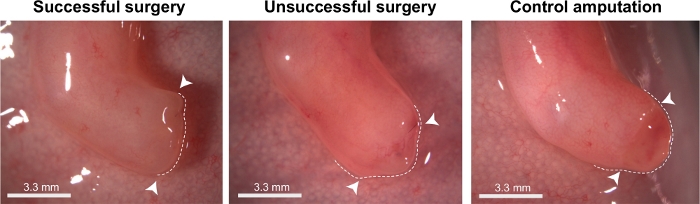
Rysunek 2: Przykłady udanych i nieudanych operacji pełnych płatów skóry.
Reprezentatywny obraz w polu jasnym kończyny po udanej operacji (lewo), nieudanej operacji (prawo) oraz kontrolnej regenerującej się kończynie (bez operacji) w 25 dniu po amputacji (dpa). W przypadku udanej operacji płaszczyzna amputacji jest płaska, gdzie zaszyto pełny płat skóry, natomiast w przypadku nieudanej operacji rozwija się niewielki blastema. Groty strzałek oznaczają płaszczyznę amputacji, a białe linie przerywane służą do wizualizacji braku blastemy w udanej operacji oraz obecności blastem w nieudanej operacji i kontrolnych regenerujących się kończynach. Kliknij tutaj, aby zobaczyć większą wersję tego rysunku.

Rycina 3: Barwienie histologiczne normalnie regenerujących oraz zszytych (FSF) kończyn.
(A-B’) Reprezentatywne obrazy w świetle przechodzącym z przekrojów barwionych metodą picro-mallory z regenerujących (A-A’) oraz zszytych kończyn aksolotla (B-B’) w 7 dpa. Wycinki w A i B pokazano odpowiednio w A’ i B’. Warstwa skórna bogata w kolagen wyściela i pokrywa całą płaszczyznę amputacji w kończynach zszytych. Płaszczyzna amputacji jest zaznaczona grotami strzałek w A-B. Paski skali reprezentują 500 µm. Rycina została opracowana na podstawie pracy Tsai et al.25. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
Dyskusja
W artykule opisano protokół wykonywania pełnych operacji płatów skóry w kończynach aksolotla w celu zahamowania tworzenia się naskórka rany. Chociaż ta operacja jest stosunkowo prosta i technicznie powtarzalna w porównaniu z innymi metodami hamowania tworzenia się naskórka rany, istnieje kilka krytycznych kroków, które mogą mieć wpływ na powodzenie operacji. Po pierwsze, podczas naciągania nienaruszonego płata pełnej skóry na odsłonięte tkanki leżące pod spodem, ważne jest, aby skóra o pełnej grubości nie została w żaden sposób uszkodzona. Uszkodzenie płata skóry może nadal prowadzić do powstania małego naskórka rany, co może skutkować niewielkim wyrostkiem podobnym do blastemy. Po drugie, upewnij się, że szwy nie wypadają podczas opieki pooperacyjnej, ponieważ może to również prowadzić do powstania małego naskórka rany. Do tego momentu ważne jest zminimalizowanie potencjalnego kontaktu między zszytą kończyną a jakimikolwiek powierzchniami, zwłaszcza w pierwszym tygodniu po operacji. Kilka sposobów, aby temu zapobiec, obejmuje umieszczenie i znieczulenie aksolotla w wystarczająco dużym pojemniku, tak aby aksolotl miał dużo miejsca do poruszania się po operacji.
Ta operacja ma również kilka ograniczeń. Być może najbardziej godne uwagi jest to, że powodzenie operacji można ocenić tylko na dwa sposoby: przy użyciu lunety preparacyjnej w ciągu pierwszych dwóch tygodni operacji w celu wyszukania braku naskórka rany i/lub sprawdzenia, czy blastema tworzy się w ciągu 3 tygodni. Chociaż te metody są skuteczne, mają stosunkowo niską przepustowość. Opracowanie przyszłych transgenicznych aksolotli reporterowych do markerów specyficznych dla naskórka ran może pomóc w szybszym badaniu przesiewowym pod kątem udanych i nieudanych operacji. Co więcej, operacja ta jest trudniejsza do wykonania u młodszych zwierząt, ponieważ nienaruszona skóra jest bardziej delikatna. W związku z tym zaleca się stosowanie aksolotli poniżej dorosłego osobnika lub dorosłego osobnika.
Chociaż ta operacja została pierwotnie opracowana u N. viridiscens19, została łatwo przystosowana do aksolotli25,39 i prawdopodobnie może być również zastosowana do innych gatunków salamandry. Podsumowując, zastosowanie tej techniki w przyszłych badaniach nad regeneracją kończyn umożliwi naukowcom zarówno opracowanie większej liczby narzędzi do badania biologii naskórka rany, jak i zidentyfikowanie mechanizmów leżących u podstaw jej funkcji w inicjowaniu powstawania blastemy.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Autor dziękuje Dougowi za jego nieustanne wsparcie i niezachwiane wsparcie, a także członkom laboratorium Melton za ich pomocne opinie i komentarze na temat rękopisu. Autor chciałby również podziękować Harvard Office of Animal Resources (OAR) za ich oddaną opiekę nad zwierzętami.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Zakrzywione nożyczki sprężynowe | Fine Scientific Tools | 15009-08 | |
| 3-aminobenzoesan etylu metanosulfonian (trikaina) | Sigma-Aldrich | 886-86-2 | |
| Kleszcze | Fine Scientific Tools | 11252-40 | Potrzebujesz dwóch par nylonowych |
| szwów monofilamentowych (9-0) | Roboz | SUT-1000-21 | |
| Wodorowęglan sodu | Sigma-Aldrich | S5761 | |
| Mikroskop stereoskopowy | Leica | MZ6 | |
| Sól sodowa sulfamerazyny | Sigma-Aldrich | 127-58-2 | |
| Nożyczki chirurgiczne | Fine Scientific Tools | 14002-14 |
Bibliografia
- Spallanzani, L. Prodromo Di Un'opera Da Imprimersi Sopra Le Riproduzioni Animali. , Nella Stamperia di Giovanni Montanari (1768).
- Gerber, T., et al. Single-cell analysis uncovers convergence of cell identities during axolotl limb regeneration. Science. , (2018).
- Leigh, N. D., et al. Transcriptomic landscape of the blastema niche in regenerating adult axolotl limbs at single-cell resolution. Nature Communications. 9 (1), 5153(2018).
- Kragl, M., et al. Cells keep a memory of their tissue origin during axolotl limb regeneration. Nature. 460 (7251), 60-65 (2009).
- McCusker, C., Bryant, S. V., Gardiner, D. M. The axolotl limb blastema: cellular and molecular mechanisms driving blastema formation and limb regeneration in tetrapods. Regeneration (Oxford). 2 (2), 54-71 (2015).
- Endo, T., Bryant, S. V., Gardiner, D. M. A stepwise model system for limb regeneration. Developmental Biology. 270 (1), 135-145 (2004).
- Tsai, S. L. The molecular interplay between progenitors and immune cells in tissue regeneration and homeostasis. Journal of Immunology and Regenerative Medicine. 7, 100024(2020).
- Godwin, J. W., Pinto, A. R., Rosenthal, N. A. Macrophages are required for adult salamander limb regeneration. Proceedings of the National Academy of Sciences of the United States of America. 110 (23), 9415-9420 (2013).
- Tanaka, E. M. The molecular and cellular choreography of appendage regeneration. Cell. 165 (7), 1598-1608 (2016).
- Campbell, L. J., Crews, C. M. Wound epidermis formation and function in urodele amphibian limb regeneration. Cellular and Molecular Life Sciences. 65 (1), 73-79 (2008).
- Fei, J. F., et al. Efficient gene knockin in axolotl and its use to test the role of satellite cells in limb regeneration. Proceedings of the National Academy of Sciences of the United States of America. 114 (47), 12501-12506 (2017).
- Sandoval-Guzman, T., et al. Fundamental differences in dedifferentiation and stem cell recruitment during skeletal muscle regeneration in two salamander species. Cell Stem Cell. 14 (2), 174-187 (2014).
- Tassava, R. A., Mescher, A. L. The roles of injury, nerves, and the wound epidermis during the initiation of amphibian limb regeneration. Differentiation. 4 (1), 23-24 (1975).
- Hay, E. D., Fischman, D. A. Origin of the blastema in regenerating limbs of the newt Triturus viridescens. An autoradiographic study using tritiated thymidine to follow cell proliferation and migration. Developmental Biology. 3, 26-59 (1961).
- Christensen, R. N., Tassava, R. A. Apical epithelial cap morphology and fibronectin gene expression in regenerating axolotl limbs. Developmental Dynamics. 217 (2), 216-224 (2000).
- Repesh, L. A., Oberpriller, J. C. Scanning electron microscopy of epidermal cell migration in wound healing during limb regeneration in the adult newt, Notophthalmus viridescens. American Journal of Anatomy. 151 (4), 539-555 (1978).
- Neufeld, D. A., Day, F. A., Settles, H. E. Stabilizing role of the basement membrane and dermal fibers during newt limb regeneration. Anatomical Record. 245 (1), 122-127 (1996).
- Singer, M., Saltpeter, M. M. Growth in Living Systems. Zarrow, M. X. , Basic Books. New York. (1961).
- Mescher, A. L. Effects on adult newt limb regeneration of partial and complete skin flaps over the amputation surface. Journal of Experimental Zoology. 195 (1), 117-128 (1976).
- Tassava, R. A., Garling, D. J. Regenerative responses in larval axolotl limbs with skin grafts over the amputation surface. Journal of Experimental Zoology. 208 (1), 97-110 (1979).
- Tornier, G. Der Kampf der Gewebe im Regeneratbei Begunsiigung der Hautregeneralion. Arch. Entwmech. 22, 348-352 (1906).
- Goss, R. J. Regenerative inhibition following limb amputation and immediate insertion into the body cavity. Anatomical Record. 126 (1), 15-27 (1956).
- Thornton, C. S. The effect of apical cap removal on limb regeneration in Amblystoma larvae. Journal of Experimental Zoology. 134 (2), 357-381 (1957).
- Thornton, C. S. The inhibition of limb regeneration in urodele larvae by localized irradiation with ultraviolet light. Journal of Experimental Zoology. 137 (1), 153-179 (1958).
- Tsai, S. L., Baselga-Garriga, C., Melton, D. A. Midkine is a dual regulator of wound epidermis development and inflammation during the initiation of limb regeneration. Elife. 9, (2020).
- Nowoshilow, S., et al. The axolotl genome and the evolution of key tissue formation regulators. Nature. 554 (7690), 50-55 (2018).
- Elewa, A., et al. Reading and editing the Pleurodeles waltl genome reveals novel features of tetrapod regeneration. Nature Communications. 8 (1), 2286(2017).
- Bryant, D. M., et al. A Tissue-Mapped Axolotl De Novo Transcriptome Enables Identification of Limb Regeneration Factors. Cell Reports. 18 (3), 762-776 (2017).
- Looso, M., et al. A de novo assembly of the newt transcriptome combined with proteomic validation identifies new protein families expressed during tissue regeneration. Genome Biology. 14 (2), 16(2013).
- Abdullayev, I., Kirkham, M., Bjorklund, A. K., Simon, A., Sandberg, R. A reference transcriptome and inferred proteome for the salamander Notophthalmus viridescens. Experimental Cell Research. 319 (8), 1187-1197 (2013).
- Burns, J. A., Zhang, H., Hill, E., Kim, E., Kerney, R. Transcriptome analysis illuminates the nature of the intracellular interaction in a vertebrate-algal symbiosis. Elife. 6, (2017).
- Nakamura, K., et al. A transcriptome for the study of early processes of retinal regeneration in the adult newt, Cynops pyrrhogaster. PLoS One. 9 (10), 109831(2014).
- Smith, J. J., et al. A chromosome-scale assembly of the axolotl genome. Genome Research. 29 (2), 317-324 (2019).
- Arenas Gomez, C. M., Woodcock, R. M., Smith, J. J., Voss, S. R., Delgado, J. P. Using transcriptomics to enable a plethodontid salamander (Bolitoglossa ramosi) for limb regeneration research. BMC Genomics. 19 (704), (2018).
- Fei, J. F., et al. Application and optimization of CRISPR-Cas9-mediated genome engineering in axolotl (Ambystoma mexicanum). Nature Protocols. 13 (12), 2908-2943 (2018).
- Flowers, G. P., Timberlake, A. T., McLean, K. C., Monaghan, J. R., Crews, C. M. Highly efficient targeted mutagenesis in axolotl using Cas9 RNA-guided nuclease. Development. 141 (10), 2165-2171 (2014).
- Khattak, S., et al. Optimized axolotl (Ambystoma mexicanum) husbandry, breeding, metamorphosis, transgenesis and tamoxifen-mediated recombination. Nature Protocols. 9 (3), 529-540 (2014).
- Joven, A., Elewa, A., Simon, A. Model systems for regeneration: salamanders. Development. 146 (14), (2019).
- Johnson, K., Bateman, J., DiTommaso, T., Wong, A. Y., Whited, J. L. Systemic cell cycle activation is induced following complex tissue injury in axolotl. Developmental Biology. 433 (2), 461-472 (2018).
Przedruki i uprawnienia
