Przedstawiono hodowlę in vitro kory jajników bydła oraz wpływ żywieniowej diety Stair-step na mikrośrodowisko jajników. Fragmenty kory jajnikowej hodowano przez siedem dni i oceniano steroidy, cytokiny i stadia pęcherzyków. Leczenie dietą Stair-Step miało zwiększoną steroidogenezę, co spowodowało progresję pęcherzyków w hodowli.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Posiewy tkankowe kory jajników bydła
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Rozwój pęcherzyka od stadium pierwotnego do antralnego jest dynamicznym procesem w korze jajnika, który obejmuje czynniki endokrynne i parakrynne z komórek somatycznych oraz komunikację komórka wzgórka - oocyt. Niewiele wiadomo na temat mikrośrodowiska jajników i tego, jak cytokiny i steroidy wytwarzane w otaczającym środowisku wpływają na progresję lub zatrzymanie pęcherzyków. Hodowla in vitro kory jajnikowej umożliwia rozwój pęcherzyków jajnikowych w znormalizowanym środowisku, które pozostaje podtrzymywane przez sąsiednie zrąb. Naszym celem było określenie wpływu diety Stair-Step na mikrośrodowisko jajników (rozwój pęcherzyków, produkcja steroidów i cytokin) poprzez hodowlę in vitro kory jajników bydła. Aby to osiągnąć, usunięto fragmenty kory jajnikowej z jałówek, które zostały poddane dwóm różnym schematom żywieniowym opracowanym przed okresem dojrzewania: Control (tradycyjny rozwój żywienia) i Stair-Step (karmienie i ograniczanie podczas rozwoju), które zostały pocięte na około 0,5-1 mm3 kawałki. Kawałki te zostały następnie przepuszczone przez serię płukań i umieszczone na wkładce do hodowli tkankowej, która jest umieszczana w studzience zawierającej pożywkę hodowlaną Waymouth. Korę jajnika hodowano przez 7 dni z codziennymi zmianami pożywki hodowlanej. Przeprowadzono sekcje histologiczne w celu określenia zmian stadium pęcherzyków przed i po hodowli, aby określić efekty odżywiania i wpływ hodowli bez dodatkowego leczenia. Pożywkę hodowlaną kory mózgowej łączono w ciągu kilku dni w celu zmierzenia steroidów, metabolitów steroidowych i cytokin. Stwierdzono tendencje do zwiększonego stężenia hormonów steroidowych w mikrośrodowisku jajników, co pozwoliło na progresję pęcherzyków w hodowlach kory jajnikowej Stair-Step versus Control. Technika hodowli kory jajnikowej pozwala na lepsze zrozumienie mikrośrodowiska jajników oraz tego, w jaki sposób zmiany w wydzielaniu hormonalnym mogą wpływać na progresję i wzrost pęcherzyków jajnikowych zarówno w przypadku leczenia in vivo, jak i in vitro. Ta metoda hodowli może również okazać się korzystna w testowaniu potencjalnych środków terapeutycznych, które mogą poprawić progresję pęcherzyków jajnikowych u kobiet w celu promowania płodności.
Wprowadzenie
Kora jajnika reprezentuje zewnętrzną warstwę jajnika, w której zachodzi rozwój pęcherzyka1. Pęcherzyki pierwotne, początkowo zatrzymane w rozwoju, zostaną aktywowane, aby stać się pęcherzykami pierwotnymi, wtórnymi, a następnie antralnymi lub trzeciorzędowymi w oparciu o dane wejściowe parakrynne i gonadotropinowe1,2,3,4. Aby lepiej zrozumieć procesy fizjologiczne zachodzące w jajniku, hodowla tkankowa może być wykorzystana jako model in vitro, co pozwala na prowadzenie eksperymentów w kontrolowanym środowisku. W wielu badaniach wykorzystano hodowlę tkanki jajnika do badań nad technikami wspomaganego rozrodu, zachowaniem płodności i rakiem jajnika5,6,7. Posiew tkanki jajnikowej posłużył również jako model do badania toksyn rozrodczych, które uszkadzają zdrowie jajników i etiologię zaburzeń rozrodczych, takich jak zespół policystycznych jajników (PCOS)8,9,10,11. W związku z tym ten system hodowli ma zastosowanie do szerokiej gamy specjalności.
U gryzoni całe płodowe lub okołoporodowe gonady były używane w eksperymentach z zakresu biologii rozrodu12,13,14,15. Jednak gonady od większych zwierząt gospodarskich nie mogą być hodowane jako całe narządy ze względu na ich duże rozmiary i potencjalną degenerację. W związku z tym kora jajników naczelnych bydła i innych niż ludzie jest cięta na mniejsze kawałki16,17,18. W wielu badaniach wyhodowano fragmenty małej kory jajnika w celu zbadania różnych czynników wzrostu w inicjacji pęcherzyków pierwotnych u zwierząt gospodarskich i naczelnych innych niż ludzie1,17,18,19. Zastosowanie posiewu kory jajnikowej wykazało również pierwotną inicjację pęcherzyków jajnikowych przy braku surowicy dla fragmentów kory bydła i naczelnych hodowanych przez 7 dni20. Yang i Fortune w 2006 roku potraktowali pożywkę hodowlaną kory jajników płodu różnymi dawkami testosteronu przez 10 dni i zaobserwowali, że stężenie testosteronu 10-7 M zwiększyło rekrutację pęcherzyków, przeżycie i zwiększoną progresję pęcherzyków we wczesnym stadium19. W 2007 roku, wykorzystując posiewy kory jajnikowej od płodów bydlęcych (5-8 miesięcy ciąży), Yang i Fortune opisali rolę czynnika wzrostu śródbłonka naczyniowego A (VEGFA) w przejściu między pęcherzykami pierwotnymi a wtórnymi21. Ponadto nasze laboratorium wykorzystało posiewy kory jajnikowej, aby zademonstrować, w jaki sposób izoformy VEGFA (angiogenne, antyangiogenne i kombinacja) mogą regulować różne szlaki transdukcji sygnału przez receptor domeny kinazy (KDR), który jest głównym receptorem transdukcji sygnału, który wiąże VEGFA16. Informacje te pozwoliły lepiej zrozumieć, w jaki sposób różne izoformy VEGFA wpływają na szlaki sygnałowe w celu wywołania progresji lub zatrzymania pęcherzyków. Podsumowując, hodowla fragmentów kory jajnikowej in vitro z różnymi steroidami lub czynnikami wzrostu może być cennym testem pozwalającym określić wpływ na mechanizmy regulujące folikulogenezę. Podobnie zwierzęta, które rozwijają się w różnych reżimach żywieniowych, mogą mieć zmienione mikrośrodowisko jajników, co może sprzyjać lub hamować folikulogenezę wpływającą na dojrzałość reprodukcyjną samic. Dlatego naszym celem w obecnym manuskrypcie jest przedstawienie techniki hodowli kory bydła i ustalenie, czy istnieją różnice w mikrośrodowiskach jajników po hodowli in vitro kory bydlęcej od jałówek karmionych dietą kontrolną lub schodkową pobraną w wieku 13 miesięcy, jak opisano wcześniej16.
Dlatego naszym następnym krokiem było określenie mikrośrodowiska jajników u tych jałówek, które zostały opracowane z różnymi dietami żywieniowymi. Oceniliśmy korę jajnikową jałówek karmionych dietą Stair-Step lub Control. Jałówkom kontrolnym podawano dietę podtrzymującą w ilości 97,9 g/kg0,75 przez 84 dni. Dieta Stair-Step została rozpoczęta w wieku 8 miesięcy i zawierała dietę o ograniczonym żywieniu w ilości 67,4 g/kg0,75 przez 84 dni. Po pierwszych 84 dniach, podczas gdy jałówki z grupy kontrolnej nadal otrzymywały 97,9 g/kg0,75, jałówkom mięsnym Stair-Step zaoferowano 118,9 g/kg0,75 przez kolejne 68 dni, po czym poddano je owariektomii w wieku 13 miesięcy16 w celu zbadania zmian w stadiach pęcherzykowych i morfologii przed i po hodowli. Przeprowadziliśmy również badania różnic w steroidach, metabolitach steroidowych, chemokinach i cytokinach wydzielanych do pożywki korowej. Steroidy i inne metabolity mierzono w celu ustalenia, czy leczenie przeprowadzone in vivo i/lub in vitro miało bezpośredni wpływ na żywotność i produktywność tkanek. Zmiany w mikrośrodowisku jajników przed i po posiewie dostarczyły obrazu środowiska endokrynologicznego i folikulogenezy przed posiewem oraz tego, jak posiew lub leczenie podczas hodowli wpływają na progresję lub zatrzymanie pęcherzyków.
Jajniki zostały pobrane po przeprowadzeniu owariektomii w Amerykańskim Centrum Badań nad Zwierzętami Mięsnymi (USMARC) zgodnie z ich procedurami IACUC od jałówek kontrolnych i schodkowych w wieku 13 miesięcy16, oczyszczone sterylnym buforem fosforanowym soli fizjologicznej (PBS) przemyte 0,1% antybiotykiem w celu usunięcia krwi i innych zanieczyszczeń, przycięte nadmiar tkanki i przetransportowane do laboratorium Fizjologii Rozrodu Uniwersytetu Nebraska-Lincoln (UNL) UNL w 37°C23. W UNL fragmenty kory jajnikowej pocięto na małe kwadratowe kawałki (~0,5-1 mm3; Rysunek 1) i hodowane przez 7 dni (Rysunek 2). Histologię przeprowadzono na szkiełkach hodowlanych kory mózgowej przed i po hodowli w celu określenia etapów pęcherzyków włosowych16,24 (Rysunek 3 i Rysunek 4) oraz białka macierzy zewnątrzkomórkowej, które mogą wskazywać na zwłóknienie (Picro-Sirus Red, PSR; Rysunek 5). Pozwoliło to na określenie wpływu reżimów żywieniowych in vivo na stadia pęcherzykowe i umożliwiło porównanie 7 dni kory jajnikowej na stadia pęcherzykowe i progresję pęcherzyków. W całej hodowli pożywka była zbierana i zmieniana codziennie (około 70% pożywki było zbierane każdego dnia; 250 μl / studzienkę), tak aby codzienne hormony/cytokiny/chemokiny mogły być oceniane lub łączone przez dni w celu uzyskania średnich stężeń. Steroidy, takie jak androstendion (A4) i estrogen (E2), można gromadzić przez 3 dni i oceniać za pomocą testu radioimmunologicznego (RIA; Rysunek 6) i łączone przez 4 dni na zwierzę i oznaczane za pomocą wysokosprawnej chromatografii cieczowej ze spektrometrią mas (HPLC-MS)24,25 (Tabela 1). Macierze cytokin wykorzystano do oceny stężeń cytokin i chemokiny w hodowli kory jajników w pożywce26 (Tabela 2). Przeprowadzono testy reakcji łańcuchowej polimerazy w czasie rzeczywistym (RT-PCR) w celu określenia ekspresji genów dla określonych szlaków transdukcji sygnału, jak wykazano wcześniej16. Wszystkie steroidy, cytokiny, stadium pęcherzykowe i markery histologiczne dostarczają obrazu mikrośrodowiska jajników i wskazówek co do zdolności tego mikrośrodowiska do promowania "normalnej" lub "nieprawidłowej" folikulogenezy.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
Jajniki pozyskano z U. S. Meat Animal Research Center16. Jak stwierdzono wcześniej16, wszystkie procedury zostały zatwierdzone przez Komitet ds. Opieki i Wykorzystania Zwierząt (Animal Care and Use Committee) w U.S. Meat Animal Research Center (USMARC) zgodnie z wytycznymi dotyczącymi opieki i wykorzystania zwierząt hodowlanych w badaniach i nauczaniu rolniczym. Jajniki przetransportowano do Laboratorium Reprodukcyjnego Uniwersytetu w Nebraska-Lincoln, gdzie zostały poddane obróbce i hodowli.
1. Przygotowanie wymaganych pożywek
- Pożywka Waymouth MB 752/1
- Napełnić butelkę do hodowli tkankowych o pojemności 1 L ilością 90 mL sterylnej wody. Podczas powolnego mieszania wody na mieszadle magnetycznym stopniowo dodać sproszkowaną pożywkę. Po rozpuszczeniu sproszkowanej pożywki dodać 2,24 g wodorowęglanu sodu, a następnie 1,25 g albuminy surowicy bydlęcej (BSA). Za pomocą pH-metru dostosować pH do wartości 7,25-7,35. Dolać sterylnej wody, aby uzyskać objętość końcową 1 L.
- Przenieść butelkę do komory z laminarnym przepływem powietrza i dodać siarczan penicyliny-streptomycyny w stężeniu 0,1% v/v pożywki. Przefiltrować pożywkę przez filtr nakrętkowy o rozmiarze porów 0,2 µm i powierzchni 3,2 cm2 (pojemność 50 mL).
- Przelać przefiltrowaną pożywkę do kilku probówek stożkowych o pojemności 50 mL. Do każdej 50 mL alikwotu pożywki dodać 0,5 mL mieszaniny Insulin-Transferrin-Selenium.
- Probówki stożkowe oraz butelkę zapasową z pożywką owinąć folią aluminiową i przechowywać w temperaturze 4 °C. Pożywka ta jest światłoczuła.
UWAGA: Pożywkę Waymouth można przechowywać do 1 miesiąca.
- Pożywka Leibovitz's L-15 (LB-15)
UWAGA: Pożywka LB-15 jest używana do oczyszczania tkanek w przygotowaniu do hodowli.- Napełnić butelkę do hodowli tkankowych o pojemności 1 L ilością 90 mL sterylnej wody. Podczas powolnego mieszania sterylnej wody na mieszadle magnetycznym stopniowo dodać przygotowaną sproszkowaną pożywkę. Za pomocą pH-metru dostosować pH do wartości 7,25-7,35. Dolać sterylnej wody, aby uzyskać objętość końcową 1 L.
- Przenieść do komory z laminarnym przepływem powietrza. Przygotować 1 L pożywki LB-15 z 0,1% antybiotyku (patrz Tabela materiałów). Przefiltrować pożywkę do dwóch butelek do hodowli tkankowych o pojemności 50 mL, używając filtra nakrętkowego o rozmiarze porów 0,2 µm i powierzchni 3,2 cm2 (pojemność 50 mL). Butelki owinąć folią aluminiową, ponieważ pożywka LB-15 jest światłoczuła, i przechowywać w temperaturze 4 °C.
UWAGA: Pożywkę LB-15 można przechowywać do 1 miesiąca.
- Bufor fosforanowy (PBS)
- Przygotować PBS w laboratorium lub zakupić sterylny PBS bez dodatku wapnia i magnezu (Tabela materiałów). Aby przygotować PBS w laboratorium, zacząć od 80 mL wody destylowanej i dodać do niej 8 g chlorku sodu (NaCl). Następnie dodać 0,2 g chlorku potasu (KCl), 1,4 g fosforanu sodu dwuzasadowego (Na2HPO4) oraz 0,24 g fosforanu potasu dwuzasadowego (KH2PO4). Dostosować pH do poziomu ~7,4 i uzupełnić objętość całkowitą do 1 L. Zsterylizować roztwór w autoklawie.
- W komorze z laminarnym przepływem powietrza przygotować 1 L PBS z 0,1% antybiotyku (patrz Tabela materiałów).
2. Protokół hodowli kory jajnika
UWAGA: Jajniki pobrano od jałowic USMARC urodzonych wiosną w wieku 13 miesięcy. Jajniki zostały dokładnie opłukane, a całą krew i inne płyny usunięto za pomocą PBS zawierającego antybiotyk (0,1%), a następnie przetransportowano w temperaturze 37 °C23 do Laboratorium Reprodukcji Uniwersytetu Nebraska-Lincoln UNL (oddalonego o 1,5 h). (Komentarze dotyczące temperatury jajników podczas transportu znajdują się w sekcji Dyskusja)
- Przygotuj tkankę jajnika w komorze z laminarnym przepływem powietrza (Rysunek 1).
- Zdezynfekuj komorę 70% etanolem. Umieść na blacie świeżą podkładkę chłonną. Upewnij się, że nawiew komory został włączony na pół godziny przed sekcją wraz z lampą UV w celu sterylizacji zawartości komory, w tym podkładki chłonnej, oraz upewnij się, że stosowane są odpowiednie środki ochrony osobistej.
- Przygotuj szalki Petriego (60 x 15 mm) do płukania tkanek. Niezbędne są trzy szalki do płukania w PBS, trzy do PBS z antybiotykiem oraz trzy do płukania w LB-15. Dodatkowa szalka Petriego z pokrywką zawierająca LB-15 zostanie wykorzystana do końcowego umieszczenia fragmentów tkanek po zakończeniu płukania.
- Napełnij każdą szalkę Petriego około 10 mL odpowiednich płynów, PBS lub LB-15.
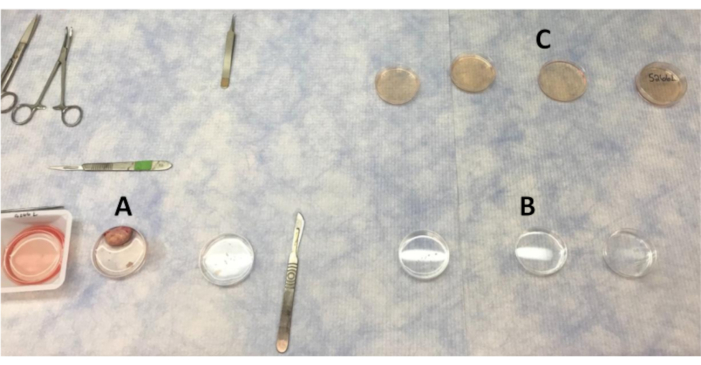
Rysunek 1: Układ płytek do płukania fragmentów jajnika i kory w komorze z laminarnym przepływem powietrza. (A) PBS używany do płukania jajnika podczas usuwania przekrojów kory. (Bpłukanie w PBS z antybiotykiem, w którym przemywa się fragmenty kory.CFragmenty kory jajnika płucze się czterokrotnie w LB-15, a następnie przenosi do komory bezpiecznej (kabiny biologicznej) w celu końcowego płukania w LB-15. Aby wyświetlić powiększoną wersję tego rysunku, kliknij tutaj.
- Wyjąć przygotowane medium Waymouth i LB-15 z lodówki i ogrzać do temperatury pokojowej.
- Autoklawować wszystkie narzędzia, aby zapewnić sterylizację przed użyciem.
- Przechowywać jajniki w temperaturze 37 °C do momentu, aż kora jajnika będzie gotowa do pobrania.
- Używając pęsety ząbkowanymi końcami, uchwycić jajnik i dokładnie wypłukać w pierwszej płytce Petri z PBS. Przenieść jajnik do drugiego płukania w PBS i ponownie dokładnie oczyścić.
UWAGA: Jajnik pozostanie w drugim płukaniu w PBS podczas usuwania pasków kory jajnika. - Używając pęsety ząbkowanymi końcami, unieruchomić jajnik i przekroić go na pół. W tym momencie kora jajnika zostanie oddzielona od rdzenia. Używając linijki, upewnić się, że od rdzenia usunięto nie więcej niż 1–2 mm głębokości powierzchni jajnika16. Usunąć poprzeczne sekcje kory jajnika z rdzenia, wyciąć skalpelem (#1 ostrze skalpela; uchwyt #3) 3–4 cienkie paski kory jajnika (Rysunek 2) i umieścić paski w trzeciej płytce Petri z PBS.
UWAGA: W tym momencie można pobrać dodatkową tkankę kory jajnika do ekstrakcji RNA lub utrwalić ją i pobrać do badania histologicznego początkowych, niehodowanych fragmentów kory. Podczas usuwania pasków kory jajnika należy unikać obszarów z widocznymi pęcherzykami antralnymi lub ciałamiżółtymi. Dodatkowo należy unikać pobierania tkanki rdzenia. Histologia rdzenia jest bardzo różna, jak wykazano wcześniej16. Jeśli kora jajnika nie zostanie wycięta na głębokość większą niż 1–2 mm, rdzeń nie powinien zostać pobrany. Wyraźna histologia pozwala na wyznaczenie punktów orientacyjnych między korą a rdzeniem. - Paski kory jajnika w trzecim płukaniu w PBS pociąć ostrzem skalpela #21 na małe, kwadratowe fragmenty (~0,5–1 mm3). Pod płytkami Petri umieścić linijkę, aby upewnić się, że fragmenty mają podobny rozmiar i grubość, co zapewni spójność elementów kory jajnika. Używać pęsety do unieruchomienia pasków podczas wycinania fragmentów skalpelem.
UWAGA: Liczba wyciętych fragmentów tkanki zależy od eksperymentu. Cztery fragmenty kory jajnika to minimalna ilość tkanki niezbędna do hodowli. Inne metody zapewniające odpowiednią długość i głębokość obejmują stosowanie specjalnych slicerów26 lub dociętych plastikowych elementów jako szablonów27. - Przepłukać fragmenty kory jajnika we wszystkich trzech płytkach Petri z PBS zawierających antybiotyk. Do przenoszenia fragmentów między płukaniami używać pęsety z zakrzywioną końcówką.
- Przenieść fragmenty kory przez serię płukań LB-15 i umieścić w końcowej płytce Petri z LB-15. Opisać pokrywkę, podając identyfikator zwierzęcia i stronę jajnika (lewy lub prawy).
UWAGA: Całkowicie zanurzyć fragmenty kory jajnika w każdym płukaniu w celu dokładnego oczyszczenia. - Pobrać cztery fragmenty kory jajnika z każdego jajnika i utrwalić do badania histologicznego dnia zerowego. Dodatkowe fragmenty można również zamrozić w ciekłym azocie do ekstrakcji RNA. Pozostałe fragmenty tkanki zostaną wykorzystane do hodowli. Przetrzeć narzędzia do sekcji 70% etanolem po każdym pobraniu tkanki.
- Przygotować komorę bezpiecznej pracy biologicznej do końcowego płukania tkanki i przygotowania hodowli. Dezynfekować materiały 70% etanolem przed umieszczeniem w komorze bezpiecznej pracy biologicznej. Podczas pracy w komorze bezpiecznej pracy biologicznej stosować technikę aseptyczną.
- Przenieść całą korę jajnika przeznaczoną do hodowli do komory bezpiecznej pracy biologicznej i wypłukać ją raz jeszcze w płytce Petri z LB-15.
- Do płytki hodowlanej z 24 dołkami pipetować 350 µL medium Waymouth na każdy dołek.
- Za pomocą pęsety umieścić niepowlekane wkłady hodowlane w każdym dołku. Upewnić się, że pod podstawą wkładu nie powstały pęcherzyki powietrza, ponieważ mogłoby to doprowadzić do wyschnięcia tkanki. Medium musi stykać się z wkładami, aby mogło być wchłaniane w górę i otaczać fragmenty kory jajnika.
- Ostrożnie ułożyć cztery fragmenty kory jajnika na siatce każdego wkładu (Rysunek 2). Pęseta może przebić siatkę, jeśli fragmenty tkanki nie zostaną ułożone delikatnie. Fragmenty tkanki nie powinny stykać się ze sobą ani z boczkiem wkładu.
- Inkubować tkankę w temperaturze 37 °C przy 5% CO216.
UWAGA: Inni autorzy stosowali temperaturę 38,8 °C28. Jednak nie zaobserwowano różnic w integralności tkanki ani w zdolności pęcherzyków do rozwoju w temperaturze 37 °C, co potwierdzili również inni39,30. Zatem na tym etapie każda z tych temperatur powinna sprzyjać sukcesowi eksperymentu. Inni stosowali 40 µL medium. Obie objętości są dopuszczalne, pod warunkiem zachowania spójności i częściowego zanurzenia tkanki, co pozwala na odpowiednie napięcie powierzchniowe i nawodnienie tkanki (medium otaczające fragmenty kory jajnika). Puste dołki wypełnić 50 µL sterylnej wody, aby pomóc zmniejszyć parowanie z pozostałych dołków.
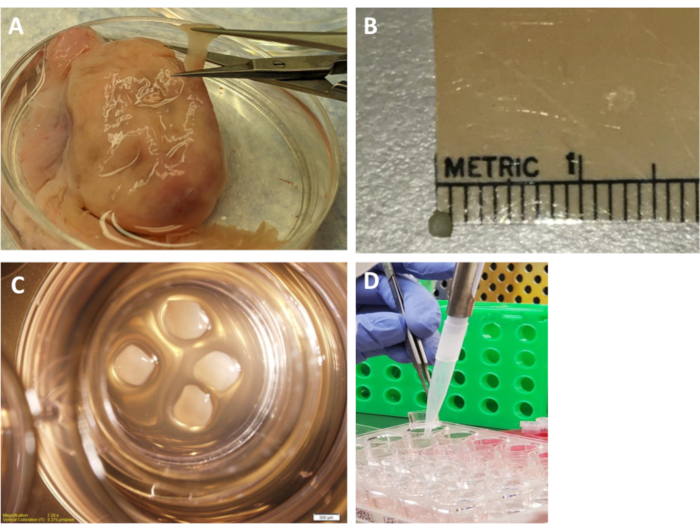
Rycina 2Fragmenty kory jajnika i płytka hodowlana. (A) Wycinanie paska jajnika z kory jajnika. (B) Obok siebie przedstawiono linijkę oraz fragment kory. (C) Cztery fragmenty kory (~0,5-1 mm3) spoczywający na wkładce w medium hodowlanym w płytce. (D) Podniesienie wkładki w celu zebrania pożywki z dołka. Codziennie należy zebrać i wymienić całą pożywkę (250 µL) w celu utrzymania odpowiedniego pH. Około 250 µL pobiera się z każdej dołki każdego dnia (około 70% początkowej pożywki hodowlanej). Proszę kliknąć tutaj, aby wyświetlić powiększoną wersję tej figury.
3. Zbiór pożywki
- Codziennie przez 7 dni wymieniaj pożywkę hodowlaną kory jajnika. Wymiany pożywki powinny odbywać się w odstępach jak najbliższych 24 h, aby zapobiec gwałtownym zmianom pH i koloru pożywki. Przed wymianą podgrzej pożywkę Waymouth do 37 °C. Każdego dnia z każdej studzienki uzyskuje się około 250 µL (około 70% początkowej pożywki hodowlanej).
- Podczas wymiany pożywki użyj pęsety, aby delikatnie podnieść wkład z jedynki. Zbierz zużytą pożywkę Waymouth do probówek 0,5 mL (około 250 µL/dobę). Umieść wkład z powrotem w studzience i dodaj 350 µL świeżej pożywki hodowlanej, dozując ją w przestrzeń między ścianką wkładu a studzienką.
UWAGA: Wymieniaj większość pożywki codziennie, aby uzyskać wystarczającą ilość materiału do pomiaru wszystkich steroidów, cytokin i chemokin niezbędnych do określenia mikrośrodowiska jajnika. Ponadto codzienne wymiany pożywki są istotne dla zapobiegania dużym zmianom pH (wskazanym zmianą koloru) w pożywce. Wokół fragmentów kory jajnika pozostawiono krople pożywki, aby zapewnić ich nawilżenie. Nie zaobserwowano żadnych problemów z hodowaną tkanką w wyniku wymiany 70% pożywki. - Zebraną pożywkę z hodowli tkankowej przechowuj w temperaturze -20 °C.
4. Obrazowanie i przetwarzanie danych
- Po 7 dniach hodowli w temperaturze 37 °C przy 5% CO2, należy wykonać obrazowanie fragmentów kory jajnika przy użyciu mikroskopu stereoskopowego z dołączoną kamerą i programem do przetwarzania obrazów komputerowych.
UWAGA: W celu uzyskania najlepszej jakości obrazowania zaleca się pracę w ciemni. - Po obrazowaniu należy utrwalić po dwa fragmenty kory jajnika z każdej studni w płynie Bouina do analiz histologicznych, a kolejne dwa fragmenty kory jajnika zamrozić gwałtownie w ciekłym azocie w celu pozyskania RNA do syntezy cDNA. Powtórzyć ten krok dla wszystkich studni z tkanką. Zebrać pożywkę z 7 dni i przechowywać w temperaturze -20 °C.
- Pozostawić fragmenty kory jajnika zanurzone w płynie Bouina (kwas pikrykowy 750 mL, lodowaty kwas octowy 50 mL i formalina 37%–40% 250 mL) przez około 1,5 h, a następnie przemyć trzykrotnie 70% etanolem. Tkanka powinna pozostawać w 70% etanolu i być codziennie przekładana do świeżego roztworu, aż przestanie być żółta.
UWAGA: Można stosować inne utrwalacze niż płyn Bouina, w tym paraformaldehyd. W tym doświadczeniu zastosowano płyn Bouina, ponieważ zapewnia on optymalną morfologię. Jeśli do innych analiz wymagana jest większa ilość tkanki, z każdego zwierzęcia można pobrać dodatkowe studnie z pożywką i fragmenty kory jajnika.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Niniejszą procedurę hodowli kory jajnika bydlęcego można wykorzystać do pozyskania szerokiego zakresu danych dotyczących hormonów, cytokin oraz danych histologicznych z niewielkich fragmentów jajnika. Barwienia, takie jak hematoksylina i eozyna (H&E), można wykorzystać do określenia morfologii jajnika poprzez etapowanie pęcherzyków16,23,31 (Rysunek 3). W skrócie pęcherzyki zaklasyfikowano jako: ...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Zaletą hodowli kory jajnikowej in vitro, opisaną w tym manuskrypcie, jest to, że pęcherzyki rozwijają się w znormalizowanym środowisku z sąsiednim zrębem otaczającym pęcherzyki. Komórki somatyczne i oocyt pozostają nienaruszone, a komunikacja międzykomórkowa jest odpowiednia jako model in vivo. Nasze laboratorium odkryło, że 7-dniowy system hodowli dostarcza reprezentatywnych danych dotyczących folikulogenezy i steroidogenezy w leczeniu kory jajników. Inne protokoły hodowli tkanek jajnika mają albo stosunkowo krótkie okr...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
To badanie było wspierane przez National Institute of Food and Agriculture 2013-67015-20965 dla ASC, University of Nebraska Food for Health Competitive Grants to ASC. Przyznanie przez Departament Rolnictwa Stanów Zjednoczonych Hatch NEB26-202/W3112 Akcesje #1011127 do ASC, Akcesje Hatch–NEB ANHL #1002234 do ASC. Quantitative Life Sciences Initiative Summer Postdoctoral Scholar Support – COVID-19 Award za letnie finansowanie CMS.
Autorzy chcieliby wyrazić swoje uznanie dla Dr. Roberta Cushmana, U.S. Meat Animal Research Center, Clay Center, NE, aby podziękować mu za dostarczenie jajników w poprzedniej publikacji, które następnie zostały wykorzystane w obecnej pracy jako dowód koncepcji w walidacji tej techniki.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| #11 Ostrze Scapel | Swann-Morton | 303 | Ostrze Szpulki |
| #21 Ostrze Scapel | Swann-Morton | 307 | Scaple Blade |
| 500 ml Filtr górny do butelki | Corning | 430514 | Filtr górny do butelek 0,22 i mikro; m por dla medium filtracyjnego |
| Test AbsoluteIDQ Sterol17 | Biocrates | Zestaw Sterol17 | Próbki są wysyłane do Biocrates, a panele steroidowe są uruchamiane, a wyniki są zwracane |
| Zestaw RIA z podwójnym przeciwciałem androstendionu | MPBio | 7109202 | RIA do oznaczania androstendionu z pożywki hodowlanej |
| Belgijski zestaw do oznaczania A4 | Źródło DIA | KIP0451 | RIA do oznaczania androstendionu z pożywki hodowlanej |
| Bydlęca tablica cytokin Q3 | RayBiotech | QAB-CYT-3-1 | Zestaw cytokin do oznaczania cytokin z pożywki |
| hodowlanej Oprogramowanie Sens Standard 1.3 | Oprogramowanie do obrazowania | Olympus | 7790 |
| Insulina-Transferyna-Selen-X | Gibco ThermoFisher Scientific | 5150056 | Dodatek do pożywki |
| hodowlanejLeibovitz's L-15 Medium | Gibco ThermoFisher Scientific | 4130039 | Służy do mycia tkanek na czystym stole oraz w kabinie bezpieczeństwa biologicznego |
| Mikroskop | Olympus | SZX16 | używany do obrazowania fragmentów kultur tkankowych |
| Kamera mikroskopowa | Kamera mikroskopowa Olympus | DP71 | służy do obrazowania fragmentów kultur tkankowych |
| Wkładki do hodowli komórkowych Millicell 0,4 i mikro; m, 12,mm Średnica | Millipore Sigma | PICM01250 | Wkładki, które pozwalają tkance opierać się o podłoże bez zanurzania się w nim |
| Płytka Multiwell 24-dołkowa | Falcon | 353047 | Płytka służąca do przechowywania meduim, wkładek i tkanek |
| Szalka Petriego 60 x 15 mm | Falcon | 351007 | szalka Petriego używana do mycia etapów przed hodowlą |
| Sól fizjologiczna buforowana fosforanami (PBS 1X) | Corning | 21-040- CV | Używany do mycia tkanek |
| SAS Wersja 9.3 | SAS Institute | 9.3 TS1M2 | Oprogramowanie do analizy statystycznej |
| Thomas Stadie-Riggs Tissue Slicer | Thomas Scientific | 6727C10 | Krajalnica do tkanek do przygotowania cienkich, jednolitych odcinków świeżej tkanki |
| Waymouth MB 752/1 Medium | Sigma-Aldrich | W1625 | Podłoże używane do hodowli tkankowych |
Bibliografia
- Braw-Tal, R., Yossefi, S. Studies in vivo and in vitro on the initiation of follicle growth in the bovine ovary. Journal of Reproduction and Fertility. 109, 165-171 (1997).
- Nilsson anEdson, M. A., Nagaraja, A. K., Matzuk, M. M. The mammalian ovary from genesis to revelation. Endocrine Reviews. 30 (6), 624-712 (2009).
- Fortune, J. E., Cushman, R. A., Wahl, C. M., Kito, S. The primordial to primary follicle transition. Molecular and Cellular Endocrinology. 163, 53-60 (2000).
- Ireland, J. J. Control of follicular growth and development. Journal of Reproduction and Fertility. 34, 39-54 (1987).
- Higuchi, C. M., Maeda, Y., Horiuchi, T., Yamazaki, Y. A simplified method for three-dimensional (3-D) ovarian tissue culture yielding oocytes competent to produce full-term offspring in mice. PLoS One. 10 (11), e0143114(2015).
- Ramezani, M., Salehnia, M., Jafarabadi, M. Short term culture of vitrified human ovarian cortical tissue to assess the cryopreservation outcome: molecular and morphological analysis. Journal of Reproduction & Infertility. 18 (1), 162-171 (2017).
- McLaughlin, M., Telfer, E. Oocyte development in bovine primordial follicles is promoted by activin and FSH within a two-step serum-free culture system. Reproduction. 139 (6), 971-978 (2010).
- Stefansdottir, A., Fowler, P. A., Powles-Glover, N., Anderson, R. A., Spears, N. Use of ovary culture techniques in reproductive toxicology. Reproductive Toxicology. 49, 117-135 (2014).
- Bromfield, J. J., Sheldon, I. M. Lipopolysaccharide reduces the primordial follicle pool in the bovine ovarian cortex ex vivo and in the murine ovary in vivo. Biology of Reproduction. 88 (4), 1-9 (2013).
- Franks, S., Stark, J., Hardy, K. Follicle dynamics and anovulation in polycystic ovary syndrome. Humane Reproduction Update. 14 (4), 367-378 (2008).
- Desmeules, P., Devine, P. J. Characterizing the ovotoxicity of cyclophosphamide metabolites on cultured mouse ovaries. Toxicological Sciences. 90 (2), 500-509 (2006).
- Bott, R. C., McFee, R. M., Clopton, D. T., Toombs, C., Cupp, A. S. Vascular endothelial growth factor and kinase domain region receptor are involved in both seminiferous cord formation and vascular development during testis morphogenesis in the rat. Biology of Reproduction. 75, 56-67 (2006).
- Baltes-Breitwisch, M. M., et al. Neutralization of vascular endothelial growth factor antiangiogenic isoforms or administration of proangiogenic isoforms stimulates vascular development in the rat testis. Reproduction. 140 (2), 319-329 (2010).
- McFee, R. M., et al. Inhibition of vascular endothelial growth factor receptor signal transduction blocks follicle progression but does not necessarily disrupt vascular development in perinatal rat ovaries. Biology of Reproduction. 81, 966-977 (2009).
- Artac, R. A., et al. Neutralization of vascular endothelial growth factor antiangiogenic isoforms is more effective than treatment with proangiogenic isoforms in stimulating vascular development and follicle progression in the perinatal rat ovary. Biology of Reproduction. 81, 978-988 (2009).
- Abedal-Majed, M. A., et al. Vascular endothelial growth factor A isoforms modulate follicle development in peripbertal heifers independent of diet through diverse signal transduction pathways. Biology of Reproduction. 102 (3), 680-692 (2020).
- Wandji, S. A., Srsen, V., Voss, A. K., Eppig, J. J., Fortune, J. E. Initiation in vitro of bovine primordial follicles. Biology of Reproduction. 55, 942-948 (1996).
- Wandji, S. A., Srsen, V., Nathanielsz, P. W., Eppig, J. J., Fortune, J. E. Initiation of growth of baboon primordial follicles in vitro. Human Reproduction. 12 (9), 1993-2001 (1993).
- Yang, M. Y., Fortune, J. E. Testosterone stimulates the primary to secondary follicle transition in bovine follicles in vitro. Biology of Reproduction. 75, 924-932 (2006).
- Fortune, J. E., Kito, S., Wandji, S. A., Srsen, V. Activation of bovine and baboon primordial follicles in vitro. Theriogenology. 49, 441-449 (1998).
- Yang, M. Y., Fortune, J. E. Vascular endothelial growth factor stimulates the primary to secondary follicle transition in bovine follicles in vitro. Molecular Reproduction and Development. 74, 1095-1104 (2007).
- Barberino, R. S., Silva, J. R. V., Figueiredo, J. R., Matos, M. H. T. Transport of domestic and wild animal ovaries: a review of the effects of medium, temperature, and periods of storage on follicular viability. Biopreservation and Biobanking. 17 (1), 84-90 (2019).
- Summers, A. F., et al. Altered theca and cumulus oocyte complex gene expression, follicular arrest and reduced fertility in cows with dominant follicle follicular fluid androgen excess. PLoS One. 9 (10), e110683(2014).
- Koal, T., Schmiederer, D., Pham-Tuan, H., Rohring, C., Rauh, M. Standardized LC-MS/MS based steroid hormone profile analysis. The Journal of Steroid Biochemistry and Molecular Biology. 129, 129-138 (2012).
- Poole, R. K., Brown, A. R., Pore, M. H., Pickworth, C. L., Poole, D. H. Effects of endophyte-infected tall fescue seed and protein supplementation on stocker steers: II. Adaptive and innate immune function. Journal of Animal Science. 97 (10), 4160-4170 (2019).
- Laronda, M., et al. Alginate encapsulation supports the growth and differentiation of human primordial follicles within ovarian cortical tissue. Journal of Assisted Reproduction and Genetics. 31 (8), 1013-1028 (2014).
- Silber, S. J., et al. A series of monozygotic twins discordant for ovarian failure: ovary transplantation (cortical versus microvascular) and cryopreservation. Human Reproduction. 23 (7), 1531-1537 (2008).
- Wiedemann, C., Zahmel, J., Jewgenow, K. Short-term culture of ovarian cortex pieces to assess the cryopreservation outcome in wild fields for genome conservation. BMC Veterinary Research. 9 (37), (2013).
- Baufeld, A., Vanselow, J. Increasing cell plating density mimics an early post-LH stage in cultured bovine granulosa cells. Cell and Tissue Research. 354 (3), 869-880 (2013).
- Shimizu, T., Miyamoto, A. Progesterone induces the expression of vascular endothelial growth factor (VEGF) 120 and Flk-1, its receptor, in bovine granulosa cells. Animal Reproduction Science. 102 (3-4), 228-237 (2007).
- Tepekoy, F., Akkoyunlu, G. The effect of FSH and activin A on Akt and MAPK1/3 phosphorylation in cultured bovine ovarian cortical strips. Journal of Ovarian Research. 9 (13), 1-9 (2016).
- Beck, K., Singh, J., Arshud Dar, M., Anzar, M. Short-term culture of adult bovine ovarian tissues: chorioallantoic membrane (CAM) vs. traditional in vitro culture systems. Reproductive Biology and Endocrinology. 16 (1), 21(2018).
- Eppig, J. J. Oocyte control of ovarian follicular development and function in mammals. Reproduction. 122 (6), 829-838 (2001).
- Paczkowski, M., Silva, E., Schoolcraft, W. B., Krisher, R. L. Comparative importance of fatty acid beta-oxidation to nuclear maturation, gene expression, and glucose metabolism in mouse, bovine, and porcine cumulus oocyte complexes. Biology of Reproduction. 88 (5), 1-11 (2013).
- Raffel, N., et al. Is ovarian tissue transport at supra-zero temperatures compared to body temperature optimal for follicle survival? In Vivo. 34 (2), 533-541 (2020).
- Duncan, F., et al. Ovarian tissue transport to expand access to fertility preservation: from animals to clinical practice. Reproduction (Cambridge, England). 152 (6), R201-R210 (2016).
- Liebenthron, J., et al. Overnight ovarian tissue transportation for centralized cryobanking: a feasible option. Reproductive BioMedicine Online. 38 (5), 740-749 (2019).
- Mohammed, B. T., Donadeu, F. X. Bovine granulosa cell culture. Epithelial Cell Culture: Methods and Protocols. , 79-87 (2018).
- Langbeen, A., et al. Effects of neutral red assisted viability assessment on the cryotolerance of isolated bovine preantral follicles. Journal of Assisted Reproduction Genetics. 31, 1727-1736 (2014).
- Higuchi, C. M., Maeda, Y., Horiuchi, T., Yamazaki, Y. A simplified method for three-dimensional (3-D) ovarian tissue culture yielding oocytes competent to produce full-term offspring in mice. PLoS One. 10 (11), e0143114(2015).
- Yang, M. Y., Fortune, J. E. Changes in the transcriptome of bovine ovarian cortex during follicle activation in vitro. Physiological Genomics. 47, 600-611 (2015).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
