Opisujemy jednocząsteczkowe podejście do pomiarów powinowactwa antygenu i przeciwciała za pomocą fotometrii masowej (MP). Protokół oparty na MP jest szybki, dokładny, wykorzystuje bardzo małą ilość materiału i nie wymaga modyfikacji białek.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Szybkie oznaczanie powinowactwa przeciwciało-antygen za pomocą fotometrii masowej
W tym artykule
Podsumowanie
Streszczenie
Pomiary specyficzności i powinowactwa interakcji antygen-przeciwciało są niezwykle ważne dla zastosowań medycznych i badawczych. W tym protokole opisujemy implementację w tym celu nowej techniki jednocząsteczkowej, fotometrii masowej (MP). MP to technika wolna od znaczników i immobilizacji, która wykrywa i określa ilościowo masy cząsteczkowe i populacje przeciwciał oraz kompleksów antygen-przeciwciało na poziomie pojedynczej cząsteczki. MP analizuje próbkę przeciwciała antygenowego w ciągu kilku minut, co pozwala na precyzyjne określenie powinowactwa wiązania i jednocześnie dostarcza informacji na temat stechiometrii i stanu oligomerycznego białek. Jest to prosta i nieskomplikowana technika, która wymaga jedynie ilości białka pikomolu i nie wymaga drogich materiałów eksploatacyjnych. Ta sama procedura może być stosowana do badania wiązania białko-białko dla białek o masie cząsteczkowej większej niż 50 kDa. W przypadku interakcji białek wielowartościowych powinowactwa wielu miejsc wiązania można uzyskać w jednym pomiarze. Jednak jednocząsteczkowy sposób pomiaru i brak znakowania narzuca pewne ograniczenia eksperymentalne. Metoda ta daje najlepsze wyniki w przypadku zastosowania do pomiarów powinowactwa do oddziaływań submikromolowych, antygenów o masie cząsteczkowej 20 kDa lub większej oraz stosunkowo czystych próbek białek. Opisujemy również procedurę wykonywania wymaganych etapów montażu i obliczeń przy użyciu podstawowego oprogramowania do analizy danych.
Wprowadzenie
Przeciwciała stały się powszechnymi narzędziami biologii molekularnej i są szeroko wykorzystywane zarówno w zastosowaniach medycznych, jak i badawczych. W medycynie mają one krytyczne znaczenie w diagnostyce, jednak rozwijają się również ich zastosowania terapeutyczne, a stale opracowywane są nowe terapie oparte na przeciwciałach1,2,3,4. Naukowe zastosowania przeciwciał obejmują wiele niezbędnych technik laboratoryjnych, takich jak immunofluorescencja5, immunoprecypitacja6, cytometria przepływowa7, ELISA oraz western blotting. W każdym z tych zastosowań kluczowe znaczenie ma uzyskanie dokładnych pomiarów właściwości wiązania przeciwciała, w tym powinowactwa i specyficzności wiązania.
Od czasu wprowadzenia pierwszego komercyjnego urządzenia do pomiaru powierzchniowego rezonansu plazmonowego (SPR) w 1990 roku, optyczne biosensory stały się „złotym standardem” w charakterystyce przeciwciał, choć rutynowo stosuje się również inne techniki, w tym testy ELISA, do pomiaru powinowactwa przeciwciał8,9. Metody te zazwyczaj wymagają immobilizacji lub znakowania analizowanych cząsteczek, co potencjalnie może wpływać na badane oddziaływanie. Są one również stosunkowo powolne i wymagają wielu etapów analizy przed możliwością zgromadzenia wyników do analizy danych. Niedawno opracowana metoda jednocząsteczkowa, fotometria masowa (MP), wykrywa cząsteczki bezpośrednio w roztworze w momencie ich osiadania na powierzchni szkiełka podstawowego mikroskopu10,11. Detekcja optyczna oparta na rozpraszaniu światła, którą wykorzystuje MP, nie wymaga znakowania ani modyfikacji białek. Pojedyncze cząsteczki białek są rejestrowane przez interferometryczny mikroskop rozproszeniowy jako ciemne plamki widoczne na obrazie (Rycina 1D), a podczas minutowego pozyskiwania danych można wykryć kilka tysięcy cząsteczek12. Sygnał generowany przez każdą pojedynczą cząsteczkę jest kwantyfikowany i obliczana jest jego wartość kontrastu (względna ciemność). Interferometryczne wartości kontrastu są proporcjonalne do mas cząsteczkowych białek, co pozwala na identyfikację form związanych i wolnych w mieszaninie antygen-przeciwciało. Jednocześnie, poprzez zliczanie zdarzeń osiadania cząsteczek, MP bezpośrednio mierzy populacje poszczególnych form. Nadaje to metodom opartym na MP unikalną zdolność do niezależnego kwantyfikowania powinowactwa wielu miejsc wiązania.
Wiązanie cząsteczek antygenu (Ag) do dwóch miejsc wiążących nienaruszonego przeciwciała (Ab) można opisać następująco:
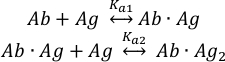
gdzie stałe asocjacji równowagowej Ka1 i Ka2 definiuje się jako:
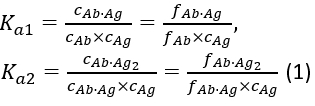
gdzie ci i fi reprezentują odpowiednio stężenie i frakcję składnika i. Całkowite stężenie antygenu (cAg)tot można wyrazić jako:
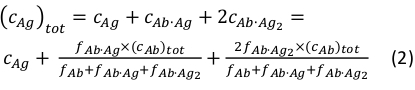
Ponieważ znane są całkowite stężenia przeciwciała (cAb)tot oraz antygenu (cAg)tot, równanie to można wykorzystać do bezpośredniego dopasowania eksperymentalnych frakcji komponentów uzyskanych z pomiarów MP i obliczenia stałych asocjacji równowagowej Ka1 oraz Ka2 (patrz Informacje uzupełniające).
Dane MP mogą być również wykorzystane do oszacowania kooperatywności pomiędzy dwoma miejscami wiązania przeciwciała11. Dla dwóch paratopów przeciwciała o identycznych mikroskopowych stałych wiązania, czynniki statystyczne opisujące proces powstawania kompleksów Ab·Ag oraz Ab·Ag2 sprawiają, że pozorne makroskopowe stałe równowagi Ka1 i Ka2 nie będą równe numerycznie, a Ka1 = 4Ka2. Zatem wartości eksperymentalne Ka1 < 4Ka2 wskazują na kooperatywność dodatnią pomiędzy dwoma miejscami wiązania przeciwciała. Podobnie, Ka1 > 4Ka2 wskazuje na kooperatywność ujemną.
Pomiary MP powinowactwa wiązania antygen-przeciwciało są szybkie i wymagają niewielkiej ilości materiału. Rozkłady masy MP wykorzystywane do obliczeń stałych równowagi dostarczają dodatkowych informacji o właściwościach próbki i umożliwiają ocenę jej czystości, oligomeryzacji oraz agregacji w ramach jednego eksperymentu. Tę samą metodę można zastosować do pomiaru wysokiego powinowactwa wiązania białko-białko, a MP jest szczególnie użyteczna w badaniach wielowartościowych oddziaływań białkowych. Kompleksy wielobiałkowe zazwyczaj mają duże masy cząsteczkowe, optymalne dla detekcji MP, a dane z poziomu pojedynczych cząsteczek mogą być wykorzystane do pomiaru stechiometrii i jednoczesnego obliczenia powinowactw wielu miejsc wiążących. Informacje te są zazwyczaj trudne do uzyskania przy użyciu metod objętościowych.
Bez modyfikacji obecny protokół nadaje się do pomiarów oddziaływań o stosunkowo wysokim powinowactwie, w zakresie submikromolarnym, z antygenami o masie cząsteczkowej 20 kDa lub większej. Dla uzyskania optymalnych wyników zapasy białek powinny charakteryzować się wysoką czystością, przy czym nie ma specyficznych wymagań dotyczących buforu. Dzięki zastosowaniu MP wiązanie antygen-przeciwciało można ocenić w czasie krótszym niż pięć minut. Gromadzenie i analiza danych niezbędne do dokładnych obliczeń Kd mogą zostać przeprowadzone w ciągu 30 minut.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
1. Przygotowanie komór przepływowych
- Oczyść szklane szkiełka pokrywkowe
- Za pomocą butelek do płukania z wodą destylowaną, etanolem i izopropanolem przepłucz szkiełka pokrywkowe o wymiarach 24 mm × 50 mm w następującej kolejności: woda, etanol, woda, izopropanol, woda. Osusz szkiełka strumieniem czystego azotu. Ważne jest, aby płukać szkiełka od góry do dołu, trzymając dolny róg za pomocą szczypczyków z miękkimi końcówkami. Osuszaj szkiełko w tym samym kierunku, aby uniknąć przeniesienia zanieczyszczeń ze szczypczyków (Ryc. 2A).
- Podobnie przepłucz szkiełka pokrywkowe o wymiarach 24 mm × 24 mm wodą destylowaną, etanolem i wodą destylowaną. Osusz szkiełka strumieniem czystego azotu.
- Określ stronę roboczą szkiełka pokrywkowego, kładąc kroplę wody destylowanej na powierzchni czystego szkiełka i postępując zgodnie z krokami 3.1–3.2 protokołu. Zazwyczaj tylko jedna strona szkiełka o wymiarach 24 mm × 50 mm ma jakość optyczną odpowiednią do pomiarów MP.
UWAGA: Po skupieniu nie powinno być wykrywalnych istotnych wad powierzchni, a wartość „sygnału” wyświetlana w oprogramowaniu do zbierania danych powinna być mniejsza niż 0,05% (Ryc. 1A–C). Strony robocze wszystkich szkiełek pokrywkowych w pudełku są zwrócone w tym samym kierunku. Tę samą procedurę należy zastosować do sprawdzenia skuteczności czyszczenia szkiełek pokrywkowych.
- Zamontuj komorę przepływową
- Umieść szkiełko pokrywkowe o wymiarach 24 mm × 24 mm na kawałku folii aluminiowej. Nałóż paski dwustronnej taśmy klejącej na szkiełko pokrywkowe o wymiarach 24 mm × 24 mm, jak pokazano na Ryc. 2B, i przyciął taśmę wzdłuż krawędzi szkła. Oddziel szkiełko pokrywkowe od folii aluminiowej i przymocuj je do strony roboczej szkiełka pokrywkowego o wymiarach 24 mm × 50 mm (Ryc. 2C).
UWAGA: Rozmiar kanału może się różnić, ale zalecana jest szerokość 3 mm–5 mm. Szerokie kanały wymagają większych objętości próbek, a bardzo wąskie mogą być trudne do napełnienia. Zazwyczaj na szkiełku pokrywkowym o wymiarach 24 mm × 24 mm można łatwo wykonać dwa równoległe kanały. Protokół może zostać tutaj wstrzymany.
- Umieść szkiełko pokrywkowe o wymiarach 24 mm × 24 mm na kawałku folii aluminiowej. Nałóż paski dwustronnej taśmy klejącej na szkiełko pokrywkowe o wymiarach 24 mm × 24 mm, jak pokazano na Ryc. 2B, i przyciął taśmę wzdłuż krawędzi szkła. Oddziel szkiełko pokrywkowe od folii aluminiowej i przymocuj je do strony roboczej szkiełka pokrywkowego o wymiarach 24 mm × 50 mm (Ryc. 2C).
2. Przygotowanie próbek przeciwciało-antygen do pomiarów powinowactwa
- Przefiltruj co najmniej 2 mL buforu PBS za pomocą filtrów do strzykawek o wielkości porów 0,22 µm, aby usunąć cząstki kurzu lub agregaty. Odprowadź próbkę białka w wirówce stołowej przez 10 minut z maksymalną prędkością (około 16 000 x g).
UWAGA: Bufor PBS jest zalecanym buforem dla tego protokołu, jednak mikroskopia plazmonowa (MP) nie ma szczególnych wymagań co do buforu, a inne bufory biologiczne również są dopuszczalne. Jednak wysokie stężenia glicerolu (>10%) oraz bardzo niskie siły jonowe (stężenie soli <10 mM) mogą wpływać na jakość obrazu i danych i nie są zalecane. - Wyznacz rzeczywiste stężenia zapasowych roztworów przeciwciała i antygenu, mierząc ich absorbancję w ultrafiolecie przy 280 nm.
- Oblicz stężenia pomiarowe mieszaniny antygen–przeciwciało. Jeśli przewidywana wartość powinowactwa przeciwciała nie jest znana, zaplanuj przygotowanie próbki o stężeniu 30 nM antygenu i 20 nM przeciwciała. Gdy przybliżone powinowactwo jest znane, stosunek przeciwciała do antygenu oraz ich stężenia należy zoptymalizować zgodnie z oczekiwanymi wartościami Kd. Użyj całkowitego stężenia antygenu w mieszaninie równego sumie oczekiwanej wartości Kd i całkowitego stężenia przeciwciała we wzorze poniżej. Zakładając, że Kd1 = Kd2 dla dwóch paratopów przeciwciała, uzyska się porównywalne stężenia wolnego przeciwciała oraz kompleksów przeciwciało–antygen w próbce.
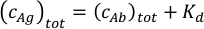
Dostosuj stężenie przeciwciała tak, aby całkowite stężenie białka w próbce mieściło się w zakresie od 10 nM do 50 nM. Najlepsze wyniki uzyskuje się dla mieszanin o stężeniach przeciwciała od 5 nM do 25 nM.
UWAGA: MP wykrywa białka o masie cząsteczkowej powyżej 40 kDa. W związku z tym stężenia próbek antygenów o masie cząsteczkowej mniejszej niż 40 kDa mogą przekraczać typowy limit 50 nM. Jednak przy stężeniach wyższych niż około 100 nM nawet antygeny o niskiej masie cząsteczkowej mogą wpływać na jakość obrazu i dokładność wyznaczania wartości Kd. - Przygotuj 50 µL mieszaniny przeciwciało–antygen o końcowym stężeniu pomiarowym obliczonym w kroku 2.3.
UWAGA: Do wyznaczenia wartości Kd wystarczy jedna próbka mieszaniny antygen–przeciwciało. Jednak przygotowanie kilku próbek o różnych stosunkach antygenu do przeciwciała może pomóc w zoptymalizowaniu stężenia próbki. Jeśli zebrano dane z kilku próbek, można je przeanalizować za pomocą dopasowania globalnego. - Incynuj mieszaninę (lub mieszaniny) antygen–przeciwciało przez około 10 minut w temperaturze pokojowej, aby umożliwić osiągnięcie równowagi chemicznej w reakcji wiązania. Unikaj niepotrzebnie długich czasów inkubacji.
UWAGA: Czas inkubacji może się różnić w zależności od kinetyki wiązania. Aby potwierdzić osiągnięcie równowagi chemicznej, pomiary próbki można powtórzyć po różnych czasach inkubacji. Niezmienne w czasie wartości Kd wskazują na wystarczająco długi czas inkubacji. Przedłużona inkubacja może prowadzić do znaczącego adsorbowania białek na powierzchni naczyń plastikowych, a tym samym do istotnych błędów w oznaczaniu stężenia białka. Z tego powodu do przygotowywania próbek do MP zdecydowanie zaleca się stosowanie naczyń o niskiej adhezji13.
3. Zbieranie danych fotometrii masy
- Nanieś kroplę oleju immersyjnego do mikroskopu na obiektyw urządzenia MP i umieść złożoną komorę przepływową na stoliku mikroskopu. Upewnij się, że olej wypełnia przestrzeń między pokrywką a obiektywem.
- Załaduj komorę przepływową i wyreguluj ostrość mikroskopu masowego.
- Zdeponuj 10 µL czystego, przefiltrowanego roztworu buforowego na jednym końcu kanału komory przepływowej przygotowanego w kroku 1. Płyn wpłynie do kanału na skutek działania sił kapilarnych.
- Dostosuj pozycję Z stoiku, aby zostrykować mikroskop na powierzchnię roboczą szkiełka o wymiarach 24 x 50 mm.
- W Kontrola ostrości w zakładce oprogramowania do zbierania danych użyj grubego przesuwu stołu Do góry i W dół przyciski, aby dokonać wstępnych ustawień.
- Kliknij przycisk Ostrość przycisk, aby wyświetlić odczyt sygnału ostrości, i użyj dokładnego Do góry i W dół przyciski regulacyjne w celu maksymalizacji Ostrość wartość
- Kliknij przycisk Ustaw ogniskowanie i Zablokuj ostrość przyciski do aktywowania funkcji śledzenia ostrości. Poprawnie wyfokusowany obraz (Rycina 1A, Cwartość „sygnału” powinna być poniżej 0,05%
UWAGA: Jeśli wartość „sygnału” w pozycji maksymalnej ostrości przekracza 0,05%, może to wskazywać na obecność zanieczyszczeń na powierzchni szkła lub w buforze.
- Korzystając z tego samego kanału, załaduj 20 µL próbki przeciwciało-antygen poprzez naniesienie jej na jedną stronę kanału i odprowadzenie cieczy z drugiego końca za pomocą małego kawałka bibuły filtracyjnej (Rycina 2D).
UWAGA: Objętość kanału o szerokości 3–5 mm wynosi około 10 µLDodatkową objętość próbki zaleca się w celu całkowitego wymycia buforu obecnego w kanale i uniknięcia rozcieńczenia próbki. - Po załadowaniu próbki natychmiast kliknij Zapisz przycisk, aby rozpocząć zbieranie danych, rejestrując 100-sekundowe nagranie wideo (Rycina 1D).
- Na końcu zbierania danych wprowadź nazwę pliku i kliknij OK aby zapisać plik danych.
- Odrzuć szkiełka nakrywkowe i wytrzyj olej z obiektywu za pomocą watowych patyczków optycznych zwilżonych izopropanolem.
UWAGA: Protokół można wstrzymać w tym miejscu.
4. Przeanalizuj dane MP
- Przetwórz zebrany plik wideo za pomocą oprogramowania do przetwarzania danych MP, aby zidentyfikować zdarzenia lądowania.
- Wybierz opcję menu Plik/Otwórz, aby załadować plik do analizy, a następnie kliknij przycisk Analizuj.
- Kliknij przycisk Wczytaj, aby załadować funkcję kalibracyjną, a następnie zapisz przeanalizowane dane za pomocą opcji menu Plik/Zapisz wyniki jako.
- Dopasuj rozkład masy cząsteczkowej przy użyciu funkcji Gaussa, aby uzyskać względne stężenia poszczególnych gatunków w próbce. Analizę tę można przeprowadzić za pomocą powszechnego oprogramowania do tworzenia wykresów naukowych (zobacz Tabelę materiałów).
- Zaimportuj plik „eventsFitted.csv” do oprogramowania i sporządź wykres rozkładu masy cząsteczkowej (kolumna M w pliku .csv) za pomocą funkcji Wykres/Statystyka/Histogram.
- Kliknij dwukrotnie na histogram, aby otworzyć okno Właściwości wykresu. Wyłącz automatyczne tworzenie przedziałów i wybierz rozmiar przedziału równy 2,5 kDa. Kliknij przyciski Zastosuj i Wykonaj, aby utworzyć dane Środki przedziałów i Liczba zdarzeń.
- Wybierz kolumny Środki przedziałów i Liczba zdarzeń, a następnie użyj funkcji menu Analiza/Piki i linia bazowa/Wielokrotne dopasowanie pików, aby dopasować histogram do funkcji Gaussa. Kliknij dwukrotnie, aby wskazać przybliżone położenia pików na wykresie rozkładu, a następnie kliknij przycisk Otwórz NLFit.
- Zaznacz pola wyboru Stała dla środków pików „xc” i ustaw ich wartości na oczekiwane masy cząsteczkowe wolnego przeciwciała oraz kompleksów pojedynczego i podwójnego przeciwciało-antygen. Zaznacz opcję Współdziel dla parametrów szerokości. Kliknij przycisk Dopasuj. Wartości wysokości dopasowanych pików składowych Gaussa reprezentują względne stężenie poszczególnych gatunków w próbce11.
UWAGA: Rozmiar przedziału może być dostosowany w celu zoptymalizowania rozdzielczości wykresu rozkładu masy. Granica dokładności MP wynosi około 1 kDa, a mniejsze rozmiary przedziałów mogą wzmocnić szum rozkładu, nie ujawniając dodatkowych informacji. Zbyt duże rozmiary przedziałów mogą zasłonić drobne szczegóły rozkładów mas.
- Oblicz ułamek stężenia każdego gatunku za pomocą następującego równania:
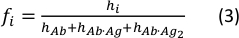
gdzie wartości hi i fi oznaczają odpowiednio wysokości pików oraz ułamki stężenia wolnego przeciwciała i przeciwciała związanego pojedynczo i podwójnie w próbce.
5. Oblicz wartości stałych równowagi
- Dopasuj stężenia frakcji gatunków uczestniczących w interakcji, obliczone w kroku 4.3, do równań 1 i 2 za pomocą odpowiedniego oprogramowania analitycznego. Tutaj przedstawiamy metodę obliczania stałych równowagi przy użyciu arkusza kalkulacyjnego14 (zobacz Informacje dodatkowe).
- Otwórz arkusz „Kd calculation.xlsx”. W tym arkuszu wartości komórek w wierszach od 1 do 10, które zostały podświetlone na żółto, mogą być modyfikowane w celu przeprowadzenia obliczeń stałych równowagi.
- Wprowadź oszacowane wartości Kd w jednostkach nanomolowych do komórek B1 i B2 w tabeli. Te wartości początkowe zostaną zoptymalizowane w trakcie dopasowania. Jeśli oszacowane wartości Kd są nieznane, pozostaw wartości domyślne w komórkach B1 i B2 bez zmian.
- Wprowadź wartości (cAb)tot i (cAg)tot w jednostkach nanomolowych do komórek D2 i E2. Wprowadź wartości frakcji obliczone w kroku 4.3 do komórek F2, G2 i H2. Jeśli zmierzono wiele próbek w różnych stosunkach stężeń, dodatkowe wartości stężeń uzyskane dla tych próbek można wprowadzić w wierszach od 2 do 10.
- Wybierz funkcję menu Dane/Solver. W polu „Ustaw cel” wprowadź „$B$15”, a w polu „Komórki zmieniane:” wprowadź „$B$1:$B$2”. Wybierz przycisk opcji Minimalizuj dla opcji Do:. Zaznacz pole wyboru Uczyń nieograniczone zmienne nieujemnymi i wybierz GRG Nielineowy jako metodę rozwiązywania. Kliknij przycisk Rozwiąż. Optymalne wartości Kd1 i Kd2 pojawią się w komórkach B1 i B2, a końcowa suma kwadratów błędów w komórce B15.
UWAGA: Jeśli funkcja Solver nie jest aktywna, wybierz opcję Opcje w menu Plik w programie arkusza kalkulacyjnego. W kategorii Dodatki wybierz Dodatek Solver w obszarze Nieaktywne dodatki aplikacji i kliknij przycisk Przejdź. Zaznacz pole wyboru Dodatek Solver i kliknij OK.
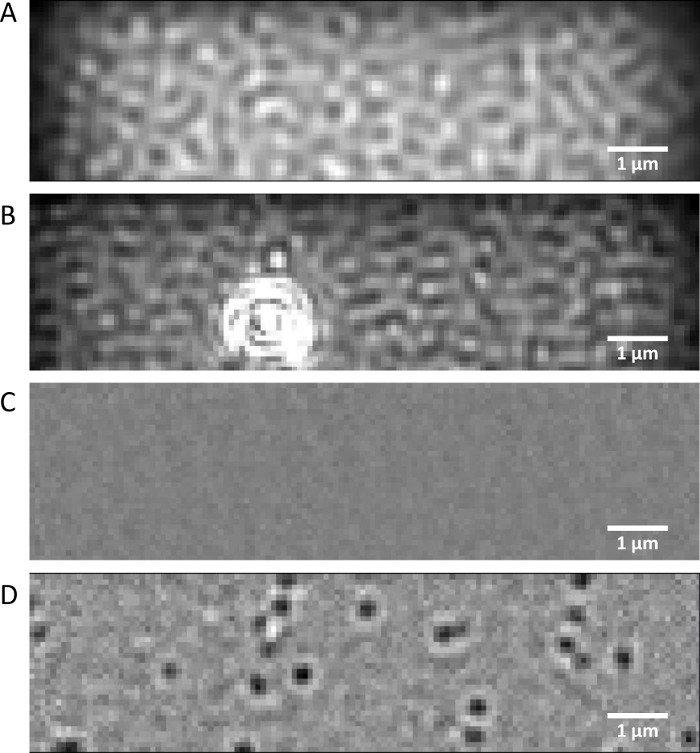
Rycina 1: Obrazy fotometrii masy. (A) Reprezentatywny obraz w trybie native roztworu buforowego do wizualizacji, uzyskany na czystej szkiełku pokrywkowym oraz (B) na szkiełku pokrywkowym z wadami powierzchni. (C) Obraz różnicowy ratiometryczny buforu do wizualizacji oraz (D) roztworu AHT·HT. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
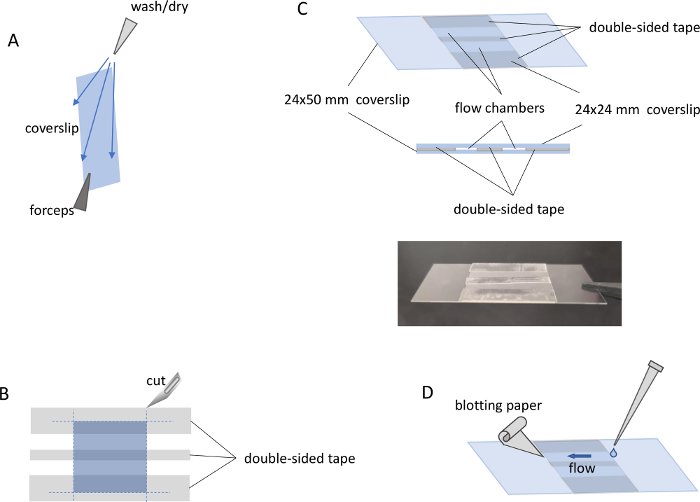
Rycina 2: Przygotowanie i załadowanie komory przepływowej MP. (A) Położenie szkiełka nakrywkowego podczas procedury czyszczenia. (B) Wyrównanie szkiełka nakrywkowego o wymiarach 24 x 24 mm (warstwa środkowa) i taśmy dwustronnej (warstwa górna) na powierzchni folii aluminiowej (warstwa dolna, nie pokazana). Niebieskie przerywane linie wskazują miejsca cięć. (C) Widok z góry i z boku zmontowanej komory przepływowej z dwiema kanałami próbkowymi oraz zdjęcie zmontowanej komory przepływowej. (D) Procedura ładowania próbki do kanału przepływowego wcześniej wypełnionego buforem. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Wcześniej zbadaliśmy interakcję ludzkiej $\alpha$-trombiny (HT) oraz mysiej monoklonalnej przeciwciał przeciwko ludzkiej trombinie (AHT) z wykorzystaniem testu opartego na mikrocząstkach (MP).11Ponieważ masa cząsteczkowa HT (37 kDa) jest niższa niż granica detekcji wynosząca 40 kDa, maksymalne stężenie próbki może przekraczać limit stężenia MP wynoszący 50 nM bez negatywnego wpływu na rozdzielczość rozkładów masy. Eksperyment zaplanowano jako serię miareczkowania z przeciwciałem AHT w stałym stęże...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Przedstawiony tutaj protokół oparty na fotometrii masowej zapewnia szybką i dokładną metodę pomiaru powinowactwa wiązania antygen-przeciwciało. Analiza MP wykorzystuje bardzo małą ilość materiału, a dodatkowe informacje - w tym stechiometria, oligomeryzacja i czystość - mogą być ocenione na podstawie tych samych danych (ryc. 5). Bez modyfikacji metoda ta ma zastosowanie do pomiarów stałych dysocjacji w zakresie od około 5 nM do 500 nM oraz do cząsteczek ligandów o masie cząsteczkowej około 2...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Dziękujemy Keirowi Neumanowi za jego krytyczną lekturę rękopisu. Praca ta była wspierana przez program stacjonarny NHLBI, NIH.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| AcquireMP | Refeyn | MP Oprogramowanie do zbierania danych | |
| Anty-ludzka trombina | Technologie hematologiczne | AHT-5020 | RRID: AB_2864302 |
| Aplikatory z bawełnianą końcówką | Bawełniane waciki optyczne | Thorlabs | CTA10 |
| Szkiełka nakrywkowe 24x24 mm | Globe Scientific | 1405-10 | |
| Szkiełka nakrywkowe 24x50 mm | Fisher Naukowe | 12-544-EP | |
| Oprogramowanie do przetwarzania danych | DiscoverMP | Refeyn | |
| Kleszcze | Mikroskopia elektronowa Sciences | 78080-CF | Kleszcze z miękką końcówką do obsługi szkiełek nakrywkowych |
| Ludzkie &alfa;-trombiny | Technologie hematologiczne | HCT-0020 | |
| Olejek immersyjny | Thorlabs | MOIL-30 | |
| Izopropanol | Alfa Aesar | 36644 | |
| Microsoft Excel | Arkusz kalkulacyjny | Microsoft | |
| OneMP | Refeyn | Mass Photometry instrument | |
| Pochodzenie | OriginLab | oprogramowanie do wykresów naukowych | |
| PBS | Corning | 46-013-CM | 10x zapas |
| Filtr strzykawkowy | Millipore | SLGSR33SS | bufor i próbka Filtrowanie |
Bibliografia
- Francis, R. J., et al. A phase I trial of antibody directed enzyme prodrug therapy (ADEPT) in patients with advanced colorectal carcinoma or other CEA producing tumours. British Journal of Cancer. 87 (6), 600-607 (2002).
- van Dyck, C. H. Anti-Amyloid-beta Monoclonal Antibodies for Alzheimer's Disease: Pitfalls and Promise. Biological Psychiatry. 83 (4), 311-319 (2018).
- Vennepureddy, A., Singh, P., Rastogi, R., Atallah, J. P., Terjanian, T. Evolution of ramucirumab in the treatment of cancer - A review of literature. Journal of Oncology Pharmacy Practice. 23 (7), 525-539 (2017).
- Waldmann, T. A. Immunotherapy: past, present and future. Nature Medicine. 9 (3), 269-277 (2003).
- Huang, B., Bates, M., Zhuang, X. Super-resolution fluorescence microscopy. Annual Review of Biochemistry. 78, 993-1016 (2009).
- Rosenberg, M. I. Protein Analysis and Purification. , Birkhauser. Basel. (2005).
- Picot, J., Guerin, C. L., Le Van Kim, C., Boulanger, C. M. Flow cytometry: Retrospective, fundamentals and recent instrumentation. Cytotechnology. 64 (2), 109-130 (2012).
- Khan, S. H., Farkas, K., Kumar, R., Ling, J. A versatile method to measure the binding to basic proteins by surface plasmon resonance. Analytical Biochemistry. 421 (2), 385-390 (2012).
- Lofgren, J. A., et al. Comparing ELISA and surface plasmon resonance for assessing clinical immunogenicity of panitumumab. The Journal of Immunology. 178 (11), 7467-7472 (2007).
- Young, G., et al. Quantitative mass imaging of single biological macromolecules. Science. 360 (6387), 423-427 (2018).
- Wu, D., Piszczek, G. Measuring the affinity of protein-protein interactions on a single-molecule level by mass photometry. Analytical Biochemistry. 592, 113575(2020).
- Cole, D., Young, G., Weigel, A., Sebesta, A., Kukura, P. Label-free single-molecule imaging with numerical-aperture-shaped interferometric scattering microscopy. ACS Photonics. 4 (2), 211-216 (2017).
- Soltermann, F., et al. Quantifying protein-protein interactions by molecular counting with mass photometry. Angewandte Chemie International Edition in English. 59 (27), 10774-10779 (2020).
- Kemmer, G., Keller, S. Nonlinear least-squares data fitting in Excel spreadsheets. Nature Protocols. 5 (2), 267-281 (2010).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
