Protokół opisuje organotypowe eksplantaty myszy neuroretina, hodowana razem z nabłonkiem barwnikowym siatkówki (RPE), w pożywce zdefiniowanej przez R16, wolna od surowicy i antybiotyków. Metoda ta jest stosunkowo prosta do wykonania, tańsza i bardziej czasochłonna w porównaniu z eksperymentami in vivo i może być dostosowana do wielu zastosowań eksperymentalnych.
Artykuł metodologiczny
Długotrwała, pozbawiona surowicy hodowla organtypowych eksplantatów siatkówki myszy z nienaruszonym nabłonkiem barwnikowym siatkówki
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
W badaniach okulistycznych istnieje duże zapotrzebowanie na modele in vitro neurosiatkówki. W tym miejscu przedstawiamy szczegółowy protokół hodowli organotypowej myszy neuroretina z nienaruszonym nabłonkiem barwnikowym siatkówki (RPE). W zależności od pytania badawczego, siatkówki mogą być izolowane od zwierząt typu dzikiego lub od modeli chorobowych, w celu zbadania np. retinopatii cukrzycowej lub dziedzicznego zwyrodnienia siatkówki. Oczy od wczesnej doba poporodowa zwierząt od 2 do 9 są wyłuszczane w warunkach aseptycznych. Są one częściowo trawione w proteinazie K, aby umożliwić oderwanie naczyniówki od RPE. Pod stereoskopem wykonuje się małe nacięcie w rogówce, tworząc dwie krawędzie, z których naczyniówka i twardówka mogą być delikatnie oderwane od RPE i neurosiatkówki. Soczewka jest następnie usuwana, a muszla oczna jest cięta w czterech punktach, aby nadać jej kształt czteroklinowy przypominający liść koniczyny. Tkanka jest ostatecznie przenoszona w wiszącej kropli do wkładki do hodowli komórkowej zawierającej poliwęglanową membranę hodowlaną. Hodowle są następnie utrzymywane w pożywce R16, bez surowicy lub antybiotyków, w całkowicie określonych warunkach, ze zmianą pożywki co drugi dzień.
Opisana procedura umożliwia izolację siatkówki i zachowanie jej normalnego kontekstu fizjologicznego i histotypowego przez okres hodowli trwający co najmniej 2 tygodnie. Cechy te sprawiają, że organotypowe hodowle eksplantatów siatkówki są doskonałym modelem o wysokiej wartości predykcyjnej do badań nad rozwojem siatkówki, mechanizmami chorobowymi i elektrofizjologią, a jednocześnie umożliwiają farmakologiczne badania przesiewowe.
Wprowadzenie
W badaniach okulistycznych dostępne są różne modele do badania siatkówki, w tym pierwotne hodowle komórek siatkówki, linie komórkowe pochodzące z siatkówki, organoidy siatkówki oraz modele zwierzęce in vivo1,2,3,4,5. Jednak każdy z tych modeli ma wady. Na przykład komórki rosną w izolacji, podczas gdy siatkówka jest złożoną siecią z wieloma interakcjami między komórkami. W związku z tym zachowanie izolowanych kultur komórkowych może być sztuczne w porównaniu z tym, które obserwuje się w całej tkance. Temu problemowi można częściowo zaradzić za pomocą zróżnicowanych organoidów siatkówki in vitro, które można wykorzystać do badania rozwoju i podstawowej biologii6. Jednak na dzień dzisiejszy wytwarzanie organoidów siatkówki nadal jest czasochłonne, pracochłonne i cierpi na problemy z odtwarzalnością, co wymaga znacznych dalszych prac rozwojowych, zanim organoidy będą mogły być wykorzystane do translacyjnych badań siatkówki. Wreszcie, badania na żywych zwierzętach, choć prawdopodobnie są modelem, który jest najbliższy wymogom badań okulistycznych, wiążą się z silnymi obawami etycznymi. Dobrym kompromisem pomiędzy wydajnością systemów hodowli komórkowych a rzeczywistą sytuacją modeli zwierzęcych in vivo są organotypowe hodowle eksplantatów siatkówki. Takie hodowle zmniejszają również cierpienie zwierząt, ponieważ nie przeprowadza się interwencji in vivo.
Opisano kilka metod hodowli eksplantatów siatkówki różnych gatunków5,7,8. Nasz protokół opisuje technikę izolacji neurosiatkówki myszy wraz z jej nabłonkiem barwnikowym siatkówki (RPE). Ta technika będzie również odpowiednia dla hodowli siatkówki szczurów9. Posiew neurosiatkówki wraz z jej RPE ma ogromne znaczenie dla sukcesu. RPE pełni podstawowe funkcje dla siatkówki: transport składników odżywczych, jonów, wody, absorpcję światła i ochronę przed fotoutlenianiem, reizomeryzację all-trans-retinalu do 11-cis-retinalu, co ma kluczowe znaczenie dla cyklu wzrokowego, fagocytozę zrzucanych błon fotoreceptorowych oraz wydzielanie czynników niezbędnych dla integralności strukturalnej siatkówki10. Utrzymanie RPE pozwala na pomyślny rozwój zewnętrznych i wewnętrznych segmentów fotoreceptorów, utrzymując siatkówkę przy życiu przez dłuższy czas11. Opisana poniżej procedura pozwala zachować histotypowe i fizjologiczne cechy siatkówki przez co najmniej dwa tygodnie12. Co więcej, hodowla organtypowych eksplantatów siatkówki w pożywce wolnej od surowicy i antybiotyków pozwala uniknąć obecności nieznanych substancji i umożliwia prostą interpretację wyników12.
Organotypowe hodowle eksplantatów siatkówki były niezbędne do poszerzenia naszej wiedzy na temat rozwoju i zwyrodnienia siatkówki7,13,14. Pokazujemy tutaj, że są one również użytecznym narzędziem do farmakologicznych badań przesiewowych i że można je wykorzystać do modelowania różnych chorób siatkówki, w tym retinopatii cukrzycowej.
Protokół
Protokoły dotyczące zwierząt, zgodne z §4 niemieckiej ustawy o ochronie zwierząt, zostały przejrzane i zatwierdzone przez komisję ds. ochrony zwierząt Uniwersytetu w Tübingen (Einrichtung für Tierschutz, Tierärztlichen Dienst und Labortierkunde; numer rejestracyjny AK02/19M). W badaniu tym siatkówki pobrano od myszy typu dzikiego (WT) oraz myszy rd1, z których te drugie stanowią dobrze scharakteryzowany model dziedzicznej degeneracji siatkówki15. Myszy przebywały w standardowym cyklicznym białym oświetleniu, miały swobodny dostęp do pożywienia i wody i były wykorzystywane niezależnie od płci.
1. Lista kontrolna
- Aby zapewnić sterylne warunki i uniknąć zanieczyszczeń, należy oczyścić i zdezynfekować komorę z laminarnym przepływem powietrza 70% etanolem. Należy upewnić się, że etanol całkowicie odparował, aby zapobiec zatruciu kultur siatkówki.
- Przed użyciem należy wysterylizować w autoklawie narzędzia (np. nożyczki, pincety i łyżeczkę do skrobania do mikroskopu okulistycznego).
- Przygotować wcześniej w komorze z laminarnym przepływem powietrza, w warunkach sterylnych, następujące pożywki: podstawową pożywkę R16 (BM) (można przechowywać w 4 °C przez 4 tygodnie), BM z 20% płodową surowicą bydlęcą (FCS) (do użycia w tym samym dniu), BM z 0,12% roztworem proteinazy K (44 mAnson U/mg) (do użycia w tym samym dniu) oraz kompletną pożywkę R16 z suplementami (CM) zgodnie z opisem Romijna16 (można przechowywać w 4 °C przez 3 tygodnie) (patrz Tabele S1, S2, i S3).
- Podgrzać roztwór proteinazy K do 37 °C w celu jego aktywacji, a następnie zastosować go w kroku 2.5.
2. Przygotowanie
- Uśmierć zwierzę rd1/WT w 5. dobie po urodzeniu (P5) poprzez dekapitację. W przypadku zwierząt starszych niż P11 zastosuj CO2 i/lub zwichnięcie szyi, zgodnie z lokalnymi przepisami dotyczącymi ochrony zwierząt.
- W zależności od wieku zwierzęcia, przed enukleacją, w razie potrzeby rozchyl powieki za pomocą pincety i bardzo ostrożnie je rozdziel, nie dotykając i nie drażniąc oka pod nimi.
- Szybko przeprowadź enukleację oczu pod stereomikroskopem, używając zakrzywionej pincety.
- Inkubuj oczy w BM przez 5 min w temperaturze pokojowej (RT).
- Inkubuj oczy w podgrzanym BM z dodatkiem 0,12% proteinazy K w temperaturze 37 °C przez 15 min.
- Wykonaj następujące kroki w laminarnym dygestorium, aby zapewnić warunki sterylne. Aby inaktywować proteinazę K, przenieś oczy do BM zawierającego 20% FCS i inkubuj przez 5 min w RT.
- Przeprowadź aseptyczną dyssekcję oczu pod stereomikroskopem w płytce Petriego zawierającej świeży BM w RT. Rozpocznij dyssekcję jak najszybciej po enukleacji. Im dłuższy jest ten czas, tym trudniejsza jest dyssekcja siatkówki, ponieważ oczy stają się bardzo miękkie.
- Za pomocą pincety przytrzymaj oko za nerw wzrokowy. Używając precyzyjnych nożyczek, wykonaj małe nacięcie w rogówce, tworząc dwa brzegi, od których można delikatnie oddzielić rogówkę, naczyniówkę i twardówkę za pomocą dwóch par precyzyjnych pincet (Rycina 1 kroki A–C). Alternatywnie można użyć kaniuli o małej średnicy do wykonania pierwszego nacięcia w rogówce, a następnie wprowadzić jedno z ostrzy nożyczek do otworu.
- Chwyć soczewkę precyzyjną pincetą. Umieść drugą parę pincet prostopadle do pierwszej, tak aby pierwsza pinceta znajdowała się pomiędzy ramionami drugiej. Pociągnij, aby wyciągnąć soczewkę z oczodołu. Jeśli ciało szkliste i ciało rzęskowe są nadal przytwierdzone do siatkówki, usuń je ostrożnie (Rycina 1 krok D).
UWAGA: Kroki 2.7.1 i 2.7.2 wymagają wprawy i zachowania ostrożności, aby nie uszkodzić siatkówki. - Przetnij siatkówkę prostopadle do jej brzegów w czterech punktach, nadając jej kształt czterolistnej koniczyny (Rycina 1 kroki E–F).
- Używając pipety z szeroko przyciętą końcówką 1 mL, przytrzymaj siatkówkę w wiszącej kropli medium i przenieś ją na wkład filtrujący płytki hodowlanej umieszczony w 6-dołkowej płytce hodowlanej. Warstwa RPE powinna być skierowana w stronę membrany (Rycina 1 krok G).
- Za pomocą pipety ostrożnie usuń nadmiar medium z wkładu.
- Z boków dołka dodaj 1 mL CM na każdy dołek i inkubuj w sterylnym inkubatorze w 37 °C przy 5% CO2. Nie zanurzaj siatkówki w medium, ponieważ zmniejszy to natlenienie i spowoduje degenerację tkanki. Eksplant powinien pozostać na granicy fazy ciecz-powietrze, przykryty jedynie cienką warstwą cieczy utworzoną przez napięcie powierzchniowe wody.
- Nie niepokój eksplantu siatkówki przez pierwsze 48 h, aby ułatwić regenerację po procedurze eksplantacji.
- Wymieniaj medium co drugi dzień (48 h). Usuń 700 µL medium z każdego dołka i dodaj 900 µL świeżego CM. W ten sposób uzupełniona zostaje ilość medium utracona wskutek odparowania, a eksplant siatkówki zachowuje część czynników neuroprotekcyjnych wytworzonych w ciągu poprzednich 48 h.
- Inkubuj usunięte medium w oddzielnej, zamkniętej probówce do mikrocentryfugi wraz z kulturami, aby kontrolować i oceniać ewentualne zanieczyszczenie (np. zmiana koloru medium).
UWAGA: Eksplanty siatkówki mogą być utrzymywane w kulturze przez co najmniej 2 tygodnie12.
3. Po hodowli
UWAGA: Eksplantaty mogą być wykorzystywane w różnych zastosowaniach eksperymentalnych (western blot, histologia, preparaty całych organów, analiza genetyczna, elektrofizjologia). W zależności od zastosowania organotypowe eksplantaty siatkówki mogą być błyskawicznie zamrażane, lizowane lub przygotowywane do kriosekcjonowania. Poniższe kroki opisują przygotowanie histologiczne.
- Przeprowadź 45-minutową fiksację w 4% paraformaldehydzie (PFA), a następnie stopniową krioprotekcję sacharozą (10% sacharozy przez 10 min, 20% przez 20 min i 30% przez 2 h w temperaturze pokojowej (RT) lub przez noc (ON) w 4 °C). Dodaj te bufory bezpośrednio do studzienki.
- Wytnij błonę wokół eksplantów siatkówki.
- Zatop zarówno błonę, jak i tkankę siatkówki w medium do tkanek mrożonych.

Rycina 1: Procedura krok po kroku przygotowania organotypowych hodowli eksplantów siatkówki. (A) Gałki oczne myszy są usuwane i przenoszone do roztworu proteinazy K, aby umożliwić oddzielenie twardówki i naczyniówki od siatkówki i RPE. W warstwie twardówki/naczyniówki wykonuje się niewielkie nacięcie. (B) Do oddzielenia warstwy twardówki/naczyniówki używa się dwóch pęset. (C) Podczas oddzielania widoczna jest czarna warstwa naczyniówki. Leżący pod nią ciemny nabłonek barwnikowy siatkówki (RPE) pozostaje przytwierdzony do gałki ocznej. Twardówka i naczyniówka są usuwane wraz z nerwem wzrokowym. (D) Soczewka i ciało szkliste są usuwane pęsetą. Pozostała część ciała rzęsowego zostaje usunięta. (E) Siatkówka zachowuje kształt miseczkowaty. (F) Aby spłaszczyć siatkówkę do hodowli w naczyniu, za pomocą nożyczek wykonuje się 4 nacięcia w równych odstępach wokół siatkówki, nadając jej kształt koniczyny. Hodowlę siatkówki przenosi się do wkładki z membraną w płytce 6-dołkowej za pomocą odciętego końcówki pipety 1 mL. Siatkówka wciąż zachowuje częściowo kształt miseczki, jednak po usunięciu nadmiaru cieczy otaczającej siatkówkę rozprostuje się do struktury płaskiej. (G) W układzie z membraną hodowlaną siatkówka spoczywa na porowatej membranie poliwęglanowej (PC) nad roztworem kompletnego medium R16. Aby zapewnić żywotność, hodowlę należy utrzymywać w sterylnym inkubatorze z nawilżaniem w temperaturze 37 °C z 5% CO2, a medium należy wymieniać co 48 h. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny
Wyniki
Po zastosowaniu protokołu, wypreparowane i hodowane eksplanty siatkówki zachowują prawidłową architekturę tkanki z wyraźnymi warstwami, od nabłonka pigmentowego siatkówki (RPE) do warstwy komórek zwojowych (GCL), co przedstawiono na Rysunku 2. Wielkość zewnętrznej warstwy jądrowej (ONL) i wewnętrznej warstwy jądrowej (INL) pozostawała w większości stabilna przez 2-3 tygodnie, przy czym powolna utrata komórek i stopniowe ścieńczenie tych warstw stawały się coraz bardziej widoczne, jeśli okres hodowli przedłużano do 4 tygodni i więcej. W GCL natomiast, ze względu na aksonotomię nerwu wzrokowego, zazwyczaj obserwuje się wyraźne ścieńczenie w ciągu pierwszych 4 dni hodowli. Następnie pozostała populacja komórek w GCL (głównie przemieszczone komórki amakrynowe) pozostanie żywotna przez kolejne 3-4 tygodnie17,18,19.
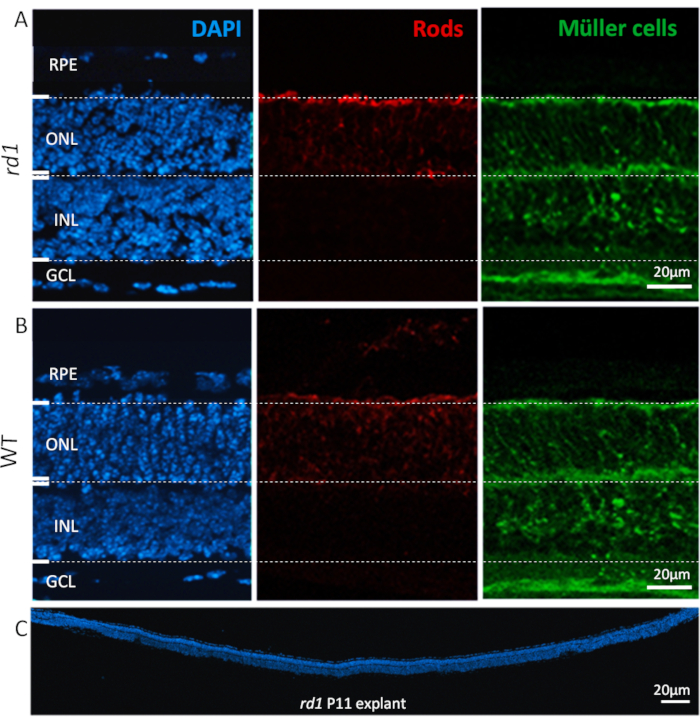
Rysunek 2Typy komórek występujące w kulturze eksplantu siatkówki. Hodowla eksplantów siatkówki w dniu P11 pochodząca z rd1 mutant (A) oraz zwierzęta typu dzikiego (WT (B) przedstawiające barwienie jąder DAPI (lewo, niebieski), fotoreceptory pręcikowe (środek, czerwony) oraz komórki Müllera (prawo, zielony). Barwienie jąder podkreśla wszystkie główne warstwy komórkowe siatkówki, takie jak nabłonek barwnikowy siatkówki (RPE), zewnętrzna warstwa jądrowa (ONL), wewnętrzna warstwa jądrowa (INL) oraz warstwa komórek zwojowych (GCL). Specyficzne typy komórek w warstwach jądrowych, takie jak pręciki i komórki Müllera, zostały oznakowane immunochemicznie za pomocą alfa-arrestyny26 oraz syntetaza glutaminy27 przeciwciała, odpowiednio. (C) Przedstawia pełny przekrój całego obiektu rd1 siatkówka myszy z barwieniem DAPI uwidaczniającym spójność, integrację i rozwój siatkówki. Siatkówki te były hodowane przez 6 dni. Opis procedury: Siatkówka i RPE wyhodowane z rd1 Zwierzęta WT wyizolowano w P5 i hodowano zgodnie z opisem w protokole aż do P11, wymieniając pożywkę co 48 h. Hodowle utrwalono 4% PFA w P11, a następnie wykonano kriosekcje. Proszę kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny
Medium bezsurowicze oraz stabilne środowisko in vitro pozwalają na pełną kontrolę nad warunkami eksperymentalnymi. Poniżej przedstawiamy dwa przykłady zastosowań tego protokołu.
Pierwszy przykład ilustruje możliwość wykorzystania eksplantów siatkówki do testowania leków lub celów przesiewowych. Organotypowe hodowle eksplantów siatkówki przygotowano z modeli mysich typu dzikiego (WT) oraz rd1. Ten drugi jest dobrze scharakteryzowanym modelem degeneracji siatkówki15. W siatkówce myszy rd1 degeneracja ONL jest wywołana przez nieprawidłowo wysokie poziomy cGMP w fotoreceptorach pręcikowych6,20. Nadmiar cGMP powoduje zwiększoną aktywność kanałów jonowych bramkowanych cyklicznymi nukleotydami (CNGC) oraz kinazy białkowej zależnej od cGMP (PKG), co prowadzi do śmierci komórek21. Przetestowano leczenie siatkówek myszy rd1 analogiem strukturalnym cGMP (cykliczny nukleotyd nr 3; CN003), który oddziałuje zarówno na PKG, jak i CNGC. Po eksplantacji w dniu P5 zastosowano schemat leczenia opisany na Rysunku 3A. Hodowle eksplantów utrwalono 4% PFA w dniu P11 i przygotowano do kriosieciowania (Rysunek 3A). Aby ocenić śmierć komórek w przekrojach histologicznych z próbek leczonych, nieleczonych (NT) i WT, przeprowadzono test TUNEL (terminal deoxynucleotidyl transferase dUTP nick end labeling)22. Analiza komórek znakowanych metodą TUNEL wykazała wysoki odsetek obumierających komórek w ONL nieleczonych próbek rd1, podczas gdy CN003 chronił fotoreceptory myszy rd1 przy zastosowaniu w stężeniu 50 µM23 (Rysunek 3B).
Częstym powikłaniem cukrzycy jest retinopatia cukrzycowa, prowadząca do ślepoty choroba, którą trudno jest wiernie odtworzyć w modelach zwierzęcych5. Drugi przykład podkreśla zastosowanie organotypowych kultur eksplantów siatkówki do oceny żywotności komórek siatkówki w warunkach naśladujących cukrzycę typu 2 (T2DM)24. W tym przypadku zastosowano 20 mM inhibitora glikolizy 2-deoksyglukozy (2-DG)25, dodając go do pożywki hodowlanej na 24 h w okresie od P10 do P11. Wykazujemy, że poddanie eksplantów siatkówki typu WT takim symulowanym in vitro warunkom cukrzycowym prowadzi do rozległej śmierci komórek neuronalnych siatkówki (Ryc. 3C). Taki model może być następnie wykorzystany, na przykład, do badania mechanizmów degeneracyjnych lub testowania metod retinoprotekcyjnych w kontekście cukrzycy.
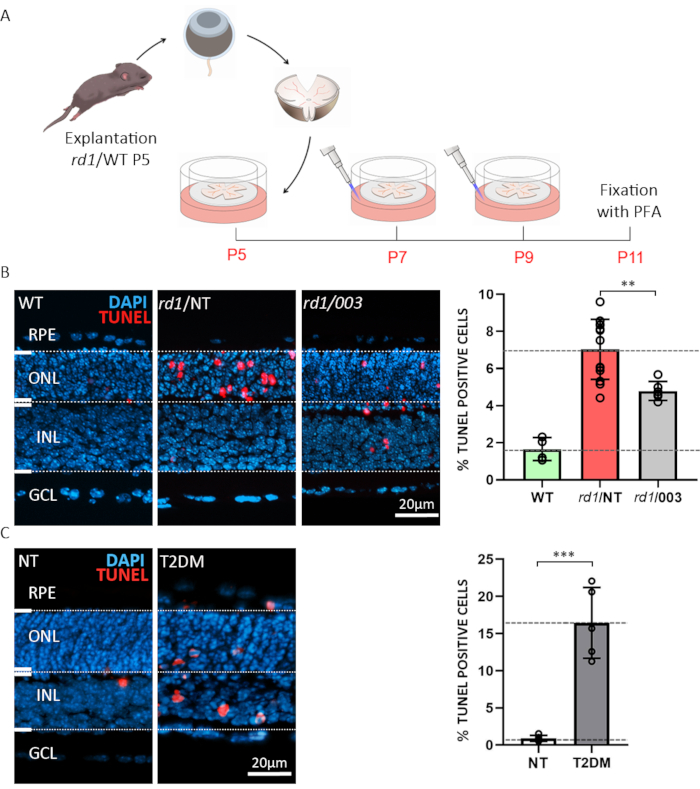
Rycina 3: Dwa przykłady zastosowań organotypowych hodowli eksplantów siatkówki. (A) Opis procedury: Siatkówkę i RPE pochodzące od zwierząt rd1 lub WT izolowano w 5. dniu po urodzeniu (P5) i hodowano zgodnie z powyższym opisem, wymieniając pożywkę co 48 h. W dniach P7 i P9 zużytą pożywkę usunięto, a do płyt dodano świeżą pożywkę CM zawierającą aktywny związek w stężeniu 50 µM. Hodowle utrwalono 4% PFA w dniu P11, a następnie wykonano kriosekcje. (B) Testowanie związku na siatkówce rd1. Przekroje pobrano z organotypowych hodowli eksplantów siatkówki WT, leczonych (003) i nieleczonych (NT). Test TUNEL (kolor czerwony) zastosowano jako marker śmierci komórek. Barwienie jąder komórkowych DAPI (kolor niebieski). Ilościowe zestawienie przedstawione na wykresie słupkowym ilustruje procenty ginących komórek w warunkach WT, rd1 NT oraz rd1 003. Leczenie związkiem 003 znacząco zredukowało śmierć fotoreceptorów w siatkówce rd1. (C) Symulacja cukrzycy typu 2 (T2DM) w siatkówce WT przy użyciu 2-deoksyglukozy (2-DG). Test TUNEL wykonano na preparatach NT oraz T2DM. Analiza ilościowa wskazuje na wysoce istotny wzrost poziomu śmierci komórek. Kliknij tutaj, aby zobaczyć powiększoną wersję tej ryciny
Tabela S1. Kliknij tutaj, aby pobrać tabelę
Tabela S2. Kliknij tutaj, aby pobrać tabelę
Tabela S3. Proszę kliknąć tutaj, aby pobrać tabelę
Dyskusja
Przedstawiony protokół opisuje organotypowe hodowle eksplantatów siatkówki myszy z nienaruszonym RPE w określonym pożywce R16, wolne od surowicy i antybiotyków. Protokół ten został pierwotnie opracowany pod koniec lat 80. XX wieku 7,28 i od tego czasu jest stale udoskonalany 6,11,12. Godne uwagi zastosowania obejmują badania nad mechanizmami dziedzicznego zwyrodnienia siatkówki i identyfikację leków retinoprotekcyjnych 23,29,30.
Aby eksperyment zakończył się sukcesem, należy wziąć pod uwagę kilka ważnych kwestii. Oto kilka ważnych punktów rozwiązywania problemów, które pomogą poprawić jakość kultur. Po pierwsze, posiewy siatkówki mogą wykazywać nadmierne fałdowanie i/lub tworzenie rozety31. Może to być spowodowane dotknięciem siatkówki kleszczami podczas zabiegu eksplantacji. Co więcej, ciało rzęskowe musi zostać całkowicie usunięte z eksplantatu, ponieważ może to zwiększyć fałdowanie siatkówki podczas hodowli. Po drugie, podczas przenoszenia siatkówki na płytkę studzienki w wiszącej kropli, jeśli siatkówka jest skierowana w stronę błony niewłaściwą stroną do dołu, trzymaj ją w kropli zwisającej z końcówki pipety i bardzo delikatnie wpychaj i wysuwaj medium z końcówki (bez odłączania wiszącej kropli), aby obrócić siatkówkę. Wreszcie, jeśli RPE pozostaje przyczepiony do twardówki i odłącza się od siatkówki, najprawdopodobniej jest to spowodowane niewystarczającym wstępnym trawieniem twardówki. Problem ten może być szczególnie ważny podczas pracy z oczami starszych zwierząt lub gatunków innych niż gryzonie (np. świń) i może być rozwiązany poprzez zwiększenie stężenia proteinazy K.
Prowadzenie organotypowych hodowli eksplantatów siatkówki jest złożoną procedurą, która wymaga odpowiedniego przeszkolenia i doświadczenia. Brak szkolenia może prowadzić do zmienności jakości eksplantatów siatkówki. Z tych powodów ważne jest monitorowanie i weryfikowanie żywotności i odtwarzalności, charakteryzując na przykład szybkość śmierci komórek za pomocą testu TUNEL. Zastosowanie pożywki wolnej od antybiotyków sprawia, że eksplantaty siatkówki są podatne na zanieczyszczenie bakteriami i grzybami. Aby zminimalizować to ryzyko, zalecamy zachowanie szczególnej ostrożności podczas pracy w prawdziwie aseptycznych warunkach. Kolejnym ograniczeniem hodowli siatkówki in vitro są różnice w środowisku fizykochemicznym w porównaniu z siatkówką in vivo (np. ukrwienie naczyniówki i siatkówki, poziom tlenu i glukozy, ciśnienie wewnątrzgałkowe, skład ciała szklistego). System ciągłej perfuzji, być może wbudowany w dedykowany bioreaktor32, może zbliżyć ten model do warunków in vivo . Co więcej, aksotomia nerwu wzrokowego podczas rozwarstwienia siatkówki doprowadzi do śmierci komórek zwojowych, co może wywołać reakcje stresowe8. Dlatego zaleca się, aby eksplant pozostał w celu przystosowania się do warunków hodowli przez co najmniej 2 dni in vitro , zanim zostanie poddany określonej manipulacji lub zabiegowi.
Opisaną metodę wykonuje się zazwyczaj na niedojrzałych tkankach siatkówki, które mogą dobrze przeżyć 4 tygodnie in vitro 7,33. Procedurę można jednak dostosować do różnych zastosowań, w tym do hodowli siatkówki dorosłych. Chociaż różne opublikowane podejścia opisują izolację dorosłej siatkówki bez jej RPE34,35, inkubacja z roztworem papainy przez okres do 1 godziny w temperaturze 37 °C przed rozwarstwieniem pozwala RPE pozostać przyczepiony do siatkówki, nawet jeśli pochodzi od dorosłej myszy36.
Pożywka wolna od surowicy i chemicznie zdefiniowane środowisko in vitro zapewniają całkowicie zdefiniowaną i odtwarzalną manipulację warunkami doświadczalnymi. Dlatego organotypowe hodowle eksplantatów siatkówki są cennymi narzędziami w dziedzinie okulistyki i neurologii i są wykorzystywane do badania chorób siatkówki37, rozwoju siatkówki38,39, terapii komórkami macierzystymi siatkówki40, modyfikacji genetycznych41 i farmakologicznych badań przesiewowych. Jako konkretny przykład testowania leków, tutaj użyliśmy kultur eksplantatów siatkówki do przetestowania analogu cGMP (CN003), o którym wiadomo, że zmniejsza śmierć komórek fotoreceptorowych w modelach zwierzęcych dziedzicznej choroby siatkówki23 (Figura 3B). Inne możliwe zastosowanie tej techniki opisano na rycinie 3C, który ilustruje, w jaki sposób precyzyjna kontrola środowiska tkankowego może być wykorzystana do naśladowania warunków cukrzycowych24. Ze względu na zachowanie architektury tkankowej przez cały okres hodowli, organotypowe hodowle eksplantatów siatkówki nadają się również do badań elektrofizjologicznych. Funkcjonalność neuronów na eksplantatach siatkówki badano za pomocą zapisu patch-clamp42 i zapisu wieloelektrodowego (MEA)33,43. Ta ostatnia pozwala na jednoczesne rejestrowanie aktywności elektrycznej populacji neuronów i została wykorzystana do scharakteryzowania funkcji fotoreceptorów i komórek zwojowych w warunkach hodowli. W szerszej perspektywie, organotypowe systemy hodowli eksplantatów mogą być również stosowane w badaniach przedklinicznych, w których kultury eksplantatów wykorzystano do zbadania skuteczności terapeutycznej hipotermii44.
Technika organotypowej hodowli eksplantatów jest stosunkowo prosta do przeprowadzenia, a w porównaniu z odpowiadającymi jej doświadczeniami in vivo jest tańsza i mniej czasochłonna oraz pozwala uniknąć problemów etycznych związanych z badaniami na żywych zwierzętach. Precyzyjna kontrola nad warunkami doświadczalnymi oraz zachowanie RPE i złożoności tkanek sprawiają, że metoda ta jest cennym narzędziem poszerzającym naszą wiedzę na temat fizjologii i patofizjologii siatkówki oraz umożliwiającym liczne zastosowania eksperymentalne.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Ta praca badawcza otrzymała wsparcie finansowe z Unii Europejskiej (transMed; H2020-MSCA-765441), Niemiecka Rada ds. Badań Naukowych (DFG; PA1751/8-1, 10-1) oraz Chińska Rada Stypendialna.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Biotyna | Sigma | B4639 | |
| (+/-)-&alfa;-Kwas liponowy (=Kwas tiotyczny) | Sigma | T1395 | |
| BSA | Sigma | B4639 | |
| CDP-Choline-Na | Sigma | 30290 | |
| Kortykosteron | Sigma | C2505 | |
| CuSO4 &razy; 5H2O | Sigma | C8027 | |
| DL-Tokoferol | Sigma | T1539 | |
| Etanoloamina | Sigma | E0135 | |
| FCS | Sigma | F7524 | |
| Filtropur BT100, 1L, 0,2 i mikro; m | SARSTEDT | 83.3942.101 | do |
| średnich kleszczy podstawowych | FST | 15003-08 | |
| Glutamina | Sigma | G8540 | |
| Glutation | Sigma | G6013 | |
| Insulina | Sigma | I6634 | |
| L-CysteinaHCl | Sigma | C7477 | |
| Kwas linolowy | Sigma | L1012 | |
| Kwas Linolenowy | Sigma | L2376 | |
| MnCl2 x 4H2O | Sigma | M5005 | |
| Na-pirogronian | Sigma | P3662 | |
| NaSeO3 x 5H2O | Sigma | S5261 | |
| Łyżka do mikroskopu okulistycznego | FST | 10360-13 | |
| Progesteron | Sigma | P8783 | |
| Proteinaza K | MP Biomedicals | 21935025 | 44 mAnson U/mg |
| R16 | Gibco | 07491252A | |
| Retinol | Sigma | R7632 | |
| Octan retinylu | Sigma | R7882 | |
| Nożyczki | FST | 15004-08 | |
| Sterylny filtr 0,22 i mikro; m | MILLEX GP | SLGP033RS | dla suplementów |
| T3 | Sigma | T6397 | |
| Octan tokoferylu | Sigma | T1157 | |
| Transferyna | Sigma | T1283 | |
| Przepuszczalne podpory Transwell | Corning | 3412 | |
| Witamina B1 | Sigma | T1270 | |
| Witamina B12 | Sigma | V6629 | |
| Witamina C | Sigma | A4034 |
Bibliografia
- Fletcher, E. L., et al. Animal models of retinal disease. Progress in Molecular Biology and Translational Science. 100, 211-286 (2011).
- Llonch, S., Carido, M., Ader, M. Organoid technology for retinal repair. Developmental Biology. 433 (2), 132-143 (2018).
- Mencl, S., Trifunović, D., Zrenner, E., Paquet-Durand, F. PKG-dependent cell death in 661W cone photoreceptor-like cell cultures (experimental study). Advances in Experimental Medicine and Biology. 1074, 511-517 (2018).
- Sanges, D., Comitato, A., Tammaro, R., Marigo, V. Apoptosis in retinal degeneration involves cross-talk between apoptosis-inducing factor (AIF) and caspase-12 and is blocked by calpain inhibitors. Proceedings of the National Academy of Sciences of the United States of America. 103 (46), 17366-17371 (2006).
- Schnichels, S., et al. Retina in a dish: cell cultures, retinal explants and animal models for common diseases of the retina. Progress in Retinal and Eye Research. , 100880(2020).
- Paquet-Durand, F., Hauck, S. M., van Veen, T., Ueffing, M., Ekström, P. PKG activity causes photoreceptor cell death in two retinitis pigmentosa models. Journal of Neurochemistry. 108 (3), 796-810 (2009).
- Caffe, A. R., Visser, H., Jansen, H. G., Sanyal, S. Histotypic differentiation of neonatal mouse retina in organ culture. Current Eye Research. 8 (10), 1083-1092 (1989).
- Murali, A., Ramlogan-Steel, C. A., Andrzejewski, S., Steel, J. C., Layton, C. J. Retinal explant culture: A platform to investigate human neuro-retina. Clinical and Experimental Ophthalmology. 47 (2), 274-285 (2019).
- Arango-Gonzalez, B., et al. In vivo and in vitro development of S- and M-cones in rat retina. Investigative Ophthalmology and Visual Science. 51 (10), 5320-5327 (2010).
- Strauss, O. The retinal pigment epithelium in visual function. Physiological Reviews. 85 (3), 845-881 (2005).
- Söderpalm, A., Szél, A., Caffé, A. R., van Veen, T. Selective development of one cone photoreceptor type in retinal organ culture. Investigative Ophthalmology and Visual Science. 35 (11), 3910-3921 (1994).
- Caffe, A. R., et al. Mouse retina explants after long-term culture in serum free medium. Journal of Chemical Neuroanatomy. 22 (4), 263-273 (2001).
- Caffe, A. R., Soderpalm, A. K., Holmqvist, I., van Veen, T. A combination of CNTF and BDNF rescues rd photoreceptors but changes rod differentiation in the presence of RPE in retinal explants. Investigative Ophthalmology and Visual Science. 42 (1), 275-282 (2001).
- Ogilvie, J. M., Speck, J. D., Lett, J. M., Fleming, T. T. A reliable method for organ culture of neonatal mouse retina with long-term survival. Journal of Neuroscience Methods. 87 (1), 57-65 (1999).
- Keeler, C. E. The inheritance of a retinal abnormality in white mice. Proceedings of the National Academy of Sciences of the United States of America. 10 (7), 329-333 (1924).
- Romijn, H. J. Development and advantages of serum-free, chemically defined nutrient media for culturing of nerve tissue. Biology of the Cell. 63 (3), 263-268 (1988).
- Caffe, A. R., et al. Mouse retina explants after long-term culture in serum free medium. Journal of Chemical Neuroanatomy. 22 (4), 263-273 (2001).
- Alarautalahti, V., et al. Viability of Mouse Retinal Explant Cultures Assessed by Preservation of Functionality and Morphology. Investigative Ophthalmology and Visual Science. 60 (6), 1914-1927 (2019).
- Caffe, A. R., Visser, H., Jansen, H. G., Sanyal, S. Histotypic differentiation of neonatal mouse retina in organ culture. Current Eye Research. 8 (10), 1083-1092 (1989).
- Farber, D. B., Lolley, R. N. Cyclic guanosine monophosphate: elevation in degenerating photoreceptor cells of the C3H mouse retina. Science. 186 (4162), 449-451 (1974).
- Arango-Gonzalez, B., et al. Identification of a common non-apoptotic cell death mechanism in hereditary retinal degeneration. PloS One. 9 (11), 112142(2014).
- Loo, D. T. In situ detection of apoptosis by the TUNEL assay: an overview of techniques. Methods in Molecular Biology. 682, 3-13 (2011).
- Vighi, E., et al. Combination of cGMP analogue and drug delivery system provides functional protection in hereditary retinal degeneration. Proceedings of the National Academy of Sciences of the United States of America. 115 (13), 2997-3006 (2018).
- Valdés, J., et al. Organotypic retinal explant cultures as in vitro alternative for diabetic retinopathy studies. Altex. 33 (4), 459-464 (2016).
- Pajak, B., et al. 2-Deoxy-d-Glucose and its analogs: from diagnostic to therapeutic agents. International Journal of Molecular Sciences. 21 (1), (2019).
- Slepak, V. Z., Hurley, J. B. Mechanism of light-induced translocation of arrestin and transducin in photoreceptors: interaction-restricted diffusion. IUBMB Life. 60 (1), 2-9 (2008).
- Paquet-Durand, F., et al. A retinal model of cerebral malaria. Scientific Reports. 9 (1), 3470(2019).
- Romijn, H. J., de Jong, B. M., Ruijter, J. M. A procedure for culturing rat neocortex explants in a serum-free nutrient medium. Journal of Neuroscience Methods. 23 (1), 75-83 (1988).
- Azadi, S., et al. CNTF+BDNF treatment and neuroprotective pathways in the rd1 mouse retina. Brain Research. 1129 (1), 116-129 (2007).
- Kaur, J., et al. Calpain and PARP activation during photoreceptor cell death in P23H and S334ter rhodopsin mutant rats. PloS One. 6 (7), 22181(2011).
- Samardzija, M., et al. A mouse model for studying cone photoreceptor pathologies. Investigative Ophthalmology and Visual Science. 55 (8), 5304-5313 (2014).
- Achberger, K., et al. Merging organoid and organ-on-a-chip technology to generate complex multi-layer tissue models in a human retina-on-a-chip platform. eLife. 8, (2019).
- Alarautalahti, V., et al. Viability of Mouse Retinal Explant Cultures Assessed by Preservation of Functionality and Morphology. Investigative Ophthalmology and Visual Science. 60 (6), 1914-1927 (2019).
- Ferrer-Martín, R. M., et al. Microglial cells in organotypic cultures of developing and adult mouse retina and their relationship with cell death. Experimental Eye Research. 121, 42-57 (2014).
- Müller, B. Organotypic culture of adult mouse retina. Methods in Molecular Biology. 1940, 181-191 (2019).
- Heller, J. P., Kwok, J. C., Vecino, E., Martin, K. R., Fawcett, J. W. A method for the isolation and culture of adult rat Retinal Pigment Epithelial (RPE) cells to study retinal diseases. Frontiers in Cellular Neuroscience. 9, 449(2015).
- Sahaboglu, A., et al. Retinitis pigmentosa: rapid neurodegeneration is governed by slow cell death mechanisms. Cell Death & Disease. 4 (2), 488(2013).
- Arai, E., et al. Ablation of Kcnj10 expression in retinal explants revealed pivotal roles for Kcnj10 in the proliferation and development of Müller glia. Molecular Vision. 21, 148-159 (2015).
- Demas, J., Eglen, S. J., Wong, R. O. Developmental loss of synchronous spontaneous activity in the mouse retina is independent of visual experience. Journal of Neuroscience. 23 (7), 2851-2860 (2003).
- Johnson, T. V., Martin, K. R. Development and characterization of an adult retinal explant organotypic tissue culture system as an in vitro intraocular stem cell transplantation model. Investigative Ophthalmology and Visual Science. 49 (8), 3503-3512 (2008).
- Hatakeyama, J., Kageyama, R. Retrovirus-mediated gene transfer to retinal explants. Methods. 28 (4), 387-395 (2002).
- Moritoh, S., Tanaka, K. F., Jouhou, H., Ikenaka, K., Koizumi, A. organotypic tissue culture of adult rodent retina followed by particle-mediated acute gene transfer in vitro. PloS One. 5 (9), 12917(2010).
- Reinhard, K., et al. Step-by-step instructions for retina recordings with perforated multi electrode arrays. PloS One. 9 (8), 106148(2014).
- Klemm, P., et al. Hypothermia protects retinal ganglion cells against hypoxia-induced cell death in a retina organ culture model. Clinical and Experimental Ophthalmology. 47 (8), 1043-1054 (2019).
Przedruki i uprawnienia
