Zgodnie z obecną implementacją, optogenetyka u naczelnych wymaga wstrzyknięcia wektorów wirusowych do mózgu. Optymalna metoda iniekcji powinna być niezawodna i, w przypadku wielu zastosowań, zdolna do celowania w pojedyncze miejsca o dowolnej głębokości, które można łatwo i jednoznacznie zidentyfikować w histologii pośmiertnej. Przedstawiono metodę iniekcji o tych właściwościach.
Artykuł metodologiczny
Wstrzyknięcia wektorów AAV do optogenetyki w znieczulonym i przytomnym, zachowującym się mózgu naczelnych innych niż człowiek
W tym artykule
Podsumowanie
Streszczenie
Techniki optogenetyczne zrewolucjonizowały badania neurobiologiczne i są gotowe zrobić to samo dla neurologicznej terapii genowej. Kliniczne zastosowanie optogenetyki wymaga jednak wykazania bezpieczeństwa i skuteczności na modelach zwierzęcych, najlepiej na naczelnych innych niż ludzie (NHP), ze względu na ich neurologiczne podobieństwo do ludzi. Liczba potencjalnych wektorów, które są potencjalnie przydatne w neurobiologii i medycynie, jest ogromna i nie istnieje jeszcze żaden wysokoprzepustowy sposób testowania tych wektorów. W związku z tym istnieje zapotrzebowanie na techniki umożliwiające wielokrotne przestrzenne i objętościowo dokładne wstrzyknięcia wektorów wirusowych do mózgu NHP, które można jednoznacznie zidentyfikować za pomocą histologii pośmiertnej. Opisana w niniejszym dokumencie jest taka metoda. Kaniule iniekcyjne są zbudowane ze sprzężonych rurek z politetrafluoroetylenu i stali nierdzewnej. Kaniule te są autoklawowalne, jednorazowe i mają niską minimalną objętość ładowania, dzięki czemu idealnie nadają się do wstrzykiwania drogich, wysoce skoncentrowanych roztworów wektorów wirusowych. Obojętny, barwiony na czerwono olej mineralny wypełnia martwą przestrzeń i tworzy widoczną menisk z roztworem wektorowym, umożliwiając natychmiastowy i dokładny pomiar szybkości i objętości iniekcji. Olej jest ładowany do tylnej części kaniuli, co zmniejsza ryzyko jednoczesnego wstrzyknięcia z wektorem. Kaniule można załadować w 10 minut, a zastrzyki można wykonać w 20 minut. Ta procedura dobrze nadaje się do wstrzykiwań zwierzętom obudzonym lub znieczulonym. W przypadku zastosowania do dostarczania wysokiej jakości wektorów wirusowych, procedura ta może wytworzyć silną ekspresję białek optogenetycznych, umożliwiając optyczną kontrolę aktywności i zachowania neuronów w NHP.
Wprowadzenie
Optogenetyka u naczelnych (NHP) zazwyczaj polega na wstrzykiwaniu wektora wirusowego bezpośrednio do mózgu. Jedna klasa wektorów, która dobrze nadaje się do tego zastosowania, opiera się na wirusie związanym z adenowirusem (AAV). Wektory te składają się z kapsydu białkowego otaczającego jednoniciowy genom DNA, który z kolei składa się z promotora, genu opsyny i opcjonalnie innych elementów kodujących białka i regulatorowych genów. Postępy w klonowaniu molekularnym ułatwiły manipulowanie tymi składnikami i ich łączenie w celu opracowania nowych wektorów. W związku z tym kolekcja wektorów AAV, która jest potencjalnie przydatna dla optogenetyki NHP, jest duża i szybko rośnie.
Obecnie użyteczność wektora AAV dla optogenetyki NHP wymaga testów in vivo. Fakt ten stanowi istotną barierę dla postępu. Zwierzęta muszą być wykorzystywane oszczędnie, a testowanie wielu wektorów u jednego zwierzęcia wymaga, aby miejsca wstrzyknięć były rozsądnie rozmieszczone w stosunku do architektury neuronalnej i dobrze oddzielone w stosunku do rozprzestrzeniania się wirusa. Dokładna ocena histologiczna wymaga, aby wstrzyknięcia były dokładne przestrzennie i objętościowo. Technika iniekcji stosowana wcześniej do ogniskowego dostarczania środków farmakologicznych1,2,3,4 została dostosowana i uproszczona do wykonywania takich iniekcji. Ta technika wstrzykiwania jest niedroga, wykorzystuje jednorazowe, sterylizowalne składniki, może być stosowana u znieczulonych lub obudzonych małp zachowujących się i może być stosowana do celowania w różne obszary mózgu o dowolnej głębokości. Poniższy protokół opisuje krok po kroku procedury wytwarzania jednorazowych składników i wykonywania zastrzyków do mózgu NHP. Omówiono zalety i wady tej techniki.
Protokół
Wszystkie eksperymenty zostały przeprowadzone zgodnie z wytycznymi Guide for the Care and Use of Laboratory Animals i spełniały wymogi wykraczające poza minimalne standardy rekomendowane przez Institute of Laboratory Animal Resources oraz Association for Assessment and Accreditation of Laboratory Animal Care International. Wszystkie procedury zostały ocenione i zatwierdzone przez Animal Care and Use Committee Uniwersytetu Waszyngtońskiego (protokół UW IACUC nr 4167-01). W badaniu uczestniczyło pięć zdrowych makaków (2 Macaca mulatta, 3 Macaca nemestrina; samce w wieku od 4 do 11 lat). Podczas wszystkich procedur chirurgicznych stosowano sterylne instrumenty i technikę aseptyczną.
1. Wykonanie kaniuli (Rysunek 1A)
- Przygotowanie poszczególnych elementów
- Stępić końcówkę igły hipodermicznej (30 G, długość 13 mm) za pomocą szlifierki tarczowej.
- Odciąć fragment rurki ze stali nierdzewnej (30 G, średnica wewnętrzna = 0,16 mm, średnica zewnętrzna = 0,31 mm) o długości dostosowanej do głębokości docelowego obszaru mózgu (25 mm jest odpowiednie do wstrzykiwania w powierzchnię grzbietową kory mózgowej). Za pomocą szlifierki tarczowej sfazować jeden koniec odciętej rurki i wygładzić drugi. Usunąć zadziory z wnętrza rurki za pomocą pogromnika.
- Odciąć fragment rurki z politetrafluoroetylenu (PFTE) (średnica wewnętrzna = 0,23 mm ± 0,02 mm, ścianka = 0,23 mm ± 0,02 mm, 1 mm odpowiada 42 nL ± 7 nL cieczy) o długości odpowiedniej dla ilości roztworu wektora do załadowania (1 µL roztworu wektora zajmuje 24 mm rurki). Rozszerzyć oba końce rurki PTFE poprzez wprowadzenie stępionej igły hipodermicznej.
- Wprowadzić stępioną igłę hipodermiczną na około 5 mm do jednego końca rurki PTFE. Wprowadzić niesfazowany koniec rurki ze stali nierdzewnej na około 5 mm do drugiego końca (Rycina 1A).
- Przeprowadzić testy przed wstrzykiwaniem. Wstrzyknąć wodę filtrowaną przez nasadę igły hipodermicznej kaniuli. Potwierdzić, że woda wypływa z końcówki sfazowanej rurki ze stali nierdzewnej i że woda nie wycieka z żadnego z połączeń.
2. Procedura iniekcji u zwierząt znieczulonych
- Przygotowanie do zabiegu
- Sterylizować instrumenty i materiały chirurgiczne zgodnie z procedurami opisanymi w Tabeli materiałów.
- W razie potrzeby wykonać rezonans magnetyczny (MRI) głowy w celu celowania w głębokie struktury mózgu (Rycina 2A).
- Bezpośrednio przed zabiegiem podać zwierzętom ketaminę (10-15 mg/kg) w celu sedacji oraz antybiotyki (cefazolinę) i leki przeciwbólowe (buprenorfinę o przedłużonym uwalnianiu oraz meloksykam) domięśniowo. Następnie podać propofol za pomocą cewnika dożylnego (IV) w żyłę saphenous lub żyłę cephalic.
- Zaintubować zwierzę i przejść na znieczulenie gazowe izofluranem. Potwierdzić prawidłowe znieczulenie poprzez stabilną częstotliwość akcji serca, ciśnienie tętnicze, częstotliwość oddechów, rozluźnienie mięśni szkieletowych oraz brak odruchów powiekowych lub odruchów wycofania.
- Ogolić głowę zwierzęcia. Na rogówki nałożyć maść z sztucznymi łzami, aby zapobiec ich wysychaniu.
- Przygotowanie miejsca iniekcji
- Umieścić głowę zwierzęcia w ramie stereotaktycznej. Nanieść roztwór do odkażania chirurgicznego na ogoloną skórę za pomocą gazy, lekko docisnąć, aby usunąć wszelkie zanieczyszczenia, a następnie spłukać alkoholem izopropylowym. Powtórzyć ten proces trzy razy. Przykryć zwierzę sterylnym obłożem z otworem. Naciąć skórę i odsunąć mięsień. Umieścić manipulator na ramieniu stereotaktycznym, ustawić go tak, aby celował w docelowy obszar mózgu, i zaznaczyć miejsce kraniotomii na czaszce za pomocą wysterylizowanego pisaka.
- Zdjąć manipulator stereotaktyczny i przeprowadzić kraniotomię. W razie potrzeby naciąć oponę twardą (np. w celu wizualizacji punktów orientacyjnych bruzd). Ponownie zamocować manipulator na ramieniu stereotaktycznym.
- Ładowanie roztworu wektora (Rycina 1C)
- Ostrożnie przenieść roztwór wektora do wysterylizowanej probówki PCR za pomocą pipety P20, unikając powstawania pęcherzyków powietrza.
- Przymocować kaniulę ściętą końcówką skierowaną w dół do pionowo ustawionego uchwytu stereotaktycznego. Połączyć strzykawkę 1 mL z blokadą Luer-lock z nasadą igły hipodermicznej kaniuli.
- Zanurzyć ściętą końcówkę kaniuli w roztworze wektora.
UWAGA: Strzykawka powinna być już przymocowana; podłączenie jej na tym etapie wprowadziłoby pęcherzyki powietrza do roztworu wektora. - Napełnić kaniulę roztworem, stosując delikatne podciśnienie za pomocą strzykawki 1 ml. Wizualnie śledzić menisk między roztworem a powietrzem.
- Po nappełnieniu kaniuli roztworem wektora kontynuować delikatne podciśnienie, aż roztwór dotrze do nasady igły. Zdjąć strzykawkę 1 mL i wstrzyknąć kolorowy olej mineralny do nasady igły hipodermicznej.
UWAGA: Olej należy wstrzykiwać powoli wzdłuż wewnętrznej ścianki nasady igły, aby utworzyć wyraźny menisk z roztworem wektora i uniknąć pęcherzyków powietrza. - Przymocować nasadę igły hipodermicznej do jednego z dwóch otwartych portów 3-drożnego kurka Luer-lock.
UWAGA: Przymocowanie igły hipodermicznej do portu zamkniętego wprowadzi niepożądane ciśnienie powietrza za olejem. - Zamknąć port połączony z nasadą igły hipodermicznej, napełnić strzykawkę 1 mL powietrzem i przymocować ją do jednego z dwóch pozostałych portów. Na koniec zamknąć ostatni port kurka, aby połączyć strzykawkę z kaniulą.
- Powoli wtłaczać powietrze do kaniuli. Gdy kolorowy olej pojawi się na końcówce tępej igły w rurce PTFE, sprawdzić, czy między roztworem a kolorowym olejem nie ma powietrza.
- W przypadku obecności powietrza zastosować podciśnienie strzykawką, aby cofnąć kolorowy olej do nasady igły. Usunąć pęcherzyk i zastosować nadciśnienie, aż na ściętej końcówce kaniuli pojawi się kropla roztworu wektora.
- Zdjąć strzykawkę 1 mL, aby zwolnić niepożądane ciśnienie powietrza za olejem i zamknąć kurek, aby zapobiec wypływowi wektora z kaniuli pod wpływem grawitacji.
- Przykleić plastikową linijkę do rurki PTFE, aby mierzyć ruch menisku podczas iniekcji (Rycina 1B,D,F).
- Wprowadzenie kaniuli do docelowego obszaru mózgu (Rycina 1B)
- Przymocować kaniulę do manipulatora stereotaktycznego.
- Ręcznie przekazać rurkę pompy (kończącą się złączem Luer-lock) od asystenta (osoby niejałowej) do chirurga. Chirurg powinien chwycić złącze Luer-lock przez ściankę jałowego rękawa, przymocować drugi jałowy kurek do złącza, szczelnie owinąć rękaw taśmą, a następnie opuścić kołnierz rękawa, pozwalając mu rozsunąć się wzdłuż rurki pod wpływem grawitacji.
- Połączyć kurek przymocowany do rurki kaniuli z kurkiem przymocowanym do pompy powietrznej. Ustawić pompę powietrzną na niskie ciśnienie, włączyć ją i zwiększać ciśnienie, aż olej przesunie się przez kaniulę i na jej końcówce pojawi się kropla roztworu wektora.
- Dostosować położenie plastikowej linijki na rurce PTFE, aby mierzyć ruch menisku podczas iniekcji.
- Wprowadzić kaniulę w dół za pomocą manipulatora stereotaktycznego i zapisać głębokość, na której końcówka osiąga powierzchnię (oponę twardą lub miękką).
- Wprowadzić kaniulę do najgłębszego miejsca iniekcji wzdłuż toru. Powierzchnia ulegnie wgłębieniu. W przypadku iniekcji do kory powierzchniowej potwierdzić wizualnie penetrację powierzchni przez kaniulę za pomocą mikroskopu chirurgicznego lub lup powiększających, jeśli są dostępne.
- Aby zminimalizować błędy celowania wynikające z kompresji tkanki, wprowadzać kaniulę powoli (1 mm/min), szybko (0.5 mm/s) z 1-5 min oczekiwaniem na dole lub wprowadzić kaniulę o 500 µm głębiej niż najgłębsze miejsce iniekcji, a następnie ją wycofać.
- Iniekcja
- Wstrzyknąć 0.5 µL roztworu wektora za pomocą elektrycznej pompy powietrznej w czasie 10-30 s. Potwierdzić przepływ iniekcji, śledząc menisk między kolorowym olejem a roztworem wektora w rurce PTFE.
- Odczekać 1 min i wycofać kaniulę do następnego miejsca iniekcji wzdłuż toru.
- Po ostatniej iniekcji pozostawić kaniulę na miejscu przez 10 min, aby uniknąć wypływu wektora.
- Wycofać kaniulę i wyrzucić ją do pojemnika na odpady medyczne (ostre narzędzia).
- Opcjonalnie wstrzyknąć niewielką ilość (≤1 µL) fluorescencyjnych mikrokuleczek w pobliżu miejsca iniekcji wektora , aby ułatwić identyfikację miejsca iniekcji post mortem.
- Powtórzyć tę procedurę w razie potrzeby dla innych roztworów wektora w innych lokalizacjach (Rycina 2B).
- Zakończenie zabiegu
- Zszyć oponę twardą, mięsień i skórę.
- Wyjąć małpę z ramy stereotaktycznej i odłączyć wszystkie kable monitorujące.
- Wybudzić małpę z anestezji izofluranem i przeprowadzić ekstubację po powrocie odruchu połykania.
- Zapewnić opiekę pooperacyjną (meloksykam przez 3-5 dni i cefaleksynę przez 7-10 dni). Monitorować zwierzę co najmniej raz na 10 min, aż będzie ono w stanie utrzymać stabilną, wyprostowaną pozycję siedzącą.
3. Operacja i iniekcja wektora AAV u budzących się zwierząt wykazujących zachowania (Rycina 1D)
UWAGA: W celu wykonania iniekcji do mózgów czuwających małp w trakcie wykonywania zadań można zastosować wariant tej techniki, opisany poniżej.
- Jednoczesna iniekcja i rejestracja
- Aby rejestrować aktywność elektryczną w miejscu iniekcji, pokryć zewnętrzną część kaniuli żywicą epoksydową (dolne ~15 mm) oraz rurką polimidową (pozostała długość). Odsłonić metal na końcówce poprzez zeskrobanie z niej żywicy (Injectrode, Rysunek 1F)2. Alternatywnie, wprowadzić kaniulę i oddzielną elektrodę zewnątrzkomórkową, obok siebie, do dwukanałowej rurki prowadzącej (Dwukanałowa rurka prowadząca, Rysunek 1E).
- Wprowadzenie kaniuli do docelowego obszaru mózgu.
- Umieścić małpę w kabinie eksperymentalnej, ograniczyć ruchy głowy i oczyścić zamontowaną na czaszce komorę rejestracyjną przy użyciu standardowych technik.
- Zamocować rurkę prowadzącą do mikropozycjonera. Wprowadzić kaniulę do iniekcji do rurki prowadzącej.
- Przesuwać kaniulę, aż jej końcówka wystanie z rurki prowadzącej.
- Podłączyć kranik do elektrycznej pompy powietrznej. Aby potwierdzić prawidłowe działanie układu, wypchnąć z końcówki kroplę roztworu wektora za pomocą pompy powietrznej i potwierdzić ruch menisku roztworu olejowo-wektorowego.
- Wycofać kaniulę o ~5 mm do rurki prowadzącej, aby chronić ją przed uszkodzeniem podczas wprowadzania rurki do mózgu. Wprowadzić rurkę prowadzącą do mózgu.
- Dostarczyć kaniulę do miejsca iniekcji za pomocą mikropozycjonera. Zidentyfikować miejsce docelowe za pomocą rejestracji elektrycznej (Rysunek 2C) lub stymulacji.

Rycina 1: Schemat zabiegu chirurgicznego i aparatury. (A) Kanula do iniekcji. Wskazano poszczególne części kanuli. Wstawka w prawym dolnym rogu: powiększony obraz końcówki kanuli, pasek skali: 500 µm. (B) Stanowisko operacyjne dla znieczulonych małp. Małpa jest umieszczona w aparacie stereotaktycznym pod prześcieradłem chirurgicznym. Do zwierzęcia podłączono respirator (V), linię dożylną (IV), monitor ciśnienia krwi (BP) oraz monitor saturacji tlenem (O2). Kanula do iniekcji jest wprowadzana do obszaru docelowego za pomocą mikromanipulatora stereotaktycznego. Roztwór wektora jest wstrzykiwany przez elektryczną pompę powietrzną (wstawka w lewym dolnym rogu, brązowa) połączoną z kompresorem powietrza (wstawka w lewym dolnym rogu, niebieska). Plastikowa linijka (wstawka u góry) jest przyklejona do rurki PTFE w celu pomiaru przemieszczenia menisku między kolorowym olejem (wstawka u góry, czerwony) a roztworem wektora (wstawka u góry, bezbarwny) podczas iniekcji. (C) Układ do napełniania kanuli roztworem wektora. (D) Małpa podczas iniekcji roztworu wektora w kabinie eksperymentalnej. Głowa zwierzęcia jest unieruchomiona za pomocą trzech słupków stabilizujących, a pozycja oka jest rejestrowana przez system cewek sklerałych. Kanula do iniekcji jest utrzymywana i wprowadzana na docelową głębokość za pomocą uchwytu/napędu mikroelektrody. Iniekcja jest kontrolowana poprzez monitorowanie menisku między kolorowym olejem a roztworem wektora za pomocą kamery USB (zdjęcie we wstawce). (E) Iniekcja z użyciem dwukanałowej rurki prowadzącej. Uchwyt/napęd dwukanałowej rurki prowadzącej utrzymuje kanulę do iniekcji i mikroelektrodę (patrz wstawka). (F) Injectrode. Metal na końcówce kanuli, odsłonięty poprzez zdrapanie powłoki epoksydowej, zapewnia dostęp elektryczny do neuronów (wstawka, pasek skali: 500 µm). (G) Układ do stymulacji laserowej. Uchwyt/napęd dwukanałowej rurki prowadzącej utrzymuje zarówno światłowód, jak i mikroelektrodę (patrz wstawka). Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.

Rycina 2: Schemat miejsc iniekcji AAV. (A) Przekrój strzałkowy obrazu MR mózgu pokazujący miejsca iniekcji w pierwotnej korze ruchowej i pierwotnej korze wzrokowej Macaca nemestrina. (B) Widok z powierzchni grzbietowej na odpowiadającej tablicy atlasu, pokazujący rozmieszczenie kaniul względem bruzdy środkowej (pierwotna kora ruchowa) i pierwotnej kory wzrokowej. (C) Rejestracja jednostkowa za pomocą injectrody w kopcu górnym. Jednostka wyizolowana przed iniekcją (prawy górny róg) zanikła po iniekcji (prawy dolny róg). (D) Tor iniekcji (białe strzałki). Pasek skali: 500 µm. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
4. Obróbka tkanki mózgowej do badań histologicznych
- Odczekać 6-8 tygodni po iniekcji, aby zmaksymalizować ekspresję transgenu .
UWAGA: Optymalny czas oczekiwania zależy od konkretnego wektora wirusowego użytego w eksperymencie. - Przetworzyć mózg przy użyciu konwencjonalnych technik histologicznych, aby ocenić wydajność i selektywność transdukcji5,6,7.
Wyniki
Aby zademonstrować ekspresję transgenu za pomocą in vivo do stereotaktycznego wstrzyknięcia do mózgu NHP przy użyciu opisanego tutaj chirurgicznego sposobu iniekcji, wybrano dwa wektory zawierające enhansery sterujące ekspresją superżółtego białka fluorescencyjnego-2 (SYFP2) w odrębnych typach neuronów8,9Wektory wirusowe zostały zapakowane w kapsyd PHP.eB10, oczyszczone metodą wirowania w gradiencie jodiksanolu, a następnie zagęszczone do wysokiego miana (>1E13 genomów wirusowych/ml) zmierzonych za pomocą qPCR. Objętość 0.5 µL wstrzyknięto w każde z dziesięć głębokości wzdłuż dziesięciu ścieżek przez korę, przy całkowitej objętości iniekcji wynoszącej 5 µL/track. Rysunek 3A-C pokazuje ekspresja SYFP2 poprzez immunobarwienie przeciwko GFP 113 dni po wstrzyknięciu wektora AAV CN2045, specyficznego dla podklasy PVALB, do kory wzrokowej pierwotnej dorosłego samca Macaca nemestrinaTransgen SYFP2 jest wyraźnie wykrywalny w licznych neuronach niepiramidalnych rozproszonych w całej głębokości kory, a większość neuronów wykazujących ekspresję SYFP2 była jednocześnie immunoreaktywna w odniesieniu do PVALB.7. Rysunek 3D wykazuje natywną ekspresję SYFP2 w pierwotnej korze ruchowej 64 dni po wstrzyknięciu CN2251, wektora AAV specyficznego dla podklasy neuronów L5. Wszystkie neurony znakowane SYFP2 posiadają wyraźna morfologia piramidalna z somatami ograniczonymi do warstwy 5 i charakterystycznymi grubymi dendrytami apikalnymi. Dane te jednoznacznie wykazują precyzyjną kontrolę ekspresji transgenu w wybranych populacjach neuronów neocortexu w mózgu NHP poprzez stereotaktyczne wstrzyknięcie wektorów AAV ukierunkowanych na konkretny typ komórek.

Rycina 3Przykład specyficznej dla typu komórek ekspresji SYFP2 opśredniczonej przez wektory AAV wstrzyknięte do mózgu NHP. (A) Mikrofotografia epifluorescencyjna utrwalonego przekrój pierwotnej kory wzrokowej makaka 113 dni po wstrzyknięciu wektora AAV specyficznego dla podklasy PVALB. Pasek skali: 1 mm. (B,C) Obraz obszaru zaznaczonego ramką w większym powiększeniu, przedstawiający w A. (B) Sygnał anty-GFP. (C) Sygnał anty-PVALB. Paski skali: 250 µm. (D) Mikrofotografia epifluorescencyjna natywnej fluorescencji SYFP2 w utrwalonym przekroju z pierwotnej kory ruchowej makaka 64 dni po wstrzyknięciu wektora AAV specyficznego dla podklasy neuronów ekstratelencefalicznych warstwy 5. Pasek skali: 500 µm. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Aby zademonstrować przydatność tej techniki iniekcji do neurofizjologicznych i behawioralnych manipulacji optogenetycznych, przeprowadzono trzy eksperymenty, każdy na innym małpie (Macaca mulatta). W pierwszym eksperymencie (Rycina 4A-D) wektory AAV niosące transgen kanałorodopsyny-2 (AAV1-hSyn1-ChR2-mCherry) wstrzyknięto do lewego wzgórza górnego (SC). Wektor wstrzykiwano co 250 µm na 19 głębokościach, co dało łącznie 12 µL. W drugim eksperymencie (Rycina 4E-G) do jądra siatkowatego pokrywy mostu (NRTP) wstrzyknięto 3 µL roztworu AAV1-hSyn-ArchT-EYFP. W trzecim eksperymencie (Rycina 4H-K) do kory móżdżku wstrzyknięto 24 µL roztworu AAV9-L7-ChR2-mCherry6. Od sześciu do ośmiu tygodni po każdej iniekcji do mózgu wprowadzono światłowód i elektrodę wolframową za pomocą dwukanałowej rurki prowadzącej (Rycina 1G).
Rysunek 4B przedstawia odpowiedź neuronu SC na światło niebieskie (450 nm). Ciągłe naświetlanie (1,2 s) mocą 40 mW wywołało serię następujących po sobie potencjałów czynnościowych (Rysunek 4B, góra). Impulsy światła o czasie trwania 1 ms nie wywołały potencjałów czynnościowych przy mocy 40 mW (Rysunek 4B, środek), ale wiarygodnie wywołały potencjały czynnościowe przy mocy 160 mW, jedynym innym przetestowanym poziomie mocy, z opóźnieniem 2,7 ± 0,6 ms (Rysunek 4B, dół). Pociąg impulsów (160 mW, częstotliwość: 300 Hz, wypełnienie: 15%, czas trwania: 300 ms) konsekwentnie wywoływał sakady ze średnim opóźnieniem 97 ± 32 ms, średnią amplitudą 10,4° i średnim kątem 47° (w górę i w prawo; Rysunek 4C).
Zgodnie z badaniami, w których modyfikowano wzmocnienie sakad za pomocą podprogowej stymulacji elektrycznej SC11,12, stymulacja optyczna SC po sakadach w lewo i w dół (225°) o amplitudzie 15°, 18° i 20° stopniowo zmniejszała wzmocnienie sakad (Rycina 4D). Powrót tego zmniejszonego wzmocnienia do poziomu sprzed adaptacji (czarne kółka) wymagał około 250 prób (zielone kółka), co potwierdza, że zjawisko to opiera się na plastyczności długoterminowej.
W drugim eksperymencie (Rysunek 4E) optycznie zahamowano projekcję włókien mszystych z NRTP do okulomotorycznego robaczka (OMV) kory móżdżku (listki VIc i VII). Rysunek 4F przedstawia fluorescencyjnie znakowane włókna mszyste i rozetki w OMV (wstawka). Żółte światło laserowe (589 nm) dostarczano do OMV za pomocą światłowodu, a pobliska elektroda wolframowa służyła do rejestracji aktywności komórek Purkinjego. Rysunek 4G pokazuje aktywność prostych kolców (simple spikes) przed (szary) i po (pomarańczowy) optogenetycznej inaktywacji projekcji NRTP (Rysunek 4G, góra). Przed inaktywacją komórka Purkinjego wykazywała wzorzec podwójnego wybuchu aktywności dla sakkad prawostronnych o amplitudzie 12° (Rysunek 4G, środek, szary). Podczas inaktywacji częstotliwość wyładowań spadła i zmieniła się we wzorzec wybuch-pauza (Rysunek 4G, środek, pomarańczowy). Porównanie tych dwóch wzorców odpowiedzi sugeruje, że wpływ włókien mszystych na komórki Purkinjego oddziałuje na fazę deceleracji sakkady poprzez stymulowanie drugiego wybuchu aktywności (Rysunek 4G, środek, zielony). Zmienność sakkad prawostronnych uległa zmniejszeniu podczas inaktywacji optogenetycznej, co jest zgodne z tezą, że część zmienności parametrów sakkad między próbami wynika ze zmienności sygnałów przenoszonych przez włókna mszyste (Rysunek 4G, dół, pomarańczowy).
W trzecim eksperymencie (Rycina 4H) komórki Purkinjego OMV stymulowano optogenetycznie (Rycina 4I). Seria krótkich impulsów świetlnych (impulsy 1,5 ms, 65 mW, 50 Hz) zwiększyła aktywność prostych kolców (simple spikes) w izolowanej komórce Purkinjego (Rycina 4J, góra). Pojedyncze impulsy świetlne o czasie trwania 1,5 ms często wywoływały >1 prosty kolec (Rycina 4J, dół). Optogenetyczna aktywacja prostych kolców, zsynchronizowana z wystąpieniem sakady (impuls świetlny 10 ms, 60 mW), zwiększyła amplitudę sakady (Rycina 4K), co potwierdziło disinhibicyjną rolę komórek Purkinjego w odniesieniu do generatora wyładowań okulomotorycznych.
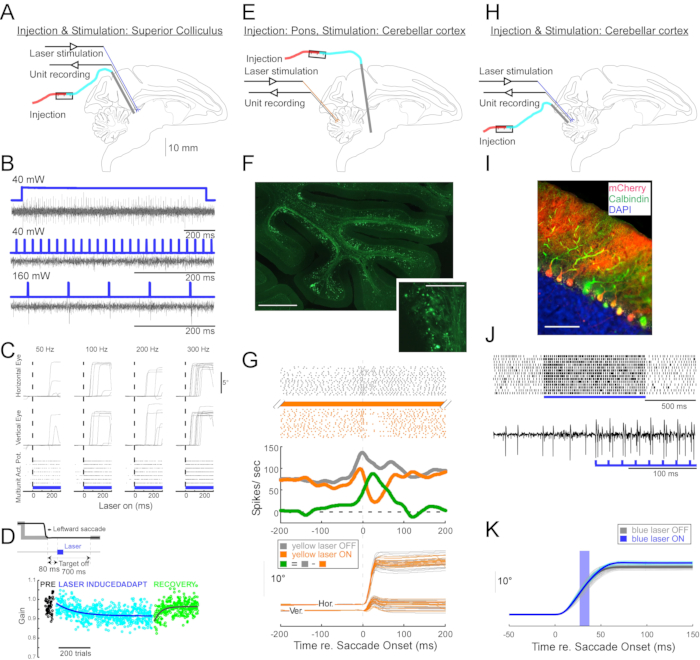
Rysunek 4: Podsumowanie trzech eksperymentów optogenetycznych przeprowadzonych u czuwających małp. (A-D) Eksperyment 1, pobudzenie panneuronalne: iniekcja wirusowa, stymulacja laserowa oraz rejestracja jednostek zostały przeprowadzone w kolizku górnym (A). (B) Reprezentatywna aktywność jednostek wywołana stymulacją laserową. (C) Komponenty poziome (góra) i pionowe (środek) ruchów gałek ocznych oraz wykres rastrowy aktywności jednostek (dół) wywołanej stymulacją laserową. (D) Reprezentatywna sesja adaptacji sakad indukowanej stymulacją laserową. Stymulacja (100 impulsów laserowych o czasie trwania 0,5 ms) była podawana 80 ms po każdej sakadzie (wstawka). Wzmocnienie sakad (amplituda sakady / amplituda celu) stopniowo malało w kolejnych próbach. (E-G) Eksperyment 2, inhibicja specyficzna dla szlaku: wektor wirusowy został wstrzyknięty do jądra siatkowatego pokrywy mostu, a stymulacja laserowa i rejestracja jednostek zostały przeprowadzone w robaczku okoruchowym (E). (F) Przekrój histologiczny robaczka okoruchowego pokazujący oznakowane włókna mszyste (skala: 1 mm) oraz ich rozety (wstawka, skala: 100 µm). (G) Aktywność komórek Purkinjego (góra: raster, środek: średnia częstość wyładowań) i trajektorie sakad sterowanych wzrokowo (dół) ze stymulacją laserową i bez niej. Szary: próby z wyłączonym laserem, pomarańczowy: próby z włączonym laserem, zielony: różnica między szarym a pomarańczowym. (H-K) Eksperyment 3, aktywacja specyficzna dla typu komórek: iniekcja wirusowa, stymulacja laserowa oraz rejestracja jednostek zostały przeprowadzone w robaczku okoruchowym (H). (I) Przekrój histologiczny robaczka okoruchowego pokazujący oznakowane komórki Purkinjego. Skala: 100 µm. (J) Aktywność prostych kolców komórki Purkinjego wywołana stymulacją laserową. Góra: wykres rastrowy z 14 prób. Dół: zapis napięcia z pojedynczej reprezentatywnej próby. (K) Trajektorie sakad sterowanych wzrokowo ze stymulacją laserową i bez niej. 10-ms impuls światła podczas sakad zwiększył amplitudy sakad. Indywidualne trajektorie sakad (cyjan) i ich średnia (niebieski) w próbach z włączonym laserem. Indywidualne trajektorie sakad (jasnoszary) i ich średnia (ciemnoszary) w próbach z wyłączonym laserem. Długość fali światła wynosiła 450 nm w eksperymentach 1 i 3 oraz 589 nm w eksperymencie 2. Kliknij tutaj, aby zobaczyć większą wersję tego rysunku.
Dyskusja
Postępy w optogenetyce NHP stworzyły zapotrzebowanie na dokładne i niezawodne metody iniekcji wewnątrzczaszkowej. Zaletą metody opisanej w tym raporcie jest to, że jest niedroga, wykorzystuje sterylizowalne i jednorazowe składniki oraz ma możliwość celowania w różne obszary mózgu o dowolnej głębokości. Umożliwia również sterowanie prędkością i objętością wtrysku ze względu na prędkość, z jaką można sterować zaworem powietrza. Ciśnienie powietrza można przejściowo zwiększyć, aby usunąć zator, a następnie szybko zmniejszyć, aby uniknąć późniejszego nadmiernego wtrysku, który byłby wytwarzany przez ciągłe ciśnienie. Składniki jednorazowego użytku zmniejszają ryzyko zanieczyszczenia krzyżowego między miejscami wstrzyknięcia.
Kluczowe kroki w tym protokole iniekcji obejmują konstruowanie wysokiej jakości kaniul, ładowanie ich bez wprowadzania pęcherzyków i wybór miejsc wstrzyknięć, które nie są zbyt blisko siebie. Wstrzyknięcia w odległości ≥1 cm od siebie zwykle powodują transdukcję nienakładających się regionów, ale ta heurystyka zależy od serotypu wirusa, miana, promotora, objętości, celu i metody wykrywania. Wybór miejsc wstrzyknięcia, które nie są bezpośrednio połączone, pozwala uniknąć potencjalnych zakłóceń spowodowanych transportem opsyny wzdłuż aksonów i skłonności niektórych serotypów AAV do transdukcji wstecznej.
Metoda może być stosowana do wstrzykiwania NHP w znieczuleniu i w ramce stereotaktycznej (ryc. 3) lub czujnej i unieruchomionej na głowie (ryc. 4). Pierwsza z nich ma tę zaletę, że pozwala na celowanie w zastrzyki we współrzędnych stereotaktycznych i umożliwia wizualne potwierdzenie penetracji kaniuli przez ostrą durrotomię (nacięcie opony twardej u przytomnej małpy poprzez przewlekłą kraniotomię zwiększa ryzyko infekcji). To ostatnie podejście ma tę zaletę, że zmniejsza liczbę operacji przetrwania, a tym samym stres zwierzęcia, jest zgodne z zapisami elektrofizjologicznymi podczas zachowania i wykorzystuje ten sam układ współrzędnych i oprzyrządowanie, które są używane do wprowadzania światłowodów do eksperymentów po wstrzyknięciu. Technika wstrzykiwania u obudzonych małp może być jeszcze bardziej ulepszona poprzez wykonywanie zastrzyków przez sztuczną oponę twardą 13,14,15. Zapewniłoby to dodatkowe korzyści wynikające z bezpośredniej wizualizacji miejsc wstrzyknięcia i fluorescencji tkanek, która wskazuje na udaną transdukcję.
W NHP zastosowano kilka innych technik wstrzykiwania AAV. Niedawno opracowano wielokanałowe urządzenie do wstrzykiwań, aby równomiernie dostarczać wektory AAV do dużych obszarów kory NHP16. Podobne wyniki można uzyskać, stosując dostarczanie wspomagane konwekcją17,18. Metody te mają na celu maksymalizację rozprzestrzeniania się transdukcji, co jest ważnym celem, ale różni się od precyzji przestrzennej, którą ma na celu osiągnąć nasza metoda.
Inną alternatywną metodą jest wstrzyknięcie wektorów AAV przez rurkę borokrzemianową, która jest ścięta do ostrej końcówki na jednym końcu i przymocowana do strzykawki Hamiltona z drugiej 5,6. Metoda ta ma wiele wspólnego z metodą opisaną w niniejszym artykule. Wektor wirusowy jest utrzymywany w rurce na odcinku, przestrzeń w rurce za wirusem jest wypełniona barwionym olejem, a przepływ wektora jest monitorowany poprzez ruch menisku olejowo-wektorowego. Ta alternatywna technika wymaga mniej sprzętu i przygotowania, ale wymaga zasysania oleju do rurki borokrzemianowej przez ściętą końcówkę za pomocą podciśnienia, a następnie załadowania wektora tą samą trasą. To nieuchronnie prowadzi do śladowych ilości oleju dostarczanych do mózgu. Dodatkowo, z naszego doświadczenia, rurka borokrzemianowa musi mieć średnicę ~350 μm, aby penetrować oponę twardą nawet po ukosowaniu, a zatem powoduje większe uszkodzenia mechaniczne niż cieńsza metalowa kaniula opisana w tym artykule (rysunek 2D). Rurka 30 G została użyta, ponieważ jej krytyczne obciążenie wyboczeniowe jest wystarczająco wysokie, aby pośredniczyć w penetracji opony twardej pomimo długości 1-10 cm, ponieważ ściśle przylega do rurki PTFE i rzadko ulega zatkaniu. Rurka 33 G łatwiej się zapycha i wygina oraz jest trudniejsza do połączenia z rurką PTFE. Rurka 36 G nie jest wystarczająco sztywna, aby przebić oponę twardą NHP.
Inną alternatywną techniką wstrzykiwania jest połączenie wyjścia pompy powietrza z tylną częścią ładowanej wektorowo pipety19 ze szkła ciągnionego. Wektor jest wypychany z końcówki pipety przez bezpośrednie, przerywane ciśnienie powietrza z pompy, co eliminuje potrzebę stosowania oleju. Podobnie jak w przypadku opisanej powyżej metody jednorurkowej, brak jakichkolwiek połączeń materiałowych między łąkotką a końcówką kaniuli zmniejsza ryzyko przecieków. Jednak ostry stożek i delikatne końcówki szklanych pipet zapobiegają ich przenikaniu przez oponę twardą NHP lub celowaniu w głębokie struktury.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
To badanie było wspierane przez WaNPRC/ITHS P51OD010425 (JTT), National Institute of Health (NIH) granty EY023277 (R01 dla YK), EY030441 (R01 dla GH), MH114126 (RF1 dla JTT, Boaz Levi, Ed Lein), MH120095 (UG3 dla JTT i GH), EY028902 (R01 dla RS), a także dzięki grantom NIH OD010425 (P51 dla WaNPRC) oraz University of Washington Royalty Research Fund A148416. Autorzy pragną podziękować Yasmine El-Shamayleh i Victorii Omstead za histologii, Refugio Martinez za klonowanie wektorów wirusowych i John Mich za pomoc w przetwarzaniu tkanki mózgowej NHP.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Sprzęt: Zestaw | |||
| Pozycja< / mocny> | |||
| klucze imbusowe | BONDHUS | 10936 | STERRAD |
| Uchwyt do kaniuli | KOPF | 1770 | STERRAD |
| Nośnik (manipulator) | KOPF | 1404 | STERRAD |
| Platforma | nośnaKOPF | 1430 | NA |
| Statyw nośny | KOPF | 1449 | STERRAD |
| Osłony oczu, uszu, ust | KOPF | 1430 | NA |
| Baza stereotaktyczna | KOPF | 1210 | NA |
| mocna>Sprzęt: Kaniula | |||
| Pozycja | |||
| 1 mL Strzykawki Luer-lock | BD | 309628 | NA (opakowanie sterylizowane) |
| Kaniule* | (domowej roboty - patrz poniżej) | NA | (autoklaw) |
| Kolorowy olej** | (domowej roboty - patrz poniżej) | NA | NA |
| Winda (do stojaka na tuby) | Cole-Parmer | UX-08057-10 | STERRAD |
| Końcówka filtra | Genesee Scientific | 23-404 | NA (opakowanie sterylizowane) |
| Fluorescencyjny mikrokulki | Lumafluor | R170 | NA |
| P20 pipetman | Gilson | FA10003M | NA |
| Probówki PCR | Olympus Plastics | 22-161 | STERRAD |
| Zawór odcinający | Cole-Parmer | 3060004 | STERRAD |
| Stojak na rurki | domowej roboty | NA | STERRAD |
| Rozwiązanie wektorowe | (domowej roboty) | NA | NA |
| < mocny>Sprzęt: < / mocny> Zestaw | |||
| < mocny>Pozycja< / mocny> | |||
| Elektryczna pompa powietrza | World Precision Instruments | PV830 | NA |
| Pedał nożny | World Precision Instruments | 3260 | NA |
| Osłona rurki | EZ Drape | A400-1000 | NA (pakiet sterylizowany) |
| < mocny>Sprzęt: Narzędzia | |||
| ogólnej< mocny>Pozycja< / mocny> | |||
| Zlewka | MEDLINE | azlon | STERRAD |
| Frezy | STRYKER | 277-10-235 | STERRAD |
| Dwuzębny szpikulec do tkanek | Fine Science Tools | 18067-11 | STERRAD |
| Serwety | MEDLINE | DYNJP3004 | NA (opakowanie sterylizowane) |
| Kleszczyki opatrunkowe | Miltex | 6-118 | STERRAD |
| Wiertło | STRYKER | Q9R-5400 | NA |
| Wiertła | STRYKER | 277-82-87 | STERRAD |
| Gaza | MEDLINE | NON26334 | NA (opakowanie sterylizowane) |
| Kleszczyki hemostatyczne do komarów | Miltex | 7-2, 7-4 | STERRAD |
| Uchwyty lekkie | SKYTRON | Stellar XL | STERRAD |
| Igła hodler | Miltex | 8-2 | STERRAD |
| Winda okostna | Miltex | 18-1968 | STERRAD |
| Rongeurs | Miltex | 17-4800 | STERRAD |
| Saline | BAXTER | 2F7122 | STERRAD |
| Skalpel | Bard-Parker | 372610 | STERRAD |
| Nożyczki | Miltex | 5-12, 5-114 | STERRAD |
| Zwijacze Senn | Miltex | 28065 | STERRAD Sterylne |
| rękawice | MEDLINE | Triumph Micro | NA (opakowanie sterylizowane) |
| Ssanie | medela | 200-4869 | NA |
| Końcówka ssąca | MEDLINE | DYNDFR12S | NA (opakowanie sterylizowane) |
| Rurka ssąca | COVIDEN | 8888301614 | NA (pakiet sterylizowany) |
| Fartuchy chirurgiczne | MEDLINE | DYNJP2002S | NA (opakowanie sterylizowane) |
| Długopisy chirurgiczne i linijka | MEDLINE | DYNJSM03 | NA (opakowanie sterylizowane) |
| Szew | COVIDEN | SL-635 | NA (pakiet sterylizowany) |
| Kleszczyki do tkanek | Miltex | 6-114 | STERRAD |
| Zaciski do ręczników | Miltex | 7-504 | STERRAD |
| Waciki do drewna | MEDLINE | MDS202095 | NA (pakiet sterylizowany) |
| < mocny>Sprzęt: < / mocny> * kaniule | |||
| Pozycja | |||
| Igła podskórna | EXELINT INTERNATIONAL | 26437 | NA (pakiet sterylizowany) |
| Rura ze stali nierdzewnej | K-TUBE | K30R | NA |
| PTFE rura | ZEUS | 216200 | NA |
| strong>Sprzęt: **kolorowy olej | |||
| Pozycja | |||
| Płynny koncentrat barwnika do świec | PremiumCraft | Czerwony/Różowy | NA |
| Olej mineralny | Vi-Jon | S0883 | NA |
| STERRAD: niskotemperaturowa plazma gazowa |
Bibliografia
- Kojima, Y., Robinson, F. R., Soetedjo, R. Cerebellar fastigial nucleus influence on ipsilateral abducens activity during saccades. Journal of Neurophysiology. 111 (8), 1553-1563 (2014).
- Kojima, Y., Soetedjo, R. Elimination of the error signal in the superior colliculus impairs saccade motor learning. Proceedings of the National Academy of Sciences of the United States of America. 115 (38), 8987-8995 (2018).
- Kojima, Y., Soetedjo, R., Fuchs, A. F. Effects of GABA agonist and antagonist injections into the oculomotor vermis on horizontal saccades. Brain Research. 1366, 93-100 (2010).
- Kojima, Y., Soetedjo, R., Fuchs, A. F. Effect of inactivation and disinhibition of the oculomotor vermis on saccade adaptation. Brain Research. 1401, 30-39 (2011).
- De, A., El-Shamayleh, Y., Horwitz, G. D. Fast and reversible neural inactivation in macaque cortex by optogenetic stimulation of GABAergic neurons. eLife. 9, 52658(2020).
- El-Shamayleh, Y., Kojima, Y., Soetedjo, R., Horwitz, G. D. Selective optogenetic control of Purkinje cells in monkey cerebellum. Neuron. 95 (1), 51-62 (2017).
- Mich, J. K., et al. Functional enhancer elements drive subclass-selective expression from mouse to primate neocortex. Cell Reports. 34 (13), 108754(2021).
- Graybuck, L. T., et al. Enhancer viruses for combinatorial cell subclass-specific labeling. Neuron. (21), 00159(2020).
- Michel, J., Benninger, D., Dietz, V., van Hedel, H. J. Obstacle stepping in patients with Parkinson's disease. Complexity does influence performance. Journal of Neurology. 256 (3), 457-463 (2009).
- Chan, K. Y., et al. Engineered AAVs for efficient noninvasive gene delivery to the central and peripheral nervous systems. Nature Neuroscience. 20 (8), 1172-1179 (2017).
- Kaku, Y., Yoshida, K., Iwamoto, Y. Learning signals from the superior colliculus for adaptation of saccadic eye movements in the monkey. Journal of Neuroscience. 29 (16), 5266-5275 (2009).
- Soetedjo, R., Fuchs, A. F., Kojima, Y. Subthreshold activation of the superior colliculus drives saccade motor learning. Journal of Neuroscience. 29 (48), 15213-15222 (2009).
- Kleinbart, J. E., et al. A modular implant system for multimodal recording and manipulation of the primate brain. Annual International Conference of the IEEE Engineering in Medicine and Biology Society. IEEE Engineering in Medicine and Biology Society. Annual International Conference. 2018, 3362-3365 (2018).
- Arieli, A., Grinvald, A., Slovin, H. Dural substitute for long-term imaging of cortical activity in behaving monkeys and its clinical implications. Journal of Neuroscience Methods. 114 (2), 119-133 (2002).
- Ruiz, O., et al. Optogenetics through windows on the brain in the nonhuman primate. Journal of Neurophysiology. 110 (6), 1455-1467 (2013).
- Fredericks, J. M., et al. Methods for mechanical delivery of viral vectors into rhesus monkey brain. Journal of Neuroscience Methods. 339, 108730(2020).
- Bankiewicz, K. S., et al. Convection-enhanced delivery of AAV vector in parkinsonian monkeys; in vivo detection of gene expression and restoration of dopaminergic function using pro-drug approach. Experimental Neurology. 164 (1), 2-14 (2000).
- Yazdan-Shahmorad, A., et al. Widespread optogenetic expression in macaque cortex obtained with MR-guided, convection enhanced delivery (CED) of AAV vector to the thalamus. Journal of Neuroscience Methods. 293, 347-358 (2018).
- Nathanson, J. L., Yanagawa, Y., Obata, K., Callaway, E. M. Preferential labeling of inhibitory and excitatory cortical neurons by endogenous tropism of adeno-associated virus and lentivirus vectors. Neuroscience. 161 (2), 441-450 (2009).
Przedruki i uprawnienia
