Tutaj udostępniamy protokół do badania potencjalnych czynników transkrypcyjnych zaangażowanych w rozwój komórek dendrytycznych (DC) za pomocą lentiwirusowej transdukcji shRNA w celu uzyskania stabilnych linii komórkowych knockdown do różnicowania DC in vitro.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Badanie rozwoju komórek dendrytycznych przez knockdown genów za pośrednictwem krótkiej spinki do włosów za pośrednictwem RNA w linii komórek hematopoetycznych i progenitorowych in vitro
W tym artykule
Podsumowanie
Streszczenie
Komórki dendrytyczne (DC) są ważnymi komórkami prezentującymi antygen, które łączą wrodzoną i adaptacyjną odpowiedź immunologiczną. DC są niejednorodne i można je podzielić na konwencjonalne DC (cDC) i plazmocytoidalne DC (pDC). cDCs specjalizuje się w prezentowaniu antygenów naiwnym limfocytom T i aktywacji ich. Z drugiej strony, pDC mogą wytwarzać duże ilości interferonów typu I (IFN-I) podczas infekcji wirusowej. Specyfikacja DC występuje we wczesnym stadium komórek progenitorowych DC w szpiku kostnym (BM) i jest definiowana przez sieć czynników transkrypcyjnych (TF). Na przykład cDC o wysokiej ekspresji ID2, podczas gdy pDC o wysokiej ekspresji E2-2. Ponieważ identyfikowanych jest coraz więcej podzbiorów prądów stałych, rośnie zainteresowanie zrozumieniem konkretnych TF kontrolujących rozwój prądu stałego. W tym miejscu ustalamy metodę badań przesiewowych TF krytycznych dla różnicowania DC in vitro poprzez dostarczanie lentiwirusa przenoszącego krótkie RNA spinki do włosów (shRNA) do unieśmiertelnionej linii hematopoetycznych komórek macierzystych i progenitorowych (iHSPC). Po selekcji i różnicowaniu in vitro, potencjał cDC i pDC stabilnych linii komórkowych knockdown jest analizowany za pomocą cytometrii przepływowej. Podejście to stanowi platformę do identyfikacji genów potencjalnie decydujących o losie DC od przodków in vitro.
Wprowadzenie
DC są kluczowymi regulatorami odporności wrodzonej i nabytej1. DC są głównie klasyfikowane w dwóch funkcjonalnie odrębnych populacjach, a mianowicie pDC i cDC. Ponadto cDC składają się z dwóch podzbiorów, a mianowicie cDC typu I i typu II lub cDC1s i cDC2s, odpowiednio2. pDC, wyrażające BST2, Siglec-H i pośrednie poziomy CD11c u myszy3,4, to komórki, które mogą wydzielać duże ilości IFN-I podczas stanu zapalnego i infekcji wirusowej5. Ze względu na ich silną zdolność do wytwarzania IFN-I, podejrzewa się również, że odgrywają kluczową rolę w postępie chorób autoimmunologicznych, w tym tocznia rumieniowatego układowego (SLE)6. cDC1s, zdefiniowane przez powierzchniową ekspresję XCR1, CD8a, CLEC9A i CD103 u myszy7, są wyspecjalizowane w aktywacji i polaryzacji cytotoksycznych limfocytów T CD8 + (CTL) poprzez krzyżową prezentację antygenu, inicjując w ten sposób odporność typu I w odpowiedzi na wewnątrzkomórkowe patogeny i raka8,9. Z drugiej strony, cDC2s, wyrażające CD11b i CD172α (znane również jako Sirpα) zarówno u ludzi, jak i myszy, mogą aktywować limfocyty T CD4 + i promować odpowiedź immunologiczną typu II przeciwko alergenom i pasożytom10, a także modulować odporność typu III po rozpoznaniu bakterii zewnątrzkomórkowych i mikrobioty11,12.
Dywersyfikacja DC jest określana przez grupę TF z hematopoetycznych komórek macierzystych i progenitorowych (HSPC) w BM. E2-2 (kodowane przez Tcf4) jest głównym regulatorem różnicowania i funkcji pDCs13,14. W przeciwieństwie do tego, inhibitor wiązania DNA 2 (ID2) napędza specyfikację cDC i hamuje rozwój pDC poprzez blokowanie aktywności białka E15. Co więcej, rozwój cDC1 wymaga IRF8 i BATF3, podczas gdy różnicowanie cDC2 w dużym stopniu zależy od IRF416. Ostatnie prace badały heterogeniczność pDCs17 i cDC oraz ich regulację transkrypcji18. Ze względu na złożoność sieci DC istnieje niezaspokojona potrzeba ustanowienia platformy do identyfikacji innych TF kontrolujących rozwój i funkcjonalność DC.
Tutaj użyliśmy iHSPC, który został wygenerowany przez ekspresję regulowanej estrogenem translokacji jądrowej Hoxb8 w komórkach BM (zwanych również komórkami Hoxb8-FL)19. iHSPC mogą się namnażać i pozostawać w stadium niezróżnicowanym w obecności β-estradiolu i ligandu Flt3 (FL), podczas gdy zaczynają różnicować się w różne typy DC w obecności FL po odstawieniu β-estradiol19. Opierając się na tej funkcji, możemy strącić interesujące nas geny na etapie progenitorowym, a następnie zbadać wpływ na różnicowanie in vitro pDC i cDC. Dlatego metoda ta jest potężnym narzędziem do odkrywania genów, które regulują rozwój i funkcję DC.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
Postępowanie z lentiwirusami odbywa się zgodnie z przepisami Departamentu Zdrowia i Bezpieczeństwa Środowiska Wydziału Medycznego Narodowego Uniwersytetu Tajwańskiego.
1. Przygotowanie unieśmiertelnionych linii komórek macierzystych i progenitorowych krwiotwórczych (iHSPCs)
- Hodować linię komórkową iHSPC w pełnej pożywce RPMI 1640 zawierającej 100 ng/mL FL oraz 1 µM β-estradiolu.
- Przesiewać komórki w stosunku 1:10 co 3 dni.
UWAGA: Pełną pożywkę RPMI 1640 przygotować poprzez uzupełnienie o 10% płodowej surowicy bydlęcej (FBS), 5 x 10⁻⁵ M β-merkaptoetanol oraz 10 µg/mL gentamycyny. Rekombinowany mysi FL jest również dostępny w sprzedaży.
2. Transdukcja lentiwirusowa
- Wysiać iHSPCs z gęstością 1 x 10⁵ komórek/dołek w płytkach 12-dołkowych w 1 mL pożywki kompletnej zawierającej 100 ng/mL FL, 1 µM β-estradiol oraz 8 µg/mL polybrene.
UWAGA: Stężenie polybrene zależy od typu komórek i zazwyczaj mieści się w zakresie 4-8 µg/mL. - Do każdego dołka dodać lentiwirusa niosącego shRNA przy wielokrotności infekcji (MOI) wynoszącej 100.
UWAGA: Wektorem lentiwirusowym jest pLKO.1-Puro z markerem selekcyjnym puromycyną (Rycina 1). Sekwencje docelowe shRNA skierowanych odpowiednio przeciwko LacZ, Tcf4 oraz Id2 są wymienione w Tabeli materiałów. MOI jest definiowane jako liczba wirionów dodanych na jedną komórkę podczas infekcji.
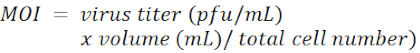
- Wirować płytki z prędkością 1,100 x g przez 90 min w temperaturze 37 °C.
UWAGA: Infekcję wspomaganą wirowaniem (spin infection) przeprowadza się przy użyciu rotora z koszyczkami wahadłowymi. - Inkubować płytkę z zainfekowanymi komórkami przez noc w temperaturze 37 °C w inkubatorze.
UWAGA: Jeśli komórki są wrażliwe na polybrene, należy wymienić pożywkę na pożywkę kompletną bez polybrene po zakończeniu wirowania. - Wymienić pożywkę na pożywkę kompletną zawierającą 100 ng/mL FL i 1 µM β-estradiol 24 h po infekcji.
- Po kolejnych 24 h dodać do pożywki 6 µg/mL puromycyny w celu wyselekcjonowania zainfekowanych komórek.
UWAGA: Ekspresja genów z transdukowanego wektora lentiwirusowego, w tym genu oporności na puromycynę, trwa zazwyczaj 48 h. Należy upewnić się, że stężenie puromycyny jest zoptymalizowane dla każdej linii komórkowej. - Wymieniać pożywkę selekcyjną zawierającą 100 ng/mL FL, 1 µM β-estradiol oraz 6 µg/mL puromycyny co 3 dni i hodować komórki przez co najmniej jeden tydzień, aby namnożyć stabilnie transdukowane komórki iHSPC.
UWAGA: Selekcja puromycyną zazwyczaj zaczyna działać po 48 h, a czas trwania selekcji zależy od typu komórek.
3. Pomiar wydajności wyciszenia za pomocą odwrotnej transkrypcji i PCR w czasie rzeczywistym (RT-PCR)
- Wyizoluj całkowite RNA z 1 x 10⁷ shLacZ, shTcf4, oraz shId2 stabilne wyciszenie genów w komórkach iHSPC przy użyciu komercyjnego odczynnika do ekstrakcji RNA i wytrącanie RNA z warstwy wodnej izopropanolem, a następnie przemywanie osadu RNA 75% etanolem.
- Rozpuścić RNA (~ 5 µg) z 5 µL z wody H2O traktowanej DEPC2i dostosować stężenie do 1 µg/µL.
- Pobrać 1-3 µg RNA, wymieszać z H2O traktowaną DEPC2do uzyskania objętości końcowej wynoszącej 17.4 µL, dodać 1 µL z 1 jednostki/µL DNazę I wolną od RNaz i inkubować przez 20 min w 37 °C.
UWAGA: Ten etap służy do trawienia DNA genomowego w próbkach RNA. - Dodaj 1 µL 20 mM EDTA do próbek RNA, inkubować w 65 °C przez 10 min w celu inaktywacji DNazy I, a następnie bezzwłocznie umieścić próbki RNA w 4 °C.
- Dodaj 11.6 µL mieszaniny reakcyjnej zawierającej 1 µL starterów oligo(dT) (45 µM), 6 µL z 5x 1Proszę podać tekst źródłowy do tłumaczenia. bufor do oddzielania nici, 3 µL dNTP (2 mM), 0.6 µL inhibitora RNazy (50 jednostek/µL) i 1 µL odwróconej transkryptazy (200 j./µL) do próbek RNA i inkubować w 40 °C przez 1 h.
- Zatrzymać reakcję, podgrzewając do 70 °C przez 10 min, a następnie rozcieńczyć mieszaninę reakcyjną za pomocą 30 µL wodoru2O.
- Pobierz 2 µL rozcieńczonej mieszaniny reakcyjnej RT jako matrycy DNA i poddać ją amplifikacji PCR z wykorzystaniem starterów przeciwko Tcf4 lub Id2 (patrz Tabela 1 (dla parametrów termocyklera).
UWAGA: Sekwencje starterów znajdują się w Tabela materiałów.
4. Różnicowanie in vitro stabilnych linii komórkowych iHSPC z wyciszeniem genów
- Utrzymać stabilne pojedyncze wyciszenie genów LacZ (shLacZ), Tcf4 (shTcf4) lub Id2 (shId2) w iHSPC w pełnej pożywce zawierającej 100 ng/mL FL i 1 µM β-estradiolu.
- Zebrać niedróżnicowane iHSPC shLacZ, shTcf4 i shId2 do probówki o pojemności 15 mL i odwirować przez 5 min przy 500 x g w celu sformowania osadu komórkowego.
- Odlać supernatant i dodać 10 mL PBS, aby wypłukać komórki. Powtórzyć ten krok dwukrotnie.
- Resuspendować i wysiać komórki iHSPC w gęstości 2 x 10⁵ komórek/mL do płytki 12-dołkowej w 1 mL pełnej pożywki zawierającej wyłącznie 100 ng/mL FL.
- Po trzech dniach dodać 1 mL świeżej pełnej pożywki zawierającej 100 ng/mL FL.
- Dwa dni później przeanalizować zróżnicowane komórki (iHSPC shLacZ, shTcf4 i shId2) metodą cytometrii przepływowej.
5. Analiza cytometryczna z przepływem komórek zróżnicowanych komórek DC
- Przenieść komórki do probówek 1,5 mL, pipetując je 2-3 razy w górę i w dół w płytce, a następnie odwirować przez 5 min przy 500 x g w temperaturze pokojowej (RT).
UWAGA: Komórki DC różnicowane in vitro będą lekko przywierać do płytek. Ostrożne pipetowanie pomoże w odzyskaniu komórek DC z płytek. - Odlać supernatant i resuspendować komórki w 50 µL buforu FACS. Następnie dodać 50 µL supernatantu hybrydomy anty-CD16/32 i inkubować przez 5-10 min na lodzie.
UWAGA: Przeciwciało blokujące Fc zapobiega niespecyficznemu wiązaniu przeciwciał do receptorów Fc wykazujących ekspresję na niektórych komórkach mieloidalnych i limfocytach B; jest ono dostępne komercyjnie u różnych dostawców. - Dodać przeciwciała sprzężone z barwnikiem fluorescencyjnym (0,04 µg dla każdego przeciwciała) bezpośrednio do komórek i inkubować przez 15 min na lodzie w ciemności. Użyte przeciwciała to APC/cy7 anty-mysi CD11c, FITC anty-mysi CD11b oraz PE anty-mysi B220.
UWAGA: Komórki pDC definiuje się jako CD11c+CD11b-B220+, a komórki cDC jako CD11c+CD11b+B220-. - Przemyć komórki 1 mL buforu FACS i odwirować przez 5 min przy 500 x g w RT.
- Resuspendować komórki w 100 µL buforu FACS i analizować metodą cytometrii przepływowej.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Przedstawiono mapę wektora lentiwirusowego pLKO.1-Puro (Rysunek 1). Po dostarczeniu do iHSPC lentiwirusa wykazującego shRNA przeciwko LacZ (kontroli nietargetującej), Tcf4 oraz Id2, efektywność knockdownu potwierdzona za pomocą RT-qPCR wykazała, że ekspresja Tcf4 była zmniejszona w shTcf4 iHSPC w porównaniu do shLacZ iHSPC (Rysunek 2A). Z kolei zmniejszona ekspresja Id2 została również zaobserwowana ...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Wektory shRNA oparte na lentiwirusach są często wykorzystywane do wyciszania genów poprzez transdukcję wirusa do komórek i umożliwiają stabilną integrację z genomem gospodarza. Należy jednak wziąć pod uwagę różną wydajność transdukcji w różnych typach komórek i podjęto szereg podejść w celu przezwyciężenia tego problemu.
Polibren jest polimerem polikationowym, który może neutralizować ładunki na błonie komórkowej, zwiększając w ten sposób wiązanie wirionu z komórkami podczas transdukcji
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Jesteśmy wdzięczni za wsparcie techniczne od Dr. Tz-Ling Chen. Dziękujemy National RNAi Core Facility (Academia Sinica, Tajwan) za dostarczenie lentiwirusa shRNA (http://rnai.genmed.sinica.edu.tw). Prace te były wspierane przez Ministerstwo Nauki i Technologii Tajwanu (MOST 108-2320-B-002-037-MY3 i MOST 109-2320-B-002-054-MY3).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Przeciwciała | |||
| APC/Cy7 anty-mysie przeciwciało CD11c | Biolegend | 117324 | (klon: N418) |
| FITC anty-mysie/ludzkie przeciwciało CD11b | Biolegend | 101206 | (klon: M1/70) |
| PE anty-mysie/ludzkie B220 Przeciwciało | Biolegend | 103208 | Klon: RA3-6B2) |
| Hodowla komórkowa | |||
| 1,5 ml mikroprobówka | ExtraGene | TUBE-170-C | |
| 12-dołkowa płytka poddana kulturze tkankowej | Falcon | 353043 | |
| Płodowa surowica bydlęca (FBS) | Corning | 35-010-CV | |
| RPMI 1640 średnia | gibco | 11875-085 | |
| Odczynnik | |||
| β-estradiol | Sigma-Aldrich | E2758-250MG | |
| β-merkaptoetanol (β-ME) | Sigma-Aldrich | M6250 | |
| Bufor FACS | domowej roboty | Formuła: 1xPBS + 0,5 %FBS + 0,1% NaN3 | |
| ligand Flt3 (FL) | domowej roboty | ||
| Polybrene | Sigma-Aldrich | TR-1003-G | |
| Puromycin | Invivogen | ant-pr-1 | |
| TRIsure | BIOLINE | BIO-38032 | |
| shRNA (identyfikator sekwencji Taregt/klonu) | Firma | ||
| shId2 (GCTTATGTCGAATGATAGCAA/TRCN0000054390) | Konsorcjum RNAi (TRC) | ||
| shLacZ (CGCGATCGTAATCACCCGAGT/TRCN0000072224) | Konsorcjum RNAi (TRC) | ||
| shTcf4 (GCTGAGTGATTTACTGGATTT/TRCN0000012094) | Konsorcjum RNAi (TRC) |
Bibliografia
- Steinman, R. M., Witmer, M. D. Lymphoid dendritic cells are potent stimulators of the primary mixed leukocyte reaction in mice. Proceedings of the National Academy of Sciences. 75 (10), 5132-5136 (1978).
- Guilliams, M., et al. Dendritic cells, monocytes and macrophages: a unified nomenclature based on ontogeny. Nature Reviews Immunology. 14 (8), 571-578 (2014).
- Blasius, A. L., Cella, M., Maldonado, J., Takai, T., Colonna, M. Siglec-H is an IPC-specific receptor that modulates type I IFN secretion through DAP12. Blood. 107 (6), 2474-2476 (2006).
- Swiecki, M., Colonna, M. Unraveling the functions of plasmacytoid dendritic cells during viral infections, autoimmunity, and tolerance. Immunology Reviews. 234 (1), 142-162 (2010).
- Liu, Y. -J. IPC: Professional Type 1 interferon-producing cells and plasmacytoid dendritic cell precursors. Annual Review of Immunology. 23 (1), 275-306 (2005).
- Panda, S. K., Kolbeck, R., Sanjuan, M. A. Plasmacytoid dendritic cells in autoimmunity. Current Opinion in Immunology. 44, 20-25 (2017).
- Durai, V., Murphy, K. M. Functions of murine dendritic cells. Immunity. 45 (4), 719-736 (2016).
- Mashayekhi, M., et al. CD8α(+) dendritic cells are the critical source of interleukin-12 that controls acute infection by Toxoplasma gondii tachyzoites. Immunity. 35 (2), 249-259 (2011).
- Anderson, D. A., Dutertre, C. -A., Ginhoux, F., Murphy, K. M. Genetic models of human and mouse dendritic cell development and function. Nature Reviews Immunology. 21 (2), 101-115 (2021).
- Plantinga, M., et al. Conventional and monocyte-derived CD11b(+) dendritic cells initiate and maintain T helper 2 cell-mediated immunity to house dust mite allergen. Immunity. 38 (2), 322-335 (2013).
- Persson, E. K., et al. IRF4 transcription-factor-dependent CD103(+)CD11b(+) dendritic cells drive mucosal T helper 17 cell differentiation. Immunity. 38 (5), 958-969 (2013).
- Kumamoto, Y., et al. CD301b+ dermal dendritic cells drive T helper 2 cell-mediated immunity. Immunity. 39 (4), 733-743 (2013).
- Cisse, B., et al. Transcription factor E2-2 is an essential and specific regulator of plasmacytoid dendritic cell development. Cell. 135 (1), 37-48 (2008).
- Grajkowska, L. T., et al. Isoform-specific expression and feedback regulation of E protein TCF4 control dendritic cell lineage specification. Immunity. 46 (1), 65-77 (2017).
- Jackson, J. T., et al. Id2 expression delineates differential checkpoints in the genetic program of CD8α+ and CD103+ dendritic cell lineages. The EMBO Journal. 30 (13), 2690-2704 (2011).
- Suzuki, S., et al. Critical roles of interferon regulatory factor 4 in CD11bhighCD8alpha- dendritic cell development. Proceedings of the National Academy of Science U. S. A. 101 (24), 8981-8986 (2004).
- Rodrigues, P. F., et al. Distinct progenitor lineages contribute to the heterogeneity of plasmacytoid dendritic cells. Nature Immunology. 19 (7), 711-722 (2018).
- Brown, C. C., et al. Transcriptional basis of mouse and human dendritic cell heterogeneity. Cell. 179 (4), 846-863 (2019).
- Redecke, V., et al. Hematopoietic progenitor cell lines with myeloid and lymphoid potential. Nature Methods. 10 (8), 795-803 (2013).
- Abe, A., Miyanohara, A., Friedmann, T. Polybrene increases the efficiency of gene transfer by lipofection. Gene Therapy. 5 (5), 708-711 (1998).
- Sorgi, F. L., Bhattacharya, S., Huang, L. Protamine sulfate enhances lipid-mediated gene transfer. Gene Therapy. 4 (9), 961-968 (1997).
- Kirkling, M. E., et al. Notch signaling facilitates in vitro generation of cross-presenting classical dendritic cells. Cell Reports. 23 (12), 3658-3672 (2018).
- Pearce, E. J., Everts, B. Dendritic cell metabolism. Nature Reviews. Immunology. 15 (1), 18-29 (2015).
- Wculek, S. K., Khouili, S. C., Priego, E., Heras-Murillo, I., Sancho, D. Metabolic Control of Dendritic Cell Functions: Digesting Information. Frontiers in Immunology. 10 (775), (2019).
- Saxton, R. A., Sabatini, D. M. mTOR signaling in growth, metabolism, and disease. Cell. 168 (6), 960-976 (2017).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
