Ten protokół szczegółowo opisuje metodę izolacji neutrofili z krwi pełnej, kożuchów lub błon leukaferezy, osiągając dobrą wydajność, wysoką czystość i minimalną aktywację komórek. Wykorzystujemy oczyszczanie gradientowe, sedymentację czerwonych krwinek (RBC) i lizę RBC, aby uzyskać wysokiej jakości / czysty preparat neutrofili.
Artykuł metodologiczny
Izolacja ludzkich neutrofili z krwi pełnej i kożuchów
W tym artykule
Podsumowanie
Streszczenie
Neutrofile (PMN) to najliczniejsze leukocyty w ludzkim krążeniu, od 40 do 70% wszystkich leukocytów we krwi. Są to pierwsze komórki rekrutowane w miejscu zapalenia poprzez szybkie wynaczynienie przez naczynia. Tam neutrofile pełnią szereg funkcji, zabijając atakujące patogeny i pośrednicząc w sygnalizacji immunologicznej. Świeżo oczyszczone neutrofile z ludzkiej krwi są modelem z wyboru do badań, ponieważ żadna linia komórkowa nie replikuje w pełni funkcji i biologii PMN. Jednak neutrofile są krótkotrwałymi, terminalnie zróżnicowanymi komórkami i są bardzo podatne na aktywację w odpowiedzi na bodźce fizyczne (temperatura, szybkość wirowania) i biologiczne (endotoksyny, chemo- i cytokiny). Dlatego ważne jest, aby postępować zgodnie ze standardową, niezawodną i szybką metodą uzyskiwania czystych i nieaktywowanych komórek. Protokół ten przedstawia zaktualizowany protokół łączący wirowanie w gradionym gradieniu gęstości, sedymentację krwinek czerwonych (RBC) i lizę krwinek czerwonych w celu uzyskania wysokiej czystości PMN i zminimalizowania aktywacji komórek. Ponadto omówiono metody oceny jakości, żywotności i czystości izolacji neutrofili.
Wprowadzenie
Wrodzony układ odpornościowy składa się z wielu typów komórek, które utrzymują homeostazę immunologiczną i usuwanie patogenów wraz z wieloma innymi funkcjami fizjologicznymi. Neutrofile stanowią największą pulę białych krwinek w ludzkim krążeniu1. Większość dojrzałych neutrofili jest przechowywana w szpiku kostnym, który jest miejscem powstawania nowych neutrofili, zwanych również granulopoezą. W szpiku kostnym progenitorzy granulocytów opuszczają cykl komórkowy i ostatecznie różnicują się, uzyskując charakterystyczne segmentowane jądra i ziarnistości2. W stanach zapalnych, w odpowiedzi na chemokiny, cytokiny oraz wzorce molekularne związane z uszkodzeniem i patogenem, neutrofile są mobilizowane z krwiobiegu i ze szpiku kostnego, aby pełnić szeroki zakres funkcji. Należą do nich wydzielanie cytokin, bezpośrednia fagocytoza patogenu, uwalnianie reaktywnych form tlenu, degranulacja białek przeciwdrobnoustrojowych i tworzenie pułapek zewnątrzkomórkowych neutrofili.
Cząsteczki używane przez neutrofile do zwalczania infekcji są toksyczne dla mikrobów i gospodarza. Tak więc długość życia i prawidłowe usuwanie starzejących się/umierających neutrofili są ściśle regulowane i mają ograniczoną długość życia w krążeniu (<48 h)3. Ze względu na to krótkie przeżycie, organizm ludzki wytwarza średnio 100 miliardów nowych neutrofili każdego dnia, aby utrzymać homeostazę populacji4. Granulopoeza w nagłych wypadkach może dodatkowo zwiększyć uwalnianie neutrofili, zarówno dojrzałych, jak i niedojrzałych, we krwi podczas stanu zapalnego i infekcji5. Znaczenie neutrofili we wrodzonej odpowiedzi immunologicznej podkreślają pacjenci z nabytą lub wrodzoną neutropenią, którzy są podatni na infekcje bakteryjne i grzybicze6.
Wiele wyzwań pojawia się podczas badania biologii neutrofili i ich roli w odpowiedzi immunologicznej ze względu na ich naturę, w tym ich krótkie przeżycie i zawartość cytotoksyczną. Linie komórkowe podobne do neutrofili były powszechnie różnicowane od ludzkich komórek HL-60 białaczki promielocytowej i komórek PLB-9857,8. Chociaż mogą wykazywać morfologię podobną do neutrofili i przeprowadzać chemotaksję, te linie komórkowe nie mogą w pełni podsumować biologii neutrofili. Testy in vitro z wykorzystaniem tych linii komórkowych również nie są w stanie podsumować eksperymentów in vivo. Co więcej, różnicowanie tych komórek musi zostać wywołane, a manipulacja genami przed różnicowaniem może mieć na nie niekorzystny wpływ.
Ostatnio opracowano metody pozwalające obejść te problemy za pomocą indukowalnych promotorów do modulacji ekspresji genów po różnicowaniu w komórkach HL-609. Nawet przy użyciu takich narzędzi, pierwotne ludzkie PMN są wymagane do walidacji celów przy użyciu metod farmakologicznych. Dlatego konieczne jest uzyskanie czystych i inaktywowanych neutrofili wyizolowanych z krwi, aby potwierdzić wyniki badań na modelach komórkowych i zwierzęcych. W artykule przedstawiono poprawiony protokół izolacji PMN, w którym oceniono zalety i wady obecnych metod10. Opracowano kombinację składającą się z wirowania gradientowego w celu oddzielenia PMN od innych komórek odpornościowych, sedymentacji na bazie krótkiego dekstranu w celu usunięcia większości erytrocytów, szybkiej lizy resztkowej RBC za pomocą ciśnienia osmotycznego oraz wirowania z niską prędkością w celu usunięcia zanieczyszczenia płytkami krwi.
Protokół
UWAGA: Ludzkie neutrofile zostały wyizolowane z krwi żylnej z odrzuconych filtrów białych krwinek uzyskanych z Laboratorium Banku Krwi w Szpitalu Dziecięcym w Bostonie. Dawcy krwi byli niezidentyfikowani, nie było interakcji z żywymi osobami ani wiedzy na temat możliwych do zidentyfikowania danych osobowych. W związku z tym praca ta nie jest klasyfikowana jako badania z udziałem ludzi zgodnie z przepisami HHS dotyczącymi badań na ludziach (45 CFR część 46). Bostońska Komisja ds. Przeglądu Instytucjonalnego Szpitala Dziecięcego (IRB) zatwierdziła protokół.
1. Nakładanie gradientu na warstwy
- Po wysterylizowaniu opakowania z kożuchem lub krwią pełną i kaptura laminarnego, podziel krew na probówki o pojemności 50 ml z 10 ml krwi w każdej probówce.
- Zwiększ objętość do 35 ml za pomocą 5% płodowej surowicy bydlęcej (FBS)/Zbilansowanego roztworu soli Hanka (HBSS), aby rozcieńczyć krew, aby uzyskać czystszy gradient.
UWAGA: W przypadku stosowania membrany do leukaferezy komórki można wypłukać za pomocą strzykawki o pojemności 60 ml i 30 ml 5% FBS/HBSS na filtr. Rozcieńczanie nie jest konieczne podczas pracy ze świeżo pobraną krwią pełną. - Zamknij pokrywkę probówki o pojemności 50 ml, wymieszaj ją kilka razy przez odwrócenie i trzymaj do góry nogami, aby dno było pozbawione erytrocytów.
- Dodać 10 ml pożywki o gradiencie gęstości (patrz tabela materiałów) bezpośrednio pod krwią. Upewnij się, że podłoże i krew nie mieszają się i że interfejs jest ostry (Rysunek 1A).
UWAGA: Ten krok ma kluczowe znaczenie. Upewnij się, że roztwór gradientu gęstości ma temperaturę pokojową (RT) i jest dobrze wymieszany przed każdym gradientem. Pierwszy mililitr podłoża o gradiencie gęstości należy ostrożnie i równomiernie nakładać warstwami tak wolno, jak to możliwe. Zaleca się ustawienie niskiej prędkości pipety elektronicznej. - Delikatnie umieść probówkę w wirówce, nie naruszając nachylenia i wiruj z prędkością 400 × g przez 30 minut przy suchej smoła, upewniając się, że hamulec jest wyłączony. Obserwuj, jak wirowany gradient rozdziela się na górną warstwę surowicy/osocza, środkowy biały pierścień jednojądrzastych komórek krwi obwodowej (PBMC), warstwę pożywki o mętnym gradiencie gęstości i dolną osadę składającą się z białego, cienkiego pasma neutrofili na wierzchu erytrocytów (Rysunek 1B).
UWAGA: Mętna lub nieprzezroczysta strona probówki po odwirowaniu może sugerować, że komórki (neutrofile) są aktywowane i mogą nie nadawać się do użycia. - Najpierw usuń PBMC, wysuwając pipetę ssącą bezpośrednio do warstwy PBMC. Pamiętaj, aby zassać go całkowicie, podczas gdy warstwa surowicy/osocza zmniejsza się wraz z usuwaniem pierścienia. Zeskrob bok probówki, w której komórki są granulowane, za pomocą pipety ssącej, aby zmaksymalizować usunięcie PMBC. Ostrożnie usunąć mętną warstwę pożywki o gradiencie gęstości między pierścieniem PBMC a granulką neutrofili/RBC.
UWAGA: Zeskrobanie granulowanych komórek z boku probówki znacznie zwiększa czystość izolacji. Uważaj, aby nie zassać osadu, ponieważ większość neutrofili znajduje się bezpośrednio na krwinkach czerwonych.
2. Sedymentacja erytrocytów (RBC)
- Za pomocą pipety o pojemności 10 ml przenieś osad neutrofili/RBC do czystej probówki. Nie pipetować w górę i w dół. Dodaj 5% FBS/HBSS do końcowej objętości 25 ml. Delikatnie wymieszać przez inwersję.
UWAGA: Wykonanie sedymentacji RBC po usunięciu PBMC poprawia wydajność i zmniejsza aktywację10. - Bezpośrednio dodać 25 ml wstępnie podgrzanego (37 °C) 3% dekstranu/0,9% NaCl/H2O do probówki zawierającej rozcieńczony osad neutrofili/erytrocytów czerwonych i delikatnie wymieszać przez inwersję. Umieść rurkę na równej, niewibrującej powierzchni na 15 minut (Rysunek 1C).
UWAGA: Dłuższa sedymentacja zmniejsza zanieczyszczenie krwinkami czerwonymi, ale także zmniejsza plon. Ponadto długotrwała ekspozycja na dekstran może prowadzić do aktywacji neutrofili lub śmierci komórki11. - Delikatnie włóż probówkę z powrotem do okapu (w celu sterylnej izolacji). Tylko nieznacznie zanurzając pipetę w cieczy, zbierz wierzchnią warstwę (~30 ml) podążając za powierzchnią cieczy w dół.
UWAGA: Jeśli sedymentacja wytwarza ostrą granicę między pożywką a krwinkami czerwonymi, osad krwinek czerwony jest mniejszy lub jeśli pożądana jest wyższa wydajność, należy zebrać do 35 ml. - Zakręć rurką (400 × g, 10 min, RT, używając niskiego hamulca (3)), w wyniku czego powstanie czerwona granulka bez cząstek unoszących się w podłożu.
3. Liza resztkowych krwinek czerwonych
- Delikatnie zassać supernatant, nie przerywając pracy osadu.
- Dodaj 25 ml sterylnej ultraczystej wody bezpośrednio do probówki i delikatnie wymieszaj, odwracając przez 28 sekund, aby zlizować erytrocyty. Nie używać pipety do ponownego zawieszenia granulki.
UWAGA: Nie należy przekraczać 30 sekund, ponieważ przedłużające się stany hipotoniczne mogą się aktywować i prowadzić do śmierci neutrofili12. - Natychmiast dodać 25 ml sterylnego 1,8% NaCl/H2O do probówki i delikatnie wymieszać, odwracając, aby doprowadzić roztwór z powrotem do warunków izotonicznych.
UWAGA: Roztwór powinien być czerwony, ale bez zmętnienia. - Wirować przy 200 × g przez 3-5 minut z niskim hamowaniem (poziom 3), aby zminimalizować erytrocyty i sedymentację płytek krwi wraz z neutrofilami (Rysunek 1D i Rysunek 2)13,14.
UWAGA: Osad powinien być biały z minimalną warstwą RBC na wierzchu, którą można delikatnie usunąć podczas zasysania supernatantu. - Zawiesić granulocyty obojętnochłonne, pipetując pożywkę hodowlaną (10% FBS/RPMI1640) bezpośrednio na osad, ale nie pipetować w górę i w dół. Kołysz rurką poziomo z boku na bok, aby zminimalizować aktywację komórek.
UWAGA: Komórki powinny być utrzymywane w stężeniu ~2 × 10⁶ komórek/ml, ponieważ większa gęstość doprowadzi do zwiększonej aktywacji/śmierci komórek15. Z tego samego powodu osad komórkowy należy jak najszybciej ponownie zawiesić. - Jeśli zaobserwuje się agregację lub zlepianie się komórek, przefiltruj zawiesinę komórek za pomocą siatki 70 μm, aby odrzucić zlepione neutrofile.
4. Określanie jakości izolacji neutrofili
- Wybarwić komórki markerami specyficznymi dla neutrofili (CD66b, CD11b), eozynofili (CD193) (Figura 3) i markerem aktywacji, takim jak CD62L (Figura 4). Pozyskaj 20 000 komórek za pomocą cytometrii przepływowej. Analizuj czystość i aktywację komórek przy użyciu strategii bramkowania zaproponowanych w Rysunek 3 i Rysunek 4.
UWAGA: Jakość preparatu neutrofili można ocenić za pomocą 3% roztworu kwasu octowego i błękitu metylenowego w celu uwidocznienia unikalnego płatowego jądra neutrofili. - Określ żywotność komórek za pomocą aneksyny V/jodku propydyny (PI) ( Rysunek 5).
UWAGA: Barwienie błękitem trypanowym można zastosować do oceny żywotności komórek.
Wyniki
Podczas stosowania gradientu gęstości do oczyszczania neutrofilów, kluczowe jest, aby granica między krwią a medium gradientu gęstości była jak najwyraźniejsza i aby po wirowaniu zachował się wyraźny podział na warstwy (krok 1.4). Po lizie RBC bufor powinien mieć przejrzysty czerwony kolor i nie być mętny (krok 3.3). Jeśli preparat jest mętny, może być wymagana druga runda lizy (krok 3), choć może to wpłynąć na przeżywalność neutrofilów (Rysunek 1). Po lizie zaleca się wirowanie z niską prędkością (200 × g) w sytuacjach, gdy priorytetem jest czystość, ponieważ znacznie ogranicza to zanieczyszczenie płytkami krwi. Jednak wirowanie z wysoką prędkością (400 × g) zwiększa wydajność kosztem czystości (krok 3.4, Rysunek 2). Po izolacji neutrofilów do oceny czystości izolacji (krok 4.1) można zastosować fluorescencyjną segregację komórek (FACS), której należy użyć zamiast mikroskopii. Choć sam rozkład FSC/SSC komórek pozwala oszacować jakość izolacji komórek (Rysunek 3A), preferowane jest stosowanie specyficznych markerów komórkowych. W tym przypadku najczęstsze zanieczyszczające populacje komórek barwi się specyficznymi przeciwciałami wraz z CD66b, który jest specyficznie ekspresowany na granulocytach. Barwienie CD45 służy do odróżnienia leukocytów (CD45+) od erytrocytów i płytek krwi (CD45-).
Inne zanieczyszczenia obejmują limfocyty (CD3+ lub CD19+, Rysunek 3F), monocyty (CD14+, Rysunek 3D) oraz eozynofile (CD193+, Rysunek 3G). CD11b jest integryną ekspresjonowaną w linii mieloidalnej; neutrofile i monocyty są CD11b+, podczas gdy limfocyty są CD11b- (Rysunek 3C). Ponieważ aktywacja neutrofili może wpływać na kolejne etapy eksperymentu, należy ocenić ekspresję CD62L; neutrofile stają się CD62L- po aktywacji (krok 4.1). Peptyd fMLP może być stosowany jako kontrola pozytywna dla zrzucania CD62L (Rysunek 4). Ważne jest również oceny stanu zdrowotności neutrofili przed przeprowadzeniem analiz; neutrofile mają stosunkowo krótki okres półtrwania, a aktywacja może go dodatkowo skrócić (krok 4.2). Standardowe barwienie Annexin V i PI może dostarczyć informacji o statusie żywe/martwe w hodowli neutrofili w określonych punktach czasowych (Rysunek 5).
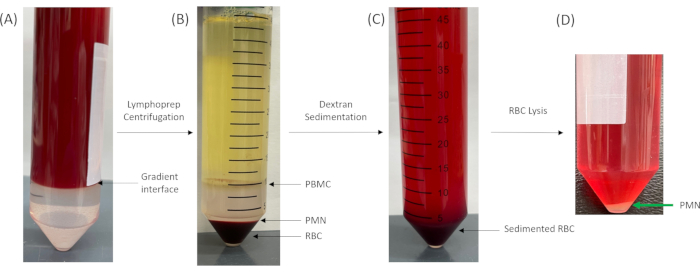
Rysunek 1: Rozdział granulocytów w oparciu o medium z gradientem gęstości. (A) Przed i (B) po wirowaniu. Zwróć uwagę na wyraźną granicę między warstwą krwi a warstwą medium z gradientem gęstości. (C) Sedymentacja osadu z B resuspenderowanego (1:1) w 5% FBS/HBSS i 3% Dextran-0,9% NaCl. (D) Osad PMN po lizie pozostałych RBC w supernatancie z (C) za pomocą H2O. Skróty: PBMC = mononuklearna komórka krwi obwodowej; PMN = neutrofil; RBC = erytrocyt; FBS = płodowa surowica bydlęca; HBSS = zrównoważony roztwór soli Hanksa. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
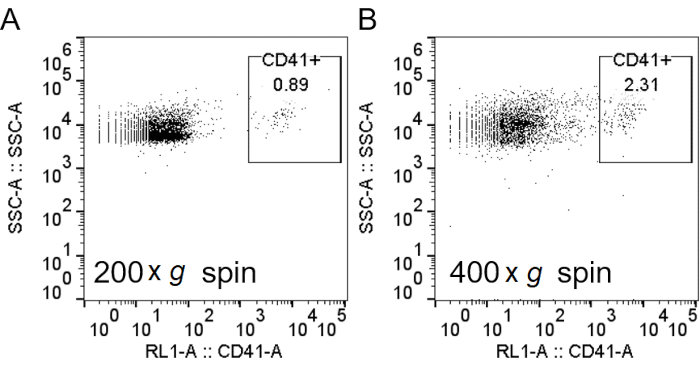
Rysunek 2: Wirowanie przy niższych prędkościach po lizie RBC zmniejszyło zanieczyszczenie płytkami krwi. Po lizie RBC za pomocą H2O, komórki wirowano przy 200 × g (A) lub 400 × g (B). Neutrofile poddano barwieniu, a następnie przeprowadzono analizę cytometrią przepływową, zgodnie z opisem na Rysunku 3, z dodatkiem przeciwciała anty-CD41 w celu znakowania płytek krwi. Skróty: RBC = czerwona krwinka; CD41 = cluster of differentiation 41; SSC-A = side scatter-Area (pole rozproszenia bocznego). Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tego rysunku.
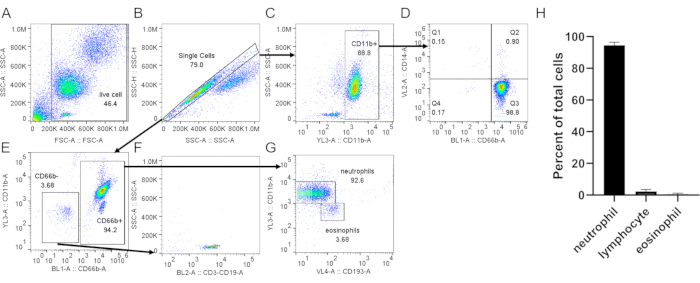
Rycina 3: Ocena neutrofilów izolowanych z warstwy leukocytarnej (buffy coat). Izolowane neutrofile barwiono przeciwciałami anty-CD66b, anty-CD11b, anty-CD14 i anty-CD193 zgodnie ze standardowym protokołem. Pojedyncze komórki (B) wyodrębniono za pomocą bramkowania z całkowitej liczby komórek (A). (C) Komórki CD11b+ wyodrębniono z pojedynczych komórek. (D) Wykres kropkowy przedstawiający neutrofile (CD66b+, CD14 low/-) oraz bardzo niskie zanieczyszczenie monocytami (CD66b-, CD14+, Q1). (E) Wyodrębniono komórki CD66b- oraz CD66b+. (F) Komórki CD66b- były dodatnie dla markerów limfocytarnych (CD3, CD19). (G) Ekspresja CD11b i CD193 w komórkach CD66b+, wykazująca odrębne populacje neutrofilów (CD66b+, CD11b+, CD193-) i eozynofilów (CD66b+, CD11b-, CD193+). W przedstawionym reprezentatywnym wyniku czystość neutrofilów wynosi ~93% przy ~3,7% zanieczyszczeniu limfocytami i ~3,7% eozynofilami. (H) Ilościowe oznaczenie czystości neutrofilów po oczyszczaniu. Dane zebrano z 5 indywidualnych prób i przedstawiono jako średnia ± SD. Skróty: CD = klaster różnicowania (cluster of differentiation); SSC-A = pole boczne rozproszenia (side scatter-Area); FSC-A = pole przedniego rozproszenia (forward scatter-Area). Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
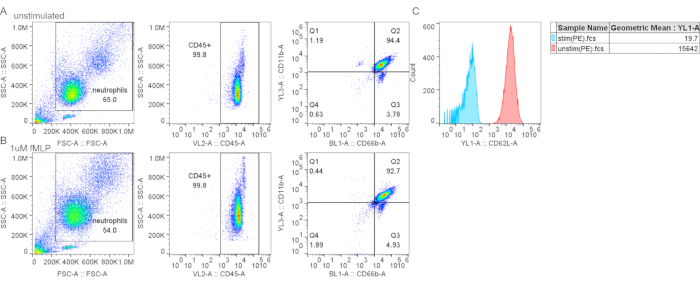
Rysunek 4: Oczyszczanie gradientowe nie spowodowało odrzucania CD62L. (A-B) Neutrofile kontrolne (A) lub stymulowane fMLP (B) (1 mM fMLP przez 15 min w 37 °C) barwiono przeciwciałami przeciwko markerom neutrofili oraz CD62L. (C) Średnia intensywność fluorescencji dla CD62L jest obniżona w komórkach traktowanych fMLP, co wskazuje na odrzucanie CD62L i aktywację neutrofili. Skróty: CD26L = L-selektyna; fMLP = N-formylmetionylu-leucylo-fenyloalanina; SSC-A = side scatter-Area; FSC-A = forward scatter-Area; PE = phycoerythrin. Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
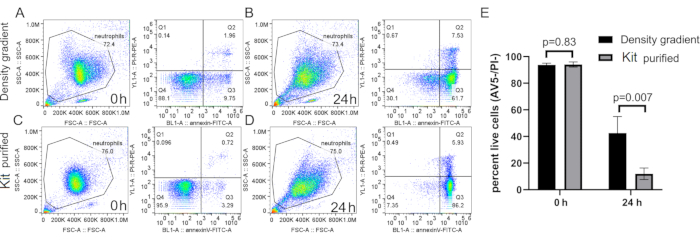
Rycina 5: Spontaniczna śmierć neutrofili oczyszczonych za pomocą gradientu gęstości lub zestawu do izolacji neutrofili. Neutrofile oczyszczono za pomocą gradientu gęstości (A i B) lub komercyjnych mikrokulek (C i D) i hodowano przez 0 h (A i C) lub 24 h (B i D) w RPMI-10% FCS. Komórki barwiono za pomocą Annexin V i PI w odpowiednich punktach czasowych zgodnie ze standardowym protokołem. (E) Ilościowe oznaczenie spontanicznej śmierci oczyszczonych neutrofili. n=5, średnia ± SD. Skróty: SSC-A = side scatter-Area; FSC-A = forward scatter-Area; PI = jodek propidyny; FCS = płodowa surowica cielęca; FITC = izotiocyjanian fluoresceiny; AV5 = Annexin V. Aby wyświetlić większą wersję tej ryciny, kliknij tutaj.
Dyskusja
Ze względu na krótką długość życia, końcowy stan różnicowania i zawartość litów w neutrofilach, badanie tych komórek zawsze było wyzwaniem. Oprócz wykorzystania modeli mysich lub komórek z kohort pacjentów, linie komórkowe są użytecznymi narzędziami pomagającymi w badaniu biologii neutrofili16. Jednak linie komórkowe podobne do neutrofili nie są w stanie całkowicie powtórzyć wszystkich aspektów biologii neutrofili, co dodatkowo utrudnia badanie tych komórek. Najczęściej stosowanym modelem in vitro jest linia komórkowa HL-60, którą można różnicować w komórki podobne do neutrofili poprzez traktowanie dimetylosulfotlenkiem lub kwasem retinowym17,18. Chociaż komórki te są przydatne w badaniu migracji i wybuchu oddechowego, nie nadają się do badania aktywności mikrobiobójczej neutrofili. Istnieją inne linie komórkowe (PLB-98, NB4) i są one również związane z ich zestawem ograniczeń19.
Kluczowe znaczenie ma walidacja za pomocą pierwotnych obserwacji ludzkich neutrofili dokonanych za pomocą mysich modeli chorób i linii komórkowych. Neutrofile nie mogą być skutecznie kriokonserwowane, dlatego często są świeżo izolowane z krwi pełnej lub kożuchów uzyskanych od dawców i natychmiast przetwarzane. Po wyizolowaniu komórki zaczynają przechodzić złożoną formę spontanicznej śmierci, regulowanej przez utlenianie, kaspazy cytoplazmatyczne i proteazy znajdujące się w granulkach neutrofili20,21. Niewłaściwe metody lub techniki izolacji mogą prowadzić do aktywacji neutrofili, przyspieszając jedynie śmierć komórki. Konieczne jest posiadanie niezawodnej i spójnej metody pozyskiwania czystych i wysokiej jakości neutrofili od dawców.
Opublikowano wiele metod izolacji ludzkich neutrofili10,22. Dzielą się one głównie na dwie kategorie, z pewnymi wspólnymi strategiami. Pierwsza kategoria jest oparta na przeciwciałach, która podlega selekcji pozytywnej lub negatywnej. Selekcja pozytywna oznaczałaby neutrofile bezpośrednio, zapewniając w ten sposób wysoce czystą populację komórek, chociaż prowadzi również do szybkiej aktywacji komórek, śmierci komórek, a także niepożądanego znakowania neutrofili23. Selekcja negatywna, choć pozostawiła komórki nieznakowane i dała bardzo czystą populację, przyspieszyła śmierć neutrofili, chociaż dokładny mechanizm jest nieznany (ryc. 5). Należy dokładniej zbadać, czy ekspresja genów lub białek jest również zmieniona po selekcji pozytywnej lub negatywnej. Co więcej, ze względu na ilość przeciwciał potrzebną do zubożenia innych typów komórek, metody te nie mogą wytwarzać dużych ilości neutrofili. Jednak testy oparte na przeciwciałach mogą być nadal stosowane do krótkoterminowych hodowli i eksperymentów na mniejszą skalę i są metodami z wyboru w eksperymentach wymagających bardzo wysokiej czystości komórek, takich jak badania ekspresji genów i białek.
Drugi rodzaj metody izolacji jest oparty na gradiencie i gęstości. Zwykle obejmuje Percoll, Ficoll-Paque lub inne składniki polisacharydu / poliwinylopirolidonu i wykorzystuje siłę wirowania do oddzielania różnych typów komórek krwi w zależności od gęstości komórek. Metody te są często uzupełniane sedymentacją czerwonych krwinek przez dekstran. Metody te mogą obsługiwać większe skale materiału wyjściowego i mogą również osiągnąć wysoką czystość. Jednym z zastrzeżeń izolacji opartej na gęstości jest nieefektywne oddzielanie innych, znacznie mniej licznych granulocytów (głównie eozynofili) od neutrofili, a zatem jest to główne ograniczenie przedstawionego protokołu, ponieważ nawet obecność zanieczyszczenia małymi komórkami może wpływać na odpowiedź neutrofili24.
Przedstawiono tutaj podsumowaną metodę opartą na izolacji gradientowej, udoskonalającą poprzednie metody10,22. Wykorzystujemy obecne zaniżanie swoistości neutrofili, aby niezawodnie wyizolować czyste ludzkie neutrofile z ograniczoną ilością resztkowych płytek krwi i erytrocytów, zapobiegając aktywacji neutrofili i przyspieszonej śmierci. Najważniejszym krokiem jest nakładanie warstw gradientu, które znacznie skuteczniej uzyskuje się poprzez dodanie medium gradientu gęstości pod krwią w celu uzyskania ostrej granicy. Szybkie badanie pierścienia PBMC i gradientu po odwirowaniu może ujawnić możliwe zanieczyszczenie, aktywację i niską wydajność. Podczas pracy z błoną leukaferezy lub kożuchem rozcieńczanie krwi jest ważne, ponieważ nadmierna gęstość komórek doprowadziłaby do agregacji komórek, co prowadziłoby do zanieczyszczeń i aktywacji komórek.
Protokół ten powinien zostać zakończony w ciągu 2 godzin, aby zapewnić świeżość komórek, a etapy obejmujące podłoże gradientu gęstości, dekstran i lizę należy wykonać natychmiast, ponieważ narażenie na te roztwory może zmienić neutrofile. Przy tym protokole oczekiwana wydajność neutrofili wynosi co najmniej ~10 milionów/10 ml krwi pełnej i co najmniej ~60 milionów/10 ml kożucha. Ocena jakości izolacji powinna być przeprowadzona w następujący sposób: aktywowane neutrofile powinny być mniejsze niż 10%, zanieczyszczenie limfocytami niższe niż 5%, minimalna eozynofilia (to samo rozproszenie boczne, ale mniejsza populacja rozproszenia do przodu), a żywotność komórek powinna wynosić ponad 90%. Niższa czystość może wynikać z niewłaściwego nakładania warstw lub przechowywania pożywki o gradiencie gęstości lub z powodu jakości i świeżości wyjściowego produktu krwiopochodnego.
Oświadczenia
Autorzy deklarują, że badania zostały przeprowadzone przy braku konfliktu interesów.
Podziękowania
Ten projekt był wspierany przez P01HL095489. A.Y.H był wspierany przez T32HL066987.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 3% kwas octowy z technologiami komórek macierzystych błękitu metylenowego | #07060 | ||
| Analizator FACS Attune NxT | invitrogen | A24858 | |
| Cd11b-PE | biolegend | 301305 | |
| CD14-BV421 | biolegend | 367144 | |
| CD193-BV605 | biolegend | 310716 | |
| CD19-PerCP | biolegend | ||
| Legenda biologiczna | CD3-PerCP | 300326 | |
| Legenda biologiczna CD41-APC | 303710 | ||
| Legenda biologiczna | CD45-APC | 103111 | |
| 304802 305103 | biolegend | CD66B-PE | |
| CD66b-FITC | |||
| Eppendorf | 5810R | ||
| Dextran | Fisher | BP1580 | |
| Płodowa surowica bydlęca (FBS) | R& Zalecana | jest inaktywacja FBS S11150H uzupełnieniem | |
| FITC Annexin V Zestaw do wykrywania apoptozy I | BD | 556547 | |
| Hanks zrównoważony roztwór soli (-CaCl2), (-MgCl2) (-MgSO4) | Gibco | 14175-095 | Zaleca się HBSS bez Ca2+/Mg2+ jak wykazano, prowadzą one do aktywacji neutrohpilu |
| Technologie komórek macierzystych | Lymphoprep | 07801 | pożywka o gradiencie gęstości |
| MACSxpress Zestaw do izolacji neutrofili krwi pełnej, ludzki | Miltenyi | 130-104-434 | |
| RPMI-1640 | Gibco | 11875093 | |
| Chlorek | sodu sigma | 71376 | |
| Roztwór błękitu trypanowego, 0,4% | Thermofisher | 15250061 | |
| woda ultraczysta | KD medyczna | RGF-3410 |
Bibliografia
- Rosales, C. Neutrophil: A cell with many roles in inflammation or several cell types. Frontiers in Physiology. 9, 113(2018).
- Amulic, B., Cazalet, C., Hayes, G. L., Metzler, K. D., Zychlinsky, A. Neutrophil function: from mechanisms to disease. Annual Review of Immunology. 30, 459-489 (2012).
- Stoller, J. K. Murray & Nadel's textbook of respiratory medicine, 6th edition. Annals of the American Thoracic Society. 12 (8), 1257-1258 (2015).
- Dancey, J. T., Deubelbeiss, K. A., Harker, L. A., Finch, C. A. Neutrophil kinetics in man. Journal of Clinical Investigation. 58 (3), 705-715 (1976).
- Manz, M. G., Boettcher, S. Emergency granulopoiesis. Nature Reviews. Immunology. 14 (5), 302-314 (2014).
- Summers, C., et al. Neutrophil kinetics in health and disease. Trends in Immunology. 31 (8), 318-324 (2010).
- Pedruzzi, E., Fay, M., Elbim, C., Gaudry, M., Gougerot-Pocidalo, M. A. Differentiation of PLB-985 myeloid cells into mature neutrophils, shown by degranulation of terminally differentiated compartments in response to N-formyl peptide and priming of superoxide anion production by granulocyte-macrophage colony-stimulating factor. British Journal of Haematology. 117 (3), 719-726 (2002).
- Tucker, K. A., Lilly, M. B., Heck, L., Rado, T. A. Characterization of a new human-diploid myeloid-leukemia cell-line (Plb-985) with granulocytic and monocytic differentiating capacity. Blood. 70 (2), 372-378 (1987).
- Hsu, A. Y., et al. Inducible overexpression of zebrafish microRNA-722 suppresses chemotaxis of human neutrophil like cells. Molecular Immunology. 112, 206-214 (2019).
- Kremserova, S., Nauseef, W. M. Isolation of human neutrophils from venous blood. Methods in Molecular Biology. 2087, 33-42 (2020).
- Quach, A., Ferrante, A. The application of dextran sedimentation as an initial step in neutrophil purification promotes their stimulation, due to the presence of monocytes. Journal of Immunological Research. 2017, 1254792(2017).
- Thorson, L. M., Turkalj, A., Hung, J. C. In vitro evaluation of neutrophil viability after exposure to a hypotonic medium. Nuclear Medicine Communications. 16 (7), 615-620 (1995).
- Dhurat, R., Sukesh, M. Principles and methods of preparation of platelet-rich plasma: a review and author's perspective. Journal of Cutaneous and Aesthetetic Surgery. 7 (4), 189-197 (2014).
- Etulain, J., et al. An optimised protocol for platelet-rich plasma preparation to improve its angiogenic and regenerative properties. Scientific Reports. 8 (1), 1513(2018).
- Hannah, S., et al. Constitutive neutrophil apoptosis in culture is modulated by cell density independently of beta2 integrin-mediated adhesion. FEBS Letters. 421 (2), 141-146 (1998).
- Hsu, A. Y., et al. Phenotypical microRNA screen reveals a noncanonical role of CDK2 in regulating neutrophil migration. Proceedings of the National Acadermy of Sciences of the United States of America. 116 (37), 18561-18570 (2019).
- Martin, S. J., Bradley, J. G., Cotter, T. G. HL-60 cells induced to differentiate towards neutrophils subsequently die via apoptosis. Clinical and Experimental Immunology. 79 (3), 448-453 (1990).
- Hauert, A. B., Martinelli, S., Marone, C., Niggli, V. Differentiated HL-60 cells are a valid model system for the analysis of human neutrophil migration and chemotaxis. International Journal of Biochemistry and Cell Biology. 34 (7), 838-854 (2002).
- Blanter, M., Gouwy, M., Struyf, S. Studying neutrophil function in vitro: Cell models and environmental factors. Journal of Inflammation Research. 14, 141-162 (2021).
- Kambara, H., et al. Gasdermin D exerts anti-inflammatory effects by promoting neutrophil death. Cell Reports. 22 (11), 2924-2936 (2018).
- Loison, F., et al. Proteinase 3-dependent caspase-3 cleavage modulates neutrophil death and inflammation. Journal of Clinical Investigation. 124 (10), 4445-4458 (2014).
- Siemsen, D. W., et al. Neutrophil isolation from nonhuman species. Methods in Molecular Biology. 1124, 19-37 (2014).
- Hasenberg, M., et al. Rapid immunomagnetic negative enrichment of neutrophil granulocytes from murine bone marrow for functional studies in vitro and in vivo. PLoS One. 6 (2), 17314(2011).
- Calzetti, F., Tamassia, N., Arruda-Silva, F., Gasperini, S., Cassatella, M. A. The importance of being "pure" neutrophils. Journal of Allergy and Clinical Immunology. 139 (1), 352-355 (2017).
Przedruki i uprawnienia
