Ta publikacja opisuje projekt laboratoryjnych fotobioreaktorów (PBR) z konfigurowalnymi reżimami oświetlenia. Wzrost sinic lub mikroalg, wykorzystujących wodorowęglan jako źródło węgla, jest stale monitorowany poprzez pomiar objętościowej produkcji tlenu. Te PBR ułatwiają szybkie, powtarzalne porównania wzrostu laboratoryjnego przy niewielkiej interwencji użytkownika podczas eksperymentów.
Artykuł metodologiczny
Obsługa fotobioreaktorów laboratoryjnych z pomiarami wzrostu online i konfigurowalnymi reżimami oświetlenia
W tym artykule
Podsumowanie
Streszczenie
Laboratoryjne badanie mikroalg może być eksperymentalnie trudne. Oprócz wymagań hodowlanych mikroorganizmów niefotosyntetycznych, fototrofy wymagają również oświetlenia. Rutynowo naukowcy starają się zapewnić niestandardowe materiały eksploatacyjne światła, tj. zmieniać natężenie światła i czas, w którym jest ono dostarczane. Taka elastyczność jest trudna w przypadku standardowych lamp stołowych. Zazwyczaj badania nad uprawą wymagają również porównań wzrostu między zabiegami eksperymentalnymi. Często wzrost jest oceniany przez dłuższy czas, np. wiele razy dziennie w ciągu tygodniowego badania. Pomiary ręczne mogą być czasochłonne i nie pozwalają na uzyskanie rozdzielczości danych. Dlatego fotobioreaktory (PBR) z automatycznym monitorowaniem wzrostu i konfigurowalnym zasilaniem światłem są przydatne do replikowanych eksperymentów z wieloma zabiegami. Obecne prace prezentują projektowanie, budowę i eksploatację laboratoryjnych PBR-ów. Materiały są łatwe do pozyskania i stosunkowo niedrogie. Projekt można było powielić przy umiarkowanych umiejętnościach. Każda konstrukcja ma powierzchnię ~40cm2 i znajdują się w niej trzy szklane butelki o pojemności 1 litra do potrójnej replikacji. Butelki spoczywają na platformach zawierających mieszadła magnetyczne i są ułożone pionowo w rurze z polichlorku winylu (PVC) o wysokości 1 m i średnicy 15 cm. Wnętrze rury wyłożone jest diodami elektroluminescencyjnymi (LED). Te diody LED wytwarzają ciągłe natężenie światła od 0 do 2400 μmol fotonów m-2 s-1 promieniowania aktywnego fotosyntetycznie (PAR). Użytkownicy projektują niestandardowy program oświetleniowy. Natężenie światła można regulować co sekundę lub utrzymywać na stałym poziomie przez dłuższy czas. Tlen wytwarzany w procesie fotosyntezy wydostaje się z każdej butelki za pomocą jednokierunkowego czujnika objętościowego gazu. Oprogramowanie służy do rejestrowania danych z czujników gazu. Ilość wytwarzanego tlenu może być skorelowana ze wzrostem biomasy. Jeśli wymagane są próbki biomasy, do ekstrakcji kultury można użyć strzykawki. Metoda jest odpowiednia dla mikroalg uprawianych z wodorowęglanem jako źródłem węgla. Te PBR są cenne dla laboratorium, które wymaga replikowanych eksperymentów, elastyczności reżimu świetlnego i ciągłych danych o wzroście w wysokiej rozdzielczości.
Wprowadzenie
Mikroalgi i cyjanobakterie, dla uproszczenia nazywane zbiorczo mikroalgami, są promowane ze względu na ich potencjał w zrównoważonej biotechnologii. Są atrakcyjnymi kandydatami ze względu na szybki wzrost, możliwość uprawy na gruntach nieornych oraz wykorzystanie światła słonecznego do napędzania konwersji dwutlenku węgla do biomasy1,2,3. Biomasa mikroglonów może być przekształcana w produkty takie jak bioenergia w postaci ropy naftowej lub gazu, barwniki spożywcze i suplementy diety oraz materiały takie jak biopolimery1,4,5,6,7. Ponadto mogą być używane do oczyszczania ścieków lub rekultywacji zbiorników wodnych poprzez spożywanie nadmiaru składników odżywczych8,9. Biorąc to pod uwagę, badania nad mikroalgami są szeroko rozpowszechnione i ugruntowane. Dziedzina ta rozwija się, ponieważ społeczeństwo ponownie rozważa intensywność emisji dwutlenku węgla i zrównoważenie środowiskowe obecnych podejść do produkcji i wytwarzania energii.
Trzy podstawowe wymagania laboratoryjnych badań nad mikroalgami to naczynie hodowlane, źródło światła i metoda ilościowego określania wzrostu. Termin fotobioreaktor (PBR) opisuje konfigurację, w której naczynia hodowlane są oświetlane10. Zazwyczaj badania mikroalg mają na celu porównanie wzrostu między dwoma lub więcej zabiegami, np. różnymi podłożami wzrostowymi, reżimami świetlnymi lub gatunkami11,12,13. Dla istotności statystycznej każdy warunek, np. leczenie i kontrola, powinien być powtórzony. Jeśli kontrola i leczenie są prowadzone jednocześnie, oznacza to, że wiele PBR musi być monitorowanych i pobieranych próbek przez cały czas trwania eksperymentu. Wyzwanie związane z obsługą wielu PBR jest dwojakie. Po pierwsze, zapewnienie jednolitego natężenia światła do każdego PBR jest niezbędne dla odtwarzalności, ale może być trudne. Ilość światła padającego na powierzchnię statku zależy od jego odległości od źródła światła, zacienienia od sąsiednich statków oraz fluktuacji światła tła14. Po drugie, należy wybrać metodę dokładnego ilościowego określenia wzrostu.
Wzrost jest zwykle mierzony liczbą komórek, gęstością optyczną (OD), zawartością chlorofilu A, gęstością suchej masy (DW) i gęstością suchej masy bez popiołu (AFDW)15. Zliczanie komórek, zawartość chlorofilu A i metody grawimetryczne to procesy ręczne, które generują dyskretne punkty danych. OD może być mierzony w sposób ciągły i nieinwazyjny za pomocą spektrofotometru, pod warunkiem, że jest dobrze skalibrowany z inną metodą, taką jak gęstość AFDW15. Jednak pomiary OD i zawartość chlorofilu A mogą być niewiarygodne, ponieważ wyniki różnią się w zależności od różnych warunków hodowli, np. między gatunkami i przez cały cykl wzrostu15,16. W przypadku chlorofilu A metoda ekstrakcji może również wpływać na wydajność pigmentu17. Zawartość chlorofilu A jest szczególnie przydatna w śledzeniu wzrostu mikroglonów w zbiorowiskach drobnoustrojów, które zawierają również organizmy niefotosyntetyzujące17,18. Wybierając metodę określania wzrostu, należy wziąć pod uwagę morfologię zawiesiny. Gdy organizmy zbijają się w bryły i nie są dobrze wymieszane, liczba OD i komórek nie jest możliwa15. Jedna metoda nie nadaje się do wszystkich zastosowań eksperymentalnych – badacze muszą zdecydować, które metody są praktyczne i istotne dla ich celów eksperymentalnych.
AFDW to niezawodna metoda, która umożliwia porównanie wzrostu między różnymi warunkami hodowli, w szczególności między gatunkami i pożywkami hodowlanymi15,19,20. Aby obliczyć AFDW, próbka kultury mikroglonów jest najpierw zagęszczana przez filtrację lub odwirowanie, a następnie suszona. Na tym etapie można określić DW. Zazwyczaj próbka DW zawiera co najmniej 8–10% popiołu i materiału nieorganicznego, takiego jak sole i cząstki stałe15. DW śledzi trendy wzrostu, ale może być zniekształcony, jeśli udział substancji nieorganicznych jest różny. Aby określić gęstość AFDW, sucha biomasa jest spalana w wysokiej temperaturze; Spowoduje to odparowanie części organicznej lub użytecznej, pozostawiając popiół (nieorganiczne) w tyle19. Aby obliczyć AFDW, masę frakcji popiołu odejmuje się od masy frakcji DW. Zazwyczaj w zawiesinach mikroglonów AFDW waha się od 0,1–3 g/L12,21,22. Małe objętości rozcieńczonych zawiesin dają niewielką ilość suchej biomasy, <10 mg. Po spaleniu popiół może ważyć tylko 1 mg. W związku z tym, w zależności od gęstości hodowli, metoda ta wymaga objętości od 5 do 100 ml i wag analitycznych o dokładności do 0,1 mg12,15,19,22. Laboratoryjne PBR są zazwyczaj małe, maksymalnie kilka litrów, stąd każda próbka płynu wyczerpuje objętość hodowli. Ponadto metoda AFDW jest ręczna i trwa 2-3 dni. W przypadku replikowanych i powtarzalnych eksperymentów preferowany jest zautomatyzowany i ciągły proces.
Dla mikroalg, które wykorzystują wodorowęglan jako źródło węgla, dwa dodatkowe wskaźniki wzrostu mogą być mierzone w sposób ciągły. Fotosynteza zużywa wodorowęglany i wytwarza tlen. Spożycie wodorowęglanów podnosi średnie pH23. Zanurzona sonda pH może zmierzyć tę zmianę. Produkcja tlenu fotosyntetycznego zwiększa stężenie tlenu rozpuszczonego (DO) w pożywce, aż do nasycenia pożywki. Poza nasyceniem tlen istnieje w postaci pęcherzyków. Produkcja tlenu jest mierzona za pomocą wielu różnych technik: sondy mierzą stężenie tlenu rozpuszczonego, urządzenia manometryczne oceniają ciśnienie w przestrzeni nad powierzchnią, chromatografia gazowa mierzy skład przestrzeni nad powierzchnią, a czujniki objętościowe rejestrują wypływ gazu24,25,26,27. Gdy tlen jest używany jako wskaźnik wzrostu, naczynia hodowlane muszą być całkowicie uszczelnione lub umożliwiać tylko odpływ gazu. W przypadku pomiarów pH i tlenu węgiel musi być dostarczany w postaci wodorowęglanu, a nie przez rozpryskiwanieCO2. Pylenie CO2 obniża pH medium 23 i jako gaz może zakłócać pomiary tlenu. Jedną z zalet pH i tlenu w porównaniu z gęstością optyczną jest to, że metoda nie jest zagrożona, jeśli mikroalgi tworzą grudki. Chociaż pośrednie, zarówno pH, jak i tlen są skuteczne w porównywaniu wzrostu między zabiegami.
PBR-y używane obecnie różnią się złożonością. Laboratoria mogą korzystać z prostych kolb stacjonarnych, niestandardowych prototypów lub produktów dostępnych na rynku. Dla grup badawczych dążących do modernizacji z kolb barierą mogą być koszty komercyjnych PBR lub umiejętności technicznych i produkcji części wymaganych do zbudowania wielu prototypów. Niniejszy manuskrypt ma na celu opisanie krok po kroku projektowania, budowy i działania laboratoryjnych PBR, które wypełniają tę lukę. Te PBR mają konfigurowalny reżim świetlny i stale monitorują wzrost, rejestrując wolumetryczną produkcję tlenu. Ten projekt zawiera trzy naczynia hodowlane do potrójnej replikacji i może być zbudowany przy umiarkowanych umiejętnościach i łatwo dostępnych materiałach. PBR jest cennym dodatkiem do laboratorium, które chce rozszerzyć swoje możliwości w zakresie badań nad mikroalgami bez inwestowania w bardzo techniczne lub drogie produkty. Decydując się na nabycie lub zbudowanie PBR, badacze muszą wziąć pod uwagę przydatność projektu do swoich warunków hodowlanych, sytuacji finansowej i pytań badawczych.
Protokół
1. Budowa stoiska PBR
- Za pomocą ręcznej piły do metalu wytnij pięć odcinków 380 mm i dwie długości 200 mm ze stali kątowej z rowkiem. Przymocuj ze sobą i duże wsporniki narożne, aby stworzyć podstawę stojaka (Rysunek 1A). Przyklej na zaślepkach zabezpieczających.
- Połącz dwa nieoszlifowane (1220 mm) pionowe odcinki kątowej stali szczelinowej z podstawą. Zabezpiecz i metalowymi klinami narożnymi (Rysunek 1B). Przyklej na zaślepkach zabezpieczających.
- Wytnij cztery płaskie odcinki stali o średnicy 65 mm. Przykręć je pod kątem 90° do pionowych podpór - przymocuj po dwa do każdego wspornika, jeden 130 mm w górę od podstawy (Rysunek 1C) i jeden 60 mm w dół od góry.
- Przymocuj pionowe podpory w poprzek ich górnej części za pomocą poziomej długości 140 mm płaskiej stalowej szczeliny (belki poprzecznej) przykręconej z tyłu ramy (Rysunek 2A).
2. Budowa komory świetlnej
- Przyciąć białą rurę z polichlorku winylu (PVC) o średnicy 153 mm na długość 1070 mm. Przeciąć rurę wzdłuż na pół za pomocą piły taśmowej. Przeszlifuj wszystkie krawędzie.
- Równomiernie rozmieść i wyśrodkuj cztery aluminiowe kanały radiatora pionowo wzdłuż wnętrza rury. Nie mocuj kanałów w odległości mniejszej niż 20 mm od krawędzi cięcia rury. Za pomocą małych zabezpiecz kanały na miejscu na górze i na dole (Rysunek 2B).
- Przykręć połowę rury do stojaka za pomocą poziomych wsporników ukształtowanych w kroku 1.3.
- Połóż reaktor i ponownie połącz połówki rur, sklejając je ze sobą. Wyśrodkuj zawias fortepianu wzdłuż jednej linii cięcia. Prześledź otwory zawiasów i odpowiednio wywierć rurę. Użyj nitownicy i nitów średniej długości, aby przymocować zawias do rury.
- Użyj małej linki bungee (patrz Tabela materiałów), aby przytrzymać rurę zamkniętą (Rysunek 1C).
- Skonsultuj się z elektrykiem w celu podłączenia świateł LED i zainstalowania następujących czterech elementów: sterownika LED, dekodera multipleksu cyfrowego (DMX), sterownika oświetlenia DMX i skrzynki rozdzielczej (patrz tabela materiałów). Zamocuj wszystkie elementy z tyłu PBR zgodnie z Rysunek 2A.
3. Budowa platform do butelek
- Wytnij kształty platform (Rysunek 3A) z twardego tworzywa sztucznego, np. polietylenu o wysokiej gęstości (HDPE) (patrz tabela materiałów), za pomocą frezowania sterowanego numerycznie (CNC). Zrób po trzy sztuki z każdego kształtu.
UWAGA: Zaleca się przycięcie zapasowej warstwy górnej i dolnej. - Sklej ze sobą dolną i górną warstwę. Zaznacz i wywierć pięć małych otworów o średnicy 6 mm w obu kształtach (Rysunek 3A). Używając większego wiertła, ostrożnie rozszerz powierzchnię tych otworów, tak aby mógł być zagłębiony (Rysunek 3B).
- Dla każdej z trzech platform przykręć dwa małe wsporniki narożne do tylnej połowy rury.
UWAGA: Odległość między górną częścią szelek powinna wynosić 350 mm. - Wyśrodkuj każdą dolną warstwę na jej stężeniach. Zaznacz położenie wywierconych otworów spod stężeń. Wywierć dwa otwory o średnicy 6 mm. Za pomocą większego wiertła ostrożnie rozszerz powierzchnię otworów, aby można było wpuścić.
- Przykręć dolne warstwy do ich stężeń (Rysunek 3B–C).
- Wytnij piętnaście kawałków sztywnych rurek o długości 12 mm i średnicy zewnętrznej (OD) 6.35 mm. Umieść pięć kawałków sztywnej rurki między każdą górną i dolną warstwą. Przymocuj warstwy i rurki razem za pomocą długich, wąskich zgodnie z Rysunek 3B–D.
- Wywierć duży otwór w rurze PVC za każdą platformą. Włóż każde mikromieszadło magnetyczne do swojej platformy. Przeciągnij elektryczny każdego mieszadła przez te nowo wycięte otwory (Rysunek 3C–E). Podłącz każde mieszadło do odpowiedniej jednostki sterującej, a także do gniazdka elektrycznego.
- Umieść butelkę o pojemności 1 l na każdej platformie. Dodaj oczkowe w tylnej rurze na poziomie szyjki butelki. Owiń małą linkę bungee wokół każdej szyjki butelki, aby zwiększyć stabilność (Rysunek 4A).
UWAGA: W całym protokole pomocne będą platformy kodowania kolorami, butelki, mieszadła magnetyczne oraz wszystkie powiązane i czujniki.
4. Budowa portów do pobierania próbek cieczy (opcjonalnie)
- Wytnij trzy odcinki sztywnych rurek o średnicy zewnętrznej 6,35 mm. Za pomocą wiertła 5 mm wywierć otwory w każdym gumowym korku. Przepchnij sztywne odcinki rurek przez korek.
- Wytnij trzy odcinki sztywnych rurek o średnicy zewnętrznej 3,18 mm o długości 60 mm. Połącz je za pomocą prostego reduktora z wystającą rurką na spodzie każdego korka.
- Włóż jednokierunkowy zawór odcinający (np. port 1 = żeński Luer, port 2 = męski slip Luer) w wystającej rurce na każdej powierzchni korka (Rysunek 4A).
- Wytnij trzy odcinki elastycznej rurki o średnicy zewnętrznej 3,18 mm o średnicy zewnętrznej. Włóż złączki Luer (np. męskie Luer do króćca węża i żeńskie Luer do króćca węża) na obu końcach.
- Podłącz elementy wykonane w kroku 4.4 do zaworów odcinających na powierzchni każdego gumowego korka (Rysunek 4A).
UWAGA: Wiele kombinacji zaworów odcinających i złączek Luer może dać ten sam wynik. Konstrukcja powinna umożliwiać pobieranie płynu lub wprowadzanie go za pomocą strzykawki.
5. Podłączanie wolumetrycznych czujników gazu
- Przygotować czujniki gazu zgodnie z instrukcjami producenta.
UWAGA: Polega to głównie na napełnianiu czujników gazu płynem uszczelniającym (Rysunek 4B). - Aby wykonać przewody gazowe, wytnij trzy elastyczne rurki o średnicy zewnętrznej 3,18 mm o długości 1000 mm.
- Wywierć trzy otwory o średnicy 4 mm w tylnej rurze PVC. Umieść otwory obok zawiasu na wysokości szyjki butelki. Przewlecz przewody gazowe przez te otwory (Rysunek 4A).
- Do końca przewodu gazowego wewnątrz rury PVC dodaj złączkę Luer (np. króciec węża do męskiego Luera) i podłącz jednokierunkowy zawór odcinający (np. port 1 = żeński Luer, port 2 = męski Luer).
UWAGA: Zawór jest wymagany tylko wtedy, gdy zainstalowane są również porty do pobierania próbek cieczy. - Podłącz drugi koniec przewodu gazowego do portu wlotowego czujnika gazu za pomocą prostego reduktora. Zabezpiecz to połączenie opaską zaciskową.
- Podłącz wszystkie czujniki gazu do cyfrowego modułu wejściowego (DIM) za pomocą wtykowych jack, a DIM do pobliskiego komputera.
- Zainstaluj oprogramowanie do akwizycji danych (patrz Spis materiałów) w systemie operacyjnym Windows i podłącz klucz licencyjny. Dodaj pliki kalibracji czujnika do katalogu kalibracji oprogramowania.
6. Programowanie reżimu świetlnego
- Za pomocą tylnego włącznika/wyłącznika włącz PBR i podłącz sterownik oświetlenia DMX do komputera za pomocą micro-USB.
- Pobierz narzędzia Store Upgrade Tools (SUT) i oprogramowanie sterujące diodami LED (patrz tabela materiałów). Zarejestruj sterownik oświetlenia DMX online.
- Otwórz oprogramowanie sterujące diodami LED i wybierz Kliknij tutaj, aby pracować z interfejsem USB-DMX: SUSHI-RB-RJ.
- Na karcie Konfiguracja w polu ScanLibrary wybierz folder Generic (Ogólny) i Single Channel (Pojedynczy kanał). Zmień ustawienia ScanLibrary na uniwersum DMX 1, liczbę urządzeń na 4, a numer indeksu na 1. W prawym górnym rogu zmień pole rozwijane na Widok listy. Na koniec kliknij Łatka (Rysunek Uzupełniający 1).
UWAGA: We wszechświecie DMX jedno pudełko testuje sterowanie każdą taśmą LED, przesuwając przyciski ściemniacza lub wprowadzając wartość liczbową w polu tekstowym. - Wykonaj standardową krzywą, która odnosi cyfrowe ustawienie światła w oprogramowaniu do sterowania oświetleniem z natężeniem światła doświadczanym w środku rurki PVC (Rysunek 5). Zmierz natężenie światła wewnętrznego za pomocą małej sondy sferycznej (patrz Tabela materiałów) zawieszonej pośrodku rury PVC.
- Przejdź do zakładki Edytor. Aby utworzyć niestandardowy program oświetlenia, utwórz nową scenę i rozpocznij dodawanie kroków. Patrz Tabela uzupełniająca 1, aby zapoznać się z przykładowym programem dobowym 16:8 h. Ustaw scenę na loop.
UWAGA: Kroki dzielą sceny na bloki czasu, z których każdy można ustawić na inną intensywność światła. Kroki trwają od 1 s do 43 min. Tutaj najwygodniejsze są 30-minutowe kroki. Do jednego sterownika oświetlenia DMX można załadować wiele scen. - Utwórz dodatkową scenę pomocniczą, która jest natychmiast rozpoznawalna, np. dwie z czterech diod LED włączone.
UWAGA: Sceny można przełączać ręcznie za pomocą przycisku z boku sterownika oświetlenia DMX. Jeśli żądany program oświetlenia rozpocznie się w nocy, nie będzie można odróżnić, czy program oświetlenia już się rozpoczął. Scena pomocnicza służy jako wskaźnik, że sterownik oświetlenia DMX działa poprawnie. - Zapisz sceny i przejdź do zakładki Stand Alone. Zapisz pamięć sterownika oświetlenia DMX i odłącz urządzenie od komputera.
- Podłącz sterownik oświetlenia DMX do źródła zasilania za pomocą micro-USB.
- Przed rozpoczęciem eksperymentu przetestuj program oświetlenia, rejestrując wewnętrzne natężenie światła przez 24 godziny. Jeśli temperatura cieczy jest interesująca, zarejestruj ją jednocześnie za pomocą zanurzonej sondy temperatury (Rysunek 6).
7. Rozpoczęcie eksperymentu
- Sterylizuj media, butelki, mieszadła, gumowe korki, porty do pobierania próbek, gwintowane nakrętki na i rurki.
UWAGA: Wszystkie komponenty użyte w tej konstrukcji można sterylizować w autoklawie, z wyjątkiem zaworów i złączek Luer — istnieją alternatywy, które można sterylizować w autoklawie innych producentów. - Otwórz oprogramowanie do akwizycji danych i wypełnij stronę konfiguracji (rysunek uzupełniający 2). Przypisz pliki kalibracyjne do odpowiednich czujników.
- W obszarze Directory File Name (Nazwa pliku katalogu) wybierz odpowiedni folder z numerem portu DIM. Kliknij Bieżący folder i powtórz dla wszystkich portów.
- Kliknij OK, aby przejść do strony logowania.
- Napełnić butelki do żądanej objętości podłożem uprawowym (tabele uzupełniające 2,3).
UWAGA: Każda z tych butelek pomieści maksymalnie ~1,1 l z małą przestrzenią nad głową (~80 ml, łącznie z przewodem gazowym). - Odwirować kulturę podstawową w trzech zrównoważonych probówkach o pojemności 50 ml przez 15 minut przy 4500 x g, aby uzyskać trzy granulki. Dodaj jedną granulkę do każdej butelki – umyj granulki pipetą serologiczną i świeżą pożywką.
UWAGA: Gęstość hodowli w dniu 0 jest również znana jako początkowe stężenie biomasy (IBC). Do pomiaru IBC w gAFDW. L-1, dodatkową probówkę o pojemności 50 ml można odwirować w kroku 7.6. Powstały w ten sposób osad można następnie wysuszyć i spalić15,19. Krok 7.6 prawdopodobnie będzie wymagał modyfikacji w oparciu o indywidualne cele użytkowników i ich eksperymenty. - Wrzuć mieszadło magnetyczne o wymiarach 25 x 8 mm do każdej butelki.
- Uszczelnij każdy otwór butelki gumowym korkiem i gwintowaną nakrętką z otworem (Rysunek 4A). Jeśli zainstalowane są opcjonalne porty do pobierania próbek, zamknij zawory.
- Zlokalizuj koniec każdego przewodu gazowego wewnątrz rury PVC (wbudowanej w kroku 5.4) i przymocuj igłę do męskiego portu Luer zaworu.
- Podłącz każdą butelkę do czujnika gazu, przekłuwając każdy gumowy korek odpowiednią igłą.
- Uruchom każdy czujnik gazu indywidualnie, zaznaczając pole wyboru po lewej stronie ekranu, klikając Start i wprowadzając nazwę pliku. Kliknij przycisk OK i powtórz tę czynność dla wszystkich czujników (rysunek uzupełniający 3).
UWAGA: Podczas rejestrowania nie wychodź z okna akwizycji danych. Ustaw ustawienia zasilania i uśpienia komputera tak, aby nigdy nie zawierały aktualizacji komputera i odłóż je na czas trwania eksperymentu. - Włącz PBR i upewnij się, że sterownik oświetlenia DMX jest podłączony do zasilacza. Pierwsza zaprogramowana scena rozpocznie się automatycznie. Zapoznaj się z krokiem 6.7, aby potwierdzić, że sterownik oświetlenia DMX działa prawidłowo.
8. Pobieranie próbek z butelki (opcjonalnie)
- Przygotować dodatkowe 500 ml świeżej pożywki przed rozpoczęciem doświadczenia (Tabela Uzupełniająca 2).
UWAGA: Jeśli 24-godzinny program świetlny z cyklem dobowym 16:8 h został rozpoczęty o godzinie 9 rano, to czasy pobierania próbek przed zmierzchem i świtem przypadałyby na godziny 8 rano i 16 po południu (Tabela uzupełniająca 1). Tutaj świt i zmierzch odnoszą się do 30-minutowych kroków, które zmieniają światła z WŁĄCZONEGO na WYŁĄCZONE i odwrotnie. - Zamknij zawór na przewodzie gazowym.
- Podłączyć strzykawkę (10 ml) do zaworu portu pobierania próbek (Rysunek 4A).
- Otworzyć zawór portu pobierania próbek i pobrać 8 ml kultury.
UWAGA: Zalecane jest od 5 do 10 ml. Usuwanie cieczy wytwarza podciśnienie w przestrzeni nad roztworem, co utrudnia ekstrakcję objętości >10 ml. - Zamknąć zawór portu pobierania próbek i odłączyć strzykawkę.
- Podłączyć strzykawkę zawierającą 8 ml świeżej pożywki (z kroku 8.1) do zaworu portu pobierania próbek.
- Otworzyć zawór portu pobierania próbek i wstrzyknąć świeżą pożywkę.
UWAGA: Zastąpienie objętości pobranej kultury świeżą pożywką służy utrzymaniu równej objętości i ciśnienia w przestrzeni nad próbką oraz przepłukaniu przewodu pobierania próbek. - Zamknąć zawór portu pobierania próbek przed odłączeniem strzykawki.
- Powtórz kroki 8.2–8.8 przy każdym czasie pobierania próbek.
9. Zakończenie eksperymentu
- Zaznacz wszystkie aktywne pola wyboru portu w oknie akwizycji danych i kliknij Zatrzymaj.
- Aby wyeksportować dane, wybierz opcję Plik i Dane offline. Wybierz wszystkie odpowiednie pliki dziennika. Eksportuj dane do arkusza kalkulacyjnego i zapisz.
- Dla każdej butelki przelicz całkowitą objętość tlenu mierzoną w ml na mole, korzystając z prawa gazu doskonałego. Przewiduj masę wyhodowanej biomasy (gAFDW), jeśli na każdy mol wyprodukowanej biomasy przypada 1,05 mola O2 . Przyjmij, że masa molowa biomasy wynosi 24,6 g mol-1.
- Ręcznie selekcjonuj dane natężenia przepływu. Użyj jednostek ml/h i 3-punktowej średniej kroczącej.
Wyniki
W tym przypadku przepływ tlenu jest miarą tempa fotosyntezy kultury. Wyższe tempo fotosyntezy, a tym samym asymilacji węgla, przekłada się na szybszy wzrost. Oznacza to, że użytkownik może porównywać przepływy tlenu pomiędzy różnymi wariantami doświadczalnymi i dniami operacyjnymi jako wskaźnik wzrostu. W skrócie, czujnik gazu działa poprzez wychwytywanie i uwalnianie pęcherzyków gazu w dwukomorowej komórce pomiarowej (Rysunek 4B). Pęcherzyki gazu z wlotu u podstawy czujnika przemieszczają się w górę przez ciecz wypełniającą. Pęcherzyki gromadzą się w jednej z komór komórki pomiarowej do objętości ~3,2 mL. Po osiągnięciu tego progu komórka pomiarowa przechyla się. Powoduje to uwolnienie gazu i reset systemu. Każde przechylenie jest rejestrowane przez oprogramowanie do akwizycji danych.
W danych przykładowych porównano tempo wzrostu w trzech wariantach z różnymi natężeniami światła w ciągu dnia oraz początkowymi stężeniami biomasy (IBC). Warianty te zostały wybrane arbitralnie w celach demonstracyjnych. Były to: (A) 300 µmolphotons m-2 s-1 i 0,03 gAFDW L-1, (B) 600 µmolphotons m-2 s-1 i 0,13 gAFDW L-1 oraz (C) 600 µmolphotons m-2 s-1 i 0,40 gAFDW L-1. Natężenia promieniowania te zmierzono za pomocą sondy sferycznej w centrum rury PVC przed umieszczeniem butelek na platformach. Głębokość i gęstość kultury wpływają na tłumienie światła, w związku z czym rzeczywiste natężenie światła docierającego do mikroalg może różnić się od wartości raportowanych. Każdy wariant wykonano w trzech powtórzeniach — w obrębie jednego fotobioreaktora (PBR) zawierającego trzy butelki.
W tym przypadku pomyślny eksperyment charakteryzował się ściśle powielonymi dobowymi wzorcami produkcji gazu (Rysunek 7A–C). W godzinach oświetlenia (dzień) produkcja gazu stale wzrastała, natomiast w godzinach bez oświetlenia (noc) produkcja gazu ustawała (Rysunek 7A–C). Mikroalgi produkują dwa gazy: tlen w procesie fotosyntezy oraz dwutlenek węgla w procesie oddychania28. Fotosynteza ogranicza się do godzin oświetlenia, podczas gdy oddychanie zachodzi w sposób ciągły, lecz jest najbardziej aktywne w nocy28. Fotosynteza buduje, natomiast oddychanie katabolizuje biomasę28. Początkowo skład gazu w przestrzeni nad cieczą jest identyczny ze składem atmosfery. Przy każdym odwróceniu komory pomiarowej O2 wypiera gaz atmosferyczny. W związku z tym odczyty czujnika gazu przypisano do produkcji O2, nawet jeśli uwalniany gaz nie był czystym O2. Minimalne ciśnienie wlotowe gazu dla czujnika jest niezwykle niskie, wynosząc 8–9 mbar, co sprawia, że ciśnienie w przestrzeni nad cieczą w butelce jest tylko nieznacznie wyższe od atmosferycznego (1,01 bar na poziomie morza). Zatem odczyty czujnika gazu rozpoczynają się wkrótce po opuszczeniu ośrodka przez pęcherzyki O2.
CO2 uwalniany podczas oddychania nie wpływa na odczyty czujnika gazu z dwóch powodów. Po pierwsze, w środowisku zasadowym CO2 reaguje, tworząc wodorowęglany, co obniża pH (Rysunek 8). Po drugie, jeśli CO2 ucieknie, ciecz wypełniająca czujnik gazu, Silox, rozpuszcza pęcherzyki CO2 przed dotarciem ich do komory pomiarowej, uwalniając CO2 na powierzchni cieczy29. Potwierdza to brak nocnych odczytów z czujnika gazu. Te, które wystąpiły, zostały zarejestrowane krótko po wyłączeniu światła, co wskazuje, że odczyty reprezentowały resztkowe uwalnianie tlenu z okresu dziennego (Rysunek 7).
W układzie doświadczalnym (przy zastosowaniu lokalnych danych dotyczących temperatury i ciśnienia), przestrzeń nad cieczą o objętości 80 mL przy ciśnieniu otoczenia wymagała 340 mL odgazowanego O2 do ustalenia ciśnienia parcjalnego O2 na poziomie 99%. W tym przypadku całkowita objętość tlenu wytworzonego w ciągu 4 dni wynosiła od 316 (SEM ± 11) mL w wariancie A do 902 (SEM ± 51) mL w wariancie C (Tabela 1). Zatem pod koniec eksperymentu przestrzeń nad cieczą we wszystkich butelkach zawierałaby głównie O2. Zwiększone stężenie O2 w przestrzeni nad cieczą, a tym samym zmniejszone stężenie N2, wpłynęłoby na ciśnienie parcjalne i nasycenie tych gazów. Przy 99% zawartości O2 w przestrzeni nad cieczą obliczono 5-krotny wzrost DO. Dla kultur o objętości 1,1 L przekładało się to na dodatkowe 23 mL DO. Z kolei oszacowano, że przejście do 1% zawartości N2 w przestrzeni nad cieczą spowodowałoby odgazowanie 15 mL N2 . Oznacza to, że przy niemal czystym tlenie w przestrzeni nad cieczą, rozpuściło się więcej O2, niż wyparto N2. W związku z tym, że w medium pozostało więcej O2, efekt ten doprowadziłby do lekkiego niedoszacowania ilości wytworzonego tlenu fotosyntetycznego.
Głównym wyzwaniem w tej metodzie był moment, gdy kultury stały się gęste. Wraz ze wzrostem biomasy, a co za tym idzie, nasileniem oddychania, wzrosło zapotrzebowanie na O2 . Nocna konsumpcja O2 powodowała powstanie podciśnienia w przestrzeni nad cieczą. Powodowało to przemieszczanie się cieczy uszczelniającej czujnika gazu w górę linii gazowej. Po wznowieniu produkcji O2, ciecz uszczelniająca musiała zostać wtłoczona z powrotem do czujników gazu. Powodowało to opóźnienie w pierwszym odczycie z czujnika gazu. Jednak czwartej nocy skala tego podciśnienia spowodowała, że ciecz uszczelniająca dotarła i ściekła do dwóch z trzech powtórzeń w grupie B, tworząc na powierzchni warstwę tłuszczową. W wyniku obniżenia poziomu cieczy uszczelniającej doszło do zwarcia w czujnikach gazu, co spowodowało bezpośrednie uwalnianie niemierzonego O2 do atmosfery. Doprowadziło to do zatrzymania wzrostu wartości w zbieranych danych (Rycina 7B).
Podciśnienie może być również spowodowane skurczem objętości przestrzeni nad cieczą indukowanym przez temperaturę. Jednak w tym przypadku efekt ten był minimalny. Kanały radiatora i przepływ powietrza skutecznie odprowadzały nadmiar ciepła. W przypadku dwóch testowanych reżimów oświetlenia maksymalna zmiana temperatury zredukowała objętość przestrzeni nad cieczą o 1% lub mniej, co odpowiada przemieszczeniu 800 µL cieczy wypełniającej w przestrzeni nad cieczą o objętości 80 mL. Maksymalna dobowa amplituda temperatury wynosiła 1,4 °C dla reżimów 300 µmolphotons m-2 s-1 (Rysunek 6) oraz 3,2 °C dla reżimów 600 µmolphotons m-2 s-1. Średni dzienny wzrost temperatury dla reżimów 300 i 600 µmolphotons m-2 s-1 wynosił odpowiednio 0,7 i 1,8 °C. Temperatury kultur wracały do wartości bazowej w ciągu nocy (Rysunek 6).
Dane o szybkości wzrostu o wysokiej rozdzielczości mogą ujawnić trendy, które w przeciwnym razie mogłyby pozostać niezauważone. Rozważmy warianty B i C. Pomimo różnych wartości IBC, oba wygenerowały taką samą całkowitą biomasę (gAFDW), co spowodowało identyczną zmianę pH medium (Tabela 1). Dysponując jedynie punktami początkowymi i końcowymi, można by słusznie założyć brak różnic w średniej szybkości wzrostu między tymi dwoma wariantami (Tabela 1). Jednak dane o przepływie tlenu w czasie rzeczywistym wykazały, że każdy z wariantów charakteryzował się zmienną dobową szybkością wzrostu. Wariacje te odzwierciedlały również pomiary pH wykonywane dwa razy dziennie (Rysunek 8). Pierwszego dnia szybkość wzrostu w wariancie B była niższa niż w wariancie C. Do trzeciego dnia sytuacja ta uległa odwróceniu, a szybkość wzrostu w wariancie B przewyższyła tę w wariancie C (Rysunek 7B,C). Dane dotyczące przepływu tlenu wskazały, że najwyższa szybkość wzrostu wystąpiła trzeciego dnia w wariancie B (Rysunek 7B).
Całkowita objętość tlenu wytworzonego przez każdą butelkę w trzech wariantach doświadczalnych posłużyła do oszacowania odpowiedniej zmiany całkowitej biomasy (gAFDW). Osiągnięto to, wykorzystując ogólne równanie syntezy biomasy fotosyntetycznej: CO2 + 0,2 NH3 + 0,6 H2O = CH1.8 O0.5 N0.2 + 1,05 O2. Oczekiwano, że wzrost ciśnienia parcjalnego O2 w przestrzeni nad cieczą i wynikający z tego wzrost nasycenia DO spowodują niewielkie niedoszacowanie przyrostu biomasy. Potwierdzono to w pięciu z siedmiu przykładów (Tabela 2). Średnio szacowany przyrost biomasy mieścił się w granicach 10% zmierzonego przyrostu biomasy. Niektóre szacunki różniły się od zmierzonego przyrostu jedynie o 1–3 mg. W dwóch przykładach przeszacowano przyrost, tzn. wytworzono więcej tlenu, niż wynikałoby to z przyrostu biomasy. Dowolna ilość O2 zużytego podczas oddychania w nocy powinna być odzwierciedlona w opóźnieniu produkcji O2 następnego dnia. W niniejszym przypadku eksperymenty zakończono pod koniec nocy. W ten sposób katabolizm biomasy w nocy podczas ostatnich 8 h każdego eksperymentu pozostał niezmierzony. Może to prowadzić do przeszacowania przyrostu biomasy, zwłaszcza w gęstych kulturach. W związku z tym zaleca się kończenie eksperymentów po godzinach naświetlania.
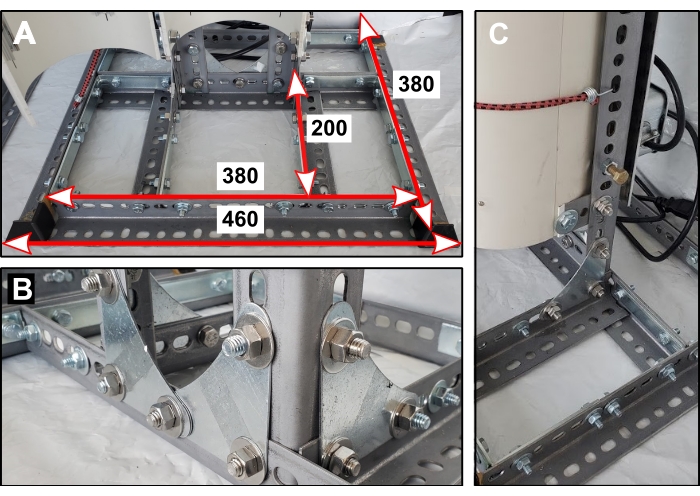
Rycina 1: Podstawa stelaża reaktora. (A) Wymiary komponentów podstawy w mm. (B) Orientacja metalowych kątowników wzmacniających, które stabilizują dwa pionowe wsporniki. (C) Jeden z czterech krótkich stalowych elementów łączących tylną część rury PVC ze stelażem reaktora. Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.
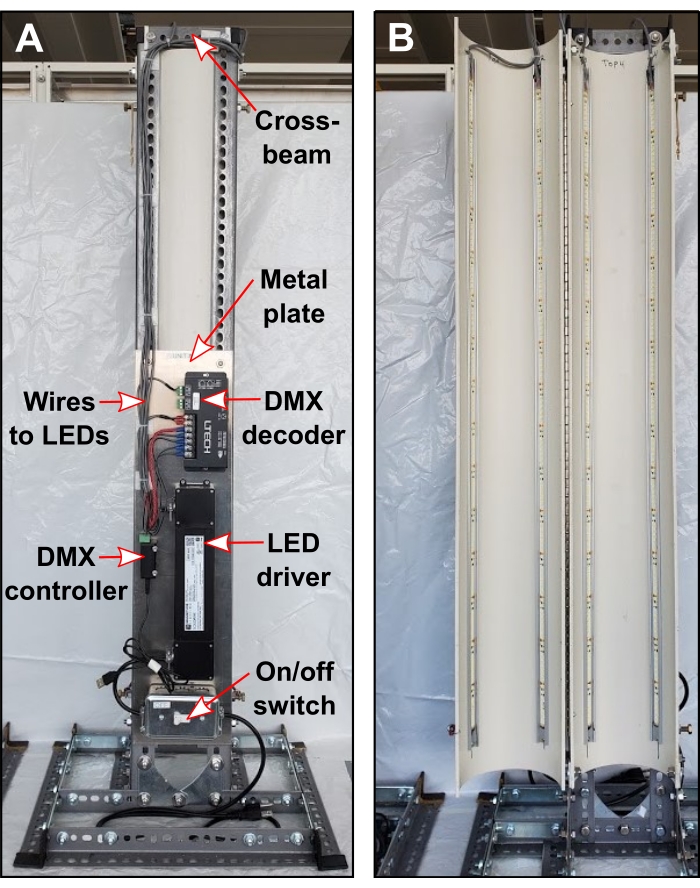
Rycina 2: Komponenty elektryczne. (A) Widok z tyłu PBR przedstawiający górną belkę poprzeczną i konfigurację komponentów elektrycznych. (B) Widok z przodu PBR po instalacji oświetlenia. Aby wyświetlić większą wersję tej ryciny, kliknij tutaj.
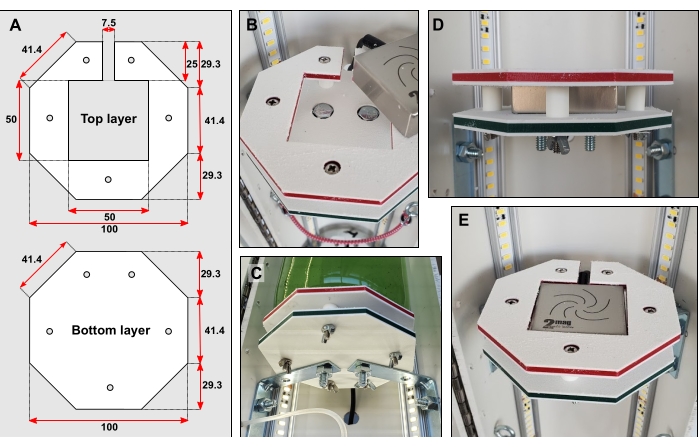
Rysunek 3: Szczegóły platformy pod butelkę. (A) Wymiary warstwy górnej i dolnej w mm. (B) Osadzanie łbów śrub w obu warstwach. (C) Wsporniki łączą warstwę dolną bezpośrednio z tylną połową rury PVC. (D) Pięć krótkich odcinków sztywnej rurki nasuniętych na wąskie śruby utrzymuje odstęp między warstwą górną a dolną. (E) Po zakończeniu montażu platformy pod butelkę powierzchnia powinna być równa. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
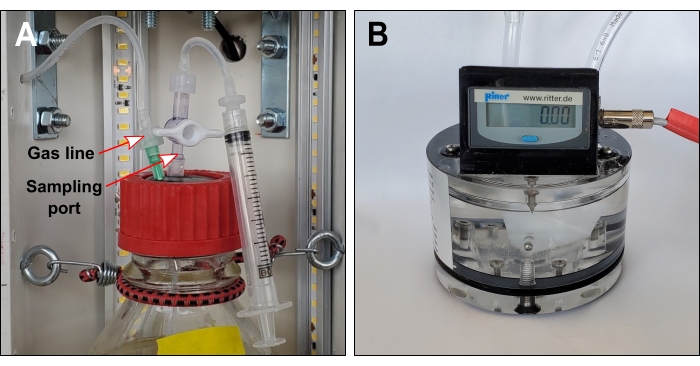
Rycina 4: Linia gazowa i opcjonalny port pobierania próbek. (A) Linie gazowe łączą przestrzeń nad cieczą w każdej butelce z zewnętrznymi czujnikami gazu. Jeśli wymagany jest port pobierania próbek, linie gazowe powinny zawierać zawór jednokierunkowy znajdujący się bezpośrednio za igłą. (B) Wolumetryczny czujnik gazu. Poziom wypełnienia cieczy powinien stykać się ze śrubą śledzącą. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
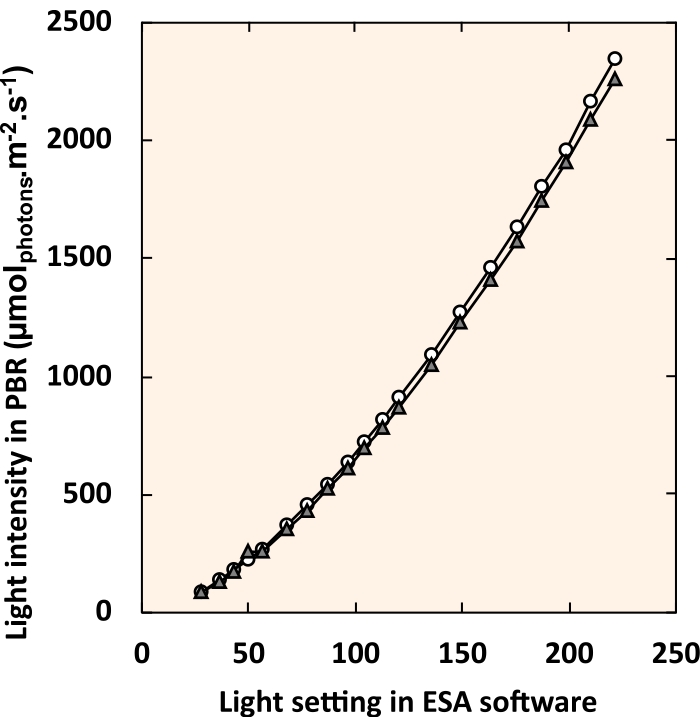
Rycina 5: Krzywa wzorcowa określająca zależność między ustawieniami oprogramowania sterującego LED a wewnętrznym natężeniem światła. Białe kółka i szare trójkąty reprezentują poszczególne fotobioreaktory (PBR). Dla każdego ustawienia światła wszystkie cztery oprawy zostały ustawione na identyczną wartość. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
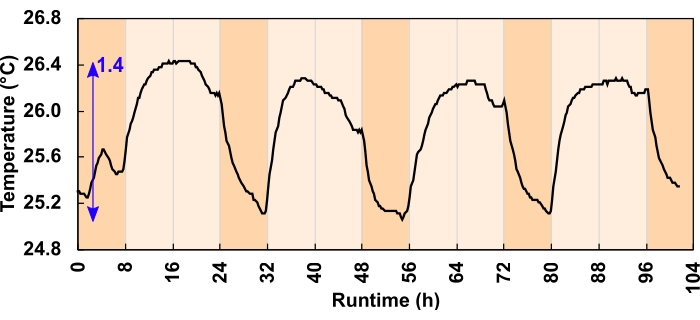
Rycina 6: Zmiana temperatury hodowli dla reżimów oświetleniowych 300 µmolphotons m-2 s-1. W ciągu 24 h, w dobowym programie 16:8-h, diody LED zwiększyły temperaturę hodowli w ciągu dnia. Niebieska strzałka wskazuje różnicę między temperaturą minimalną a maksymalną. Błąd programu oświetlenia spowodował spadek temperatury przed zmierzchem; zostało to skorygowane przed rozpoczęciem eksperymentu. Kliknij tutaj, aby zobaczyć powiększoną wersję tej ryciny.

Rysunek 7: Produkcja tlenu dla trzech unikalnych warunków eksperymentalnych. Do każdego reaktora zastosowano inną kombinację natężenia światła i początkowej koncentracji biomasy (IBC); (A) 300 µmolphotons m-2 s-1 i IBC 0,03 gAFDW L-1, (B) 600 µmolphotons m-2 s-1 i IBC 0,13 gAFDW L-1, (C) 600 µmolphotons m-2 s-1 i IBC 0,40 gAFDW L-1. Górne wykresy przedstawiają skumulowaną produkcję tlenu (mL) oraz natężenie przepływu gazu (mL/h). Ciągłe czarne linie, przerywane niebieskie linie i kropkowane czerwone linie to powtórzenia. Czas trwania każdego eksperymentu wynosił 104 h, co obejmowało cztery pełne cykle dzień-noc 16:8 h. Ciemnopomarańczowe zacienienie oznacza godziny nocne, a jasnopomarańczowe godziny dzienne. Należy zauważyć, że w traktowaniu B produkcja tlenu ulega stagnacji w 4. dniu dla dwóch z trzech powtórzeń. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
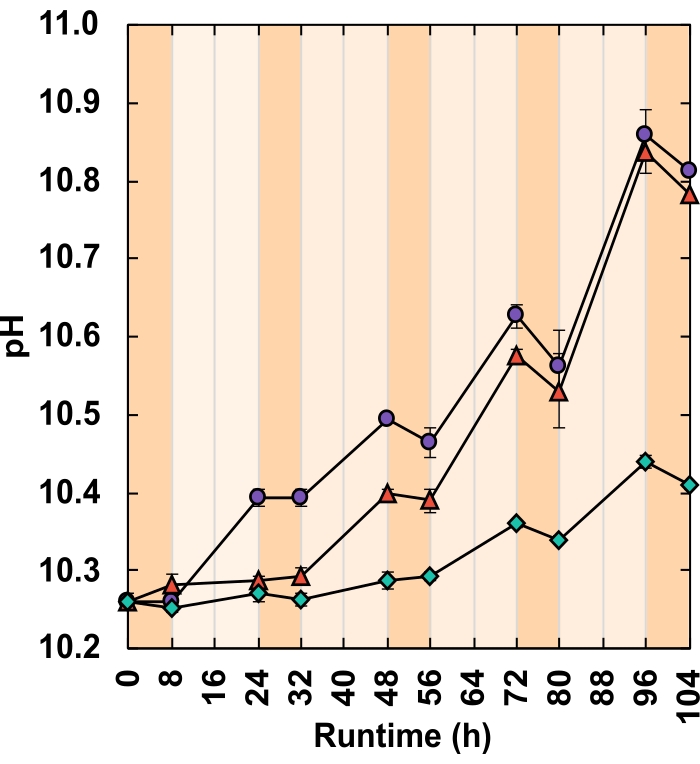
Rycina 8: Odpowiedź pH. Każdy reaktor otrzymał inną kombinację natężenia światła i IBC;(zielone romby) 300 µmolphotons m-2 s-1 i IBC 0,03 gAFDW L-1, (czerwone trójkąty) 600 µmolphotons m2 s-1 i IBC 0,13 gAFDW L-1, (fioletowe kółka) 600 µmolphotons m-2 s-1 i IBC 0,40 gAFDW L-1. Ciemnopomarańczowe zacieniowanie oznacza godziny nocne, a jasnopomarańczowe godziny dzienne. Słupki błędów reprezentują standardowy błąd średniej. Aby zobaczyć powiększoną wersję tej ryciny, kliknij tutaj.
| Obróbka | Natężenie światła (µmol photons m-2 s-1) | IBC (gAFDW L-1) | Δ całkowita biomasa (gAFDW) | Δ pH | Całkowita ilość wyprodukowanego tlenu (mL) |
| A | 300 | 0.031 | 0.289 (± 0.01) | 0.15 (± 0.01) | 316.2 (±11.4) |
| B | 600 | 0.130 | 0.674 (± 0.02) | 0.52 (± 0.27) | 834.6* |
| C | 600 | 0.400 | 0.675 (± 0.02) | 0.55 (± 0.03) | 902.2 (±50.5) |
| * Powiodła się tylko jedna z trzech powtórzeń | |||||
Tabela 1: Zmiana wskaźników wzrostu od 0 do 104 godziny. Nawiasy oznaczają błąd standardowy średniej.
| Opracowanie | Natężenie światła (µmolfotonów m-2 s-1) | IBC (gAFDW L-1) | Zmierzony przyrost biomasy (gAFDW) | Przewidywany przyrost biomasy (gAFDW) | Niedoszacowanie (%) |
| A | 300 | 0.031 | 0.289 | 0.288 | 0.5 |
| A | 300 | 0.031 | 0.311 | 0.270 | 13.1 |
| A | 300 | 0.031 | 0.268 | 0.247 | 7.9 |
| B | 600 | 0.13 | 0.708 | 0.705 | 0.4 |
| C | 600 | 0.4 | 0.718 | 0.796 | -10.9 |
| C | 600 | 0.4 | 0.640 | 0.830 | -29.7 |
| C | 600 | 0.4 | 0.668 | 0.659 | 1.3 |
Tabela 2: Szacunki wzrostu na podstawie całkowitej zmierzonej ilości tlenu. Tylko jedna powtórka z grupy traktowanej dawką 300 µmolphotons m-2 s-1 i IBC = 0,13 gAFDW L-1 została przeprowadzona do końca.
Rysunek uzupełniający 1: Zrzut ekranu z oprogramowania sterującego diodami LED. Każda z czterech opraw oświetleniowych może być sterowana niezależnie poprzez przesuwanie suwaków ściemniacza lub wpisanie wartości liczbowej w polu tekstowym. Kliknij tutaj, aby pobrać ten plik.
Rycina uzupełniająca 2: Zrzut ekranu okna konfiguracji oprogramowania do akwizycji danych. Kliknij tutaj, aby pobrać ten plik.
Rysunek uzupełniający 3: Zrzut ekranu okna rejestracji oprogramowania do akwizycji danych.Jasnozielone prostokąty wskazują czujniki gazu będące online. Dane są wyświetlane w czasie rzeczywistym. Kliknij tutaj, aby pobrać ten plik.
Tabela uzupełniająca 1: Przykład 24-godzinnego reżimu oświetleniowego. Dla programu dobowego 16:8 h istnieje 48 zestawów po 30 min każdy. Gwiazdki wskazują sugerowane czasy pobierania próbek. Kliknij tutaj, aby pobrać tę tabelę.
Tabela uzupełniająca 2: Skład pożywki o wysokiej zasadowości i wysokim pH. Prosimy kliknąć tutaj, aby pobrać tę tabelę.
Tabela uzupełniająca 3: Roztwór pierwiastków śladowych. Dodać do pożywki podstawowej do uzyskania stężenia końcowego 1 mL/L. Kliknij tutaj, aby pobrać tę tabelę.
Dyskusja
W ramach tego protokołu skupienie się na następujących krokach zwiększa prawdopodobieństwo generowania powtarzalnych danych o wysokiej jakości. Podczas konstruowania stojaka reaktora (krok 1) podstawa musi być solidna z dobrze dopasowanymi pionowymi wspornikami. Stal szczelinowa ma ostre krawędzie, dlatego niezbędne jest dodanie zaślepek zabezpieczających. Powierzchnie platformy butelki muszą być całkowicie płaskie, mieszadło magnetyczne i powinny znajdować się poniżej powierzchni górnej warstwy (kroki 3.2–3.6). Zgodnie z instrukcją producenta, płyn uszczelniający czujnik gazu powinien być napełniony "śrubą śledzącą poziom cieczy" w celu dokładnych pomiarów tlenu. Ten poziom cieczy powinien być regularnie sprawdzany, ponieważ parowanie cieczy uszczelniającej może spowodować zwarcie w celi pomiarowej. Wszystkie trzy przewody gazowe wykonane w kroku 5.2 powinny mieć tę samą długość; Oznacza to, że replikatory mają identyczne woluminy przestrzeni nadpowierzchniowej. Przed rozpoczęciem eksperymentu zaleca się przetestowanie zaprogramowanego reżimu oświetlenia poprzez rejestrowanie natężenia światła w okresie 24 godzin (krok 6.11). Jeżeli wzrost temperatury cieczy budzi obawy, badanie to powinno również obejmować szczelnie zamkniętą butelkę z wewnętrzną sondą temperatury (krok 6.11). Podczas rejestrowania nie wychodź z okna oprogramowania do akwizycji danych; Spowoduje to zakończenie rejestrowania. W przypadku pobierania próbek hodowlanych należy uważać, aby nie uwolnić gazu w przestrzeni nad głową, otwierając zawory w niewłaściwej kolejności (kroki 8.2-8.8). Podczas przeglądania danych eksperymentalnych należy pamiętać, że oprogramowanie do akwizycji danych automatycznie generuje średnią ruchomą natężenia przepływu. Powoduje to zawyżenie wartości jednego lub dwóch odczytów natężenia przepływu generowanych w ciągu nocy. Ręczne zarządzanie dziennikami czujników gazu pozwala temu zaradzić.
Najczęstszą wadą tej metody jest możliwość zwarcia czujnika gazu w przypadku spadku poziomu upakowania cieczy. Może się to zdarzyć na dwa sposoby. Po pierwsze, parowanie może powoli obniżać poziom cieczy. Jest to jednak mało prawdopodobne w przypadku krótkoterminowego (<7-dniowego) eksperymentu29. Po drugie, wysokie tempo oddychania może wciągać tlen do roztworu i generować przestrzeń nad roztworem pod ciśnieniem. Kiedy energia świetlna jest niedostępna, mikroalgi wykorzystują oddychanie tlenowe, aby dostarczyć energię potrzebną do utrzymaniai naprawy komórek. W związku z tym w gęstych kulturach w godzinach nieoświetlonych zużycie tlenu i wynikające z niego podciśnienie może być znaczne. Powoduje to zasysanie cieczy pakującej z czujników gazu do przewodu gazowego. Odległość, jaką pokonuje płyn pakowy, jest proporcjonalna do ilości oddychania w nocy. Jeśli płyn pakujący dostanie się do butelek, powoduje to powstanie plamy oleju na powierzchni cieczy.
Jeśli spodziewane jest wysokie tempo oddychania w nocy, można wprowadzić modyfikacje do protokołu. Najprostszym sposobem uniknięcia podciśnienia jest pozostawienie otwartych przestrzeni nad butelką na noc. Ma to również tę zaletę, że zmniejsza poziomy tlenu rozpuszczonego poprzez zmniejszenie ciśnienia cząstkowego w przestrzeni nad roztworemO2. Uważa się, że wysokie stężenia DO są szkodliwe dla wzrostu, ponieważ O2 może hamować aktywność Rubisco i może wywoływać stres oksydacyjny30,31. Nierzadko zdarza się, że zawiesiny hodowlane osiągają 4-krotne przesycenie nawet w kontakcie z atmosferą25,32. Aby otworzyć przestrzeń nad głową, odłącz przewód gazowy od igły rozpiętej nad gumowym korkiem. Godziny nocne mogą służyć jako okno do uzupełniania płynu do napełniania czujników gazu lub manipulowania ciągłymi eksperymentami przy niewielkim wpływie na gromadzenie danych. Na przykład można zmienić gęstość hodowli, odświeżyć składniki odżywcze, dodać poprawkę lub wprowadzić patogen. Butelki muszą zostać ponownie zamknięte, a przewód czujnika gazu ponownie podłączony, zanim ponownie włączą się światła. Pomiary tlenu zebrane w eksperymentach z zamkniętymi i otwartymi przestrzeniami nocnymi będą się różnić.
Gdy butelki pozostają szczelnie zamknięte, zużycie tlenu w nocy zmniejsza liczbę moliO2 w przestrzeni nad głową. Powoduje to, że ciecz pakująca pełza po linii czujnika gazu w celu utrzymania ciśnienia w przestrzeni nad głową. Po włączeniu się świateł wznawia się produkcja tlenu. Płyn pakujący musi zostać wepchnięty z powrotem do czujnika gazu przed rozpoczęciem odczytów natężenia przepływu. Opóźnienie to jest zatem proporcjonalne do stopnia oddychania w nocy. W ten sposób, gdy przestrzeń nad wodą pozostaje zamknięta, odczytyO2 reprezentują produkcję nettoO2 (produkcja fotosyntetyczna - zużycie oddechowe). I odwrotnie, gdy przestrzeń nad głową jest otwarta w nocy, gaz atmosferyczny zastępuje zużytą przestrzeń nad powierzchniąO2 i żadna ciecz pakująca nie dostaje się do przewodu gazowego. W rezultacie zużycie O2 w układzie oddechowym nie jest uwzględniane w danych dotyczących produkcjiO2 . Może to zmniejszyć dokładność szacunków wzrostu biomasy AFDW. Nie powinno to jednak wpływać na użyteczność stosowania produkcjiO2 w ciągu dnia jako wskaźnika do porównywania wzrostu między zabiegami.
Wszystkie laboratoryjne PBR są dotknięte tym samym ograniczeniem; Sztuczne światło nie jest w stanie odtworzyć widma słonecznego. Mikroalgi wykorzystują do fotosyntezy fale światła o długości fali od 400 do 700 nm. Obszar ten określany jest mianem promieniowania aktywnego fotosyntetycznie (PAR)33. Światło słoneczne i światło sztuczne różnią się względnym udziałem długości fal w tym zakresie. To, w połączeniu z korzystnymi temperaturami i stałym dopływem światła, oznacza, że dane dotyczące wzrostu w laboratorium często nie mogą być wiarygodnie ekstrapolowane na warunki zewnętrzne. Te PBR mogą jednak rozwiązać jedno z ograniczeń laboratoryjnego zasilania światłem PBR. Intensywność nasłonecznienia jest bardzo zmienna w ciągu dnia, a zachmurzenie generuje przejściowe wahania padającego PAR. Oprogramowanie sterujące oświetleniem i sterownik oświetlenia DMX mogą zapewnić natężenie światła od 0 do 2400 μmolfotonów m-2 s-1 i więcej. Lekkie reżimy można podzielić na indywidualne przyrosty już od 1 s. Przestrajalne natężenie światła pozwala użytkownikowi naśladować wzorce światła zewnętrznego bardziej niż standardowe konfiguracje PBR. W tym przypadku symulowane 30-minutowe interwały świtu i zmierzchu zanikają razem w cyklach dnia i nocy (tabela uzupełniająca 1).
Chociaż gęstość AFDW stała się standardową miarą wzrostu, ta metoda może wymagać znacznych ilości hodowli, 2-3-dniowego okresu przetwarzania i generowania jednego punktu danych na raz. Ponadto, jeśli warunki stają się niekorzystne i komórki umierają, gęstość AFDW nie rozróżnia komórek aktywnie fotosyntetyzujących od tych, które się rozkładają. Kwantyfikacja tempa produkcji tlenu fotosyntetycznego służy jako alternatywny wskaźnik zastępczy wzrostu. Ta konstrukcja PBR może rejestrować produkcję tlenu w sposób ciągły przy niewielkiej interwencji użytkownika, jednocześnie oszczędzając objętość hodowli. Rozdzielczość danych można poprawić, wybierając czujnik gazu o mniejszej objętości celi pomiarowej, np. 1 ml. Ponadto, jeśli kultury są dobrze wymieszane, użytkownicy mogą zdecydować się na zainstalowanie spektrofotometru do ciągłych odczytów gęstości optycznej. Jeśli pożądana jest kontrola temperatury medium, można dodać agregat chłodniczy z recyrkulacją. Te PBR są cennym dodatkiem do laboratorium, które chce rozszerzyć swoje możliwości badawcze w zakresie mikroglonów bez dużych inwestycji finansowych. Są szczególnie odpowiednie dla osób pracujących z gatunkami o wysokiej zasadowości i wysokim pH, takimi jak Spirulina. Te PBR oferują elastyczność w reżimie lekkim i nadają się do szybkich, replikowanych, laboratoryjnych porównań wzrostu.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
To badanie było wspierane przez Radę Badań Nauk Przyrodniczych i Inżynierii (NSERC), Kanadyjską Fundację Innowacji (CFI), Canada First Research Excellence Fund (CFREF), Alberta Innovates, Fundację Generała Sir Johna Monash, Rząd Alberty oraz Uniwersytet w Calgary. Podziękowania należą się Markowi Toonenowi za prace elektryczne i Williamowi Richardsonowi za obliczenia rozpuszczalności.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Kanały aluminiowe imperialny: 0,90" x 39,37" metryczny: 2,3 cm x 100 cm Ilość: 4 | LED World | AC-AR1-1M | Wymagany jako radiator |
| Liny bungee, małe Ilość: 5 | - | - | Do zabezpieczania butelek |
| Komputer - komputer stacjonarny/laptop Ilość: 1 | - | -- | |
| Rejestrator danych, stacja pogodowa USB HOBO U30 Ilość: 1 | HOBO, Hoskin | U30-NRC-VIA-10-S100-000 | Rejestruje informacje o czujniku światła |
| Moduł interfejsu cyfrowego, Rigamo, 4-kanałowy Ilość: 1 | Ritter | N/A | Ma to na celu przesłanie danych z czujnika gazu do komputera |
| Dekoder DMX, 12 ~ 24 VDC, DMX-CV-4X5A Ilość: 1 | LITECH, LED World | LT-840-6A | Przesyłaj wiadomości, które zmieniają wzór światła |
| Sterownik oświetlenia DMX, SUSHI-RB-RJ Ilość: 1 | Arcolis, Nicolaudie America Inc. | SUSHI-RB-RJ DMX | Koduje program oświetleniowy |
| Czujnik gazu do pakowania cieczy (Silox) Ilość: 1 L | Ritter | https://www.ritter.de/en/data-sheets/silox | |
| Czujnik gazu, objętościowy Ilość: 3 | Ritter | MGC-1 V3.4 PMMA (https://www.ritter.de/downloads/mgc-milligascounter-en) | Mierzy produkcję tlenu |
| Butelki szklane, okrągłe 1 L z szyjką GL45 Ilość: 3 | Corning, Capitol Scientific | 1395-1L | Naczynia hodowlane |
| Okucia - zaślepki do stali szczelinowej Ilość: 10 | Paulin, Home Depot | 142-612 | Do zakrywania ostrych krawędzi ze stali szczelinowej |
| Okucia - haczyki oczkowe Ilość: 6 | - | Do zabezpieczania butelek | |
| Sprzęt - metalowe szelki narożne (duże) < mocne> imperialne < / mocne>: 4 "x 4" metryczny< / mocny>: 10 cm x 10 cm Ilość< / mocny>: 8 | - | Większe wsporniki do budowy metalowego stojaka | |
| Okucia - metalowe szelki narożne (małe) < mocne> imperialne< / mocne>: 2 1/2" x 2 1/2" metryczne: 6,4 cm x 6,4 cm Ilość: 6 | - | - | Małe wsporniki do łączenia platform butelek z rurą PVC |
| Osprzęt - metalowe kliny narożne Imperialny< / mocny>: 3" x 3" metryczny: 7,6 cm x 7,6 cm Ilość: 6 | Paulin, Home Depot | 142-616 | Płaskie wsporniki do budowy metalowego stojaka |
| Okucia - zawias fortepianowy Imperialny: 36" metryczny: 91 cm Ilość: 1 | - | - | Łączy dwie połówki rury PVC |
| Okucia - nity Ilość: 40 | - | - | Do mocowania zawiasu fortepianowego do rurki PVC |
| Osprzęt - zestaw, nakrętek, podkładek Ilość: 60 | - | Długie cienkie są wymagane do zabezpieczenia platform butelek wokół mieszadeł magentowych | |
| Sprzęt - zestaw, nakrętek, podkładek < mocny> Ilość< / mocny>: 30 | - | Do budowy metalowego stojaka wymagane są większe krótsze | |
| Sterownik LED, stałe napięcie, 96W 24VDC Certyfikat UL Sterownik IP65 Regulowany zasilacz klasy 2 Ilość< / silny>: 1 | Magnitude Lighting, LED World | CVN96L24DC | Reguluje moc świateł |
| Światła LED, Cinco Bright LED Flex Strip Ilość: rolka 4 m | EvenBright, LED World | FA128M57-4M-24V-X | Rolka jest przycinana na odcinki 4 x 1 m i mocowana wewnątrz rurki PVC |
| Światłomierz, ręczny z zanurzalną sondą speryczną Ilość: 1 | LI-COR | LA-250A Kalibracja | natężenia światła reaktorów |
| Czujniki światła Światło fotosyntetyczne (PAR) Inteligentny czujnik Ilość: 2 | HOBO, Hoskin | S-LIA-M003 | Wymagany jest tylko jeden, jednak dwie byłyby dobrą praktyką w przypadku awarii |
| jednego Mieszadła magnetyczne (MIXdrive 1 XS) z zewnętrznymi jednostkami sterującymi i zasilaczem (MIXcontrol eco) Ilość: 3 | 2Mag, 2MAG USA | MF 40300 | Mieszadełka są umieszczone w platformach do butelek |
| Metalowa płyta Imperialny< / mocny>: 24" x 8" metryczny: 61 cm x 20,3 cm Ilość: 1 | - | - | To jest powierzchnia, na której można zabezpieczyć elektronikę, jest przymocowany z tyłu rury reaktora |
| , biały PVC < mocny> imperialny< / mocny>: średnica 6 "x 42" wysokość metryczny< / mocny>: 15,2 cm x 106,7 cm Ilość< / mocny>: 1 | - | Przeciąć wzdłuż na dwie połowy, używany do przechowywania świateł i butelek | |
| Arkusze plastikowe (HDPE Imperialny: 4" x 4" x 1/4" metryczny: 10 cm x 10 cm x 1 cm Ilość: 6 | Inventables | 30291-01 | Do platform do butelek, w których mieszczą mieszadełka magentic |
| Korki gumowe - GL45 rozmiar Ilość: 3 | Duran, VWR | 76289-760 | Uszczelki naczynia hodowlane |
| Zakrętki - z otworem i GL45 szyjka Ilość: 3 | Corning, Capitol Scientific | 1395-45HTSC | Generuje uszczelnienie naczyń hodowlanych |
| Kątownik szczelinowy Długości stalowe imperialny: 1-1/2" X 48" x 0,074" metryczny: 3,8 cm x 122 cm x 0,19 cm Ilość: 6 | Paulin, Home Depot | 142-202 | Tworzy korpus metalowego stojaka |
| Płaskie płaskie stalowe długości Imperial: 1-3/8" x 48" x 0,074" metryczny: 3,5 cm x 122 cm x 0,19 cm Ilość: 3 | Paulin, Home Depot | 142-222 | Tworzy korpus metalowego stojaka |
| Oprogramowanie - Easy Stand Alone (ESA) | https://www.dmxsoft.com/#apps | Oprogramowanie sterujące AKA LED | |
| - Rigamo v3.1 | Oprogramowanie do akwizycji danych AKA | ||
| Oprogramowanie - Narzędzia do rozbudowy pamięci masowej (SUT) | https://store.dmxsoft.com// | ||
| Mieszacz Imperialny: 1" x 5/16" metryczny: 2,5 cm x 0,8 cm Ilość: 3 | Fisherbrand | 14-513-59 | Miesza kulturę |
| Skrzynka rozdzielcza Ilość: 1 | - | Włącza / wyłącza zasilanie reaktora | |
| Strzykawka, 10 ml < br / > < > Ilość< / mocny>: Wiele | - | opcjonalnie, jeśli chcesz ekstrahować kulturę | |
| Złączki adaptera rury, plastikowe - Zawór odcinający 1-drożny Ilość: 6 | Masterflex, Cole Palmer | RK-12023-33 | Linia |
| naczyń do hodowli zamkniętych/otwartychŁączniki rurowe, plastikowe - różnorodność męskich i żeńskich złączek typu luer lock imperialny: pasujący do rurki ID 1/16" i 1/8" metryczny: pasujący do rurki 1,59 mm i 3,18 mm Ilość: Pakiety wielokrotne | Masterflex, Cole Palmer | RK-30800-16; RK-30800-18; RK-45518-26; RK-45501-00; RK-45501-04 | Wiele różnych kombinacji może osiągnąć ten sam efekt końcowy, najlepiej zamówić różne złączki |
| Złączki adapterów rurowych, plastikowe - różnorodność łączników prostych Imperialny: pasujący do rurki ID 1/16" i 1/8" metryczny: pasujący do rurki 1,59 mm i 3,18 mm Ilość: Wiele pakietów | Masterflex, Cole Palmer | RK-40616-04 | Wiele różnych kombinacji może osiągnąć ten sam efekt końcowy, najlepiej zamówić różne złączki |
| Rurki, elastyczne, przezroczyste imperialny: ID=1/16", OD=1/8" metryczny: ID = 1,59 mm, 0D = 3,18 mm Ilość: 4 m | Masterflex, Cole Palmer | RK-06422-02 | Przewód od naczynia hodowlanego do czujnika gazu |
| Przewody, elastyczne, przezroczyste imperialny: ID=1/8", OD=1/4" metryczny: ID = 3,18 mm, 0D = 6,35 mm Ilość: 2 m | Masterflex, Cole Palmer | RK-06422-05 | Standardowy rozmiar rurki czujnika gazu |
| Wężyki, sztywne, przezroczyste imperialny: ID=1/16", OD=1/8" metryczny: ID = 1,59 mm, 0D = 3,18 mm Ilościowy: 1 m | Masterflex, Cole Palmer | RK-06605-27 | Gumowy korek umożliwiający wydostanie się gazu |
| 1 m Rurka, sztywna, przezroczysta imperialny: ID=1/8", OD=1/4" metryczny: ID = 3,18 mm, 0D = 6,35 mm Ilość: 1 m | Masterflex, Cole Palmer | RK-06605-30 | Rozpiętości Gumowy korek umożliwiający wydostanie się gazu |
| Opaski zaciskowe, małe Ilość: 1 opakowanie | Bezpieczne złączki rurowe |
Bibliografia
- Benemann, J. R. Opportunities and challenges in algae biofuels production. A position paper in line with Algae World. , (2008).
- Laurens, L. M. L. State of technology review - algae bioenergy. An IEA bioenergy inter-task strategic project. IEA Bioenergy. , (2017).
- Robertson, D. E., et al. A new dawn for industrial photosynthesis. Photosynthesis Research. 107, 269-277 (2011).
- Troschl, C., Meixner, K., Drosg, B. Cyanobacterial PHA production-review of recent advances and a summary of three years' working experience running a pilot plant. Bioengineering. 4 (2), (2017).
- Rizwan, M., Mujtaba, G., Memon, S. A., Lee, K., Rashid, N. Exploring the potential of microalgae for new biotechnology applications and beyond: a review. Renewable and Sustainable Energy Reviews. 92, 394-404 (2018).
- Niesa, F., et al. Characterization of Phormidium lacuna strains from the North Sea and the Mediterranean Sea for biotechnological applications. Process Biochemistry. 59, 194-206 (2017).
- Laurens, L. M. L., Chen-Glasser, M., McMillan, J. D. A perspective on renewable bioenergy from photosynthetic algae as feedstock for biofuels and bioproducts. Algal Research. 24, 261-264 (2017).
- Barreiro-Vescovo, S., Barbera, E., Bertucco, A., Sforza, E. Integration of microalgae cultivation in a biogas production process from organic municipal solid waste: From laboratory to pilot scale. ChemEngineering. 4 (2), 26(2020).
- Zurano, A. S., et al. Year-long assessment of a pilot-scale thin-layer reactor for microalgae wastewater treatment. Variation in the microalgae-bacteria consortium and the impact of environmental conditions. Algal Research. 50, (2020).
- Deprá, M. C., Severo, I. A., Dias, R. R., Zepka, L. Q., Jacob-Lopes, E. Photobioreactor design for microalgae culture. Microalgae. , Elsevier. 35-61 (2021).
- Osburn, F. S., Wagner, N. D., Scott, J. T. Biological stoichiometry and growth dynamics of a diazotrophic cyanobacteria in nitrogen sufficient and deficient conditions. Harmful Algae. 103, (2021).
- Eustance, E., Badvipour, S., Wray, J. T., Sommerfeld, M. R. Biomass productivity of two Scenedesmus strains cultivated semi-continuously in outdoor raceway ponds and flat-panel photobioreactors. Journal of Applied Phycology. 28 (3), 1471-1483 (2016).
- Qiang, H., Richmond, A., Zarmi, Y. Combined effects of light intensity, light-path and culture density on output rate of spirulina platensis (cyanobacteria). European Journal of Phycology. 33 (2), 165-171 (1998).
- Ooms, M. D., Dinh, C. T., Sargent, E. H., Sinton, D. Photon management for augmented photosynthesis. Nature Communications. 7, 1-13 (2016).
- Moheimani, N. R., Borowitzka, M. A., Isdepsky, A., Sing, S. F. Standard methods for measuring growth of algae and their composition. Algae for biofuels and energy. , Springer. Dordrecht. 265-284 (2013).
- Griffiths, M. J., Garcin, C., van Hille, R. P., Harrison, S. T. L. Interference by pigment in the estimation of microalgal biomass concentration by optical density. Journal of Microbiological Methods. 85 (2), 119-123 (2011).
- Schumann, R., Häubner, N., Klausch, S., Karsten, U. Chlorophyll extraction methods for the quantification of green microalgae colonizing building facades. International Biodeterioration and Biodegradation. 55 (3), 213-222 (2005).
- Pinckney, J. L., Richardson, T. L., Millie, D. F., Paerl, H. W. Application of photopigment biomarkers for quantifying microalgal community composition and in situ growth rates. Organic Geochemistry. 32 (4), 585-595 (2001).
- Van Wychen, S., Laurens, L. M. L. Determination of total solids and ash in algal biomass: laboratory analytical procedure (LAP). National Renewable Energy Laboratory. , Golden, CO. (2015).
- Davis, R., Laurens, L. Algal biomass production via open pond algae farm cultivation: 2019 state of technology and future research. National Renewable Energy Laboratory. , Golden, CO. (2020).
- Borovkov, A. B., Gudvilovich, I. N., Avsiyan, A. L. Scale-up of Dunaliella salina cultivation: from strain selection to open ponds. Journal of Applied Phycology. 32 (3), 1545-1558 (2020).
- Davies, F. K., et al. Microbiota associated with the large-scale outdoor cultivation of the cyanobacterium Synechococcus sp. PCC 7002. Algal Research. 58, (2021).
- Ataeian, M., et al. Direct capture and conversion of CO2 from air by growing a cyanobacterial consortium at pH up to 11.2. Biotechnology and Bioengineering. 116 (7), 1604-1611 (2019).
- Fu, F., et al. Sustained photosynthesis and oxygen generation of microalgae-embedded silk fibroin hydrogels. ACS Biomaterials Science & Engineering. , (2021).
- Rearte, T. A., et al. Photosynthetic performance of Chlorella vulgaris R117 mass culture is moderated by diurnal oxygen gradients in an outdoor thin layer cascade. Algal Research. 54, (2021).
- Poughon, L., et al. Limnospira indica PCC8005 growth in photobioreactor: model and simulation of the ISS and ground experiments. Life Sciences in Space Research. 25, 53-65 (2020).
- Yen, U. C., Huang, T. C., Yen, T. C. Observation of the circadian photosynthetic rhythm in cyanobacteria with a dissolved-oxygen meter. Plant Science. 166 (4), 949-952 (2004).
- Vermaas, W. F. Photosynthesis and respiration in cyanobacteria. eLS. , (2001).
- Ritter, MilliGascounter Type MGC-1 Operation Instructions V 3.4. , (2017).
- Sousa, C., De Winter, L., Janssen, M., Vermuë, M. H., Wijffels, R. H. Growth of the microalgae Neochloris oleoabundans at high partial oxygen pressures and sub-saturating light intensity. Bioresource Technology. 104, 565-570 (2012).
- Latifi, A., Ruiz, M., Zhang, C. C. Oxidative stress in cyanobacteria. FEMS microbiology reviews. 33 (2), 258-278 (2009).
- Morillas-España, A., Lafarga, T., Gómez-Serrano, C., Acién-Fernández, F. G., González-López, C. V. Year-long production of Scenedesmus almeriensis in pilot-scale raceway and thin-layer cascade photobioreactors. Algal Research. 51, (2020).
- Melis, A. Solar energy conversion efficiencies in photosynthesis: minimizing the chlorophyll antennae to maximize efficiency. Plant Science. 177 (4), 272-280 (2009).
Przedruki i uprawnienia
