Tutaj opisano szczegółowy protokół do przeprowadzania testu stresu mitochondrialnego i testu szybkości glikolitycznej w próbkach tkanki siatkówki ex vivo przy użyciu komercyjnego bioanalizatora.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Oznaczanie oddychania mitochondrialnego i glikolizy w próbkach tkanki siatkówki ex vivo
W tym artykule
Podsumowanie
Streszczenie
Oddychanie mitochondrialne jest krytycznym szlakiem generowania energii we wszystkich komórkach, zwłaszcza w fotoreceptorach siatkówki, które mają bardzo aktywny metabolizm. Ponadto fotoreceptory wykazują również wysoką glikolizę tlenową, podobnie jak komórki rakowe. Precyzyjne pomiary tych czynności metabolicznych mogą dostarczyć cennych informacji na temat homeostazy komórkowej w warunkach fizjologicznych i w stanach chorobowych. Opracowano wysokoprzepustowe testy oparte na mikropłytkach do pomiaru oddychania mitochondrialnego i różnych aktywności metabolicznych w żywych komórkach. Jednak zdecydowana większość z nich została opracowana dla komórek hodowlanych i nie została zoptymalizowana pod kątem nienaruszonych próbek tkanek oraz do stosowania ex vivo. Opisano tutaj szczegółowy protokół krok po kroku, wykorzystujący technologię fluorescencji opartą na mikropłytkach, do bezpośredniego pomiaru wskaźnika zużycia tlenu (OCR) jako wskaźnika oddychania mitochondrialnego, a także wskaźnika zakwaszenia zewnątrzkomórkowego (ECAR) jako wskaźnika glikolizy w nienaruszonej tkance siatkówki ex vivo. Metoda ta została wykorzystana do skutecznej oceny aktywności metabolicznej siatkówki dorosłej myszy i wykazania jej zastosowania w badaniu komórkowych mechanizmów starzenia się i chorób.
Wprowadzenie
Mitochondria są niezbędnymi organellami, które regulują metabolizm komórkowy, sygnalizację, homeostazę i apoptozę poprzez koordynację wielu kluczowych procesów fizjologicznych1. Mitochondria służą jako elektrownia w komórce do wytwarzania trifosforanu adenozyny (ATP) poprzez fosforylację oksydacyjną (OXPHOS) i dostarczają energię, która wspiera prawie wszystkie zdarzenia komórkowe. Większość tlenu komórkowego jest metabolizowana w mitochondriach, gdzie służy jako końcowy akceptor elektronów w łańcuchu transportu elektronów (ETC) podczas oddychania tlenowego. Niewielkie ilości ATP mogą być również wytwarzane w wyniku glikolizy w cytozolu, gdzie glukoza jest przekształcana w pirogronian, który może być dalej przekształcany w mleczan lub transportowany do mitochondriów i utleniany do acetylo-CoA, substratu w cyklu kwasów trikarboksylowych (cykl TCA).
Siatkówka jest jedną z najbardziej aktywnych metabolicznie tkanek u ssaków2, wykazując wysoki poziom oddychania mitochondrialnego i ekstremalnie wysokie zużycie tlenu3. Fotoreceptory pręcików i czopków zawierają dużą gęstość mitochondriów4, a OXPHOS generuje najwięcej ATP w siatkówce5. Ponadto siatkówka również w dużym stopniu opiera się na glikolizie tlenowej6,7 poprzez konwersję glukozy do mleczanu5. Defekty mitochondrialne są związane z różnymi chorobami neurodegeneracyjnymi8,9; a dzięki wyjątkowo wysokiemu zapotrzebowaniu na energię, siatkówka jest szczególnie podatna na defekty metaboliczne, w tym te wpływające na mitochondrialne OXPHOS4 i glikolysis10. Dysfunkcja mitochondriów i defekty glikolizy są związane z retinal11,12 i plamka żółta13 choroby zwyrodnieniowe, zwyrodnienie plamki żółtej związane z wiekiem10,14,15,16, oraz retinopatia cukrzycowa17,18. Dlatego dokładne pomiary oddychania mitochondrialnego i glikolizy mogą dostarczyć ważnych parametrów do oceny integralności i zdrowia siatkówki.
Oddychanie mitochondrialne może być mierzone poprzez określenie wskaźnika zużycia tlenu (OCR). Biorąc pod uwagę, że konwersja glukozy do pirogronianu, a następnie do mleczanu, powoduje ekstruzję protonów do środowiska zewnątrzkomórkowego i zakwaszenie go, pomiary szybkości zakwaszenia zewnątrzkomórkowego (ECAR) wskazują na strumień glikolizy. Ponieważ siatkówka składa się z wielu typów komórek o bliskich związkach i aktywnej synergii, w tym wymianie substratów6, konieczne jest przeanalizowanie funkcji i metabolizmu mitochondriów w kontekście całej tkanki siatkówki z nienaruszoną laminacją i obwodami. Przez ostatnie kilkadziesiąt lat elektrody Clark typu O2 i inne mikroelektrody tlenowe były używane do pomiaru zużycia tlenu w siatkówce19,20,21. Te elektrody tlenowe mają poważne ograniczenia w czułości, wymagają dużej objętości próbki i wymagają ciągłego mieszania zawieszonej próbki, co zwykle prowadzi do zakłócenia kontekstu komórkowego i tkankowego. Opisany tutaj protokół został opracowany przy użyciu techniki fluorescencji opartej na mikropłytkach do pomiaru metabolizmu energii mitochondrialnej w świeżo wypreparowanej tkance siatkówki myszy ex vivo. Umożliwia jednoczesne pomiary w czasie rzeczywistym zarówno OCR, jak i ECAR przy użyciu małej próbki (1 mm stempla) tkanki siatkówki ex vivo, unikając jednocześnie konieczności zawieszania i ciągłego mieszania.
Pokazano tutaj eksperymentalną procedurę testowania stresu mitochondrialnego i testu szybkości glikolitycznej na świeżo wypreparowanych krążkach stempla siatkówki. Protokół ten umożliwia pomiar aktywności metabolicznej związanej z mitochondriami w kontekście tkanek ex vivo. W odróżnieniu od testów wykonywanych przy użyciu hodowanych komórek, uzyskane tutaj odczyty odzwierciedlają połączony metabolizm energetyczny na poziomie tkanki i mają na nie wpływ interakcje między różnymi typami komórek w tkance. Protokół jest zmodyfikowany w stosunku do poprzednio opublikowanej wersji22,23 w celu dostosowania do nowej generacji 24-dołkowego analizatora strumienia zewnątrzkomórkowego Agilent Seahorse (XFe24) z płytką Islet Capture. Pożywka testowa, stężenia związków iniekcyjnych oraz liczba/czas trwania cykli testowych zostały również zoptymalizowane pod kątem tkanki siatkówki. Podano szczegółowy protokół krok po kroku dotyczący przygotowania krążków dziurkowania siatkówki. Więcej informacji na temat konfiguracji programu i analizy danych można znaleźć w instrukcji obsługi producenta24,25,26.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
Wszystkie protokoły dotyczące myszy zostały zatwierdzone przez Komitet ds. Opieki i Wykorzystania Zwierząt Narodowego Instytutu Okulistyki (NEI ASP# 650). Myszy przebywały w warunkach 12-godzinnego cyklu światło-ciemność, a opieka nad nimi była sprawowana zgodnie z zaleceniami Guide for the Care and Use of Laboratory Animals, Institute of Laboratory Animal Resources oraz Public Health Service Policy on Humane Care and Use of Laboratory Animals.
1. Nawadnianie wkładu czujnika i przygotowanie podłoża do analizy
- Dzień przed eksperymentem do każdego dołka płytki pomocniczej należy dodać 1 mL medium kalibracyjnego. Na górze należy umieścić pokrywę Hydro-Booster, a następnie wprowadzić wkład sensora przez otwór w pokrywie. Należy upewnić się, że sensor jest zanurzony w medium kalibracyjnym. Wkład sensora należy inkubować przez noc w inkubatorze bezzwrotnym CO2 w temperaturze 37 ˚C w celu aktywacji fluoroforów.
UWAGA: Aby zapobiec odparowywaniu, w inkubatorze należy utrzymać wilgotność poprzez umieszczenie wewnątrz tacy z wodą, a kasetę z wkładem sensora należy owinąć przezroczystą folią spożywczą. - Medium do analizy przygotowuje się poprzez rekonstytucję medium Seahorse DMEM z dodatkiem glukozy, pirogronianu i glutaminy do pożądanych stężeń. W analizach opisanych w niniejszym artykule końcowe stężenia substratów w medium do analizy wynoszą: 6 mM glukozy, 0.12 mM pirogronianu i 0.5 mM glutaminy. Dla każdej płytki analitycznej w dniu eksperymentu przygotowuje się na świeżo 40 mL medium do analizy.
- Program analizy w analizatorze należy skonfigurować zgodnie z instrukcją producenta26. W analizie zaprezentowanej w niniejszym materiale protokół został ustawiony w następujący sposób: 5 cykli pomiarów dla linii bazowej, następnie wtrysk z portu A, po którym następują 4 cykle pomiarów, następnie wtrysk z portu B i kolejne 4 cykle pomiarów. Każdy cykl składa się z mieszania (3 min), oczekiwania (2 min) oraz pomiaru (3 min).
2. Powlekanie wkładów siatkowych mikropłytki do wychwytywania wysepek
- Przygotować mieszaninę do powlekania, łącząc 20 µL pożywki do przylegania komórek (np. Cell-Tak) z 171 µL 0,1 M wodorowęglanu sodu oraz 9 µL 1 M NaOH.
- Otworzyć pokrywę kasety zawierającej wkładki z siatki. Nanieść pipetą 8 µL mieszaniny do powlekania na każdą z wkładek. Za pomocą końcówki pipety delikatnie rozprzestrzenić kroplę, aby równomiernie rozprowadzić mieszaninę na całej powierzchni wkładki.
- Zamknąć kasetę i inkubować wkładki z siatki w temperaturze pokojowej przez co najmniej 25 min w celu adsorpcji.
- Przepłukać wkładki z siatki, nanieść pipetą 4 mL pożywki do testu bezpośrednio na wkładki. Delikatnie potrząsnąć kasetą, aby upewnić się, że wszystkie wkładki zostały przemyte pożywką.
- Odstawić wkładki z siatki. Są one gotowe do użycia.
3. Przygotowanie związków do iniekcji
- Wyjąć alikwoty roztworów zapasowych Bam15 (10 mM), rotenonu (10 mM), antymycyny A (10 mM) oraz 2-DG (500 mM) z zamrażarki o temperaturze -80 °C i rozmrozić w temperaturze pokojowej.
UWAGA: Roztwór zapasowy 2-DG jest gotowy do użycia. Pozostałe związki muszą zostać rozcieńczone do stężeń roboczych. - Podgrzać 10 mL medium do analizy w kąpieli wodnej o temperaturze 37 °C.
- Rozcieńczyć roztwór zapasowy Bam15 o stężeniu 10 mM do stężenia roboczego 50 µM, stosując dwustopniową procedurę rozcieńczania: zmieszać 20 µL roztworu zapasowego 10 mM z 20 µL DMSO, aby uzyskać pośredni roztwór o stężeniu 5 mM. Następnie zmieszać 10 µL powyższego roztworu pośredniego 5 mM z 990 µL wstępnie podgrzanego medium do analizy, aby uzyskać końcowy roztwór roboczy o stężeniu 50 µM.
- Rozcieńczyć i połączyć roztwory zapasowe rotenonu (10 mM) oraz antymycyny A (10 mM), aby uzyskać roztwór roboczy rotenonu/antymycyny A (Rot/AA) o stężeniu 10 µM, stosując dwustopniowe rozcieńczenie: zmieszać po 10 µL roztworu zapasowego rotenonu 10 mM i antymycyny A 10 mM z 80 µL DMSO, aby uzyskać pośredni roztwór Rot/AA o stężeniu 1 mM. Następnie zmieszać 10 µL powyższego roztworu pośredniego 1 mM z 990 µL wstępnie podgrzanego medium do analizy, aby uzyskać końcowy roztwór roboczy Rot/AA o stężeniu 10 µM.
- Wyżej wymienione roztwory robocze związków do wstrzyknięcia przygotować na świeżo w dniu eksperymentu i pozostawić w temperaturze pokojowej do momentu ich wprowadzenia do portów wtryskowych wkładu sensora.
4. Disekcja siatkówki i przygotowanie wycinków siatkówki
- Uśmierć mysz poprzez uduszenie CO2 zgodnie z wytycznymi AVMA dotyczącymi eutanazji27.
UWAGA: Nie pozostawiaj zwierzęcia w komorze z CO2 dłużej niż czas niezbędny do przeprowadzenia eutanazji. - Wykonaj enukleację oczu, umieść je w chłodzonym na lodzie buforze 1x PBS w szalce Petriego, a następnie ustaw szalkę pod mikroskopem sekcyjnym.
- Ostrożnie usuń, wycinając mikronóżkami, zewnętrzne mięśnie proste przyczepione na zewnątrz gałki ocznej i przetnij nerw wzrokowy.
- Użyj igły 30 G, aby zrobić otwór na krawędzi rogówki (limbus); posłuży on jako miejsce wprowadzenia mikronóżek. Następnie, używając cienkich mikronóżek sekcyjnych, wykonaj okrężne cięcie wzdłuż krawędzi rogówki, oddzielając ją od tylnej części oka.
- Użyj ostrych pęset sekcyjnych, aby usunąć rogówkę, soczewkę i ciało szkliste z oczodołu.
- Użyj cienkich mikronóżek sekcyjnych, aby wykonać kilka małych nacięć w warstwie twardówki na krawędzi oczodołu. Unikaj przecięcia warstwy siatkówki. Użyj dwóch ostrych pęset sekcyjnych do przytrzymania tkanki twardówki po obu stronach nacięcia i bardzo ostrożnie odciągnij warstwę twardówki, aby oddzielić ją od siatkówki neuronowej. Powtarzaj tę czynność wokół oczodołu, aż cała twardówka zostanie usunięta i uzyskana zostanie nienaruszona czasza siatkówki.
- Użyj mikronóżek sekcyjnych i wykonaj cięcia radialne na czaszy siatkówki, aby ją spłaszczyć i podzielić na kilka odrębnych sekcji.
UWAGA: W zależności od umiejętności sekcyjnych operatora i doświadczenia w pracy ze świeżą tkanką siatkówki, czaszę siatkówki można pociąć w celu uzyskania od 3 do 5 odrębnych sekcji. - Użyj wycinaka do biopsji o średnicy 1 mm, aby wyciąć jeden dysk siatkówki z każdej sekcji spłaszczonej czaszy siatkówki.
UWAGA: Należy zadbać o to, aby dyski siatkówki były wycinane w równej odległości od główki nerwu wzrokowego. - Użyj pęsety, aby przenieść wcześniej powlekone wkładki siatkowe do sekcyjnej szalki Petriego. Za pomocą dwóch supercienkich pędzelków do rzęs umieść wycięty dysk siatkówki na wkładce siatkowej. Dysk siatkówki należy umieścić w centrum wkładki siatkowej stroną warstwy komórek zwojowych do dołu, tak aby dotykała siatki, a warstwą fotoreceptorów do góry.
UWAGA: Często niektóre komórki nabłonka pigmentowego siatkówki (RPE) pozostają przytwierdzone do fotoreceptorów; pigmentacja tych komórek może służyć jako wskaźnik orientacji wyciętego dysku siatkówki.
5. Napełnianie portów wtryskowych wkładu czujnika i kalibracja
- Wyjąć kasetę z nawodnioną płytką wkładu sensorycznego z inkubatora ustawionego na 37 °C. Zdjąć pokrywę Hydro-Booster i umieścić wkład sensoryczny z powrotem na płycie pomocniczej.
- Napełnić odpowiednie porty pożądaną objętością roztworów roboczych związków do wstrzyknięcia. Trzymać końcówkę pipety pod kątem 45 °. Wprowadzić końcówkę pipety do połowy do portu wtryskowego, opierając skos końcówki o przeciwległą ściankę portu, a następnie delikatnie wprowadzić związek do każdego portu. Należy unikać wprowadzania pęcherzyków powietrza.
- Objętość związku wprowadzanego do każdego portu wtryskowego dla konkretnego testu należy sprawdzić w instrukcji obsługi urządzenia. W eksperymentach przedstawionych w niniejszej pracy do portu A wprowadza się 68 µL roztworu roboczego Bam15 o stężeniu 50 µM (dla testu stresu mitochondrialnego) lub 68 µL roztworu roboczego Rot/AA o stężeniu 10 µM (dla testu szybkości glikolizy); do portu B wprowadza się 75 µL roztworu roboczego Rot/AA o stężeniu 10 µM (dla testu stresu mitochondrialnego) lub 75 µL roztworu roboczego 2-DG o stężeniu 500 mM (dla testu szybkości glikolizy).
- Napełnić porty wtryskowe we wszystkich studzienkach płytki, w tym w studzienkach do korekcji tła i studzienkach pustych (blank), aby zapewnić prawidłowy wtrysk. W portach studzienek do korekcji tła należy umieścić odpowiednie roztwory związków. W portach studzienek pustych zamiast roztworu związku można zastosować medium testowe.
- Umieścić napełnioną płytkę z wkładem sensorycznym, bez pokrywy, w analizatorze, aby rozpocząć kalibrację przed uruchomieniem testu. Po zakończeniu kalibracji program automatycznie zostanie wstrzymany w oczekiwaniu na wymianę płyty pomocniczej na płytkę do przechwytywania wysepek zawierającą wycinki siatkówki.
6. Załadowanie płytki do wychwytywania wysepek i rozpoczęcie analizy
- Dodaj 607 µL podłoża do analizy do każdego dołka płyty do przechwytywania wysepek
- Używając pęsety, chwyć krawędź wkładu z siatki zawierającego na górze dyski z wycinków siatkówki i wyjmij go z szalki Petriego. Delikatnie stuknij dno wkładu z siatki o chłonny ręcznik papierowy, aby usunąć nadmiar cieczy, a następnie umieść go w dołku płyty do przechwytywania wysepek. Powtarzaj ten krok, aż wszystkie wkłady z siatką z wycinkami siatkówki zostaną umieszczone w płycie do przechwytywania wysepek. Dołki do korekcji tła oraz dołki kontrolne (blanki) wypełnij pustymi wkładami z siatki.
- Używając dwóch pęset Graefe, ostrożnie i delikatnie dociśnij krawędź każdego wkładu z siatki, upewniając się, że są one stabilnie osadzone na dnie płyty do przechwytywania wysepek.
- Umieść załadowaną płytę do przechwytywania wysepek w inkubatorze w temperaturze 37 °C na 5 min w celu ogrzania.
- Po zakończeniu kalibracji wysuń płytę pomocniczą i zastąp ją płytą do przechwytywania wysepek zawierającą wycinki siatkówki, bez przykrywki.
- Wznów przebieg analizy.
7. Zakończenie przebiegu i przechowywanie danych
- Po zakończeniu pomiaru wysuń wkład czujnika oraz płytkę do wychwytywania wysepek zawierającą wycięte fragmenty siatkówki. Dane zostaną automatycznie zapisane w formacie pliku .asyr.
- Użyj odpowiedniego oprogramowania do analizy danych, aby przejrzeć i przeanalizować wyniki zgodnie z instrukcją obsługi producenta26.
- Użyj funkcji Export , aby wyeksportować dane do pliku .xslx, który można przeglądać i analizować za pomocą arkusza kalkulacyjnego.
8. Przechowywanie próbki wycinka siatkówki
- Po zakończeniu analizy wyjmij płytkę z urządzenia, wyjmij wkład z czujnikiem i ostrożnie usuń za pomocą pipety medium analityczne z każdej studzienki.
- Załóż ponownie pokrywkę i uszczelnij boki płytki za pomocą paska parafilmu.
- Przechowywać w temperaturze -80 °C.
- W celu normalizacji określ zawartość całkowitego DNA lub białka w wycinku w każdej studzience.
9. Analiza danych
- Analiza stresu mitochondrialnego
UWAGA: Pomiarowa wartość OCR (totalOCR) reprezentuje całkowite zużycie tlenu przez tkankę. Po wstrzyknięciu Bam15 (odsprzęgacza) OCR wzrasta z poziomu podstawowego (totalOCRbasal) do poziomu maksymalnego (totalOCRmax), a następnie spada po wstrzyknięciu Rot/AA. Pozostała wartość OCR po wstrzyknięciu Rot/AA (totalOCRRot/AA) reprezentuje niemitochondrialne zużycie tlenu.- Obliczyć zużycie tlenu związane z mitochondriami według wzoru:
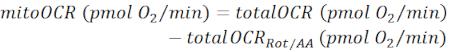 (Równ. 1)28
- Obliczyć mitochondrialną wydolność rezerwową (MRC) według wzoru:
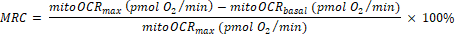 (Równ. 2)29
UWAGA: Ostatni odczyt spośród 5 pomiarów przed wstrzyknięciem Bam15 przyjmuje się jako wartość „podstawową” (dla totalOCRbasal i mitoOCRbasal). Najwyższy odczyt spośród 4 pomiarów po wstrzyknięciu Bam15 jest używany jako wartość „maksymalna” (dla totalOCRmax i mitoOCRmax). Najniższy odczyt spośród 4 pomiarów po wstrzyknięciu Rot/AA jest traktowany jako totalOCRRot/AA.
- Obliczyć zużycie tlenu związane z mitochondriami według wzoru:
- Analiza tempa glikolizy
UWAGA: Pomiarowa wartość ECAR (totalECAR) reprezentuje całkowite zakwaszenie medium w wyniku aktywności metabolicznej tkanki. Zasadniczo zakwaszenie mikrośrodowiska pozakomórkowego wynika głównie z wydalania produktu glikolizy – mleczanu. Katabolizm substratów w mitochondrialnym cyklu TCA prowadzi do produkcji CO2, który również zakwasza medium pozakomórkowe poprzez hydratację do wodorowęglanów.- Odjąć mitochondrialny wkład w zakwaszenie medium (mitoECAR) od totalECAR, aby otrzymać glycoECAR.
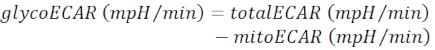 (Równ. 3)28
UWAGA: Oddychanie mitochondrialne i cykl TCA są procesami silnie powiązanymi. Produkcja CO2 przez mitochondria jest funkcją tempa fosforylacji oksydacyjnej (OXPHOS), którą można zmierzyć za pomocą mitoOCR. - Obliczyć mitoECAR według wzoru:
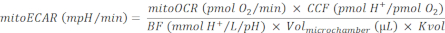 (Równ. 4)28
gdzie CCF (Współczynnik Wkładu CO2) jest empirycznie obliczoną wartością stosunku, reprezentującą wkład jonów H+ z zakwaszenia zapośredniczonego przez CO2 w stosunku do każdego zużycia O2 w procesie OXPHOS. CCF dla tego układu został uprzednio wyznaczony na 0,6028. Precyzyjny pomiar zakwaszenia medium jest determinowany przez pojemność buforową medium, czułość czujnika pH instrumentu oraz efektywną pojemność komory pomiarowej. Tutaj BF (Współczynnik Buforowy) jest parametrem eksperymentalnej pojemności buforowej in situ, reprezentującym ilość H+ lub OH- dodawaną do efektywnej komory pomiarowej w celu zmiany poziomu pH o 1 jednostkę. W przypadku stosowania dostosowanego medium do analizy, BF można wyznaczyć poprzez miareczkowanie znanych ilości kwasu do medium zgodnie z protokołem wyznaczania Współczynnika Buforowego30. Medium Seahorse DMEM o pH 7,4 użyte w tym protokole ma uprzednio wyznaczony BF wynoszący 2,60 mmol H+/L/pH. Płyta do wychwytywania wysepek użyta w tym protokole ma Volmicrochamber = 16,6 µL31. Współczynnik skalowania objętości, Kvol, jest stałą wyznaczoną empirycznie. Wartość Kvol nie jest dostępna dla płyty do wychwytywania wysepek, ale można ją obliczyć na podstawie wartości dla mikroplatek28, uwzględniając różnicę objętości w ich mikrokomorach, co daje wynik 0,41.
UWAGA: Wstrzyknięcie Rot/AA zatrzymuje oddychanie mitochondrialne i zmusza tkankę do przejścia na glikolizę w celu produkcji ATP, co prowadzi do zwiększonego wydalania mleczanu i wzrostu pomiaru ECAR. Glikolizę zatrzymuje wstrzyknięcie 2-DG, a pozostały pomiar ECAR ujawnia nieglikolityczne i niemitochondrialne zakwaszenie medium. - Obliczyć glikolityczną wydolność rezerwową (GRC) według wzoru:
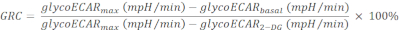 (Równ. 5)32
gdzie ostatni odczyt spośród 5 pomiarów przed wstrzyknięciem Rot/AA przyjmuje się jako wartość „podstawową” (glycoECARbasal). Najwyższy odczyt spośród 4 pomiarów po wstrzyknięciu Rot/AA jest używany jako wartość „maksymalna” (glycoECARmax). Najniższy odczyt spośród 4 pomiarów po wstrzyknięciu 2-DG jest używany jako glycoECAR2-DG.
- Odjąć mitochondrialny wkład w zakwaszenie medium (mitoECAR) od totalECAR, aby otrzymać glycoECAR.
- Normalizacja
UWAGA: Normalizacja jest niezbędna przy porównywaniu odczytów z tkanek siatkówki różnych grup wiekowych lub między próbkami typu dzikiego a patologicznymi/degeneracyjnymi, które mogą różnić się liczbą komórek.- Użyć dostępnych komercyjnie zestawów do oceny zawartości DNA w każdym wycinku siatkówki33,34.
- Alternatywnie, użyć buforu do analizy radioimmunoprecypitacyjnej (bufor RIPA) do ekstrakcji całkowitego białka z wycinka siatkówki i wykorzystać zawartość białka do normalizacji.
UWAGA: Powierzchnia siatkówki dorosłej myszy została wcześniej określona na około 20 mm2, a każda siatkówka zawiera ~6,5 miliona komórek35. Zatem każdy wycinek siatkówki o średnicy 1 mm stanowi ~1/25 pojedynczej siatkówki i zawiera ~260 tys. komórek. Można odnieść się do tych liczb podczas porównywania danych z wycinka siatkówki z danymi z innych próbek tkanek lub hodowli komórkowych,
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Dane przedstawione w niniejszym opracowaniu są reprezentatywnymi wynikami testu stresu mitochondrialnego, ukazującymi przebieg OCR (Rycina 1), oraz testu tempa glikolizy, ukazującymi przebieg OCR i ECAR (Rycina 2), które przeprowadzono z wykorzystaniem świeżo wyciętych wycinków siatkówki o średnicy 1 mm pobranych od 4-miesięcznych myszy transgenicznych Nrl-L-EGFP36 (tło C57B/L6). Myszy te wykazują ekspresję GFP specyficznie w fot...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Poniżej znajdują się szczegółowe instrukcje dotyczące wykonywania testów oddychania mitochondrialnego i aktywności glikolizy na mikropłytkach przy użyciu świeżo wypreparowanych krążków dziurkowania siatkówki ex vivo. Protokół został zoptymalizowany w celu: 1) zapewnienia użycia odpowiedniego podłoża testowego dla tkanki siatkówki ex vivo ; 2) zastosować odpowiedni rozmiar tarcz stempla siatkówki, aby uzyskać odczyty OCR i ECAR, które mieszczą się w optymalnym zakresie wykrywania maszyny; 3) Wkładki z si...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Ta praca jest wspierana przez Intramural Research Program Narodowego Instytutu Oka (ZIAEY000450 i ZIAEY000546).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 1X PBS | Thermo Fisher | 14190-144 | |
| 2-Deoxy glukoza (2-DG), 500 mM roztwór podstawowy | Sigma | D6134 | Rozpuścić w podłożu Seahorse XF DMEM, przygotować z wyprzedzeniem |
| igłę o rozmiarze 30 BD | Precision Glide | 305106 | |
| Antymycyna A, roztwór podstawowy 10 mM | Sigma | A8674 | Rozpuścić w DMSO, przygotować z wyprzedzeniem |
| Bam15, 10 mM zapas rozwiązanie | TimTec | ST056388 | Rozpuść w DMSO, przygotuj z wyprzedzeniem |
| Dziurkacz do biopsji, 1 mm | Integra Miltex | 33-31AA | |
| Cell-Tak | Corning Nauki Przyrodnicze | CB40240 | |
| uduszenia CO2 | |||
| Kleszcze preparacyjne-Dumont #5 | Fine Science Tools | 11251-10 | |
| Preparacja końcówki kleszcze-Dumont #7 | Fine Science Tools | 11274-20 | Zakrzywiona końcówka |
| Mikroskop | |||
| DMSO | Sigma | D2438 | |
| Kleszcze Graefe | Fine Science Tools | 11051-10 | Zakrzywione, ząbkowane końcówki |
| Mikronożyczki | Fine Science Tools | 15004-08 | Zakrzywiona końcówka |
| Roztwór NaOH, 1 M | Sigma-Aldrich | S8263 | Roztwór wodny, przygotuj z wyprzedzeniem |
| Rotenon, 10 mM roztwór podstawowy | Sigma | R8875 | Rozpuścić w DMSO, przygotować z wyprzedzeniem |
| Pożywka kalibracyjna Seahorse | Agilent | 100840-000 | |
| Seahorse XF 1.0 M glukoza | Agilent | 103577-100 | |
| Seahorse XF 100 mM pirogronian | Agilent | 103578-100 | |
| Seahorse XF 200 mM Glutamina | Agilent | 103579-100 | |
| Seahorse XF DMEM podłoże | Agilent | 103575-100 | pH 7,4, z 5 mM HEPES |
| Seahorse XFe24 Wychwytywanie wysepek FluxPak | Agilent | 103518-100 | Zawierający wkład z czujnikiem i mikropłytkę do wychwytywania wychwytu |
| Seahorse XFe24, Analizator strumienia pozakomórkowego | Agilent | ||
| Roztwór wodorowęglanu sodu, 0,1 M | Sigma-Aldrich | S5761 | Roztwór wodny, przygotuj z wyprzedzeniem |
| Szczoteczka do rzęs Superfine | Ted Pella | 113 |
Bibliografia
- Nunnari, J., Suomalainen, A. Mitochondria: In sickness and in health. Cell. 148 (6), 1145-1159 (2012).
- Wong-Riley, M. T. Energy metabolism of the visual system. Eye Brain. 2, 99-116 (2010).
- Yu, D. Y., Cringle, S. J. Oxygen distribution and consumption within the retina in vascularised and avascular retinas and in animal models of retinal disease. Progress in Retina and Eye Research. 20, 175-208 (2001).
- Barot, M., Gokulgandhi, M. R., Mitra, A. K. Mitochondrial dysfunction in retinal diseases. Current Eye Research. 36 (12), 1069-1077 (2011).
- Joyal, J. S., Gantner, M. L., Smith, L. E. H. Retinal energy demands control vascular supply of the retina in development and disease: The role of neuronal lipid and glucose metabolism. Progress in Retina and Eye Research. 64, 131-156 (2018).
- Hurley, J. B., Lindsay, K. J., Du, J. Glucose, lactate, and shuttling of metabolites in vertebrate retinas. Journal of Neuroscience Research. 93 (7), 1079-1092 (2015).
- Haydinger, C. D., Kittipassorn, T., Peet, D. J. Power to see-Drivers of aerobic glycolysis in the mammalian retina: A review. Clinical and Experimental Ophthalmology. 48 (8), 1057-1071 (2020).
- Wright, A. F., et al. Lifespan and mitochondrial control of neurodegeneration. Nature Genetics. 36, 1153-1158 (2004).
- Bossy-Wetzel, E., Schwarzenbacher, R., Lipton, S. A. Molecular pathways to neurodegeneration. Nature Medicine. 10, Suppl 2-9 (2004).
- Leveillard, T., Philp, N. J., Sennlaub, F. Is retinal metabolic dysfunction at the center of the pathogenesis of age-related macular degeneration. International Journal of Molecular Sciences. 20 (3), (2019).
- Vlachantoni, D., et al. Evidence of severe mitochondrial oxidative stress and a protective effect of low oxygen in mouse models of inherited photoreceptor degeneration. Human Molecular Genetics. 20 (2), 322-335 (2011).
- Grenell, A., et al. Loss of MPC1 reprograms retinal metabolism to impair visual function. Proceedings of the National Academy of Science U. S. A. 116 (9), 3530-3535 (2019).
- Wright, A. F., Chakarova, C. F., Abd El-Aziz, M. M., Bhattacharya, S. S. Photoreceptor degeneration: genetic and mechanistic dissection of a complex trait. Nature Reviews in Genetics. 11 (4), 273-284 (2010).
- Jarrett, S. G., Boulton, M. E. Consequences of oxidative stress in age-related macular degeneration. Molecular Aspects of Medicine. 33 (4), 399-417 (2012).
- Rozing, M., et al. Age-related macular degeneration: A two-level model hypothesis. Progress in Retina Eye Research. 76, 100825(2020).
- Yokosako, K., et al. Glycolysis in patients with age-related macular degeneration. Open Ophthalmology Journal. 8, 39-47 (2014).
- Bek, T. Mitochondrial dysfunction and diabetic retinopathy. Mitochondrion. 36, 4-6 (2017).
- Yumnamcha, T., Guerra, M., Singh, L. P., Ibrahim, A. S. Metabolic dysregulation and neurovascular dysfunction in diabetic retinopathy. Antioxidants. 9 (12), Basel. (2020).
- Futterman, S., Kinoshita, J. H. Metabolism of the retina. I. Respiration of cattle retina. Journal of Biological Chemistry. 234 (4), 723-726 (1959).
- Linsenmeier, R. A. Effects of light and darkness on oxygen distribution and consumption in the cat retina. Journal of General Physiology. 88 (4), 521-542 (1986).
- Medrano, C. J., Fox, D. A. Oxygen consumption in the rat outer and inner retina: light- and pharmacologically-induced inhibition. Experiments in Eye Research. 61 (3), 273-284 (1995).
- Kooragayala, K. Quantification of oxygen consumption in retina ex vivo demonstrates limited reserve capacity of photoreceptor mitochondria. Investigative Ophthalmology and Visual Science. 56 (13), 8428-8436 (2015).
- Adlakha, Y. K., Swaroop, A. Determination of mitochondrial oxygen consumption in the retina ex vivo: applications for retinal disease. Methods in Molecular Biology. 1753, 167-177 (2018).
- Agilent Mitocondrial stress test user guide. , Available from: https://www.agilent.com/cs/library/usermanuals/public/XF_Cell_Mito_Stress_Test_Kit_User_Guide.pdf (2021).
- Agilent Glycolytic rate assay user guide. , Available from: https://www.agilent.com/cs/library/usermanuals/public/103344-400.pdf (2021).
- Agilent wave 2.6 user guide. , Available from: https://www.agilent.com/cs/library/usermanuals/public/S7894-10000_Rev_C_Wave_2_6_User_Guide.pdf (2021).
- AVMA Guidelines for the Euthanasia of Animals. , Available from: https://www.avma.org/sites/default/files/2020-01/2020-Euthanasia-Final-1-17-20.pdf (2021).
- Improving Quantification of Cellular Glycolytic Rate Using Agilent Seahorse XF Technology. , Available from: https://www.agilent.com/cs/library/whitepaper/public/whitepaper-improve-quantification-of-cellular-glycolytic-rate-cell-analysis-5991-7894en-agilent.pdf (2021).
- Report Generator User Guide Agilent Seahorse XF Cell Mito Stress Test. , Available from: https://www.agilent.com/cs/library/usermanuals/public/Report_Generator_User_Guide_Seahorse_XF_Cell_Mito_Stress_Test_Single_File.pdf (2021).
- Agilent Seahorse XF Buffer Factor Protocol. , Available from: https://www.agilent.com/cs/library/usermanuals/public/usermanual-xf-buffer-factor-protocol-cell-analysis-S7888-10010en-agilent.pdf (2021).
- Agilent sensor cartridges and cell culture microplates. , Available from: https://www.agilent.com/cs/library/brochures/5991-8657EN_seahorse_plastics_brochure.pdf (2021).
- Agilent Seahorse XF Glycolysis Stress Test Kit User Guide. , Available from: https://www.agilent.com/cs/library/usermanuals/public/XF_Glycolysis_Stress_Test_Kit_User_Guide.pdf (2021).
- Fan, Y. Y. A bioassay to measure energy metabolism in mouse colonic crypts, organoids, and sorted stem cells. American Journal of Physiology-Gastrointestinal and Liver Physiology. 309, 1-9 (2015).
- Huang, L., et al. Ductal pancreatic cancer modeling and drug screening using human pluripotent stem cell- and patient-derived tumor organoids. Nature Medicine. 21 (11), 1364-1371 (2015).
- Jeon, C. J., Strettoi, E., Masland, R. H. The major cell populations of the mouse retina. Journal of Neuroscience. 18 (21), 8936-8946 (1998).
- Akimoto, M., et al. Targeting of GFP to newborn rods by Nrl promoter and temporal expression profiling of flow-sorted photoreceptors. Proceedings of the National Academy of Science U. S. A. 103 (10), 3890-3895 (2006).
- Kenwood, B. M., et al. Identification of a novel mitochondrial uncoupler that does not depolarize the plasma membrane. Molecular Metabolism. 3 (2), 114-123 (2014).
- Corso-Diaz, X., et al. Genome-wide profiling identifies DNA methylation signatures of aging in rod photoreceptors associated with alterations in energy metabolism. Cell Reports. 31 (3), 107525(2020).
- Berkowitz, B. A., et al. Mitochondrial respiration in outer retina contributes to light-evoked increase in hydration in vivo. Investigative Ophthalmology and Visual Science. 59 (15), 5957-5964 (2018).
- Joyal, J. S., et al. Retinal lipid and glucose metabolism dictates angiogenesis through the lipid sensor Ffar1. Nature Medicine. 22 (4), 439-445 (2016).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
