Obecny protokół przedstawia szybką, efektywną i delikatną metodę izolowania pojedynczych komórek odpowiednich do analizy sekwencyjnego RNA pojedynczej komórki z ciągle rosnących siekaczy, mysich zębów trzonowych i ludzkich zębów.
Artykuł metodologiczny
Szybka izolacja pojedynczych komórek z zębów myszy i ludzi
W tym artykule
Podsumowanie
Streszczenie
Mysie i ludzkie zęby stanowią trudne organy do szybkiej i efektywnej izolacji komórek do transkryptomii pojedynczej komórki lub innych zastosowań. Tkanka miazgi zębowej, bogata w macierz zewnątrzkomórkową, wymaga długiego i żmudnego procesu dysocjacji, który zwykle wykracza poza rozsądny czas dla transkryptomiki pojedynczej komórki. Aby uniknąć sztucznych zmian w ekspresji genów, należy zminimalizować czas, jaki upłynął od eutanazji zwierzęcia do analizy pojedynczych komórek. W pracy przedstawiono szybki protokół umożliwiający uzyskanie zawiesiny jednokomórkowej z zębów myszy i człowieka w doskonałej jakości odpowiedniej do scRNA-seq (sekwencjonowanie jednokomórkowego RNA). Protokół ten opiera się na przyspieszonych etapach izolacji tkanek, trawieniu enzymatycznym, a następnie przygotowaniu końcowej zawiesiny pojedynczej komórki. Umożliwia to szybkie i delikatne przetwarzanie tkanek i pozwala na użycie większej liczby próbek zwierzęcych lub ludzkich w celu uzyskania zawiesin komórkowych o wysokiej żywotności i minimalnych zmianach transkrypcyjnych. Oczekuje się, że protokół ten może pomóc naukowcom zainteresowanym wykonaniem sekwencjonowania scRNA nie tylko na zębach myszy lub człowieka, ale także na innych tkankach bogatych w macierz zewnątrzkomórkową, w tym chrząstkach, gęstej tkance łącznej i skórze właściwej.
Wprowadzenie
Sekwencjonowanie RNA pojedynczej komórki to potężne narzędzie do rozszyfrowywania in vivo struktury populacji komórek, hierarchii, interakcji i homeostazy1,2. Jednak jej wyniki w dużym stopniu zależą od pierwszego kroku tej zaawansowanej analizy - przygotowania jednokomórkowej zawiesiny o doskonałej jakości ze złożonej, dobrze zorganizowanej tkanki. Obejmuje to utrzymywanie komórek przy życiu i zapobieganie niepożądanym, sztucznym zmianom w profilach ekspresji genów komórek3,4. Takie zmiany mogą prowadzić do niedokładnej charakterystyki struktury populacji i błędnej interpretacji zebranych danych.
Opracowano specjalne protokoły do izolacji z szerokiej gamy tkanek5,6,7,8. Zwykle wykorzystują dysocjację mechaniczną w połączeniu z dalszą inkubacją z różnymi enzymami proteolitycznymi. Zazwyczaj należą do nich trypsyna, kolagenazy, dypasy, papaina6,7,8,9 lub dostępne na rynku mieszaniny enzymów, takie jak Accutase, Tryple itp.5. Najbardziej krytycznym elementem wpływającym na jakość transkryptomu jest trawienie enzymatyczne. Wykazano, że długotrwała inkubacja z enzymami w temperaturze 37 °C wpływa na ekspresję genów i powoduje regulację w górę wielu genów związanych ze stresem10,11,12,13. Innym krytycznym parametrem procesu izolacji jest jego całkowita długość, ponieważ wykazano, że transkryptomy komórek zmieniają się po niedokrwieniu tkanki14. Protokół ten przedstawia skuteczny protokół delikatnej izolacji pojedynczych komórek z zębów myszy i człowieka, szybszy niż inne, wcześniej stosowane protokoły izolacji komórek ze złożonych tkanek5,6,9,11,13,15,16.
Ten protokół pokazuje, jak szybko wypreparować miękką tkankę z twardego zęba i przygotować zawiesinę jednokomórkową odpowiednią do sekwencjonowania scRNA. Metoda ta wykorzystuje tylko jeden etap wirowania i minimalizuje efekt niepożądanych zmian transkrypcyjnych poprzez skrócenie czasu obsługi i trawienia tkanek oraz utrzymanie tkanki i komórek w temperaturze 4 °C przez większość czasu. Procedura przedstawia na przykład izolację komórek z siekaczy, zębów trzonowych i ludzkich zębów mądrości, ale przede wszystkim powinna działać w przypadku innych zębów w różnych organizmach. Kompletny protokół jest schematycznie zwizualizowany w Rysunek 1. Protokół ten został ostatnio wykorzystany do wygenerowania atlasu typów komórek zębowych uzyskanego z zębów myszy i człowieka1.
Protokół
Wszystkie eksperymenty na zwierzętach zostały przeprowadzone zgodnie z międzynarodowymi i lokalnymi przepisami oraz zatwierdzone przez Ministerstwo Edukacji, Młodzieży i Sportu, Czechy (MSMT-8360/2019-2; MSMT-9231/2020-2; MSMT-272/2020-3). Protokół ten został przetestowany zarówno na samcach, jak i samicach myszy C57BL/6 i CD-1 typu dzikiego oraz na genetycznie zmodyfikowanych myszach Sox10::iCreERT217 (w połączeniu z różnymi systemami reporterowymi) na tle C57BL/6. Eksperymenty na próbkach ludzkich przeprowadzono za zgodą Komisji ds. Etyki Wydziału Medycznego Uniwersytetu Masaryka w Brnie i Szpitala Uniwersyteckiego św. Anny w Brnie w Czechach.
1. Przygotowanie eksperymentu i roztworów
- Konfiguracja przyrządu
- Schłodzić wirówkę do temperatury 4 °C.
- Podgrzać komorę inkubacyjną do temperatury 37 °C.
- Uruchom maszynę do sortowania komórek aktywowanych fluorescencją (FACS) i ustaw wszystkie temperatury sortownika (w tym uchwyt probówki zbiorczej) na 4 °C. Przeprowadź kontrolę jakości urządzenia, ustaw opóźnienie upuszczania.
- Ustaw wstępną strategię bramkowania i wykonaj sortowanie testowe.
UWAGA: W przypadku korzystania z FACS należy używać dyszy 100 μm.
- Przygotuj roztwory (kroki 1.2.1-1.2.3).
- Roztwór do mycia: Przygotuj świeży 2% FBS (płodowa surowica bydlęca) w HBSS (zrównoważony roztwór soli Hanksa).
- Mieszanina do wytrawiania: Przygotować świeżą kolagenazę P (3 U/ml) całkowicie rozpuszczoną w HBSS.
- Opcjonalnie: Przygotuj świeży HBSS + BSA (0,04%) i schłodź metanol klasy analitycznej w zamrażarce o temperaturze -20 °C do przechowywania zawiesiny jednokomórkowej w temperaturze -80 °C.
UWAGA: Krok 1 należy wykonać przed rozpoczęciem eksperymentu. Skład zastosowanych roztworów podsumowano w tabeli uzupełniającej 1.
2. Przygotowanie zwierzęcia doświadczalnego i ludzkiego zęba
- Przygotuj zwierzęta doświadczalne (mysz).
- Poddaj mysz eutanazji zgodnie z lokalnymi przepisami, np. przez przedawkowanie środków znieczulających, jak opisano wcześniej1.
UWAGA: Przepisy dotyczące humanitarnej eutanazji zwierząt doświadczalnych różnią się lokalnie. Zawsze postępuj zgodnie z obowiązującymi lokalnymi przepisami. - Natychmiast przejdź do etapu rozwarstwiania tkanek (krok 3).
UWAGA: Jeżeli tkanki pobrane od zwierząt doświadczalnych nie mogą być natychmiast wycięte (np. z powodu przeniesienia z pomieszczenia trzymania zwierząt), należy umieścić zwierzęta doświadczalne na lodzie i przeprowadzić sekcję tkanek tak szybko, jak to możliwe. Aby uzyskać więcej komórek z miazgi trzonowców myszy, użyj młodszych (6 tygodni i mniej) zwierząt. Wraz z wiekiem zmniejsza się wielkość miazgi zębowej. Siekacze myszy w większości zachowują swoją strukturę wraz z wiekiem, dzięki czemu zwierzęta w różnym wieku mogą być wykorzystywane do preparowania tkanek.
- Poddaj mysz eutanazji zgodnie z lokalnymi przepisami, np. przez przedawkowanie środków znieczulających, jak opisano wcześniej1.
- Przygotuj ludzki ząb
UWAGA: Ludzkie zęby zostały usunięte z klinicznie istotnego powodu. Do każdej diagnozy podchodziliśmy indywidualnie, a ekstrakcję zęba zawsze wykonywał doświadczony chirurg stomatolog.- Świeżo usunięty ząb należy natychmiast umieścić w probówce o pojemności 50 ml z lodowatym HBSS i trzymać probówkę na lodzie do czasu dalszej obróbki.
UWAGA: Zaleca się stosowanie zatrzymanych zębów mądrości od pacjentów do 25-30 roku życia w celu uzyskania najwyższej wydajności komórek.
- Świeżo usunięty ząb należy natychmiast umieścić w probówce o pojemności 50 ml z lodowatym HBSS i trzymać probówkę na lodzie do czasu dalszej obróbki.
3. Sekcja tkanek
- Trzymaj zwierzę doświadczalne za głową, patrząc na brzuszną stronę jego głowy tak, aby ogon był skierowany na zewnątrz.
- Za pomocą małych, ostrych nożyczek szybko usuń skórę z żuchwy, aby odsłonić łuk żuchwy, tkankę miękką między każdą połową żuchwy i sąsiednie mięśnie twarzy.
- Wykonaj głębokie nacięcie z każdej strony żuchwy, najpierw przez żwacz wzdłuż policzkowej strony żuchwy aż do stawu skroniowo-żuchwowego, a następnie wzdłuż wewnętrznej części każdej połowy żuchwy przez podstawę jamy ustnej (patrz rysunek uzupełniający 1).
- Przetnij wszystkie mięśnie i więzadła wzdłuż żuchwy aż do stawu skroniowo-żuchwowego zarówno z zewnątrz, jak i wewnątrz jamy ustnej.
UWAGA: Unikaj przecinania kości. Może to spowodować uszkodzenie najbardziej wierzchołkowej części siekacza. - Chwyć żuchwę za pomocą pęsety ze zgiętą końcówką i wyjmij ją. Następnie podziel rozciętą żuchwę na dwie połowy nożyczkami, przecinając spojenie żuchwy (patrz rysunek uzupełniający 1).
- Użyj przemysłowej chusteczki o niskiej ilości kłaczków, aby przetarć pozostałą tkankę miękką z każdej połowy żuchwy. Po oczyszczeniu obu części żuchwy umieść je na wcześniej przygotowanej szalce Petriego z lodowatym HBSS.
UWAGA: Od tego momentu pracuj na lodzie. Dalsza sekcja siekaczy i zębów trzonowych myszy odbywa się pod mikroskopem stereoskopowym na czarnym tle. - Siekacze żuchwy myszy
- W celu wypreparowania siekaczy żuchwy należy usunąć grzbiet wyrostka zębodołowego ze wszystkimi trzema zębami trzonowymi i poprzecznie rozbić łuk żuchwy w miejscu odpowiadającym położeniu między pierwszym a drugim zębem trzonowym.
UWAGA: Do wykonania tego kroku używa się ostrza ostrego skalpela nr 11 i pęsety (patrz Tabela materiałów). - Ostrożnie wyciągnij siekacz z reszty zębodołu.
UWAGA: Jeśli się powiedzie, usunięty siekacz będzie zawierał nienaruszone części wierzchołkowe, w tym tkankę nabłonkową z pełnymi pętlami szyjki macicy. - W razie potrzeby usuń pozostałe fragmenty kości nadal przyczepione do siekacza za pomocą pęsety i skalpela.
- Umieść wypreparowane siekacze w świeżym, lodowatym HBSS i wypreparuj interesującą tkankę: pętlę szyjki macicy, miazgę zębową lub inne części zęba.
- Umieść wypreparowaną tkankę miękką w kropli świeżego, lodowatego HBSS na środku 10-centymetrowej szalki Petriego. Trzymaj na lodzie.
- W celu wypreparowania siekaczy żuchwy należy usunąć grzbiet wyrostka zębodołowego ze wszystkimi trzema zębami trzonowymi i poprzecznie rozbić łuk żuchwy w miejscu odpowiadającym położeniu między pierwszym a drugim zębem trzonowym.
- Zęby trzonowe żuchwy myszy
- W celu wypreparowania zębów trzonowych żuchwy należy całkowicie usunąć grzbiet wyrostka zębodołowego z reszty żuchwy za pomocą ostrza skalpela.
- Przenieś wypreparowany grzebień wyrostka zębodołowego do świeżego, lodowatego HBSS na szalce Petriego i ostrożnie usuń wszystkie pozostałe fragmenty kości wyrostka zębodołowego przyczepione do korzeni .
- Wypreparowane zęby trzonowe bez kości wyrostka zębodołowego umieścić w świeżym, lodowatym HBSS. Aby odsłonić miazgę, zacznij usuwać części zębiny od strony wierzchołkowej za pomocą cienkiej, ostrej końcówki pęsety, aż dotrzesz do jamy miazgi.
- Po dotarciu do jamy miazgi ostrożnie wypreparuj miazgę zębową za pomocą pęsety z ostrą końcówką i umieść miękką tkankę miazgi zębowej w kropli świeżej, lodowatej HBSS na środku 10-centymetrowej szalki Petriego trzymanej na lodzie.
UWAGA: Ponieważ miazga trzonowa myszy jest bardzo mała, należy odpowiednio dostosować powiększenie w mikroskopie stereoskopowym.
- Ludzki ząb
- Ponownie umyj ludzki ząb w lodowatym HBSS, aby usunąć pozostałą krew.
- Umieść ząb w trzech sterylnych plastikowych torbach o grubych ściankach i użyj żeliwnego imadła inżynierskiego, aby złamać ząb. Używaj szczęk imadła o płaskiej powierzchni, aby uniknąć penetracji worków.
- Powoli dokręcaj imadło, aż usłyszysz trzask zęba; wyjmij je z torebek i umieść w świeżym, lodowatym HBSS na szalce Petriego.
- Za pomocą dwóch pęset wyjmij miazgę zębową, oczyść ją ze wszystkich resztek twardej tkanki i umieść w jednej kropli lodowatego HBSS na środku 10-centymetrowej szalki Petriego trzymanej na lodzie.
UWAGA: Tkanka ludzka może być potencjalnie zakaźna. Podczas pracy z tkanką ludzką należy używać sprzętu ochronnego, aby uniknąć bezpośredniego kontaktu z tkanką.
4. Przygotowanie zawiesiny jednokomórkowej
- Przygotować probówkę o pojemności 15 ml z 2,5 ml mieszanki wytrawiającej złożonej z kolagenazy P (3 U/ml) całkowicie rozpuszczonej w HBSS. Roztwór należy przechowywać na lodzie do czasu użycia.
UWAGA: Zawsze używaj świeżo przygotowanej kolagenazy P; Nie zamrażaj podwielokrotności. Aktywność kolagenazy P różni się w zależności od partii. Sprawdź aktywność swojej partii przed rozcieńczeniem. Kolagenaza P jest aktywowana przez wapń, którego ilość jest już wystarczająca w liofilizowanym proszku. Dlatego nie ma potrzeby wzbogacania mieszanki enzymatycznej w wapń. Kolagenaza P nie jest inaktywowana przez FBS, ale może być inaktywowana przez czynniki chelatujące (np. Etylenodiaminotetraoctowy - EDTA). Zatrzymanie procesu dysocjacji zapewnia rozcieńczenie kolagenazy P w roztworze Wash (2% FBS w HBSS). Wykazano, że dodanie FBS zwiększa żywotność komórek i ostateczną liczbę komórek po sortowaniu18. - Za pomocą okrągłego ostrza skalpela nr 10 pokrój tkankę we wszystkich kierunkach na jak najmniejsze kawałki. Ponownie zagreguj kawałki tkanki w środku kropli i wielokrotnie tnij agregaty tkanek za pomocą okrągłego ostrza skalpela (nr 10). Powtórz ten proces kilka razy, aż materiał zostanie wystarczająco zmielony.
- Przenieść rozdrobnione kawałki tkanki za pomocą końcówki pipety o pojemności 1 ml do przygotowanej mieszanki do wytrawiania.
UWAGA: W przypadku jednoczesnego przetwarzania większej liczby zwierząt, należy podzielić tkankę na kilka probówek za pomocą kolagenazy P. Maksymalna ilość na probówkę to miazga uzyskana z około 10 siekaczy myszy. W przypadku zębów trzonowych, gdzie miazga jest znacznie mniejsza, liczba przetwarzanych mas może być odpowiednio zwiększona. W przypadku korzystania z ludzkich zębów należy użyć maksymalnie 2-3 miazgi na rurkę, w zależności od wielkości miazgi. - Umieścić probówkę w inkubatorze z wytrząsarką nagrzanym do temperatury 37 °C. Przechyl rurkę wewnątrz wytrząsarki pod kątem 60° i ustaw prędkość na 150-200 obr./min, aby zapewnić stałe ruchy zawieszenia wewnątrz rury.
- Energicznie rozcieraj zawiesinę co 3-4 minuty za pomocą końcówki pipety o pojemności 1 ml, aby rozdrobnić wszystkie grudki.
UWAGA: Z czasem grudki staną się mniejsze i bardziej miękkie, aż prawie znikną. - W sumie inkubować przez 15-20 minut. Pod koniec inkubacji rozcierać po raz ostatni, a następnie powoli dodawać lodowaty roztwór do przemywania do końcowej objętości 12 ml.
- Usunąć pozostałe grudki lub kawałki zwapniałej tkanki, filtrując zawiesinę za pomocą sitka do komórek o wielkości 50 μm.
- Pobrać 10-20 μl przefiltrowanej zawiesiny komórkowej i policzyć komórki podczas wirowania za pomocą komory do liczenia komórek (hemocytometru). Wirować przez 5 minut przy 300 x g w temperaturze 4 °C. Usunąć supernatant za pomocą pipety serologicznej o pojemności 10 ml.
UWAGA: Jeśli liczba komórek jest ograniczona, których nie można policzyć w rozcieńczonej zawiesinie, pomiń liczenie komórek i użyj wszystkich komórek do dalszego przetwarzania. - Opcjonalnie: Przejdź do mocowania i przechowywania21.
- Ponownie zawiesić granulki (do 107 komórek) w 100 uL HBSS + BSA (0,04%).
- Dodać 400 μl schłodzonego metanolu i powoli mieszać.
- Inkubować zawiesinę komórkową przez 15 minut na lodzie.
- Przechowywać w temperaturze -80 °C do czasu przetworzenia (nie dłużej niż 1 miesiąc).
- Zawiesić osad w roztworze do mycia. Celuj w 700-1200 komórek/μl roztworu do mycia.
- Trzymaj probówkę na lodzie do czasu dalszej obróbki.
UWAGA: W razie potrzeby wykonać utrwalanie i przechowywanie w temperaturze -80 °C. Zaleca się jednak natychmiastowe przetworzenie zawiesiny komórkowej w celu sekwencjonowania scRNA. Dalsze kroki będą zależeć od protokołu sekwencyjnego RNA pojedynczej komórki. Gdy protokół scRNA-seq wykorzystuje system mikroprzepływowy (niektóre firmy zajmujące się sekwencją sc-RNA-seq to robią), załaduj komórki zgodnie z wytycznymi producenta bezpośrednio lub po posortowaniu komórek. - W przypadku FACS przejdź do kroku 5.
5. Sortowanie komórek aktywowane fluorescencją (FACS)
- Przed sortowaniem przygotuj przyrząd do sortowania komórek.
- Schłodzić cały system do 4 °C, przeprowadzić kontrolę jakości przyrządu, ustawić opóźnienie opadania i napięcie płyt odchylających. Umieść probówki zbiorcze w uchwycie probówki zbiorczej.
UWAGA: Aby uniknąć dodatkowych etapów wirowania powodujących nieuniknioną utratę komórek, posortuj komórki do mikroprobówki (1.5 ml) z niewielką ilością (25-50 μl) roztworu do mycia.
- Schłodzić cały system do 4 °C, przeprowadzić kontrolę jakości przyrządu, ustawić opóźnienie opadania i napięcie płyt odchylających. Umieść probówki zbiorcze w uchwycie probówki zbiorczej.
- Opcjonalnie: wykonać barwienie żywotności przed FACS.
- Dodać jodek propidyny do zawiesiny komórkowej przed FACS do końcowego stężenia 0,5 μg/ml i inkubować przez 15 minut w temperaturze 4 °C.
- Załaduj próbkę do sortera komórek. Ustaw ścisłą strategię bramkowania, aby usunąć resztki komórek, dublety i martwe komórki. Posortuj komórki do przygotowanej probówki lub płytek wielodołkowych. Przykład strategii bramkowania jest pokazany w Rysunek 2.
UWAGA: Aby zminimalizować liczbę etapów manipulacji i przyspieszyć działanie protokołu, zaleca się stosowanie ścisłej strategii bramkowania (sugerowanej w Rysunek 2) zamiast barwienia żywotności. Aby oddzielić komórki odpornościowe od izolowanej populacji, można przeprowadzić barwienie przeciwciałami CD45. W tym celu należy ponownie zawiesić zawiesinę komórek w 100 μl roztworu barwiącego (PBS + 2% FBS + przeciwciało sprzężone anty-CD45-APC w rozcieńczeniu 1/100). Inkubować przez 15 minut na lodzie chronionym przed światłem i bezpośrednio wykonać FACS.
Wyniki
Przykładową izolację pojedynczych komórek przeprowadzono z dwóch siekaczy żuchwy jednego 6-tygodniowego samca myszy C57BL/6. Zgodnie z niniejszym protokołem przygotowano zawiesinę pojedynczych komórek, a następnie przeprowadzono sekwencjonowanie pojedynczych komórek. Przygotowaną zawiesinę pojedynczych komórek przeanalizowano i posortowano za pomocą FACS (Rysunek 2). W pierwszej kolejności zastosowano wykresy FSC-A (rozproszenie przednie, pole) i SSC-A (rozproszenie boczne, pole) oraz odpowiednią strategię bramkowania w celu wyłonienia populacji o oczekiwanej wielkości i ziarnistości, aby odfiltrować debris komórkowy oraz dublety lub agregaty komórek (Rysunek 2A). Wyselekcjonowaną populację (P1), stanowiącą 38% wszystkich zdarzeń, wykorzystano w dalszym etapie, stosując parametry FSC-A i FSC-H (rozproszenie przednie, wysokość) w celu usunięcia pozostałych dubletów komórek (Rysunek 2B). Populacja bez dubletów komórek (P2), stanowiąca 95% P1, może być następnie wykorzystana do scRNA-seq. Alternatywnie można zastosować dodatkowe bramkowanie w celu wyłonienia interesującej populacji (np. na podstawie ekspresji białek fluorescencyjnych lub barwienia żywe/martwe). Aby sprawdzić liczbę żywych i martwych komórek w końcowej zawiesinie, wykonano barwienie PI (jodek propidyny) (Rysunek 2C). Populacja P3 zawierająca komórki PI- (żywe) stanowiła 98,4% populacji macierzystej P2 oraz 35,5% wszystkich zdarzeń. Całkowita liczba odfiltrowanych, martwych komórek (PI+) wyniosła 1887.
Końcowa liczba komórek uzyskanych bez barwienia żywotności, odpowiednich do RNA-seq (P2), wyniosła 118 199 komórek z miazgi dwóch siekaczy mysich. Oznacza to liczbę prawie 60 000 żywych komórek z jednego siekacza dolnego.
Aby określić liczbę komórek odpornościowych w końcowej zawiesinie jednokomórkowej, zastosowano dwa podejścia. Po pierwsze, wykorzystano barwienie przeciwciałem CD45 i następującą po nim analizę FACS. Jako metodę komplementarną przeanalizowano całkowitą liczbę komórek odpornościowych (CD45+) w danych scRNA-seq. Analiza FACS wykazała 14,44% komórek CD45+ (13,20% żywych i 1,24% martwych) (Rycina 3A). Analiza danych scRNA-seq wykazała 10,90% komórek wykazujących ekspresję CD45 (Rycina 3B). Spadek liczby komórek CD45+ w danych scRNA-seq może być spowodowany dodatkowym ustaleniem progów podczas analizy scRNA-seq.
Te reprezentatywne dane na przykładzie siekacza mysiego pokazują, że zastosowany protokół w połączeniu ze ścisłą strategią bramkowania jest wydajny w pozyskiwaniu dużej liczby komórek z jednego zęba myszy bez konieczności dodatkowego stosowania barwienia żywotności. Odsetek komórek odpornościowych (CD45+) był niewielki (13,2%). Co więcej, wcześniej wykazano, że komórki odpornościowe są niezbędne do utrzymania homeostazy zęba, zatem ich usuwanie z analizy scRNA-seq podczas FACS byłoby w niektórych zastosowaniach kontrproduktywne.

Rysunek 1: Schematyczna reprezentacja protokołu. Przedstawiono poszczególne etapy, w tym warunki temperaturowe i przewidywany czas, niezbędne do przygotowania zawiesiny pojedynczych komórek z zębów myszy i człowieka. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.

Rycina 2: Przykład strategii bramkowania. Do wyznaczenia bramki P1 wykorzystano bramkowanie FSC-A i SSC-A, co pozwoliło na wyodrębnienie populacji komórek o oczekiwanej wielkości i ziarnistości oraz odfiltrowanie debris komórkowych i macierzy zewnątrzkomórkowej oraz większości dużych zdarzeń (A). Następnie populację P1 naniesiono na wykres FSC-H i FCS-A, aby odfiltrować dublety komórkowe (B). W tak uzyskanej populacji P2 przeanalizowano obecność martwych komórek za pomocą jodku propidium (C). Liczbę zdarzeń/komórek w poszczególnych bramkach przedstawiono w (D). (FSC-A – forward scatter, area; SSC-A – side scatter, area; FSC-H – forward scatter, height; PI – jodek propidium). Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
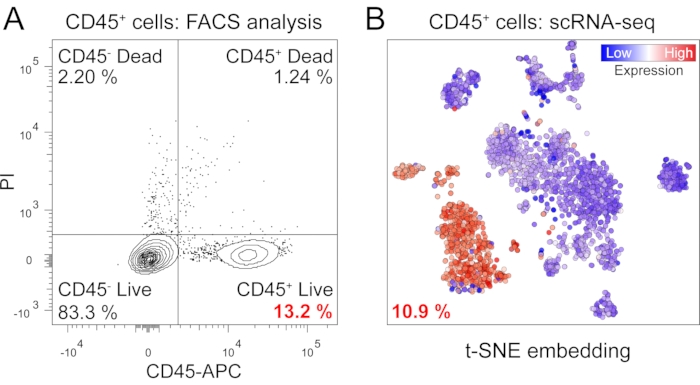
Rysunek 3: Ilościowe określenie komórek odpornościowych. Ilościowe określenie komórek odpornościowych przeprowadzono za pomocą analizy FACS komórek barwionych przeciwciałem anty-CD45 oraz analizy Live/Dead z wykorzystaniem barwienia jodkiem propidium (A). Dalszą kwantyfikację komórek odpornościowych przeprowadzono podczas analizy scRNA-seq (B). (CD45-APC – przeciwciało anty-CD45 sprzężone z allofikocyjaniną; PI – jodek propidium; t-SNE – t-distributed stochastic neighbor embedding). Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
Rysunek uzupełniający 1: Przegląd procesu sekcji żuchwy. Linie przerywane ilustrują sugerowane miejsca nacięć. TMJ – staw skroniowo-żuchwowy, m. masseter – mięsień żwacze. Kliknij tutaj, aby pobrać ten plik.
Tabela uzupełniająca 1: Skład roztworów użytych w badaniu. Kliknij tutaj, aby pobrać tę tabelę.
Dyskusja
Badanie zębów i kości na poziomie komórkowym lub molekularnym jest na ogół trudne, ponieważ komórki tworzące te tkanki są otoczone różnymi rodzajami twardych matryc19. Jednym z głównych celów przeprowadzania sekwencjonowania jednokomórkowego RNA na tkance zęba jest konieczność szybkiego uzyskania interesujących komórek bez sztucznych zmian w ich transkryptomach. Aby to osiągnąć, opracowano wysoce wydajny protokół odpowiedni do izolowania komórek z miazgi zębów myszy i ludzi, który pozwala na szybkie generowanie zawiesin jednokomórkowych do wszystkich zastosowań transkryptomicznych. Zostało to zapewnione dzięki szybkiej izolacji tkanek, zminimalizowaniu etapów manipulacji tkankami i komórkami oraz usprawnieniu trawienia mechanicznego i enzymatycznego.
Najważniejszymi etapami tego protokołu są szybkie przetwarzanie tkanek i odpowiednie przygotowanie zawiesiny jednokomórkowej 8,9. Podejście ręczne stosuje się w celu uzyskania miazgi zębowej bez użycia wiertła dentystycznego lub innych urządzeń wytwarzających ciepło. Przegrzanie może spowodować sztuczną ekspresję białek szoku cieplnego i innych genów, co ostatecznie prowadzi do tego, że analizowane wzorce ekspresji genów są niereprezentatywne dla oryginalnej tkanki20. Ręczne pobieranie tkanek może być trudnym krokiem, który prawdopodobnie będzie wymagał wcześniejszego przeszkolenia. Miąższ jest następnie krojony na małe kawałki i trawiony enzymatycznie w temperaturze 37 °C. Z wyjątkiem 15-20 minut trawienia enzymatycznego, cały protokół odbywa się w temperaturze 4 °C. Przetwarzanie tkanek, a zwłaszcza trawienie enzymatyczne, zostały zminimalizowane do możliwie najkrótszego czasu, ponieważ bardziej długotrwała inkubacja w temperaturze 37 °C może powodować zmiany we wzorcach ekspresji genów10. Mechaniczne usunięcie zębiny jest zalecane przed trawieniem enzymatycznym. Zębina i predentyna przyczepiona do miazgi zawierają dużą ilość kolagenu, a jej nadmierna obecność może zmniejszyć skuteczność roztworu trawiącego. Wykazano, że po usunięciu z organizmu (lub śmierci organizmów) komórki zaczynają szybko modyfikować swoje wzorce ekspresji genów12. Dlatego izolację i przetwarzanie komórek należy przeprowadzić tak szybko, jak to możliwe. Obecny protokół skraca czas przetwarzania do 35-45 minut od wyizolowania tkanki (eutanazji zwierzęcia) do przygotowania zawiesiny jednokomórkowej.
Jedną z alternatywnych modyfikacji tej techniki jest zachowanie komórek do późniejszego wykorzystania. Osiąga się to poprzez utrwalanie metanolu. Zawiesina komórek utrwalona metanolem może być przechowywana przez okres do 1 miesiąca w temperaturze -80 °C, zgodnie z opisem w protokole21. Jednakże, jeśli to możliwe, wykonuj sekwencję scRNA bezpośrednio, ponieważ wykazano, że dane z pojedynczych komórek z zawiesin jednokomórkowych utrwalonych metanolem mogą cierpieć z powodu zwiększonej ekspresji genów związanych ze stresem i zanieczyszczenia otaczającym RNA22. Ten krok może wymagać dodatkowej modyfikacji zgodnie z protokołami producenta.
Przed pierwszym zastosowaniem tego protokołu zaleca się wykonanie kilku kroków walidacji w celu przetestowania techniki. Z naszego doświadczenia sugerujemy przetestowanie wyżej wymienionych krytycznych kroków protokołu. Dodatkowo sugerujemy przetestowanie skuteczności roztworu kolagenazy P i przetestowanie postępowania z etapem dysocjacji tkanek. W szczególności około pierwszych 5 minut po rozpoczęciu inkubacji kolagenazy P kawałki tkanki powinny się ze sobą zgrupować. To częsta sytuacja. Agregaty są rozdrabniane co 3-4 minuty za pomocą pipety o pojemności 1 ml, a wraz ze wzrostem czasu powinny stawać się coraz mniejsze, aż staną się ledwo widoczne.
Ponadto zaleca się zliczanie komórek w komorze zliczania komórek przed odwirowaniem oraz przed i po filtrowaniu w celu wykrycia ewentualnych strat komórek spowodowanych nieoptymalnym usunięciem supernatantu. Jeśli końcowa zawiesina jednokomórkowa musi zostać oczyszczona, można użyć FACS. Sortowanie komórek umożliwia nie tylko usunięcie resztek lub martwych komórek, ale co ważne, umożliwia wzbogacenie końcowej zawiesiny w komórki znakowane fluorescencyjnie13,19. Aby uniknąć naprężeń ścinających lub zatkania sortownika komórek, stosuje się szeroką dyszę (85 μm lub 100 μm). To jeszcze bardziej poprawi żywotność posortowanych komórek.
Technika ta została zaprojektowana i przetestowana zarówno na zębach myszy, jak i ludzi. Głównym czynnikiem ograniczającym jest niewielka liczba komórek w zmniejszonej miazgi zębowej zębów starszych myszy (trzonowców) i ludzi. Załóżmy, że konieczne jest pozyskanie większej liczby komórek lub komórek z zębów starszych pacjentów. Jednym z możliwych rozwiązań jest przetworzenie większej liczby zębów i połączenie ich w jedną partię, a następnie przetworzenie jej jako jednej próbki.
Żywe komórki ludzkiej miazgi zębowej zostały po raz pierwszy wyizolowane ponad dwadzieścia lat temu przy użyciu mieszaniny enzymów kolagenazy I i dypazy23. Od tego czasu izolacje komórek miazgi zębowej stały się szeroko stosowane i zastosowano kilka technik 5,6,7,8. Kluczowe znaczenie przedstawionej tutaj metody polega na dostosowaniu wszystkich etapów izolacji, aby izolacja była szybka i delikatna, aby zapewnić wysoką jakość końcowej zawiesiny komórek dla sekwencji scRNA. Wyższą wydajność komórek można uzyskać poprzez bardziej długotrwałą inkubację z enzymami. Protokół ten zapewnia skuteczne rozwiązanie do szybkiego uzyskiwania pojedynczych komórek z zębów myszy i ludzi o odpowiedniej jakości do sekwencjonowania RNA pojedynczych komórek. Oczekuje się, że technika ta będzie szeroko stosowana w przypadku innych tkanek lub organizmów z niewielkimi modyfikacjami technicznymi.
Oświadczenia
Autorzy deklarują brak konfliktu interesów.
Podziękowania
J.K. był wspierany przez Agencję Grantową Uniwersytetu Masaryka (MUNI/H/1615/2018) oraz przez fundusze z Wydziału Lekarskiego MU dla młodszego badacza. J.L. był wspierany przez Agencję Grantową Uniwersytetu Masaryka, (MUNI/IGA/1532/2020) i jest stypendystą Brno Ph.D. Talent Scholarship - ufundowanym przez Urząd Miasta Brna. T.B. był wspierany przez Austriacki Fundusz Naukowy (grant Lise Meitner: M2688-B28). Dziękujemy Lydie Izakovicovej Holli i Veronice Kovar Matejovej za pomoc w uzyskaniu ludzkich zębów. Na koniec dziękujemy Radkowi Fedrowi i Karelowi Souckowi za ich życzliwą pomoc w sortowaniu FACS.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| APC Przeciwciało anty-mysie CD45 | BioLegend | 103112 | |
| Albumina surowicy bydlęcej Frakcja V | Roche | 10735078001 | |
| CellTrics 50 i mikro; m, sterylne | Sysmex | 04-004-2327 | |
| Kolagenaza P (COLLP-PRO) | 11213857001 | ||
| Ostrza skalpela CUTFIX, ryc. 10 Ostrza skalpela | AESCULAP | 16600495 | |
| CUTFIX, ryc. 11 | AESCULAP | 16600509 | |
| Płodowa surowica bydlęca (Ameryka Południowa), ultra niska endotoksyna | Biosura | FB-1101/500 | |
| Zbilansowany roztwór soli Hanka (HBSS) bez Ca2+ i Mg2+ | SIGMA | H6648 | |
| Przemysłowe chusteczki o niskiej zawartości kłaczków, MAX60 | Dirteeze | MAX60B176 | |
| Przemysłowe mocne pęsety, styl 660, wygięte ząbkowane spiczaste końcówki, 150mm | Value-Tec | 50-014366 | |
| Alkohol metylowy AG | Penta | 21210-11000 | |
| Roztwór jodku propidium | BioLegend | 421301 | |
| Rękojeść skalpela | CM Instrumente | AG-013-10 | |
| Pipety serologiczne 10mL, pakowane pojedynczo, 200 szt. | CAPP | SP-10-C | |
| Mikroskop stereoskopowy | Leica | EZ4 | |
| Nożyczki chirurgiczne (9cm) | CM Instrumente | AI-430-09Y | |
| Naczynie do hodowli tkankowych i Oslash; 100 mm | TPP | 93100 |
Bibliografia
- Krivanek, J., et al. Dental cell type atlas reveals stem and differentiated cell types in mouse and human teeth. Nature Communications. 11 (1), 4816(2020).
- Soldatov, R., et al. Spatiotemporal structure of cell fate decisions in murine neural crest. Science. 364 (6444), (2019).
- Machado, L., Relaix, F., Mourikis, P. Stress relief: emerging methods to mitigate dissociation-induced artefacts. Trends in Cell Biology. 0 (0), (2021).
- Nguyen, Q. H., Pervolarakis, N., Nee, K., Kessenbrock, K. Experimental considerations for single-cell RNA sequencing approaches. Frontiers in Cell and Developmental Biology. 6, (2018).
- Chiba, Y., et al. Single-cell RNA-sequencing from mouse incisor reveals dental epithelial cell-type specific genes. Frontiers in Cell and Developmental Biology. 8, (2020).
- Debnath, S., et al. Discovery of a periosteal stem cell mediating intramembranous bone formation. Nature. 562 (7725), 133-139 (2018).
- Kanton, S., Treutlein, B., Camp, J. G. Chapter 10 - Single-cell genomic analysis of human cerebral organoids. Methods in Cell Biology. 159, 229-256 (2020).
- Price, F. D., et al. Inhibition of JAK-STAT signaling stimulates adult satellite cell function. Nature Medicine. 20 (10), 1174-1181 (2014).
- vanden Brink, S. C., et al. Single-cell sequencing reveals dissociation-induced gene expression in tissue subpopulations. Nature Methods. 14 (10), 935-936 (2017).
- O'Flanagan, C. H., et al. Dissociation of solid tumor tissues with cold active protease for single-cell RNA-seq minimizes conserved collagenase-associated stress responses. Genome Biology. 20 (1), 210(2019).
- van Velthoven, C. T. J., de Morree, A., Egner, I. M., Brett, J. O., Rando, T. A. Transcriptional profiling of quiescent muscle stem cells in vivo. Cell Reports. 21 (7), 1994-2004 (2017).
- Miyawaki-Kuwakado, A., et al. Transcriptome analysis of gene expression changes upon enzymatic dissociation in skeletal myoblasts. Genes to Cells. 26 (7), 530-540 (2021).
- Mattei, D., et al. Enzymatic dissociation induces transcriptional and proteotype bias in brain cell populations. International Journal of Molecular Sciences. 21 (21), 7944(2020).
- Ferreira, P. G., et al. The effects of death and post-mortem cold ischemia on human tissue transcriptomes. Nature Communications. 9 (1), 490(2018).
- He, W., Ye, J., Xu, H., Lin, Y., Zheng, Y. Differential expression of α6 and β1 integrins reveals epidermal heterogeneity at single-cell resolution. Journal of Cellular Biochemistry. 121 (3), 2664-2676 (2020).
- Machado, L., et al. In situ fixation redefines quiescence and early activation of skeletal muscle stem cells. Cell Reports. 21 (7), 1982-1993 (2017).
- Laranjeira, C., et al. Glial cells in the mouse enteric nervous system can undergo neurogenesis in response to injury. The Journal of Clinical Investigation. 121 (9), 3412-3424 (2011).
- Song, X., et al. Improved strategy for jet-in-air cell sorting with high purity, yield, viability and genome stability. FEBS Open Bio. 11 (9), 2453-2467 (2021).
- Greenblatt, M. B., Ono, N., Ayturk, U. M., Debnath, S., Lalani, S. The unmixing problem: A guide to applying single-cell RNA sequencing to bone. Journal of Bone and Mineral Research. 34 (7), 1207-1219 (2019).
- Charlebois, D. A., Hauser, K., Marshall, S., Balázsi, G. Multiscale effects of heating and cooling on genes and gene networks. Proceedings of the National Academy of Sciences. 115 (45), 10797-10806 (2018).
- Chen, J., et al. PBMC fixation and processing for Chromium single-cell RNA sequencing. Journal of Translational Medicine. 16 (1), 198(2018).
- Denisenko, E., et al. Systematic assessment of tissue dissociation and storage biases in single-cell and single-nucleus RNA-seq workflows. Genome Biology. 21 (1), 130(2020).
- Gronthos, S., Mankani, M., Brahim, J., Robey, P. G., Shi, S. Postnatal human dental pulp stem cells (DPSCs) in vitro and in vivo. Proceedings of the National Academy of Sciences of the United States of America. 97 (25), 13625-13630 (2000).
Przedruki i uprawnienia
