Opisujemy eksperymentalny układ do podawania hiperspolaryzowanych metabolitów znakowanych 13znakowanymi C w trybie ciągłej perfuzji do izolowanego perfundowanego serca myszy. Dedykowane podejście do akwizycji 13C-NMR umożliwiło ilościowe określenie aktywności enzymów metabolicznych w czasie rzeczywistym, a wieloparametryczna analiza 31P-NMR umożliwiła określenie zawartości ATP i pH w tkankach.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Badanie metabolizmu serca w izolowanym perfundowanym sercu myszy za pomocą hiperspolaryzowanej [1-13C] pirogronianu i spektroskopii 13C/31P NMR
W tym artykule
Podsumowanie
Streszczenie
Metabolizm jest podstawą ważnych procesów w życiu komórkowym. Scharakteryzowanie funkcjonowania sieci metabolicznych w żywych tkankach dostarcza kluczowych informacji dla zrozumienia mechanizmu chorób i projektowania metod leczenia. W tej pracy opisujemy procedury i metodologie badania aktywności metabolicznej w komórkach w wstecznie perfundowanym sercu myszy w czasie rzeczywistym. Serce izolowano in situ, w połączeniu z zatrzymaniem akcji serca w celu zminimalizowania niedokrwienia mięśnia sercowego i perfuzjono je w spektrometrze magnetycznego rezonansu jądrowego (NMR). Podczas gdy w spektrometrze i pod ciągłą perfuzją, hiperspolaryzowany [1-13C] pirogronian był podawany do serca, a późniejsze tempo produkcji hiperspolaryzowanego [1-13C] mleczanu i [13C] wodorowęglanu służyło do określenia, w czasie rzeczywistym, szybkości produkcji dehydrogenazy mleczanowej i pirogronianu. Tę aktywność metaboliczną hiperspolaryzowanego [1-13C]pirogronianu określono ilościowo za pomocą spektroskopii NMR w modelu swobodnym przy użyciu podejścia do selektywnego pozyskiwania wzbudzeń nasyconych produktem. Rozdział 31Spektroskopię P zastosowano pomiędzy hiperpolaryzowanymi akwizycjami w celu monitorowania energetyki serca i pH. System ten jest wyjątkowo przydatny do badania aktywności metabolicznej w zdrowym i chorym sercu myszy.
Wprowadzenie
Zmiany w metabolizmie serca są związane z różnymi kardiomiopatiami i często stanowią podstawę leżących u ich podstaw mechanizmów patofizjologicznych1. Istnieje jednak wiele przeszkód w badaniu metabolizmu w żywych tkankach, ponieważ większość testów biochemicznych wymaga homogenizacji tkanki i lizy komórek i/lub śledzenia radioaktywnego. W związku z tym istnieje pilne zapotrzebowanie na nowe narzędzia do badania metabolizmu mięśnia sercowego w żywych tkankach. Rezonans magnetyczny (MR) hiperspolaryzowanych substratów znakowanych 13C pozwala na pomiary metabolizmu w żywych tkankach w czasie rzeczywistym2, bez użycia promieniowania jonizującego, poprzez zwiększenie stosunku sygnału do szumu MR (SNR) znakowanego miejsca (miejsc) o kilka rzędów wielkości3. W tym miejscu opisujemy konfigurację eksperymentalną, podejście akwizycyjne i analityczne podejście do badania szybkiego metabolizmu w izolowanym sercu myszy i równolegle przedstawiamy wskaźniki ogólnej energetyki i kwasowości tkanek. pH serca jest cennym wskaźnikiem, ponieważ równowaga kwasowo-zasadowa jest zaburzona we wczesnych stadiach chorób serca i stanów, takich jak niedokrwienie mięśnia sercowego, nieadaptacyjny przerost i niewydolność serca6.
Hiperspolaryzowana produkcja [1-13C]mleczanu i [13C]wodorowęglanów z hiperspolaryzowanego [1-13 C]pirogronianu pomaga w określeniu szybkości produkcji dehydrogenazy mleczanowej (LDH) i dehydrogenazy pirogronianowej (PDH). Większość wcześniejszych badań przeprowadzonych przy użyciu hiperspolaryzowanych substratów w izolowanym sercu gryzoni albo wykorzystywała złożone modele kinetyczne do wyprowadzenia aktywności enzymatycznej LDH i PDH, albo podawała stosunki intensywności sygnału produktu hiperspolaryzowanego do substratu bez obliczania rzeczywistych wskaźników aktywności enzymu2,4,5,6,7,8,9,10,11,12,13,14. W tym przypadku zastosowaliśmy podejście selektywnego wzbudzenia nasycającego produkt15, które pozwala na monitorowanie aktywności enzymu w sposób niewymagający modelu15,16. W ten sposób określono bezwzględne wskaźniki enzymatyczne (tj. liczbę moli produktu wytworzonego w jednostce czasu). Rozdział 31Spektroskopia P została wykorzystana do obserwacji sygnałów nieorganicznego fosforanu (Pi), fosfokreatyny (PCr) i trifosforanu adenozyny (ATP). Zastosowano analizę wieloparametryczną w celu scharakteryzowania rozkładu pH serca, czego dowodem jest niejednorodne przesunięcie chemiczne w sygnale Pi tkanki.
Wstecznie perfundowane serce myszy (serce Langendorffa)17,18,19 to model ex vivo dla nienaruszonego bijącego serca. W tym modelu żywotność serca i pH są zachowane przez co najmniej 80 min20 i wykazano potencjał do regeneracji po długotrwałym urazie niedokrwiennym21,22. Niemniej jednak niezamierzona zmienność podczas mikrochirurgii może prowadzić do zmienności żywotności tkanek w sercach. Wcześniejsze badania donosiły o pogarszaniu się stanu tego serca w miarę upływu czasu19; Na przykład zaobserwowano zmniejszenie funkcji skurczu o 5%-10% na godzinę18. Wcześniej wykazano, że sygnał trifosforanu adenozyny (ATP) informuje o stanie energetycznym i żywotności mięśnia sercowego23. Tutaj zauważyliśmy, że perfuzja serca może czasami wykazywać niezamierzoną zmienność poziomów żywotności, o czym świadczy zawartość ATP, pomimo faktu, że mieliśmy nieprzerwaną perfuzję i dopływ tlenu. Wykazujemy tutaj, że normalizacja wskaźników LDH i PDH do zawartości ATP w sercu zmniejsza zmienność między sercami w tych wskaźnikach.
W poniższym protokole opisujemy procedurę chirurgiczną stosowaną do kanneulacji serca, izolacji i następującej po niej perfuzji w spektrometrze NMR. Warto zauważyć, że inne podejścia chirurgiczne mające na celu izolację i perfuzję serca myszy zostały opisane wcześniej24,25.
Metodologie używane do pozyskiwania danych związanych z szybkością enzymatyki w bijącym sercu (przy użyciu spektroskopii 13C i hiperspolaryzowanego [1-13C]pirogronianu) oraz żywotności i kwasowości serca (przy użyciu spektroskopii 31P NMR) są również opisane. Na koniec wyjaśniono metodologie analityczne służące do określania aktywności enzymów metabolicznych oraz żywotności i kwasowości tkanek.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
Wspólny komitet etyki (IACUC) Uniwersytetu Hebrajskiego i Centrum Medycznego Hadassah zatwierdził protokół badania w zakresie dobrostanu zwierząt (MD-19-15827-1).
1. Przygotowanie buforu Krebsa-Henseleita
- Dzień przed eksperymentem przygotować zmodyfikowaną wersję buforu Krebsa-Henseleita (KHB)26. W pierwszej kolejności rozpuścić 118 mM NaCl, 4,7 mM KCl, 0,5 mM pirogronianu, 1,2 mM MgSO4, 25 mM NaHCO3 oraz 1,2 mM KH2PO4 w wodzie dwukrotnie destylowanej H2O.
- Nasycać tę mieszaninę mieszaniną gazów 95%/5% O2/CO2 przez 20 min, a następnie dodać 1,2 mM CaCl2.
- Dostosować pH buforu do wartości 7,4 za pomocą HCl lub NaOH.
- W dniu eksperymentu do buforu KHB przygotowanego w punkcie 1.2 dodać 10 mM glukozy i 72 U/L insuliny.
UWAGA: Insulinę dodaje się do buforu perfuzyjnego zgodnie z opisem w pracy Kolwicza i wsp.26 oraz w zgodzie z wcześniejszymi badaniami wskazującymi, że insulina zwiększa funkcję skurczową27 oraz intensywność sygnału hiperpolaryzowanego wodorowęglanu [13C]28.
2. Przygotowanie systemu perfuzyjnego
- Przygotować rezerwuar zawierający 200 mL KHB w łaźni wodnej o temperaturze 40 °C i napowietrzać mieszaniną 95%/5% O2/CO2 przy przepływie 4 L/min przez 1 h przed perfuzją serca. Przez cały czas trwania eksperymentu bufor powinien być stale napowietrzany tą mieszaniną gazową.
- Najpierw ustawić temperaturę łaźni wodnej na 40 °C. Wstawić rezerwuar KHB. Użyć pompy perystaltycznej (patrz Tabela materiałów) i przedłużaczy medycznych, aby zapewnić recyrkulację KHB między rezerwuarem buforu a probówką NMR 10 mm ze stałym przepływem 7,5 mL/min.
- Podłączyć do pompy trzy rurki silikonowe utwardzane platyną (średnica wewnętrzna 3 mm) (jedną rurkę doprowadzającą i dwie rurki odprowadzające dla buforu KH). Wprowadzić linie odprowadzającą i doprowadzającą do podgrzanego buforu KH. Następnie wprowadzić linię tlenową do podgrzanego buforu KH.
- Do doprowadzania i odprowadzania buforu oraz czynnika hiperpolaryzowanego do probówki NMR wewnątrz otworu spektrometru użyć cienkich linii z polieteroeteroketonu (PEEK, patrz Tabela materiałów).
- Upewnić się, że temperatura jest utrzymywana w zakresie 37-37,5 °C. Wykonać poniższe kroki.
- Owinąć linię doprowadzającą (od rezerwuaru buforu do probówki NMR) taśmą grzejną ustawioną na 42 °C.
- Podgrzewać probówkę NMR wewnątrz spektrometru za pomocą ciepłego strumienia powietrza regulowanego przez urządzenie.
- Do pomiaru temperatury wewnątrz probówki NMR użyć czujnika temperatury kompatybilnego z NMR (patrz Tabela materiałów). Temperaturę należy dostosować do zakresu 37-37,5 °C.
3. Kalibracja i przygotowanie spektrometru NMR do akwizycji
- W dniu przeprowadzenia eksperymentu wprowadź do spektrometru próbkę wzorcową 13C zawierającą 1,4-dioksan (Tabela materiałów), a następnie dostrój i dopasuj sondę NMR dla 13C. Następnie uzyskaj widmo wykazujące sygnał równowagi termicznej 1,4-dioksanu przy kącie nutacji 90°.
- Teraz wymień próbkę wzorcową 13C na próbkę wzorcową 31P (Tabela materiałów) zawierającą 105 mM ATP w D2O. Dostrój i dopasuj sondę NMR dla 31P.
UWAGA: Widmo wykazujące sygnały fosforanów w równowadze termicznej uzyskuje się przy kącie nutacji 50°. - Wprowadź linię dopływową, linię odpływową oraz sondę temperatury do probówki NMR 10 mm, a następnie wprowadź probówkę do otworu magnesu. Ustaw taśmę grzewczą na 42 °C.
- Zarejestruj widmo NMR 31P krążącego buforu KH, który zostanie użyty w tym eksperymencie, przez 30 min, przy kącie nutacji 50° i TR wynoszącym 1,1 s (1640 akwizycji).
4. Przygotowanie zwierzęcia, procedura chirurgiczna i perfuzja serca w probówce NMR
- Zanurz samca myszy HSD:ICR (CD-1) w anestezji z użyciem 3,3% izofluranu w powietrzu pokojowym (Tabela materiałów) przy przepływie 340 mL/min przez 5 min, korzystając z systemu anestezji gazowej (Tabela materiałów) w komorze indukcyjnej.
- Do podtrzymania znieczulenia ogólnego zastosuj anestezję donosową z użyciem 2,9% izofluranu.
UWAGA: Należy dołożyć wszelkich starań, aby zminimalizować ból i dyskomfort zwierzęcia. - Ustabilizuj kończyny zwierzęcia za pomocą taśmy, upewnij się, że odruch bólowy łap jest ujemny, a następnie wstrzyknij 300 IU heparyny sodowej dootrzewnowo.
- Dokładnie przemyj ścianę klatki piersiowej i brzucha myszy 70% alkoholem, aby zapewnić czystość i uniknąć zanieczyszczenia sierścią lub przeszkód podczas procedury chirurgicznej.
- Po 1 min od wstrzyknięcia heparyny przetnij skórę i mięśnie jamy brzusznej małymi nożyczkami.
- Umieść mały kleszczyk hemostatyczny z zakrzywionymi końcówkami i blokadą między wyrostkiem mieczowatym a skórą klatki piersiowej, aby unieść klatkę piersiową i odsłonić przeponę. Przebij i przetnij prawy płat przepony.
- Przetnij klatkę piersiową wzdłuż linii środkowej, odsunie ją na boki, a następnie usuń.
- Wstrzyknij do lewej komory serca 200 IU heparyny sodowej, aby zapobiec krzepnięciu krwi. Następnie wstrzyknij 0,1 mL lodowatego 0,5 mol/L KCl w celu wywołania zatrzymania akcji serca, zgodnie z wcześniejszym opisem25. Zatrzymanie akcji serca jest niezbędne do przeprowadzenia kaniulacji serca.
- Zlokalizuj grasicę i usuń ją za pomocą nożyczek, aby odsłonić aortę. Usuń pozostałe tkanki klatki piersiowej.
- Zidentyfikuj łuk aorty i za pomocą zakrzywionej pęsety zawiąż luźny węzeł nicią jedwabną 3-0 (Tabela materiałów) wokół aorty wstępującej. Wstrzyknij 3 mL KHB do lewej komory, aby usunąć skrzepy krwi z aorty.
- Użyj zakrzywionej pęsety, aby odsunąć serce ku dołowi w celu lepszej wizualizacji aorty wstępującej.
- Wykonaj kaniulację in situ za pomocą cewnika dożylnego 22 G (Tabela materiałów). Nałóż klej cyjanoakrylanowy w miejscu kaniulacji, a następnie wykonaj podwójne wiązanie szwów. Wstrzyknij dodatkowy bufor KH do serca i sprawdź, czy przepływa on przez rurkę kaniulacyjną.
- Usuń zakrzywioną pęsetę. Oddziel serce od otaczających je trzewi i przepłucz je wstecznie lodowatym KHB (4 °C) przez cewnik dożylny.
- Podłącz serce do linii dopływowej systemu perfuzyjnego via cewnik dożylny. Po rozpoczęciu perfuzji ciepłym buforem (37-37,5 °C) z prędkością 7,5 mL/min serce zaczyna bić samoistnie.
- Uszytkuj probówkę NMR z bijącym sercem, liniami odpływowymi i sondą temperatury, a następnie włóż ją do otworu spektrometru, upewniając się, że serce znajduje się w centrum sondy NMR.
5. Pozyskiwanie danych dotyczących energetyki serca i pH
- Rejestruj widma 31P przez około 1 h przy kącie odchylenia 50 ° i TR wynoszącym 1.1 s.
6. Polaryzacja spinowa DNP i rozpuszczanie
- Przygotować formulację [1-13C]pirogronianu o masie 28,5 mg. Formulacja ta składa się z rodnika OX063 w stężeniu od 11,1 mM do 14,0 mM w czystym kwasie.
- Przygotować 4 mL medium do rozpuszczania. Medium do rozpuszczania składa się z buforu TRIS-fosforanowego zawierającego 11,2 mM NaH2PO4, 38,8 mM Na2HPO4, 33 mM TRIS oraz 2 mM HCl. Skład tego medium został dostosowany tak, aby po dodaniu 28,5 mg formulacji kwasu [1-13C]pirogronianowego do 4 mL tego buforu (w fazie rozpuszczania), pH otrzymanego roztworu wynosiło 7,4.
- Przeprowadzić polaryzację spinową i szybkie rozpuszczanie w urządzeniu do polaryzacji spinowej z rozpuszczaniem-DNP (dDNP) zgodnie z instrukcjami producenta (Tabela materiałów). Zastosować napromieniowanie mikrofalowe o częstotliwości 94,110 GHz w celu polaryzacji formulacji kwasu [1-13C]pirogronianowego w temperaturze od 1,45 K do 1,55 K przez około 1,5 h.
- Szybko zmieszać 4 mL hiperpolaryzowanego medium z urządzenia dDNP z dobrze natlenionym roztworem uzupełniającym hiperpolaryzowane medium do rozpuszczania, aby uzyskać skład zbliżony do medium perfuzyjnego.
UWAGA: Końcowa objętość medium perfundującego serce podczas iniekcji hiperpolaryzowanego [1-13C]pirogronianu w stężeniu 14 mM wynosi 26 mL. Końcowy skład wstrzykiwanego medium (po zmieszaniu) zawiera 4,7 mM KCl, 1,2 mM MgSO4, 70 mM NaCl, 25 mM NaHCO3, 1,2 mM KH2PO4, 10 mM glukozy, 1,2 mM CaCl2 oraz 72 U/L insuliny. - Podać medium zawierające hiperpolaryzowany [1-13C]pirogronian do izolowanego serca przy użyciu układu do przepływu ciągłego29.
UWAGA: Jest to robione w celu zapewnienia, że perfuzja serca nie zostanie zakłócona w żadnym punkcie podczas eksperymentu oraz że hiperpolaryzowane medium zostanie podane ze znaną prędkością i przez znany czas.
7. Spektroskopia hiperpolaryzowanego 13C
- Nabyć dane hiperpolaryzowanego 13C przy użyciu impulsów saturacyjno-pobudzających selektywnych względem produktu15, stosując impulsy sinus kardynalny (Sinc) o czasie trwania 2,5 ms, zgodnie z wcześniejszym opisem15,16. Pobudzać selektywnie kolejno [1-13C]mleczan i [13C]wodorowęglan w odstępach 6 s, aby uzyskać 12 s przerwy dla każdego metabolitu.
- W celu detekcji [1-13C]mleczanu, wycentrować selektywny impuls Sinc na częstotliwości wodnotlenku [1-13C]pirogronianu (179,4 ppm), co daje stosunek intensywności sygnałów (lac) wynoszący 0,113 dla sygnałów C1 [1-13C]pirogronianu do [1-13C]mleczanu.
- W celu detekcji [13C]wodorowęglanu, wycentrować selektywny impuls Sinc na wartości 157,7 ppm, co stanowi przesunięcie o 214 Hz w kierunku down-field względem sygnału [13C]wodorowęglanu (161,1 ppm); skutkuje to stosunkiem intensywności sygnałów (bic) wynoszącym 0,139 dla sygnału C1 [1-13C]pirogronianu do [13C]wodorowęglanu.
8. Wyznaczenie masy mokrej i objętości tkanki
- Po zakończeniu eksperymentu odłącz serce od układu perfuzyjnego i delikatnie osusz je papierem tkankowym. Następnie zważ serce, aby uzyskać masę mokrą tkanki.
- Wyznacz objętość serca, przyjmując współczynnik gęstości 1,05 g/cm3, zgodnie z wcześniejszymi ustaleniami dla serca myszy30.
9. Oznaczanie zawartości ATP
- Zintegruj sygnał γ-ATP z pojedynczego pomiaru próbki wzorca ATP oraz z 30-minutowego pomiaru (TR wynoszący 1,1 s i 1640 akwizycji) wyizolowanego serca.
- Ilościowo określ zawartość ATP w sercu, porównując całkę sygnału γ-ATP z serca z całką sygnału wzorca (Tabela materiałów), który ma znaną koncentrację (105 mM), a następnie skoryguj wynik o liczbę akwizycji oraz efekty relaksacji.
10. Rozdzielanie sygnału Pi serca
UWAGA: Aby ocenić pH tkanki, w pierwszej kolejności należy odseparować sygnał Pi serca od całkowitego sygnału Pi (Pit). Odbywa się to poprzez odjęcie sygnału Pi z buforu KHB (PiKH) od sygnału Pit.
- W 31Widmo P KHB, wykazujące pojedynczy sygnał Pi (PiKH, Rysunek 1A), dopasuj PiKH dopasowanie sygnału do funkcji lorentzowskiej przy użyciu programu Excel (Tabela materiałów).
- Objętość widoczna dla sondy NMR (Vp, 1,375 mL), zawiera więcej KHB w przypadku, gdy probówka z próbką nie zawiera serca. Aby skorygować ten efekt wypełnienia, należy obliczyć osłabiony sygnał buforu (Pib) przy użyciu równania 1A.
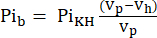 Równ. 1A
gdzie Vh jest objętością serca wyznaczoną w kroku 8. - Odejmij ten sygnał od Pit zgodnie z równaniem 1B, aby uzyskać sygnał Pi pochodzący wyłącznie z perfundowanego serca (Pih, Rycina 1B).
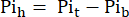 Równ. 1B
11. Wieloparametryczna analiza pH
- Wykonaj konwersję Pih rozkład przesunięcia chemicznego sygnału względem pH w odniesieniu do przesunięcia chemicznego PCr zgodnie z równaniem 231.
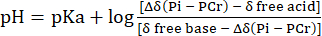 Równ. 2
gdzie Δδ to różnica przesunięcia chemicznego, pKa wynosi 6,72, δ wolnej zasady wynosi 5,69, a δ wolnego kwasu wynosi 3,27, zgodnie z wcześniejszym opisem31. - Skoryguj wynikową krzywą rozkładu pH pod kątem nieliniowości między Pih skala przesunięcia chemicznego i skala pH według Lutza i wsp.32Typowy rozkład pH wynikający z tego obliczenia przedstawiono w Rycina 1C.
- Analiza rozkładu pH w tkance z zastosowaniem podejścia wieloparametrycznego z wykorzystaniem siedmiu parametrów statystycznych zgodnie z metodą Lutz i wsp..32Cztery z tych parametrów przedstawiono tutaj, ponieważ wydają się one najbardziej opisowe dla pH tkanki: 1) globalne pH maksymalne; 2) ważona średnia pH; 3) ważona mediana pH oraz 4) skośność wykresu pH (Rycina 1C).
12. Obliczanie aktywności LDH i PDH
UWAGA: Szybkości produkcji hiperpolaryzowanych metabolitów [1-13C]mleczanu oraz [13C]wodorowęglanu są wykorzystywane do obliczenia aktywności odpowiednio LDH i PDH. W podejściu z selektywnym nasyceniem i pobudzeniem produktu15, podczas każdego selektywnego pobudzenia wykrywane są jedynie nowo zsyntetyzowane hiperpolaryzowane metabolity.
- Wykorzystaj sygnał hiperpolaryzowanego [1-13C]pirogronianu jako referencję do określenia odpowiadającego poziomu produkcji metabolitów.
- Podczas perfuzji medium hiperpolaryzowanego stężenie [1-13C]pirogronianu w probówce NMR wzrasta (wash-in), następnie osiąga plateau (przy maksymalnym stężeniu 14 mM), a następnie spada (wash-out).
- Aby zidentyfikować punkty czasowe, w których stężenie pirogronianu osiągnęło stały poziom (plateau), skoryguj sygnał [1-13C]pirogronianu o zanik sygnału wynikający z relaksacji T1 oraz pulsacji RF, używając efektywnej stałej relaksacji, Teff.
- Dla każdego wstrzyknięcia określ Teff na podstawie jego zdolności do skorygowania krzywej zaniku [1-13C]pirogronianu tak, aby odzwierciedlała tę dynamikę przepływu (Eq.3).
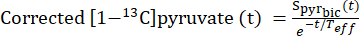 Eq. 3
gdzie to sygnał [1-13C]pirogronianu uzyskany podczas akwizycji [13C]wodorowęglanów. Średnia wartość Teff w opisanych tutaj eksperymentach wyniosła 35,8 s ± 2,3 s (n = 5 serc).
- Do dalszej analizy wybierz punkty danych, w których stężenie mieści się w granicach 10% maksymalnego skorygowanego sygnału [1-13C]pirogronianu.
- Wykorzystaj odpowiadające dane produkcji [1-13C]mleczanu oraz [13C]wodorowęglanów dla punktów czasowych wybranych w kroku 12.1 do obliczenia szybkości produkcji metabolitów przy użyciu równań Eq. 4A i Eq. 4B, pod warunkiem, że SNR sygnału metabolitu jest większy niż 2 (próg analizy). Typowy przykład takiego wyboru punktów czasowych przedstawiono na Ryc. 2B (zaznaczone okno czasowe).
- Oblicz szybkości produkcji dla każdego z wybranych punktów danych, korzystając z Eq. 4A i Eq. 4B:
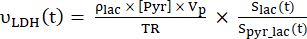 Eq. 4A
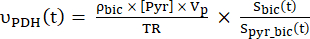 Eq. 4B
gdzie oraz
 to odpowiednio szybkości produkcji [1-13C]mleczanu lub [13C]wodorowęglanów w każdym punkcie czasowym.
 oraz
 to czynniki reprezentujące odpowiednio względne wzbudzenie [1-13C]pirogronianu oraz produktów: [1-13C]mleczanu lub [13C]wodorowęglanów. Czynniki te zostały wcześniej określone na odpowiednio 0,113 i 0,13929. Vp to objętość wykrywana przez sondę NMR (1,375 mL), TR oznacza odstęp czasu między dwoma kolejnymi selektywnymi wzbudzeniami saturacyjnymi produktów (12 s dla każdego produktu),
 oraz
 to odpowiednio sygnały [1-13C]mleczanu i [13C]wodorowęglanów, a
 oraz
 to sygnały [1-13C]pirogronianu uzyskane odpowiednio podczas wzbudzeń [1-13C]mleczanu i [13C]wodorowęglanów. [Pyr] to stężenie [1-13C]pirogronianu, które w fazie plateau wynosiło 14 mM.
- Wyznacz szybkość dla każdego punktu, a następnie oblicz średnią dla każdego hiperpolaryzowanego wstrzyknięcia.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Widma 31P zarejestrowane z serca myszy perfundowanego KHB oraz z samego buforu przedstawiono na Rysunku 1A. W sercu zaobserwowano sygnały α-, β- i γ-ATP, PCr oraz Pi. Sygnał Pi składał się z dwóch głównych komponentów: w wyższym polu (lewa strona sygnału) sygnał Pi wynikał głównie z obecności KHB o pH 7,4; w niższym polu (prawa strona sygnału) sygnał Pi był szerszy i mniej jednorodny ze względu na bardziej kwasowe środowisko. Ten drugi wzorzec pochodzi z tkanki serca. Sygnał Pi tk...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Prezentujemy układ eksperymentalny zaprojektowany do badania metabolizmu hiperpolaryzowanego [1-13C]pirogronianu, energetyki tkanek oraz pH w modelu izolowanego serca myszy.
Kluczowe etapy protokołu są następujące: 1) zapewnienie, aby pH buforu wynosiło 7,4; 2) upewnienie się, że wszystkie składniki buforu zostały dodane; 3) zapobieganie krzepnięciu krwi w naczyniach serca poprzez iniekcje heparyny; 4) zapobieganie uszkodzeniom niedokrwiennym serca poprzez ograniczenie aktywności me...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Nie ma żadnych ujawnień.
Podziękowania
Ten projekt otrzymał dofinansowanie od Izraelskiej Fundacji Naukowej na podstawie umowy o grant nr 1379/18; stypendium im. Jabotyńskiego izraelskiego Ministerstwa Nauki i Technologii w zakresie nauk stosowanych i inżynieryjnych dla doktorantów bezpośrednich nr 3-15892 dla doktorantów D.S.; oraz program Unii Europejskiej Horyzont 2020 w zakresie badań i innowacji na podstawie umowy o grant nr 858149 (AlternativesToGd).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Equipment | |||
| HyperSense DNP Polariser | Oxford Instruments | 52-ZNP91000 | HyperSense, 3,35 T, spektrometr NMR z hiperpolaryzatorem DNP do rozpuszczania przedklinicznego |
| RS2D | NMR, 5,8 T, wyposażona w sondę szerokopasmową 10 mm | ||
| Pompa perystaltyczna | Cole-Parmer | 07554-95 | |
| Sonda temperatury | Osensa | FTX-100-LUX+NMR | kompatybilna z NMR |
| System znieczulenia o niskim przepływie Somnosuite | Kent Scientific | ||
| Lines, rurki, szwy | |||
| platynowe rurki silikonowe utwardzane platyną | Cole-Parmer | HV-96119-16 | L/S 16 ID 3,1 mm& nbsp; |
| Cienkie linie polieteroeteroketonowe (PEEK) | Upchurch Scientific | id. 0,040 " | |
| Cewnik dożylny | BD Medical | 381323 | 22 G |
| Szew jedwabny | Ethicon | W577H | Średnica drutu 3-0 |
| Chemikalia i farmaceutyki | |||
| [1-13C]kwas pirogronowy | Cambridge Isotope Laboratories | CLM-8077-1 | |
| Chlorek wapnia | Sigma-Aldrich | 21074 | CAS: 10043-52-4 |
| D-(+)-Glukoza | Sigma-Aldrich | G7528 | CAS: 50-99-77 |
| Heparyna sodowa | Rotexmedica | HEP5A0130C0160 | |
| Kwas solny 37% | Sigma-Aldrich | 258148 | CAS: 7647-01-0 |
| Insulina aspart (NovoLog) | Novo Nordisk | ||
| Isoflurane | Terrel | ||
| Siarczan magnezu | Sigma-Aldrich | 793612 | CAS: 7487-88-9 |
| Chlorek potasu | Sigma-Aldrich | P4504 | CAS: 7447-40-7 |
| Fosforan potasu jednozasadowy | Sigma-Aldrich | P9791 | CAS: 7778-77-0 |
| Wodorowęglan sodu | Grupa | CAS: 144-55-8 | |
| Chlorek sodu | Sigma-Aldrich | S9625 | CAS: 7647-14-5 |
| Sód wodorotlenek | Sigma-Aldrich | 655104 | CAS: 1310-73-2 |
| Fosforan sodu dwuzasadowy | Sigma-Aldrich | S7907 | CAS: 7558-79-4 |
| Fosforan sodu jednozasadowy dwuwodny | Merck | 6345 | CAS: 13472-35-0 |
| TRIS (klasa biotechnologiczna) | Amresco | 0826 | CAS: 77-86-1 |
| Rodnik trytylowy OX063 | GE Healthcare AS | NC100136 | OX063 |
| NMR standards | |||
| 13C | Cambridge Isotope Laboratories | DLM-72A | 40% p-dioksan w standardowej próbce benzenu-D6 |
| 31P | Wykonane we własnym zakresie | 105 mM ATP i 120 mM kwasu fenylofosfonowego w D2O | |
| Software | |||
| Excel 2016 | Microsoft | ||
| MNova | Mestrelab Badania |
Bibliografia
- Aquaro, G. D., Menichetti, L. Hyperpolarized 13C-magnetic resonance spectroscopy: Are we ready for metabolic imaging. Circulation. Cardiovascular Imaging. 7 (6), 854-856 (2014).
- Schroeder, M. A., et al. Real-time assessment of Krebs cycle metabolism using hyperpolarized 13C magnetic resonance spectroscopy. FASEB Journal. 23 (8), 2529-2538 (2009).
- Ardenkjaer-Larsen, J. H., et al. Increase in signal-to-noise ratio of > 10,000 times in liquid-state NMR. Proceedings of the National Academy of Sciences of the United States of America. 100 (18), 10158-10163 (2003).
- Merritt, M. E., et al. Hyperpolarized C-13 allows a direct measure of flux through a single enzyme-catalyzed step by NMR. Proceedings of the National Academy of Sciences of the United States of America. 104 (50), 19773-19777 (2007).
- Ball, D. R., et al. Hyperpolarized butyrate: A metabolic probe of short chain fatty acid metabolism in the heart. Magn Reson Med. (5), 1663-1669 (2014).
- Khemtong, C., Carpenter, N. R., Lumata, L. L., et al. Hyperpolarized 13C NMR detects rapid drug-induced changes in cardiac metabolism. Magnetic Resonance in Medicine. 74 (2), 312-319 (2015).
- Mariotti, E., et al. Modeling non-linear kinetics of hyperpolarized [1-13C] pyruvate in the crystalloid-perfused rat heart. NMR in Biomedicine. 29 (4), 377-386 (2016).
- Moreno, K. X., Sabelhaus, S. M., Merritt, M. E., Sherry, A. D., Malloy, C. R. Competition of pyruvate with physiological substrates for oxidation by the heart: implications for studies with hyperpolarized [1-13C]pyruvate. American Journal of Physiology-Heart and Circulatory Physiology. 298 (5), H1556-H1564 (2010).
- Purmal, C., et al. Propionate stimulates pyruvate oxidation in the presence of acetate. American Journal of Physiology-Heart and Circulatory Physiology. 307 (8), H1134-H1141 (2014).
- Weiss, K., et al. Developing hyperpolarized 13C spectroscopy and imaging for metabolic studies in the isolated perfused rat heart. Applied Magnetic Resonance. 43 (1), 275-288 (2012).
- Merritt, M. E., Harrison, C., Storey, C., Sherry, A. D., Malloy, C. R. Inhibition of carbohydrate oxidation during the first minute of reperfusion after brief ischemia: NMR detection of hyperpolarized 13CO2and H13CO3. Magnetic Resonance in Medicine. 60 (5), 1029-1036 (2008).
- Schroeder, M. A., et al. Measuring intracellular pH in the heart using hyperpolarized carbon dioxide and bicarbonate: a 13C and 31P magnetic resonance spectroscopy study. Cardiovascular Research. 86 (1), 82-91 (2010).
- Ball, D. R., et al. Metabolic imaging of acute and chronic infarction in the perfused rat heart using hyperpolarised [1-13C]pyruvate. NMR in Biomedicine. 26 (11), 1441-1450 (2013).
- Atherton, H. J., et al. Role of PDH inhibition in the development of hypertrophy in the hyperthyroid rat heart: a combined magnetic resonance imaging and hyperpolarized magnetic resonance spectroscopy study. Circulation. 123 (22), 2552-2561 (2011).
- Harris, T., et al. Hyperpolarized product selective saturating-excitations for determination of changes in metabolic reaction rates in real-time. NMR in Biomedicine. 33 (2), e4189(2020).
- Shaul, D., et al. Correlation between lactate dehydrogenase/pyruvate dehydrogenase activities ratio and tissue pH in the perfused mouse heart: A potential noninvasive indicator of cardiac pH provided by hyperpolarized magnetic resonance. NMR in Biomedicine. 34 (2), e4444(2021).
- Jian, Z., et al. In vivo cannulation methods for cardiomyocytes isolation from heart disease models. PLoS One. 11 (8), e0160605(2016).
- Sutherland, F. J., Hearse, D. J. The isolated blood and perfusion fluid perfused heart. Pharmacological Research. 41 (6), 613-627 (2000).
- Lateef, R., Al-Masri, A., Alyahya, A. Langendorff's isolated perfused rat heart technique: A review. International Journal of Basic and Clinical Pharmacology. 4, 1314-1322 (2015).
- Cross, H. R., Radda, G. K., Clarke, K. The role of Na+/K+ ATPase activity during low-flow ischemia in preventing myocardial injury - A 31P, 23Na and 87Rb NMR spectroscopic study. Magnetic Resonance in Medicine. 34 (5), 673-685 (1995).
- Cross, H. R., Clarke, K., Opie, L. H., Radda, G. K. Is lactate-induced myocardial ischaemic injury mediated by decreased pH or increased intracellular lactate. Journal of Molecular and Cellular Cardiology. 27 (7), 1369-1381 (1995).
- Clarke, K., O'Connor, A. J., Willis, R. J. Temporal relation between energy metabolism and myocardial function during ischemia and reperfusion. American Journal of Physiology. 253 (2), H412-H421 (1987).
- Yabe, T., Mitsunami, K., Inubushi, T., Kinoshita, M. Quantitative measurements of cardiac phosphorus metabolites in coronary artery disease by 31P magnetic resonance spectroscopy. Circulation. 92 (1), 15-23 (1995).
- Bakrania, B., Granger, J. P., Harmancey, R. Methods for the determination of rates of glucose and fatty acid oxidation in the isolated working rat heart. Journal of Visualized Experiments. (115), e54497(2016).
- Cordeiro, B., Clements, R. Murine isolated heart model of myocardial stunning associated with cardioplegic arrest. Journal of Visualized Experiments. (102), e52433(2015).
- Kolwicz, S. C., Tian, R. Assessment of cardiac function and energetics in isolated mouse hearts using 31P NMR spectroscopy. Journal of Visualized Experiments. (42), e2069(2010).
- Nakadate, Y., et al. Glycemia and the cardioprotective effects of insulin pre-conditioning in the isolated rat heart. Cardiovascular Diabetology. 16 (1), 43(2017).
- Lauritzen, M. H., et al. Enhancing the C-13 bicarbonate signal in cardiac hyperpolarized 1-C-13 pyruvate MRS studies by infusion of glucose, insulin and potassium. NMR in Biomedicine. 26 (11), 1496-1500 (2013).
- Adler-Levy, Y., et al. In-cell determination of lactate dehydrogenase activity in a luminal breast cancer model - ex vivo investigation of excised xenograft tumor slices using dDNP hyperpolarized [1-13C]pyruvate. Sensors. 19 (9), 2089(2019).
- Young, A. A., Barnes, H., Davison, D., Neubauer, S., Schneider, J. E. Fast left ventricular mass and volume assessment in mice with three-dimensional guide-point modeling. Journal of Magnetic Resonance Imaging. 30 (3), 514-520 (2009).
- Bailey, I. A., Williams, S. R., Radda, G. K., Gadian, D. G. Activity of phosphorylase in total global ischaemia in the rat heart. A phosphorus-31 nuclear-magnetic-resonance study. Biochemical Journal. 196 (1), 171-178 (1981).
- Lutz, N. W., Le Fur, Y., Chiche, J., Pouyssegur, J., Cozzone, P. J. Quantitative in vivo characterization of intracellular and extracellular pH profiles in heterogeneous tumors: A novel method enabling multiparametric pH analysis. Cancer Research. 7 (15), 4616-4628 (2013).
- Harris, T., Gamliel, A., Sosna, J., Gomori, J. M., Katz-Brull, R. Impurities of [1-13C]pyruvic acid and a method to minimize their signals for hyperpolarized pyruvate metabolism studies. Applied Magnetic Resonance. 49 (10), 1085-1098 (2018).
- Cunningham, C. H., et al. Hyperpolarized 13C metabolic MRI of the human heart initial experience. Circulation Research. 119 (11), 1177-1182 (2016).
- Kurhanewicz, J., et al. Hyperpolarized 13C MRI: Path to clinical translation in oncology. Neoplasia. 21 (1), 1-16 (2019).
- Miloushev, V. Z., et al. Metabolic imaging of the human brain with hyperpolarized 13C pyruvate demonstrates 13C lactate production in brain tumor patients. Cancer Research. 78 (14), 3755-3760 (2018).
- Park, I., et al. Development of methods and feasibility of using hyperpolarized carbon-13 imaging data for evaluating brain metabolism in patient studies. Magnetic Resonance in Medicine. 80 (3), 864-873 (2018).
- Grist, J. T., et al. Quantifying normal human brain metabolism using hyperpolarized [1-13C]pyruvate and magnetic resonance imaging. Neuroimage. 189, 171-179 (2019).
- Nelson, S. J., et al. Metabolic imaging of patients with prostate cancer using hyperpolarized [1-C]pyruvate. Science Translational Medicine. 5 (198), (2013).
- Stødkilde-Jørgensen, H., et al. Pilot study experiences with hyperpolarized [1-13C]pyruvate MRI in pancreatic cancer patients. Journal of Magnetic Resonance Imaging. 51 (3), 961-963 (2019).
- Autry, A. W., et al. Measuring tumor metabolism in pediatric diffuse intrinsic pontine glioma using hyperpolarized carbon-13 MR metabolic imaging. Contrast Media and Molecular Imaging. 2018, 3215658(2018).
- Chung, B. T., et al. First hyperpolarized [2-13C]pyruvate MR studies of human brain metabolism. Journal of Magnetic Resonance. 309, 106617(2019).
- Rider, O. J., et al. Noninvasive in vivo assessment of cardiac metabolism in the healthy and diabetic human heart using hyperpolarized 13C MRI. Circulation Research. 126 (6), 725-736 (2020).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
