Ten artykuł opisuje wygodną metodę monitorowania dynamicznych zmian w mianach przeciwciał dla dwóch izotypów immunoglobulin jednocześnie (IgA, IgM lub IgG) wynikających z odpowiedzi immunologicznej na zakażenie SARS-CoV-2 lub szczepienie. Ten "Multianalitowy panel odpowiedzi immunologicznej Covid-19" wykorzystuje trzy pośrednie testy immunologiczne zbudowane na kodowanych mikrosferach, które są odczytywane za pomocą przepływowego czytnika multipleksowego z funkcją "dwukanałową".
Artykuł metodologiczny
Dynamiczne monitorowanie serokonwersji za pomocą wieloanalitowego testu immunobeadowego w kierunku Covid-19
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Technologie multipleksowe do wspólnego badania wielu biomarkerów istnieją od kilkudziesięciu lat; jednak metody oceny wielu epitopów na tym samym analicie pozostają ograniczone. W niniejszym raporcie opisano rozwój i optymalizację multipleksowanego testu immunokulkowego do testów serologicznych powszechnych izotypów immunoglobulin (np. IgA, IgM i IgG) związanych z odpowiedzią immunologiczną na zakażenie SARS-CoV-2 lub szczepienie. Testy przeprowadzono przy użyciu przepływowego, multipleksowego czytnika fluorescencyjnego z możliwością pracy dwukanałowej. Optymalizacje koncentrowały się na czasie wychwytywania analitu, stężeniu przeciwciał wykrywania i czasie inkubacji przeciwciał detekcji. Charakterystykę skuteczności testu analitycznego (np. zakres testu (w tym dolną i górną granicę oznaczalności) oraz precyzję wewnątrz i między testami) ustalono dla kombinacji serotypów IgG/IgM lub IgA/IgM w tandemie przy użyciu trybu "dwukanałowego". Czas wychwytywania analitu wynoszący 30 minut dla IgG, 60 minut dla IgM i 120 minut dla IgA był odpowiedni dla większości zastosowań, zapewniając równowagę między wydajnością testu a przepustowością. Zaobserwowano optymalną inkubację przeciwciał detekcyjnych w stężeniu 4 μg/ml przez 30 minut, które są zalecane do zastosowań ogólnych, biorąc pod uwagę ogólną doskonałą precyzję (procentowy współczynnik wariancji (%CV) ≤ 20%) i obserwowane wartości czułości. Zakres dynamiki izotypu IgG obejmował kilka rzędów wielkości dla każdego testu (Spike S1, nukleokapsyd i glikoproteiny błonowe), co wspiera solidne oceny miana przy współczynniku rozcieńczenia 1:500 do zastosowań klinicznych. Na koniec zoptymalizowany protokół zastosowano do monitorowania serokonwersji Spike S1 u osób (n = 4), które ukończyły schemat szczepienia przeciwko SARS-CoV-2. W tej kohorcie zaobserwowano, że poziomy IgG Spike S1 osiągają maksymalne miana po 14 dniach od podania drugiej dawki, przy znacznie wyższej (~40-krotnej) intensywności sygnału niż izotypy IgM lub IgA. Co ciekawe, zaobserwowaliśmy bardzo zmienne tempo zaniku miana Spike S1 IgG, które było w dużej mierze zależne od pacjenta, co będzie tematem przyszłych badań.
Wprowadzenie
Jednoczesny pomiar wielu biomarkerów związanych z chorobą w próbkach biologicznych pozwala na opisowy i predykcyjny wgląd w procesy patologiczne. Podczas gdy konwencjonalne procedury immunologiczne z pojedynczym analitem, takie jak testy immunoenzymatyczne (ELISA), są podstawą analiz ilościowych zarówno w warunkach klinicznych, jak i badawczych, techniki te mogą mieć znaczne ograniczenia dotyczące przepustowości, ilości próbki wymaganej do każdego pomiaru i opłacalności, które znacznie ograniczają badanie wielu elementów biologicznych, które często przeplatają się w przebiegu choroby1. Technologia multipleksowania oparta na mikrosferze stała się niezastąpioną platformą zarówno dla ośrodków diagnostycznych, jak i badawczych ze względu na jej zdolność do łączenia testów w celu zwiększenia przepustowości laboratorium, złagodzenia niedoboru próbek i zmniejszenia liczby powtarzających się testów w celu maksymalizacji oszczędności kosztów1,2,3,4. Ostatnio wprowadzono dalsze rozszerzenie tej mocy multipleksowania za pomocą instrumentów posiadających możliwości podwójnego reportera. Funkcja podwójnego reportera implementuje dwa kanały fluorescencyjne do detekcji, zapewniając kolejny wymiar multipleksowania, umożliwiając wykrywanie wielu epitopów na tym samym analicie.
Koronawirus zespołu ciężkiej ostrej niewydolności oddechowej 2 (SARS-CoV-2) jest patogenem odpowiedzialnym za obecną pandemię choroby koronawirusowej 2019 (COVID-19)5. Podczas gdy testy RT-PCR mają kluczowe znaczenie dla potwierdzenia zakażenia na początku przebiegu choroby, badania serologiczne mian przeciwciał okazały się niezbędne do dokładnej i pełnej krytyki osób pod kątem wcześniejszej ekspozycji lub powrotu do zdrowia; odpowiedź na szczepienia; i/lub ocena skuteczności szczepionki Covid-19 6,7.
Ten raport przedstawia metody pomiaru serokonwersji dla wielu antygenów wirusa SARS-CoV-2, które wykorzystują oparty na przepływie, podwójny system raportowania czytnika multipleksowego. W szczególności opisano jednoczesne wykrywanie dwóch podtypów przeciwciał (skonfigurowanych jako IgG/IgM lub IgA/IgM) dla panelu antygenów SARS-CoV-2 3-plex, który obejmuje testy na glikoproteiny Spike S1, nukleokapsyd i błonę (inaczej Matrix). Podejście to stanowi idealne przedsięwzięcie do uchwycenia podłużnej serokonwersji i stanowi cenne narzędzie w arsenale przeciwko pandemii Covid-19.
Protokół
Wszyscy badani zostali zapisani za pisemną świadomą zgodą z pełną aprobatą Institutional Review Board (IRB) Rush University Medical Center zgodnie z protokołem ORA 20101207 przestrzegając wszystkich wytycznych instytucjonalnych dotyczących etycznego prowadzenia badań. Krew pobrano za pomocą konwencjonalnej flebotomii do lawendowych wakutainerów (K2EDTA) i przetworzono zgodnie z zalecanymi protokołami. Uzyskane osocze zostało zarchiwizowane w temperaturze -80 °C do czasu przeprowadzenia oceny.
1. Przygotowanie mikrosfer sprzężonych z antygenem
- Wybierz trzy różne fiolki z mikrosferami magnetycznymi z unikalnymi obszarami kulek, zapisując identyfikator kulki i informacje o partii dla każdej użytej fiolki.
UWAGA: Poniższe kroki zostaną wykonane dla każdego odrębnego regionu mikrosfery. Mikrosfery są wrażliwe na światło i należy je chronić przed długotrwałym działaniem światła. Podczas etapów prania należy uważać, aby nie naruszyć mikrosfer. W przypadku zakłóceń odczekaj drugie 60 sekund separacji. - Wiruj mikrosferę przez 60 s i sonikuj przez 5 minut przed użyciem, aby zdysocjować zagregowane kulki.
- Przenieś 1,0 x 10⁶ kulek do 1,5 ml niskobiałkowych probówek wirówkowych.
- Włóż rurkę do separatora magnetycznego i pozwól, aby separacja nastąpiła przez 60 sekund. Trzymając rurkę nadal w separatorze magnetycznym, ostrożnie usuń supernatant, nie naruszając osadu kulkowego.
- Wyjmij probówkę z separatora magnetycznego, ponownie zawieś kulki za pomocą 100 μl wody klasy HPLC i wiruj przez 30 sekund. Umieść probówkę z powrotem w separatorze magnetycznym na 60 s, a następnie usuń supernatant. Powtórz ten protokół prania dwukrotnie.
- Wyjąć probówkę z separatora magnetycznego i ponownie zawiesić umyte mikrosfery w 90 μl 100 mM jednozasadowego fosforanu sodu o pH 6,2 (bufor aktywacyjny) przez wirowanie przez 30 s.
- Dodać 10 μl 50 mg/ml Sulfo-NHS (rozcieńczonego buforem aktywacyjnym) do mikrosfer i delikatnie wirować przez 10 s. Dodać 10 μl 50 mg/ml roztworu EDC (rozcieńczonego buforem aktywacyjnym) i delikatnie wirować przez 10 s. Inkubować mikrosfery przez 20 minut w temperaturze pokojowej (RT) z delikatnym wirem co 10 minut.
- Powtórz kroki mycia 1,4-1,5 z 50 mM MES, pH 5,0 (bufor sprzęgający) zamiast wody klasy LC/MS, w sumie dwa mycia.
- Wyjąć probówkę z separatora magnetycznego i ponownie zawiesić kulki ze 100 μl buforu sprzęgającego za pomocą wiru przez 30 s, a następnie natychmiast dodać żądaną ilość białka.
- Doprowadzić całkowitą objętość do 150 μl za pomocą bufora sprzęgającego. Mieszać reakcję sprzęgania wirowego przez 30 s i inkubować przez 2 godziny przez obrót w temperaturze RT.
UWAGA: Dla testów zdefiniowanych w niniejszym dokumencie koniugacje przeprowadzono z następującymi stężeniami białka: Spike S1: 5 μg; Nukleokapsyd: 5 μg; Membrana: 12,5 μg. - Powtórz etap płukania 1.4 z solą fizjologiczną buforowaną fosforanami (PBS) -1% albuminą surowicy koziej, 0,01% polisorbatem-20 (buforem hartującym) zamiast wody klasy LC/MS, w sumie dwa płukania. Ponownie zawiesić przemyte mikrosfery w 100 μl buforu hartowniczego zawierającego 0,05% azydku sodu wirowo przez 30 s.
UWAGA: Pozwól koralikom całkowicie ugasnąć przez co najmniej 6 godzin przed przystąpieniem do jakiejkolwiek innej procedury. - Policz liczbę odzyskanych mikrosfer za pomocą automatycznego licznika komórek lub hemocytometru. Zapisz zaobserwowane stężenie kulek.
- Sprzężone mikrosfery przechowywać w lodówce w temperaturze 4 °C w ciemności.
2. Procedury
- Wydajność testu (protokół podstawowy)
- Ponownie zawiesić sprzężone mikrosfery za pomocą wiru na 30 s i sonikować przez ~60-90 s.
- Usuń wymaganą ilość koloidu z każdego koloidu kulek z odpowiedniej probówki i połącz koloidy kulek w nowej probówce do mikrowirówek o pojemności 1,5 ml.
- Włóż rurkę do separatora magnetycznego i pozwól, aby separacja nastąpiła przez 60 sekund. Trzymając rurkę nadal w separatorze magnetycznym, ostrożnie usuń supernatant, nie naruszając osadu kulkowego.
- Wyjmij kulki z separatora, ponownie zawieś je ze 100 μl PBS-1% albuminy surowicy bydlęcej, 0,01% polisorbatu-20 (bufor testowy) i wiruj przez 30 s. Umieść probówkę w separatorze magnetycznym i pozwól na separację przez 60 s. Powtórz ten protokół prania (tj. kroki 2.1.3-2.1.4) dwukrotnie
- Dostosuj stężenie mieszaniny mikrosfer roboczych 3-plex, dodając odpowiednią objętość buforu testowego, aby uzyskać końcowe stężenie 100 mikrosfer na 1 μl dla każdego celu.
- Podwielokrotność 12,5 μl mieszaniny mikrosfer przygotowanej w kroku 2.1.5 do każdego dołka płytki 384-dołkowej lub 25 μl do każdej studzienki płytki 96-dołkowej.
- Rozcieńczyć próbki osocza/surowicy 500-krotnie w buforze testowym. Przygotować próbki wzorcowe zgodnie z pożądanym miareczkowaniem.
- Dodać 12,5 μl buforu do oznaczania jako próbkę ślepą i dodać każdą z rozcieńczonych próbek lub wzorców do każdego wyznaczonego dołka na 384-dołkowej płytce do pobierania próbek lub 25 μl ślepej, rozcieńczonej próbki lub wzorca do każdego dołka na 96-dołkowej płytce do pobierania próbek.
- Przykryj płytkę aluminiową uszczelką lub folią i inkubuj przez 1 godzinę w temperaturze suchej na wytrząsarce płytowej ustawionej na 700 obr./min.
UWAGA: Schemat krzywych rozcieńczania znajduje się w tabeli 1. - Przygotować roztwór przeciwciał wykrywających przeciwciała anty-ludzkie (roztwory przeciwciał drugorzędowych) o stężeniu 4 μg/ml z buforem do oznaczania, jak określono w kroku 2.1.11.
- Przygotować przeciwciała przeciwko ludzkim IgM, sprzężone z Super Bright 436 (SB)/Kozioł-anty-ludzka IgA, skoniugowane przeciwciała wykrywające fikoerytrynę (PE) w stężeniu 4 μg/ml; lub przeciwciała przeciwko ludzkim IgM, SB Sprzężone/Koziołko-anty-ludzkiemu IgG, PE Sprzężone przeciwciała wykrywające w 4 μg/ml.
UWAGA: W przypadku płytki 384-dołkowej wymagane jest 12,5 μl/basenik przygotowanego roztworu przeciwciał drugorzędowych, a w przypadku formatu płytki 96-dołkowej wymagane jest 25 μL/basenik. - Umieść płytkę na separatorze magnetycznym, szybko umyj i mocno odwróć nad pojemnikiem na zagrożenie biologiczne, aby usunąć płyn ze studni. Trzymając talerz nadal odwrócony, mocno uderz nim o gruby zwitek papieru.
- Przemyć każdą studzienkę 100 μl buforu do oznaczania i usunąć ciecz przez wymuszoną inwersję nad pojemnikiem stanowiącym zagrożenie biologiczne, jak opisano wcześniej. Powtórz te kroki (2.1.12-2.1.13), co daje w sumie dwa prania. Wyrzuć wszystkie zużyte zwitki papieru do pojemnika na zagrożenie biologiczne.
- Dodać 12,5 μl roztworu roboczego przeciwciała wtórnego do każdego dołka płytki 384-dołkowej lub 25 μl do każdego dołka płytki 96-dołkowej. Przykryj płytkę aluminiową uszczelką lub folią i inkubuj przez 30 minut w temperaturze pokojowej na wytrząsarce płytowej ustawionej na 700 obr./min.
- Powtórz kroki prania 2.1.12-2.1.13
- Dodać 75 μl buforu testowego do każdego dołka na płytce 384-dołkowej lub 100 μl do każdego dołka płytki 96-dołkowej. Przykryj płytkę aluminiową uszczelką lub folią i inkubuj przez 5 minut w temperaturze suchej na wytrząsarce płytowej ustawionej na 700 obr./min.
- Analizuj 60 μl za pomocą analizatora przyrządów zgodnie z instrukcją obsługi systemu.
- Optymalizacja czasu inkubacji pobierania próbek
- Wykonaj czynności opisane w sekcji 2.1, stosując czas inkubacji wynoszący 30 min, 60 min i 120 min w kroku 2.1.9.
UWAGA: Inkubacje mogą być przeprowadzane albo z oddzielnymi płytkami, albo przez pauzę na kroku 2.1.6 do czasu przejścia do kroku 2.1.9. aby osiągnąć pożądane czasy inkubacji. - Kontynuuj odczyt płytki na analizatorze, używając 60 μl mieszaniny testowej zgodnie z zaleceniami producenta.
- Wykonaj czynności opisane w sekcji 2.1, stosując czas inkubacji wynoszący 30 min, 60 min i 120 min w kroku 2.1.9.
- Optymalizacja stężenia przeciwciał drugorzędowych
- Wykonać tę procedurę zgodnie z opisem w sekcji 2.1, z wyjątkiem końcowych stężeń odczynników w roztworze roboczym przeciwciał drugorzędowych (przygotowanym w kroku 2.1.10-2.1.11) zmodyfikowanym w następujący sposób:
Kozie przeciwciała anty-ludzkie (lub królicze) IgM, sprzężone SB wykrywające 8, 4, 2, 1 i 0,5 μg/ml.
Kozie przeciwciała anty-ludzkie (lub królicze) IgA, PE-sprzężone przeciwciała wykrywające 8, 4, 2, 1 i 0,5 μg/ml.
Kozio-anty-ludzkie (lub królicze) przeciwciała IgG, PE-sprzężone przeciwciała wykrywające przy 8, 4, 2, 1 i 0,5 μg/ml.
Kozie przeciwciała anty-ludzkie (lub królicze) IgG, koniugat PE/kozioł anty-ludzki (lub króliczy) IgM, SB-sprzężone przeciwciała wykrywające przy 8, 4, 2, 1 i 0,5 μg/ml.
Kozie przeciwciała anty-ludzkie (lub królicze) IgA, koniugat PE/kozioł anty-ludzki (lub króliczy) IgM, SB-koniugowane przeciwciała wykrywające przy 8, 4, 2, 1 i 0,5 μg / ml. - Kontynuuj odczyt płytki na analizatorze, używając 60 μl mieszaniny testowej zgodnie z zaleceniami producenta.
- Wykonać tę procedurę zgodnie z opisem w sekcji 2.1, z wyjątkiem końcowych stężeń odczynników w roztworze roboczym przeciwciał drugorzędowych (przygotowanym w kroku 2.1.10-2.1.11) zmodyfikowanym w następujący sposób:
- Optymalizacja czasu inkubacji przeciwciał wtórnych
- Wykonaj tę procedurę zgodnie z opisem w sekcji 2.1 z 15 minutami, 30 minutami, 60 minutami i 120 minutami czasu inkubacji określonymi w kroku 2.1.14.
- Kontynuuj odczyt płytki na analizatorze, używając 60 μl mieszaniny testowej zgodnie z zaleceniami producenta.
- Ocena badanych próbek za pomocą zoptymalizowanych testów dwukanałowych
- Pobrać próbki osocza pacjenta (n = 4) w dniach -21, -11, -1/0, +14, +28, +60, +90 i +120 w stosunku do zakończenia podawania szczepionki Covid-19 (tj. drugiej dawki).
UWAGA: Dzień 0 reprezentuje punkt czasowy, w którym szczepienie zostało zakończone. - Wszystkie testy należy wykonać przy użyciu protokołu podstawowego (sekcja 2.1.) jako dwukanałowego testu IgG/IgM lub IgA/IgM.
- Znormalizuj wyniki do maksymalnej obserwowanej wartości mediany intensywności fluorescencji (MFI) dla każdej specyficznej immunoglobuliny i testu.
- Pobrać próbki osocza pacjenta (n = 4) w dniach -21, -11, -1/0, +14, +28, +60, +90 i +120 w stosunku do zakończenia podawania szczepionki Covid-19 (tj. drugiej dawki).
Wyniki
Typowe wyniki analiz i oceny wydajności
Analizy z użyciem kulek immunomagnetycznych zazwyczaj dają krzywą sigmoidalną przy ocenie w obrębie kilku (logarytmicznych) rzędów wielkości, co zilustrowano na każdym z paneli przedstawionych na Rysunku 1. Użytkownik musi eksperymentalnie określić optymalny zakres stężeń dla każdego anality w analizie multipleksowej, aby wyznaczyć pełny zakres oznaczania, dbając o to, by nie nadmiernie próbkować wartości skrajnych (obszarów zbliżonych do dolnej granicy oznaczania [LLOQ] lub górnej granicy oznaczania [ULOQ]). Rzeczywisty zakres wymagany dla analizy jest jednak podyktowany rozkładem docelowych analitów w matrycy biologicznej (tj. „próbkach nieznanych”) przy danym czynniku rozcieńczenia. Ponadto, choć krzywe standardowe są zazwyczaj interpretowane za pomocą regresji liniowej z algorytmem dopasowania 4- lub 5-parametrycznym, liniowy odcinek danej krzywej zazwyczaj zapewnia największą pewność co do dokładności ilościowej przy zastosowaniu liniowego modelu oznaczania (y = mx + b). Celem podczas opracowywania analizy ilościowej powinno być dopasowanie krzywej kalibracyjnej do wartości obserwowanych dla próbki nieznanej przy danym czynniku rozcieńczenia.
W związku z tym dla każdego z przeciwciał przeciwko białku Spike S1, nukleokapsydowi oraz białku błonowemu oceniono 7-punktową krzywą standardową opartą na serii rozcieńczeń seryjnych 1:5, w zakresie od 1 µg/mL do 0,000064 µg/mL dla Spike S1 i nukleokapsydu oraz od 5 µg/mL do 0,00032 µg/mL dla białka błonowego, co przedstawiono na Rysunku 1. Dolna granica wykrywalności (LLOD) dla każdego testu została zdefiniowana jako najniższe stężenie anality,które dawało sygnał odróżnialny od tła. LLOD można wyznaczyć za pomocą wcześniej opisanego równania8,9: LLOD = LoB + 1,645(SDlow concentration próbki). LoB to dolna granica tła, czyli „pozorne” stężenie anality wytworzone z próbki ślepej, gdy oczekiwana jest wartość zero; można ją wyznaczyć za pomocą równania LoB = Meanblank + 1,645(SDblank)8. Na podstawie tej metody wartości MFI dla testu Spike S1 mieściły się w zakresie od 134,38 do 20191,2, przy czym wartość 134,38 MFI odpowiadała stężeniu 0,00024 µg/mL i została zdefiniowana jako LLOD. Dla testu białka błonowego praktyczny zakres MFI wynosił od 52,24 do 4764,9, przy czym wartość 52,24 MFI obliczono jako 0,004885 µg/mL i przypisano jako LLOD. Zakres MFI dla testu nukleokapsydu wynosił od 517,9 do 19666,34, a wartość 517,9 określono jako 0,00024 µg/mL, co stanowiło LLOD. Górna granica wykrywalności (ULOD) jest definiowana jako stężenie anality, powyżej którego zmiana MFI przestaje być liniowa, a odpowiedź sygnałowa ulega nasyceniu. Należy zauważyć, że pełny charakter sigmoidalny tych krzywych nie jest obserwowalny dla testowanych standardów, z wyjątkiem krzywej dla nukleokapsydu. Jednakże, biorąc pod uwagę, że zaobserwowane wartości MFI dla wszystkich nieznanych próbek przebadanych do tej pory (przy rozcieńczeniu 1:500) mieszczą się w przedstawionym zakresie krzywej dla każdego anality i są łatwo mierzalne przy użyciu dopasowania 4- lub 5-parametrycznego za pomocą regresji liniowej.
Precyzja analizy
Precyzja wewnątrzanalizy: W celu oceny precyzji analizy wykonano cztery powtórzenia pomiarów na tej samej płytce; precyzję obliczono jako %CV, czyli iloraz odchylenia standardowego i średniej pomnożony przez 100. Do tych obliczeń wybrano punkty standardowe 2 i 5, a wartości zestawiono w Tabuled 2. Typowa akceptowalna górna granica dla wartości %CV wynosi ≤20%, co zaobserwowano dla tych danych, z wyjątkiem standardu 2 dla IgG błony, co prawdopodobnie wynika z poziomu tła i może zostać skorygowane poprzez wyeliminowanie wartości odstających (dane nie przedstawiono). Należy zauważyć, że w analizach błony zaobserwowano pozorną niestabilność wartości odczytu w przypadkach, gdy wartości MFI były <200, najczęściej w przypadku izotypów IgA i IgM.
Precyzja międzyseryjnaDla każdego testu przygotowano i przetestowano trzy odrębne serie zestawów kulek, zgodnie z definicją precyzji wewnątrzanalizy (powyżej oraz widocznej w Rycina 1). Zmienność między seria była oceniana poprzez obliczenie %CV z przeciętnych wyników dla każdej z trzech serii, zgodnie z przedstawionym w Tabela 3Ponownie, górna granica dopuszczalnego poziomu %CV została ustalona na poziomie ≤20%, co spełniają wszystkie badane warunki (z podobnym efektem dla standardu 2 Membrane IgG, jak pokazano powyżej). Należy zauważyć, że zmienność wartości netto MFI między seryjami jest powszechnie obserwowana w przypadku wielu partii tych samych immunoreagentów podczas opracowywania niestandardowych testów. Zastosowanie krzywej kalibracyjnej sporządzonej z komercyjnie dostępnego przeciwciała antydocelowego (np. króliczego anty-S1 białka Spike) z następującym po nim przeciwciałem detekcyjnym antygatunkowym może zapewnić spójność wyników analitycznych i umożliwić porównania między wieloma partiami w różnych okresach czasu.
Precyzja międzyseryjna z wykorzystaniem próbek ludzkich: Ocenę precyzji międzyseryjnej powtórzono z użyciem próbek ludzkiej plazmy (n = 5) pobranych w ciągu miesiąca od pierwszych zgłoszonych objawów zakażenia SARS-CoV-2; przeprowadzono ją przy użyciu trzech oddzielnych serii testów (tzn. różnych preparatów zestawów kulek). Wyniki te przedstawiono w Tabeli 4 i wykazują one precyzję z wartością %CV mieszczącą się w typowej górnej granicy progu wynoszącej ≤20%. Średnie wartości %CV dla mian IgG białka Spike S1, nukleokapsydu oraz białka błonowego obliczono odpowiednio na 9,9% (zakres 2,6%-18%), 11,0% (zakres 3,5%-24,4%) i 7,6% (zakres 3,2%-12,9%). Podobne obserwacje poczyniono dla mian IgM i IgA tych trzech analitów, w których wszystkie wartości %CV były <20%. Jedynym wyjątkiem były miana IgM białka błonowego u badanego 5, które następnie wykluczono jako wartość odstająca. Wartości precyzji dla oceny próbek ludzkich są zgodne z wartościami uzyskanymi powyżej dla przeciwciał króliczych, co sugeruje, że testy te można łatwo rekonfigurować w celu oceny mian antygenów u wielu gatunków przy niewielkim wpływie na precyzję analizy. Jak wspomniano wcześniej, zaobserwowano wyraźną niestabilność odczytów w testach białka błonowego, w których wartości MFI były <200, najczęściej w przypadku izotypów IgA i IgM.
Optymalizacja stężenia przeciwciał pierwszorzędowych
Oceniono „czas wychwytu” analitytu przy użyciu kulek sprzężonych z antygenem, a przeciwciała w próbkach osocza lub standardach testowano, modyfikując czas inkubacji pierwszorzędowej (30 min, 1 h, 2 h i 4 h). Różnica w średnim MFI została przedstawiona jako iloraz konkretnego czasu inkubacji i maksymalnego czasu inkubacji, określony jako % Max. na Rysunku 2, pomiędzy inkubacją przez 30 min (czas minimalny) a inkubacją przez 4 h (czas maksymalny). Wartości przy 120 min były optymalne dla mian IgG w przypadku przeciwciał przeciwko Spike S1, Membranowym oraz Nukleokapsydowym, co wskazuje na szybką kinetykę wiązania przeciwciał pierwszorzędowych, umożliwiającą zwiększenie przepustowości analizy. Jednakże wolniejsza kinetyka była obserwowana dla izotypów IgA i IgM (dane nie zostały przedstawione), wykazując szczytowe poziomy wychwytu w punkcie czasowym 4 h, jak pokazano na Rysunku 2. Ogólnie istnieje równowaga między zbliżeniem się do nasycenia analizy a praktyczną oszczędnością czasu przy przeprowadzaniu każdego testu w warunkach produkcyjnych (w celu maksymalizacji przepustowości). W ramach tych ustaleń zaobserwowano sygnały odpowiednie do celów ilościowych przy minimalnych czasach inkubacji wynoszących 30 min dla IgG, 60 min dla IgM oraz 120 min dla IgA.
Optymalizacja stężenia przeciwciał wtórnych
Przetestowano pięć stężeń przeciwciał wtórnych (kozie przeciw ludzkim IgG, sprzężone z PE; kozie przeciw ludzkim IgA, sprzężone z PE; kozie przeciw ludzkim IgM, sprzężone z SB) w zakresach (0,5, 1, 2, 4 i 8 µg/mL). Wszystkie przeciwciała wykazały szeroki zakres sygnałów, bez wyraźnego nasycenia sygnału w żadnym z warunków, co zapewniło liniowość pomiaru dla każdego z tych stężeń. Przykładowo, średni sygnał uzyskany w teście Spike S1 przy użyciu kozich przeciwciał przeciw ludzkim IgM, sprzężonych z SB w stężeniu 0,5 µg/mL, stanowił 13,2% MFI uzyskanego przy maksymalnym sygnale (8 µg/mL), podczas gdy MFI dla 4 µg/mL stanowiło 73,3% MFI odnotowanego przy maksymalnym sygnale. Szczegóły zakresów sygnałów dla pozostałych izotypów przeciwciał Spike S1, przeciwciał przeciw białku błonowemu (Membrane) oraz przeciwciał przeciw białku nukleokapsydu (Nucleocapsid) zamieszczono w Tabeli 5 oraz na Rysunku 3. Z praktycznego punktu widzenia, główna różnica między optymalnym stężeniem przeciwciał wtórnych a wcześniej określonym stężeniem 4 µg/mL przejawia się w czułości testu oraz jego koszcie. Oznacza to, że stężenie przeciwciał wtórnych 8 µg/mL może być pożądane w zastosowaniach przy niskich mianach przeciwciał lub niewielkich ilościach cennych próbek, jednak koszt związany z takimi analizami byłby znacznie wyższy niż przy zastosowaniu wcześniej zdefiniowanego stężenia 4 µg/mL. Z kolei w przypadkach, w których spodziewano się wysokich mian przeciwciał (np. u osób zaszczepionych przeciwko Covid-19 lub przy nieograniczonej ilości surowicy), zastosowanie mniejszych ilości przeciwciał wtórnych (np. 1 µg/mL) pozwoliłoby na uzyskanie korzystnego stosunku kosztów do efektów.
Optymalizacja inkubacji przeciwciała wtórnego
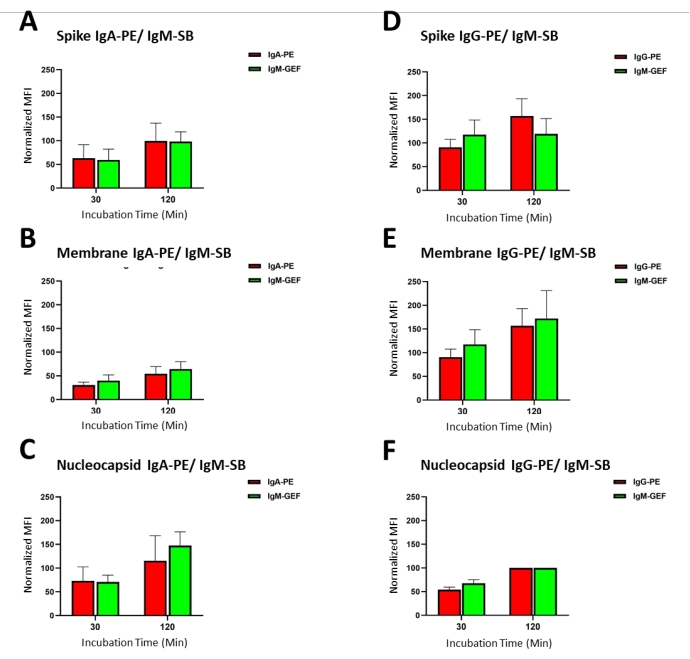
Potencjalny wpływ czasu inkubacji przeciwciała wtórnego zbadano również poprzez modyfikację długości inkubacji (15, 30, 60 i 120 min). Generalnie różnica w średnim MFI, przedstawiona jako iloraz konkretnego czasu inkubacji i maksymalnego czasu inkubacji, określany jako %Max, pomiędzy inkubacją przez 15 min (czas minimalny) a inkubacją przez 120 min (czas maksymalny) nie przekroczyła odpowiednio 30%, 55% i 50% dla przeciwciał przeciwko Spike S1, białku błony (Membrane) oraz białku nukleokapsydu (Nucleocapsid), co wskazuje na szybką kinetykę wiązania przeciwciał wtórnych i możliwość zwiększenia przepustowości analizy. Tabela 6 zawiera szczegóły dotyczące zmian sygnału dla wszystkich czasów inkubacji. Ilustracje sygnałów zaobserwowanych podczas różnych inkubacji w tej analizie przedstawiono na Rysunku 4.
Wydajność i swoistość dwukanałowa
W przypadku każdego anality porównano pojedynczy format raportujący (wyłącznie IgG-PE, wyłącznie IgA-PE lub wyłącznie IgM-SB) z sygnałem generowanym dla tego samego anality w formacie z podwójnym raportowaniem (np. wyłącznie Spike S1 IgG-PE w porównaniu z Spike S1 IgG-PE w połączeniu z Spike S1 IgM-SB w formacie z podwójnym raportowaniem). Do analizy zależności w wynikach tego eksperymentu wykorzystano precyzję testu (wyrażoną jako %CV) dla sygnałów generowanych w obu formatach. Wartości %CV dla testów Spike S1 wyniosły odpowiednio 6,19%, 16,4% i 23% dla IgM, IgG i IgA. W przypadku testu Membrane wartości %CV wyniosły odpowiednio 3,3%, 7,9% i 16,4% dla IgM, IgG i IgA. Wreszcie, test Nucleocapsid wykazał wartości %CV na poziomie odpowiednio 8,7%, 10,3% i 24,2% dla IgM, IgG i IgA. Wartości precyzji zaobserwowane dla izotypów IgM i IgA sugerują, że dłuższy czas inkubacji może zapewnić lepsze wyniki testu ze względu na znane różnice w kinetyce wiązania między tymi klasami immunoglobulin. Rycina 4 przedstawia zgodność między formatami dla różnych stężeń przeciwciał wtórnych.
Aby potwierdzić specyficzność kanałów reporterowych, testowano jeden kanał reporterowy w danej chwili, podczas gdy drugi kanał wyznaczono jako próbę ślepą w celu zbadania sygnału niespecyficznego (efektu przenikania). Wyniki te wskazują na znikomą kontaminację sygnałem krzyżowym między dwoma kanałami reporterowymi, biorąc pod uwagę wysoką specyficzność w całym spektrum warunków. Wyniki te przedstawiono na Rysunku 5. Ogólnie zaobserwowano 6,45% interferencji z kanału 1 do kanału 2. Jednak po uwzględnieniu amplitudy sygnałów, w trybie podwójnego reportera zaobserwowano następujące potencjalne poziomy interferencji: Spike IgG/ IgM na poziomie 71,98%, Spike IgA/ IgM na poziomie 28,11%; Membrane IgG/ IgM na poziomie 7,41%, Membrane IgA/ IgM na poziomie 134,61% oraz Nucleocapsid IgG/ IgM na poziomie 146,03% i Nucleocapsid IgA/ IgM na poziomie 112,13%. W określonej konfiguracji wymagałoby to pomiaru Spike IgM w połączeniu z izotypem IgA, Membrane IgM z izotypem IgM, a pomiarów nukleokapsydu nie wykonywano by w formacie dwukanałowym. Wynik ten może wymagać zbadania odwrócenia strategii znakowania, w której IgA i IgG byłyby mierzone w kanale 2, a IgM w kanale 1.
Ocena zdarzeń serokonwersji po szczepieniu przeciwko Covid-19
Serokonwersję monitorowano u czterech ochotników poprzez ocenę poziomu IgA, IgM i IgG z wykorzystaniem testu Spike S1 w punktach czasowych od okresu przed szczepieniem do czterech miesięcy po zakończeniu cyklu szczepień przeciwko Covid-19. Pomiary przeprowadzono w trybie dwukanałowym (IgG/IgM oraz IgA/IgM, z wyciągnięciem średniej z wartości IgM). Wszyscy ochotnicy otrzymali szczepionkę w ramach dwuetapowego cyklu immunizacji, zgodnie ze standardową praktyką, z 21-dniowym odstępem między pierwszą a drugą dawką. Wykresy odpowiedzi immunologicznej każdego ochotnika przedstawiono na Rysunku 6A-C. Wartości odpowiedzi immunologicznej dla antygenów nukleokapsydu i błony utrzymywały się na poziomie tła dla wszystkich ocenianych immunoglobulin (dane niepokazane), co było zgodne z brakiem udokumentowanej wcześniejszej infekcji SARS-CoV-2 u ochotników przed szczepieniem. Ogólnie zaobserwowane wartości IgA i IgM dla Spike S1 były około 40-krotnie niższe niż miana izotypu IgG; szczytowe miana dla izotypów IgM i IgG osiągnięto już w 14. dniu, natomiast izotyp IgA osiągnął miana szczytowe w czasie od podania drugiej dawki (dzień 0) do 14 dni po drugiej dawce, w zależności od osoby. Warto zauważyć, że miana Spike S1 IgG zaczęły spadać w ciągu czterech miesięcy po zakończeniu szczepienia w stopniu wysoce zmiennym i zależnym od danego ochotnika.
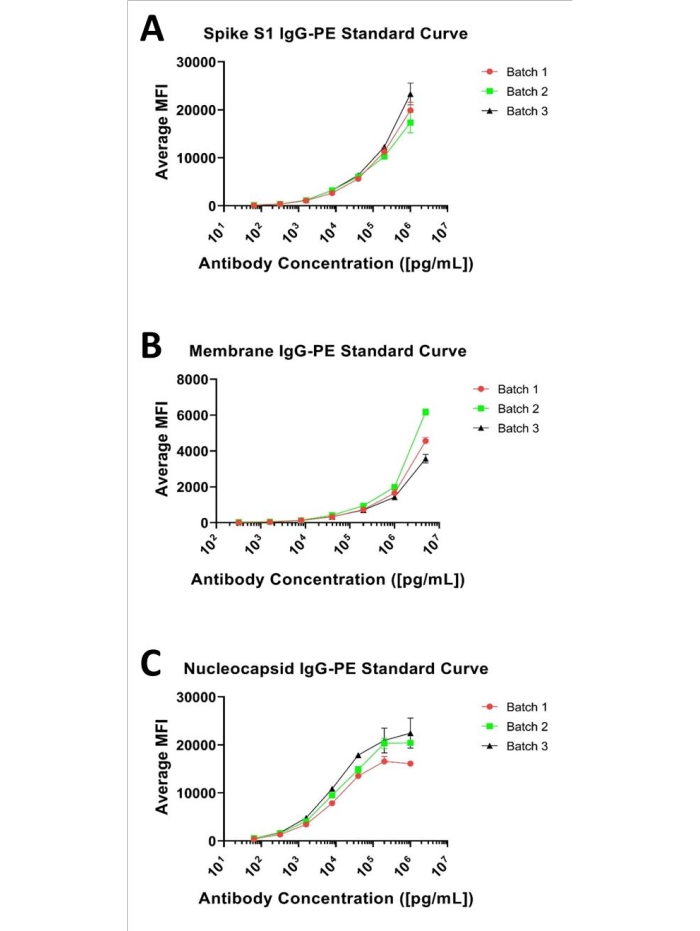
Rysunek 1: Reprezentatywne krzywe wzorcowe 3-plex. Reprezentatywne krzywe wzorcowe dla trzech analitów; przedstawione jako 7-punktowa krzywa rozcieńczeń seryjnych 1:5, zaczynająca się od (A) 1 µg/mL dla Spike S1, (B) 5 µg/mL dla Membrane oraz (C) 1 µg/mL dla Nucleocapsid i przeciwciał. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Rysunek 2: Optymalizacja czasu inkubacji przeciwciała pierwszorzędowego/próbek: Średni sygnał MFI uzyskany przy różnych czasach inkubacji przeciwciała pierwszorzędowego/próbek (wychwytywanie przeciwciał) w zakresie od 30 min do 4 h dla standardów 1-7 (jak wskazano w Tabeli 1). Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.

Rycina 3: Optymalizacja stężenia przeciwciał wtórnych i wydajność dwukanałowa. Krzywe przedstawiają średnią wartość MFI (znormalizowaną do najwyższej odnotowanej wartości w serii) uzyskaną dla testowanych stężeń przeciwciał wtórnych w zakresie od 0,5-8 µg/mL. Każdy pomiar wykonano zarówno w formie testu jednokanałowego, jak i dwukanałowego, aby ocenić różnice w formacie eksperymentalnym. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.

Rycina 4: Optymalizacja czasu inkubacji przeciwciał wtórnych, format dwukanałowy. Reprezentatywne wykresy obserwowanych wartości MFI (znormalizowanych do najwyższej wartości odnotowanej w serii) w zależności od czasu inkubacji z przeciwciałami wtórnymi. Eksperymenty przeprowadzono jako testy dwukanałowe dla kombinacji (A-C) IgA/IgM lub (D-F) IgG/IgM. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
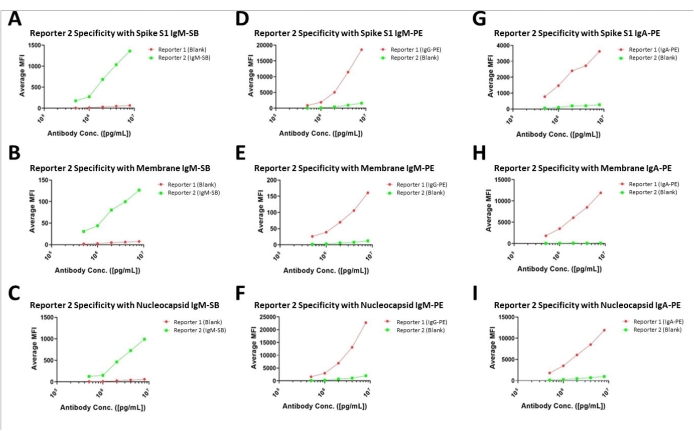
Rycina 5: Ocena swoistości dla testów dwukanałowych. Wyniki testów w formacie dwukanałowym, w których jedną z każdej kombinacji wyznaczono jako próbę ślepą, aby zilustrować brak fluorescencji krzyżowej lub interferencji między kanałami. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
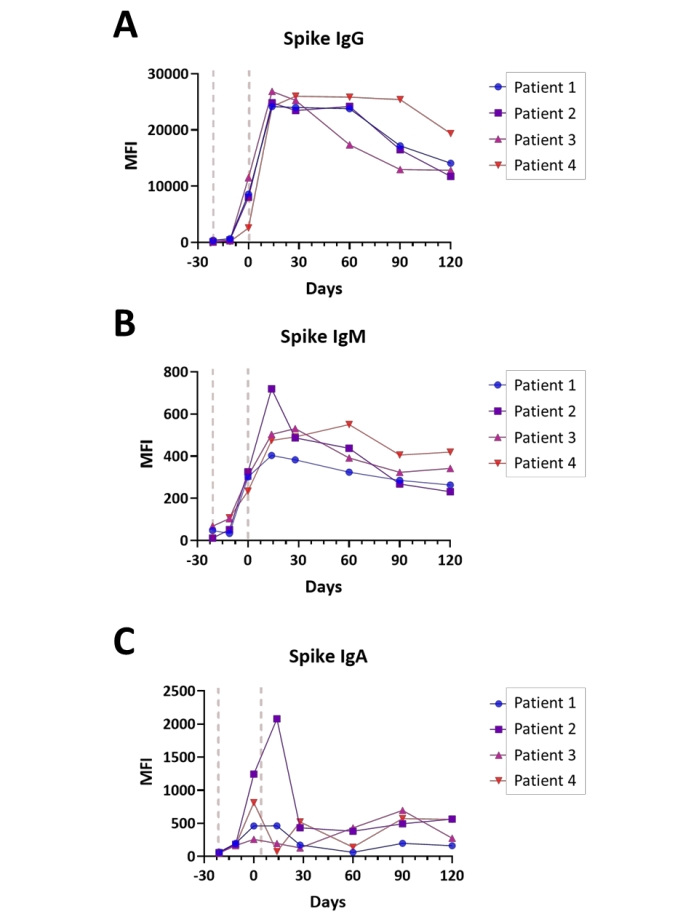
Rysunek 6: Ilustracja serokonwersji po szczepieniu przeciwko Covid-19. Wykresy przedstawiające względne miana przeciwciał (A) IgG, (B) IgM oraz (C) IgA przeciwko antygenowi Spike S1 w przebiegu szczepienia przeciwko Covid-19 (od momentu przed szczepieniem do 4 miesięcy po zakończeniu cyklu); czas podano w dniach w stosunku do zakończenia serii szczepień; zaznaczono ogólne punkty podania szczepionki (linie czerwone). Eksperymenty przeprowadzono w trybie dwukanałowym, zgodnie z opisem w Protokole. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
| Numer standardu | Szereg rozcieńczeń | przeciwciała anty-S1 białka Spike lub anty-N (µg/mL) | anty-błonowe (µg/mL) |
| Pusty | Puste pole | - | - |
| 1 | STD7 1:1 | 1 | 5 |
| 2 | STD6 1:5 | 0.2 | 1 |
| 3 | STD5 1:25 | 0.04 | 0.2 |
| 4 | STD4 1:125 | 0.008 | 0.04 |
| 5 | STD3 1:625 | 0.0016 | 0.008 |
| 6 | STD2 1:3125 | 0.00032 | 0.0016 |
| 7 | STD1 1:15625 | 0.000064 | 0.00032 |
Tabela 1: Seria rozcieńczeń dla krzywych wzorcowych: Tabela czynników rozcieńczenia zastosowanych dla krzywych wzorcowych dla serotypu IgG; przedstawiona jako 7-punktowa krzywa rozcieńczeń seryjnych 1:5, zaczynająca się od 1 µg/mL dla przeciwciał α-Spike S1 i α-Nucleocapsid oraz 5 µg/mL dla przeciwciał α-Membrane.
| Analit | Próbka | Powt. 1 | Powt. 2 | Powt. 3 | Powt. 4 | Średnia | SD | %CV |
| Spike S1 | STD2 | 369.4 | 356.9 | 295.2 | 271.5 | 323.3 | 47.4 | 14.6 |
| STD5 | 3869.1 | 3437 | 3970.2 | 4240.7 | 3879.3 | 334 | 8.6 | |
| Białko błonowe (Membrane) | STD2 | 40.6 | 37.7 | 49.9 | 27.8 | 39 | 9.1 | 23.3 |
| STD5 | 733.2 | 731.3 | 724 | 678.1 | 716.7 | 26 | 3.6 | |
| białko nukleokapsydu (Nucleocapsid) | STD2 | 1746.7 | 1790.8 | 1577.3 | 1664.8 | 1694.9 | 94.2 | 5.6 |
| STD5 | 15598.1 | 14735.5 | 18369.5 | 17408.5 | 16527.9 | 1657.7 | 10 |
Tabela 2: Precyzja wewnątrzanalizy: Procentowy współczynnik zmienności (%CV) obliczony z czterech powtórzeń standardowych mieszanin przeciwciał dla standardu 2 (STD2) i standardu 5 (STD5) w ramach pojedynczej serii analiz w tym samym eksperymencie. Wartości podane dla powtórzeń i średnich reprezentują obserwowane wartości MFI.
| Analit | Próbka | Partia 1 | Partia 2 | Partia 3 | Ave | SD | %CV |
| Spike S1 | STD2 | 383.2 | 424.4 | 379.9 | 395.8 | 24.8 | 6.3 |
| STD5 | 5639.7 | 6062.5 | 6384.3 | 6028.8 | 373.4 | 6.2 | |
| Błona | STD2 | 39.1 | 58.5 | 59.1 | 52.2 | 11.4 | 21.8 |
| STD5 | 732.3 | 941.4 | 701.1 | 791.6 | 130.7 | 16.5 | |
| Nukleokapsyd | STD2 | 1342.6 | 1621 | 1718.2 | 1560.6 | 195 | 12.5 |
| STD5 | 13543.9 | 14843.2 | 17883.4 | 15423.5 | 2227.2 | 14.4 |
Tabela 3: Precyzja międzyseryjna dla próbek standardowych: Procentowy współczynnik zmienności (%CV) obliczony z trzech oddzielnych serii analiz, ocenionych dla standardu 2 i standardu 5 w tym samym eksperymencie. Wartości podane dla powtórzeń i średnich reprezentują obserwowane wartości MFI.
| IgG-PE | IgM-SB | IgA-PE | |||||
| Śr. MFI | %CV | Śr. MFI | %CV | Śr. MFI | %CV | ||
| Spike S1 | Osoba 1 | 8002.3 | 17.7 | 1949.5 | 1.3 | 2045.8 | 5.5 |
| Osoba 2 | 19155.8 | 7.3 | 918.6 | 4.1 | 1684.5 | 3.9 | |
| Osoba 3 | 17865.6 | 18.0 | 549.4 | 3.8 | 961.3 | 8.1 | |
| Osoba 4 | 11901.1 | 2.6 | 1603 | 4.8 | 8736.4 | 5.5 | |
| Osoba 5 | 9801.8 | 4.0 | 1014.1 | 3.0 | 2747.6 | 9.3 | |
| Nukleokapsyd | Osoba 1 | 15097.8 | 11.3 | 1049.7 | 9.9 | 5276.5 | 3.9 |
| Osoba 2 | 15204.3 | 12.1 | 265.9 | 5.2 | 6761.3 | 11.9 | |
| Osoba 3 | 18471.7 | 24.4 | 329.1 | 4.5 | 14308 | 2.9 | |
| Osoba 4 | 16424.7 | 3.5 | 2418.1 | 0.1 | 4234.7 | 4.2 | |
| Osoba 5 | 13344.9 | 3.6 | 225.6 | 10.0 | 13436.5 | 9.7 | |
| Białko błonowe | Osoba 1 | 514.6 | 8.6 | 180.6 | 14.0 | 141.2 | 9.8 |
| Osoba 2 | 196.8 | 5.2 | 57 | 20.7 | 55.5 | 13.0 | |
| Osoba 3 | 553.7 | 12.9 | 54.5 | 21.2 | 191.2 | 18.6 | |
| Osoba 4 | 377.9 | 3.2 | 68.1 | 22.1 | 62 | 2.3 | |
| Osoba 5 | 325.4 | 8.2 | 11.4 | 91.6 | 74.6 | 20.8 |
Tabela 4: Precyzja międzyseryjna dla próbek ludzkich: Średni procentowy współczynnik zmienności (%CV) obliczony z trzech serii analiz przeprowadzonych na próbkach osocza (rozcieńczonych 500-krotnie) pobranych od pięciu osób zakażonych SARS-CoV-2.
| Kolce S1 | Błona | Nukleokapsyd | |||||
| µg/mL | Śr. MFI | % maks. | Średnia MFI | % maks. | Śr. MFI | % maks. | |
| IgM | 0.5 | 186 | 13.2 | 32 | 25.2 | 132.7 | 13.6 |
| 1 | 304.2 | 21.6 | 45.8 | 36 | 194.4 | 19.9 | |
| 2 | 664.5 | 47.2 | 78.8 | 61.9 | 458.2 | 47 | |
| 4 | 1032.1 | 73.3 | 101.3 | 79.6 | 707.8 | 72.6 | |
| 8 | 1407.1 | 100 | 127.2 | 100 | 975 | 100 | |
| IgG | 0.5 | 809.7 | 4.9 | 27.5 | 15 | 1355.6 | 6.3 |
| 1 | 1696.9 | 10.2 | 40.6 | 22.2 | 2782.1 | 13 | |
| 2 | 4543.8 | 27.3 | 68.3 | 37.3 | 6661.2 | 31.2 | |
| 4 | 10003.5 | 60 | 110.7 | 60.5 | 12605.6 | 59 | |
| 8 | 16662.8 | 100 | 182.9 | 100 | 21360.6 | 100 | |
| IgA | 0.5 | 797.4 | 19.3 | 31.1 | 47.2 | 2056.5 | 16.1 |
| 1 | 1529.5 | 37 | 41.4 | 62.8 | 3869 | 30.4 | |
| 2 | 2261.3 | 54.7 | 48.6 | 73.3 | 6648.9 | 52.2 | |
| 4 | 2320.4 | 56.2 | 48.3 | 73.2 | 6548.1 | 51.4 | |
| 8 | 4132.2 | 100 | 65.9 | 100 | 12744.8 | 100 | |
Tabela 5: Optymalizacja stężenia przeciwciał wtórnych: Średnia wartość sygnału MFI uzyskana przy różnych stężeniach przeciwciał wtórnych w zakresie od 0.5 µg/mL do 8 µg/mL. Wartość każdego sygnału jest również przedstawiona jako procent sygnału przy stężeniu 8 µg/mL („Max.”), aby wykazać względną wielkość sygnału.
| S1 białka kolca | Błona | Nukleokapsyd | |||||
| Czas inkubacji (min.) | Śr. MFI | % maks. | Śr. MFI | % Maks. | Śr. MFI | % maks. | |
| IgM | 15 | 1185 | 72.2 | 40.4 | 48.9 | 609.5 | 53.3 |
| 30 | 1416.6 | 86.3 | 58.4 | 70.7 | 894.2 | 78.2 | |
| 60 | 1324.8 | 80.7 | 73.6 | 89.1 | 945.6 | 82.7 | |
| 120 | 1641.2 | 100 | 82.6 | 100 | 1143.2 | 100 | |
| IgG | 15 | 12917.6 | 80.5 | 244.4 | 44.9 | 15429.8 | 80.8 |
| 30 | 14915.4 | 92.9 | 434.7 | 79.9 | 18797 | 98.5 | |
| 60 | 15340.3 | 95.6 | 421.4 | 77.5 | 18694.4 | 97.9 | |
| 120 | 16050.3 | 100 | 544 | 100 | 19085.8 | 100 | |
| IgA | 15 | 3141.9 | 78.2 | 75 | 66.8 | 9103 | 86.6 |
| 30 | 3569.1 | 88.8 | 83.9 | 74.8 | 9563.8 | 91 | |
| 60 | 3539.1 | 88 | 86 | 76.6 | 9555.7 | 90.9 | |
| 120 | 4020 | 100 | 112.2 | 100 | 10512.9 | 100 |
Tabela 6: Optymalizacja czasu inkubacji przeciwciał wtórnych: Średnia wartość sygnału MFI uzyskana przy różnych czasach inkubacji przeciwciał wtórnych w zakresie od 15 min do 120 min. Wartość każdego sygnału przedstawiono również jako procent sygnału przy 120 min („Max.”), aby zobrazować względną wielkość sygnału.
Dyskusja
Ocena odpowiedzi immunologicznej na ekspozycję na SARS-CoV-2, w połączeniu z nadzorem stanu zakażenia opartym na RT-PCR, została dobrze opisana jako recepta na wyjaśnienie przebiegu powrotu do zdrowia po Covid-19, służąca jako środek do identyfikacji osocza ozdrowieńców o potencjalnej wartości terapeutycznej oraz do badania wskaźników infekcji w skali populacji10,11. Różne przykłady zrozumienia serokonwersji u ludzi obejmują macierze białek (antygenów)12, immunobloty13, szybkie konstrukty immunochromatograficzne14 i testy immunoenzymatyczne (ELISA)15,16,17. Każda z wyżej wymienionych technik może oceniać wiele izotypów immunoglobulin indywidualnie z niewielkimi modyfikacjami. Procedury te nie mogą być jednak praktycznie ponownie wykorzystane, aby umożliwić równoległą analizę wielu izotypów, jak przedstawiono w tym manuspekcie, co sprawia, że czynniki związane z kosztem i przepustowością stanowią ograniczenia w ich podawaniu w strategii testowania w skali populacyjnej. Niektóre z tych aplikacji dają również możliwość łączenia poziomów wielu antygenów równolegle, tak jak są prezentowane, lub w zmienionych formatach, takich jak multipleksowy ELISA18,19. Wreszcie, platforma immunobead zapewnia możliwość oceny poziomów wielu antygenów równolegle20,21, ale została ograniczona do jednego epitopu (tj. izotypu immunoglobuliny) na test, chyba że jednak zastosowano najnowszy instrument z możliwościami testowania "dwukanałowego".
W niniejszym raporcie wymieniono protokoły, które zapewniają wiarygodny pomiar wielu epitopów w teście immunokulkowym przy użyciu instrumentu w trybie "dwukanałowym" w studium przypadku serokonwersji osób zaszczepionych Covid-19. Metoda wykazała się doskonałą precyzją (wartości %CV zwykle <20%) przy użyciu ręcznych projektów testów, które można ulepszyć dzięki integracji zautomatyzowanych systemów laboratoryjnych. Czułość testu i zakres dynamiki dla wszystkich wybranych analitów i epitopów były odpowiednie do rutynowych ocen. Chociaż brak dostępnych na rynku immunoodczynników antyantygenowych IgA i IgM ograniczał ilościowe oznaczanie do izotypu IgG, takie ograniczenie nie wyklucza możliwości oferowania ocen półilościowych lub ocen w odniesieniu do określonej próbki w kalibrze22,23.
Zwalidowany test immunobeadowy został przydzielony do zbadania serokonwersji w kohorcie osób zaszczepionych szczepionką Covid-19. W przeciwieństwie do innych podobnych platform, rodzina oprzyrządowania umożliwia poszukiwanie serokonwersji u setek osób dziennie w ręcznym przepływie pracy i tysięcy dziennie w schemacie automatycznym. Ogólnie rzecz biorąc, wyniki te potwierdzają, że podejście "dwukanałowe" ma odpowiednią czułość do opisu wielu epitopów równolegle dla identycznego testu i jest wykonalne w kontekście wieloanalitowym. Różnica w czułości na kanał 1 i kanał 2, jak przeprowadzono odpowiednio w przypadku fikoerytryny i fluoroforów Super Bright 436, może uzasadniać zaprojektowanie konkretnego eksperymentu w celu zapewnienia uzyskania realnych wyników analitycznych dla danego eksperymentu. Oznacza to, że rezerwacja kanału 1 dla epitopów lub analitów o mniejszej częstości występowania może być konieczna do utrzymania zakresu dynamicznego testu, który obejmuje obserwowane wartości niewiadomych. Poza tym projekt testu był oczywisty i powinien być łatwo dostępny dla laboratoriów o ograniczonych możliwościach analitycznych. Z pewnością należy wziąć pod uwagę tę kwestię przy rozważaniu zakłóceń między kanałem 1 a kanałem 2, jak zauważyliśmy na rysunku 5, przy czym zakłócenia z izotypów o wyższej liczebności mogą powodować mylące błędy analityczne dla izotypów o znacznie niższej liczebności, gdy są mierzone w formacie dwukanałowym. Ta potencjalna ingerencja w sytuacje o bardzo różnych stężeniach analitu może stanowić istotne ograniczenie podejścia, jeśli nie zostanie odpowiednio wykorzystana w fazie projektowania testu.
Podsumowując, przedstawiono metodę szybkiego pomiaru miana przeciwciał z głównych izotypów immunoglobulin związanych z odpowiedzią immunologiczną na zakażenie Covid-19 lub szczepienie. Zastosowanie tego podejścia w sposób długofalowy do oceny serokonwersji może dostarczyć informacji, które można lepiej wykorzystać do zarządzania i/lub monitorowania przebiegu choroby lub, alternatywnie, kierowania potencjalnymi programami szczepień przypominających przeciwko Covid-19.
Oświadczenia
Dr Borgia jest wynalazcą testu serologicznego użytego w tym manuskrypcie, który oczekuje na opatentowanie. Artykuł jest przedstawiony w sposób opisowy, bez przedstawionych analiz statystycznych, aby uniknąć potencjalnej stronniczości wynikającej z konfliktu autorów.
Podziękowania
Autorzy pragną podziękować Rush Biomarker Development Core za korzystanie z ich obiektów, Rush Biorepository do rejestracji podmiotów i przetwarzania próbek biologicznych, a także Fundacji Walder's Chicago Coronavirus Assessment Network (Chicago CAN) Initiative granty o numerach SCI16 (J.R.S. i J.A.B.) i 21-00147 (J.R.S. i J.A.B.) oraz nagrodzie od Fundacji Swim Across America (J.A.B.).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 384-dołkowe czarne płytki do mikromiareczkowania polistyrenu | Thermo Fisher | 12-565-346 | |
| Bufor aktywacyjny (0,1 M NaH2PO4, pH 6,2) | Przygotowany w domowym | ||
| buforze testowym (PBS, 1% albumina surowicy bydlęcej, 0,01% polisorbat-20) | Przygotowany w domu | ||
| Albumina surowicy bydlęcej, frakcja szoku cieplnego | MilliporeSigma | A-7888-50G | |
| Bufor sprzęgający (50 mM MES, pH 5,0) | Przygotowany we własnym zakresie | ||
| COVID 19 M Coronavirus Rekombinowane białko matrycowe (6xJego tag) | MyBioSource | MBS8574735 | |
| Jednorazowe końcówki | |||
| EDC (chlorowodorek 1-etylo-3-[3-dimetyloaminopropylo]karbodimidu) | Thermo Fisher | PIA35391 | |
| Albumina kozia, frakcja V w proszku | miliporeSigma | A2514-1G | |
| IgA Koza anty-ludzka, R-PE, poliklonalna | Thermo Fisher | OB205009 | |
| IgG Koza anty-ludzka, R-PE, Poliklonalna | Thermo Fisher | OB204009 | |
| IgG Koza anty-Królik, R-PE, Poliklonalna | Thermo Fisher | OB403009 | |
| IgM Koza anty-ludzka, R-PE, Poliklonalny | Thermo Fisher | ||
| Mysz IgM anty-ludzka, SB 436, klon SA-DA4 | Thermo Fisher | 62999842 | |
| Analizator przyrządów | Luminex Corp. | INTELLIFLEX-RUO | |
| Probówki do mikrowirówek o niskim poziomie wiązania (1,5 ml) | Thermo Fisher | 13-698-794 | |
| MagPlex-C Microspheres, Region XXX | Luminex Corp. | MC10XXX-01 | |
| Hydrat MES (hydrat kwasu 2-(N-Morfolino)etanosulfonowego) | MilliporeSigma | M2933 | |
| Aluminiowa taśma uszczelniająca Microplate | Thermo Fisher | 07-200-683 | |
| Polysorbate-20 | Thermo Fisher | BP337-500 | |
| Quality Biological Inc. PBS, pH 7,2 | Thermo Fisher | 50-751-7328 | |
| Bufor hartujący (PBS, 1% albumina surowicy koziej, 0,01% polisorbat-20) | Przygotowany w domu | ||
| SARS-CoV-2 (2019-nCoV) Białko nukleokapsydu (jego tag) | Sino Biologicals | 40588-V08B | |
| SARS-CoV-2 (2019-nCoV) Białko kolca (podjednostka S1, jego tag) | Sino Biologicals | 40591-V08H | |
| SARS-CoV-2 (2019-nCoV) Przeciwciało RBD Pike, pAb królika | Sino Biologicals | 40592-T62 | |
| SARS-CoV-2 (2019-nCoV) Przeciwciało nukleokapsydowe, mAb królika | Sino Biologicals | 40588-R0004 | |
| Przeciwciało błonowe (IN) SARS-CoV-2 (COVID-19), pAb królika | ProSci | 10-516 | |
| Sulfo-NHS (N-hydroksysulfobursztynimid) | Bufor | ||
| (PBS, 0,01% polisorbatu-20) | Przygotowane we własnym zakresie | ||
| Woda klasy LC/MS | Thermo Fisher | W-64 |
Bibliografia
- Tighe, P. J., Ryder, R. R., Todd, I., Fairclough, L. C. ELISA in the multiplex era: potentials and pitfalls. Proteomics - Clinical Applications. 9, 406-422 (2015).
- Baker, H. N., Murphy, R., Lopez, E., Garcia, C. Conversion of a capture ELISA to a Luminex xMAP assay using a multiplex antibody screening method. Journal of Visualized Experiments: JoVE. (65), e4084(2012).
- Powell, R. L., et al. A multiplex microsphere-based immunoassay increases the sensitivity of siv-specific antibody detection in serum samples and mucosal specimens collected from rhesus macaques infected with SIVmac239. BioResearch Open Access. 2 (3), 171-178 (2013).
- Volpetti, F., Garcia-Cordero, J., Maerkl, S. J. A microfluidic platform for high-throughput multiplexed protein quantitation. PLoS One. 10 (2), 0117744(2015).
- Rabi, F. A., Al Zoubi, M. S., Kasasbeh, G. A., Salameh, D. M., Al-Nasser, A. D. SARS-CoV-2 and coronavirus disease 2019: What we know so far. Pathogens. 9 (3), 231(2020).
- Asif, M., Xu, Y., Xiao, F., Sun, Y. Diagnosis of COVID-19, vitality of emerging technologies and preventive measures. Chemical Engineering Journal. 423, Lausanne, Switzerland. 130189(2021).
- La Marca, A., Capuzzo, M., Paglia, T., Roli, L., Trenti, T., Nelson, S. M. Testing for SARS-CoV-2 (COVID-19): a systematic review and clinical guide to molecular and serological in-vitro diagnostic assays. Reproductive Biomedicine Online. 41 (3), 483-499 (2020).
- Armbruster, D. A., Pry, T. Limit of blank, limit of detection and limit of quantitation. The Clinical Biochemist. Reviews. 29, Suppl 1 49-52 (2008).
- Tarhoni, I., et al. Relationship between circulating tumor-associated autoantibodies and clinical outcomes in advanced-stage NSCLC patients receiving PD-1/-L1 directed immune checkpoint inhibition. Journal of Immunological Methods. 490, 112956(2021).
- Deeks, J. J., et al. Antibody tests for identification of current and past infection with SARS-CoV-2. The Cochrane Database of Systematic Reviews. 6, 013652(2020).
- Mahalingam, S., et al. Landscape of humoral immune responses against SARS-CoV-2 in patients with COVID-19 disease and the value of antibody testing. Heliyon. 7 (4), 06836(2021).
- Ruano-Gallego, D., et al. A multiplex antigen microarray for simultaneous IgG and IgM detection against SARS-CoV-2 reveals higher seroprevalence than reported. Microbial Biotechnology. 14 (3), 1228-1236 (2021).
- Shah, J., et al. IgG and IgM antibody formation to spike and nucleocapsid proteins in COVID-19 characterized by multiplex immunoblot assays. BMC Infectious Diseases. 21 (1), 325(2021).
- Gambino, C. M., et al. Comparison of a rapid immunochromatographic test with a chemiluminescence immunoassay for detection of anti-SARS-CoV-2 IgM and IgG. Biochemia Medica (Zagreb). 30 (3), 030901(2020).
- Algaissi, A., et al. SARS-CoV-2 S1 and N-based serological assays reveal rapid seroconversion and induction of specific antibody response in COVID-19 patients. Scientific Reports. 10, 16561(2020).
- Chiereghin, A., et al. Recent advances in the evaluation of serological assays for the diagnosis of SARS-CoV-2 infection and COVID-19. Frontiers in Public Health. 8, 620222(2020).
- Nicol, T., et al. Assessment of SARS-CoV-2 serological tests for the diagnosis of COVID-19 through the evaluation of three immunoassays: Two automated immunoassays (Euroimmun and Abbott) and one rapid lateral flow immunoassay (NG Biotech). Journal of Clinical Virology: The Official Publication of the Pan American Society for Clinical Virology. 129, 104511(2020).
- Butt, J., et al. From multiplex serology to serolomics-A novel approach to the antibody response against the SARS-CoV-2 proteome. Viruses. 13 (5), 749(2021).
- Byrum, J. R., et al. multiSero: open multiplex-ELISA platform for analyzing antibody responses to SARS-CoV-2 infection. medRxiv. , (2021).
- Dobano, C., et al. Highly sensitive and specific multiplex antibody assays to quantify immunoglobulins m, a, and g against SARS-CoV-2 antigens. Journal of Clinical Microbiology. 59 (2), 01731(2021).
- Schultz, J. S., et al. Development and validation of a multiplex microsphere immunoassay using dried blood spots for SARS-CoV-2 seroprevalence: Application in first responders in first responders in Colorado, USA. Journal of Clinical Microbiology. 59 (6), 00290(2021).
- Beavis, K. G., et al. Evaluation of the EUROIMMUN anti-SARS-CoV-2 ELISA assay for detection of IgA and IgG antibodies. Journal of Clinical Virology: The Official Publication of the Pan Americal Society for Clinical Virology. 129, 104468(2020).
- Jung, J., et al. Clinical performance of a semi-quantitative assay for SARS-CoV2 IgG and SARS-CoV2 IgM antibodies. Clinica Chimica Acta: International Journal of Clinical Chemistry. 510, 790-795 (2020).
Przedruki i uprawnienia
