Niniejszy protokół opisuje wstrzykiwanie domózgowo-komorowe (ICV) dorosłej danio pręgowanej neurotoksycznej 6-hydroksydopaminy (6-OHDA) w brzuszne międzymózgowie (Dn) oraz ocenę upośledzenia i późniejszej regeneracji zachowania podczas pływania po zmianie za pomocą testu otwartego zbiornika, któremu towarzyszy analiza za pomocą oprogramowania do śledzenia wideo.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Ocena lokomotoryczna indukowanego przez 6-hydroksydopaminę modelu choroby Parkinsona u dorosłych ryb danio pręgowanego
W tym artykule
Podsumowanie
Streszczenie
Ograniczenia obecnych metod leczenia opóźniającego utratę neuronów dopaminergicznych w chorobie Parkinsona (PD) zwiększają zapotrzebowanie na alternatywne terapie, które mogą przywrócić te neurony. Obecnie wiele wysiłku poświęca się lepszemu zrozumieniu zjawiska neuroregeneracji przy użyciu przedklinicznych modeli in vivo. Ta zdolność regeneracyjna do samonaprawy jest jednak nieefektywna u ssaków. Zwierzęta inne niż ssaki, takie jak danio pręgowany, stały się zatem doskonałym modelem neuroregeneracyjnym ze względu na jego zdolność do ciągłego samoodnawiania się i bliskiej homologii mózgu do ludzi. W ramach wysiłków na rzecz wyjaśnienia zdarzeń komórkowych związanych z neuroregeneracją in vivo, ustaliliśmy indukowany przez 6-hydroksydopaminę (6-OHDA) model PD oparty na dorosłym danio pręgowanym. Osiągnięto to dzięki zoptymalizowanemu mikrowstrzyknięciu domózgowo-komorowemu (ICV) 99,96 mM 6-OHDA w celu specyficznej ablacji neuronów dopaminergicznych (DpN) w brzusznym międzymózgowiu (Dn) mózgu danio pręgowanego. Immunofluorescencja wykazała ponad 85% ablacji DpN w trzecim dniu po zmianie chorobowej i pełne przywrócenie DpN w miejscu zmiany chorobowej 30 dni po zmianie. W niniejszym badaniu określono upośledzenie, a następnie powrót do pływania danio pręgowanego po uszkodzeniu za pomocą testu w otwartym polu, za pomocą którego określono ilościowo dwa parametry, przebytą odległość (cm) i średnią prędkość (cm/s). Lokomocję oceniano poprzez analizę nagrań poszczególnych ryb z każdej grupy (n = 6) za pomocą oprogramowania do śledzenia wideo. Wyniki wykazały znaczne (p < 0,0001) zmniejszenie prędkości (cm/s) i przebytej odległości (cm) u zespogól zmienionego inaczej w 3 dni po zmianie w porównaniu z pozorowanym. Danio pręgowany, u którego wystąpiła zmiana, wykazywał pełną regenerację zachowań związanych z pływaniem 30 dni po zmianie. Obecne wyniki sugerują, że dorosły danio pręgowany z uszkodzeniami 6-OHDA jest doskonałym modelem o powtarzalnej jakości, który ułatwia badania nad neuroregeneracją w chorobie Parkinsona. Przyszłe badania nad mechanizmami leżącymi u podstaw neuroregeneracji, a także wewnętrznymi i zewnętrznymi czynnikami, które modulują ten proces, mogą dostarczyć ważnych informacji na temat nowych strategii leczenia zastępowania komórek przeciwko PD.
Wprowadzenie
Choroba Parkinsona (PD), choroba charakteryzująca się sztywnością mięśni, drżeniem spoczynkowym i bradykinezją, jest najszybciej rozwijającą się chorobą neurologiczną na świecie1,2. Ryzyko i częstość występowania PD gwałtownie wzrastają wraz z wiekiem, szczególnie u osób w wieku 50 lat i starszych3. Etiologia i patogeneza choroby Parkinsona do tej pory pozostawała słabo poznana. To często sprawia, że wczesny początek choroby Parkinsona pozostaje niezdiagnozowany. Obecnie brak dopaminy i utrata neuronów dopaminergicznych (DpN) u pacjentów z chorobą Parkinsona są silnie związane z manifestacją objawów motorycznych4. Wykorzystując ten związek, zaprojektowano kilka metod leczenia, które działają bezpośrednio jako substytucja dopaminy (tj. lewodopa) lub kompensują utratę DpN (tj. głęboką stymulację mózgu). Chociaż terapie te przynoszą korzyści objawowe, nie modyfikują pogarszającego się przebiegu choroby5. W związku z tą istotną słabością zaproponowano terapię wymiany komórek. Skuteczność tego podejścia jest jednak niespójna, biorąc pod uwagę wyzwania związane z przygotowaniem przeszczepu, kontrolą wzrostu komórek i niestabilnością fenotypu. Terapia zastępcza komórek, która wzbudziła obawy etyczne, stwarza również ryzyko wywołania guzów mózgu i niepożądanych reakcji immunologicznych6,7.
Ograniczenia obecnych strategii terapeutycznych doprowadziły do większego nacisku na regenerację DpN jako potencjalne podejście w leczeniu PD. Regeneracja DpN lub neuroregeneracji okazała się jednym z obiecujących przełomów w leczeniu PD, nie tylko ze względu na jej potencjał jako nowej metody terapeutycznej, ale także jako sposób na zrozumienie mechanizmu choroby8, 9. Podejście to koncentruje się na przywróceniu funkcji neuronalnych poprzez różnicowanie, migrację i integrację istniejących komórek progenitorowych z uszkodzonymi obwodami10. W celu dokładniejszego zbadania neuroregeneracji przeprowadzono różne badania in vivo. Stwierdzono, że kręgowce, takie jak ssaki, i, generują nowe komórki mózgowe po urazie11,12. Wśród kręgowców bardziej poszukiwane są ssaki ze względu na ich genetyczne podobieństwo do ludzi. Ssaki wykazują jednak ograniczoną i słabą zdolność naprawczą w ośrodkowym układzie nerwowym (OUN), która może przetrwać do dorosłości po ulegnięciu uszkodzeniu mózgu13. Ogólnie rzecz biorąc, ssaki nie nadają się jako modele zwierzęce do zrozumienia neuroregeneracji, biorąc pod uwagę, że niewielka liczba wytwarzanych neuronów nie będzie wystarczająca do przywrócenia uszkodzonych obwodów nerwowych obserwowanych w PD. W związku z tym model oparty na teleostach, szczególnie u danio pręgowanego, jest bardzo preferowany ze względu na jego wysoką szybkość proliferacji, zdolność do ciągłego samoodnawiania się i bliską homologię mózgu z ludźmi14,15.
Danio pręgowany jest najczęściej używany do badania zaburzeń ruchowych w PD16. Model PD oparty na danio pręgowanym jest zwykle indukowany przez neurotoksyny, które obejmują 1-metylo-4-fenylo-1,2,3,6-tetrahydropirydynę (MPTP) i 6-hydroksydopaminę (6-OHDA)17. Chociaż skuteczne w indukowaniu specyficznej utraty DpN i spadku poziomu dopaminy, modele oparte na MPTP nie naśladują ściśle warunków PD, ponieważ utrata DpN nie jest ograniczona wyłącznie do klasy CNS18. Niezdolność 6-OHDA do przekroczenia bariery krew-mózg ograniczyła jego wpływ na zmiany komórkowe i funkcjonalne w mózgu, gdy jest podawany doczaszkowo, a nie domięśniowo19. Obwodowe podawanie 6-OHDA spowodowało globalne obniżenie poziomu dopaminy w całym układzie nerwowym20. Podczas gdy podanie 6-OHDA do płynu mózgowo-rdzeniowego spowodowało ablację DpN w całym OUN21, co nie naśladuje stanu widocznego w PD, w którym utrata DpN następuje specyficznie w istocie czarnej ludzkiego mózgu. Wręcz przeciwnie, podanie ICV 6-OHDA specyficznie wywołało znaczną ablację DpN w obszarze brzusznego Dn w mózgu danio pręgowanego, co bardzo przypominało istotę czarną (substantia nigra22. Co ciekawe, powrót do zdrowia DpN odnotowano 30 dni po zmianie wywołanej przez 6-OHDA, a neurony te przetrwały w ciągu życia23,24. Funkcjonalne odzyskiwanie DpN wykazano poprzez lokomotoryczną ocenę przebytej odległości (cm) i średniej prędkości (cm/s) przy użyciu modelu PD opartego na indukowanym przez 6-OHDA dorosłego danio pręgowanego22.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
Niniejsze badanie zostało zatwierdzone przez Komitet ds. Badań i Etyki Zwierząt (CARE), Universiti Technologi MARA (UiTM) [Numer referencyjny: UiTM CARE 346/2021, z dnia 7 maja 2021 r.].
UWAGA: Wykorzystano opublikowane protokoły22,25,26 dotyczące standardowej hodowli i utrzymania dorosłego modelu zebrafish PD z uszkodzeniem indukowanym przez 6-OHDA. Eksperymenty przeprowadzono na dorosłych samcach zebrafish (Danio rerio) w wieku powyżej pięciu miesięcy o ustandaryzowanej długości 3,2-3,7 cm.
1. Hodowla rybek zebrafish i przygotowania do mikroiniekcji przed-ICV
- Utrzymuj ryby w napowietrzanym zbiorniku z wodą w kontrolowanej temperaturze 28 ± 1.0 °C. Do hodowli i utrzymania rybek zebrafish przez cały czas trwania eksperymentu używaj wody destylowanej mineralizowanej komercyjną solą morską (1 g/L)27.
- Przechowuj maksymalnie 25 ryb w zbiorniku 45 L lub jedną rybę na 1.8 L wody i poddaj je cyklowi fotoperiodycznemu obejmującemu 14 h światła i 10 h ciemności. Karm ryby co najmniej dwa razy dziennie granulatami z dodatkiem liofilizowanych dżdżownic.
- Przygotuj skoncentrowany roztwór zapasowy metansulfonianu trikainy (MS-222), rozpuszczając 2.5 g MS-222 i 5 g wodorowęglanu sodu w 250 mL wody destylowanej. Rozcieńcz 2 mL roztworu zapasowego, aby przygotować 200 mL roboczego roztworu anestetycznego.
- Przygotuj 99.96 mM 6-OHDA, najpierw rozpuszczając 0.2 mg kwasu askorbinowego w 1 mL 0.9% w/v sterylnego filtrowanego NaCl. Przefiltruj roztwór przez filtr 0.2 mikrona przed dodaniem do niego 25 mg 6-OHDA w formie proszku. Przygotowuj roztwór na świeżo przed każdym wstrzyknięciem i przechowuj go w ciemności w temperaturze 4 °C.
UWAGA: Podczas pracy z odczynnikami należy używać odpowiedniego sprzętu ochrony osobistej (tj. rękawiczek, fartucha laboratoryjnego i maseczki ochronnej) oraz stosować zasady dobrej praktyki laboratoryjnej. Wszelkie czynności z odczynnikami powinny być wykonywane w komorze bezpieczeństwa biologicznego.
2. Znieczulenie i wstrzyknięcie do komór mózgowej (ICV) u rybek zebrafish
- Głodzić ryby przez 24 h, aby uniknąć wymiotów podczas znieczulenia. Znieczulić rybę poprzez zanurzenie jej w pojemniku zawierającym 0,01% w/v roztwór MS-222 przez około 1 min lub do momentu ustania wszelkich widocznych ruchów mięśniowych.
- Umieścić znieczuloną rybę na nasączonej wodą gąbce pod stereomikroskopem i regularnie zwilżać rybę.
- Zidentyfikować miejsce wstrzyknięcia na podstawie przecięcia szwu czołowego (metopic suture, MS), szwu wieńcowego (coronal suture, CS) i szwu strzałkowego (sagittal suture, SS), który łączy kości czołowe i ciemieniowe czaszki mózgu danio przebrany.
- Wyonać w czaszce mały otwór o powierzchni 1,0 mm2 za pomocą ostrej igły 27 G, kierując się konkretną pozycją anatomiczną na czaszce danio przebrany (Ryc. 1A,B).
- Obniżyć mikrokapilarny wtryskiwacz pod kątem 60°, aż osiągnie głębokość 1 200 µm od dachu czaszki danio przebrany (Ryc. 1C). Nacisnąć limit Z, aby utrwalić pozycję.
- Ustawić początkowe ciśnienie wtrysku na 4000 hPa i ciśnienie kompensacyjne na 10 hPa. Ustawić czas trwania wtrysku na 0,3 s. Zmniejszać intensywność wtrysku przy każdym kolejnym podaniu.
- Wstrzyknąć 0,5 µL neurotoksyny 6-OHDA o stężeniu 99,96 mM (lub 0,9% w/v soli fizjologicznej dla grupy kontrolnej sham) i pozostawić mikrokapilarę na 20 s. Przez cały proces wstrzykiwania nadal zwilżać rybę wodą destylowaną, aby zapobiec wysychaniu.
- Powoli wyciągnąć mikrokapilarę i reanimować rybę pod bieżącą wodą destylowaną. Umieścić rybę w izolowanym zbiorniku rekonwalescencyjnym i usunąć wszelkie czynniki rozpraszające, które mogłyby potencjalnie zakłócić proces powrotu do zdrowia.
- Przepłukać mikrokapilarę przed kolejnym wtryskiem, aby usunąć zatory i upewnić się, że intensywność wtrysku jest wystarczająca, by podać pożądaną objętość 0,5 µL 6-OHDA.
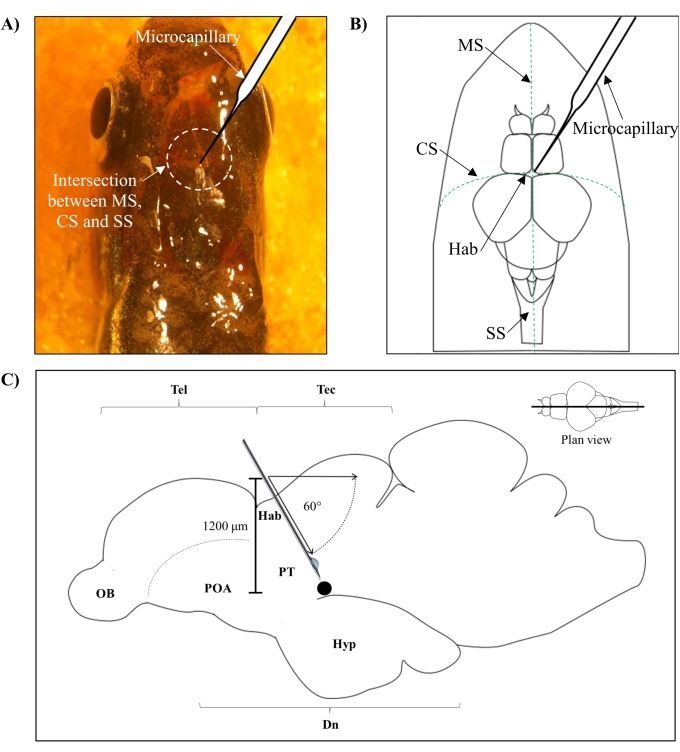
Rysunek 1: Miejsce iniekcji neurotoksyny 6-OHDA. (A) Punkt wprowadzenia mikrokapilary jest wyznaczony przez przecięcie się szwu czołowego (MS), szwu wieńcowego (CS) oraz szwu strzałkowego (SS), które łączy przednią i ciemieniową część czaszki mózgu danio prążkowanego (widok z góry). (B) Schematyczny rysunek (widok z góry) czaszki i mózgu danio prążkowanego przedstawia mikrokapilarę, która jest opuszczana bezpośrednio nad habenulą (Hab), oraz punkt jej wprowadzenia na przecięciu półkul. (C) Schematyczny rysunek (przekrój strzałkowy) mózgu danio prążkowanego przedstawia kąt iniekcji i głębokość penetracji. Czarna kropka reprezentuje miejsce uszkodzenia znajdujące się nad obszarem docelowym, brzuszna część podwzgłowia. Skróty: 6-OHDA: 6-hydroksydopamina, CS: szew wieńcowy, Dn: podwzgłowia, Hab: habenula, Hyp: podwzgórze, MS: szew czołowy, OB: opuszka węchowa, POA: obszar przedwzrokowy, PT: guzek tylny, SS: szew strzałkowy, Tec: dach mózgowia, Tel: koniec przedni. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
3. Ocena funkcji lokomocyjnych
UWAGA: Ocena lokomocyjna danio przebranych (n = sześć / grupa; grupa kontrolna vs grupa po uszkodzeniu) była przeprowadzana indywidualnie za pomocą testu otwartego zbiornika zgodnie z uznanymi protokołami28,29 w trzecim dniu oraz 30. dniu po uszkodzeniu 6-OHDA.
- Rejestracja wideo
- Umieścić zbiornik eksperymentalny (długość 20 cm, szerokość 11,5 cm, wysokość 13 cm) z ściankami oklejonymi białym papierem na podwyższonej platformie (Rysunek 2A).
- Oświetlić zbiornik od dołu za pomocą źródła światła. Napełnić zbiornik wodą destylowaną (wypełnienie w 80%-90%) i utrzymać temperaturę na poziomie 28 ± 1,0 °C. Temperaturę mierzyć termometrem i regulować za pomocą komercyjnego grzałki akwariowej.
- Po minimum 2 min aklimatyzacji zarejestrować zachowanie pływackie ryb z rzutu w górę w płaszczyźnie dwuwymiarowej (2D) areny eksperymentalnej za pomocą kamery wideo przez 5 min (Rysunek 2B). Aby uniknąć niespójności w zachowaniu pływackim między pierwszą a ostatnią serią nagrań, czas aklimatyzacji nie powinien przekroczyć 10 min30.
- Przeanalizować materiały wideo przy użyciu oprogramowania do śledzenia wideo z protokołem open-tank w celu pozyskania danych o przebytej odległości (cm) i średniej prędkości (cm/s) każdego osobnika.
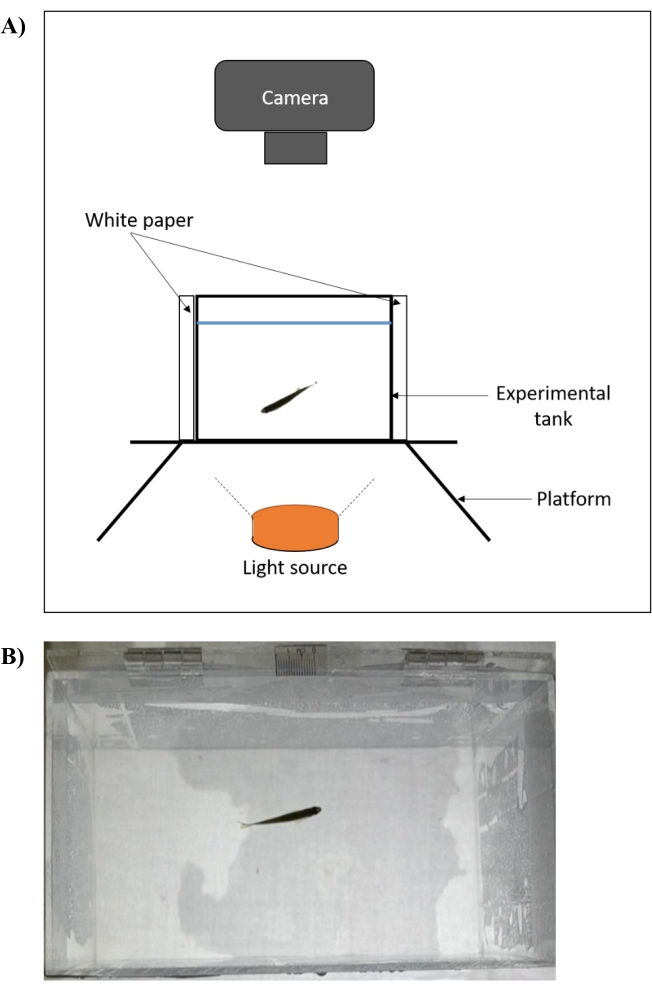
Rycina 2: Ustawienie eksperymentalne testu w otwartym zbiorniku do oceny zachowania lokomocyjnego danio pręgowanych. (A) Zbiornik eksperymentalny (widok z przodu) umieszczony jest na podwyższonej platformie, która jest oświetlona od dołu. Cztery ściany zbiornika są obklejone białym papierem, a nagrania są rejestrowane osiowo. Temperaturę mierzy się za pomocą termometru i reguluje na poziomie 28 ± 1.0 °C przy użyciu komercyjnego grzałki akwariowej. (B) Zrzut ekranu (widok z góry) z nagrania wideo zarejestrowanego za pomocą opisanego układu. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
- Analiza danych
- Kliknij dwukrotnie ikonę, aby otworzyć oprogramowanie do śledzenia wideo. Kliknij kartę File i wybierz Create New Empty Experiment. Pozwoli to użytkownikowi na dostosowanie parametrów eksperymentu zgodnie z celami badania.
- Kliknij kartę Protocol, wybierz Video Sources, a następnie kliknij Add New Video Source. Kliknij dostępną listę rozwijaną i wybierz opcję Video File. Spowoduje to wyświetlenie okna przeglądania plików, z którego można wybrać interesujące nagrania wideo.
- Kliknij podkartę Apparatus i wybierz ikonę Rectangular, aby skonfigurować aparaturę. Przeciągnij prostokątną ikonę tak, aby pokryła całą arenę eksperymentalną. Odpowiednio ustaw pasek skali i wprowadź wartość liczbową pomiaru skali użytego w sekcji długości linijki. W niniejszym eksperymencie do testu otwartego zbiornika użyto skali 10 mm.
- Ustaw kolor zwierząt, wybierając opcję The Animals are Darker than The Apparatus Background. Pozostałe dostępne opcje w sekcji Tracking pozostaw zgodnie z domyślnymi ustawieniami.
- W podkarcie Zones kliknij wcześniej narysowany aparat. Strefa ta jest ustawiona jako strefa standardowa, której położenie jest takie samo dla wszystkich testów.
- W sekcjach harmonogramu testów i raportu danych testowych wybierz następujące opcje: Test Duration, Total Distance Traveled oraz Average Speed. Pozostałe dostępne testy na liście są opcjonalne i zależą od zainteresowań badawczych naukowca.
- W karcie Experiment przypisz zwierzęta do ich grup testowych, wpisując nazwę grupy w sekcji Name oraz liczbę zwierząt w grupie w sekcji Number of Animals.
- Przejdź do karty Tests, aby uruchomić eksperyment. Kliknij ikonę Start Test i poczekaj, aż wszystkie filmy zostaną przeanalizowane.
- W karcie Results kliknij ikonę View the Report, aby wyświetlić dane lokomocyjne w formie raportu tekstowego.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
W niniejszym eksperymencie oceniono zmiany w zachowaniu pływakowym dorosłych danio pręgowanych po mikroiniekcji dokomorowej (ICV) 6-OHDA. Wybór 6-OHDA jako neurotoksyny wynikał z faktu, że substancja ta nie przenika przez barierę krew-mózg, co pozwoliło na specyficzną i ukierunkowaną ablację DpN w obszarze zainteresowania – brzusznej części diencefalonu (Dn)16. Subpopulacja DpN w tym miejscu wykazuje podobieństwo anatomiczne do subpopulacji DpN w ludzkiej istocie czarnej, części zwartej (substanti...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
W ramach prowadzonych prac udało się przeprowadzić ocenę lokomotoryczną znanego modelu PD opartego na dorosłym daniu pręgowanym, indukowanym przez 6-OHDA. Cały eksperyment składał się z trzech głównych etapów: preparatów do mikroiniekcji przed ICV, mikroiniekcji ICV u danio pręgowanego oraz oceny lokomotorycznej. Aby zapewnić zdrowy powrót do zdrowia dorosłych ryb danio pręgowanego po procedurze mikroiniekcji ICV i dobre wyniki eksperymentalne, w niniejszym badaniu zalecono pewne dobre praktyki dla każdego etapu.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy deklarują brak konfliktu interesów.
Podziękowania
Ta praca była wspierana przez Ministerstwo Szkolnictwa Wyższego Malezji w ramach Programu Grantów na Badania Podstawowe [600-IRMI/FRGS 5/3 (033/2019)].
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Materiały | |||
| 6-hydroksydopamina (6-OHDA) | Sigma-Aldrich, Missouri, Stany Zjednoczone | 162957 | |
| Kwas askorbinowy | Thermo Fisher Scientific, Kalifornia, USA | FKC#A/8882/53 | |
| Jednorazowa pipeta Pasteura, 3 ml | Thermo Fisher Scientific, Kalifornia, USA | FB55348 | |
| Probówka do mikrowirówek, 0,2 ml | Eppendorf, Hamburg, Niemcy | 30124332 | |
| Nice kolba stożkowa, 100 ml | Evergreen Engineering & Zasoby, Semenyih, Malezja | SumYau0200 | |
| Sól fizjologiczna buforowana fosforanami (PBS) | Sigma-Aldrich, Missouri, USA | P4417 | |
| Wodorowęglan sodu | Sigma-Aldrich, Missouri, USA | S5761 | |
| Chlorek sodu | Merck, Darmstadt, Niemcy | 106404 | |
| Mikroskop stereoskopowy | Nikon, Tokio, Japonia | SMZ745 | |
| Trikaina metanosulfonian (MS-222) | Sigma-Aldrich, Missouri, Stany Zjednoczone | E10521 | |
| Equipment | |||
| ANY-labirynt oprogramowanie | Stoelting Co., Illinois, USA-wersja | 7.0; oprogramowanie do śledzenia wideo | |
| Cubis II Micro Lab Balance | Sartorius, Gö ttingen, Niemcy | SE 2 | |
| Mikrowtryskiwacz FemtoJet IV | Eppendorf, Hamburg, Niemcy | 5192000035 | |
| Femtotip II, sterylna kapilara iniekcyjna | Eppendorf, Hamburg, Niemcy | 5242957000 | |
| Mikromanipulator InjectMan 4 | Eppendorf, Hamburg, Niemcy | 5192000027 | |
| Przenośna lampa LED | MR. DIY, Selangor, Malezja | 9023251 | 20 mAh |
| PELCO Pro Superstop, offset, drobne końcówki | Ted Pella, Kalifornia, USA | 5367-12NM | |
| Grzejnik akwariowy Shanda | Akwarium Yek Fong, Selangor, Malezja | SDH-228 | |
| Sera Precision, Heinsberg, Niemcy | 52525 | ||
| Kamera wideo | Nikon, Tokio, Japonia | D3100 |
Bibliografia
- Dorsey, E. R., et al. regional, and national burden of Parkinson's disease, 1990-2016: a systematic analysis for the Global Burden of Disease Study 2016. Lancet Neurology. 17 (11), 939-953 (2018).
- Maserejian, N., Vinikoor-Imler, L., Dilley, L. Estimation of the 2020 global population of Parkinson's Disease (PD). Movement Disorder Council. 35 (1), 198(2020).
- Hirsch, L., Jette, N., Frolkis, A., Steeves, T., Pringsheim, T. The Incidence of Parkinson's Disease: A Systematic Review and Meta-Analysis. Neuroepidemiology. 46 (4), 292-300 (2016).
- Przedborski, S. The two-century journey of Parkinson disease research. Nature Review Neuroscience. 18 (4), 251-259 (2017).
- Cookson, M. R. Disease-Modifying Targets in Neurodegenerative Disorders. , Academic Press. Ch. 6 157-174 (2017).
- Jamebozorgi, K., et al. Cellular and molecular aspects of Parkinson treatment: Future therapeutic perspectives. Molecular Neurobiology. 56 (7), 1-13 (2018).
- Parmar, M., Grealish, S., Henchcliffe, C. The future of stem cell therapies for Parkinson disease. Nature Review Neuroscience. 21 (1), 1-13 (2020).
- Foltynie, T. Can Parkinson's disease be cured by stimulating neurogenesis. Journal of Clinical Investigation. 125 (3), 978-980 (2015).
- Winner, B., Winkler, J. Adult neurogenesis in neurodegenerative diseases. Cold Spring Harbour Perspect Biology. 7 (4), 021287(2015).
- Huang, C., et al. Nerve guidance conduits from aligned nanofibers: improvement of nerve regeneration through longitudinal nanogrooves on a fiber surface. ACS Applied Materials & Interfaces. 7 (13), 7189-7196 (2015).
- Alunni, A., Bally-Cuif, L. A comparative view of regenerative neurogenesis in vertebrates. Development. 143 (5), 741-753 (2016).
- Dietz, V., Schwab, M. E. From the rodent spinal cord injury model to human application: promises and challenges. Journal of Neurotrauma. 34 (9), 1826-1830 (2017).
- La Rosa, C., Bonfanti, L. Brain plasticity in mammals: An example for the role of comparative medicine in the neurosciences. Frontiers in Veterinary Science. 5 (274), 1-8 (2018).
- Ferretti, P., Prasongchean, W. Neural Stem Cells in Development, Adulthood and Disease. , Springer. 1-21 (2015).
- Vijayanathan, Y., et al. Adult endogenous dopaminergic neuroregeneration against Parkinson's Disease: Ideal animal models. Neurotoxicity Research. 39 (2), 504-532 (2021).
- Vaz, R. L., Outeiro, T. F., Ferreira, J. J. Zebrafish as an animal model for drug discovery in Parkinson's disease and other movement disorders: a systematic review. Frontier Neuroscience. 9, 347(2018).
- Nie, S., et al. Small molecule TrkB agonist deoxygedunin protects nigrostriatal dopaminergic neurons from 6-OHDA and MPTP induced neurotoxicity in rodents. Neuropharmacology. 99, 448-458 (2015).
- Schober, A. Classic toxin-induced animal models of Parkinson's disease: 6-OHDA and MPTP. Cell Tissue Research. 318 (1), 215-224 (2004).
- Betarbet, R., Sherer, T. B., Greenamyre, J. T. Animal models of Parkinson's disease. Bioessays. 24 (4), 308-318 (2002).
- Anichtchik, O. V., Kaslin, J., Peitsaro, N., Scheinin, M., Panula, P. Neurochemical and behavioural changes in zebrafish Danio rerio after systemic administration of 6-hydroxydopamine and 1-methyl-4-phenyl-1,2,3,6-tetrahydropyridine. Journal of Neurochemistry. 88 (2), 443-453 (2004).
- Fiametti, L. O., Correa, C. N., Castro, L. M. d Peptide profile of zebrafish brain in a 6-OHDA-induced Parkinson model. Zebrafish. 18 (1), 55-65 (2021).
- Vijayanathan, Y., et al. 6-OHDA-lesioned adult zebrafish as a useful Parkinson's disease model for dopaminergic neuroregeneration. Neurotoxicity Research. 32 (3), 496-508 (2017).
- Caldwell, L. J., et al. Regeneration of dopaminergic neurons in adult zebrafish depends on immune system activation and differs for distinct populations. Journal of Neuroscience. 39 (24), 4694-4713 (2019).
- Zupanc, G. K., Hinsch, K., Gage, F. H. Proliferation, migration, neuronal differentiation, and long-term survival of new cells in the adult zebrafish brain. Journal of Comparative Neurology. 488 (3), 290-319 (2005).
- Lawrence, C. The husbandry of zebrafish (Danio rerio): a review. Aquaculture Research. 269 (1-4), 1-20 (2007).
- Reed, B., Jennings, M. Guidance on the Housing and Care of Zebrafish Danio rerio. Royal Society for the Prevention of Cruelty to Animals (RSPCA). , 7-53 (2011).
- Avdesh, A., et al. Regular care and maintenance of a zebrafish (Danio rerio) laboratory: an introduction. Journal of Visualized Experiments: JoVE. (69), e4196(2012).
- Altenhofen, S., et al. Tebuconazole alters morphological, behavioral and neurochemical parameters in larvae and adult zebrafish (Danio rerio). Chemosphere. 180, 483-490 (2017).
- Bridi, D., Altenhofen, S., Gonzalez, J. B., Reolon, G. K., Bonan, C. D. Glyphosate and Roundup alter morphology and behavior in zebrafish. Toxicology. 392, 32-39 (2017).
- Wright, D., Krause, J. Repeated measures of shoaling tendency in zebrafish (Danio rerio) and other small teleost fishes. Nature Protocols. 1 (4), 1828-1831 (2006).
- Pienaar, I. S., Götz, J., Feany, M. B. Parkinson's disease: insights from non-traditional model organisms. Progress in Neurobiology. 92 (4), 558-571 (2010).
- Becker, T., Becker, C. G. Axonal regeneration in zebrafish. Current Opinion in Neurobiology. 27, 186-191 (2014).
- Collymore, C., Tolwani, A., Lieggi, C., Rasmussen, S. Efficacy and safety of 5 anesthetics in adult zebrafish (Danio rerio). Journal of the American Association for Laboratory Animal Science. 53 (2), 198-203 (2014).
- Katz, E. M., et al. The stability and efficacy of tricaine methanesulfonate (MS222) solution after long-term storage. Journal of the American Association for Laboratory Animal Science. 59 (4), 393-400 (2020).
- Thiele, S. L., Warre, R., Nash, J. E. Development of a unilaterally-lesioned 6-OHDA mouse model of Parkinson's disease. Journal of Visualized Experiments: JoVE. (60), e3234(2012).
- Neiffer, D. L., Stamper, M. A. Fish sedation, analgesia, anesthesia, and euthanasia: considerations, methods, and types of drugs. Institute for Laboratory Animal Research. 50 (4), 343-360 (2009).
- Barbosa Júnior, A., et al. Zebrafish Protocols for Neurobehavioral Research. 66, Springer. 323-330 (2012).
- Cocchiaro, J. L., Rawls, J. F. Microgavage of zebrafish larvae. Journal of Visualized Experiments: JoVE. (72), e4434(2013).
- Stewart, A., et al. Modeling anxiety using adult zebrafish: a conceptual review. Neuropharmacology. 62 (1), 135-143 (2012).
- Sykes, D. J., Suriyampola, P. S., Martins, E. P. Recent experience impacts social behavior in a novel context by adult zebrafish (Danio rerio). PLOS ONE. 13 (10), 0204994(2018).
- Collymore, C., Tolwani, R. J., Rasmussen, S. The behavioral effects of single housing and environmental enrichment on adult zebrafish (Danio rerio). Journal of the American Association for Laboratory Animal Science. 54 (3), 280-285 (2015).
- Grossman, L., et al. Characterization of behavioral and endocrine effects of LSD on zebrafish. Behavioural Brain Research. 214 (2), 277-284 (2010).
- Stewart, A., et al. Homebase behavior of zebrafish in novelty-based paradigms. Behavioural Processes. 85 (2), 198-203 (2010).
- Abozaid, A., Tsang, B., Gerlai, R. The effects of small but abrupt change in temperature on the behavior of larval zebrafish. Physiology and Behavior. 227, 113169(2020).
- Sekhar, M., Singh, R., Bhat, A., Jain, M. Feeding in murky waters: acclimatization and landmarks improve foraging efficiency of zebrafish (Danio rerio) in turbid waters. Biology Letters. 15 (7), 1-5 (2019).
- Valcarce, D. G., Martínez-Vázquez, J. M., Riesco, M. F., Robles, V. Probiotics reduce anxiety-related behavior in zebrafish. Heliyon. 6 (5), 03973(2020).
- Tunbak, H., Vazquez-Prada, M., Ryan, T. M., Kampff, A. R., Dreosti, E. Whole-brain mapping of socially isolated zebrafish reveals that lonely fish are not loners. eLife. 9, 55863(2020).
- Shams, S., Seguin, D., Facciol, A., Chatterjee, D., Gerlai, R. Effect of social isolation on anxiety-related behaviors, cortisol, and monoamines in adult zebrafish. Behavioral Neuroscience. 131 (6), 492-504 (2017).
- Burghardt, G. M., et al. Perspectives - Minimizing observer bias in behavioral studies: A review and recommendations. Ethology. 118 (6), 511-517 (2012).
- Kalueff, A. V., et al. Towards a comprehensive catalog of zebrafish behavior 1.0 and beyond. Zebrafish. 10 (1), 70-86 (2013).
- Franco-Restrepo, J. E., Forero, D. A., Vargas, R. A. A review of freely available, open-source software for the automated analysis of the behavior of adult zebrafish. Zebrafish. 16 (3), 223-232 (2019).
- Beal, M. F. Parkinson's disease: a model dilemma. Nature. 466 (7310), 8-10 (2010).
- Jha, U., Thirumalai, V. Neuromodulatory selection of motor neuron recruitment patterns in a visuomotor behavior increases speed. Current Biology. 30 (5), 788-801 (2020).
- Reimer, M. M., et al. Dopamine from the brain promotes spinal motor neuron generation during development and adult regeneration. Developmental Cell. 25 (5), 478-491 (2013).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
