Obecny protokół opisuje ekstrakcję aminokwasów niebiałkowych z matryc biologicznych poprzez wytrącanie białek kwasu trichlorooctowego (TCA) i hydrolizę kwasową przed analizą za pomocą chromatografii cieczowej i tandemowej spektrometrii mas
.Artykuł metodologiczny
Ekstrakcja aminokwasów niebiałkowych z cyjanobakterii do analizy chromatografii cieczowej i tandemowej spektrometrii mas
W tym artykule
Podsumowanie
Streszczenie
Aminokwasy niebiałkowe (NPAA) to duża klasa aminokwasów (AA), które nie są genetycznie kodowane do translacji na białka. Analiza NPAA może dostarczyć kluczowych informacji na temat wychwytu i/lub funkcji komórek, szlaków metabolicznych i potencjalnej toksyczności. β-metyloamino-L-alanina (BMAA) jest neurotoksycznym NPAA wytwarzanym przez różne gatunki glonów i wiąże się ze zwiększonym ryzykiem chorób neurodegeneracyjnych, co doprowadziło do znacznego zainteresowania badawczego. Istnieje wiele sposobów ekstrakcji AA do analizy, z których najczęstszą jest chromatografia cieczowa z tandemową spektrometrią mas, wymagającą wytrącania białek, a następnie kwasowej hydrolizy osadu białkowego. Badania nad obecnością BMAA w gatunkach glonów dają sprzeczne wyniki, a główną przyczyną jest użycie niezwalidowanego przygotowania/ekstrakcji i analizy próbki. Podobnie jak w przypadku większości NPAA, wytrącanie białek w 10% wodnym TCA i hydroliza dymiącym HCl jest najbardziej odpowiednią formą ekstrakcji dla BMAA i jego izomerów aminoetyloglicyny (AEG) i kwasu 2,4-diaminomlasłowego (2,4-DAB). Niniejszy protokół opisuje etapy zwalidowanej metody ekstrakcji NPAA powszechnie stosowanej w laboratoriach badawczych i dydaktycznych.
Wprowadzenie
Aminokwasy to związki chemiczne, które zawierają co najmniej jedną aminową i karboksylową grupę funkcyjną. Niektóre aminokwasy zawierają również grupę iminową, funkcjonalną grupę kwasową inną niż karboksylowa; Inne aminokwasy mają grupy aminowe, które nie są przyłączone do grupy α-węglowej1. Istnieje ponad 500 aminokwasów2, z których 22 są znane jako aminokwasy białkowe używane do kodowania genetycznego w syntezie białek rybosomalnych3. Te 22 aminokwasy można dalej podzielić na niezbędne i nieistotne. Aminokwasy egzogenne są niezbędne do prawidłowego funkcjonowania organizmu i mogą być pozyskiwane tylko ze źródeł zewnętrznych. Aminokwasy endogenne mogą być syntetyzowane w organizmie. Klasyfikacja 22 aminokwasów na egzogenne i nieistotne jest unikalna dla poszczególnych gatunków. Wszystkie inne aminokwasy to aminokwasy niebiałkowe (NPAA), które nie są kodowane do syntezy białek. Aminokwasy, zarówno białkowe, jak i niebiałkowe, mogą również odgrywać rolę sygnalizacyjną w organizmie i działać jako pośrednicy metaboliczni4. Ze względu na ich ważne i zróżnicowane role, poziomy aminokwasów mogą zapewnić wgląd w stan organizmu, funkcjonalność, szlaki metaboliczne itp. Istnieją dwa główne mechanizmy, dzięki którym aminokwasy mogą być włączane do łańcucha polipeptydowego: synteza białek rybosomalnych, która wykorzystuje 22 aminokwasy w kodowaniu, oraz synteza peptydów nierybosomalnych, która wraz z aminokwasami białkowymi pozwala na wykorzystanie niektórych NPAA w syntezie. Niektóre NPAA mogą naśladować aminokwasy białkowe, co może prowadzić do ich nieprawidłowego włączania do peptydów i białek. Błędne włączenie powoduje nieprawidłowe fałdowanie białek, co z kolei ma szkodliwe skutki5, takie jak niewłaściwe włączenie NPAA L-3,4 dihydroksyfenyloalaniny (L-DOPA) w miejsce tyrozyny, negatywnie wpływając na funkcje komórkowe i zdrowie6,7. Dodatkowym źródłem wbudowanych NPAA jest modyfikacja potranslacyjna (PTM) reszt aminokwasowych. Reszty aminokwasowe są modyfikowane z różnych powodów, w tym zmian w konformacji, stabilności i funkcjonalności peptydów lub białek. Po hydrolizie białka lub peptydów zawierających PTM, te zmodyfikowane reszty aminokwasowe są uwalniane do ich wolnej postaci NPAA8,9.
NPAA β-metyloamino-L-alanina (BMAA) wytwarzana przez cyjanobakterie, okrzemki i bruzdnice10 to podejrzewana neurotoksyna, która jest podejrzewana jako czynnik przyczyniający się do różnych chorób neurodegeneracyjnych, takich jak stwardnienie zanikowe boczne/parkinsonizm-demencja (ALS-PDC)11,12, stwardnienie zanikowe boczne i choroba Alzheimera13. Sugeruje się, że BMAA jest błędnie włączone do łańcucha polipeptydowego białek w miejsce L-seryny14 i/lub innych aminokwasów białkowych. Błędne włączenie BMAA może prowadzić do nieprawidłowego fałdowania białek, co skutkuje odkładaniem się agregatów białkowych w neuronach14. W ciągu ostatniej dekady zainteresowanie BMAA znacznie wzrosło. Odkryto, że szeroka gama gatunków sinic ze środowisk słodkowodnych, morskich i słonawych wytwarza BMAA15, co prowadzi do ich powszechnego rozprzestrzeniania się w różnych ekosystemach16,17. Ponadto wykazano, że BMAA biomagnifikuje poprzez łańcuch pokarmowy do ludzkiej sieci pokarmowej18,19. Ze względu na potencjalne skutki zdrowotne, brak zrozumienia i niezgodności toksyczności BMAA, konieczne jest kontynuowanie dalszych badań, dopóki toksyczność BMAA nie zostanie ostatecznie zrozumiana lub BMAA nie zostanie uznane za bezpieczne20,21.
Analizę aminokwasów w próbkach biologicznych można podzielić na cztery główne etapy: przygotowanie próbki, derywatyzacja aminokwasów, separacja i detekcja oraz identyfikacja i kwantyfikacja. Chromatografia cieczowa z tandemową spektrometrią mas (LC-MS/MS) jest preferowaną metodą analizy, ponieważ zapewnia ukierunkowaną i powtarzalną separację i analizę aminokwasów.
Techniki przygotowania próbek do analizy próbek sinic i innych glonów obejmują głównie metodę ekstrakcji aminokwasów w ich wolnych i związanych z białkami formach. Z biegiem lat metody ekstrakcji pozostały względnie spójne ze wspólnymi elementami, w tym desolwatacją próbki w celu oddzielenia wolnych aminokwasów od ich związanej formy, a następnie wytrącaniem białek i uwalnianiem związanych aminokwasów poprzez hydrolizę kwasem solnym (HCl) w podwyższonych temperaturach22. Ta forma ekstrakcji została zoptymalizowana pod kątem aminokwasów białkowych i zastosowana w NPAA. Jednak wykrycie i oznaczanie ilościowe BMAA i jego izomerów (Rysunek 1), aminoetyloglicyny (AEG) i kwasu 2,4-diaminomałowego (2,4-DAB) w tym samym gatunku sinic wykazało niespójne wyniki w literaturze, z możliwym wyjaśnieniem polegającym na różnicach w warunkach wzrostu i/lub szczepie glonów wytwarzających różne lub żadne ilości BMAA23. Argumentowano, że bardziej prawdopodobnym wyjaśnieniem niespójności w wykrywaniu i kwantyfikacji BMAA i jego izomerów są niezatwierdzone protokoły eksperymentalne, stosowanie szerokiego zakresu technik analitycznych i niewystarczająca szczegółowość eksperymentalna w raportowanych metodach16,24, co prowadzi do nieodtwarzalnych danych międzylaboratoryjnych. Jednak Glover i in.25 i Banack26 niedawno opracowali i zatwierdzili technikę analityczną do wykrywania i kwantyfikacji BMAA i jego izomerów przy użyciu ultra-sprawnej chromatografii cieczowej (UPLC)-MS/MS zgodnie z wytycznymi Międzynarodowego Towarzystwa Chemików Analitycznych (AOAC), Farmakopei Amerykańskiej i FDA niezbędną do walidacji w jednym laboratorium.
Te eksperymenty walidacyjne koncentrowały się na separacji i wykrywaniu BMAA i jego izomerów i nie zajmowały się niespójnościami w protokołach przygotowania próbek. Lage et al.27 porównali wydajność trzech popularnych metod ekstrakcji do ilościowego oznaczania BMAA i jego izomerów w próbkach cyjanobakterii za pomocą LC-MS/MS: ekstrakcja do fazy stałej (SPE) wolnych aminokwasów28,29; metoda wytrącania białek obejmująca ekstrakcję metanolem i wytrącanie acetonu30; i najczęściej stosowaną metodą ekstrakcji BMAA, wytrącanie białek kwasem trichlorooctowym (TCA)31. Doszli do wniosku, że wytrącanie białka TCA było optymalnym protokołem, dającym wyższe stężenia BMAA w próbkach testowych w porównaniu z innymi metodami ekstrakcji. Ich badanie potwierdziło ekstrakcję TCA z derywatyzacją BMAA przy użyciu karbaminianu 6-aminochinolilo-N-hydroksysukcynimidylu (AQC) w matrycy cyjanobakterii, zapewniając ustalony przewodnik do uzyskiwania wiarygodnych i odtwarzalnych danych BMAA. Ekstrakcja aminokwasów TCA jest akceptowaną i powszechną techniką przygotowania próbki, którą można również zastosować do innych matryc. Należy jednak wziąć pod uwagę stabilność aminokwasu podczas hydrolizy, aby zapobiec degradacji lub utlenianiu, które można przezwyciężyć za pomocą modyfikatorów chemicznych i środków redukujących32. Ekstrakcja TCA jest rutynowo stosowana i nauczana nowym studentom i chociaż protokół jest szeroko opisywany, wizualna pomoc w stosowaniu tej metody jest cennym zasobem, zapewniającym prawidłowe i konsekwentne wykonywanie.
Chromatografia odwróconej fazy jest powszechnie stosowana do rozdzielania aminokwasów, wymagając etapu derywatyzacji przed analizami. Derywatyzacja aminokwasów, takich jak BMAA, pozwala na retencję chromatograficzną i może zwiększyć rozdzielczość między izomerami. Zwiększa również masę cząsteczkową i poprawia jonizację w spektrometrze mas. Do analizy aminokwasów za pomocą LC-MS/MS użyto kilku odczynników do derywatyzacji, w tym chloromrówczanu propylu (PCF)33, 6-aminochinolilo-N-hydrosysukcynimidylokarbaminian (AQC)27, chloromrówczan 9-fluorenylometylu (FMOC)34 i chlorek dansylu (DC)35. Jednak jedyne zatwierdzone techniki analizy BMAA używały PCF36, albo AQC24,26,37 jako odczynnik do derywatyzacji.
Zakres tego protokołu skupia się na ekstrakcji TCA NPAA z matryc cyjanobakteryjnych. Jest to pracochłonna metoda, która jest rutynowo stosowana i nauczana w akademickich i przemysłowych laboratoriach badawczych w oparciu o manuskrypty, które mogą być mało szczegółowe; w związku z tym protokół ten zawiera szczegółowe informacje na temat procedury i technik związanych z przygotowaniem próbek do analizy wolnego i związanego BMAA jako aminokwasu modelowego.
Protokół
Gatunek sinic Merismopedia został wykorzystany w niniejszym badaniu38.
1. Przygotowanie surowej próbki
- Zebrać szumowiny glonów z interesującego nas źródła wodnego lub z kolby z hodowlą cyjanobakterii i umieścić je w probówce wirówkowej o pojemności 50 ml38.
UWAGA: Próbkę należy zamrozić w temperaturze -20 °C w celu późniejszej ekstrakcji i rozmrozić przed następnym etapem. - Odwirować probówki zawierające próbkę o masie 3 500 x g przez 10 minut w temperaturze 25 °C. Zdekantować supernatant do pojemnika na odpady i wyrzucić go do odpadów biologicznych.
UWAGA: Supernatant może być zarezerwowany do przyszłej analizy egzosomu. - Bezpiecznie przykryć probówkę zawierającą osad próbki folią uszczelniającą (patrz Tabela materiałów) i przebić kilka otworów w folii za pomocą ostrej, długiej pęsety. Przechowywać probówkę w pozycji pionowej w temperaturze -80 °C przez 30 minut.
- Włączyć i zrównoważyć liofilizator przy ciśnieniu 0,1 mbar i temperaturze −80 °C (~30 min).
UWAGA: Parametry (krok 1.4) są zoptymalizowane dla liofilizatora używanego w niniejszym badaniu (patrz Tabela materiałów). Postępuj zgodnie ze standardowymi procedurami operacyjnymi zgodnie z modelem liofilizatora dostępnym w laboratorium lub ustaw najniższą możliwą temperaturę, jeśli model liofilizatora nie spada tak nisko, jak −80 °C.- Umieść probówkę wirówkową w pozycji pionowej w szklanym pojemniku liofilizatora i umieść ją w zamrażarce o temperaturze -80 °C na 5 minut, aby schłodzić słoik.
- Wyjmij szklany pojemnik z zamrażarki i załóż gumową pokrywkę.
- Upewnij się, że uchwyt na gumowym zaworze wylotowym liofilizatora jest odpowietrzony do atmosfery (skierowany do góry) i mocno przymocuj szklany pojemnik.
- Bardzo powoli przekręć uchwyt gumowego zaworu wylotowego do pozycji skierowanej w dół, aby wystawić słoik na działanie próżni i pozwól na liofilizację do 24 godzin, aby zapewnić sublimację całego płynu.
- Aby uwolnić próżnię w słoiku, przekręć uchwyt do pozycji skierowanej do góry, odłącz szklany pojemnik i wyjmij liofilizowane próbki.
- Za pomocą wagi analitycznej zważyć 15-50 mg wysuszonych granulek próbki do probówki wirówkowej o pojemności 15 ml.
UWAGA: Próbki można umieścić w temperaturze -80 °C, jeżeli na tym etapie nie są one poddawane dalszej obróbce.
2. Liza komórkowa i frakcjonowanie wolnych NPAA
- Dodać 100 μl ze 100 ng/ml wzorca D5-2,4-DAB (patrz tabela materiałów) za pomocą mikropipety do probówki z próbką (opcjonalnie).
- Dodać odpowiednio 300-600 μl 10% w/v wodnego roztworu trichlorooctowego (TCA, patrz tabela materiałów) lub 300-600 μl 11,7%-13,3% TCA, jeśli dodaje się wzorzec D5-2,4-DAB.
UWAGA: Wybierz objętość wodnego roztworu TCA, która całkowicie pokrywa osad. - Umieścić probówki z próbkami w pojemniku wypełnionym kruszonym lodem.
- Użyj sonikatora sondy (patrz Tabela materiałów) o średnio-wysokiej mocy (70%) i poddaj próbkę lizie przez 1 minutę, postępując zgodnie z poniższymi krokami.
UWAGA: Zapewnij odpowiednie środki ochrony osobistej za pomocą nauszników tłumiących hałas.- Postępuj zgodnie z odpowiednimi protokołami bezpieczeństwa, przygotowując się do użycia sonikatora sondy, umieszczając oznakowanie użytkowe na drzwiach, przeprowadzając sonikację w dygestoriach i używając nauszników tłumiących hałas.
- Włącz sonikator i wprowadź następujące parametry: amplituda, 70%; czas, 1 min.
- Rozpyl 70% etanolu na niestrzępiącą się chusteczkę papierową (patrz tabela materiałów) i wytrzyj sondę.
- Całkowicie zanurz koniec sondy w sample i naciśnij start.
- Gdy sonikator sondy zatrzyma się, umieść probówkę wirówkową zawierającą próbkę na lodzie na 1 minutę.
- Aby upewnić się, że komórki są poddawane lizie, powtórz kroki 2.4.3-2.4.5 jeszcze raz.
- Umieścić próbkę w lodówce w temperaturze 4 °C na 12-24 godziny, aby umożliwić wytrącenie białka.
- Odwirować 10% wodną próbkę TCA o sile 3 500 x g przez 15 minut w temperaturze 8 °C.
- Za pomocą mikropipety przenieść supernatant do probówki o pojemności 2 ml z napisem "Wolna frakcja".
- Mikropipeta 400 μl 10% wodnego TCA do probówki wirówkowej zawierającej pozostały osad próbki i rozdrobnić osad przez mieszanie wirowe lub za pomocą końcówki mikropipety.
- Powtórzyć kroki 2.6-2.7, przenosząc supernatant do tej samej probówki o pojemności 2 ml z "wolną frakcją".
- Mikropipetę 400 μl 10% TCA/acetonu do probówki wirówkowej z pozostałym osadem i rozdrobnić osad za pomocą wirowania lub końcówki mikropipety.
- Odwirować 10% próbkę TCA/acetonu o sile 3 500 x g przez 15 minut w temperaturze 8 °C. Za pomocą mikropipety przenieść supernatant do probówki o pojemności 2 ml z napisem "Frakcja wolna".
- Umieść probówkę "Wolna frakcja" z otwartą pokrywą w parowniku odśrodkowym (patrz Tabela materiałów) do momentu usunięcia wszystkich lotnych cieczy (co najmniej 1 godzina).
- Gdy próbka jest wolna od lotnych cieczy, przykryj probówkę folią uszczelniającą i przebij folię kilkoma otworami za pomocą ostrej, długiej pęsety. Umieścić próbkę w zamrażarce o temperaturze -80 °C.
- Odliofilizować próbkę "wolnej frakcji", powtarzając wszystkie kroki w kroku 1.4.
- Mikropipeta 200 μl 20 mM kwasu solnego (HCl) do probówki "Frakcja wolna" w celu rozpuszczenia liofilizowanej próbki i umieszczenia jej w zamrażarce w temperaturze -80 °C.
UWAGA: "Wolna frakcja" próbki jest gotowa do filtracji w kroku 4. Pozostały osad będzie dalej przetwarzany w kolejnych etapach w celu frakcjonowania białka.
3. Frakcjonowanie NPAA związanych z białkami
- Użyj grawera do szkła, aby oznaczyć szklane fiolki ze szczegółami próbki w celu identyfikacji.
UWAGA: Mocny kwas może rozproszyć etykietowanie atramentem; Dlatego zaleca się grawerowanie etykiet na szkle. - Mikropipeta 100 μl wzorca 100 ng/mL D5-2,4-DAB na osad próbki (opcjonalnie).
- Mikropipetę 400 μl 100% acetonu na osad próbki i rozdrobnić osad za pomocą mieszania wirowego lub końcówki mikropipety.
- Za pomocą mikropipety o pojemności 1 ml o pojemności 1 000 μl przenieść umyte i ponownie zawieszone osady do odpowiedniej fiolki ze szklaną skorupą.
UWAGA: Kolejne 400 μl 100% acetonu można dodać do mieszanego osadu, aby pomóc w całkowitym przeniesieniu osadu do fiolki ze szklaną otoczką. W razie potrzeby można to powtórzyć po raz trzeci. - Odwirować przy 8 000 x g przez 5 minut w temperaturze 25 °C i zdekantować ciecz do odpadów biologicznych.
- Umieść pozostały granulat w parowniku odśrodkowym, aż cała ciecz zostanie usunięta, a granulka wyschnie (~1 h).
- Przygotować fiolkę do hydrolizy próżniowej, dodając 1 ml 6 M HCl do dna fiolki do hydrolizy.
- Za pomocą pęsety ostrożnie włóż oznaczone fiolki zawierające wysuszone próbki do fiolki do hydrolizy, zapewniając pionową, stabilną pozycję.
UWAGA: Fiolki z pustą skorupką mogą być używane do utrzymania fiolek z próbkami w pozycji pionowej, jeśli liczba próbek jest mniejsza niż pojemność fiolki do hydrolizy. - Przymocuj pokrywkę do fiolki do hydrolizy i naciśnij czerwone pokrętło na pokrywce, aby zamknąć zawór.
- Włącz pompę próżniową, przymocuj rurkę próżniową do główki pokrywki fiolki do hydrolizy i naciśnij zielone pokrętło na pokrywie, aby otworzyć zawór.
- Pozwolić, aby pompa próżniowa (patrz Tabela Materiałów) usunęła powietrze z fiolki przez 1 minutę.
- Zamknąć fiolkę, naciskając czerwone pokrętło na wieczku fiolki do hydrolizy, wyłączyć pompę próżniową i wyjąć rurkę próżniową.
- Przymocuj gumową rurkę do kurka z azotem na stole laboratoryjnym i lekko odkręć kran. Umieść kciuk na końcu rurki, uszczelnij ją i licz, aż gaz zacznie uciekać wraz ze wzrostem ciśnienia. To będą ramy czasowe dla następnego kroku. Dostosuj przepływ gazu do odpowiednich ram czasowych.
- Przymocuj drugi koniec gumowej rurki do główki wieczka fiolki do hydrolizy, a następnie natychmiast naciśnij zielone pokrętło pokrywki. Policz do czasu określonego w kroku 3.13 i szybko naciśnij czerwone pokrętło na pokrywie i wyjmij gumową rurkę.
- Powtórzyć kroki 3.10-3.14 dwukrotnie, aby upewnić się, że szklana fiolka do hydrolizy jest wolna od powietrza i wypełniona azotem.
- Umieścić fiolkę do hydrolizy w piekarniku nagrzanym do 110 °C na 16-18 godzin.
- Za pomocą rękawic kuchennych wyjmij szklaną fiolkę do hydrolizy z piekarnika i pozwól jej ostygnąć w dygestorii przez 10 minut. Wewnątrz dygestorium, patrząc tyłem do siebie, naciśnij zielone pokrętło, aby uwolnić ciśnienie i gaz.
- Użyj pęsety, aby usunąć fiolki z muszlami z fiolki do hydrolizy.
- Rozpuścić hydrolizowane granulki próbki za pomocą mikropipetowania 200 μl 20 mM HCl do fiolki z otoczką. Upewnij się, że osad został ponownie zawieszony przez wirowanie lub za pomocą końcówki pipety.
- Odwirować fiolki z otoczką zawierającą rozpuszczone granulki próbki przez 2 minuty w temperaturze 5 300 x g i temperaturze 25 °C.
4. Filtrowanie próbek
- Probówki filtracyjne o pojemności 2 ml (patrz tabela materiałów) zawierające filtry membranowe porowe 0,2 μm oznaczyć jako "Frakcja wolna" i "Frakcja białkowa".
- Przenieść odtworzone próbki z etapu 2.15 (frakcja wolna) i etapu 3.20 (frakcja białkowa) do odpowiednich probówek filtracyjnych.
- Umieścić je w wirówce na 30 minut w temperaturze 5 000 x g i temperaturze 25 °C.
- Wyjmij filtry z rurek filtracyjnych i zakryj je. Próbki są teraz gotowe do derywatyzacji aminokwasów w kroku 5.
UWAGA: Próbki można umieścić w zamrażarce o temperaturze -80 °C w celu przechowywania do późniejszej derywatyzacji i analizy.
5. Derywatyzacja aminokwasów
- Próbki należy oznaczyć za pomocą chloromrówczanu propylu (PCF)39 lub karbaminianu 6-aminochinolilo-N-hydrosysukcynimidylu (AQC)40 zgodnie z instrukcjami producenta (patrz Tabela materiałów).
Wyniki
Ilustracja protokołu ekstrakcji została przedstawiona na Rysunku 2 jako skrócony przewodnik referencyjny. Wyniki uzyskane przez Violi i współpracowników38 wybrano jako reprezentatywne dla wyniku pozytywnego w tym protokole ekstrakcji dla analizy izomerów BMAA z cyjanobakterii. Hodowano dziewiętnaście pojedynczych gatunków cyjanobakterii z 11 słodkowodnych stanowisk wschodniej Australii. Stosując ten sam protokół, izomery BMAA wyekstrahowano do frakcji wolnej i białkowej, poddano derywatyzacji PCF, a następnie przeanalizowano za pomocą LC-MS/MS. Siedemnaście izolatów cyjanobakterii dało wynik pozytywny dla BMAA, a wszystkie 19 zawierało izomer 2,4-DAB. Wynik pozytywny potwierdza się przy użyciu zwalidowanej metody LC-MS/MS i obserwacji co najmniej trzech przejść monitorowania wielu reakcji (MRM), z których jedno służy jako jon kwantyfikujący, a dwa jako jony kwalifikujące w oczekiwanym czasie retencji. Reprezentatywny chromatogram MRM standardu zawierającego BMAA i jego izomery, oznaczonego liniami w określonych kolorach, przedstawiono na Rysunku 3. Obecność i stężenie BMAA oraz izomerów we wszystkich 19 próbkach, z podziałem na stężenia w frakcjach wolnej i związanej, podsumowano w Tabeli 1. Pozytywną detekcję wszystkich trzech izomerów zaobserwowano w frakcji wolnej gatunku Merismopedia pobranego z jeziora Liddell (NSW, Australia), gdzie frakcja wolna zawierała BMAA w stężeniu 68,38 µg/g suchej masy (DW) ± 2,25 µg/g DW, 2,4-DAB w stężeniu 1 223,98 µg/g DW ± 20,7 µg/g DW oraz AEG w stężeniu 125,27 µg/g DW ± 4,19 µg/g DW. Chromatogramy MRM przedstawiono na Rysunku 4. Aby zilustrować wynik negatywny dla BMAA i jego izomerów w próbce, na Rysunku 5 przedstawiono chromatogram frakcji związanej gatunku Microcystis flos-aquae pobranego z Walka Water Works (NSW, Australia). Podczas gdy frakcja związana nie zawierała BMAA, 2,4-DAB i/lub AEG, jej frakcja wolna zawierała wszystkie trzy izomery w stężeniach odpowiednio 79,86 µg/g DW ± 1,59 µg/g DW, 1 156,15 µg/g DW ± 8,46 µg/g DW oraz 433,83 µg/g DW ± 8,92 µg/g DW.
W ten sposób, dzięki zastosowaniu tego protokołu, Violi i wsp.38 potwierdzili obecność izomerów BMAA w słodkowodnych cyjanobakteriach ze wschodniej Australii i ustalili, które z tych cyjanobakterii posiadają zdolność do produkcji toksyn.
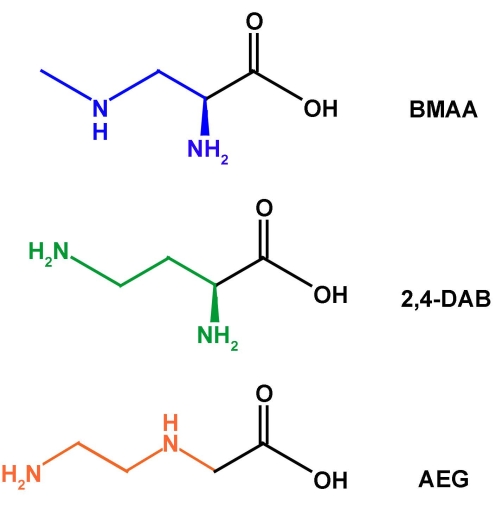
Rycina 1: Struktura chemiczna BMAA oraz jego izomerów 2,4-DAB i AEG. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
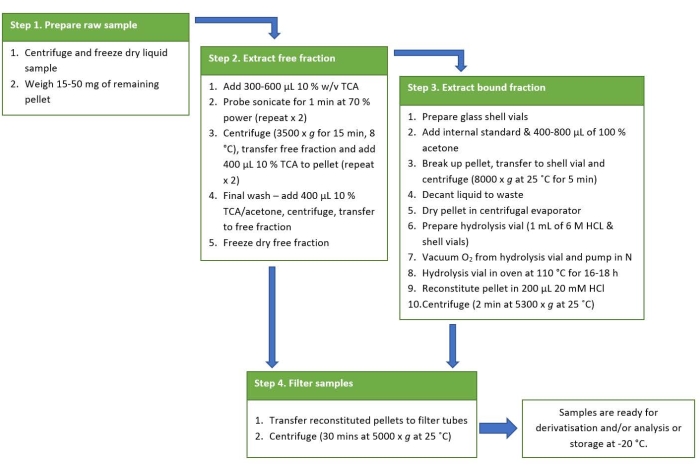
Rysunek 2: Podsumowujący schemat referencyjny protokołu ekstrakcji. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
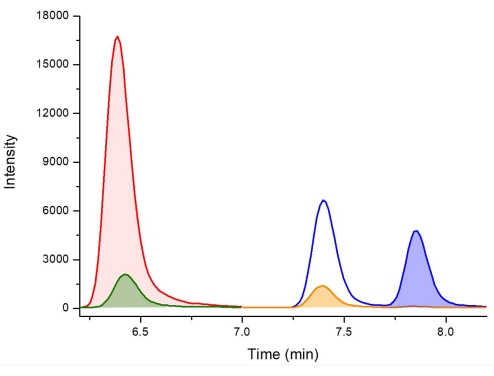
Rycina 3: Chromatogram LC-MS/MS wzorca kalibracyjnego zawierającego D5-2,4-DAB, 2,4-DAB, BMAA oraz AEG w celu identyfikacji izomerów na podstawie czasu retencji, wskazanego przez zaznaczone piki. Legenda: D5-2,4-DAB 338,01 m/z > 278,10 m/z w 6,4 min (czerwony), 2,4-DAB 333,01 m/z > 273,10 m/z w 6,4 min (zielony), AEG 333,01 m/z > 88,00 m/z w 7,4 min (pomarańczowy) oraz BMAA 333,01 m/z > 187,10 m/z w 7,8 min (niebieski). Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
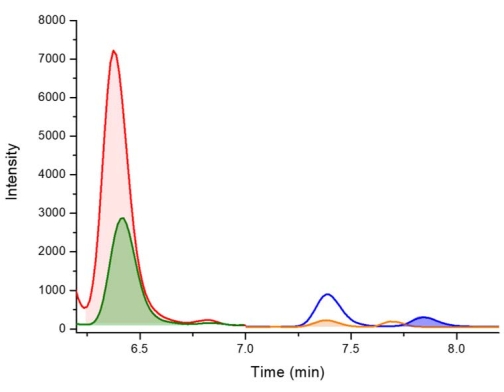
Rysunek 4: Chromatogram LC-MS/MS dla detekcji D5-2,4-DAB, 2,4-DAB, BMAA i AEG w gatunkach Merismopedia pobranych z jeziora Liddell (NSW, Australia), wskazane przez zaznaczone piki. Legenda: D5-2,4-DAB 338.01 m/z > 278.10 m/z w 6,4 min (czerwony), 2,4-DAB 333.01 m/z > 273.10 m/z w 6,4 min (zielony), AEG 333.01 m/z > 88.00 m/z w 7,4 min (pomarańczowy) oraz BMAA 333.01 m/z > 187.10 m/z w 7,8 min (niebieski). Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
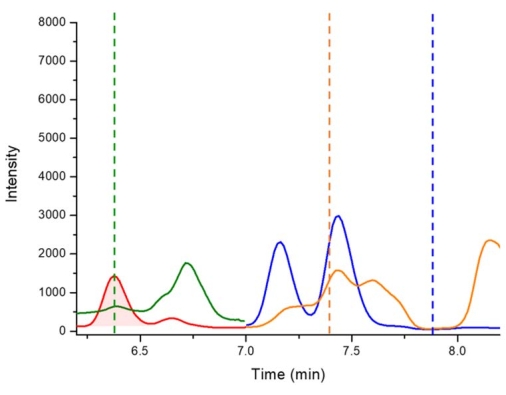
Rysunek 5: Chromatogram LC-MS/MS kontroli negatywnej dla 2,4-DAB, BMAA i AEG w frakcji związanej gatunku Microcystis flos-aquae pobranego z wodociągów w Walka (NSW, Australia). Legenda: D5-2,4-DAB 338,01 m/z > 278,10 m/z w 6,4 min (kolor czerwony – wyróżniony pik), 2,4-DAB 333,01 m/z > 273,10 m/z w 6,4 min (kolor zielony), AEG 333,01 m/z > 88,00 m/z w 7,4 min (kolor pomarańczowy) oraz BMAA 333,01 m/z > 187,10 m/z w 7,8 min (kolor niebieski). Linie przerywane reprezentują czasy retencji dla brakujących 2,4-DAB, AEG i BMAA. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Tabela 1: Stężenia BMAA, AEG i 2,4-DAB w izolatach cyjanobakterii. Stężenia ± standardowy błąd średniej (n = 3). ND oznacza nie wykryto. Najwyższe stężenie każdego wykrytego izomeru zaznaczono kolorem zielonym. Tabela jest zmodyfikowaną wersją z publikacji Violi i wsp.38. Kliknij tutaj, aby pobrać tę tabelę.
Dyskusja
Przedstawiony tutaj protokół ekstrakcji do analizy NPAA ma zastosowanie do analizy dowolnych aminokwasów w próbkach biologicznych. Przewodniki dotyczące izolowania i hodowli szczepów sinic można znaleźć w metodach przedstawionych w badaniu Violi i wsp.38. Pierwszym krokiem w protokole jest doprowadzenie próbki do punktu, w którym można osiągnąć normalizację między próbkami w stosunku do suchej masy. Drugim etapem jest liza komórek w celu uwolnienia analitów i może być przeprowadzona przy użyciu szeregu technik, w tym mechanicznych zakłóceń/liz, takich jak sonikacja sondy, jak opisano w niniejszym protokole, cykle zamrażania/rozmrażania, mielenie i mielenie kulek oraz zakłócenia niemechaniczne, takie jak liza enzymatyczna, detergentowa i/lub chemiczna. Wiadomo, że rozerwanie mechaniczne jest korzystniejsze w porównaniu z niemechanicznym, ponieważ pozwala na większą zdolność próbki do lizy, jednocześnie pozwalając wiązaniom wewnątrzkomórkowym i białkom pozostać nienaruszonym41, chociaż matryca próbki może dyktować optymalną metodę lizy komórek.
Wytrącanie białek jest krytycznym trzecim krokiem tego protokołu podczas ekstrakcji aminokwasów do analizy. TCA jest najczęściej stosowanym rozpuszczalnikiem; jednakże kwas nadchlorowy, aceton, eter metylowo-tert-butylowy (MTBE), metanol i/lub acetonitryl 8,42 były również stosowane, gdzie każdy rozpuszczalnik ekstrakcyjny jest przeznaczony do ekstrakcji i wytrącania różnych substratów. Opisany tutaj model ekstrahuje NPAA BMAA i jego izomery z matrycy cyjanobakteryjnej i chociaż zastosowano szereg różnych rozpuszczalników, dwa najczęstsze to 10% TCA w wodzie (wodnej) i 10% TCA w acetonie. Ogólnie rzecz biorąc, wytrącanie białek za pomocą TCA jest powszechnie stosowane do ekstrakcji aminokwasów w celu frakcjonowania wolnych aminokwasów z aminokwasów związanych z białkami. Dodatkowo ekstrakcja TCA pozwala na określenie całkowitej zawartości białka, redukcję zanieczyszczeń dla wolnej frakcji oraz zmniejszenie aktywności proteaz przy minimalnej degradacji białka43. Ekstrakcja wolnej frakcji TCA polega na wstępnym wypłukaniu substancji rozpuszczalnych w organikach, pozostawiając białka i nierozpuszczalne związki, takie jak pozostałości ściany komórkowej w osadzie, po czym następuje ekstrakcja hydrolizy termicznej aminokwasów związanych z białkami (frakcja związana) przy użyciu mocnego kwasu.
Frakcjonowanie wolnej frakcji za pomocą 10% wodnego roztworu TCA plus sonikacja powoduje najbardziej rozległe wytrącanie białek w porównaniu z innymi rozpuszczalnikami organicznymi44 i najlepsze odzyski aminokwasów42. Niektóre badania decydują się na użycie kwasu w połączeniu z rozpuszczalnikiem organicznym (tj. 10%-20% TCA w acetonie43) w celu wytrącenia większej liczby cząsteczek, w tym mniejszych peptydów/biomolekuł, zminimalizowania degradacji białek i zmniejszenia zanieczyszczeń, takich jak sole43. Kolejną zaletą 10% TCA w acetonie jest jego szybsze schnięcie podczas przygotowywania granulatu do hydrolizy, minimalizując pozostałości wilgoci, aby zapobiec modyfikacji aminokwasów. Jednak 10% wodny TCA plus sonikacja ma lepszą skuteczność ekstrakcji wolnych aminokwasów w porównaniu do 10% TCA w samym acetonie44. Dodatkowo, 10% wodne wytrącanie TCA ma ograniczenia, takie jak długi czas schnięcia, niemożność wytrącenia wszystkich białek lub małych peptydów/biomolekuł oraz, w zależności od interesującego analitu (tj. Białek lub aminokwasów), wymaganie dodatków i środków redukujących, aby zapobiec utlenianiu i degradacji 45,46.
Protokół ten wykorzystuje kombinację 10% wodnego TCA i 10% TCA w acetonie w celu zwiększenia wytrącania białek, zapewnienia wytrącania mniejszych peptydów/biomolekuł, umożliwienia szybszego czasu suszenia granulek i zwiększenia wydajności ekstrakcji, wykorzystując obie właściwości ekstrakcji rozpuszczalnikiem. Jednak połączenie 10% wodnego TCA i 10% TCA w acetonie może wytrącić małe peptydy/biomolekuły w wolnej frakcji po połączeniu 10% TCA w supernatancie acetonu z wodną frakcją wolną. W takim przypadku osady należy przenieść do frakcji związanej w celu hydrolizy.
Druga połowa tego protokołu polega na uwalnianiu aminokwasów (tj. BMAA) z osadu białkowego poprzez hydrolizę kwasowo-parową w podwyższonych temperaturach w środowisku beztlenowym. Głównym czynnikiem ograniczającym etap hydrolizy jest to, że jego przygotowanie jest czasochłonne i pracochłonne. Inkubacja przez noc zapobiega szybkiemu i efektywnemu czasowo przygotowaniu i analizie próbki. Ponadto ilościowe przenoszenie osadu z probówki wirówkowej do fiolki z otoczką (krok 3.4) jest żmudnym procesem, który wymaga staranności i cierpliwości, aby zapewnić dokładny punkt normalizacji suchej masy. Możliwe problemy, z którymi może się spotkać użytkownik, to niepełne przeniesienie granulki, mokre wytrącone białka przyklejające się do końcówek pipet i oryginalnej rurki oraz cząstki stałe osadu blokujące końcówkę pipety. Praktyczną sugestią ułatwiającą przenoszenie osadu jest usunięcie około 0,3-0,5 mm z końca końcówki pipety za pomocą nożyczek, co pozwala na pobranie i uwolnienie większych cząstek osadu do fiolki z otoczką. Ta metoda transferu jest powszechną praktyką w przypadku ekstrakcji białek dla wszystkich analiz aminokwasów. Należy jednak zbadać modyfikacje mające na celu poprawę skuteczności i dokładności ilościowego przenoszenia osadu do fiolki z otoczką.
Do uwolnienia aminokwasów ze stanu związanego z białkami można zastosować dwie formy technik hydrolizy: hydrolizę w fazie ciekłej i hydrolizę w postaci kwasów i par. Hydroliza w fazie ciekłej, która polega na dodaniu 6 M HCl do próbki, którą następnie umieszcza się na noc w piecu o temperaturze 110 °C, jest alternatywą dla hydrolizy kwasowo-parowej opisanej w niniejszym protokole. Techniki ekstrakcji, które wykorzystują hydrolizę w fazie ciekłej, mogą wymagać dalszego przetwarzania, takiego jak odsalanie, zwłaszcza jeśli wybrano derywatyzację AQC, ponieważ wymaga ona podstawowych warunków znakowania40. Hydroliza kwasowo-parowa pozwala uniknąć odsalania i pozwala użytkownikowi na swobodę wyboru techniki derywatyzacji po odtworzeniu końcowego granulatu przed filtracją. Ponadto, niezależnie od wybranej metody hydrolizy, próbki mogą wymagać dalszego przetwarzania, takiego jak SPE do oczyszczania matrycy i zatężania 29,47,48, w zależności od wyboru techniki derywatyzacji i/lub analizy analitycznej (np. chromatografia cieczowa z odwróconą fazą LC-MS/MS vs. chromatografia cieczowa z oddziaływaniem hydrofilowym [HILIC] LC-MS/MS 37). Rekonstytucja końcowej osadki w 20 mM HCl w tym protokole jest odpowiednia do derywatyzacji przy użyciu odczynników PCF48 za pomocą dostępnego na rynku zestawu do hydrolizy aminokwasów39 (patrz tabela materiałów). Zarówno AQC, jak i PCF pochodną wszystkie aminokwasy, białka i niebiałka pochodzenia obecne w próbce, a selektywność analitów uzyskuje się dzięki zastosowaniu LC-MS / MS i jego połączeniu dopasowania czasu retencji i starannego doboru kwantyfikatora i kwalifikatora MRM38.
Obecne protokoły hydrolizy nie są zoptymalizowane pod kątem uwalniania BMAA, 2,4-DAB i AEG, ale dla 22 aminokwasów białkowych w oparciu o istniejące metody hydrolizy białek32, gdzie inkubacja trwająca dłużej niż 18 godzin powoduje degradację i modyfikację niektórych aminokwasów, wpływając na analizę LC-MS/MS, a tym samym na uzyskane stężenia32. Beach i wsp.49 badali hydrolizę w czasie (0,5-120 h), aby zoptymalizować hydrolizę do analizy BMAA i aminokwasów proteinogennych. Odkryli, że chociaż w ciągu pierwszych 0,5 godziny hydrolizy nastąpiło wczesne szybkie uwolnienie BMAA, poziomy BMAA nadal rosły wraz ze wzrostem czasu hydrolizy, bez degradacji, nawet po 5 dniach49. Nadal istnieją różne poglądy i pytania dotyczące prawdziwej natury związanego BMAA i jego izomerów, przy czym niektóre badania sugerują, że zamiast wiązania BMAA50,51 lub błędnej inkorporacji z białkami14, związek BMAA-białko jest powierzchowny52. Jednak obecny konsensus w analizie "związanego" BMAA wymaga zatwierdzonego i powszechnie akceptowanego etapu hydrolizy, który rozbija peptydy/białka w celu uwolnienia aminokwasów, a tym samym BMAA i jego izomerów.
Wskaźniki odzysku 20 aminokwasów białkowych zostały określone w badaniu przeprowadzonym przez Sedgwicka i wsp.42 przy użyciu ekstrakcji TCA, co dało około 100% odzysku. W przypadku BMAA i jego izomerów z matryc glonów, badania porównujące skuteczność ekstrakcji BMAA przy użyciu różnych rozpuszczalników ekstrakcyjnych wykazały, że 10% TCA jest najbardziej efektywny dla wolnego BMAA27. Wskaźniki odzysku dla BMAA związanego z białkami ekstrahowanego za pomocą hydrolizy w fazie ciekłej ustalono w badaniach Glovera i wsp.25 oraz Faassena i wsp.53, w których dokładność określono za pomocą metod odzyskiwania z kolcami, ze średnim wskaźnikiem odzysku BMAA wynoszącym odpowiednio 108,6% i 70%. Faassen i wsp. opisali procedury eksperymentów z odzyskiwaniem kolców i zilustrowali, w jaki sposób odzysk różni się w zależności od etapu procesu ekstrakcji, w którym wykonano skok53. Faassen i in. dodatkowo określili skuteczność przedstawionego tutaj protokołu kwasowo-parowego, ze wskaźnikami odzysku wynoszącymi 83,6% dla izomerów BMAA wzbogaconych przed ekstrakcją i 68,6% dla tych, które zostały wzbogacone przed hydrolizą24. Te odzyski, metody ekstrakcji i analizy zostały następnie zweryfikowane przez Banack26, ze wskaźnikami odzysku 94%-106% dla BMAA w matrycy sinicy i %względnym odchyleniem standardowym (%RSD) między 5,6% a 20%, spełniając kryteria FDA dotyczące dokładności54. Zaleca się, aby każde laboratorium wstępnie ustaliło wskaźniki odzysku i dokładność przed zastosowaniem tego protokołu poprzez eksperymenty z odzyskiwaniem szczytów. Metody odzyskiwania przedstawione w Faassen i wsp.53 oraz Glover i wsp.25 mogą być stosowane jako wskazówki.
Alternatywne formy technik hydrolizy mogą być stosowane zamiast hydrolizy w piecu przez noc w celu szybszej ekstrakcji analitu związanego z białkami. Na przykład ekstraktor mikrofalowy może znacznie skrócić czas hydrolizy z 24 godzin do zaledwie 10 minut55. Hydroliza mikrofalowa aminokwasów wykorzystuje te same zasady, co konwencjonalna metoda termiczna, wykorzystując komorę rękawicową do przygotowania i montażu naczynia mikrofalowego w środowisku beztlenowym i dodając 6 M HCl. Po szczelności naczynie zawierające próbkę jest poddawane promieniowaniu mikrofalowemu. Hydroliza mikrofalowa została wykorzystana do ekstrakcji aminokwasów z różnych matryc próbek 56,57,58; jednak hydroliza mikrofalowa nie została jeszcze opracowana i zwalidowana do analizy BMAA.
Podsumowując, 10% wodne wytrącanie białka TCA jest optymalną metodą ekstrakcji wolnych aminokwasów niebiałkowych z matryc cyjanobakteryjnych27, a hydroliza termiczna zapewnia niezawodną i powtarzalną ekstrakcję frakcji związanej z białkami. Ten protokół ekstrakcji NPAA BMAA i jego izomerów z cyjanobakterii jest zatwierdzony i powszechnie akceptowany. Przyszłe kierunki dalszej optymalizacji ekstrakcji BMAA będą koncentrować się na etapie hydrolizy, który odbywa się zgodnie ze specyfikacjami 22 aminokwasów białkowych. Jednak przedstawiony tutaj protokół ekstrakcji należy nadal uważać za wydajny i skuteczny do analizy BMAA i jego izomerów za pomocą LC-MS/MS.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
D.P.B., K.J.R. i S.M.M. są wspierane przez Fundację Iana Pottera, a J.P.V. jest odbiorcą stypendium w ramach programu szkoleniowego rządu australijskiego.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Fiolki 1 ml ze szklaną skorupą | SHIMADZU | REST-24663 | |
| 10% roztwór | Rozcieńczyć 100% (w/v) do 10% wodnego roztworu TCA | ||
| 100% roztwór | TCA Rozpuścić TCA w wodzie w następującym stosunku 2,2 g:1 ml (TCA:H2O) | ||
| 1000 &mikro; L mikropipeta | Ependorf/Sigma-Aldrich | Z683809 | |
| 13,3% roztwór | Rozcieńczyć 100% (w/v) do 13,3% roztworu wodnego TCA | ||
| Probówki 2 ml | MERCK | BR780546-500EA | |
| 20 mM HCl | Chem-Supply Pty Ltd | 7647-01-0 | Wykonane z magazynu |
| 20-200 µ L mikropipeta | Ependorf/Sigma-Aldrich | Z740441 | |
| 6 M HCl | Chem-Supply Pty Ltd | 7647-01-0 | Wykonana z magazynu |
| 70% etanolu | Supelco | 1.11727 | Rozcieńczony 70:1 Etanol: |
| woda-80 ° C Zamrażarka | Martin CHRIST | 102142 | Alpha 2-4 Ldplus |
| AccQ-Tag Ultra zestaw do derywatyzacji | Waters | 186003836 | |
| Aceton | Chem-Supply Pty Ltd | 34967-2.5L | |
| Waga analityczna Waga Waga | |||
| Odśrodkowy parownik | Thermo Scientific | 13442549 | DNA120-115 Koncentrator SpeedVac |
| Wirówka | MERCK | EP022620100-1EA | |
| D5-2,4-DAB standard | Izotopy CDN | D-7568 | |
| do suszenia | |||
| Ez:faastTM Zestaw do analizy aminokwasów | Phenomenex | CEO-8492 | |
| Uchwyt | |||
| Probówki Falcon | MERCK | T2318-500EA | Probówki wirówkowe Greiner |
| Rurki filtracyjne | Sigma-Aldrich | CLS8161-100EA | Filtry probówkowe wirówki Corning Costar Spin-X (wielkość porów 0,22 μ m) |
| Grawer | |||
| Fiolka do hydrolizy i Pokrywka | Eldex Laboratories/Waters | WAT007568 & | |
| Lód i pojemnik | |||
| Niestrzępiąca się chusteczka papierowa | Kimwipes/Sigma-Aldrich | Z188956 | |
| Milli-Q woda | 18,2 MΩ. cm | ||
| Kran azotu z wężem | |||
| P1000 Mikropipeta | MERCK | EP3123000063 | |
| końcówki do pipet P1000 | MERCK | Z740127 | |
| P200 | MERCK | Z740125 | |
| Parafilm | MERCK | P7793 | Folia uszczelniająca |
| ŚOI - słuchawki | |||
| ŚOI - rękawice kuchenne | |||
| Sonator sondy | QSONICA Sonicatory | Q125 Sonikator | Upewnij się, że wszystkie odpowiednie środki ochrony osobistej (np. słuchawki z redukcją szumów) |
| Szpatułka do przenoszenia | |||
| Kwas trichlorooctowy (TCA) | Sigma-Aldrich | T6399-1KG | |
| Pęseta | |||
| Pompa próżniowa z wężem |
Bibliografia
- Larsen, P. O. Physical and Chemical Properties of Amino Acids. Amino Acids and Derivatives. Miflin, B. J. , Academic Press. Cambridge, MA. 225-269 (1980).
- Wagner, I., Musso, H. New naturally occurring amino acids. Angewandte International Edition in English. 22 (11), 816-828 (1983).
- Reeds, P. J. Dispensable and indispensable amino acids for humans. The Journal of Nutrition. 130 (7), 1835-1840 (2000).
- Bhagavan, N. V., Ha, C. -E. Amino Acids. Essentials of Medical Biochemistry (Second Edition). Bhagavan, N. V., Ha, C. -E. , Academic Press. Cambridge, MA. 21-29 (2015).
- Rubenstein, E. Misincorporation of the proline analog azetidine-2-carboxylic acid in the pathogenesis of multiple sclerosis: A hypothesis. Journal of Neuropathology & Experimental Neurology. 67 (11), 1035-1040 (2008).
- Chan, S., Dunlop, R., Rowe, A., Double, K., Rodgers, K. l-DOPA is incorporated into brain proteins of patients treated for Parkinson's disease, inducing toxicity in human neuroblastoma cells in vitro. Experimental Neurology. 238 (1), 29-37 (2012).
- Rodgers, K. J., Hume, P. M., Morris, J. G., Dean, R. T. Evidence for L-dopa incorporation into cell proteins in patients treated with levodopa. Journal of Neurochemistry. 98 (4), 1061-1067 (2006).
- Violi, J. P., Bishop, D. P., Padula, M. P., Steele, J. R., Rodgers, K. J. Considerations for amino acid analysis by liquid chromatography-tandem mass spectrometry: A tutorial review. TrAC Trends in Analytical Chemistry. 131, 116018(2020).
- Hashiguchi, A., Komatsu, S. Posttranslational Modifications and Plant-Environment Interaction. Methods in Enzymology., Volume 586. Shukla, A. K. , Academic Press. Cambridge, MA. 97-113 (2017).
- Berntzon, L., Ronnevi, L. O., Bergman, B., Eriksson, J. Detection of BMAA in the human central nervous system. Neuroscience. 292, 137-147 (2015).
- Cox, P. A., Banack, S. A., Murch, S. J. Biomagnification of cyanobacterial neurotoxins and neurodegenerative disease among the Chamorro people of Guam. Proceedings of the National Academy of Sciences of the United States of America. 100 (23), 13380-13383 (2003).
- Cox, P. A., et al. Cyanobacteria and BMAA exposure from desert dust: A possible link to sporadic ALS among Gulf War veterans. Amyotrophic Lateral Sclerosis. 10, 109-117 (2009).
- Pablo, J., et al. Cyanobacterial neurotoxin BMAA in ALS and Alzheimer's disease. Acta Neurologica Scandinavica. 120 (4), 216-225 (2009).
- Dunlop, R. A., Cox, P. A., Banack, S. A., Rodgers, K. J. The non-protein amino acid BMAA is misincorporated into human proteins in place of l-serine causing protein misfolding and aggregation. PLoS One. 8 (9), 75376(2013).
- Cox, P. A., et al. Diverse taxa of cyanobacteria produce β-N-methylamino-L-alanine, a neurotoxic amino acid. Proceedings of the National Academy of Sciences of the United States of America. 102 (14), 5074-5078 (2005).
- Faassen, E. J. Presence of the neurotoxin BMAA in aquatic ecosystems: What do we really know. Toxins. 6 (3), 1109-1138 (2014).
- Al-Sammak, M. A., Hoagland, K. D., Cassada, D., Snow, D. D. Co-occurrence of the cyanotoxins BMAA, DABA and anatoxin-a in Nebraska reservoirs, fish, and aquatic plants. Toxins. 6 (2), 488-508 (2014).
- Wang, C., et al. Food web biomagnification of the neurotoxin β-N-methylamino-L-alanine in a diatom-dominated marine ecosystem in China. Journal of Hazardous Materials. 404, 124217(2021).
- Banack, S. A., Johnson, H. E., Cheng, R., Cox, P. A. Production of the neurotoxin BMAA by a marine cyanobacterium). Marine Drugs. 5 (4), 180-196 (2007).
- Jiang, L., Johnston, E., Åberg, K. M., Nilsson, U., Ilag, L. L. Strategy for quantifying trace levels of BMAA in cyanobacteria by LC/MS/MS. Analytical and Bioanalytical Chemistry. 405 (4), 1283-1292 (2013).
- Jonasson, S., Eriksson, J., Berntzon, L., Rasmussen, U., Bergman, B. A novel cyanobacterial toxin (BMAA) with potential neurodegenerative effects. Plant Biotechnology. 25 (3), 227-232 (2008).
- Cohen, S. Analytical techniques for the detection of α-amino-β-methylaminopropionic acid. Analyst. 137 (9), 1991-2005 (2012).
- Main, B. J., Rodgers, K. J. Assessing the combined toxicity of BMAA and its isomers 2,4-DAB and AEG in vitro using human neuroblastoma cells. Neurotoxicity Research. 33 (1), 33-42 (2018).
- Faassen, E. J., Gillissen, F., Lürling, M. A comparative study on three analytical methods for the determination of the neurotoxin BMAA in cyanobacteria. PLoS One. 7 (5), 36667(2012).
- Glover, W. B., Baker, T. C., Murch, S. J., Brown, P. N. Determination of β-N-methylamino-L-alanine, N-(2-aminoethyl)glycine, and 2,4-diaminobutyric acid in food products containing cyanobacteria by ultra-performance liquid chromatography and tandem mass spectrometry: Single-laboratory validation. Journal of AOAC International. 98 (6), 1559-1565 (2015).
- Banack, S. A. Second laboratory validation of β-N-methylamino-L-alanine, N-(2aminoethyl)glycine, and 2,4-diaminobuytric acid by ultra-performance liquid chromatography and tandem mass spectrometry. Neurotoxicity Research. 39 (1), 107-116 (2021).
- Lage, S., et al. BMAA extraction of cyanobacteria samples: Which method to choose. Environmental Science and Pollution Research. 23 (1), 338-350 (2016).
- Jonasson, S., et al. Transfer of a cyanobacterial neurotoxin within a temperate aquatic ecosystem suggests pathways for human exposure. Proceedings of the National Academy of Sciences of the United States of America. 107 (20), 9252-9257 (2010).
- Spáčil, Z., et al. Analytical protocol for identification of BMAA and DAB in biological samples. Analyst. 135 (1), 127-132 (2010).
- Jiang, L., et al. Diatoms: A novel source for the neurotoxin BMAA in aquatic environments. PLOS One. 9 (1), 84578(2014).
- Murch, S. J., Cox, P. A., Banack, S. A., Steele, J. C., Sacks, O. W. Occurrence of β-methylamino-l-alanine (BMAA) in ALS/PDC patients from Guam. Acta Neurologica Scandinavica. 110 (4), 267-269 (2004).
- Davidson, I. Hydrolysis of Samples for Amino Acid Analysis. Protein Sequencing Protocols. Smith, B. J. , Humana Press. Totowa, NJ. 111-122 (2003).
- Esterhuizen-Londt, M., Downing, S., Downing, T. Improved sensitivity using liquid chromatography mass spectrometry (LC-MS) for detection of propyl chloroformate derivatised -N-methylamino-L-alanine (BMAA) in cyanobacteria. Water SA. 37 (2), 133-138 (2011).
- Kisby, G. E., Roy, D. N., Spencer, P. S. Determination of β-N-methylamino-l-alanine (BMAA) in plant (Cycas circinalis L.) and animal tissue by precolumn derivatization with 9-fluorenylmethyl chloroformate (FMOC) and reversed-phase high-performance liquid chromatography. Journal of Neuroscience Methods. 26 (1), 45-54 (1988).
- Lampinen Salomonsson, M., Hansson, A., Bondesson, U. Development and in-house validation of a method for quantification of BMAA in mussels using dansyl chloride derivatization and ultra performance liquid chromatography tandem mass spectrometry. Analytical Methods. 5 (18), 4865-4874 (2013).
- Main, B. J., et al. Detection of the suspected neurotoxin β-methylamino-l-alanine (BMAA) in cyanobacterial blooms from multiple water bodies in Eastern Australia. Harmful Algae. 74, 10-18 (2018).
- Combes, A., et al. Validation of the analytical procedure for the determination of the neurotoxin β-N-methylamino-l-alanine in complex environmental samples. Analytica Chimica Acta. 771, 42-49 (2013).
- Violi, J. P., Mitrovic, S. M., Colville, A., Main, B. J., Rodgers, K. J. Prevalence of β-methylamino-L-alanine (BMAA) and its isomers in freshwater cyanobacteria isolated from eastern Australia. Ecotoxicology and Environmental Safety. 172, 72-81 (2019).
- Phenomenex. EZ:faast For Amino Acid Analysis of Protein Hydroysates by LC-MS. User's Manual. , Available from: http://phx.phenomenex.com/lib/3882_L6_LC_MS.pdf (2005).
- AccQ-Tag Ultra Derivatization Kit Care and. Waters. , Available from: https://www.waters.com/waters/support.htm?lid=10008559 (2014).
- D'Hondt, E., et al. Cell Disruption Technologies. Microalgae-Based Biofuels and Bioproducts. Gonzalez-Fernandez, C., Munoz, R. , Woodhead Publishing. Sawston, Cambridge. 133-154 (2017).
- Sedgwick, G. W., Fenton, T. W., Thompson, J. R. Effect of protein precipitating agents on the recovery of plasma free amino acids. Canadian Journal of Animal Science. 71 (3), 953-957 (1991).
- Niu, L., et al. Modified TCA/acetone precipitation of plant proteins for proteomic analysis. PLOS One. 13 (12), 0202238(2018).
- Fic, E., Kedracka-Krok, S., Jankowska, U., Pirog, A., Dziedzicka-Wasylewska, M. Comparison of protein precipitation methods for various rat brain structures prior to proteomic analysis. Electrophoresis. 31 (21), 3573-3579 (2010).
- Koontz, L. TCA precipitation. Methods in Enzymology. 541, 3-10 (2014).
- Novák, P., Havlíček, V. Protein Extraction and Preparation. Proteomic Profiling and Analytical Chemistry (Second Edition). Ciborowski, P., Silberring, J. , Elsevier. 51-62 (2016).
- Li, A., et al. Elucidation of matrix effects and performance of solid-phase extraction for LC-MS/MS analysis of beta-N-methylamino-L-alanine (BMAA) and 2,4-diaminobutyric acid (DAB) neurotoxins in cyanobacteria. Analyst. 137 (5), 1210-1219 (2012).
- Baker, T. C., Tymm, F. J. M., Murch, S. J. Assessing environmental exposure to β-N-methylamino-l-alanine (BMAA) in complex sample matrices: A comparison of the three most popular LC-MS/MS methods. Neurotoxicity Research. 33 (1), 43-54 (2018).
- Beach, D. G., Kerrin, E. S., Giddings, S. D., Quilliam, M. A., McCarron, P. Differential mobility-mass spectrometry double spike isotope dilution study of release of β-methylaminoalanine and proteinogenic amino acids during biological sample hydrolysis. Scientific Reports. 8, 117(2018).
- Murch, S. J., Cox, P. A., Banack, S. A. A mechanism for slow release of biomagnified cyanobacterial neurotoxins and neurodegenerative disease in Guam. Proceedings of the National Academy of Sciences of the United States of America. 101 (33), 12228-12231 (2004).
- Banack, S. A., Murch, S. J., Cox, P. A. Neurotoxic flying foxes as dietary items for the Chamorro people, Marianas Islands. Journal of Ethnopharmacology. 106 (1), 97-104 (2006).
- van Onselen, R., Cook, N. A., Phelan, R. R., Downing, T. G. Bacteria do not incorporate β-N-methylamino-l-alanine into their proteins. Toxicon. 102, 55-61 (2015).
- Faassen, E. J., Gillissen, F., Zweers, H. A. J., Lürling, M. Determination of the neurotoxins BMAA (β-N-methylamino-L-alanine) and DAB (α-,γ-diaminobutyric acid) by LC-MSMS in Dutch urban waters with cyanobacterial blooms. Amyotrophic Lateral Sclerosis. 10, 79-84 (2009).
- Food and Drug Administration. Bioanalytical Method Validation. Guidance for Industry. U.S. U.S. Department of Health and Human Services, Food and Drug Administration, Center for Drug Evaluation and Research, Center for Veterinary Medicine. , (2018).
- Reichelt, M., Hummert, C., Luckas, B. Hydrolysis of microcystins and nodularin by microwave radiation. Chromatographia. 49 (11), 671-677 (1999).
- Marconi, E., Panfili, G., Bruschi, L., Vivanti, V., Pizzoferrato, L. Comparative study on microwave and conventional methods for protein hydrolysis in food. Amino Acids. 8 (2), 201-208 (1995).
- Chen, S. -T., Chiou, S. -H., Chu, Y. -H., Wang, K. -T. Rapid hydrolysis of proteins and peptides by means of microwave technology and its application to amino acid analysis. International Journal of Peptide and Protein Research. 30 (4), 572-576 (1987).
- Aviram, L. Y., McCooeye, M., Mester, Z. Determination of underivatized amino acids in microsamples of a yeast nutritional supplement by LC-MS following microwave assisted acid hydrolysis. Analytical Methods. 8 (22), 4497-4503 (2016).
Przedruki i uprawnienia
