Ten protokół pozwala na izolację cząsteczek wirusa Epsteina-Barr z ludzkiej linii komórkowej P3HR1 po wywołaniu cyklu litycznego wirusa za pomocą 12-mirystynianu 13-octanu forbolu. DNA jest następnie ekstrahowane z preparatu wirusowego i poddawane PCR w czasie rzeczywistym w celu ilościowego określenia stężenia cząstek wirusa.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Izolacja i kwantyfikacja wirusa Epsteina-Barr z linii komórkowej P3HR1
W tym artykule
Podsumowanie
Streszczenie
Wirus Epsteina-Barr (EBV), formalnie oznaczony jako ludzki herpeswirus 4 (HHV-4), jest pierwszym wyizolowanym ludzkim wirusem nowotworowym. Prawie 90-95% dorosłej populacji świata jest zakażonych wirusem EBV. Dzięki niedawnym postępom w biologii molekularnej i immunologii, zastosowanie modeli eksperymentalnych zarówno in vitro, jak i in vivo dostarczyło głębokich i znaczących informacji na temat patogenezy EBV w wielu chorobach, a także na temat nowotworzenia związanego z EBV. Celem tego zwizualizowanego artykułu eksperymentalnego jest przedstawienie przeglądu izolacji cząstek wirusa EBV z komórek linii komórkowej P3HR1, a następnie ilościowe określenie preparatu wirusowego. Komórki P3HR1, pierwotnie wyizolowane z ludzkiego chłoniaka Burkitta, mogą wytwarzać wirusa P3HR1, który jest szczepem EBV typu 2. Cykl lityczny EBV może być indukowany w tych komórkach P3HR1 przez traktowanie 12-mirystynianianem 13-octanu forbolu (PMA), w wyniku czego powstają cząsteczki wirusa EBV.
Używając tego protokołu do izolacji cząsteczek EBV, komórki P3HR1 są hodowane przez 5 dni w temperaturze 37 °C i 5% CO2 w kompletnym pożywce RPMI-1640 zawierającej 35 ng/ml PMA. Następnie pożywkę hodowlaną odwirowuje się z prędkością 120 x g przez 8 minut w celu osadzenia komórek. Supernatant zawierający wirusa jest następnie zbierany i wirowany z prędkością 16 000 x g przez 90 minut w celu osadzenia cząstek EBV. Osad wirusowy jest następnie ponownie zawieszany w kompletnym pożywce RPMI-1640. Następnie przeprowadza się ekstrakcję DNA i ilościowy PCR w czasie rzeczywistym w celu oceny stężenia cząstek EBV w preparacie.
Wprowadzenie
Wirus Epsteina-Barr (EBV) jest pierwszym ludzkim wirusem nowotworowym, który został wyizolowany1. EBV, formalnie określany jako ludzki herpeswirus 4 (HHV-4)2, jest częścią podrodziny wirusa opryszczki gamma z rodziny wirusów opryszczki i jest prototypem rodzaju Lymphocryptovirus. Prawie 90-95% dorosłej populacji świata jest zarażona wirusem3. W większości przypadków początkowe zakażenie następuje w ciągu pierwszych 3 lat życia i przebiega bezobjawowo, jednak jeśli infekcja nastąpi później w okresie dojrzewania, może spowodować chorobę określaną jako mononukleoza zakaźna4. EBV jest w stanie zainfekować spoczynkowe limfocyty B, indukując je do proliferacyjnych limfoblastów B, w których wirus ustanawia i utrzymuje stan utajonego zakażenia5. EBV może się reaktywować w dowolnym momencie, prowadząc w ten sposób do nawracających infekcji6.
W ciągu ostatnich 50 lat, związek między niektórymi wirusami a rozwojem nowotworów złośliwych u ludzi stawał się coraz bardziej widoczny, a dziś szacuje się, że od 15% do 20% wszystkich nowotworów u ludzi jest związanych z infekcjami wirusowymi7. Wirusy opryszczki, w tym EBV, są jednymi z najlepiej przebadanych przykładów tego typu wirusów nowotworowych8. W rzeczywistości EBV może powodować wiele rodzajów nowotworów złośliwych u ludzi, takich jak chłoniak Burkitta (BL), chłoniak Hodgkina (HL), chłoniak rozlany z dużych komórek B i choroby limfoproliferacyjne u gospodarzy z obniżoną odpornością9,10. Wykazano również, że EBV jest związany z rozwojem ogólnoustrojowych chorób autoimmunologicznych. Niektóre przykłady tych zaburzeń autoimmunologicznych to reumatoidalne zapalenie stawów (RZS), zapalenie wielomięśniowe i skórno-mięśniowe (PM-DM), toczeń rumieniowaty układowy (SLE), mieszana choroba tkanki łącznej (MCTD) i zespół Sjögrena (SS)11. EBV jest również związany z rozwojem nieswoistego zapalenia jelit (IBD)12.
Wiele z tych chorób można badać lub modelować za pomocą hodowli komórkowych, myszy lub innych organizmów zainfekowanych EBV. Dlatego cząsteczki EBV są potrzebne do infekowania komórek lub organizmów, zarówno w modelach in vitro, jak i in vivo13,14,15,16, stąd potrzeba opracowania techniki, która pozwoli na izolację cząstek wirusa przy niskich kosztach. Opisany tutaj protokół zawiera wytyczne dotyczące łatwego sposobu niezawodnego izolowania cząstek EBV ze stosunkowo dostępnej linii komórkowej i ilościowego oznaczania cząstek za pomocą PCR w czasie rzeczywistym, który jest opłacalny i łatwo dostępny dla większości laboratoriów. Jest to porównanie z kilkoma innymi metodami, które zostały opisane w celu izolowania EBV z różnych linii komórkowych17,18,19,20.
P3HR-1 to linia komórkowa BL, która rośnie w zawiesinie i jest utajenie zakażona szczepem EBV typu 2. Ta linia komórkowa jest producentem EBV i może być indukowana do produkcji cząstek wirusa. Celem tego manuskryptu jest przedstawienie metody, która pozwala na izolację cząstek EBV z linii komórkowej P3HR-1, a następnie ilościowe określenie materiału wirusowego, które można później wykorzystać zarówno w modelach eksperymentalnych EBV in vitro, jak i in vivo.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
UWAGA: EBV należy uznać za materiał potencjalnie biologicznie niebezpieczny, w związku z czym należy z nim pracować w warunkach poziomu bezpieczeństwa biologicznego 2 (BSL-2) lub wyższego. Należy nosić fartuch laboratoryjny oraz rękawiczki. W przypadku ryzyka kontaktu z rozpryskami należy również rozważyć zastosowanie ochrony oczu. Poniższą procedurę należy przeprowadzić w komorze bezpieczeństwa biologicznego.
1. Liczenie komórek P3HR1
- Wirowanie i resuspensja komórek
- Przenieść zawiesinę komórkową z 100 mm płytki hodowlanej (lub kolby T-25) trwającej kultury komórek P3HR1 przy 80% konfluencji do 15 mL probówki stożkowej. Gęstość siewu komórek P3HR-1 wynosi 1 x 10⁶ komórek/mL. Przechowywać w pełnej pożywce RPMI (79% pożywki RPMI, 20% płodowej surowicy bydlęcej, 1% antybiotyku Pen-Strep) w temperaturze 37 °C i 5% CO2, pasażować co 3-4 dni.
- Wirować przez 8 min przy 120 x g. Po wirowaniu odrzucić supernatant, zresuspender osad komórkowy w 1 mL pełnej pożywki RPMI i dokładnie wymieszać (roztwór ten będzie określany jako zawiesina A).
- Przygotowanie zawiesiny komórkowej do liczenia
- Przygotować rozcieńczoną zawiesinę komórkową B, mieszając 2 µL zawiesiny komórkowej A z 8 µL pożywki hodowlanej. Do zawiesiny B dodać 10 µL 0,4% trypanu niebieskiego, aby otrzymać zawiesinę C. Przygotowanie dokładnie wymieszać poprzez delikatne pipetowanie.
- Liczenie komórek za pomocą hemocytometru
- Położyć szklaną nakładkę na hemocytometr i nanieść 10 µL zawiesiny C. Umieścić hemocytometr pod mikroskopem świetlnym i policzyć liczbę komórek, które nie zostały zabarwione na niebiesko w każdym z czterech kwadrantów komory hemocytometru, używając obiektywu 40x (Rysunek 1).
- Trypan niebieski barwi martwe komórki na niebiesko; nie należy liczyć tych komórek ani komórek dotykających górnej, dolnej, prawej lub lewej krawędzi każdego kwadrantu hemocytometru.
- Obliczyć stężenie komórek na mL, korzystając z następującego wzoru:
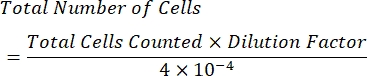
UWAGA: Liczba policzonych kwadrantów wynosi cztery, a 10-4 mL to objętość pól w hemocytometrze. Cztery kwadranty, które należy policzyć, są zaznaczone na zielono na Rysunku 1. Całkowita liczba policzonych komórek we wzorze to suma liczby komórek w kwadrantach 1, 2, 3 i 4. Komórki zaznaczone na niebiesko na Rysunku 1 powinny być liczone, natomiast komórki zaznaczone na czerwono nie powinny być liczone, ponieważ dotykają one górnej, prawej, dolnej lub lewej krawędzi kwadrantu.
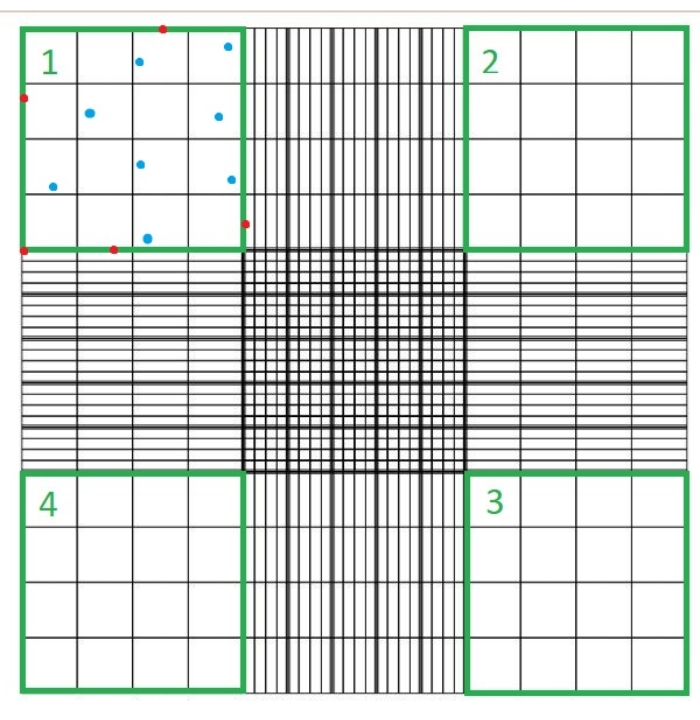
Rysunek 1: Liczenie komórek przy użyciu komory hemocytometru. Za pomocą mikroskopu świetlnego przelicza się cztery kwadranty; kwadranty te są zaznaczone kolorem zielonym. Całkowita liczba policzonych komórek w formule wskazanej w kroku 1.3.3 opisanego tutaj protokołu to suma liczby komórek w kwadrantach 1, 2, 3 i 4. Komórki zaznaczone na niebiesko powinny zostać policzone, natomiast komórki zaznaczone na czerwono nie powinny być liczone, ponieważ stykają się z górną, prawą, dolną lub lewą krawędzią kwadrantu Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
2. Przygotowanie płytki do hodowli
- Przenieś odpowiednią objętość zawiesiny komórkowej A do stożkowatej probówki o pojemności 15 mL. Wymagana objętość zależy od liczby komórek. Dostosuj objętość tak, aby liczba komórek wynosiła około 2,2 x 10⁶ komórek na płytkę hodowlaną o średnicy 100 mm.
- Dodaj do probówki 5 mL kompletnej pożywki hodowlanej, a następnie przenieś zawartość probówki na płytkę hodowlaną o średnicy 100 mm. Dodaj na płytkę hodowlaną 80 µL dimetylosulfoksydu (DMSO).
UWAGA: DMSO jest światłoczuły, dlatego należy go przechowywać w naczyniu odpornym na światło lub osłaniać materiałem nieprzepuszczalnym dla światła, np. folią aluminiową. - Dodaj do probówki 350 µL phorbolu 12-mirystynianu 13-octanu (PMA) o stężeniu 1 mg/mL. Końcowe stężenie PMA powinno wynosić 35 ng/mL, a DMSO 0,08%.
OSTRZEŻENIE: PMA jest toksyczny, żrący i rakotwórczy, dlatego należy z nim obchodzić się z najwyższą ostrożnością. PMA jest światłoczuły, dlatego należy go przechowywać w naczyniu odpornym na światło lub osłaniać materiałem nieprzepuszczalnym dla światła, np. folią aluminiową. - Dodaj 4,27 mL pożywki hodowlanej, tak aby całkowita objętość wynosiła 10 mL. Wymieszaj zawartość probówki poprzez delikatne przechylanie, a następnie przenieś ją na płytkę hodowlaną o średnicy 100 mm. Pozostaw płytkę w inkubatorze do hodowli komórkowych na 5 dni w temperaturze 37 °C i przy 5% CO2.
3. Indukcja i izolacja cząsteczek wirusa Epstein-Barra
- Po 5 dniach w inkubatorze odwiruj zawartość płytki przy 120 x g przez 8 min, aby odwirować komórki. Zbierz supernatant zawierający wirusy, pozbawiony komórek, a osad komórkowy odrzuć.
- Odwiruj supernatant przy 16,000 x g przez 90 min w temperaturze 4 °C, aby odwirować cząsteczki wirusa. Odrzuć supernatant i resuspenduj osad wirusowy w 5 mL pożywki hodowlanej.
UWAGA: Do resuspensji osadu wirusowego zamiast pożywki hodowlanej można użyć soli fizjologicznej z buforem fosforanowym (PBS). - Rozdziel uzyskaną zawiesinę wirusową do 20 probówek, każda z nich powinna zawierać 250 µL zawiesiny wirusowej. Przechowuj zawiesinę w temperaturze -80 °C.
4. Ekstrakcja DNA z cząsteczek wirusowych
OSTRZEŻENIE: Należy zachować szczególną ostrożność podczas pracy z fenolem, ponieważ jest on toksyczny i żrący i może powodować poważne oparzenia. Fenol jest światłoczuły i utlenia się w kontakcie ze światłem lub powietrzem. Należy przechowywać go w odpornym na światło pojemniku lub alternatywnie owinąć probówkę z fenolem nieprzeźroczystym materiałem, takim jak folia aluminiowa.
- Oddzielenie białek od DNA
- Do jednej z probówek o objętości 250 µL dodać 500 µL fenolu nasyconego TrisCl. Dodać 100 µL wody (w celu zwiększenia objętości fazy wodnej) i dokładnie wymieszać w wortexie, aby uzyskać różową emulsję. Odwirować przez 15 min przy 9650 x g.
- Wytrącanie DNA
- Zebrać supernatant (przeźroczysta faza wodna) i przenieść go do nowej probówki do mikrowirówki o pojemności 1,5 mL.
- Dodać zimny octan sodu (3 M, pH 5.2) w ilości odpowiadającej 1/10 objętości supernatantu i wymieszać poprzez pipetowanie. Dodać 1 µL glikogenu o stężeniu 20 mg/mL i wymieszać poprzez pipetowanie.
UWAGA: Ten krok jest opcjonalny, ale dodatek glikogenu zwiększa wydajność wytrącania DNA, a także ułatwia wizualizację osadu DNA. - Dodać zimny 100% etanol w objętości trzykrotnie większej niż objętość supernatantu. Przechowywać w -80 °C przez noc.
UWAGA: Procedurę można w tym miejscu przerwać i wznowić w późniejszym czasie. Próbkę można przechowywać w -80 °C przez 1 h lub alternatywnie przez noc. Przechowywanie przez noc zwiększa wydajność wytrącania DNA, dlatego jest zalecane.
- Izolacja wirusowego DNA
- Następnego dnia odwirować przy 9650 x g przez 15 min w 4 °C i odrzucić supernatant, aby otrzymać osad DNA.
- Przemyć osad trzykrotnie 1 mL zimnego 70% etanolu, odwirować przy 9650 x g przez 15 min i odrzucić supernatant.
- Osad suszyć na powietrzu przez około 10 min. Resuspendować osad w 10-50 µL nukleazowo wolnej wody destylowanej (w zależności od wielkości osadu DNA).
- Próbki przechowywać w -20 °C do późniejszej obróbki lub w 4 °C przez noc, aby zapewnić maksymalne rozpuszczenie DNA, a następnie przechowywać w -20 °C. Alternatywnie można przejść bezpośrednio do kroku 5.
5. Sprawdzanie stężenia i czystości DNA
- Po oczyszczeniu podstawki mikrospektrofotometru za pomocą delikatnej chusteczki do przecierania, nanieś 1 µL preparatu DNA.
- Odczytaj stężenie DNA w próbce. Sprawdź stosunki absorbancji dla
 oraz
 . DNA absorbuje przy 260 nm, białka przy 280 nm, a substancje organiczne, takie jak fenol, absorbują przy 230 nm. Stosunek w zakresie 1,8-2 uznaje się za wystarczający dla techniki real-time PCR.
6. Ilościowe oznaczenie za pomocą polimerazy łańcuchowej w czasie rzeczywistym
- Przygotowanie mieszanin do reakcji PCR
- Do probówek PCR o pojemności 0,2 mL należy nalać 5 µL mieszanki do real-time PCR SYBR green. Do każdej probówki dodać 1 µL startera forward o stężeniu 7,5 pmol/µL oraz 1 µL startera reverse o stężeniu 7,5 pmol/µL. Sekwencja startera forward: 5'-CCCTAGTGGTTTCGGACACA-3'; sekwencja startera reverse: 5'-ACTTGCAAATGCTCTAGGCG-3'. Genem amplifikowanym w celu oznaczenia liczby kopii genomu EBV jest gen Epstein-Barr virus small RNA 2 (EBER-2).
- Do jednej z probówek dodać 2 µL wody wolnej od nukleaz oraz 1 µL DNA wirusowego z kroku 4. Całkowita objętość mieszaniny reakcyjnej wynosi 10 µL.
UWAGA: W zależności od stężenia DNA w próbce może być konieczny etap rozcieńczenia. Należy zapisać czynnik rozcieńczenia F, który zostanie uwzględniony w formule w kroku 6.3. - Przygotować pozostałe probówki, które będą służyć jako standardy o znanej liczbie kopii genomu EBV (1000, 2000, 5000, 10 000 i 54 000 kopii).
- Przeprowadzić reakcję PCR, rozpoczynając od wstępnego etapu aktywacji w 95 °C przez 5 min, a następnie 40 cykli w 95 °C oraz 58 °C (przyłączanie) przez odpowiednio 15 s i 30 s.
- Wyznaczyć krzywą wzorcową qPCR, nanosząc wartości Ct standardów w funkcji logarytmu liczby kopii genomu EBV w probówce standardowej. Korzystając z równania wykresu krzywej wzorcowej, obliczyć liczbę kopii genomu EBV w probówce PCR zawierającej indukowane DNA wirusowe. Następnie użyć poniższej formuły, aby obliczyć stężenie indukowanego preparatu wirusowego:

Gdzie X jest liczbą kopii genomu EBV wyznaczoną z krzywej wzorcowej, a F jest czynnikiem rozcieńczenia zastosowanym podczas przygotowania DNA wykorzystywanego w jednej reakcji PCR.
7. Sprawdzanie aktywności biologicznej/zakaźności cząstek wirusa
- Przenieś komórki BC-3 z płytki hodowlanej 100 mm przy 80% konfluencji do probówki stożkowej o pojemności 15 mL. Gęstość siewu komórek P3HR-1 wynosi 1 x 10⁶ komórek/mL. Hoduj w pełnym medium RPMI (79% medium RPMI, 20% płodowej surowicy bydlęcej, 1% antybiotyku Pen-Strep) w temperaturze 37 °C i 5% CO2, dokonując pasażowania co 3-4 dni.
- Policz komórki BC-3 w ten sam sposób, w jaki liczono komórki P3HR-1 zgodnie z krokiem 1. Do płytki 96-dołkowej dodaj 105 komórek BC-3 do każdego dołka. Wykorzystaj trzy, sześć, dziewięć lub 12 dołków, aby zapewnić istotność wyników i zminimalizować błędy.
- Do każdego dołka dodaj objętość zapasu wirusa, zależną od stężenia preparatu wirusowego określonego w kroku 6.3. MOI może być zmienne, a optymalizacja tego protokołu pozwoli wyznaczyć najlepszy MOI dla infekcji (zalecany zakres MOI to 2-50). Upewnij się, że całkowita objętość mieszaniny w każdym dołku wynosi 250 µL.
- Aby określić wymaganą objętość, należy znać stężenie zapasu wirusa i wybrać odpowiedni MOI. Na przykład, jeśli MOI wynosi 2, liczba dodanych cząstek wirusa powinna być dwukrotnością liczby komórek. Oblicz objętość V wymaganego zapasu wirusa, korzystając ze wzoru:
 , gdzie n to liczba potrzebnych cząstek wirusa, a C to znane stężenie zapasu wirusa
- Aby określić wymaganą objętość, należy znać stężenie zapasu wirusa i wybrać odpowiedni MOI. Na przykład, jeśli MOI wynosi 2, liczba dodanych cząstek wirusa powinna być dwukrotnością liczby komórek. Oblicz objętość V wymaganego zapasu wirusa, korzystając ze wzoru:
- Inkubuj zawartość płytki 96-dołkowej przez 5 dni. Po 5 dniach przenieś zawartość każdego dołka do probówki 1,5 mL.
- Wiruj probówki przy 120 x g przez 8 min, aby oddzielić komórki od medium hodowlanego zawierającego wirusa. Poddaj pellety komórkowe oraz nadsączniki ekstrakcji DNA, a następnie ilościowej analizie PCR w czasie rzeczywistym, aby sprawdzić obecność genomów wirusowych w każdej frakcji, oceniając tym samym zakaźność cząstek wirusowych.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Celem tej procedury jest wyizolowanie cząsteczek EBV w zawiesinie o znanym mianie wirusa, która może być następnie wykorzystana do modelowania infekcji EBV. Dlatego też niezwykle ważne jest zastosowanie optymalnych stężeń poszczególnych odczynników, aby uzyskać najwyższą wydajność EBV w ramach procedury.
Przeprowadzono próbę optymalizacyjną w celu wyznaczenia stężeń PMA oraz DMSO, które zapewnią najwyższą liczbę cząsteczek EBV (Rycina 2). Optymalne okazały się stę...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Produkcja cząsteczek EBV jest niezbędna do zrozumienia biologii tego wirusa, a także związanych z nim chorób. Tutaj opisaliśmy produkcję tych cząstek z linii komórkowej P3HR-1. Ta linia komórkowa nie jest jedyną linią produkującą EBV; w rzeczywistości cząsteczki EBV zostały również wyizolowane z komórek B95-8 21,22, a także z linii komórkowej Raji18,19. Cykl lityczny EBV został indukowany w tych komórkach...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy deklarują brak konfliktu interesów.
Podziękowania
Finansowanie tej pracy było wspierane przez granty dla ER z Asmar Research Fund, Libańskiej Narodowej Rady Badań Naukowych (L-CNRS) oraz Planu Praktyki Medycznej (MPP) na Amerykańskim Uniwersytecie w Bejrucie.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Cienkościenne probówki PCR 0,2 ml | Thermo Scientific | AB0620 | Przed użyciem należy je sterylizować w autoklawie |
| 0,2-10 i mikro; L Końcówki filtrów mikroobjętościowych | Corning | 4807 | Przed użyciem należy je sterylizować w autoklawie |
| 0,5-10 i mikro; L Pipeta | BrandTech | 704770 | |
| 10 ml Jednorazowa pipeta serologiczna | Corning | 4488 | |
| 1000 µ L Filtrowane końcówki do pipet | QSP | TF-112-1000-Q | |
| 100-1000 µ L Pipeta | Eppendorf | 3123000063 | |
| 100x20 mm Płytki do krojenia | Sarstedt | 83.1802 | |
| 10-100 µ L Pipeta | BrandTech | 704774 | |
| 15 ml Probówki stożkowe | Corning | 430791 | |
| 200 µ L Końcówki do pipet z filtrem | QSP | TF-108-200-Q | |
| 20-200 µ L Pipeta | Eppendorf | 3123000055 | |
| 50 ml Probówki stożkowe | Corning | 430828 | |
| CFX96 Termocykler C-1000 w czasie rzeczywistym | Bio-Rad | 184-1000 | |
| DMSO | Amresco | 0231 | |
| Woda wolna od DNaz / RNaz | Zymo Research | W1001-1 | |
| Podkłady EBER | Macrogen | N/A | Podkłady na zamówienie |
| Kontrola DNA EBV (standardy) | Vircell | MBC065 | |
| Etanol (klasa odczynnika laboratoryjnego) | Fischer Chemical | E/0600DF/17 | |
| Płodowa surowica bydlęca | Sigma | F9665 | |
| Fresco 21 Mikrowirówka | Thermo Scientific | 10651805 | |
| Roztwór glikogenu | Qiagen | 158930 | |
| Hemocytometr | BOECO | BOE 01 | |
| Mikroskop światła odwróconego | Zeiss | Axiovert 25 | |
| iTaq Uniwersalny SYBR Green Supermix | Bio-Rad | 172-5121 | |
| Probówka do mikrowirówek | Costar (Corning) | 3621 | Przed użyciem należy poddać autoklawowaniu |
| P3HR-1 Linia komórkowa | ATCC | HTB-62 | |
| Penicylina-Streptomycyna Rozwiązanie | Biowest | L0022 | |
| Fenol | VWR | 20599.297 | |
| 12-mirystynian 13-octanu (PMA) Phorbol 12-mirystynian 13-octan (PMA) | Sigma-Aldrich | P8139 | |
| Napełniacz do pipet | Thermo Scientific | 9501 | |
| Chusteczki precyzyjne | Kimtech | 7552 | |
| RPMI-1640 Pożywka | hodowlana Sigma | R7388 | |
| SL 16R Wirówka | Thermo Scientific | 75004030 | |
| Octan sodu | Riedel-de Haë n (Honeywell) | 25022 | |
| Spektrofotomer | DeNovix | DS-11 | |
| Tris-HCl | Sigma | T-3253 | |
| Trypan Blue Solution | Sigma | T8154 | |
| Inkubator CO2 z płaszczem wodnym | Thermo Scientific | 4121 |
Bibliografia
- Epstein, M. A., Achong, B. G., Barr, Y. M. Virus particles in cultured lymphoblasts from Burkitt's lymphoma. Lancet. 1 (7335), 702-703 (1964).
- Sample, J., et al. Epstein-Barr virus types 1 and 2 differ in their EBNA-3A, EBNA-3B, and EBNA-3C genes. Journal of Virology. 64 (9), 4084-4092 (1990).
- Chang, M. S., Kim, W. H. Epstein-Barr virus in human malignancy: a special reference to Epstein-Barr virus associated gastric carcinoma. Cancer Research and Treatment. 37 (5), 257-267 (2005).
- Manet, E. Encyclopedia of Cancer. Schwab, M. , Springer. Berlin Heidelberg. 1602-1607 (2017).
- Babcock, G. J., Decker, L. L., Volk, M., Thorley-Lawson, D. A. EBV persistence in memory B cells in vivo. Immunity. 9 (3), 395-404 (1998).
- Khan, G., Miyashita, E. M., Yang, B., Babcock, G. J., Thorley-Lawson, D. A. Is EBV persistence in vivo a model for B cell homeostasis. Immunity. 5 (2), 173-179 (1996).
- Jha, H. C., Banerjee, S., Robertson, E. S. The role of gammaherpesviruses in cancer pathogenesis. Pathogens. 5 (1), 18(2016).
- El-Sharkawy, A., Al Zaidan, L., Malki, A. Epstein-Barr virus-associated malignancies: roles of viral oncoproteins in carcinogenesis. Frontiers in Oncology. 8, 265(2018).
- Vereide, D., Sugden, B. Insights into the evolution of lymphomas induced by Epstein-Barr virus. Advances in Cancer Research. 108, 1-19 (2010).
- Vereide, D. T., Sugden, B. Lymphomas differ in their dependence on Epstein-Barr virus. Blood. 117 (6), 1977-1985 (2011).
- Houen, G., Trier, N. H. Epstein-Barr virus and systemic autoimmune diseases. Frontiers in Immunology. 11, 587380(2020).
- Ortiz, A. N., et al. Impact of Epstein-Barr virus infection on inflammatory bowel disease (IBD) clinical outcomes. Revista Espanola de Enfermedades Digestivas. 114 (5), 259-265 (2021).
- Caplazi, P., et al. Mouse models of rheumatoid arthritis. Veterinary Pathology. 52 (5), 819-826 (2015).
- Kiesler, P., Fuss, I. J., Strober, W. Experimental models of inflammatory bowel diseases. Cellular and Molecular Gastroenterology and Hepatology. 1 (2), 154-170 (2015).
- Warde, N. Experimental arthritis: EBV induces arthritis in mice. Nature Reviews Rheumatology. 7 (12), 683(2011).
- Jog, N. R., James, J. A. Epstein Barr virus and autoimmune responses in systemic lupus erythematosus. Frontiers in Immunology. 11, 623944(2020).
- Shimizu, N., Yoshiyama, H., Takada, K. Clonal propagation of Epstein-Barr virus (EBV) recombinants in EBV-negative Akata cells. Journal of Virology. 70 (10), 7260-7263 (1996).
- Hsu, C. H., et al. Induction of Epstein-Barr virus (EBV) reactivation in Raji cells by doxorubicin and cisplatin. Anticancer Research. 22, 4065-4071 (2002).
- Nutter, L. M., Grill, S. P., Li, J. S., Tan, R. S., Cheng, Y. C. Induction of virus enzymes by phorbol esters and n-butyrate in Epstein-Barr virus genome-carrying Raji cells. Cancer Research. 47 (16), 4407-4412 (1987).
- Fresen, K. O., Cho, M. S., zur Hausen, H. Recovery of transforming EBV from non-producer cells after superinfection with non-transforming P3HR-1 EBV. International Journal of Cancer. 22 (4), 378-383 (1978).
- Glaser, R., Tarr, K. L., Dangel, A. W. The transforming prototype of Epstein-Barr virus (B95-8) is also a lytic virus. International Journal of Cancer. 44 (1), 95-100 (1989).
- Sairenji, T., et al. Inhibition of Epstein-Barr virus (EBV) release from P3HR-1 and B95-8 cell lines by monoclonal antibodies to EBV membrane antigen gp350/220. Journal of Virology. 62 (8), 2614-2621 (1988).
- Savage, A., et al. An assessment of the population of cotton-top tamarins (Saguinus oedipus) and their habitat in Colombia. PLoS one. 11 (12), 0168324(2016).
- Kallin, B., Klein, G. Epstein-Barr virus carried by raji cells: a mutant in early functions. Intervirology. 19 (1), 47-51 (1983).
- Fresen, K. O., Cho, M. S., Hausen, H. Z. Recovery of transforming EBV from non-producer cells after superinfection with non-transforming P3HR-1 EBV. International Journal of Cancer. 22 (4), 378-383 (1978).
- Bounaadja, L., Piret, J., Goyette, N., Boivin, G. Evaluation of Epstein-Barr virus, human herpesvirus 6 (HHV-6), and HHV-8 antiviral drug susceptibilities by use of real-time-PCR-based assays. Journal of Clinical Microbiology. 51 (4), 1244-1246 (2013).
- Buelow, D., et al. Comparative evaluation of four real-time PCR methods for the quantitative detection of Epstein-Barr virus from whole blood specimens. Journal of Molecular Diagnostics. 18 (4), 527-534 (2016).
- Wu, D. Y., Kalpana, G. V., Goff, S. P., Schubach, W. H. Epstein-Barr virus nuclear protein 2 (EBNA2) binds to a component of the human SNF-SWI complex, hSNF5/Ini1. Journal of Virology. 70 (9), 6020-6028 (1996).
- Li, C., et al. EBNA2-deleted Epstein-Barr virus (EBV) isolate, P3HR1, causes Hodgkin-like lymphomas and diffuse large B cell lymphomas with type II and Wp-restricted latency types in humanized mice. PLoS Pathogens. 16 (6), 1008590(2020).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
