Nadtlenek wodoru (H2O2) jest zarówno źródłem uszkodzeń oksydacyjnych, jak i cząsteczką sygnałową. Protokół ten opisuje, jak mierzyć mitochondrialneH2O2za pomocą ukierunkowanego na mitochondria HyPer7 (mtHyPer7), genetycznie kodowanego biosensora ratiometrycznego, u żywych drożdży. Szczegółowo opisuje, jak zoptymalizować warunki obrazowania i przeprowadzić ilościową analizę komórkową i subkomórkową przy użyciu ogólnodostępnego oprogramowania.
Artykuł metodologiczny
Obrazowanie mtHyPer7, ratiometrycznego biosensora do pomiaru nadtlenku mitochondriów, w żywych komórkach drożdży
W tym artykule
Podsumowanie
Streszczenie
Dysfunkcja mitochondriów, czyli zmiana funkcjonalna, występuje w wielu chorobach i stanach, w tym w zaburzeniach neurodegeneracyjnych i mięśniowo-szkieletowych, rakach i normalnym starzeniu się. W tym miejscu opisano podejście do oceny funkcji mitochondriów w żywych komórkach drożdży w rozdzielczościach komórkowych i subkomórkowych przy użyciu genetycznie kodowanego, minimalnie inwazyjnego, ratiometrycznego biosensora. Biosensor, HyPer7 (mtHyPer7) ukierunkowany na mitochondria, wykrywa nadtlenek wodoru (H2O2) w mitochondriach. Składa się z mitochondrialnej sekwencji sygnałowej połączonej z koliście permutowanym białkiem fluorescencyjnym i domeną reagującą naH2O2bakteryjnego białka OxyR. Bioczujnik jest generowany i integrowany z genomem drożdży za pomocą systemu wolnego od markerów CRISPR-Cas9, co zapewnia bardziej spójną ekspresję w porównaniu z konstruktami plazmidowymi.
mtHyPer7 jest ilościowo ukierunkowany na mitochondria, nie ma wykrywalnego wpływu na tempo wzrostu drożdży ani morfologię mitochondriów i dostarcza ilościowy odczyt dla mitochondriówH2O2 w normalnych warunkach wzrostu i po ekspozycji na stres oksydacyjny. Protokół ten wyjaśnia, w jaki sposób zoptymalizować warunki obrazowania za pomocą systemu mikroskopu konfokalnego z wirującym dyskiem i przeprowadzić analizę ilościową przy użyciu ogólnodostępnego oprogramowania. Narzędzia te umożliwiają gromadzenie bogatych informacji czasoprzestrzennych na temat mitochondriów zarówno w obrębie komórek, jak i między komórkami w populacji. Co więcej, opisany tutaj przepływ pracy może być wykorzystany do walidacji innych bioczujników.
Wprowadzenie
Mitochondria są niezbędnymi eukariotycznymi organellami komórkowymi, znanymi przede wszystkim z funkcji produkcji ATP poprzez fosforylację oksydacyjną i transport elektronów1. Ponadto mitochondria stanowią miejsca magazynowania wapnia, syntezy lipidów, aminokwasów, kwasów tłuszczowych i klastrów żelazowo-siarkowych oraz transdukcji sygnałów2,3. Wewnątrz komórek mitochondria tworzą dynamiczną sieć o charakterystycznej morfologii i rozmieszczeniu, które różnią się w zależności od typu komórki i stanu metabolicznego. Co więcej, choć mitochondria mogą ulegać fuzji i podziałom, nie wszystkie mitochondria w komórce są sobie równoważne. Liczne badania udokumentowały funkcjonalną heterogeniczność mitochondriów w obrębie pojedynczych komórek pod względem takich parametrów jak potencjał błonowy i stan utlenienia4,5,6. Zmienność funkcji mitochondrialnych wynika częściowo z uszkodzeń organelli spowodowanych mutacjami mtDNA (które występują częściej niż w DNA jądrowym) oraz z uszkodzeń oksydacyjnych wywołanych przez reaktywne formy tlenu (ROS) generowane zarówno wewnątrz, jak i na zewnątrz organelli7,8,9. Uszkodzenia organelli są ograniczane przez mechanizmy kontroli jakości mitochondriów, które naprawiają uszkodzenia lub eliminują mitochondria, których nie da się już zregenerować10.
Nadtlenek wodoru (H2O2) jest reaktywną formą tlenu, która stanowi źródło uszkodzeń oksydacyjnych białek komórkowych, kwasów nukleinowych i lipidów. Jednak H2O2 pełni również rolę cząsteczki sygnałowej, która reguluje aktywności komórkowe poprzez odwracalne utlenianie grup tiolowych w białkach docelowych11,12. H2O2 powstaje z elektronów wyciekających z mitochondrialnego łańcucha transportu elektronów oraz w wyniku działania specyficznych enzymów, takich jak NADPH oksydaza i monoaminooksydazy13,14,15,16,17,18,19,20. Jest on również dezaktywowany przez systemy antyoksydacyjne, w tym te oparte na tioredoksynie i glutationie21,22,23. Zatem analiza poziomu mitochondrialnego H2O2 ma kluczowe znaczenie dla zrozumienia roli tego metabolitu w prawidłowym funkcjonowaniu mitochondriów i komórek, a także w warunkach stresu oksydacyjnego.
Ogólnym celem niniejszego protokołu jest wykrywanie mitochondrialnego H2O2 przy użyciu genetycznie kodowanego ratiometrycznego biosensora H2O2, HyPer7, który jest kierowany do tego organellum (mtHyPer7). mtHyPer7 jest chimerą składającą się z mitochondrialnej sekwencji sygnałowej z genu ATP9 (presekwencji Su9), cyklicznie permutowanej formy zielonego białka fluorescencyjnego (GFP) oraz domeny wiążącej H2O2 białka OxyR z Neisseria meningitidis24 (Rysunek 1). W cyklicznie permutowanym GFP końce N- i C- natywnego GFP są ze sobą połączone, a nowe końce formują się w pobliżu chromoforu, co nadaje białku większą mobilność i zwiększa zmienność jego charakterystyki widmowej w porównaniu z natywnym GFP25. Oddziaływanie domeny OxyR białka mtHyPer7 z H2O2 charakteryzuje się wysokim powinowactwem, selektywnością wobec H2O2 i prowadzi do odwracalnego utlenienia konserwowanych reszt cysteiny oraz tworzenia mostków disulfurowych. Zmiany konformacyjne związane z utlenianiem OxyR są przekazywane na cyklicznie permutowane GFP w mtHyPer7, co skutkuje przesunięciem widmowym maksimum pobudzenia chromoforu mtHyPer7 z 405 nm w stanie zredukowanym do 488 nm w stanie utlenionym przez H2O226. Zatem stosunek fluorescencji mtHyPer7 w odpowiedzi na pobudzenie przy 488 nm w stosunku do 405 nm odzwierciedla stopień utlenienia sondy przez H2O2.
W idealnym przypadku biosensor powinien zapewniać rzeczywisty, bezwzględny i ilościowy odczyt cząsteczki docelowej. Niestety w pomiarach przeprowadzanych w rzeczywistych warunkach nie zawsze jest to możliwe. W przypadku czujników utleniania, takich jak mtHyPer7, odczyt w czasie rzeczywistym jest zależny od szybkości redukcji mostka disiarczkowego. Systemy redukcyjne wykorzystywane przez biosensory ROS różnią się od siebie, co może drastycznie zmienić dynamikę odpowiedzi sondy – co wykazano w porównaniu HyPer7, redukowanego przez system tioredoksynowy, oraz roGFP2-Tsa2ΔCR, redukowanego przez glutation, w cytozolu drożdży27. Zatem, aby wyciągnąć wnioski na temat względnego stężenia H2O2 na podstawie stosunków mtHyPer7, należy założyć, że system redukcyjny utrzymuje stałą wydajność podczas eksperymentu. Pomimo tych rozważań, HyPer7 i pokrewne sondy były stosowane w różnych kontekstach w celu uzyskania informacji o H2O2 w żywych komórkach25,28,29.

Rycina 1: Projekt, mechanizm molekularny i widma wzbudzenia/emisji biosensora H2O2 mtHyPer7. (A) Sonda mtHyPer7 została opracowana poprzez wstawienie kołowo permutowanego GFP do domeny OxyR-RD z Neisseria meningitidis. Zawiera ona sekwencję kierującą do mitochondriów z podjednostki 9 syntazy ATP z Neurospora crassa (Su9). (B) Ilustracja mechanizmu wykrywania H2O2 przez mtHyPer7. Utlenianie cystein w domenie RD zwiększa emisję fluorescencji przy wzbudzeniu przy 488 nm i zmniejsza emisję powstającą przy wzbudzeniu przy 405 nm. (C) Widma wzbudzenia i emisji HyPer7 w formach utlenionej i zredukowanej. Rycina przedrukowana za zgodą Paka i wsp.24. Skróty: GFP = zielone białko fluorescencyjne; cpGFP = kołowo permutowane GFP. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
To ratiometryczne obrazowanie mtHyPer7 oferuje istotne zalety w zakresie oznaczania ilościowego mitochondrialnego H2O224,27; zapewnia ono wewnętrzną kontrolę stężenia sondy. Ponadto przesunięcie piku wzbudzenia wywołane ekspozycją na H2O2 nie jest całkowite, nawet przy nasycających stężeniach H2O2. W związku z tym obrazowanie ratiometryczne może zwiększyć czułość poprzez uwzględnienie dwóch punktów widmowych w analizie.
Sonda mtHyPer7 zastosowana w niniejszym badaniu wykazuje bardzo wysokie powinowactwo do H2O2 i stosunkowo niską wrażliwość na pH24, a jej celowanie do mitochondriów Caenorhabditis elegans zakończyło się sukcesem30. Białko to było wykorzystywane również w drożdżach27,31. Jednak poprzednie badania opierały się na ekspresji mtHyPer7 z plazmidu, co prowadzi do zmienności poziomu ekspresji sondy między poszczególnymi komórkami27. Ponadto konstrukt opisany w niniejszym protokole został zintegrowany z konserwatywnym, wolnym od genów regionem chromosomu X32 z wykorzystaniem podejścia opartego na CRISPR w celu integracji bezmarkerowej. Ekspresja zintegrowanego genu biosensora jest również kontrolowana przez silny konstytutywny promotor TEF1 (Rycina 2). W rezultacie w populacjach komórek drożdży obserwuje się bardziej stabilną i spójną ekspresję biosensora w porównaniu do ekspresji z plazmidu, a komórki zawierające biosensor mogą być namnażane bez konieczności stosowania pożywek selekcyjnych.
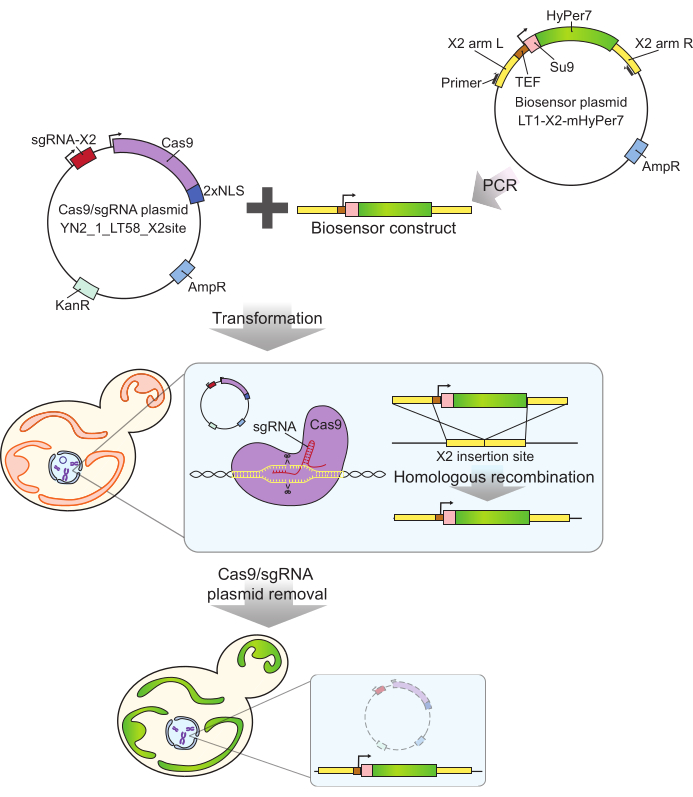
Rycina 2: Generowanie komórek wykazujących ekspresję mtHyPer7 za pomocą CRISPR. Plazmid zawierający Cas9 i sgRNA (YN2_1_LT58_X2site) oraz powielona metodą PCR konstrukcja biosensora zawierająca mtHyPer7 są wprowadzane do komórek drożdży pączkujących poprzez transformację octanem litu. Pozbawione genów miejsce insercji na chromosomie X (X2) jest rozpoznawane i przecinane przez białko Cas9 z sgRNA, a biosensor zostaje zintegrowany z genomem poprzez rekombinację homologiczną. Po zidentyfikowaniu udanych transformantów za pomocą przesiewu mikroskopowego, PCR kolonii i sekwencjonowania, plazmid Cas9 jest usuwany (eliminowany) poprzez hodowlę w mediach nieselekcyjnych. Skróty: sgRNA = pojedynczy prowadzący RNA; TEF = czynnik wzmacniający transkrypcję. Kliknij tutaj, aby zobaczyć większą wersję tej ryciny.
Wreszcie, mtHyPer7 oferuje zalety w porównaniu z innymi biosensorami ROS. Na przykład barwniki organiczne stosowane do wykrywania ROS (np. dihydroetydium [DHE]2 i MitoSOX3) mogą powodować nierównomierne lub niespecyficzne barwienie i często są dostarczane w rozpuszczalnikach takich jak etanol lub dimetylosulfotlenek, co wymaga dodatkowych kontroli wpływu rozpuszczalnika. Inną klasą biosensorów ROS są biosensory oparte na transferze energii między fluoroforami (FRET) (np. Redoxfluor do badania stanu redoks komórek4 oraz sensory nadtlenku HSP-FRET5, OxyFRET6 i PerFRET6). Sondy te są kodowane genetycznie i w zasadzie wykazują wysoką czułość, a dzięki dobrze scharakteryzowanym sekwencjom sygnałowym mogą być ilościowo kierowane do mitochondriów. Istnieją jednak trudności w stosowaniu sond opartych na FRET, w tym tło wynikające z wzajemnej ekscytacji i przenikania sygnału (bleed-through) oraz rygorystyczne wymagania dotyczące bliskości i orientacji fluoroforów niezbędne do zajścia FRET33,34. Ponadto sondy FRET składają się z dwóch białek fluorescencyjnych, co wymaga zastosowania większych konstruktów do ekspresji w badanych komórkach w porównaniu z sondami zmieniającymi widmo. Opisany tutaj protokół został opracowany tak, aby wykorzystać mocne strony biosensora opartego na HyPer7 i użyć tej kompaktowej, ratiometrycznej, wysokopowinowatej, kodowanej genetycznie sondy do ilościowego obrazowania nadtlenku w mitochondriach żywych drożdży.
Protokół
1. Generowanie plazmidu biosensora, integracja z genomem drożdży oraz ocena kierowania mtHyPer7 do mitochondriów i wpływu na morfologię mitochondriów, tempo wzrostu komórek lub wrażliwość na stres oksydacyjny
UWAGA: W celu uzyskania informacji na temat konstrukcji plazmidów biosensora, szczepów, plazmidów i primerów użytych do konstrukcji i charakterystyki biosensora, należy zapoznać się odpowiednio z Plikiem uzupełniającym 1, Tabelą uzupełniającą S1, Tabelą uzupełniającą S2 oraz Tabelą uzupełniającą S3. Szczegóły dotyczące wszystkich materiałów, odczynników i instrumentów użytych w tym protokole znajdują się w Tabeli materiałów.
- Namnóż konstrukt biosensora z plazmidu biosensora, używając starterów Y290 i Y291 (Rysunek 2) za pomocą reakcji łańcuchowej polimerazy (PCR).
- Wymieszaj 500 ng plazmidu Cas9/guide RNA (YN2_1_LT58_X2site32) z 50 µL produktu PCR z kroku 1.1 (konstrukt biosensora). Przetransformuj mieszaninę do drożdży pączkujących metodą octanu litu35 i wyselekcjonuj transformanty na płytkach YPD zawierających 200 mg/mL G418.
- Przesiej kandydackie transformanty poprzez amplifikację PCR DNA genomowego przy użyciu starterów Y292 i Y293. W przypadku transformantów posiadających insert o oczekiwanej wielkości (pozytywne: 3,5 kb; negatywne: 0,3 kb), przeprowadź sekwencjonowanie wstawionego regionu w celu dalszej walidacji.
- Oceń wpływ biosensora na wzrost i funkcję mitochondriów (Rysunek 3). Jeśli biosensor wydaje się wpływać na funkcję komórek lub mitochondriów, spróbuj zminimalizować ten efekt poprzez zmianę promotora, miejsca integracji lub szczepu wyjściowego.
- Określ wpływ konstruktu biosensora na tempo wzrostu w obecności i w nieobecności stresora oksydacyjnego (np. parakwatu), zgodnie z wcześniejszym opisem36.
- Rozcieńcz komórki w średniej fazie logarytmicznej do gęstości optycznej przy 600 nm (OD600) wynoszącej 0,0035 w 200 µL odpowiednich pożywek z traktowaniem i bez traktowania w każdej studzience 96-dołkowej płytki o płaskim dnie. Mierz gęstość optyczną hodowli co 20 min przez 72 h za pomocą czytnika płytek. Oblicz maksymalne tempo wzrostu (nachylenie) jako maksymalną zmianę OD w interwale 240 min podczas 72-godzinnego przebiegu.
- Wizualizuj komórki za pomocą mikroskopii fluorescencyjnej i oceń jasność oraz morfologię mitochondriów zgodnie z wcześniejszym opisem37.
- Hoduj komórki do średniej fazy logarytmicznej, zabarw mitochondria MitoTracker Red w stężeniu 250 nM przez 30 min i przemyj dwukrotnie przed obrazowaniem. Wykonaj serie obrazów Z (Z stacks) o głębokości 6 µm w odstępach 0,3 µm na szerokopolowym lub konfokalnym mikroskopie fluorescencyjnym i dokonaj wizualnej inspekcji. Szukaj mitochondriów tworzących wydłużone struktury rurkowate.
- Określ wpływ konstruktu biosensora na tempo wzrostu w obecności i w nieobecności stresora oksydacyjnego (np. parakwatu), zgodnie z wcześniejszym opisem36.
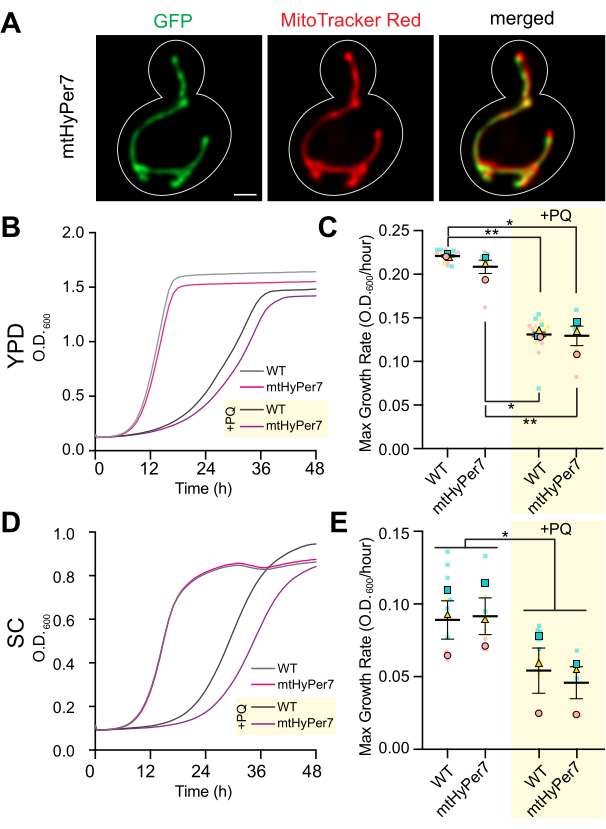
Rycina 3: mtHyPer7 jest kierowany do mitochondriów i nie wpływa na morfologię mitochondriów, wzrost komórek ani wrażliwość na stres oksydacyjny. (A) Morfologia mitochondriów w żywych komórkach drożdży wykazujących ekspresję mtHyPer7. Panel lewy: mtHyPer7 zwizualizowany przy pobudzeniu 488 nm. Panel środkowy: mitochondria znakowane 250 nM MitoTracker Red. Panel prawy: obrazy nałożone. Przedstawiono projekcje maksymalnego natężenia. Obrys komórki zaznaczono na biało. Pasek skali = 1 µm. (B,C) Krzywe wzrostu i maksymalna szybkość wzrostu komórek typu dzikiego oraz komórek wykazujących ekspresję mtHyPer7 hodowanych w obecności (+PQ) lub absence 2,5 mM parakwatu w pożywce YPD. (D,E) Krzywe wzrostu i maksymalna szybkość wzrostu komórek typu dzikiego oraz wykazujących ekspresję mtHyPer7 hodowanych w obecności (+PQ) lub absence 2,5 mM parakwatu w pożywce SC. Wszystkie krzywe wzrostu stanowią średnią z trzech niezależnych powtórzeń. Maksymalne szybkości wzrostu przedstawiono jako średnią ± błąd standardowy średniej (SEM). Analizę krzywych wzrostu przeprowadzono poprzez rozcieńczenie komórek w średniej fazie logarytmicznej do OD600 wynoszącej 0,0035 w 200 µL odpowiedniej pożywki w każdej studzience 96-dołkowej płytki o płaskim dnie. OD kultury mierzono co 20 min przez 72 h przy użyciu czytnika płytek. Każdy szczep/warunek wysiano w trzech powtórzeniach i wykreślono uśrednioną szybkość wzrostu. Maksymalną szybkość wzrostu (nachylenie) obliczono na podstawie zmian OD w odstępach 240 min w ciągu 72 h. Skróty: WT = typ dziki; PQ = parakwat. Kliknij tutaj, aby zobaczyć większą wersję tej ryciny.
2. Hodowla komórek i przygotowanie do obrazowania (Rycina 4)
- Namnażaj komórki w pożywce syntetycznej do środkowej fazy logarytmicznej w celu obrazowania. Kultura w środkowej fazie logarytmicznej o objętości 5 mL dostarcza wystarczającą liczbę komórek na cztery lub pięć szkiełek i łącznie >100 komórek pączkujących do analizy.
- Rano, w dniu poprzedzającym eksperyment, przygotuj płynne prekultury, szczepiąc 5 mL syntetycznej pożywki kompletnej (SC) w probówce stożkowej o pojemności 50 mL pojedynczą kolonią komórek drożdży.
- Inkubuj prekulturę w inkubatorze orbitalnym przy 200 rpm i 30 °C przez 6-8 h. Zmierz OD600 prekultury, która powinna znajdować się w środkowej fazie logarytmicznej: ~0,5-1 × 10⁷ komórek/mL, OD600 ~0,1-0,3.
- Przygotuj kulturę w środkowej fazie logarytmicznej, wykorzystując prekulturę do obrazowania w następnym dniu. Oblicz ilość prekultury potrzebną do uzyskania kultury w środkowej fazie logarytmicznej po nocnym wzroście (8-16 h). Gdy komórki są hodowane w pożywce SC, czas podwojenia wynosi ~2 h. Zatem objętość (V) prekultury do zaszczepienia 5 mL kultury nocnej oblicza się za pomocą równania (1):
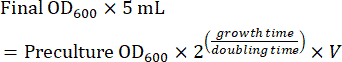 (1)
- Zaszczep 5 mL pożywki SC w probówce stożkowej o pojemności 50 mL ilością prekultury obliczoną w kroku 2.1.3. Hoduj w inkubatorze orbitalnym przy 200 rpm i 30 °C przez 8-16 h.
- W dniu obrazowania potwierdź, że kultura uzyskana w kroku 2.1.4 znajduje się w środkowej fazie logarytmicznej (OD600 ~0,1-0,3). Skoncentruj komórki z 1 mL kultury w środkowej fazie logarytmicznej poprzez wirowanie przy 6 000 × g przez 30 s. Usuń nadsącz, pozostawiając w probówce 10-20 µL nadsączu. Resuspenduj osad komórkowy, delikatnie mieszając go z pozostałą pożywką za pomocą mikropipety.
- Użyj gruszki do usuwania kurzu lub chusteczki bezpyłowej, aby oczyścić szklane szkiełko mikroskopowe, a następnie nanieś na nie 1,8 µL zawiesiny komórkowej. Przykryj komórki szklanym szkiełkiem zakrywnym #1,5 (grubości 170 µm), opuszczając zakrywkę powoli pod kątem, aby uniknąć powstania pęcherzyków powietrza.
- Wykonaj obrazowanie natychmiast i zutylizuj szkiełko po 10 min obrazowania.
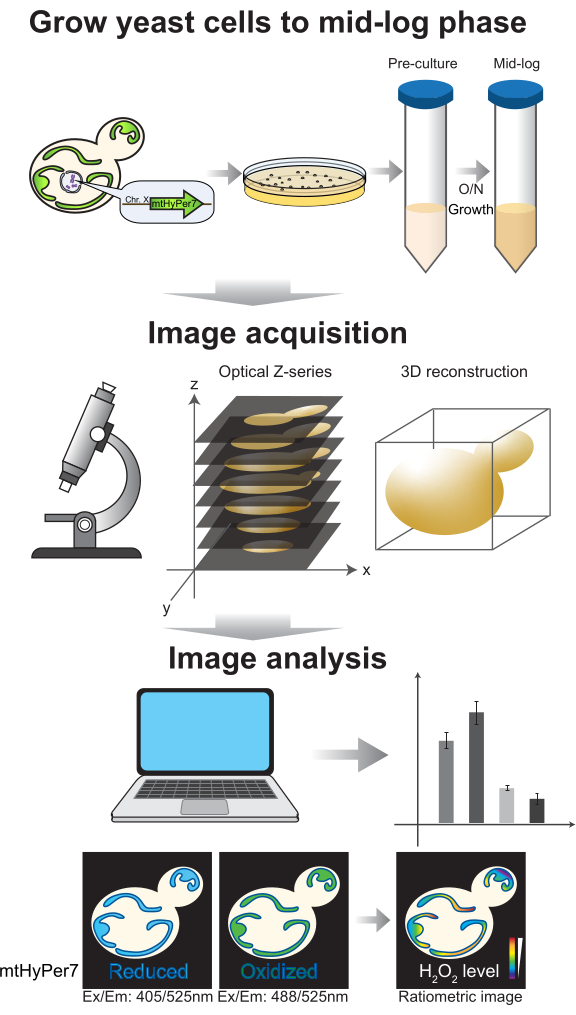
Rycina 4: Wzrost i obrazowanie komórek. Komórki pączkujących drożdży wykazujące ekspresję mtHyPer7 są hodowane do środkowej fazy logarytmicznej. Obrazy serii Z są pozyskiwane za pomocą konfokalnej mikroskopii dyskowej (spinning-disk), a następnie poddawane rekonstrukcji i analizie 3D. Patrz sekcje protokołu 2-3. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
3. Optymalizacja warunków obrazowania i akwizycja obrazów (Rysunek 5)
- Wybierz tryb obrazowaniaW celu uzyskania sekcji optycznych bez konieczności późniejszego przetwarzania danych zaleca się stosowanie konfokalnego mikroskopu z dyskiem wirującym. Jeśli jednak sygnał jest słaby lub taki instrument jest niedostępny, należy zastosować obrazowanie w szerokim polu, dbając o to, aby obrazy te poddać dekonwolucji w celu usunięcia rozmycia poza ogniskową, zgodnie z wcześniejszym opisem.38.
- Wybierz optykaNależy użyć obiektywu imersyjnego z wysoką aperturą numeryczną, np. 100x/1,45 Plan-Apochromat.
- Wybierz wzbudzenie i długości fal emisjiDla obrazowanie konfokalne z dyskiem wirującymużyć wzbudzenia laserowego przy 405 nm i 488 nm oraz a standardowy filtr emisyjny GFPDla obrazowanie szerokokątnenależy zastosować wzbudzanie za pomocą diody emitującej światło (LED) lub lampy, upewniając się jednocześnie, że konfiguracja filtrów umożliwia zmianę długości fali wzbudzenia przy jednoczesnym przepuszczaniu emisji przez standardowy filtr GFP.
UWAGA: Można to osiągnąć na przykład poprzez wyjęcie filtra wzbudzenia z kostki GFP i wykorzystanie diody LED lub koła filtrującego do wyboru wzbudzenia. - Wybierz czas ekspozycji i natężenie oświetlenia.
- Należy ustalić warunki akwizycji, które zapewnią łatwo wykrywalny sygnał i akceptowalną rozdzielczość w każdym kanale fluorescencji. Na przykład, w przypadku konfokalny mikroskop z dyskiem wirującym z an kamera sCMOSużyj binning 2 x 2, moc lasera 20-40%oraz czas ekspozycji 200–600 ms.
- Przeanalizuj histogram obrazu. W pażyt obraz 12-bitowy (4 096 możliwych poziomów szarości)upewnij się, że całkowita rozpiętość dynamiczna wartości pikseli wynosi co najmniej kilkaset poziomów szarości, bez nasycenia (Rycina 5A). Ponadto należy upewnić się, że zakres jest o rząd wielkości wyższy niż poziom szumów. Poziom szumów oblicza się jako odchylenie standardowe wartości pikseli w obszarze obrazu pozbawionym komórek, zmierzonym zgodnie z opisem w kroku 4.1.3.1.
- Test pod kątem fotoblaknięcia lub stresu mitochondrialnego indukowanego obrazowaniem w wybranych warunkach obrazowania. Jeśli wystąpi nadmierne fotoblaknięcie lub wzrost mitochondrialnego H2O2 jeśli zostanie zaobserwowane, należy zmniejszyć moc lasera i zwiększyć czas ekspozycji lub binning.
- Należy zebrać serię obrazów w technice time-lapse, bez opóźnień między akwizycjami, aby ocenić wpływ warunków obrazowania na stabilność sygnału i stres oksydacyjny w mitochondriach. Przy użyciu oprogramowania do akwizycji mikroskopowej lub programu ImageJ należy zmierzyć średnia wartość piksela w każdym kanale fluorescencji w celu potwierdzenia stabilności sygnału (<zmiana o 5%; Rycina 5B). Jeśli eksperyment nie obejmuje obrazowania time-lapse, należy upewnić się, że fluorescencja jest stabilna w obrębie dwóch lub trzech powtórzonych stosów Z (25–35 ekspozycji).
UWAGA: Spadek fluorescencji w obu kanałach może wskazywać na fotowybielanie; jednak spadek fluorescencji wzbudzanej falą o długości 405 nm, któremu towarzyszy wzrost w kanale wzbudzanym falą o długości 488 nm, może wskazywać na zwiększone mitochondrialne H2O2 or stres oksydacyjny w organelli wywołany obrazowaniem.
- Należy zebrać serię obrazów w technice time-lapse, bez opóźnień między akwizycjami, aby ocenić wpływ warunków obrazowania na stabilność sygnału i stres oksydacyjny w mitochondriach. Przy użyciu oprogramowania do akwizycji mikroskopowej lub programu ImageJ należy zmierzyć średnia wartość piksela w każdym kanale fluorescencji w celu potwierdzenia stabilności sygnału (<zmiana o 5%; Rycina 5B). Jeśli eksperyment nie obejmuje obrazowania time-lapse, należy upewnić się, że fluorescencja jest stabilna w obrębie dwóch lub trzech powtórzonych stosów Z (25–35 ekspozycji).
- Należy wykonać akwizycję obrazów. W przypadku zbierania stosów Z (Z-stacks) należy upewnić się, że interwał Z jest taki sam dla wszystkich obrazów w zbiorze danych i że obejmuje on całą komórkę. W przypadku drożdży pączkujących należy obrazować przy użyciu przedział Z z 0.5 µm oraz a całkowita głębokość stosu z 6 µm. Należy wykonać obrazy w świetle przechodzącym w celu udokumentowania granic komórek.
- Analiza obrazów metodą manualną lub półautomatyczną poprzez skrypty dostępne w Plik uzupełniający 2 oraz w https://github.com/theresaswayne/biosensor, przy użyciu dystrybucji Fiji programu ImageJ39 oraz oprogramowanie statystyczne R (Rysunek 6). W instrukcjach oprogramowania polecenia menu hierarchicznego są przedstawione w pogrubienie z "|", co oznacza sekwencję wyborów z menu. Opcje i przyciski są przedstawione w pogrubienie.
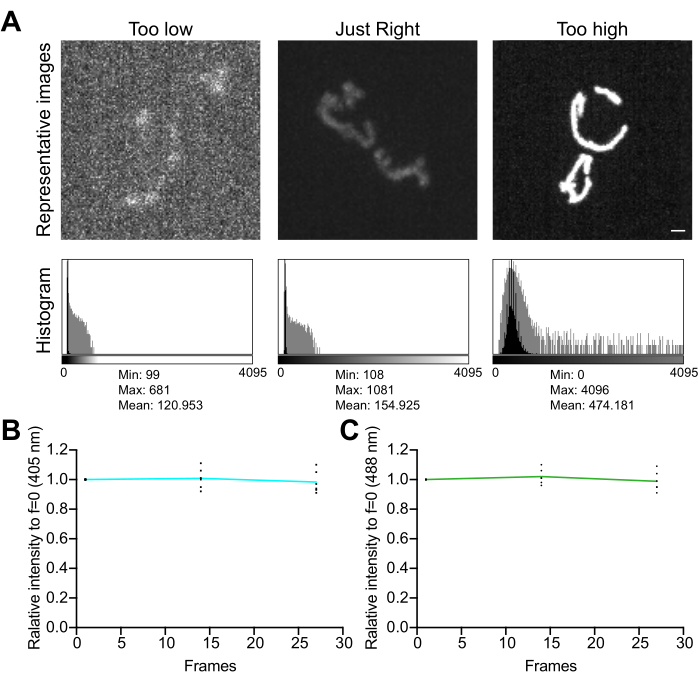
Rysunek 5: Optymalizacja obrazowania. (A) Ocena obrazów i histogramów w celu wyznaczenia prawidłowego zakresu intensywności. Przedstawiono projekcje maksymalnej intensywności obrazów z konfokalnego mikroskopu z dyskiem obrotowym. Histogramy pokazano zarówno z liniową osią Y (czarny), jak i osią Y w skali logarytmicznej (szary), aby zilustrować zakres dynamiczny obrazu. Panele lewe: obraz zaszumiony o niskiej intensywności i niskim zakresie dynamicznym. Panele środkowe: obraz o akceptowalnym zakresie dynamicznym (~1 000 poziomów szarości) i intensywności. Panele prawe: obraz z niewłaściwie wzmocnionym kontrastem, co spowodowało nadmierne nasycenie. Pasek skali = 1 µm. (B,C) Analiza fotowyblakania mtHyPer7. Kolejne stosy Z gromadzono bez opóźnienia, stosy Z sumowano, a średnią intensywność mitochondriów mierzono i normalizowano do pierwszego punktu czasowego. Przedstawiono wyniki z trzech pierwszych punktów czasowych (27 ekspozycji). (B) Długość fali wzbudzenia: 405 nm. (C) Długość fali wzbudzenia: 488 nm. Przedstawione wartości są średnimi z trzech komórek z każdych trzech niezależnych prób. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
4. Analiza półautomatyczna za pomocą skryptów
- Generowanie i pomiar obrazów stosunku (ratio) za pomocą skryptu do analizy biosensorów (np. biosensor.ijm lub biosensor-image-subtraction.ijm).
- Wybierz skrypt do użycia. Protokół korzystania z każdego skryptu jest podobny; wszelkie różnice zostaną określone w tekście.
- biosensor.ijm: W tym skrypcie tło i szum są korygowane przy użyciu wybranych przez użytkownika obszarów obrazu, stałych wartości lub bez odejmowania. Metody korekcji tła i szumu wybiera się niezależnie.
- biosensor-image-subtraction.ijm: W tym skrypcie zarówno tło, jak i szum są obsługiwane przez tę samą metodę wybraną przez użytkownika, która może być jedną z następujących: obraz pusty, wybrany przez użytkownika obszar w obrazie, stała wartość lub brak korekcji.
- W programie Fiji otwórz wielokanałowy obraz stosu Z (Z stack) pozyskany w kroku 3.5. Otwórz żądany plik skryptu do analizy biosensorów. Uruchom skrypt, klikając Run w oknie Script Editor. W wyświetlanym oknie dialogowym wprowadź wymagane informacje.
- Wybierz numery kanałów licznika i mianownika do obliczenia stosunku. Dla mtHyPer7 licznikiem jest kanał wzbudzany przy 488 nm, a mianownikiem kanał wzbudzany przy 405 nm. Wybierz numer kanału obrazu światła przechodzącego, jeśli jest dostępny, lub 0, jeśli go nie ma.
- Wybierz żądaną metodę odejmowania tła z czterech poniższych opcji. Jeśli tło jest stosunkowo jednolite, wybierz Select an image area, co pozwala na bezpośredni pomiar poziomu tła w obrazie. Jeśli tło znacząco różni się w całym polu widzenia, użyj skryptu biosensor-image-subtraction.ijm i wybierz Blank image (aby pozyskać obraz pusty do korekcji, wykonaj wielokanałowy stos Z w identycznych warunkach akwizycji w polu widzenia wolnym od komórek lub z preparatu wykonanego z bezkomórkowego medium hodowlanego). Fixed value umożliwia wprowadzenie wcześniej zmierzonej wartości tła. None pozostawia tło nieokorygowane, co może jednak zmniejszyć precyzję pomiaru.
- Wybierz żądaną metodę odejmowania szumu. Wartość szumu jest używana jako dolny próg w obrazach kanałów z maską i odjętym tłem, aby zmniejszyć wpływ losowych wahań odczytu detektora. Wybierz Select an image area lub Fixed value, aby umożliwić wprowadzenie wcześniej zmierzonego poziomu szumu, co zazwyczaj sprawdza się dobrze, ponieważ poziomy szumu są stałe, jeśli warunki obrazowania pozostają niezmienne. Alternatywnie wybierz None i użyj wartości 1 jako dolnego progu, co może zwiększyć zmienność pomiarów.
- Wybierz algorytm progowania, aby dokładnie i spójnie wykryć mitochondria; zalecane są Otsu lub MaxEntropy. Idealnie jest stosować ten sam algorytm dla wszystkich obrazów w eksperymencie, zapewniając jednocześnie dokładne rozpoznawanie mitochondriów. Użyj innej metody progowania, jeśli podczas eksperymentu występują zmiany w morfologii.
- Wybierz liczbę obszarów zainteresowania (ROI) na komórkę. Na przykład, jeśli mierzy się różnice między komórką matką a pączkiem, wybierz 2.
- Wybierz folder wyjściowy, w którym zostaną zapisane pomiary i obrazy stosunku.
- Postępuj zgodnie z instrukcjami dotyczącymi korekcji tła oraz szumu.
- Wybór obszaru (jeśli dotyczy): Jeśli do pomiaru tła lub szumu wybrano Select an image area, postępuj zgodnie z instrukcjami, aby narysować obszar tła (poza komórkami lub artefaktami fluorescencyjnymi) za pomocą narzędzia prostokątnego ROI. Po narysowaniu obszaru kliknij OK.
- Wprowadzanie stałej wartości (jeśli dotyczy): Jeśli do pomiaru tła lub szumu wybrano Fixed value, postępuj zgodnie z instrukcjami, aby wprowadzić wartości tła oraz/lub szumu dla każdego kanału fluorescencji.
- Referencyjny obraz pusty (jeśli dotyczy): W skrypcie biosensor-image-subtraction.ijm, jeśli do korekcji tła lub szumu wybrano Blank image , postępuj zgodnie z instrukcjami, aby wybrać plik obrazu pustego.
- Zaznacz ROI do pomiaru. W kulturach w średniej fazie logarytmicznej ogranicz analizę do komórek pączkujących.
- Narysuj ROI odpowiadające poszczególnym komórkom lub obszarom subkomórkowym na podstawie obrazu w świetle przechodzącym. ROI nie musi dokładnie odpowiadać konturowi komórki, ponieważ mierzone będą tylko przeprogowane mitochondria wewnątrz ROI. Alternatywnie otwórz wcześniej zapisany zestaw ROI: w ROI Manager kliknij More, a następnie wybierz plik ROI.
- Po utworzeniu każdego ROI naciśnij T, aby dodać wybrany ROI do ROI Manager. W ROI Manager zaznacz Show All, aby udokumentować zaznaczone komórki. Każdy dodany obszar pojawi się jako ponumerowany element na liście ROI Manager. Jeśli analizujesz więcej niż jedno ROI na komórkę (np. matkę i pączek), zaznaczaj ROI w tej samej kolejności dla każdej analizowanej komórki.
- Po dodaniu wszystkich żądanych ROI do ROI Manager, kliknij OK w oknie dialogowym Mark cells.
- Wybierz format tabeli pomiarowej. W wyświetlanym oknie dialogowym MultiMeasure zaznacz Measure all slices. Zaznacz opcję One row per slice, aby utworzyć tabelę w żądanym formacie. Użyj skryptu process_multiROI_tables.R do przetwarzania tabel utworzonych z opcją One row per slice ; nie zaznaczaj Append Results. Powtórz ten krok 3x (dla pomiaru obrazów licznika [488], mianownika [405] i stosunku [488/405]).
- Skrypt zapisze pliki wyjściowe w folderze wybranym w kroku 4.1.2.6.
- Wybierz skrypt do użycia. Protokół korzystania z każdego skryptu jest podobny; wszelkie różnice zostaną określone w tekście.
- Obliczanie ważonych średnich stosunków dla każdego obszaru lub komórki
- Używając wyników uzyskanych w poprzednim kroku, oblicz ważone średnie stosunki dla każdego obszaru lub komórki za pomocą równania (2). Oblicz stosunki „piksel po pikselu” (pixelwise) lub „obszar po obszarze” (regionwise) (szczegóły w dyskusji).
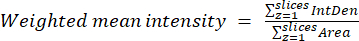 (2)
UWAGA: Wartości pola i gęstości zintegrowanej (IntDen) obejmują tylko piksele w obrębie przeprogowanych mitochondriów. Obliczenia te można zautomatyzować za pomocą skryptu process_multiROI_tables.R i oprogramowania statystycznego R.
- Używając wyników uzyskanych w poprzednim kroku, oblicz ważone średnie stosunki dla każdego obszaru lub komórki za pomocą równania (2). Oblicz stosunki „piksel po pikselu” (pixelwise) lub „obszar po obszarze” (regionwise) (szczegóły w dyskusji).
- Generowanie kolorowego obrazu stosunku. Ponieważ zmiany barwy (koloru) są bardziej widoczne dla ludzkiego oka niż zmiany intensywności, wartość stosunku należy przekonwertować na skalę kolorów w celu łatwiejszej interpretacji wizualnej. Skrypt colorize_ratio_image.ijm pokoloruje zamaskowany obraz stosunku.
- W programie Fiji otwórz obraz stosu Z stosunku wygenerowany w kroku 4.1.6. Otwórz plik skryptu colorize_ratio_image.ijm. Uruchom skrypt, klikając Run w oknie Script Editor. W wyświetlanym oknie dialogowym wprowadź wymagane informacje.
- Metoda kolorowania: W opcji Unmodulated wszystkie piksele mitochondrialne mają taką samą jasność. Jednak niektóre obrazy mogą wydawać się zaszumione, ponieważ zarówno ciemne, jak i jasne piksele wpływają na obraz stosunku. Aby zmniejszyć ten efekt, użyj opcji Intensity modulated .
- Minimalna i maksymalna wyświetlana wartość: Wartości te kontrolują zakres wartości stosunku, które zostaną pokolorowane. Wybierz wartości zbliżone do średnich wartości minimalnych i maksymalnych zaobserwowanych w eksperymencie (na podstawie ważonych średnich stosunków obliczonych w kroku 4.2.1). W obrębie jednego eksperymentu należy upewnić się, że wszystkie obrazy są pozyskiwane w identycznych warunkach obrazowania i wyświetlane z identycznymi wartościami minimalnymi i maksymalnymi.
- Tryb projekcji: Stosy Z są wyświetlane jako projekcje, aby pokazać całą populację mitochondriów. Projekcja jest tworzona przed kolorowaniem. Wybierz Max dla projekcji maksymalnej intensywności (zachowując maksymalne wartości stosunku i intensywności) lub Average dla projekcji średniej intensywności.
- Folder wyjściowy: Wybierz folder, w którym mają zostać zapisane pokolorowane obrazy.
- Jeśli wybrano opcję Unmodulated , wybierz schemat kolorów (tabela wyszukiwania; LUT) w wyświetlanym oknie dialogowym. Użyj wbudowanych w Fiji LUT-ów Fire lub Rainbow RGB lub dowolnego żądanego LUT w formacie .lut ImageJ (Import from LUT file). Zalecany jest LUT Rainbow Smooth40 (zawarty w Supplemental File 2 oraz na GitHubie).
- Skrypt zapisuje pliki wyjściowe w folderze wybranym w kroku 4.3.1.4. Obejmują one pokolorowany obraz stosunku (Color_RGB.tif) oraz pokolorowany obraz stosunku z paskiem kalibracyjnym pokazującym odpowiedniość między wartościami stosunku a kolorem obrazu (Color_with_bar.tif).
- W programie Fiji otwórz obraz stosu Z stosunku wygenerowany w kroku 4.1.6. Otwórz plik skryptu colorize_ratio_image.ijm. Uruchom skrypt, klikając Run w oknie Script Editor. W wyświetlanym oknie dialogowym wprowadź wymagane informacje.
5. Analiza ręczna
UWAGA: Ta metoda zajmuje więcej czasu, ale zapewnia większą elastyczność w preprocessingu oraz przy ustalaniu wartości progowej.
- Korygowanie tła.
- Konfiguracja opcji w programie Fiji.
- Kliknij w Analizuj | Ustaw pomiaryW pojawiającym się oknie dialogowym zaznacz pola wyboru dla Pole, średnia, odchylenie standardowe, zintegrowana gęstość, i Etykieta wyświetlaniaUstaw liczbę miejsc po przecinku na 3.
- Kliknij w Edytuj | Opcje | Wejście/Wyjście. W oknie dialogowym, które się pojawi, zaznacz pola wyboru dla Zapisz numery wierszy i Zapisz nagłówki kolumn.
- Aby zwiększyć czułość obliczeń stosunku, należy odjąć tło z każdego kanału fluorescencji. Jeśli tło jest stosunkowo jednorodne, zmierz średnią intensywność obszaru wolnego od komórek na obrazie i odejmij tę wartość od całego obrazu (krok 5.1.2.1). Alternatywnie, jeśli tło znacząco różni się w obrębie pola widzenia, użyj obrazu kontrolnego (blank) do korekcji (krok 5.1.2.2.).
- Aby odjąć wybrany przez użytkownika obszar, kliknij w Obraz | Kolor | Rozdzielenie kanałówi pozostaw wszystkie obrazy kanałów otwarte, ponieważ będą one potrzebne w dalszej części. Dla każdego kanału fluorescencji wyznacz obszar ROI na tle (poza komórkami), a następnie kliknij Analiza | Pomiarlub w przypadku stosów kliknij Obraz | Stosy | Pomiar stosuObserwuj wartość średnią ROI, która pojawia się w Wyniki tabela. Kliknij w Edytuj | Odznacz wszystkonastępnie Proces | Matematyka | OdejmowanieW wyświetlonym oknie dialogowym należy wprowadzić zmierzoną średnią wartość tła, zaokrągloną do najbliższej liczby całkowitej.
UWAGA: Zaokrąglenie zapobiega błędom w późniejszych operacjach binarnych. - Aby odjąć obraz tła od pliku danych, należy zebrać obraz tła z całkowicie wolnego od komórek pola widzenia lub z preparatu przygotowanego z pożywki wzrostowej bez komórek. Kliknij w Proces | Kalkulator obrazówW oknie dialogowym, które się pojawi, ustaw operację na Odjąća następnie przypisz Image1 do obrazu komórki, a Image2 do obrazu tła. Sprawdź Utwórz nowe okno i Wynik 32-bitowy.
- Aby odjąć wybrany przez użytkownika obszar, kliknij w Obraz | Kolor | Rozdzielenie kanałówi pozostaw wszystkie obrazy kanałów otwarte, ponieważ będą one potrzebne w dalszej części. Dla każdego kanału fluorescencji wyznacz obszar ROI na tle (poza komórkami), a następnie kliknij Analiza | Pomiarlub w przypadku stosów kliknij Obraz | Stosy | Pomiar stosuObserwuj wartość średnią ROI, która pojawia się w Wyniki tabela. Kliknij w Edytuj | Odznacz wszystkonastępnie Proces | Matematyka | OdejmowanieW wyświetlonym oknie dialogowym należy wprowadzić zmierzoną średnią wartość tła, zaokrągloną do najbliższej liczby całkowitej.
- Konfiguracja opcji w programie Fiji.
- Aby ograniczyć analizę do mitochondriów, należy przeprowadzić segmentację. Ponieważ intensywność każdego z kanałów może ulec zmianie w zależności od stanu biosensora, do spójnego zdefiniowania obszaru mitochondriów należy wykorzystać sumę obu kanałów.
- Aby utworzyć obraz sumaryczny, kliknij Proces | Kalkulator obrazówW wyświetlonym oknie dialogowym ustaw operację na Dodaji przypisz Image1 oraz Image2 do dwóch kanałów fluorescencyjnych po odjęciu tła w dowolnej kolejności. Sprawdź Utwórz nowe okno i Wynik 32-bitowy i poczekaj, aż pojawi się obraz sumaryczny.
- Ustaw próg definiujący mitochondria na obrazie sumarycznym.
- Kliknij w Obraz | Dopasuj | PrógW ramach Próg zaznacz w oknie, które pojawi się na ekranie, Ciemne tło i Histogram skumulowanyUstawienie Metoda do pożądanego algorytmu (np. Otsu lub MaxEntropy). W celu zapewnienia powtarzalności należy zastosować automatyczne progowanie, jednak w przypadku braku odpowiedniej metody automatycznej należy dostosować próg ręcznie.
UWAGA: W idealnym przypadku do wszystkich obrazów w jednym eksperymencie należy stosować ten sam algorytm, jednak zmiany morfologiczne w trakcie eksperymentu mogą wymagać zastosowania innej metody progowania w niektórych warunkach. - Po osiągnięciu satysfakcjonującego poziomu progu, kliknij ZastosujW pojawiającym się oknie dialogowym wybierz Konwertuj na maskęW oknie dialogowym, które się pojawi, zaznacz Czarne tło pozostawiając pozostałe pola niezaznaczone. Zapisz otrzymany obraz maski w celu oceny dokładności segmentacji.
- Kliknij w Obraz | Dopasuj | PrógW ramach Próg zaznacz w oknie, które pojawi się na ekranie, Ciemne tło i Histogram skumulowanyUstawienie Metoda do pożądanego algorytmu (np. Otsu lub MaxEntropy). W celu zapewnienia powtarzalności należy zastosować automatyczne progowanie, jednak w przypadku braku odpowiedniej metody automatycznej należy dostosować próg ręcznie.
- Przekształć wartości maski z 0 i 255 odpowiednio na 0 i 1, klikając w Proces | Matematyka | DzielenieUstaw wartość na 255, a następnie, gdy pojawi się odpowiedni komunikat, wybierz opcję przetworzenia wszystkich obrazów.
- Nałóż maskę na kanały fluorescencji po odjęciu tła, klikając w Proces | Kalkulator obrazówW wyświetlonym oknie dialogowym ustaw operację na MnożyćUstaw Image1 jako kanał licznika, a Image2 jako maskę. Sprawdź Utwórz nowe okno i Wynik 32-bitowy; powtórz mnożenie maski z kanałem mianownika.
- Przygotuj każdy zamaskowany kanał do obliczenia stosunku, ustawiając piksele tła na Brak danych wejściowych do przetłumaczenia. Proszę dostarczyć tekst źródłowy. ("nie jest liczbą").
- Wybierz zamaskowany kanał licznika i kliknij w Obraz | Dopasuj | PrógW Próg okno, kliknij Zbióra w oknie dialogowym, które się pojawi, ustaw minimum do obliczony poziom szumu lub do 1i zostawić maksymalna w obecnej formie.
- W Próg okno, kliknij ZastosujW następnym oknie dialogowym wybierz Ustawiono na NaNPowtórz czynność dla zamaskowanego kanału mianownika.
- Wygeneruj obraz stosunku.
- Kliknij w Proces | Kalkulator obrazówW wyświetlonym oknie dialogowym ustaw operację na PodzielićUstaw Image1 i Image2 odpowiednio na maskowane kanały licznika i mianownika po odjęciu tła. W przypadku mtHyPer7 licznikiem jest postać utleniona wzbudzana przy 488 nm, a mianownikiem postać zredukowana wzbudzana przy 405 nm. Zatem wyższe wartości stosunku wskazują na wyższe H2O2.
- Sprawdź Utwórz nowe okno i Wynik 32-bitowyZapisz obraz stosunku dla celów analizy.
- Oznacz i skwantyfikuj obszary zainteresowania. Każdą komórkę lub region subkomórkowy należy zaznaczyć i zapisać jako ROI w programie ROI Manager. Obszary ROI nie muszą idealnie pokrywać się z konturami komórek, ponieważ pomiary będą dotyczyć wyłącznie zamaskowanych regionów mitochondriów.
- Aby zapobiec błędom systematycznym, należy wykorzystać obraz w świetle przechodzącym do wyznaczenia obszarów ROI odpowiadających poszczególnym komórkom (lub regionom wewnątrzkomórkowym). W przypadku kultur w średniej fazie logarytmicznej analizę należy ograniczyć do komórek drożdży z pączkami, które znajdują się w fazie aktywnego podziału komórkowego. Naciśnij T po utworzeniu każdego ROI należy dodać go do ROI Managera. Sprawdź Pokaż wszystko w celu udokumentowania oznakowanych komórek.
- Kliknij obraz stosunku utworzony powyżej, a następnie w ROI Managerze kliknij Więcej … | MultiMeasureW wyświetlanym oknie dialogowym zaznacz Zmierz wszystkie przekrojeRób. nie sprawdź Dołącz wynikiSprawdź Jeden wiersz na przekrój opcję generowania tabeli w pożądanym formacie. Skrypt process_multiROI_tables.R przetworzy tabele utworzone za pomocą Jeden wiersz na przekrój opcja w oprogramowaniu statystycznym R.
- Zapisz wyniki. Kliknij w Wyniki okno, następnie Plik | Zapiszoraz zapisz tabelę z wynikami w formacie .csv lub .xls. Ustaw nazwę pliku tak, aby była zgodna z nazwą obrazu.
- Zapisz obszary zainteresowania (ROI). W menedżerze ROI upewnij się najpierw, że żaden ROI nie jest zaznaczony: kliknij Odznacznastępnie Więcej | ZapiszOtwórz zapisane ROI wraz z oryginalnym obrazem w programie Fiji, aby zestawić pomiary z obrazem.
- Oblicz średnie ważone stosunki dla każdej komórki lub regionu, wykorzystując wyniki otrzymane w poprzednim kroku oraz równanie (3). Oblicz jedną z wartości "pikselowy" lub "z podziałem na regiony" stosunki (szczegóły znajdują się w sekcji dyskusja).
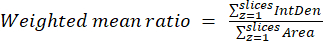 (3)
UWAGA: Wartości pola i zintegrowanej gęstości obejmują wyłącznie piksele w obrębie mitochondriali po zastosowaniu progu. Obliczenie to można zautomatyzować przy użyciu skryptu process_multiROI_tables.R w oprogramowaniu statystycznym R. - Wygeneruj kolorowy obraz stosunku.
UWAGA: Obrazy kolorowe mogą być niezmodyfikowane, w których wszystkie piksele mitochondrialne mają taką samą jasność, lub z modulacją intensywności, w których intensywność pikseli z obrazu oryginalnego jest wykorzystywana do ustawienia intensywności w obrazie kolorowym.- Aby uzyskać niezmodyfikowany obraz kolorowy:
- Otwórz powyższy wygenerowany obraz stosunku. Kliknij w Obraz | Duplikat aby wygenerować kopię obrazu, a następnie zamknąć obraz oryginalny.
- Jeśli obraz jest stosem Z (Z-stack), należy wybrać pojedynczy przekrój lub wygenerować projekcję Z, aby wyświetlić wszystkie mitochondriom. Należy zastosować projekcję maksymalnej intensywności (zachowując maksymalne wartości stosunku i intensywności dla każdej współrzędnej piksela XY) lub projekcję średniej intensywności.
- Kliknij w Obraz | Tabele wyszukiwania i ustaw LUT na pożądany schemat kolorów (np. Tęcza RGB lub Ogień [dostępny domyślnie w ImageJ]). Alternatywnie kliknij Plik | Importuj LUT i wybrać dowolną żądaną tablicę LUT w formacie .lut programu ImageJ, na przykład Rainbow Smooth40 (zawarte w Pliku Uzupełniającym 2 oraz w serwisie GitHub). Upewnij się, że LUT posiada ciemny kolor przypisany do wartość 0.
- Ustaw kontrast wyświetlania, klikając w Obraz | Regulacja | Jasność/KontrastW Okno jasności/kontrastu, kliknij Zestawi w pojawiającym się oknie dialogowym wprowadź żądane wartości dla Minimum i Maksimum wyświetlane wartości. Aby zmaksymalizować obserwowane różnice w kolorach, należy ustawić te wartości na poziomie około minimum i maksimum uzyskanych we wszystkich obrazach. Wszystkie obrazy w danym eksperymencie należy ustawić na tych samych poziomach kontrastu.
UWAGA: Należy nie kliknij Zastosujponieważ spowoduje to zmianę wartości pikseli i uniemożliwi wygenerowanie dokładnego paska kalibracyjnego w następnym kroku. - Dodaj pasek kalibracji kolorów, klikając w Analizuj | Narzędzia | Pasek kalibracyjny. W oknie dialogowym, które się pojawi, zaznacz pole Nałożenie możliwość usunięcia paska, w razie potrzeby, poprzez kliknięcie w Obraz | Nałożenie | Usuń nałożenie.
- W razie potrzeby należy dodać pasek skali, klikając w Analiza | Narzędzia | Pasek skaliW oknie dialogowym, które się pojawi, ustaw pożądany rozmiar, położenie i kolor paska. Zaznacz pole Nakładka opcja zachowania koloru paska niezależnie od użytej tabeli LUT.
- Wygeneruj obraz RGB do publikacji, klikając w Obraz | Nakładka | SpłaszczanieZapisz otrzymany obraz.
UWAGA: Ten obraz służy wyłącznie do celów prezentacyjnych lub publikacyjnych. Wartości intensywności zostały zmienione, w związku z czym nie można przeprowadzić pomiarów. Paski skali zostały również na stałe naniesione na obraz.
- Aby stworzyć obraz z modulacją intensywności:
- Kliknij w Obraz | Duplikat aby utworzyć kopię obrazu, a następnie zamknąć oryginał.
- Jeśli obraz stanowi stos Z (Z stack), należy wybrać pojedynczy przekrój lub wygenerować projekcję Z, aby zobrazować wszystkie mitochondria.
- Ustaw kontrast wyświetlania obrazu stosunku, klikając w Obraz | Dopasuj | Jasność/Kontrast, oraz w Okno jasności/kontrastu, kliknij ZestawW oknie dialogowym, które się pojawi, wprowadź pożądane wartości dla Minimum i Maksimum wyświetlane wartości. Aby zmaksymalizować obserwowane różnice kolorystyczne, należy ustawić te wartości mniej więcej na poziomie minimum i maksimum uzyskanych we wszystkich obrazach, a wszystkie obrazy w eksperymencie ustawić na tych samych poziomach kontrastu. Kliknij Zastosuj aby przeskalować wartości pikseli.
- Aby utworzyć pasek kalibracyjny, należy zduplikować ten ulepszony obraz, a następnie wygenerować pasek, przechodząc do Analiza | Narzędzia | Pasek kalibracyjnyKonwertuj obraz i nakładkę do formatu RGB, klikając w Obraz | Nałożenie | SpłaszczanieW razie potrzeby na potrzeby prezentacji lub publikacji naklej ten pasek na obrazie RGB z modulacją intensywności otrzymanym w kroku 5.6.2.12.
- Utwórz nowy obraz o tej samej szerokości i wysokości co obraz, klikając w Plik | Nowy | Obraz…W otwieranym oknie dialogowym ustaw parametry w następujący sposób: TypRGB; Wypełnić przezCzarny; Szerokość i Wysokośćszerokość i wysokość obrazu); Przekroje: 1.
- Konwertuj nowy stos na stos obrazów HSB (barwa, nasycenie, jasność), klikając w Obraz | Typ | Stos HSB.
- Kliknij obraz stosunku z dostosowanym kontrastem, przechodząc do Edytuj | Zaznacz wszystkonastępnie Edytuj | Kopiuj. Następnie kliknij w stos HSBwybierz pierwszy przekrój (odcień)i kliknij w Edytuj | Wklej aby przenieść wartości stosunku.
- Wybierz przekrój 2 (nasycenie) z styk HSBUstawić kolor pierwszego planu do biały przechodząc do Edycja | Opcje | KoloryKliknij w Edytuj | Zaznacz wszystkonastępnie Edytuj | Wypełniji w otwierającym się oknie dialogowym wybrać Nie aby wypełnić kolorem białym wyłącznie bieżący przekrój.
- Otwórz obraz z surowymi danymi i rozdziel kanały, klikając w Obraz | Kolor | Rozdzielenie kanałów.
- Oblicz średnią z dwóch kanałów stosunku, wykorzystując Kalkulator obrazów i klikając w Proces | Kalkulator obrazu. W pojawiającym się oknie dialogowym ustaw operację na Średniai ustawić Obraz 1 i Obraz 2 do licznik i obrazy mianownikaodpowiednio. Sprawdzić Utwórz nowe okno.
- Kliknij uśredniony obraz utworzony powyżej, przechodząc do Edytuj | Zaznacz wszystkonastępnie Edytuj | Kopiuj. Następnie kliknij stos HSB, wybierz trzeci przekrój (wartość)i kliknij w Edytuj | Wklej aby przenieść wartości intensywności.
- Przekształć stos HSB w przestrzeń barw RGB, klikając w Obraz | Typ | Kolor RGBZapisz otrzymany obraz.
- Aby uzyskać niezmodyfikowany obraz kolorowy:
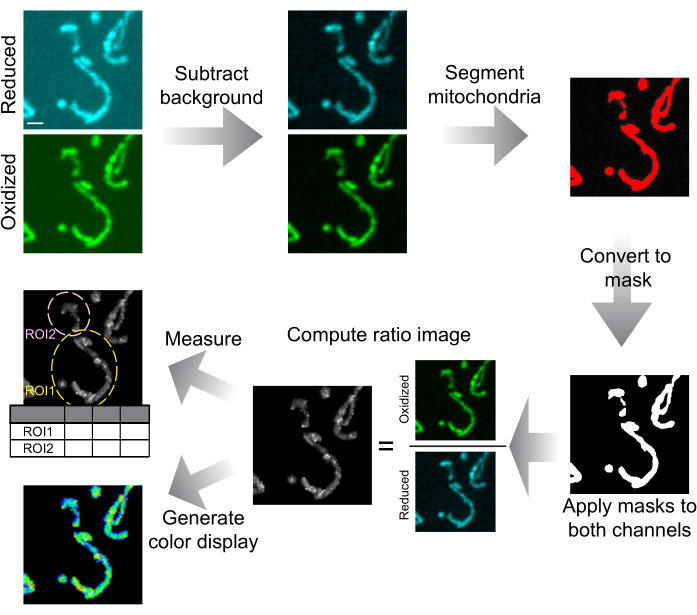
Rysunek 6: Schemat analizy i prezentacji obrazów. Z obrazów z konfokalnego mikroskopu z dyskiem wirującym w pierwszej kolejności odejmowane jest tło. Mitochondria są segmentowane poprzez progowanie i przekształcane w maski dla każdego przekroju. Maski te są nakładane na oba kanały, a zamaskowane obrazy służą do obliczenia obrazu stosunku. Wyznacza się ROI w celu pomiaru stosunku mtHyPer7 w komórkach lub regionach subkomórkowych. Do prezentacji danych można również wygenerować kolorowe obrazy stosunku. Pasek skali = 1 µm. Skrót: ROI = region zainteresowania. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Wyniki
Aby potwierdzić, że mtHyPer7 jest odpowiednią sondą do oceny mitochondrialnego H2O2, oceniono lokalizację mtHyPer7 oraz jego wpływ na mitochondria drożdży i kondycję komórek. W celu oceny ukierunkowania mtHyPer7, mitochondria w kontrolnych komórkach drożdży oraz w drożdżach wykazujących ekspresję mtHyPer7 barwiono żywymi, specyficznymi dla mitochondriów barwnikiem MitoTracker Red. Dzięki barwieniu MitoTracker Red mitochondria widoczne były jako długie struktury rurkowe, które układały się wzdłuż osi matka-pączek i gromadziły się w wierzchołku pączka oraz w wierzchołku komórki matki po przeciwnej stronie pączka41. Morfologia mitochondriów była podobna w komórkach kontrolnych i komórkach wykazujących ekspresję mtHyPer7. Ponadto mtHyPer7 kolokalizował z mitochondriami zabarwionymi MitoTracker Red (Rycyna 3A). Zatem mtHyPer7 został wydajnie i ilościowo skierowany do mitochondriów bez wpływu na ich normalną morfologię lub rozmieszczenie.
Następnie przeprowadzono dodatkowe eksperymenty walidacyjne w celu oceny wpływu mtHyPer7 na kondycję komórkową oraz wrażliwość na stres oksydacyjny w mitochondriach. Tempo wzrostu komórek wykazujących ekspresję mtHyPer7 w bogatych lub syntetycznych pośrodkach opartych na glukozie (odpowiednio YPD lub SC) jest zbliżone do tempa wzrostu nieprzekształconych komórek typu dzikiego (Rycyna 3B,D). Aby ocenić możliwe skutki dla stresu oksydacyjnego w mitochondriach, drożdże kontrolne oraz wykazujące ekspresję mtHyPer7 poddano działaniu niskich stężeń parakwatu – aktywniej redoks małej cząsteczki, która kumuluje się w mitochondriach i prowadzi do podwyższenia poziomu anionorodnika ponadtlenkowego w tym organellum24,27. Gdyby ekspresja mtHyPer7 indukowała stres oksydacyjny w mitochondriach lub chroniła mitochondria przed stresem oksydacyjnym, komórki wykazujące ekspresję mtHyPer7 powinny odpowiednio wykazywać zwiększoną lub zmniejszoną wrażliwość na działanie parakwatu. Leczenie niskimi stężeniami parakwatu spowodowało spadek tempa wzrostu drożdży. Co więcej, tempo wzrostu komórek typu dzikiego i komórek wykazujących ekspresję mtHyPer7 w obecności parakwatu było podobne (Rycyna 3C,E). Zatem ekspresja biosensora nie wywołała istotnego stresu komórkowego w komórkach drożdży pączkujących ani nie zmieniła wrażliwości drożdży na mitochondrialny stres oksydacyjny.
Biorąc pod uwagę dowody na to, że mtHyPer7 nadaje się do badania mitochondrialnego H2O2 u drożdży pączkujących, sprawdzono, czy mtHyPer7 może wykrywać mitochondrialny H2O2 w drożdżach typu dzikiego w środkowej fazie logarytmicznej oraz zmiany w poziomie mitochondrialnego H2O2 wywołane przez zewnętrznie dodany H2O2. Przeprowadzono eksperyment miareczkowania H2O2 i zmierzono w mitochondriach średni stosunek formy utlenionej do zredukowanej (O/R) mtHyPer7.
Zautomatyzowane skrypty analityczne wygenerowały kilka plików wyjściowych.
Obraz stosunku (ratio.tif): stos Z składający się ze stosunku stosów 488 nm i 405 nm po korekcie tła i zastosowaniu progu. Stos ten można przeglądać w programie Fiji bez dodatkowej obróbki; zaleca się jednak zwiększenie kontrastu i/lub kolorowanie obrazu zgodnie z opisem w kroku protokołu 4.3 lub 5.6 przed analizą.
Obraz maski (mask.tif): stos Z składający się z obszarów mitochondrialnych po zastosowaniu progu, wykorzystywany do analizy. Obraz ten należy wykorzystać do oceny dokładności procesu progowania.
Obszary zainteresowania (ROI) użyte do analizy (ROIs.zip): Po otwarciu tego pliku w programie Fiji wraz z obrazem źródłowym, ROI są nakładane na obraz w celu zestawienia tabeli wyników z obrazem źródłowym. Każdy obszar ROI został przemianowany, przypisując mu numer komórki oraz numer ROI.
Tabele pomiarowe (NumResults.csv, DenomResults.csv, Results.csv) zawierające powierzchnię, średnią wartość oraz gęstość zintegrowaną progowych mitochondriów dla każdego przekroju w obrazach licznika, mianownika i stosunku, odpowiednio. W przekrojach, w których mitochondria były nieobecne lub znajdowały się poza ogniskową, zapisano wartość NaN.
Plik dziennika (Log.txt) dokumentujący opcje użyte do korekcji tła i szumu, progowania oraz obliczania stosunku.
Stosunek O/R w przypadku mtHyPer7 wykazał odpowiedź zależną od dawki stężenia H2O2, która osiągnęła plateau przy 1-2 mM zewnętrznie dodanego H2O2 (Rycina 7). Co zaskakujące, stosunek HyPer7 był niższy w komórkach eksponowanych na 0,1 mM H2O2 niż w komórkach kontrolnych, choć różnica ta nie była istotna statystycznie. Jednym z wyjaśnień tego zjawiska może być odpowiedź hormetyczna, w której ekspozycja na niski poziom stresora może indukować odpowiedzi stresowe, takie jak mechanizmy antyoksydacyjne, co z kolei obniża ilość ROS wykrywalną przez sondę. Wyższe poziomy stresorów mogą natomiast przełamać wewnętrzne odpowiedzi stresowe i skutkować wyższym odczytem z HyPer7.

Rysunek 7: Odpowiedź mtHyPer7 na zewnętrznie dodany H2O2. (A) Maksymalna projekcja obrazów wzbudzanych przy 405 nm i 488 nm oraz średnia projekcja intensywności obrazów ratiometrycznych mtHyPer7 w komórkach w środkowej fazie logarytmicznej wystawionych na działanie różnych stężeń H2O2. Kolory pseudobarwne wskazują stosunek utlenionego do zredukowanego mtHyPer7 (skala na dole). Pasek skali = 1 µm. Obrys komórki pokazano w kolorze białym; n > 100 komórek na warunek. (B) Ilościowe oznaczenie stosunku utlenionego do zredukowanego mtHyPer7 w komórkach drożdży pączkujących traktowanych różnymi stężeniami H2O2. Przedstawiono średnie z pięciu niezależnych prób, przy czym każda próba jest oznaczona symbolem o innym kształcie i kolorze. Średnia ± SEM stosunku utlenionego do zredukowanego mtHyPer7: 1,794 ± 0,07627 (brak traktowania), 1,357 ± 0,03295 (0,1 mM), 2,571 ± 0,3186 (0,5 mM), 6,693 ± 0,5194 (1 mM), 7,017 ± 0,1197 (2 mM). p < 0,0001 (jednoczynnikowa ANOVA z testem wielokrotnych porównań Tukeya). Wartości p oznaczono jako: ****p < 0,0001. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Wreszcie, wcześniejsze badania wykazały, że zdrowsze mitochondria, które są bardziej zredukowane i zawierają mniej ponadtlenku, są preferencyjnie dziedziczone przez komórki potomne drożdży4, a katalazy cytozolowe są transportowane do komórek potomnych drożdży i tam aktywowane42,43,44,45. Badania te dokumentują asymetryczne dziedziczenie mitochondriów podczas podziału komórek drożdży oraz rolę tego procesu w kondycji i długości życia komórek potomnych, a także w asymetrii wieku między komórką macierzystą a potomną. Aby sprawdzić, czy istnieją różnice w poziomie H2O2 między komórkami macierzystymi a pączkami, zmierzono poziom mtHyPer7 w pączkach i komórkach macierzystych. W obrębie komórek drożdży zaobserwowano różnice w poziomie mitochondrialnego H2O2 i wykryto niewielki, ale statystycznie istotny spadek odczytu biosensora H2O2 w mitochondriach pączka w porównaniu do mitochondriów w komórce macierzystej (Rysunek 8). Wyniki te są zgodne z wcześniejszymi ustaleniami, według których mitochondria w pączku są lepiej chronione przed stresem oksydacyjnym. Stanowią one również dowód na to, że mtHyPer7 może dostarczyć ilościowego odczytu poziomu mitochondrialnego H2O2 z rozdzielczością komórkową i subkomórkową u drożdży pączkujących.
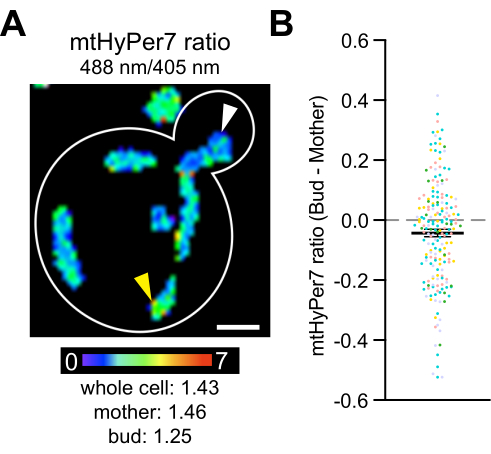
Rysunek 8: Poziom mitochondrialnego H2O2 jest niższy w komórce potomnej. (A) Maksymalna projekcja obrazu ratiometrycznego mtHyPer7 w reprezentatywnej komórce. Kolor pseudobarwny wskazuje stosunek utlenionego do zredukowanego mtHyPer7 (skala na dole). Widoczne są różnice wewnątrzkomórkowe w tym stosunku (groty strzałek). Pasek skali = 1 µm. Obrys komórki: biały. (B) Różnica między stosunkiem mtHyPer7 w pączku a komórką macierzystą. Dla każdej pojedynczej komórki od wartości stosunku w pączku odjęto wartość stosunku w komórce macierzystej i naniesiono jako punkt. n = 193 komórki z pięciu niezależnych eksperymentów, przedstawione za pomocą symboli w różnych kolorach dla każdego eksperymentu. Średnia ± SEM różnicy między stosunkiem mtHyPer7 w pączkach a komórkach macierzystych: -0,04297 ± 0,01266. p = 0,0008 (test t dla prób zależnych) Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Tabela uzupełniająca S1: Szczepy użyte w niniejszym badaniu. Lista użytych szczepów drożdży. Kliknij tutaj, aby pobrać ten plik.
Tabela uzupełniająca S2: Plasmidy użyte w tej badaniu. Lista użytych plazmidów. Kliknij tutaj, aby pobrać ten plik.
Tabela uzupełniająca S3: Startery użyte w niniejszym badaniu. Lista użytych starterów. Kliknij tutaj, aby pobrać ten plik.
Plik uzupełniający 1: Protokół konstrukcji plazmidu biosensora. Kliknij tutaj, aby pobrać ten plik.
Plik uzupełniający 2: Skrypty do zautomatyzowanej analizy. Dla każdego skryptu dostarczono przykładowe pliki wejściowe i wyjściowe. Kliknij tutaj, aby pobrać ten plik.
Dyskusja
W tym protokole opisano metodę wykorzystania mtHyPer7 jako biosensora do oceny mitochondriówH2O2w żywych, pączkujących komórkach drożdży. Bioczujnik został skonstruowany przy użyciu metody opartej na CRISPR i wprowadzony do konserwatywnego, wolnego od genów regionu w genomie drożdży bez użycia selektywnych markerów. W porównaniu z biosensorami plazmidowymi, zintegrowane biosensory ulegają ekspresji we wszystkich komórkach i na stałych poziomach, co zapewnia bardziej wiarygodne wyniki kwantyfikacji. Do generowania komórek wykazujących ekspresję mtHyPer7 nie stosuje się żadnych selektywnych markerów, co pozwala na wykorzystanie szerszego zakresu tła szczepów i ułatwia modyfikację genetyczną komórek wykazujących ekspresję biosensorów. Białko mtHyPer7 jest prawidłowo ukierunkowane na mitochondria bez zauważalnego wpływu na morfologię, funkcję, dystrybucję lub tempo wzrostu mitochondriów. mtHyPer7 wykazuje odpowiedź zależną od dawki na zewnętrznie dodaneH2O2. Co więcej, mtHyPer7 jest w stanie raportować o niejednorodności jakości mitochondriów z rozdzielczością subkomórkową. Wreszcie, użycie mikroskopu konfokalnego z wirującym dyskiem, w przeciwieństwie do mikroskopii szerokokątnej do obrazowania bioczujników ukierunkowanych na mitochondria, powoduje mniejsze fotowybielanie fluoroforów i generuje obrazy o wysokiej rozdzielczości do analizy różnic subkomórkowych.
Ograniczenia i alternatywne podejścia
Ta metoda nie jest odpowiednia do obrazowania komórek przez okres dłuższy niż 10 minut, ponieważ komórki wyschną pod szkiełkiem nakrywkowym. W przypadku obrazowania długoterminowego lepiej jest użyć metody padów agarowych46 lub unieruchomić komórki w naczyniu hodowlanym ze szklanym dnem wypełnionym pożywką SC.
Przy wyborze biosensora należy kierować się stężeniem celu w warunkach doświadczalnych. Jeśli czułość HyPer7 jest zbyt wysoka, zalecana jest inna wersja HyPer, taka jak HyPer3 lub HyPerRed47,48. Należy jednak zauważyć, że inne sondy HyPer są bardziej wrażliwe na pH. W przypadku wyższej czułości bardziej odpowiedni może być roGFP na bazie peroksyredoksyny (roGFP2Tsa2ΔCR)27.
Stały stan utlenienia czujnikaH2O2jest powiązany zarówno ze współczynnikami utleniania, jak i redukcji. Szybkość utleniania bioczujników jest spowodowana głównie przezH2O2, ale szybkość redukcji zależy od systemów redukcji przeciwutleniaczy aktywnych w komórce i organellach. Wykazano, że HyPer7 jest głównie redukowany przez układ tioredoksyny w cytozolu drożdży, a jego redukcja jest szybsza niż w przypadku roGFP2Tsa2ΔCR27. W związku z tym przy interpretacji pomiarów biosensorówH2O2należy wziąć pod uwagę różne mechanizmy redukcji i dynamikę odpowiedzi sondy. W szczególności, aby wywnioskować poziomyH2O2z odczytu biosensora, należy założyć, że układ redukcyjny utrzymuje stałą pojemność podczas eksperymentu. Jako alternatywę dla opisanych tutaj skryptów, udostępniono bezpłatnie szereg innych programów do analizy czujników redoks49.
Kroki krytyczne
W przypadku każdego biosensora bardzo ważne jest wykazanie, że sam bioczujnik nie wpływa na mierzony proces. Dlatego ważne jest porównanie wzrostu i morfologii mitochondriów szczepów w każdych warunkach eksperymentalnych. W tym przypadku morfologia mitochondriów jest oceniana za pomocą MitoTracker Red, który barwi mitochondria w sposób zależny od potencjału błony. Jednak porównanie mitochondriów w komórkach nieprzekształconych i przekształconych przez biosensory można przeprowadzić poprzez barwienie estrem metylowym tetrametylorodaminy (TMRM), alternatywnym mitochondrialnym barwnikiem witalnym wykrywającym potencjał błonowy, lub MitoTracker Green, który barwi mitochondria niezależnie od potencjału błonowego. Jeśli podejrzewa się szkodliwe skutki, pomocne może być zmniejszenie poziomu wyrażenia lub zmiana witryny integracji.
Walidacja zachowania sondy w zakresie dawka-odpowiedź oraz stosunek sygnału do szumu w technice obrazowania są również niezbędne do uzyskania wiarygodnych wyników. Jeśli zmienność w obrębie grupy przewyższa zmienność między grupami, różnice stają się trudne do wykrycia. Zmienność wewnątrzgrupowa może wynikać z rzeczywistej zmienności populacji lub z szumu w procesie wykrywania. Kluczowymi krokami w celu zwiększenia stosunku sygnału do szumu są akwizycja obrazu (zakres wartości pikseli i szum), odejmowanie tła i progowanie.
Efekty hałasu można również zredukować na etapach obliczeń. Najprostszym podejściem jest obliczenie średniej ważonej intensywności na podstawie pomiarów obrazu współczynnika (Results.csv), gdzie każdy piksel reprezentuje lokalny stosunek między sprawnościami wzbudzenia. W ten sposób uzyskuje się proporcje "pikselowe". Jeśli jednak stosunek sygnału do szumu obrazu jest niski, bardziej wiarygodne wyniki można uzyskać, obliczając średnią ważoną intensywność dla ROI zarówno w kanałach licznika, jak i mianownika, a następnie obliczając stosunek między tymi dwiema średnimi ważonymi (stosunek "regionowy").
Aby wybrać metodę progowania, należy użyć polecenia Fidżi Image | Dostosuj | Funkcja Auto Threshold może być używana do automatycznego wypróbowywania wszystkich wbudowanych metod Fidżi. Aby ocenić segmentację (progowanie), zapisana maska jest przekształcana w zaznaczenie, klikając Edytuj | Selekcja | Utwórz zaznaczenie, dodany do Menedżera ROI (przez naciśnięcie T), a następnie aktywowany w pliku obrazu raw. Jeśli mitochondria nie zostaną odpowiednio wykryte, należy spróbować zastosować inną metodę segmentacji.
Podczas porównywania obrazów ważne jest, aby uzyskać wszystkie obrazy w identycznych warunkach obrazowania, a także wyświetlić wszystkie obrazy z identycznym wzmocnieniem kontrastu.
Podczas optymalizacji warunków obrazowania należy wziąć pod uwagę ruch mitochondriów. Jeśli mitochondria poruszają się znacznie między wzbudzeniem przy 405 a 488 nm, obraz proporcji nie będzie dokładny. Zaleca się utrzymanie czasu naświetlania <500 ms i zmianę wzbudzenia najszybszą dostępną metodą (np. impuls wyzwalający lub akustyczno-optyczny filtr przestrajalny). Podczas przechwytywania stosu Z należy wykonać oba wzbudzenia dla każdego kroku Z przed przejściem do następnego kroku Z.
W celu wyświetlenia wyników, zmiany odcienia (koloru) są bardziej widoczne dla ludzkiego oka niż zmiany intensywności. W związku z tym wartość współczynnika jest konwertowana na skalę kolorów w celu łatwiejszej interpretacji wizualnej. Obrazy kolorowane mogą być niemodulowane, gdzie wszystkie piksele mitochondrialne pojawiają się z tą samą jasnością, lub modulowane intensywnie, gdzie intensywność pikseli w oryginalnym obrazie jest używana do ustawiania intensywności w kolorowym obrazie.
Modyfikacja i rozwiązywanie problemów
Jako alternatywę dla potwierdzania funkcji mitochondriów przez prowokację parakwatem, komórki mogą być replikowane lub inokulowane do fermentujących i niefermentujących źródeł węgla.
W przypadku odejmowania tła, odejmowania toczącej się piłki (poprzez przejście do punktu menu Process | Odejmij tło...) może być również używany do usuwania niejednorodności oświetlenia. Należy upewnić się, że obecność komórek nie zmienia odejmowanego tła (zaznaczając opcję Utwórz tło i sprawdzając wynik).
Podsumowując, sonda mtHyPer7 zapewnia spójną, minimalnie inwazyjną metodę powiązania morfologicznego i funkcjonalnego stanu mitochondriów drożdży w żywych komórkach oraz umożliwia badanie ważnego stresora komórkowego i cząsteczki sygnałowej w genetycznie wykonalnym, łatwo dostępnym systemie modelowym.
Oświadczenia
Autorzy oświadczają, że nie pozostają w konflikcie interesów.
Podziękowania
Autorzy dziękują Katherine Filpo Lopez za fachową pomoc techniczną. Prace te były wspierane przez granty z National Institutes of Health (NIH) (GM122589 i AG051047) dla LP.
W tych badaniach wykorzystano wspólny zasób mikroskopii konfokalnej i specjalistycznej Herbert Irving Comprehensive Cancer Center na Uniwersytecie Columbia, częściowo finansowany przez NIH/NCI Cancer Center Support Grant P30CA013696.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Soczewka obiektywowa 100x/1.45 Plan Apo Lambda | Nikon | MRD01905 | |
| Siarczan adeniny | Sigma-Aldrich | A9126 | |
| Bacto Agar | BD Difco | DF0145170 | |
| Bacto | |||
| Trypton | BD Difco | DF211705 | |
| Ekstrakt z drożdży Bacto | BD Difco | ||
| BamHI | New England Biolabs | R0136S | |
| BglII | New England Biolabs | R0144S | |
| Carbenicilin | Sigma-Aldrich | C1389 | |
| Carl Zeiss Immersol Immersion Oil Carl | Zeiss | 444960 | |
| Dekstroza (D-(+)-glukoza) | Sigma-Aldrich | G8270 | |
| E. cloni 10G substancja chemiczna kompetentna komórka | Bioserch Technologies | 60108 | |
| FIDŻI | NIH | Schindelin i wsp. 2012 | |
| G418 (Geneticin) | Sigma-Aldrich | A1720 | |
| Filtr emisyjny GFP | Chroma | 525/50 | |
| New England Biolabs | E2611 | ||
| Graphpad Prism 7 | GraphPad | https://www.graphpad.com/scientific-software/prism/ | |
| H2O2 (stabilny) | Sigma-Aldrich | H1009 | |
| HO-pGPD-mito-roGFP-KanMX6-HO | Pon Lab | JYE057/EP41 | Liao i in. 20201 |
| Wytrząsarka do inkubatora | New Brunswick Scientific | E24 | |
| KAPA HiFi PCR kit | Roche Sequencing and Life Science, Kapa Biosystems, Wilmington, MA | KK1006 | |
| Chlorowodorek L-argininy | Sigma-Aldrich | A8094 | |
| laser | Agilent | 405 i 488 nm | |
| Chlorowodorek L-histydyny | Sigma-Aldrich | H5659 | |
| L-leucyna | Sigma-Aldrich | L8912 | |
| Chlorowodorek L-lizyny | Sigma-Aldrich | L8662 | |
| L-metionina | Sigma-Aldrich | M9625 | |
| L-fenyloalanina | Sigma-Aldrich | P5482 | |
| L-tryptofan | Sigma-Aldrich | T8941 | |
| L-tyrozyna | Sigma-Aldrich | T8566 | |
| plazmid mHyPer7 | To badanie | JYE116 | |
| Szkiełka nakrywkowe mikroskopu | ThermoScientific | 3406 | #1.5 (170 &mikro; m grubość) |
| Szkiełka mikroskopowe | ThermoScientific | 3050 | |
| MitoTracker Red CM-H2Xros | ThermoFisherScientific | M7513 | |
| NaCl | Sigma-Aldrich | S9888 | |
| NEBuilder HiFi Assembly Master Mix | New England Biolabs | E2621 | |
| Nikon Elements | Nikon | Microscope oprogramowanie do akwizycji | |
| Mikroskop odwrócony Nikon Ti Eclipse | Nikon | ||
| Paraquat (hydrat dichlorku metylu wioligogenu) | Sigma-Aldrich | Cat. 856177 | |
| RStudio | Posit.co | Darmowa wersja na komputery stacjonarne | |
| Spektrofotometr | Beckman | BU530 | |
| Inkubator Stagetop | Tokai Hit | INU | |
| Uracil | Sigma-Aldrich | U1128 | |
| Drożdżowa zasada azotowa (YNB) zawierająca siarczan amonu bez aminokwasów | BD Difco | DF0919073 | |
| YN2_1_ LT58_X2site | Addgene | 177705 | Pianale i wsp. 2021 |
| Kamera Zyla 4.2 sCMOS | Andor |
Bibliografia
- vander Bliek, A. M., Sedensky, M. M., Morgan, P. G. Cell biology of the mitochondrion. Genetics. 207 (3), 843-871 (2017).
- McBride, H. M., Neuspiel, M., Wasiak, S. Mitochondria: more than just a powerhouse. Current Biology. 16 (14), 551-560 (2006).
- Shi, R., Hou, W., Wang, Z. -Q., Xu, X. Biogenesis of iron-sulfur clusters and their role in DNA metabolism. Frontiers in Cell and Developmental Biology. 9, 735678(2021).
- McFaline-Figueroa, J. R., et al. Mitochondrial quality control during inheritance is associated with lifespan and mother-daughter age asymmetry in budding yeast. Aging Cell. 10 (5), 885-895 (2011).
- Higuchi-Sanabria, R., et al. Mitochondrial anchorage and fusion contribute to mitochondrial inheritance and quality control in the budding yeast Saccharomyces cerevisiae. Molecular Biology of the Cell. 27 (5), 776-787 (2016).
- Higuchi-Sanabria, R., et al. Role of asymmetric cell division in lifespan control in Saccharomyces cerevisiae. FEMS Yeast Research. 14 (8), 1133-1146 (2014).
- Lam, Y. T., Aung-Htut, M. T., Lim, Y. L., Yang, H., Dawes, I. W. Changes in reactive oxygen species begin early during replicative aging of Saccharomyces cerevisiae cells. Free Radical Biology & Medicine. 50 (8), 963-970 (2011).
- Laun, P., et al. Aged mother cells of Saccharomyces cerevisiae show markers of oxidative stress and apoptosis. Molecular Microbiology. 39 (5), 1166-1173 (2001).
- Doudican, N. A., Song, B., Shadel, G. S., Doetsch, P. W. Oxidative DNA damage causes mitochondrial genomic instability in Saccharomyces cerevisiae. Molecular and Cellular Biology. 25 (12), 5196-5204 (2005).
- Roca-Portoles, A., Tait, S. W. G. Mitochondrial quality control: from molecule to organelle. Cellular and Molecular Life Sciences. 78 (8), 3853-3866 (2021).
- Sies, H., Berndt, C., Jones, D. P. Oxidative stress. Annual Review of Biochemistry. 86, 715-748 (2017).
- Sies, H., Jones, D. P. Reactive oxygen species (ROS) as pleiotropic physiological signalling agents. Nature Reviews Molecular Cell Biology. 21 (7), 363-383 (2020).
- Imlay, J. A., Fridovich, I. Assay of metabolic superoxide production in Escherichia coli. The Journal of Biological Chemistry. 266 (11), 6957-6965 (1991).
- Fridovich, I. Mitochondria: are they the seat of senescence. Aging Cell. 3 (1), 13-16 (2004).
- Quinlan, C. L., Perevoshchikova, I. V., Hey-Mogensen, M., Orr, A. L., Brand, M. D. Sites of reactive oxygen species generation by mitochondria oxidizing different substrates. Redox Biology. 1 (1), 304-312 (2013).
- Griendling, K. K., Minieri, C. A., Ollerenshaw, J. D., Alexander, R. W. Angiotensin II stimulates NADH and NADPH oxidase activity in cultured vascular smooth muscle cells. Circulation Research. 74 (6), 1141-1148 (1994).
- Griendling, K. K., Sorescu, D., Ushio-Fukai, M. NAD(P)H oxidase: role in cardiovascular biology and disease. Circulation Research. 86 (5), 494-501 (2000).
- Edmondson, D. E., Binda, C., Wang, J., Upadhyay, A. K., Mattevi, A. Molecular and mechanistic properties of the membrane-bound mitochondrial monoamine oxidases. Biochemistry. 48 (20), 4220-4230 (2009).
- Ramsay, R. R., Singer, T. P. The kinetic mechanisms of monoamine oxidases A and B. Biochemical Society Transactions. 19 (1), 219-223 (1991).
- Ramsay, R. R. Kinetic mechanism of monoamine oxidase A. Biochemistry. 30 (18), 4624-4629 (1991).
- Handy, D. E., Loscalzo, J. Redox regulation of mitochondrial function. Antioxidants & Redox Signaling. 16 (11), 1323-1367 (2012).
- Wood, Z. A., Schröder, E., Robin Harris, J., Poole, L. B. Structure, mechanism and regulation of peroxiredoxins. Trends in Biochemical Sciences. 28 (1), 32-40 (2003).
- Slade, L., et al. Examination of the superoxide/hydrogen peroxide forming and quenching potential of mouse liver mitochondria. Biochimica et Biophysica Acta. General Subjects. 1861 (8), 1960-1969 (2017).
- Pak, V. V., et al. Ultrasensitive genetically encoded indicator for hydrogen peroxide identifies roles for the oxidant in cell migration and mitochondrial function. Cell Metabolism. 31 (3), 642-653 (2020).
- Topell, S., Hennecke, J., Glockshuber, R. Circularly permuted variants of the green fluorescent protein. FEBS Letters. 457 (2), 283-289 (1999).
- Belousov, V. V., et al. Genetically encoded fluorescent indicator for intracellular hydrogen peroxide. Nature Methods. 3 (4), 281-286 (2006).
- Kritsiligkou, P., Shen, T. K., Dick, T. P. A comparison of Prx- and OxyR-based H2O2 probes expressed in S. cerevisiae. The Journal of Biological Chemistry. 297 (1), 100866(2021).
- Baird, G. S., Zacharias, D. A., Tsien, R. Y. Circular permutation and receptor insertion within green fluorescent proteins. Proceedings of the National Academy of Sciences. 96 (20), 11241-11246 (1999).
- Abedi, M. R., Caponigro, G., Kamb, A. Green fluorescent protein as a scaffold for intracellular presentation of peptides. Nucleic Acids Research. 26 (2), 623-630 (1998).
- Onukwufor, J. O., et al. A reversible mitochondrial complex I thiol switch mediates hypoxic avoidance behavior in C. elegans. Nature Communications. 13 (1), 2403(2022).
- Vega, M., et al. Antagonistic effects of mitochondrial matrix and intermembrane space proteases on yeast aging. BMC Biology. 20 (1), 160(2022).
- Torello Pianale, L., Rugbjerg, P., Olsson, L. Real-time monitoring of the yeast intracellular state during bioprocesses with a toolbox of biosensors. Frontiers in Microbiology. 12, 802169(2022).
- Imani, M., Mohajeri, N., Rastegar, M., Zarghami, N. Recent advances in FRET-based biosensors for biomedical applications. Analytical Biochemistry. 630, 114323(2021).
- Zadran, S., et al. Fluorescence resonance energy transfer (FRET)-based biosensors: visualizing cellular dynamics and bioenergetics. Applied Microbiology and Biotechnology. 96 (4), 895-902 (2012).
- Gietz, R. D., Woods, R. A. Transformation of yeast by lithium acetate/single-stranded carrier DNA/polyethylene glycol method. Methods in Enzymology. 350, 87-96 (2002).
- Liao, P. -C., Wolken, D. M. A., Serrano, E., Srivastava, P., Pon, L. A. Mitochondria-associated degradation pathway (MAD) function beyond the outer membrane. Cell Reports. 32 (2), 107902(2020).
- Higuchi-Sanabria, R., Swayne, T. C., Boldogh, I. R., Pon, L. A. Live-cell imaging of mitochondria and the actin cytoskeleton in budding yeast. Methods in Molecular Biology. 1365, 25-62 (2016).
- Liao, P. -C., Yang, E. J., Pon, L. A. Live-cell imaging of mitochondrial redox state in yeast cells. STAR Protocols. 1 (3), 100160(2020).
- Schindelin, J., et al. Fiji: an open-source platform for biological-image analysis. Nature Methods. 9 (7), 676-682 (2012).
- Collins, T. J. ImageJ for microscopy. BioTechniques. 43, 25-30 (2007).
- Chazotte, B. Labeling mitochondria with MitoTracker dyes. Cold Spring Harbor Protocols. 2011 (8), 990-992 (2011).
- Aguilaniu, H., Gustafsson, L., Rigoulet, M., Nyström, T. Asymmetric inheritance of oxidatively damaged proteins during cytokinesis. Science. 299 (5613), 1751-1753 (2003).
- Erjavec, N., Larsson, L., Grantham, J., Nyström, T. Accelerated aging and failure to segregate damaged proteins in Sir2 mutants can be suppressed by overproducing the protein aggregation-remodeling factor Hsp104p. Genes & Development. 21 (19), 2410-2421 (2007).
- Erjavec, N., Cvijovic, M., Klipp, E., Nyström, T. Selective benefits of damage partitioning in unicellular systems and its effects on aging. Proceedings of the National Academy of Sciences. 105 (48), 18764-18769 (2008).
- Erjavec, N., Nyström, T. Sir2p-dependent protein segregation gives rise to a superior reactive oxygen species management in the progeny of Saccharomyces cerevisiae. Proceedings of the National Academy of Sciences. 104 (26), 10877-10881 (2007).
- Davidson, R., Liu, Y., Gerien, K. S., Wu, J. Q. Real-time visualization and quantification of contractile ring proteins in single living cells. Methods in Molecular Biology. 1369, 9-23 (2016).
- Bilan, D. S., et al. HyPer-3: a genetically encoded H2O2 probe with improved performance for ratiometric and fluorescence lifetime imaging. ACS Chemical Biology. 8 (3), 535-542 (2013).
- Ermakova, Y. G., et al. Red fluorescent genetically encoded indicator for intracellular hydrogen peroxide. Nature Communications. 5 (1), 5222(2014).
- Fricker, M. D. Quantitative redox imaging software. Antioxidants & Redox Signaling. 24 (13), 752-762 (2016).
- Yang, E. J., Pernice, W. M., Pon, L. A. A role for cell polarity in lifespan and mitochondrial quality control in the budding yeast Saccharomyces cerevisiae. iSCIENCE. 25 (3), 103957(2022).
Przedruki i uprawnienia
