Ten protokół łączy masową fotometrię z nowatorskim systemem mikroprzepływowym do badania interakcji białko-białko o niskim powinowactwie. Podejście to opiera się na szybkim rozcieńczaniu silnie skoncentrowanych kompleksów w roztworze, co umożliwia pomiary o niskim powinowactwie i rozszerza zastosowanie fotometrii masowej.
Artykuł metodologiczny
Analiza tworzenia kompleksów białkowych w stężeniach mikromolowych poprzez sprzężenie mikrofluidyki z fotometrią masową
W tym artykule
Podsumowanie
Streszczenie
Fotometria masowa to wszechstronna technologia pomiaru masy, która umożliwia badanie oddziaływań biomolekularnych i tworzenia złożonych kompleksów w roztworze bez etykiet. Fotometria masowa jest ogólnie przystosowana do analizy próbek w zakresie stężeń 100 pM-100 nM. Jednak w wielu systemach biologicznych konieczne jest mierzenie bardziej skoncentrowanych próbek w celu zbadania oddziaływań o niskim powinowactwie lub przejściowych. Tutaj demonstrujemy metodę, która skutecznie rozszerza zakres stężeń próbek, które można analizować za pomocą fotometrii masowej, od nanomolowych do kilkudziesięciu mikromolowych.
W tym protokole, fotometria masowa jest połączona z nowatorskim systemem mikroprzepływowym do badania powstawania kompleksów białkowych w roztworze w zakresie stężeń mikromolowych. Dzięki systemowi mikrofluidycznemu użytkownicy mogą utrzymywać próbkę w pożądanym wyższym stężeniu, a następnie rozcieńczać ją do zakresu nanomolowego - na kilka milisekund przed pomiarem fotometrii masy. Ze względu na szybkość rozcieńczania, dane uzyskuje się przed przesunięciem równowagi próbki (tj. dysocjacją kompleksu).
Technika ta jest stosowana do pomiaru interakcji między przeciwciałem immunoglobuliny G (IgG) a receptorem Fc u noworodka, pokazując tworzenie kompleksów wysokiego rzędu, które nie były mierzalne za pomocą statycznych pomiarów fotometrycznych masy.
Podsumowując, połączenie fotometrii masowej i mikrofluidyki umożliwia charakteryzowanie próbek w zakresie stężeń mikromolowych i jest biegłe w pomiarze oddziaływań biomolekularnych o słabszym powinowactwie. Możliwości te mogą być stosowane w wielu kontekstach - w tym w opracowywaniu i projektowaniu bioterapeutyków - umożliwiając dokładne scharakteryzowanie różnych interakcji białko-białko.
Wprowadzenie
Interakcje białko-białko stanowią podstawę większości funkcji komórkowych, od regulacji odpornościowej po replikację i translację DNA. W związku z tym w naukach o życiu istnieje fundamentalna potrzeba badania szerokiego zakresu oddziaływań w obrębie różnorodnych, heterogenicznych kompleksów, które są powszechnie tworzone. Jednak ich wykrywanie, charakterystyka i kwantyfikacja są często trudne, szczególnie w przypadku interakcji o niskim powinowactwie1.
Testy immunoprecypitacji są często stosowane do wykrywania oddziaływań o wysokim powinowactwie, jednak w przypadku oddziaływań o niskim powinowactwie i charakterze przejściowym detekcja jest w dużej mierze niewykonalna2. Można również stosować techniki fluorescencyjne, które jednak wymagają potencjalnie zaburzającego procesu wprowadzania znaczników fluorescencyjnych2. Krio-EM może dostarczyć obraz strukturalny oraz odczyt zespołu kompleksów białkowych utworzonych z wysoką rozdzielczością przestrzenną, ale zazwyczaj również wymaga pracy przy stężeniach zbyt niskich do obrazowania oddziaływań o niskim powinowactwie. Krio-EM wiąże się także z wyzwaniami dotyczącymi kosztów, dostępności, przygotowania próbek oraz czasu analizy3.
Dodatkowo, rezonans plazmonowy powierzchni (SPR) stał się popularną metodą ilościowego określania oddziaływań białko-białko, choć wymaga on unieruchomienia białek, co może wpływać na równowagę wiązania i prowadzić do zmiennych stałych szybkości asocjacji, zmniejszając tym samym dokładność pomiarów4,5. Wiąże się on również z koniecznością przeprowadzenia kilku etapów analizy przed gromadzeniem i analizą danych6.
Fotometria mas jest techniką jednocząsteczkową, która znajduje zastosowanie w analizie oddziaływań białko-białko5,6,7. Metoda ta polega na pomiarze masy pojedynczych cząsteczek lub kompleksów na podstawie światła, które rozpraszają po osadzeniu się na powierzchni szklanego zakrywek8. Pomiary fotometrii mas są wykorzystywane do ilościowego określania powinowactw wiązania na podstawie względnej zawartości partnerów wiązania oraz tworzonych przez nie kompleksów5. Niemniej jednak, podobnie jak w innych technikach jednocząsteczkowych, stężenie mierzonej próbki powinno być zazwyczaj niższe niż 10 nM. W przypadku wyższego stężenia cząsteczki osadzające się na powierzchni szkła będą nakładać się przestrzennie, co spowoduje niską jakość danych7. W konsekwencji słabsze oddziaływania (KD ~mikromolarne), które dysocjują przy tych niskich stężeniach, nie mogą być mierzone w sposób niezawodny, ponieważ niemożliwe jest zaobserwowanie niezbędnej mieszaniny form niezwiązanych i związanych5.
Opisujemy tutaj podejście pozwalające przezwyciężyć to ograniczenie, oparte na nowym urządzeniu łączącym mikroprzepływy z fotometrią masową. W szczególności system mikroprzepływowy jest wykorzystywany w połączeniu z fotometrem masowym, aby skutecznie rozszerzyć zakres oddziaływań, które można ilościowo określić za pomocą fotometrii masowej. Wykazano, że mikroprzepływy oferują szereg możliwości badania oddziaływań białko-białko, w tym szybkie rozcieńczanie w celu wykrycia słabych oddziaływań1,9. Opisany tutaj system działa poprzez szybkie rozcieńczanie próbki aż do 10 0 razy na chipie mikroprzepływowym i natychmiastowe przepływanie jej przez obszar obserwacyjny chipa, co umożliwia rozpoczęcie pomiaru fotometrii masowej w ciągu 50 ms od momentu rozpoczęcia procesu rozcieńczania cząsteczek10. Rozcieńczanie następuje, gdy próbka i bufor są łączone w mieszalniku z odwróconym zaworem Tesli na chipie, a stosunek szybkości przepływu obu roztworów określa stopień rozcieńczenia (patrz krok 8 protokołu). Szybkość przepływu jest regulowana za pomocą oprogramowania sterującego mikroprzepływami. Zmiana szybkości przepływu może zmienić względną populację gatunków, ponieważ może ona wpływać na liczbę zdarzeń lądowania na powierzchni szkła, które jest mierzone przez fotometr masowy.
Prędkość procesu jest wystarczająco wysoka, aby pomiar mógł zostać zakończony przed naruszeniem integralności oddziaływania (szczegółowe informacje znajdują się również w sekcji Dyskusja). Można to zrozumieć, analizując krótko teorię reakcji pierwszego rzędu, w której  Stała szybkości reakcji w kierunku prawym (asocjacji) wynosi kf, stała szybkości reakcji wstecznej (dysocjacji) wynosi kb, oraz stała dysocjacji równowagowej (KD) definiuje się jako
KD = kb / kf
W przypadku wiązania białek kf jest zazwyczaj ograniczone dyfuzją substratów1, a zatem mieści się w zakresie 106-107 M-1·s-1. Ze względu na ten ograniczony zakres, reakcja o niskim powinowactwie (KD ~mikromolarnym) będzie miała kb ≈ 1 s-1. Oznacza to, że kb = kf · KD = (106 M-1·s-1) (10-6 M) = 1 s-1, przy czym okres połowicznego rozpadu kompleksu wynosi około 0,7 s1,12.
Naszym systemem przykładowym jest wiązanie monoklonalnego przeciwciała IgG trastuzumab z domeną rozpuszczalną neonatalnego receptora Fc (FcRn) dla IgG, które są znanymi partnerami oddziaływań13. Wcześniej opublikowane dane uzyskane wyłącznie za pomocą konwencjonalnej fotometrii masowej (tj. z manualnym rozcieńczaniem próbek) wykazały, że białka te tworzą wiele gatunków. Wyraźnie widoczne były monomery FcRn, dimery FcRn oraz niezwiązane IgG, natomiast wykryto również kompleksy IgG-FcRn (w stosunkach 1:1 i 1:2) (przy pH 5.0), lecz jedynie w bardzo niskiej liczbie5. Ta obserwacja skłania do postawienia pytania, czy tworzenie kompleksów IgG-FcRn mogłoby zostać wykryte wyraźniej, gdyby pomiar przeprowadzono przy wyższym stężeniu. Rzeczywiście, połączenie fotometrii masowej z opisanym tutaj podejściem szybkiego rozcieńczania dostarczyło bardziej przekonujących dowodów na tworzenie kompleksów poprzez wzrost liczby zmierzonych cząstek.
Opisany tutaj protokół fotometrii masowej i mikroprzepływowości umożliwia charakterystykę tworzenia kompleksów o wartości KD do zakresu mikromolarnego. Empiryczne oznaczenie KD będzie wymagało dalszej poprawy dokładności czujnika przepływu, stabilności pompy, różnic między poszczególnymi chipami oraz lokalizacji pomiaru wewnątrz okna obserwacyjnego, ponieważ wszystkie te czynniki wpływają na czas od rozcieńczenia próbki do momentu jej pomiaru.
Tę samą metodę można zastosować do badania wiązania dowolnych białek rozpuszczalnych, pod warunkiem, że mają one różne masy cząsteczkowe (różniące się o co najmniej 25 kDa), które mieszczą się w zakresie odpowiednim do analizy fotometrem masowym (od 30 kDa do 6 MDa). Uzyskane informacje mogą być pomocne w badaniach w wielu kontekstach – od zrozumienia mechanizmów funkcji komórkowych po projektowanie nowych leków bioterapeutycznych.
Protokół
1. Przygotowanie instrumentów i uruchomienie oprogramowania
- Włącz fotometr masy i pozostaw go włączony na co najmniej 1 godzinę przed rozpoczęciem jakichkolwiek pomiarów.
UWAGA: Dzieje się tak, ponieważ przyrząd musi osiągnąć stałą temperaturę. Niepozostawienie włączonego fotometru masy na 1 godzinę może prowadzić do przesunięcia masy, a tym samym niedokładnych wyników. - Włącz stół antywibracyjny, włączając zasilanie i naciskając przycisk izolacji (pod fotometrem masy). Wibracje ograniczają wydajność przyrządu do fotometrii masowej, dlatego stół antywibracyjny jest ważny, aby zapewnić maksymalną czułość instrumentu. Włącz skrzynkę mikrofluidyczną.
- Uruchom oprogramowanie do akwizycji danych i oprogramowanie sterujące mikrofluidyką. Włącz sprężarkę powietrza.
2. Przygotowanie próbek białka, buforu i roztworów czyszczących
- Dodaj 200 ml buforu PBS (pH 7,4) do czystej butelki o pojemności 200 ml i 200 ml buforu PBS (pH 5,0) do drugiej butelki o pojemności 200 ml.
UWAGA: W następnych krokach butelki o pojemności 200 ml będą musiały zostać podłączone do czujnika jednostki przepływu "L". Użyj buforu pH 7,4 PBS do pomiaru kalibracyjnego i buforu pH 5,0 PBS do pomiaru próbki. - W probówce wirówkowej o pojemności 0,5 ml wymieszaj IgG (2 μM) i FcRn (20 μM) w stosunku 1:10, uzyskując całkowitą objętość 60 μl.
- Roztwory podstawowe dla FcRn i IgG wynoszą odpowiednio 91,9 μM i 13,5 μM. Przygotować reakcję, mieszając 9 μl podstawowej IgG + 13 μl wyjściowej FcRn + 38 μl PBS (pH 5,0, temperatura pokojowa [RT]) w probówce wirówkowej do całkowitej objętości 60 μL. Końcowe stężenia dla dwóch reagentów wynosiły 2 μM dla IgG i 20 μM dla FcRn. Utrzymuj wszystkie zapasy białka na lodzie przez cały ten proces.
- Do kolejnej probówki wirówkowej o pojemności 0,5 ml wlej 20 μl kalibru β-amylazy o stężeniu 20 μM.
- Na przykład, aby przygotować zastosowany tutaj kaliber β-amylazy, postępuj zgodnie z procedurą opisaną w 2.3.1.1-2.3.1.2.
- Zawiesić 20 mg proszku β-amylazy w fiolce w 3,57 ml PBS (5% glicerolu), co odpowiada 5,6 mg/ml i stężeniu molowemu 100 μM (ponieważ masa cząsteczkowa wynosi 56 kDa).
- Aby rozcieńczyć do 20 μM, należy połączyć 200 μl 100 μM podstawowego z 800 μl PBS (pH 7,4, RT) w probówce wirówkowej o pojemności 1 ml.
- Na przykład, aby przygotować zastosowany tutaj kaliber β-amylazy, postępuj zgodnie z procedurą opisaną w 2.3.1.1-2.3.1.2.
- Próbki należy inkubować w temperaturze pokojowej przez co najmniej 30 minut
UWAGA: Przygotowanie próbki i rozcieńczeń kalibru należy rozpocząć po włączeniu fotometru masowego. W tym eksperymencie próbki inkubowano przez 120 minut. - W trzech probówkach wirówkowych o pojemności 50 ml podwielokrotność: 50 ml PBS (pH 7,4) - roztwór czyszczący 1 (CS1), 50 ml 0,5 M NaOH - roztwór czyszczący 2 (CS2) i 50 ml 100% IPA - roztwór czyszczący 3 (CS3).
3. Konfiguracja eksperymentalna
- Aby załadować próbkę i kaliber, umieść probówkę wirówki kalibru w pozycji 4, a probówkę wirówki do próbek w pozycji 5 pudełka mikrofluidyki (Rysunek 1).
- Aby załadować roztwory czyszczące, umieść CS1, CS2 i CS3 w pozycjach 1, 2 i 3 pudełka mikrofluidyki (Rysunek 1).
UWAGA: Roztwór próbek, calibrant i roztwory czyszczące są podłączone do przełącznika wielofunkcyjnego (przełącznika m). Przełącznik m jest podłączony do czujnika jednostki przepływu "S". - Nakręcić nakrętkę łączącą się z przewodem buforowym do butelki z buforem o pojemności 200 ml (pH 7,4).
UWAGA: Przewód buforowy jest podłączony do zaworu odcinającego, który jest podłączony do czujnika jednostki przepływu "L". Zawór odcinający zapobiega efektom zasysania, które mogą wystąpić po zatrzymaniu przepływu bufora. Zasysanie może prowadzić do zanieczyszczenia buforu z rozcieńczonego płynu resztkowego powracającego do zbiornika buforowego. - Umieść chip mikrofluidyczny na płytce przygotowawczej.
Wciśnij drugi koniec rurki czujnika jednostki przepływu "S" do "Wlotu próbki" pierwszego kanału w chipie mikroprzepływowym (Rysunek 1). Linia próbkowania jest kompletna. - Wciśnij drugi koniec rurki czujnika jednostki przepływu "L" do "wlotu bufora" pierwszego kanału w chipie mikroprzepływowym ( Rysunek 1). Linia bufora jest kompletna.
- Aby zebrać odpływ, wepchnij rurkę do "Wylotu" pierwszego kanału w chipie mikroprzepływowym; ustaw drugi koniec tak, aby spływał do pojemnika lub zlewki (Rysunek 1).
4. Gruntowanie linii próbki i bufora za pomocą bufora
- Otwórz ręczny zawór odcinający na przewodzie buforowym.
- W oprogramowaniu sterującym mikrofluidyką ustaw natężenie przepływu w przewodzie buforowym na 1000 μl/min i upewnij się, że ciśnienie w przewodzie buforowym nie przekracza 110 mbar (Rysunek 2). Przepływ rozpocznie się automatycznie w linii bufora (Rysunek 1).
UWAGA: Jeśli ciśnienie w przewodzie buforowym przekracza 110 mbar, może to być spowodowane przepływem powietrza przez czujnik przepływu. Jeśli ciśnienie nie wróci do normy w ciągu kilku sekund, może dojść do zablokowania (zwykle z powodu ściśniętych przewodów na połączeniach). W takim przypadku należy zatrzymać przepływ i sprawdzić połączenia w przewodzie buforowym, zaczynając od zaworu odcinającego. - W oprogramowaniu sterującym mikrofluidyką wybierz pozycję 1 przełącznika m (odpowiadającą buforowi PBS), a następnie ustaw natężenie przepływu w przewodzie próbkowania na 8 μl/min i upewnij się, że ciśnienie w przewodzie próbki nie przekracza 350 mbar. Przepływ rozpocznie się automatycznie w linii próbkowania (Rysunek 1).
- Użyj końcówki pipety (lub innego miękkiego elementu z tworzywa sztucznego), aby delikatnie docisnąć od góry w pobliżu pęcherzyków uwięzionych w chipie, aby usunąć pęcherzyki powietrza i upewnić się, że zostały one usunięte przez wylot.
UWAGA: Upewnij się, że usunąłeś wszystkie bąbelki w sekcjach 'mikser' i 'obszar obserwacji' (Rysunek 1) używanego kanału. Uważaj, aby nie naciskać zbyt mocno, ponieważ może to spowodować uszkodzenie chipa.
5. Umieszczenie chipa mikroprzepływowego na masowym fotometrze i znalezienie ogniska
- Nałóż kroplę olejku immersyjnego do mikroskopu na obiektyw masowego fotometru.
- Umieść chip mikroprzepływowy na uchwycie fotometru masowego z "wlotem próbki" skierowanym do góry i przytrzymaj go przymocowany do stage clamps (Rysunek 1). Upewnij się, że wszystkie połączenia przewodów pozostają podłączone.
- Korzystając z oprogramowania do akwizycji danych, przesuń stolik, aby upewnić się, że "Obszar obserwacji" kanału 1 jest wyrównany z celem (Rysunek 1).
- Zamknij pokrywę masowego fotometru i naciśnij opcję Droplet-Dilution Find Focus w oprogramowaniu do akwizycji danych.
- Sprawdź biały pierścień ostrości w lewym dolnym rogu oprogramowania do akwizycji danych (Rysunek 3). Przerwy w pierścieniu wskazują na obecność pęcherzyka powietrza w olejku immersyjnym; Usuń to, zwiększając prędkość stolika do maksimum i delikatnie przesuwając stolik na boki.
- Po zakończeniu ustawiania ostrości odczekaj 2-3 minuty przed wykonaniem pierwszego nagrania. Następnie naciśnij przycisk Record, aby zarejestrować pomiar trwający 1 minutę i upewnij się (obserwując pomiar), że nie pojawiają się żadne zanieczyszczenia.
UWAGA: Zanieczyszczenia mogą znajdować się na powierzchni szkła lub w buforze. Wartość ostrości w oprogramowaniu do akwizycji danych powinna wynosić powyżej 4,5%.
6. Kalibracja fotometrii masowej
- W oprogramowaniu sterującym mikrofluidyką przełącz przełącznik m w pozycję 4 (odpowiadającą kalibrowi) i upewnij się, że natężenie przepływu w linii próbki jest ustawione na 8 μl/min, a ciśnienie w przewodzie próbki nie przekracza 350 mbar (Rysunek 2).
- Kaliber rozpocznie przepływ przez chip. Odczekaj około 1.5-2.5 minuty (lub do momentu, gdy kaliberat będzie stale widoczny w oprogramowaniu do akwizycji danych). Czas może się różnić w zależności od długości rurki linii próbkowania.
- Gdy kalibert jest stale obserwowany (tj. liczba zdarzeń jest wystarczająca do dokładnego pomiaru fotometrii masy), w oprogramowaniu sterującym mikrofluidyką zmniejsz natężenie przepływu do 0,5 μl/min - docelowy poziom rozcieńczenia dla tego eksperymentu.
UWAGA: Rozpoczęcie od wyższego natężenia przepływu po prostu skraca czas potrzebny na dotarcie kalibru do chipa. - Upewnij się, że na powierzchni pomiarowej nie ląduje "za mało" lub "za dużo" cząsteczek (Rysunek 4).
- Jeśli gęstość zdarzenia lądowania nie jest "idealna" (Rysunek 4), zmień natężenie przepływu w oprogramowaniu sterującym mikrofluidyką. Jeżeli gęstość zdarzeń jest zbyt niska, należy zwiększać natężenie przepływu próbki, aż do zaobserwowania dobrze oddzielonych zdarzeń lądowania (ale nie należy przekraczać 8 μl/min). Jeśli jest zbyt wysoka, zmniejsz natężenie przepływu próbki (ale nie należy schodzić poniżej 0,1 μl/min).
- Jeśli objętość kalibru jest mała w probówce na próbkę, zmień pozycję przełącznika m na linię PBS pH 7,4 (pozycja 1), aby uniknąć wstrzykiwania powietrza.
- Naciśnij przycisk nagrywania i wykonaj pomiar 60 sekund. Zapisz plik w wybranym folderze.
UWAGA: Oprogramowanie do akwizycji danych tworzy pliki z rozszerzeniem .mp.
7. Czyszczenie linii próbkowania i zatrzymywanie przepływu
- W oprogramowaniu sterującym mikrofluidyką przełącz się na pozycję 2 przełącznika m i zmień ciśnienie próbki na 800 mbar (Rysunek 2). Przepłukać system roztworem CS2 (NaOH) przez 4 minuty.
- Przełącz na pozycję 3 przełącznika m i przepłucz system za pomocą CS3 (IPA) przez 4 minuty.
- Przełącz na pozycję 1 przełącznika m i przepłucz system za pomocą CS1 (PBS) przez 4 minuty.
- W oprogramowaniu sterującym mikrofluidyką zatrzymaj cały przepływ, ustawiając ciśnienie w przewodzie próbkowania i przewodzie buforowym na 0 i wyłącz zawór buforowy.
- Odłącz wiór od stolika i umieść go z powrotem na płycie przygotowawczej. Odłącz wszystkie rurki i umieść sample końcówka rurki w butelce na odpady. Wyczyść obiektyw izopropanolem i chusteczkami.
8. Pomiar próbki fotometrii masowej
- Odkręcić nakrętkę podłączoną do butelki z buforem o pojemności 200 ml (pH 7,4) i przykręcić ją do butelki z buforem o pojemności 200 ml (pH 5,0).
- Powtórz kroki 3.4-5.6, ale użyj drugiego kanału układu zamiast pierwszego.
- W oprogramowaniu sterującym mikrofluidyką przełącz przełącznik m w pozycję 5 (odpowiadającą próbce), ustaw natężenie przepływu w linii próbki na 8 μl/min i upewnij się, że ciśnienie w przewodzie próbki nie przekracza 350 mbar (rysunek 2).
- Powtórzyć kroki 6.2-6.4, aby zmierzyć próbkę.
- Aby obliczyć natężenia przepływu do użycia, należy upewnić się, że różnica w natężeniu przepływu odpowiada pożądanemu współczynnikowi rozcieńczenia próbki. Na przykład, aby osiągnąć rozcieńczenie 2000x, natężenia przepływu różnią się o współczynnik 2000; natężenie przepływu bufora wynosi 1000 μl/min, a natężenie przepływu próbki wynosi 0,5 μl/min. Pod koniec eksperymentu zawsze pozostawiaj linie czyste, postępując zgodnie z protokołem czyszczenia.
9. Analiza danych
- Po zakończeniu zbierania danych uruchom oprogramowanie do analizy danych (Rysunek 5).
- Kliknij ikonę plusa (+) w lewym górnym rogu i wybierz plik .mp calibrant. Oprogramowanie rozpocznie analizę załadowanego pliku. W zależności od wielkości i liczby pomiarów może to potrwać kilka minut
- Nie należy analizować plików .mp w oprogramowaniu do analizy danych podczas pozyskiwania danych za pomocą oprogramowania do akwizycji danych, ponieważ może to obniżyć jakość pozyskiwanych danych.
- Naciśnij przycisk Utwórz wzorcowanie masy (w prawym dolnym rogu). Otworzy się okno dialogowe z tabelą wypełnioną wartościami kontrastu dopasowanych szczytów.
- Zmień wartości na znane wartości masy dla dopasowanych pików (dla β-amylazy wartości te wynoszą 56 kDa, 112 kDa i 224 kDa) i naciśnij przycisk Zapisz. Nowo utworzony plik kalibracyjny (rozszerzenie .mc) pojawi się w panelu Wzorcowanie masy (lewy dolny róg oprogramowania do analizy danych) (Rysunek 6).
- Kliknij ikonę plusa (+) w lewym górnym rogu i wybierz przykładowy plik .mp.
- Aby utworzyć histogram masy, jak pokazano w Rysunek 5, przejdź do zakładki Analiza, wybierz tryb Histogram i opcję Wykres masowy. W razie potrzeby dostosuj szerokość pojemnika, limity masy i inne parametry.
- W razie potrzeby dostosuj wykres w zakładce Rysunki przed wyeksportowaniem figur i/lub zapisaniem całego obszaru roboczego jako pliku .dmp.
Wyniki
Fotometrię masy zastosowano do pomiaru oddziaływania pomiędzy monoklonalnym przeciwciałem IgG trastuzumabem a rozpuszczalną domeną neonatalnego receptora Fc (FcRn) dla IgG. Mieszaninę obu białek w stosunku 1:10 (przy stężeniu 2 µM dla IgG i 20 µM dla FcRn) rozcieńczono ręcznie w PBS odpowiednio do stężeń 10 nM i 20 nM.
Etap rozcieńczania jest niezbędny, ponieważ fotometria mas, będąca techniką pomiaru masy pojedynczych cząsteczek, pozwala na analizę próbek jedynie w zakresie od 100 pM do 10 nM. Próba pomiaru próbek o stężeniach wykraczających poza ten zakres może wpłynąć negatywnie na dokładność wyników (Rysunek 4). Ten eksperyment nie został uwzględniony w niniejszym protokole, ponieważ został opisany wcześniej5,6.
Na histogramach mas generowanych w eksperymencie fotometrii masowej, na osi x naniesiono natężenie sygnału rozproszenia (tzw. „kontrast”) dla każdego zdarzenia lądowania, które następnie przekształca się w masę cząsteczkową poprzez etap kalibracji masy i kontrastu. Z kolei oś y wskazuje liczbę cząsteczek o danej masie (lub kontraście). W związku z tym piki wskazują na obecność populacji cząsteczek w zakresie mas cząsteczkowych przedstawionym na osi x. Liczba zdarzeń (liczebność), z których składa się pik, odzwierciedla wielkość danej populacji.
Pomiar fotometrii masowej z manualnym rozcieńczeniem pozwolił na uzyskanie histogramu masy, w którym dwa największe piki, w odniesieniu do oczekiwanych mas cząsteczkowych białek, odpowiadały niezwiązanym monomerom FcRn (~50 kDa) oraz monomerom przeciwciał IgG (~150 kDa) (Rysunek 7). Podobnie jak w wcześniej opublikowanych danych z fotometrii masowej5, dominowały gatunki niezwiązane, natomiast piki w zakresach mas odpowiadających kompleksom były znacznie mniej wyraźne.
Eksperyment powtórzono z wykorzystaniem mikrofluidycznego systemu szybkiego rozcieńczania, aby rozcieńczyć mieszaninę do wymaganego stężenia bezpośrednio przed pomiarem fotometrii masowej. Podejście to umożliwiło wykrycie dodatkowych kompleksów o niskim powinowactwie, które mogły ulec dysocjacji podczas etapu rozcieńczania ręcznego. Aby uzyskać ten sam stopień rozcieńczenia 20x, który zastosowano podczas eksperymentu z rozcieńczaniem ręcznym, mieszaninę próbek w stosunku 1:10 (o stężeniu 2 µM dla IgG i 20 µM dla FcRn) przepuszczano przez chip mikrofluidyczny z szybkością 0,5 µL/min, wraz z buforem PBS (pH 5,0) przy szybkości przepływu 1 mL/min. Aby upewnić się, że białka nie uległy degradacji w momencie pomiaru, IgG (2 µM) i FcRn (20 µM) mierzono w przepływie za pomocą systemu mikrofluidycznego po 120 min inkubacji próbek. Pojedyncze pomiary kontrolne nie wykazały degradacji białek (Supplementary Figure 1)
W przypadku próbki poddanej szybkiemu rozcieńczeniu ponownie zaobserwowano piki odpowiadające monomerom FcRn (53 kDa), dimerom FcRn (97 kDa) oraz monomerom IgG (148 kDa). Dodatkowo wyraźnie widoczne były dwa kolejne piki przy 196 kDa i 251 kDa, odpowiadające kompleksom IgG-FcRn o stechiometrii 1:1 i 1:2 (Rycina 7). Oczekiwane masy dla tych dwóch kompleksów wynosiły odpowiednio 20 kDa i 250 kDa. Zmienność pomiaru masy mieści się w granicach błędu pomiarowego dla fotometru masy użytego w niniejszym badaniu, który wynosi ±5%14 (2% dla kompleksu 1:1 i 0,4% dla kompleksu 1:2).
Obecność tych kompleksów wyłącznie w próbce poddanej szybkiemu rozcieńczeniu jest zgodna z tezą, że mają one tendencję do dysocjacji przy niższych stężeniach, z szybkością, która jest duża w stosunku do procesu rozcieńczania ręcznego, lecz mała w porównaniu z procesem szybkiego rozcieńczania realizowanym za pomocą systemu mikrofluidycznego15.

Rysunek 1Łączenie mikrofluidyki z fotometrią masową. (A,B) Pudełko mikroprzepływowe użyte w tym protokole, widziane z (A) przednia i (B) góra. Roztwory czyszczące umieszcza się w pozycjach 1-3, a próbki i kalibratory w pozycjach 4-6. Wszystkie roztwory są podłączone do przełącznika m-switch, który z kolei jest połączony z "Small" czujnik jednostki przepływu. (C) Przegląd całego systemu. Komputer (u góry po lewej) jest połączony z modułem mikroprzepływowym (widocznym obok probówek z buforem i próbką) oraz fotometrem masowym (u dołu po prawej), w którym znajduje się chip mikroprzepływowy. Mały monitor przepływu (FRMS) kontroluje przepływ w linii próbki, natomiast duży monitor przepływu (FRML) kontroluje przepływ buforu. Przewody linii próbki i buforu łączą się z kanałem na chipie mikroprzepływowym, umieszczonym wewnątrz fotometru masowego. (D) Każdy chip posiada trzy kanały. Kanał FRMS jest połączony z wlotem próbki, a kanał FRML z wlotem buforu. Obszar mieszania służy do szybkiego rozcieńczania próbki, natomiast obszar obserwacji jest miejscem wykonywania pomiarów fotometrii masowej. Wylot jest monitorowany przez dodatkowy czujnik przepływu w celu upewnienia się, że w chipie nie występują wycieki. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.

Rycina 2Oprogramowanie sterujące mikrofluidyką. Za pomocą tego oprogramowania należy ustawić i monitorować przepływy, linie ciśnienia układu mikrofluidycznego oraz pozycję przełącznika wielokierunkowego (m-switch). Proszę kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.

Rysunek 3Identyfikacja obecności pęcherzyków powietrza w oleju. Przykłady z oprogramowania do akwizycji danych pokazują wyraźny, nieprzerwany pierścień ogniskowania (po lewej) oraz pierścień „przerwany”, co wskazuje na obecność pęcherzyków powietrza w oleju immersyjnym (po prawej). Kliknij tutaj, aby wyświetlić powiększoną wersję tej figury.

Rysunek 4Reprezentatywne przykłady stężeń próbek, w których liczba zdarzeń lądowania cząsteczek jest zbyt mała, optymalna lub zbyt duża. Cząsteczki osiadające na powierzchni obszaru obserwacji w chipie mikroprzepływowym będą widoczne jako ciemne punkty w widoku ratiometrycznym obrazu fotometrii masowej. Optymalnie pożądane stężenie powinno zapewnić idealną gęstość zdarzeń osiadania podczas akwizycji danych (środek). Jeśli gęstość zdarzeń osiadania jest zbyt niska (góra, „Zbyt mało”), nie będzie możliwe przeprowadzenie dokładnej analizy statystycznej danych z fotometrii masowej. Jeśli jest zbyt wysoka (dół, „Zbyt wiele”), osiadające cząsteczki będą nakładać się przestrzennie, co spowoduje niską jakość danych. Obrazy te zostały zarejestrowane za pomocą oprogramowania do akwizycji danych przy użyciu fotometru masowego. Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.

Rysunek 5Zrzut ekranu oprogramowania do analizy danych dla fotometrii masowej. W tym miejscu można załadować pliki .mp wyeksportowane z oprogramowania do akwizycji danych w celu analizy danych. Na podstawie przetworzonych danych można generować wykresy. Proszę kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.

Rycina 6Zrzut ekranu z kalibracji kontrastu masy dla tego eksperymentu. Użyty kalibrant to β-Amylaza, o której wiadomo, że tworzy trzy formy: monomer (56 kDa), dimer (112 kDa) i tetramer (24 kDa). Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.

Rysunek 7Histogramy mas ujawniają tworzenie kompleksów dopiero po szybkim rozcieńczeniu próbki. Przedstawiono histogramy mas oraz odpowiadające im najlepiej dopasowane rozkłady Gaussa dla pomiarów próbek zawierających IgG i FcRn po rozcieńczeniu manualnym (pomarańczowy) lub szybkim rozcieńczeniu za pomocą systemu microfluidicsHC (niebieski). Etykiety mas wskazują, że wartości średnie z krzywych Gaussa pasują do histogramów mas zmierzonych po szybkim rozcieńczeniu. Po rozcieńczeniu manualnym zaobserwowano piki odpowiadające monomerom FcRn (52 kDa, zgodnie z pomiarem przy rozcieńczeniu manualnym) oraz monomerom IgG (152 kDa). Po szybkim rozcieńczeniu, poza monomerami FcRn i IgG, wyraźnie zaobserwowano również piki odpowiadające dimerom FcRn oraz kompleksom IgG-FcRn o stechiometrii 1:1 i 1:2. Proszę kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Rycina 1 do danych uzupełniających: Pomiary fotometrii masowej próbek kontrolnych po szybkim rozcieńczeniu nie wykazują degradacji białek. (A) Histogram masy i najlepiej dopasowany rozkład Gaussa dla próbki zawierającej wyłącznie FcRn. Początkowe stężenie próbki przed szybkim rozcieńczeniem wynosiło 20 µM, a szybkość przepływu ustawiono na 0.5 µL/minMożna było zaobserwować piki masy odpowiadające monomerom FcRn (53 kDa) i dimerom FcRn (97 kDa).B) Histogram masy i najlepiej dopasowany rozkład Gaussa dla próbki zawierającej wyłącznie IgG (Herceptin). Początkowe stężenie próbki przed szybkim rozcieńczeniem wynosiło 2 µM, a prędkość przepływu ustawiono na 1 µL/minZaobserwowano pojedynczy pik masy odpowiadający monomerowi IgG (15 kDa). Prosimy o kliknięcie tutaj, aby pobrać ten plik.
Dyskusja
Opisany tutaj protokół przedstawia metodę wykrywania i ilościowego określania słabych oddziaływań białko-białko. Wykorzystuje on fotometr masowy sprzężony z mikrofluidycznym systemem szybkiego rozcieńczania. Fotometria masowa jest bezetykietowym narzędziem bioanalitycznym, które pozwala na wiarygodny pomiar masy cząsteczkowej biomolekuł w roztworze16 w zakresie od 30 kDa do 6 MDa. Ponieważ fotometria masowa jest techniką jednocząsteczkową analizującą próbki pojedynczo, jest ona zazwyczaj ograniczona do próbek o stężeniu w zakresie od 10 pM do 10 nM. Powyżej tego zakresu cząsteczki osiadające na szklanej powierzchni będą nakładać się przestrzennie, co doprowadzi do niskiej jakości danych; poniżej tego zakresu uzyskuje się zbyt mało danych, aby przeprowadzić rzetelną analizę7. Istotną konsekwencją jest to, że może to ograniczyć badanie oddziaływań białkowych do tych, w których w tym zakresie stężeń tworzy się mieszanina form związanych i niezwiązanych.
W niniejszej pracy szczegółowo opisano protokół krok po kroku wykorzystania mikrofluidycznego systemu szybkiego rozcieńczania w celu skutecznego rozszerzenia zakresu stężeń próbek odpowiednich do fotometrii masowej. Poprzez rozcieńczenie próbki na chipie mikrofluidycznym, a następnie przeprowadzenie jej przez okno obserwacyjne detektora w czasie poniżej 50 ms, system rejestruje kompleksy obecne w nierozcieńczonej próbce, zanim nastąpi przesunięcie równowagi oddziaływań. Próbka jest dostarczana do detektora w sposób ciągły podczas poszczególnych pomiarów. W tych warunkach 95% kompleksów pozostanie nienaruszonych w momencie pomiaru próbki, nawet w przypadku oddziaływań o niskim powinowactwie – z KD rzędu mikromolarów i szybkościami dysocjacji sięgającymi 1 s-1.
Można to obliczyć w następujący sposób: dla reakcji z kursami forward kf i szybkość reakcji odwrotnej kb,

W stanie równowagi stężenia wszystkich trzech gatunków (A, B, oraz kompleks ABpozostają stałe, zatem  i
 Przy konserwatywnym założeniu, że perturbacja (w tym przypadku rozcieńczenie) może spowodować dysocjację kompleksu, ale reakcja w kierunku prawym (asocjacja) nie zachodzi, człon kf [A] [Bmożna uznać za pomijalne i można wprowadzić następujące uproszczenie:

Całkowanie daje następujący wyraz dla stężenia kompleksu w czasie po zaburzeniu stanu równowagi:
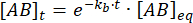
Ułamek kompleksu, który pozostaje związany w czasie t po zaburzeniu stanu równowagi, wynosi zatem:

Przy At = 50 ms, dla reakcji z kb ≈ 1 s-1, frakcja związana wynosi 0,95, czyli 95%1,12.
Fotometria masowa została wykorzystana w niniejszej pracy oraz wcześniej5 do zbadania wiązania monoklonalnego przeciwciała IgG trastuzumabu z domeną rozpuszczalną białka FcRn. Wykazano, że obaj partnerzy wiążący wykazują powinowactwo nanomolarne przy niskim pH17. Fotometrię masową zastosowano do jakościowej oceny zawartości tworzących się kompleksów w warunkach pH 5,0, a próbki były szybko rozcieńczane za pomocą dodatkowego systemu mikroprzepływowego. Procedura została zoptymalizowana pod kątem konkretnej oddziaływania białko-białko w oparciu o wcześniej raportowane wyniki5. Tę samą procedurę można wykorzystać do badania innych oddziaływań, pod warunkiem, że użytkownicy dysponują wcześniejszą wiedzą lub zoptymalizują warunki eksperymentalne dla badanego układu, takie jak dobór buforów, początkowe stężenie białka, oczekiwana stechiometria oraz czas inkubacji niezbędny do osiągnięcia stanu równowagi oddziaływania.
Podczas ręcznego rozcieńczania mieszaniny IgG-FcRn trudn było wykryć obecność kompleksów IgG-FcRn, mimo że białka te wykazują znane oddziaływania5. Niniejsza praca wykazuje, że zastosowanie metody szybkiego rozcieńczania prowadzi do wyraźnego zwiększenia ilości tych kompleksów. W przypadku tej samej próbki, po zastosowaniu szybkiego rozcieńczania, wyraźnie zaobserwowano zarówno kompleksy FcRn-IgG w stosunku 1:1, jak i kompleksy FcRn-IgG w stosunku 2:1. Różnice w tworzeniu kompleksów dowodzą znaczenia badania systemów oddziaływań biomolekularnych w szerokim zakresie stężeń.
Ponadto wyniki te wykazują, że wykorzystanie mikroprzepływów w analizie pojedynczych cząsteczek do wykrywania słabych oddziaływań jest proste, co wypełnia istotną lukę w tej metodzie. Połączenie mikroprzepływów z szybkim rozcieńczaniem z fotometrią masową oferuje atrakcyjne korzyści wynikające z zalet fotometrii masowej jako techniki analitycznej. Oznacza to, że fotometria masowa nie wymaga znakowania, wiąże się z minimalnym przygotowaniem próbek, a pomiary są wykonywane w roztworze. W przypadku tego protokołu kolejną kluczową zaletą fotometrii masowej jest możliwość rozróżnienia i ilościowego oznaczenia wszystkich powstałych form (pod warunkiem, że mają one wyraźną masę >30 kDa). Stoi to w przeciwieństwie na przykład do SPR, która może mierzyć szybkości wiązania i odwiązania, ale nie dostarcza w łatwy sposób informacji o stechiometrii8.
W przypadku niniejszego protokołu, jak i ogólnie w eksperymentach z zakresu fotometrii masowej, pomocne są kilka uwag. Po pierwsze, końcowe stężenie białka powinno mieścić się w granicach możliwości pomiarowych fotometrii masowej (10 pM-10 nM). Początkowe stężenie inkubacji powinno również mieścić się w zakresie systemu mikrofluidycznego (do 90 µM) i teoretycznie być wyższe niż rzeczywista wartość KD oddziaływania10. Zalecanym punktem wyjścia jest stosunek stężeń 1:1 między oddziałującymi gatunkami przy stężeniu w zakresie µM. Następnie stosunek ten można zmienić na 1:2, 1:5 lub, jak w przypadku niniejszego oddziaływania, 1:10. Jeśli nie dysponujemy wcześniejszymi informacjami na temat oddziaływań białkowych, użytkownik musi zoptymalizować eksperyment, zaczynając od wysokiego stężenia (zalecane 20 µM) dla każdego partnera, aby ustalić, czy powinowactwo składników mieści się w zakresie stężeń obsługiwanym przez przedstawioną metodę (tj. czy tworzą się kompleksy). Optymalizacja może również obejmować wybór innych warunków buforowych w celu promowania oddziaływań lub miareczkowanie jednego ze składników oddziaływania w celu ustalenia odpowiedniego stosunku mieszania. Po ich ustaleniu możliwe jest zoptymalizowanie stężeń i przepływów, aby zapewnić optymalne warunki dla badania i metody, np. poprzez zmniejszenie stężeń w celu uzyskania lepszej rozdzielczości pików.
Po drugie, aby pomyślnie powtórzyć ten eksperyment, należy zminimalizować ilość zanieczyszczeń. Do typowych źródeł zanieczyszczeń, o których wiadomo, że negatywnie wpływają na pomiary fotometrii masowej, należą inne białka lub szczątki komórkowe pozostałe po oczyszczaniu, niefiltrowane bufory, detergenty tworzące micelle (jeśli występują w zbyt wysokim stężeniu) oraz bufory zawierające wysokie stężenia soli, glicerolu lub innych składników. Jak omówiono w powyższym protokole, należy usunąć pęcherzyki powietrza z układu mikrofluidycznego. Pęcherzyki mogą tworzyć się w systemie rurek lub w przypadku próbek o wysokim napięciu powierzchniowym, które są podatne na powstawanie piany. Pęcherzyki mogą również powstawać w oleju imersyjnym, co można wykryć na pierścieniu ostrości (Rysunek 3). Jeśli pęcherzyków nie można usunąć za pomocą kroków opisanych w protokole, innym rozwiązaniem jest odgazowanie próbki za pomocą desykatora i pompy próżniowej, pozostawiając próbkę pod zmniejszonym ciśnieniem przez kilka minut. Nie zaleca się mieszania w wirówce (vortexowania) ani wstrząsania silnie skoncentrowanych roztworów białek, ponieważ działania te mogą sprzyjać tworzeniu się pęcherzyków.
Choć w niniejszym materiale zaprezentowano pomiar jednej konkretnej interakcji białko-białko, ten sam protokół można zastosować do innych układów interakcji białko-białko bez wprowadzania istotnych modyfikacji. Dalszym kierunkiem rozwoju tego protokołu byłoby wykorzystanie pomiarów do obliczenia wartości KD dla zidentyfikowanych kompleksów, co opisano w innych publikacjach w kontekście fotometrii masowej5,7. Chociaż w poprzednich badaniach wykorzystano dane z eksperymentów obejmujących manualne rozcieńczanie i silniejsze oddziaływania, zasadę analizy można by łatwo zastosować w tym kontekście – pod warunkiem wprowadzenia dalszych ulepszeń w urządzeniu mikroprzepływowym (takich jak zwiększenie dokładności czujnika przepływu i stabilności pompy).
Poza oddziaływaniami białko-białko, połączone podejście wykorzystujące fotometrię masową i mikroprzepływy z szybkim rozcieńczaniem prawdopodobnie znajdzie szersze zastosowanie. Fotometria masowa może być użyta do oceny czystości, agregacji i homogeniczności próbek18,19; badania oligomeryzacji białek20, składania makrocząsteczek21 lub polimeryzacji2 oraz w innych obszarach. Analiza fotometrią masową wykracza również poza białka; była ona stosowana do badania oddziaływań między kwasami nukleinowymi a białkami23, cząstkami wirusowymi24 oraz nanocząstkami25. Niniejszy protokół opisuje zatem istotne zastosowanie połączonego systemu mikroprzepływowego fotometrii masowej – umożliwia on bezpośredni pomiar słabych oddziaływań białko-białko na poziomie pojedynczych cząsteczek i kompleksów. Wartość obecnego zastosowania jest wysoka, ponieważ otwiera ono możliwość bezpośredniej charakterystyki oddziaływań, które zazwyczaj były trudne do zbadania, co ma znaczenie w kluczowych obszarach terapeutycznych. To połączone podejście mogłoby również służyć jako podstawa dla szerszego zakresu badań próbek o stężeniach sięgających kilkunastu mikromolarnych.
Oświadczenia
Myndert Claasen i Zornitsa Kofinova są pracownikami firmy Refeyn Ltd, która produkuje fotometr masowy i system mikrofluidyczny wykorzystany w tym artykule. Weston Struwe jest udziałowcem i konsultantem Refeyn Ltd.
Podziękowania
W.S. jest wspierany przez UKRI Future Leaders Fellowship [MR/V02213X/1]. Tekst i grafika rękopisu zostały przygotowane przy wsparciu członków zespołu ds. komunikacji naukowej Refeyna (Panagiota Paganopoulou, Neus Torres Tamarit i Catherine Lichten). Dziękujemy również za cenne informacje zwrotne od Camille Hetez, Sofii Ferreiry i Matthiasa Langhorsta.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 2-Propanol (Isopropanol) | VWR International LLC | 20880.320 | |
| Oprogramowanie do akwizycji danych | Refeyn | AcquireMP (v2022 R1) | |
| Oprogramowanie do analizy danych | Refeyn | DiscoverMP (v2022 R1) | |
| FCRN, His-Tag | Sigma | SRP0624 | |
| Herceptin (IgG) | Cambridge Bioscience | HY-P9907-1mg | |
| Fotometr masowy | Refeyn | TwoMP | |
| Skrzynka mikrofluidyczna | System Refeyn | MassFluidix HC | |
| Układ mikrofluidyczny | Refeyn | MassFluidix HC | |
| Oprogramowanie sterujące mikrofluidyką | Fluigent | OxyGEN | |
| Phosphate Buffered Saline (PBS), 1x Ultra Pure | VWR International LLC | K812 | |
| Wodorotlenek sodu (NaOH) | Sigma | S2770 | |
| β-Amylase, z batatów | Sigma | A8781 |
Bibliografia
- Arter, W. E., Levin, A., Krainer, G., Knowles, T. P. J. Microfluidic approaches for the analysis of protein-protein interactions in solution. Biophysical Reviews. 12 (2), 575-585 (2020).
- Hellenkamp, B., Thurn, J., Stadlmeier, M., Hugel, T. Kinetics of transient protein complexes determined via diffusion-independent microfluidic mixing and fluorescence stoichiometry. The Journal of Physical Chemistry. B. 122 (49), 11554-11560 (2018).
- Li, Z. Editorial: Methods in structural biology: Cryo-electron microscopy. Frontiers in Molecular Biosciences. 9, 1041386(2022).
- Herling, T. W., et al. A microfluidic platform for real-time detection and quantification of protein-ligand interactions. Biophysical Journal. 110 (9), 1957-1966 (2016).
- Soltermann, F., et al. Quantifying protein-protein interactions by molecular counting with mass photometry. Angewandte Chemie International Edition. 59 (27), 10774-10779 (2020).
- Wu, D., Piszczek, G. Rapid determination of antibody-antigen affinity by mass photometry. Journal of Visualized Experiments: JoVE. 168, 61784(2021).
- Wu, D., Piszczek, G. Measuring the affinity of protein-protein interactions on a single-molecule level by mass photometry. Analytical Biochemistry. 592, 113575(2020).
- Young, G., et al. Quantitative mass imaging of single biological macromolecules. Science. 360 (6387), 423-427 (2018).
- Zijlstra, N., et al. Rapid microfluidic dilution for single-molecule spectroscopy of low-affinity biomolecular complexes. Angewandte Chemie International Edition. 56 (25), 7126-7129 (2017).
- Refeyn Ltd. MassFluidix® HC system for rapid dilution via microfluidics. , https://www.refeyn.com/massfluidix-hc-system (2023).
- Pollard, T. D. A guide to simple and informative binding assays. Molecular Biology of the Cell. 21 (23), 4061-4067 (2010).
- Jarmoskaite, I., AlSadhan, I., Vaidyanathan, P. P., Herschlag, D. How to measure and evaluate binding affinities. eLife. 9, e57264(2020).
- Monnet, C., et al. Selection of IgG variants with increased FcRn binding using random and directed mutagenesis: Impact on effector functions. Frontiers in Immunology. 6, 39(2015).
- Refeyn TwoMP: Transforming biomolecular characterisation. , https://www.refeyn.com/twomp-mass-photometer (2022).
- Lai, S. -H., Tamara, S., Heck, A. J. R. Single-particle mass analysis of intact ribosomes by mass photometry and Orbitrap-based charge detection mass spectrometry. iScience. 24 (11), 103211(2021).
- Wu, D., Piszczek, G. Standard protocol for mass photometry experiments. European Biophysics Journal. 50 (3-4), 403-409 (2021).
- Vaughn, D. E., Bjorkman, P. J. Structural basis of pH-dependent antibody binding by the neonatal Fc receptor. Structure. 6 (1), 63-73 (1998).
- Niebling, S., et al. Biophysical screening pipeline for Cryo-EM grid preparation of membrane proteins. Frontiers in Molecular Biosciences. 9, 882288(2022).
- Paul, S. S., Lyons, A., Kirchner, R., Woodside, M. T. Quantifying oligomer populations in real time during protein aggregation using single-molecule mass photometry. ACS Nano. 16 (10), 16462-16470 (2022).
- Schulz, L., et al. Evolution of increased complexity and specificity at the dawn of form I Rubiscos. Science. 378 (6616), 155-160 (2022).
- Malay, A. D., et al. An ultra-stable gold-coordinated protein cage displaying reversible assembly. Nature. 569 (7756), 438-442 (2019).
- Hundt, N., Cole, D., Hantke, M. F., Miller, J. J., Struwe, W. B., Kukura, P. Direct observation of the molecular mechanism underlying protein polymerization. Science Advances. 8 (35), eabm7935(2022).
- Acharya, A., et al. Distinct RPA domains promote recruitment and the helicase-nuclease activities of Dna2. Nature Communications. 12, 6521(2021).
- Ebberink, E. H. T. M., Ruisinger, A., Nuebel, M., Thomann, M., Heck, A. J. R. Assessing production variability in empty and filled adeno-associated viruses by single molecule mass analyses. Molecular Therapy - Methods & Clinical Development. 27, 491-501 (2022).
- Melo, L., et al. Size distributions of gold nanoparticles in solution measured by single-particle mass photometry. The Journal of Physical Chemistry B. 125 (45), 12466-12475 (2021).
Przedruki i uprawnienia
