Prezentujemy niestandardową platformę eksperymentalną i protokół hodowli tkankowej, który odtwarza zmiany włóknisto-chrzęstne wywołane uderzeniem przyczepu ścięgna Achillesa w eksplantatach mysich kończyn tylnych o trwałej żywotności komórek, dostarczając model odpowiedni do badania mechanobiologii uderzeń ścięgien.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Mysi model eksplantatu kończyn tylnych do badania mechanobiologii uderzenia ścięgna Achillesa
W tym artykule
Podsumowanie
Streszczenie
Uderzenie ścięgna w kość generuje wieloosiowe środowisko mechanicznego obciążenia z wyraźnie podwyższonym poprzecznym napięciem ściskającym, które wywołuje zlokalizowany fenotyp chrząstki włóknistej charakteryzujący się akumulacją matrycy bogatej w glikozaminoglikany (GAG) i przebudową sieci kolagenowej. Podczas gdy chrząstka włóknista jest normalną cechą w dotkniętych obszarach zdrowych ścięgien, nadmierne odkładanie się GAG i dezorganizacja sieci kolagenowej są charakterystycznymi cechami tendinopatii. W związku z tym uderzenie jest klinicznie uznawane za ważny czynnik zewnętrzny w inicjacji i progresji tendinopatii. Niemniej jednak mechanobiologia leżąca u podstaw uderzeń ścięgien pozostaje niedostatecznie zbadana. Wcześniejsze wysiłki mające na celu wyjaśnienie odpowiedzi komórkowej na uderzenie ścięgna polegały na zastosowaniu jednoosiowej kompresji na komórki i wycięciu eksplantatów ścięgien in vitro. Jednak izolowane komórki nie mają trójwymiarowego środowiska zewnątrzkomórkowego kluczowego dla mechanoodpowiedzi, a zarówno badania in vitro, jak i wycięte eksplantaty nie są w stanie odtworzyć wieloosiowego środowiska napięcia generowanego przez uderzenie ścięgna in vivo, które zależy od cech anatomicznych obszaru uderzenia. Co więcej, modele uderzeń ścięgien in vivo nie mają kontroli nad środowiskiem odkształceń mechanicznych. Aby przezwyciężyć te ograniczenia, przedstawiamy nowatorski model eksplantatu mysich kończyn tylnych, odpowiedni do badania mechanobiologii uderzenia ścięgna Achillesa. Model ten utrzymuje ścięgno Achillesa in situ, aby zachować lokalną anatomię i odtwarza środowisko wieloosiowego obciążenia generowanego przez uderzenie przyczepu ścięgna Achillesa w kość piętową podczas biernie stosowanego zgięcia grzbietowego kostki, zachowując komórki w ich naturalnym środowisku. Opisujemy protokół hodowli tkankowej integralnie związany z tym modelem i przedstawiamy dane potwierdzające trwałą żywotność eksplantacji przez 7 dni. Reprezentatywne wyniki wskazują na zwiększone histologiczne barwienie GAG i zmniejszone wyrównanie włókien kolagenowych wtórne do uderzenia, co sugeruje zwiększone tworzenie chrząstki włóknistej. Model ten można łatwo dostosować do badania różnych schematów obciążenia mechanicznego i pozwala na manipulowanie interesującymi szlakami molekularnymi w celu identyfikacji mechanizmów pośredniczących w zmianie fenotypowej ścięgna Achillesa w odpowiedzi na uderzenie.
Wprowadzenie
Wiele ścięgien, w tym ścięgno Achillesa i ścięgna stożka rotatorów, doświadcza uszkodzenia kości z powodu normalnego ułożenia anatomicznego1,2,3,4. Uderzenie ścięgna generuje odkształcenie ściskające skierowane poprzecznie do osi włókna podłużnego5,6,7. Regiony uderzenia ścięgna wykazują unikalny fenotyp chrząstki włóknistej, w którym skurczone, okrągłe komórki (fibrochondrocyty) są osadzone w zdezorganizowanej sieci kolagenowej ze znacznie zwiększoną zawartością glikozaminoglikanu (GAG)2,3,4,8,9,10,11,12,13,14,15,16,17,18,19,20,21,22,23,24. Wcześniejsze badania sugerują, że zróżnicowane środowisko mechaniczne wytwarzane przez uderzenie ścięgna podtrzymuje tę bogatą w GAG matrycę, napędzając odkładanie się dużych agregujących proteoglikanów, w szczególności aggrekanu, chociaż mechanizmy leżące u podstaw są niejasne1,3,12,13,25,26,27,28,29,30,31,32,33,34,35,36,37,38, 39. Podczas gdy chrząstka włóknista jest normalną cechą w uszkodzonych obszarach zdrowych ścięgien, nieprawidłowy metabolizm proteoglikanów związany z nadmiernym tworzeniem się chrząstki włóknistej jest cechą charakterystyczną tendinopatii, powszechnej i wyniszczającej choroby, która nieproporcjonalnie często pojawia się w przewlekle uszkodzonych ścięgnach1,40,41,42,43,44,45,46,47,48,49. W związku z tym uderzenie ścięgna jest klinicznie uznawane za ważny czynnik zewnętrzny powodujący kilka najczęstszych tendinopatii, w tym chorobę stożka rotatorów i przyczepową tendinopatię Achillesa (IAT)50,51,52. Obecnie leczenie tendinopatii jest nieskuteczne. Na przykład około 47% pacjentów z IAT wymaga interwencji chirurgicznej po nieudanym leczeniu zachowawczym, ze zmiennymi wynikami pooperacyjnymi53,54,55,56. Pomimo pozornego związku między uderzeniem a tendinopatią, mechanizmy mechanobiologiczne, za pomocą których komórki w uszkodzonym ścięgnie wyczuwają i reagują na swoje środowisko mechaniczne, są słabo opisane, co zaciemnia zrozumienie patogenezy tendinopatii i skutkuje nieodpowiednim leczeniem.
Modele eksplantacji są użytecznymi narzędziami w badaniach mechanobiologii ścięgien57,58. Pierwszym krokiem w kierunku zrozumienia mechanobiologii uderzeń ścięgien było kilka wcześniejszych badań dotyczących odpowiedzi komórkowej po zastosowaniu prostej jednoosiowej kompresji do komórek lub wyciętych eksplantatów ścięgien27,29,30,31,32,33,34,39. Jednak komórki in vitro nie mają matryc zewnątrzkomórkowych i okołokomórkowych, które ułatwiają przenoszenie szczepów, sekwestrują ważne czynniki wzrostu i cytokiny uwalniane przez deformację mechaniczną oraz dostarczają substratu dla ogniskowych kompleksów adhezyjnych, które odgrywają rolę w mechanotransdukcji57,59. Ponadto zarówno badania in vitro, jak i wycięte eksplantaty nie są w stanie podsumować wieloosiowego środowiska naprężeń mechanicznych generowanego przez uderzenie ścięgna in vivo, które zależy od cech anatomicznych obszaru uderzenia5,6. W kontekście uszkodzonego przyczepu ścięgna Achillesa obejmuje to otaczające tkanki, takie jak kaletka zapięta i poduszeczka tłuszczowa Kagera60,61,62,63. I odwrotnie, modele in vivo uderzenia ścięgna 25,28,36,37,38,64,65,66 pozwalają na minimalną kontrolę nad wielkością i częstotliwością obciążenia przyłożonego bezpośrednio do ścięgna, co jest dobrze rozpoznanym Ograniczenie modeli in vivo do badania mechanobiologii ścięgien 57,58,67,68,69,70. Biorąc pod uwagę wyzwania związane z pomiarem naprężeń ścięgien in vivo, wewnętrzne środowisko odkształceń generowane w tych modelach jest często słabo scharakteryzowane.
W tym manuskrypcie prezentujemy niestandardową platformę eksperymentalną, która odtwarza uderzenie przyczepu ścięgna Achillesa w kość piętową w obrębie całych eksplantatów kończyn tylnych myszy która, w połączeniu z tym protokołem hodowli tkankowej, utrzymuje żywotność przez 7 dni w hodowli eksplantatów i pozwala na badanie biologicznych następstw uderzenia ścięgna. Platforma jest zbudowana na drukowanej w 3D bazie kwasu polimlekowego (PLA), która stanowi podstawę do mocowania uchwytów i wydrukowanej w 3D wkładki zmniejszającej objętość PLA. Uchwyty służą do zaciskania górnej części nogi i kolana proksymalnie do połączenia mięśniowo-ścięgnistego Achillesa z ogonową częścią kończyny tylnej skierowaną do góry, umożliwiając obrazowanie ścięgna Achillesa od góry za pomocą sondy ultradźwiękowej lub mikroskopu odwróconego (Ryc. 1A). Wkładka zmniejszająca objętość przesuwa się po ścieżce na podłożu i zmniejsza wymaganą objętość pożywki do hodowli tkankowych. Pleciona linka owinięta wokół tylnej łapy jest wyprowadzana z platformy przy użyciu konstrukcji podstawy i wydrukowanego w 3D klipsa PLA. Pociągając za sznurek, tylna łapa jest zgięta grzbietowo, a przyczep ścięgna Achillesa uderza w kość piętową, co powoduje podwyższone poprzeczne naprężenie ściskające5,6 (Rysunek 1A). Platforma jest umieszczona w akrylowej wannie, która utrzymuje eksplantaty kończyn tylnych zanurzone w pożywce do hodowli tkankowych. Przymocowanie napiętego sznurka na zewnątrz wanny za pomocą taśmy klejącej utrzymuje zgięcie grzbietowe kostki, powodując statyczne uderzenie przyczepu ścięgna Achillesa. Pliki CAD dla komponentów drukowanych w 3D są dostępne w wielu formatach (plik uzupełniający 1), co pozwala na import do szeregu komercyjnych i bezpłatnych programów CAD typu open source w celu modyfikacji w celu dostosowania do potrzeb eksperymentalnych. Jeśli dostęp do drukarek 3D nie jest dostępny do produkcji, pliki CAD mogą zostać dostarczone do usług druku 3D online, które wydrukują i wyślą części po niskich kosztach.
Co ważne, kompleks mięśniowo-mięśniowo-mięśniowo-ścięgnisty Achillesa obejmuje zarówno staw kolanowy, jak i skokowy71,72,73. W konsekwencji na naprężenie rozciągające ścięgna Achillesa wpływa zgięcie kolana. Wyprost kolana powoduje napięcie ścięgna Achillesa, podczas gdy zgięcie kolana zmniejsza napięcie. Najpierw prostując kolano, a następnie biernie zginając grzbietowo kostkę, naprężenia ściskające w miejscu wkłucia mogą być nakładane na naprężenia rozciągające. I odwrotnie, poprzez bierne zginanie grzbietowe kostki przy zgiętym kolanie, naprężenie rozciągające jest zmniejszone, a odkształcenie ściskające pozostaje. Obecny protokół bada trzy takie warunki. 1) W przypadku uderzenia statycznego stopa jest zgięta grzbietowo pod kątem < 110 ° w stosunku do kości piszczelowej, aby uderzyć w przyczep, z kolanem zgiętym w celu zmniejszenia napięcia. 2) W przypadku podstawowej grupy napięcia kostka jest wyprostowana powyżej 145 ° zgięcia grzbietowego z wyprostowanym kolanem, generując głównie naprężenie rozciągające przy przyczepie. 3) W przypadku grupy nieobciążonej eksplantaty hoduje się na szalce Petriego z kolanem i kostką w neutralnych pozycjach przy braku obciążenia przyłożonego zewnętrznie. Kąty, o których mowa powyżej, są mierzone fotograficznie względem układu współrzędnych, w którym stopa i kość piszczelowa są równoległe pod kątem 180° i prostopadłe pod kątem 90°.
Kluczowe kroki protokołu obejmują: 1) preparację eksplantatów kończyn tylnych oraz staranne usunięcie skóry i ścięgna podeszwowego; 2) hodowla eksplantatów po 48-godzinnej obróbce wstępnej deksametazonu; 3) sekcje tkanek i barwienie histologiczne; oraz 4) analiza obrazu barwnego w celu oceny tworzenia się chrząstki włóknistej. Po rozbiorzeniu, każdy eksplant kończyny tylnej jest wstępnie traktowany przez 48 godzin w pożywkach hodowlanych uzupełnionych deksametazonem74. Przeciwległe kończyny każdej myszy są przypisywane do oddzielnych grup eksperymentalnych w celu porównania parami, co pomaga kontrolować zmienność biologiczną. Po wstępnej obróbce, eksplantaty umieszcza się na platformach, jak opisano powyżej, i hoduje przez kolejne 7 dni (Rysunek 1B). Dodatkowych porównań dokonuje się z grupą poddaną działaniu substancji (dzień 0), w której eksplantaty są usuwane natychmiast po 48-godzinnym zabiegu wstępnym.
Po wyprowadzeniu eksplantatu, tylne kończyny są przycinane, formalina utrwalane, odwapniane i zatapiane w parafinie. Szeregowe cięcie w orientacji strzałkowej zapewnia wizualizację ścięgna Achillesa od połączenia mięśniowo-ścięgnistego do przyczepu kości piętowej, umożliwiając jednocześnie śledzenie głębokości przekroju przez całe ścięgno. Końcowe znakowanie dUTP X-nick za pośrednictwem końcowej deoksynukleotydylotransferazy (TdT) służy do wizualizacji uszkodzeń DNA wtórnych do apoptozy i oceny żywotności. Histologia błękitu toluidynowego i niestandardowa analiza obrazu koloru są wykonywane w celu ilościowego określenia zmian w barwieniu GAG. Wycinki tkanek barwione na niebiesko toluidyną są następnie wykorzystywane do obrazowania SHG w celu scharakteryzowania zmian w organizacji włókien kolażu (Rysunek 1B).
Dostarczone reprezentatywne wyniki sugerują zmienione zabarwienie histologiczne matrycy bogatej w GAG i dezorganizację zewnątrzkomórkowej sieci kolagenowej wygenerowaną przez 7 dni statycznego uderzenia w model. Model ten można wykorzystać do zbadania mechanizmów molekularnych leżących u podstaw zmian włóknisto-chrzęstnych spowodowanych uderzeniem.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
Wszystkie prace z udziałem zwierząt zostały zatwierdzone przez Komitet ds. Zasobów Zwierzęcych Uniwersytetu w Rochester.
1. Przygotowanie pożywek do hodowli tkankowych
- Wszystkie eksplanty należy hodować w podłożu Dulbecco's Modified Eagle Medium (1x DMEM) z dodatkiem 1% v/v penicyliny-streptomycyny i 200 µM kwasu L-askorbinowego w inkubatorze w temperaturze 37 °C i 5% CO2. Podczas wstępnej obróbki trwającej 48 h, każdy eksplant należy hodować w 70 mL pożywki uzupełnionej o 100 nM deksametazonu74. Po obróbce wstępnej kończyny należy hodować przez kolejne 7 dni bez deksametazonu, wymieniając pożywkę co 48-72 h.
UWAGA: Zgodnie z zaleceniami Wunderli, Blache i Snedekera57, nie zaleca się dodawania surowicy, takiej jak płodowa surowica bydlęca, do pożywek hodowlanych. W skrócie, warunki bezsurowicze lepiej oddają beznaczyniowe i ubogie w składniki odżywcze mikrośrodowisko ścięgna występujące in vivo. Ponadto suplementacja surowicą może promować degradację tkanki w określonych warunkach hodowli75 oraz stymulować proliferację komórek i ich migrację z tkanki, co są cechy patologii ścięgien57. - Dla grupy nieobciążonej każdy eksplant należy hodować w 70 mL pożywki. Dla grup z napięciem bazowym i statycznym uciskiem każda platforma wymaga około 125 mL pożywki, aby kończyna pozostała zanurzona. Objętość ta może się różnić w zależności od ułożenia górnej części nogi w uchwytach oraz parametrów druku 3D, głównie gęstości wypełnienia.
2. Disekcja eksplantatów i wstępna obróbka deksametazonem
- Uśmierć myszy poprzez inhalację CO2 i wtórną dyslokację szyi lub zgodnie z wytycznymi instytucjonalnymi. W niniejszym protokole wykorzystano myszy C57BL/6 w wieku poniżej 1 roku. Rozmiar kończyny tylnej zwiększa się z wiekiem, co może utrudnić jej stabilne zamocowanie w uchwytach.
- Przed przystąpieniem do sekcji przenieś 70 mL uprzednio ogrzanej (37 °C) pożywki hodowlanej do szalki Petriego o wymiarach 100 mm (średnica) x 25 mm (wysokość) w sterylnej komorze z laminarnym przepływem powietrza (BSC). Dodaj deksametazon, aby uzyskać robocze stężenie 100 nM.
- Sekcję można przeprowadzić na blacie laboratoryjnym, używając podkładów chłonnych, pracując sprawnie przed przeniesieniem eksplantów kończyn tylnych do BSC. Przygotuj narzędzia chirurgiczne niezbędne do tej procedury, w tym: gładkie, proste pęsety z cienkimi końcówkami; proste pęsety z cienkimi końcówkami i ząbkami oraz proste, ostre, cienkie nożyczki.
- Aby wypreparować eksplanty kończyny tylnej, ułóż mysz na plecach i zlokalizuj staw biodrowy. Za pomocą cienkich nożyczek wykonaj niewielkie (5-10 mm) nacięcie skóry nad bliższą i przednią (cranialną) częścią górnej części nogi.
- Rozszerz nacięcie, uchwyć palcami odsłoniętą górną część nogi i ostrożnie odciągnij skórę w kierunku dystalnym, aby zdjąć ją z kończyny tylnej aż do poziomu kostki. Delikatnie wsuń jedno ostrze nożyczek pod skórę wzdłuż grzbietowej części stopy i wykonaj nacięcie sięgające palców. Kontynuuj odciąganie skóry w kierunku dystalnym do jej całkowitego usunięcia.
- Ustaw mysz tak, aby uwidocznić przyczep ścięgna Achillesa do tylnej (caudalnej) części kości piętowej, w pobliżu kostki. Proksymalnie od przyczepu ścięgna Achillesa znajduje się ścięgno mięśnia płaszczowatego, które leży bezpośrednio przy przyśrodkowej krawędzi ścięgna Achillesa i biegnie w kierunku dystalnym ku podeszwie stopy, przechodząc nad tylną częścią kości piętowej.
- Aby usunąć ścięgno mięśnia płaszczowatego, ostrożnie wsuń jedną końcówkę gładkiej pęsety z cienkimi końcówkami pomiędzy oba ścięgna i przesuń ją przyśrodkowo pod ścięgno mięśnia płaszczowatego. Przesuń końcówkę proksymalnie i przetnij mięsień płaszczowaty. Używając pęsety z ząbkami i cienkimi końcówkami, chwyć oddzielony koniec proksymalny ścięgna mięśnia płaszczowatego i pociągnij w kierunku dystalnym, aby je usunąć.
- W stawie biodrowym użyj cienkich nożyczek, aby przeciąć miednicę i wyizolować kończynę tylną. Użyj nożyczek, aby odsunąć pozostałą część miednicy i odsłonić głowę kości udowej.
- Przenieś eksplant kończyny tylnej do BSC i do szalki zawierającej pożywkę do hodowli komórkowej z deksametazonem. Umieść szalkę w inkubatorze i poddawaj wstępnej obróbce przez 48 h.
3. Hodowla eksplantów i platformy załadowcze
- Po zakończeniu 48-godzinnego wstępnego przygotowania należy podgrzać odpowiednie objętości pożywki hodowlanej (sekcja 1). Od tego momentu do pożywek hodowlanych nie będzie dodawano deksametazonu. Na tym etapie kończyny z grupy poddanej wstępnemu przygotowaniu (dzień 0) mogą zostać utrwalone, odwapnione i zatopione w parafinie w celu późniejszego przygotowania skrawków, barwienia i analizy.
- W przypadku grupy nieobciążonej odessać medium do wstępnej obróbki, przenieść eksplantaty do nowych szalek Petriego, dodać do każdej 70 ml pożywki i umieścić w inkubatorze.
- Dla grup napięcia bazowego oraz statycznego ucisku należy przygotować platformy do eksplantów. Wyciąć kawałki papieru ściernego o rozmiarze zbliżonym do płytek uchwytu. Dla grupy statycznego ucisku wyciąć odcinki plecionej żyłki o długości około 18 cali i zawiązać luźny węzeł nadpalny w połowie długości żyłki. Odrywać kawałki folii aluminiowej, aby pokryć każdą kąpiel akrylową, i spryskać je 70% etanolem (EtOH). Przenieść przygotowane materiały do komory z laminarnym przepływem powietrza (BSC).
- Każda platforma zawiera akrylową wannę, podstawę, wkład do redukcji objętości, klips oraz uchwyty. Każdy uchwyt składa się z dwóch płyt oraz trzech różnych rodzajów śrub, w tym jednej śruby M5 x 0,8 mm (gwint) x 10 mm (długość), która mocuje uchwyty do podstawy; dwóch śrub M6 x 1 mm (gwint) x 20 mm (długość), które wysuwają płyty w celu zaciśnięcia uchwytów; oraz czterech śrub M3 x 0,5 mm (gwint) x 14 mm (długość), które wraz z czterema sprężynami ściskającymi cofają płyty, aby otworzyć uchwyty.
- Wszystkie elementy należy umieścić w pojemnikach wtórnych, które w przypadku wycieku będą w stanie pomieścić całą pożywkę hodowlaną. Następnie należy je zanurzyć w roztworze wybielacza o stężeniu ≥ 10% i moczyć przez co najmniej 1 h. Roztwór wybielacza należy spłukać wodą z kranu (w razie potrzeby wysterylizować w autoklawie), a następnie przenieść elementy do komory BSC.
UWAGA: W celu wyeliminowania zanieczyszczeń należy rozważyć autoklawowanie całej wody z kranu lub użycie wody oczyszczonej. Zob. Dyskusja w celu uzyskania dodatkowych wskazówek dotyczących zwalczania kontaminacji. - Za pomocą śrub M3 i sprężyn ściskających przymocuj płyty dociskowe do uchwytów, przykręć uchwyty do podstawy śrubą M5, a następnie wkręć śruby M6, aż zazębią się z płytami dociskowymi. Użyj dwustronnej taśmy, aby przykleić papier ścierny do płyt dociskowych, a następnie zamknij uchwyty, aby zwiększyć przyczepność papieru ściernego do płyt. Powtórz czynność dla wszystkich platform.
- Przed zamocowaniem platformy należy całkowicie rozewrzeć uchwyty, a następnie za pomocą pęsety umieścić górną część nogi i kolano pomiędzy płytami tak, aby powierzchowna część ścięgna Achillesa była skierowana ku górze (Rycina 1A). Luźno zacisnąć uchwyty, aby delikatnie przytrzymać element na miejscu.
- Za pomocą pęsety chwyć odsłoniętą głowę lub stopę kości udowej i manipuluj kątem zgięcia kolana, stopniowo zamykając uchwyty w celu unieruchomienia. W przypadku grupy o napięciu bazowym wyprostuj staw kolanowy zgodnie z wcześniejszym opisem. Wraz z zaciskaniem się uchwytów przy wyprostowanym kolanie, staw skokowy powinien naturalnie przejść w wyprost. W przypadku grupy z impingementem statycznym zgnij staw kolanowy pomiędzy uchwytami zgodnie z wcześniejszym opisem.
- W przypadku grupy z impingementem statycznym, zawiązać węzeł nadgarstkowy sznurka wokół dystalnej części łapy i go zaciągnąć. Przeciągnąć sznurek przez otwór w podstawie znajdującej się pod eksplantem oraz przez otwór zacisku. Umieścić podstawę w kąpieli akrylowej i przymocować zacisk do górnej krawędzi kąpieli (Rycina 1A).
- Pociągnij za sznurek, aby zgiąć stopę grzbietowo do co najmniej 110° względem kości piszczelowej i użyj permanentnego markera, aby zaznaczyć sznurek w miejscu jego wyjścia z klipsa. Wykonaj zdjęcie eksplantu w tej pozycji, aby w późniejszym czasie określić kąt zgięcia grzbietowego (Rycina 1A).
- Zdejmij podstawę i przymocuj wkład do redukcji objętości, przesuwając go wzdłuż prowadnicy na podstawie. Umieść podstawę (teraz z przymocowanym wkładem do redukcji objętości) z powrotem w akrylowej kąpieli i ponownie zamocuj klips na górnej krawędzi. Pociągnij za sznurek, aby powrócić do pierwotnego kąta zgięcia grzbietowego, posługując się zaznaczonym sznurkiem jako prowadnikiem, a następnie przymocuj sznurek taśmą do zewnętrznej strony kąpieli, aby utrzymać statyczne zgięcie grzbietowe.
- W przypadku grupy z napięciem bazowym należy po prostu umieścić podstawę z wkładką do redukcji objętości w kąpieli akrylowej po uprzednim umieszczeniu eksplantu pomiędzy uchwytami, a następnie wykonać zdjęcie w celu ilościowego określenia kąta zgięcia grzbietowego.
- Dodaj 125 ml uprzednio ogrzanego (37 °C) pożywkę do każdej platformy, aby zanurzyć eksplantaty. Przykryć górną część kąpieli folią aluminiową, umieścić w pomocniczym pojemniku i przenieść do inkubatora. Hodować przez kolejne 7 dni, wymieniając pożywkę co 48–72 h.
UWAGA: Taśma umieszczona na górnej powierzchni kąpieli może zapobiec wypływaniu części wykonanych z PLA.
4. Fiksacja, dekalcyfikacja i zatapianie w parafinie
- Po hodowli eksplantów, za pomocą nożyczek przyciąć paznokcie u stóp/dystalne części palców oraz odciąć górną część nogi proksymalnie względem złącza mięśniowo-ścięgnistego ścięgna Achillesa. Każdy przycięty staw skokowy umieścić w kasecie do przetwarzania wyłożonej piankowymi wkładkami do biopsji. Przesunąć staw w róg kasety, aby ustawić go w zgięciu grzbietowym pod kątem około 90°, a następnie zamknąć kasetę, aby utrwalić pozycję.
- Utrwalać przez 3 dni w 10% neutralnym buforze formaliny (NBF) i odwapniać przez 2 tygodnie w 14% kwasie etylenodiaminotetraoctowym (EDTA) rozpuszczonym w destylowanej wodzie (diH2O) z pH dostosowanym do wartości 7,4–7,6 za pomocą octu lodowatego.
- Aby usunąć sole, dokładnie wypłukać próbki trzykrotnie najpierw w 1x soli fizjologicznej w buforze fosforanowym (PBS), a następnie w diH2O, po 5 minut każdorazowo. Przeprowadzić rutynowe przetwarzanie próbek do histologii parafinowej: odwodnić poprzez stopniowanie stężeń EtOH, przejrzeć w ksylenie i zinfiltrować woskiem parafinowym. Zorientować i zatopić próbki w parafinie, aby uzyskać sagittalne przekroje tkanek przez ścięgno Achillesa w progresji od przyśrodkowej do bocznej, zgodnie z opisem w sekcji 5 poniżej (Rysunek 1B).
5. Krojenie tkanek
- Za pomocą mikrotomu ostrożnie przycinaj próbkę, aż sekcje będą równoległe do powierzchni bloku. Wykonaj przycięcie grubościowe kostki od strony przyśrodkowej stawu, zatrzymując się przed osiągnięciem przyśrodkowej krawędzi miejsca przyczepu ścięgna Achillesa.
- Przenieś próbkę na blok lodu, aby dostosować temperaturę i nawodnienie, a następnie wymień ostrza (lub przejdź do świeżego fragmentu aktualnego ostrza). Kontynuuj wykonywanie sekcji próbki z grubością 10 µm i ostrożnie zidentyfikuj moment wejścia w miejsce przyczepu ścięgna Achillesa za pomocą mikroskopu w świetle przechodzącym. Po zidentyfikowaniu tego miejsca wykonaj sekcje seryjne, śledząc numer sekcji (tj. głębokość tkanki) przez cały obszar przyczepu ścięgna Achillesa.
6. Deparafinizacja/rehydratacja i wybór szkiełek
- Dla każdego z poniższych testów należy wybrać dopasowane poziomowo przekroje tkanek z każdej pary przeciwległych kończyn. Przed barwieniem umieścić je na statywie do szkiełek i poddać procesowi rehydratacji: 3 zmiany ksylenu, 2 zmiany 100% EtOH, 2 zmiany 95% EtOH oraz 1 zmiana 70% EtOH, po 5 min każda. Rehydratację zakończyć w diH2O.
7. Analiza TUNEL w celu oceny żywotności ścięgna Achillesa
- W przypadku znakowania TUNEL, należy przeprowadzić barwienie zgodnie z protokołem producenta. Inkubować w 20 µg/mL proteinazy K przez 20 min w temperaturze pokojowej i przemyć w diH2O. Inkubować w 50 µL roztworu barwiącego TUNEL (5 µL roztworu enzymu, 45 µL roztworu znacznika) przez 1 h w temperaturze 37 °C. Przemyć w diH2O. Zamontować z użyciem odczynnika antyfadingowego zawierającego DAPI oraz szkiełkiem coverslip.
- Wykonać obrazowanie przyczepu ścięgna Achillesa przy użyciu mikroskopu fluorescencyjnego z obiektywem 4x. Należy uwzględnić kanał DAPI (długości fal wzbudzenia/emisji = 360/460 nm) w celu wizualizacji wszystkich jąder, kanał TUNEL (TMR Red) (długości fal wzbudzenia/emisji = 540/580 nm) do wizualizacji jąder apoptotycznych oraz, jeśli to możliwe, kanał w świetle przechodzącym.
- Do analizy obrazów należy zaimportować zdjęcia do oprogramowania do analizy obrazu odpowiedniego do przetwarzania opartego na ROI, takiego jak FIJI/ImageJ lub MATLAB. Zdefiniować obszar zainteresowania (ROI) obejmujący całe ścięgno Achillesa w polu widzenia (Rycina 2A), z wyłączeniem komórek epitenonu, które są wysoce podatne na śmierć indukowaną przez sekcję i nagłą zmianę warunków środowiskowych po umieszczeniu w kulturze.
- Aby to osiągnąć, należy wykonać wybór ROI w programie MATLAB poprzez zaimportowanie obrazu w świetle przechodzącym i użycie funkcji drawpolygon() w celu obrysowania i zamknięcia granic ścięgna. MATLAB tworzy obiekt Polygon dla ROI, który można następnie zastosować do obrazów z kanałów DAPI i TUNEL, aby zamaskować dane o intensywności pikseli poza ROI za pomocą funkcji createMask(), w celu analizy wyłącznie jąder w obrębie ścięgna Achillesa.
- Zaimportować obrazy z kanałów DAPI i TUNEL oraz określić próg intensywności fluorescencji dla zdefiniowania jąder apoptotycznych (TUNEL+), normalizując go do maksymalnej intensywności fluorescencji jąder apoptotycznych w tkankach nieżywotnych, takich jak kość, mięśnie lub tłuszcz, które przypadkowo znalazły się na przekroju tkankowym. Po zamaskowaniu obrazów należy obliczyć frakcję jąder apoptotycznych (jądra TUNEL+/jądra DAPI) w obrębie ścięgna Achillesa.
8. Histologia z użyciem błękitu toluidyny w celu charakterystyki tworzenia się chrząstki włóknistej
- Po rehydratacji (Sekcja 6) przenieś kasetkę z preparatami tkanek o dopasowanym poziomie z przeciwstawnych par eksplantów do 0,4% w/v błękitu toluidyny O w 0,1 M buforze octanowym z pH dostrojonym do 4,0 za pomocą octanu lodowatego. Inkubuj przez 10 min w temperaturze pokojowej, a następnie płucz 3x w diH2O przez 30 s każdego razie.
- Odwodnij poprzez trzy zmiany 95% EtOH i dwie zmiany 100% EtOH, po 30 s każda. Przelej przez trzy zmiany ksylenu, po 1 min każda. Przykryj szkiełkiem przy użyciu medium montującego na bazie ksylenu.
- Uzyskaj 24-bitowe kolorowe obrazy Red-Blue-Green (RGB) miejsca przyczepu ścięgna Achillesa. Na przykład w tym protokole użyj adaptera do połączenia cyfrowej kamery kolorowej z okularem zwykłego mikroskopu jasnopola z obiektywem 4x.
- Aby ilościowo ocenić różnice w barwieniu błękitem toluidyny w obrębie kompresyjnej chrząstki włóknistej ścięgna (CTF)16 w miejscu przyczepu ścięgna Achillesa (Rysunek 3A,B), zaimportuj obrazy RGB do oprogramowania do analizy obrazu umożliwiającego definiowanie i zarządzanie wieloma obszarami zainteresowania (ROI). Opcje obejmują narzędzia selekcji i menedżera ROI w FIJI/ImageJ lub toolbox przetwarzania obrazów w MATLAB. Rozpocznij od ustawienia skali piksel/długość.
UWAGA: Wybór oprogramowania pozostaje w gestii badacza i nie ogranicza się oczywiście tylko do MATLAB lub FIJI/ImageJ. Autorzy udostępnili kod MATLAB (Plik uzupełniający 2), dokumentację opisującą implementację (Plik uzupełniający 3) oraz przykładowy obraz (Plik uzupełniający 4). Zachęcamy badaczy do tłumaczenia tego kodu na alternatywne języki programowania w celu wykorzystania w innym oprogramowaniu, jeśli jest to konieczne lub preferowane. - Przy wyświetlonym w wybranym oprogramowaniu obrazie zidentyfikuj przecięcie głębokiego brzegu ścięgna z kością piętową. Od tego miejsca odrysuj proksymalnie 800 µm wzdłuż głębokiego brzegu ścięgna, aby ustanowić głęboką granicę CTF. Na przykład użyj funkcji drawpolyline() w MATLAB, aby interaktywnie narysować linię wielosegmentową na obrazie RGB. MATLAB tworzy obiekt Polyline zawierający wierzchołki linii, który może zostać przetworzony i przycięty do długości 800 µm.
- Z tej pozycji utwórz proksymalną granicę CTF, rysując odcinek linii łączący się z powierzchownym brzegiem ścięgna, który jest prostopadły do lokalnej orientacji włókien.
- Wróć do przecięcia głębokiego brzegu ścięgna i kości piętowej i zdefiniuj dystalną granicę CTF, rysując odcinek linii łączący się z powierzchownym brzegiem ścięgna wzdłuż wyraźnej linii tidemark oddzielającej CTF od chrząstki włóknistej strefy przyczepu (AZF)16 (Rysunek 3A,B). Na koniec wygeneruj powierzchowną granicę CTF, odrysowując powierzchowny brzeg ścięgna w celu zamknięcia obszaru.
- Aby opisać zmienność przestrzenną barwienia GAG w obrębie przyczepu, podziel całkowity obszar CTF na 4 kwadranty (Rysunek 3A,B). Połącz punkt środkowy głębokiej i powierzchownej granicy CTF odcinem linii, aby stworzyć granicę dystalną/proksymalną. Przechodząc przez punkt środkowy tej granicy, połącz punkty środkowe dystalnej i proksymalnej granicy CTF wzdłuż orientacji włókien, aby stworzyć granicę powierzchowną/głęboką.
- Te 6 granic dostarcza informacji, które mogą być wykorzystane do zdefiniowania ROI reprezentującego cały obszar CTF, a także 4 kwadrantów dzielących CTF. W MATLAB na przykład zgrupuj wierzchołki definiujące granice każdego pojedynczego ROI (CTF, kwadranty 1-4) w wektory i użyj images.roi.Polygon(), aby wygenerować zamknięte obiekty Polygon dla każdego ROI.
- Po zdefiniowaniu ROI przekształć dane pikseli RGB w przestrzeń kolorów Hue-Saturation-Value (HSV), korzystając z wtyczki color transformer w FIJI, funkcji rgb2hsv() w MATLAB lub innego oprogramowania stosującego odpowiednie równania transformacji76. Dane HSV mogą być następnie rzutowane na 2D przestrzeń odcień-nasycenie, gdzie każda kombinacja odcienia i nasycenia koduje unikalny kolor (Rysunek 3C).
- W każdym ROI oblicz średni odcień i nasycenie, które opisują średni kolor barwienia w ROI. Można to osiągnąć w MATLAB na przykład poprzez wykorzystanie obiektów Polygon definiujących każde ROI do zamaskowania obrazu za pomocą createMask() w celu analizy danych pikseli odcień-nasycenie specjalnie w obrębie każdego ROI.
- Zdefiniuj kolejny mały ROI w obrębie okostnowej chrząstki włóknistej (PF)16 (Rysunek 3A, B) i oblicz średni odcień i nasycenie. Następnie oblicz odległość euklidesową oddzielającą średni kolor w każdym ROI CTF od koloru PF (Rysunek 3C).
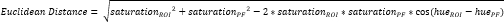
UWAGA: Obliczenie odległości euklidesowej opisuje stopień podobieństwa między średnim kolorem ROI a kolorem PF, która jest kwintesencją tkanki włóknistochrzęstnej16,17,77. Mniejsza odległość euklidesowa wskazuje na kolor ROI, który ma bardziej włóknistochrzęstny wygląd. - Wykorzystaj tę odległość do obliczenia wyniku włóknistochrzęstnego, który przyjmuje wartość maksymalną 1, jeśli kolor ROI jest identyczny z kolorem PF, oraz wartość minimalną -1, jeśli kolor ROI i PF osiągają maksymalne oddalenie w przestrzeni kolorów odcień-nasycenie.
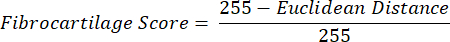
- Uśrednij dane dla odcienia, nasycenia i wyniku włóknistochrzęstnego w każdym ROI w przekrojach tkanek z każdej kończyny. Przeprowadź parzyste porównania statystyczne między grupami przeciwstawnych kończyn.
9. Obrazowanie SHG w celu zbadania zmian w organizacji sieci kolagenowej
- Wykonaj obrazowanie SHG przekrojów barwionych błękitem toluidynowym, używając odpowiedniego systemu mikroskopowego z obiektywem 20x. Pozyskaj stosy z (z-stacks) przez całą grubość przekroju i wykonaj skanowanie kafelkowe (tile scanning) w razie potrzeby, aby w pełni uchwycić miejsce przyczepu ścięgna Achillesa.
- Zaimportuj obrazy SHG do preferowanego oprogramowania do analizy obrazu i zdefiniuj obszary ROI obejmujące i dzielące CTF w miejscu przyczepu ścięgna Achillesa, zgodnie z opisem analizy obrazów barwionych błękitem toluidynowym w sekcji 8 (Rycina 4A,B).
- Jeśli obrazy SHG zostały zaimportowane do programu MATLAB, zastosuj podejście do definiowania ROI dla CTF w MATLAB opisaną w sekcji 8. Po zdefiniowaniu ROI przenieś ich współrzędne do programu FIJI, eksportując wierzchołki ROI z MATLAB do plików .txt i importując je do FIJI za pomocą File > Import > XY Coordinates. Nałóż zaznaczenie i prześlij je do menedżera ROI w celu analizy.
- Aby ilościowo określić organizację kolagenu, użyj wtyczki Directionality w programie FIJI, która wykonuje analizę widma Fouriera w celu obliczenia rozkładów orientacji włókien w małych oknach obejmujących ROI. Rozrzut tego rozkładu, określany jako dyspersja, jest odwrotnie proporcjonalny do wyrównania włókien.
UWAGA: Włókna kolagenowe mogą przyjmować zmienne orientacje w różnych oknach w obrębie CTF ze względu na ogólną krzywiznę ścięgna, a nie z powodu braku wyrównania/organizacji. Aby lepiej odróżnić zmiany w organizacji kolagenu od ogólnej krzywizny ścięgna w miejscu przyczepu, konieczne jest zdefiniowanie mniejszych obszarów ROI. - Zaimportuj obrazy SHG do programu FIJI i ustaw skalę piksel/długość. Wygeneruj projekcję maksymalnej intensywności pikseli do dwuwymiarowego obrazu kompozytowego i dodaj ROI do ROI Manager. Sekwencyjnie nakładaj każde ROI dla CTF na obraz i narysuj 10 małych pod-ROI o stałym rozmiarze w obrębie ROI, dodając pod-ROI do ROI manager.
- W każdym pod-ROI uruchom wtyczkę directionality w programie FIJI, aby obliczyć dyspersję włókien. Oblicz średnią wartość dyspersji dla pod-ROI w obrębie każdego ROI dla CTF, a następnie oblicz średnią dyspersję w każdym ROI dla CTF dla wszystkich przekrojów z każdego eksplantu. Przeprowadź sparowane porównania statystyczne między grupami kończyn przeciwległych.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Reprezentatywne obrazy przekrojów tkanek barwionych metodą TUNEL wykazują minimalną liczbę apoptotycznych jąder w obrębie ścięgna Achillesa po 7 dniach hodowli eksplantu we wszystkich grupach eksperymentalnych (Rycina 2A). Ilościowa analiza tych obrazów dostarcza dowodów, że protokół hodowli tkankowej utrzymuje średnio do 78% żywotności w obrębie ścięgna Achillesa po 7 dniach hodowli eksplantu przy różnych warunkach obciążenia (Rycina 2B).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Eksperymentalna platforma eksplantacyjna mysiej kończyny tylnej w połączeniu z protokołem hodowli tkankowej opisanym w tym badaniu stanowi odpowiedni model do badania mechanobiologii powstawania chrząstki włóknistej napędzanej uderzeniem w przyczepie ścięgna Achillesa. Użyteczność tego modelu eksplantacji jest wykazana przez reprezentatywne wyniki, które wskazują na utrzymanie żywotności komórek przy jednoczesnej znaczącej i niejednorodnej przestrzennie zmianie zabarwienia błękitem toluidyny po 7 dniach uderzenia statycz...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Autorzy są wdzięczni za wsparcie i pomoc udzieloną przez Jeffa Foxa i Vidyę Venkatramani z University of Rochester Center for Musculoskeletal Research's Histology, Biochemistry, and Molecular Imaging (HBMI) Core, finansowane częściowo przez P30AR06965. Dodatkowo autorzy chcieliby podziękować Centrum Mikroskopii Świetlnej i Nanoskopii (CALMN) w Centrum Medycznym Uniwersytetu w Rochester za pomoc w mikroskopii wielofotonowej. Badanie to zostało sfinansowane przez R01 AR070765 i R01 AR070765-04S1, a także 1R35GM147054 i 1R01AR082349.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Podkłady chłonne | VWR | 82020-845 | Do preparacji stołowej |
| Wanna akrylowa | Źródło Jeden | X001G46CB1 | Zawiera platformę eksplantacyjną zanurzoną w pożywce hodowlanej |
| Pojemnik na autoklaw | Thermo Scientific | 13-361-20 | Używany jako wtórne zabezpieczenie, mieści dwie platformy |
| Baza | - | wydrukowana w 3D z plików CAD dostarczonych jako pliki uzupełniające | |
| Plecionka | testowa KastKing | 30lb | Służy do owijania wokół łapy i nakładania zgięcia grzbietowego kostki |
| Klips | - | wydrukowany w 3D z plików CAD dostarczonych jako pliki uzupełniające | |
| Szkło osłonowe | Fisherbrand | 12-541-034 | Prostokątne, nr 2, 50 mm x 24 mm |
| Cytoseal XYL | VWR | 8312-4 | Nośniki montażowe na bazie ksylenu do szkiełek nakrywkowych Niebieska tkanka barwiona toluidyną Sekcje |
| Deksametazon | MP Biomedical LLC | 194561 | CAS#50-02-2 |
| Dimetylosulfotlenek (DMSO), bezwodny | Invitrogen firmy ThermoFisher | D12345 | CAS#67-68-5, służy do rozpuszczania deksametazonu w stężonych roztworach podstawowych |
| Taśma dwustronna | Scotch Brand | 34-8724-5195-9 | Do mocowania papieru ściernego do płyt dociskowych |
| Dulbecco's Modified Eagle Medium (1X DMEM) | Gibco firmy ThermoFisher | 11965092 | wysoka zawartość glukozy, (-) pirogronian, (+) glutamina |
| EDTA sól tetrasodowa dwuwodna | Thermo Scientific Chemicals | J15700. A1 | CAS # 10378-23-1, służy do wytwarzania 14% roztworu EDTA do odkamieniania próbek |
| Etanol, 200 proof | Thermo Scientific | T038181000 | CAS#64-17-5, 1 L zapas |
| Piankowe podkładki do biopsji | Leica | 3801000 | Używany z kasetami do obróbki, pomaga utrzymać stawy skokowe w pożądanej pozycji podczas mocowania i odwapniania |
| Kleszcze, #SS Standard Inox | Dumont | 11203-23 | Prosty, gładki, drobny końcówki |
| Kleszcze, Micro-Adson 4,75" | Fisherbrand | 13-820-073 | Proste, cienkie końcówki z ząbkowanymi zębami |
| Papier ścierny granat, ziarnistość 50-D | Norton | M600060 01518 | Lub inny papier ścierny o grubej ziarnistości |
| Lodowaty kwas octowy | Fisher Chemical | A38S-500 | CAS # 64-19-7, do regulacji pH buforu octanu sodu stosowanego do histologii błękitu toluidyny, a także 14% roztworu odwapniającego EDTA |
| Uchwyty | ADMET | GV-100NT-A4 | Imadło ze stali nierdzewnej Uchwyty, i sprężyny opisane w protokole są dołączone |
| Szkiełka mikroskopowe samoprzylepne Histobond | VWR | 16005-108 | Strzałkowe sekcje kończyn tylnych niezawodnie przylegają do tych szkiełek we wszystkich protokołach barwienia |
| Zestaw do wykrywania śmierci komórek in situ, test TMR Red | Roche | 12156792910 | TUNEL |
| Taśma do etykietowania | Fisherbrand | 15-959 | Lub dowolna inna preferowana taśma do etykietowania |
| Kwas L-askorbinowy | Sigma-Aldrich | A4544-100G | CAS#50-81-7, do formułowania pożywek Neutralna |
| buforowana formalina, 10% | Leica | 3800600 | Do utrwalania próbki, zapas 5 galonów |
| Szalki Petriego Nunc | Sigma-Aldrich | P7741-1CS | Średnica 100 mm x wysokość 25 mm, utrzymuj eksplantaty zanurzone w 70 ml pożywki hodowlanej, jak opisano w protokole |
| Penicylina-streptomycyna (100X) | Gibco firmy ThermoFisher | 15140122 | Dodaj 5 ml do 500 ml 1X DMEM dla 1% v/v (1X) stężenia roboczego |
| Kwas polimlekowy (PLA) 1,75 mm | Hatchbox-Wybierz | średnicę filamentu kompatybilną z Twoją wytłaczarką do drukarki 3D, w kolorze do wyboru. | |
| Kasety obróbcze | Leica | 3802631 | Do utrwalania, odwapniania i zatapiania parafiny |
| Odczynnik Prolong Gold Antifade z DAPI | Invitrogen firmy ThermoFisher | P36931 | Podłoże montażowe do nakrywki skrawków tkanek po TUNEL |
| Proteinaza K | Fisher BioReagents | BP1700-50 | CAS#39450-01-6, używany do pobierania antygenu w protokole TUNEL |
| Nożyczki, drobne | FST | 14094-11 | Prosty, ostry |
| zestaw do barwienia szkiełek, 12-miejscowy | Mercedes Scientific | MER 1011 | Stojak z 12 naczyniami do barwienia i suwakami do histologii błękitu toluidyny |
| Octan sodu, bezwodny | Thermo Scientific Chemicals | A1318430 | CAS#127-09-3, używany do wytwarzania bufora do histologii błękitu toluidyny |
| Tissue-Tek Accu-Edge Niskoprofilowe ostrza mikrotomu | VWR | 25608-964 | Do cięcia parafiny |
| Błękit toluidynowy O | Thermo Scientific Chemicals | 348601000 | CAS#92-31-9 |
| Wkładka zmniejszająca objętość | - | wydrukowana w 3D z plików CAD dostarczonych jako pliki uzupełniające | |
| Ksyleny | Leica | 3803665 | 4 galony do barwienia histologicznego |
Bibliografia
- Cook, J. L., Purdam, C. Is compressive load a factor in the development of tendinopathy. Br J Sports Med. 46 (3), 163-168 (2012).
- Benjamin, M., Qin, S., Ralphs, J. R. Fibrocartilage associated with human tendons and their pulleys. J Anat. 187 (Pt 3), 625-633 (1995).
- Benjamin, M., Ralphs, J. R. Fibrocartilage in tendons and ligaments - an adaptation to compressive load. J Anat. 193 (4), 481-494 (1998).
- Benjamin, M., Theobald, P., Suzuki, D., Toumi, H. The anatomy of the Achilles tendon. The Achilles Tendon. 3, 5-16 (2007).
- Chimenti, R. L., et al. Insertional achilles tendinopathy associated with altered transverse compressive and axial tensile strain during ankle dorsiflexion. J Orthop Res. 35 (4), 910-915 (2017).
- Mora, K. E., et al. Ultrasound strain mapping of the mouse Achilles tendon during passive dorsiflexion. J Biomech. 132, 110920(2022).
- Pringels, L., et al. Intratendinous pressure changes in the Achilles tendon during stretching and eccentric loading: Implications for Achilles tendinopathy. Scand J Med Sci Sports. 33 (5), 619-630 (2023).
- Koob, T. J., Vogel, K. G. Site-related variations in glycosaminoglycan content and swelling properties of bovine flexor tendon. J Orthop Res. 5 (3), 414-424 (1987).
- Vogel, K. G., Koob, T. J. Structural specialization in tendons under compression. Int Rev Cytol. 115, 267-293 (1989).
- Vogel, K. G., Ordög, A., Pogány, G., Oláh, J. Proteoglycans in the compressed region of human tibialis posterior tendon and in ligaments. J Orthop Res. 11 (1), 68-77 (1993).
- Vogel, K. G., Sandy, J. D., Pogány, G., Robbins, J. R. Aggrecan in bovine tendon. Matrix Biol. 14 (2), 171-179 (1994).
- Robbins, J. R., Vogel, K. G. Regional expression of mRNA for proteoglycans and collagen in tendon. Eur J Cell Biol. 64 (2), 264-270 (1994).
- Vogel, K. Repetitive motion disorders of the upper extremity. Gordon, S. I., Blair, S. J., Fine, L. J. , American Academy of Orthopedic Surgeons, Michigan. (1995).
- Benjamin, M., Tyers, R. N., Ralphs, J. R. Age-related changes in tendon fibrocartilage. J Anat. 179, 127-136 (1991).
- Ralphs, J. R., Benjamin, M., Thornett, A. Cell and matrix biology of the suprapatella in the rat: a structural and immunocytochemical study of fibrocartilage in a tendon subject to compression. Anat Rec. 231 (2), 167-177 (1991).
- Rufai, A., Benjamin, M., Ralphs, J. R. Development and ageing of phenotypically distinct fibrocartilages associated with the rat Achilles tendon. Anat Embryol (Berl). 186 (6), 611-618 (1992).
- Rufai, A., Ralphs, J. R., Benjamin, M. Ultrastructure of fibrocartilages at the insertion of the rat Achilles tendon. J Anat. 189 (Pt 1), 185-191 (1996).
- Waggett, A. D., Ralphs, J. R., Kwan, A. P. L., Woodnutt, D., Benjamin, M. Characterization of collagens and proteoglycans at the insertion of the human achilles tendon. Matrix Biol. 16 (8), 457-470 (1998).
- Ralphs, J., et al. Regional differences in cell shape and gap junction expression in rat Achilles tendon: relation to fibrocartilage differentiation. J Anat. 193 (pt 2), 215-222 (1998).
- Milz, S., et al. Three-dimensional reconstructions of the Achilles tendon insertion in man. J Anat. 200 (Pt 2), 145-152 (2002).
- Tischer, T., Milz, S., Maier, M., Schieker, M., Benjamin, M. An immunohistochemical study of the rabbit suprapatella, a sesamoid fibrocartilage in the quadriceps tendon containing aggrecan. J Histochem Cytochem. 50 (7), 955-960 (2002).
- Esquisatto, M. A., Joazeiro, P. P., Pimentel, E. R., Gomes, L. The effect of age on the structure and composition of rat tendon fibrocartilage. Cell Biol Int. 31 (6), 570-577 (2007).
- Matuszewski, P. E., et al. Regional variation in human supraspinatus tendon proteoglycans: Decorin, biglycan, and aggrecan. Connect Tissue Res. 53 (5), 343-348 (2012).
- Buckley, M. R., Huffman, G. R., Iozzo, R. V., Birk, D. E., Soslowsky, L. J. The location-specific role of proteoglycans in the flexor carpi ulnaris tendon. Connect Tissue Res. 54 (6), 367-373 (2013).
- Gillard, G. C., Reilly, H. C., Bell-Booth, P. G., Flint, M. H. The influence of mechanical forces on the glycosaminoglycan content of the rabbit flexor digitorum profundus tendon. Connect Tissue Res. 7 (1), 37-46 (1979).
- Giori, N. J., Beaupre, G. S., Carter, D. R. Cellular shape and pressure may mediate mechanical control of tissue composition in tendons. J Orthop Res. 11 (4), 581-591 (1993).
- Wren, T. A., Beaupré, G. S., Carter, D. R. Mechanobiology of tendon adaptation to compressive loading through fibrocartilaginous metaplasia. J Rehabil Res Dev. 37 (2), 135-143 (2000).
- Malaviya, P., et al. An in vivo model for load-modulated remodeling in the rabbit flexor tendon. J Orthop Res. 18 (1), 116-125 (2000).
- Shim, J. W., Elder, S. H. Influence of Cyclic Hydrostatic Pressure on Fibrocartilaginous Metaplasia of Achilles Tendon Fibroblasts. Biomech Model Mechanobiol. 5 (4), 247-252 (2006).
- Koob, T. J., Clark, P. E., Hernandez, D. J., Thurmond, F. A., Vogel, K. G. Compression loading in vitro regulates proteoglycan synthesis by tendon fibrocartilage. Arch Biochem Biophys. 298 (1), 303-312 (1992).
- Evanko, S. P., Vogel, K. G. Proteoglycan Synthesis in Fetal Tendon Is Differentially Regulated by Cyclic Compression in Vitro. Arch Biochem Biophys. 307 (1), 153-164 (1993).
- Vogel, K. G. The effect of compressive loading on proteoglycan turnover in cultured fetal tendon. Connect Tissue Res. 34 (3), 227-237 (1996).
- Thornton, G. M., et al. Changes in mechanical loading lead to tendon specific alterations in MMP and TIMP expression: influence of stress deprivation and intermittent cyclic hydrostatic compression on rat supraspinatus and Achilles tendons. Br J Sports Med. 44 (10), 698-703 (2010).
- Robbins, J. R., Evanko, S. P., Vogel, K. G. Mechanical Loading and TGF-β Regulate Proteoglycan Synthesis in Tendon. Arch Biochem Biophys. 342 (2), 203-211 (1997).
- Docking, S., Samiric, T., Scase, E., Purdam, C., Cook, J. Relationship between compressive loading and ECM changes in tendons. Muscles Ligaments Tendons J. 3 (1), 7-11 (2013).
- Wang, X., et al. Aberrant TGF-β activation in bone tendon insertion induces enthesopathy-like disease. J Clin Invest. 128 (2), 846-860 (2018).
- Cong, G. T., et al. Evaluating the role of subacromial impingement in rotator cuff tendinopathy: Development and analysis of a novel murine model. J Orthop Res. 36 (10), 2780-2788 (2018).
- Liu, Y., et al. Evaluating the role of subacromial impingement in rotator cuff tendinopathy: development and analysis of a novel rat model. J Shoulder Elbow Surg. 31 (9), 1898-1908 (2022).
- Majima, T., et al. Compressive compared with tensile loading of medial collateral ligament scar in vitro uniquely influences mRNA levels for aggrecan, collagen type II, and collagenase. J Orthop Res. 18 (4), 524-531 (2000).
- Hopkins, C., et al. Critical review on the socio-economic impact of tendinopathy. Asia Pac J Sports Med, Arthrosc, Rehabil Technol. 4, 9-20 (2016).
- Scott, A., Ashe, M. C. Common tendinopathies in the upper and lower extremities. Curr Sports Med Rep. 5 (5), 233-241 (2006).
- Maffulli, N., Wong, J., Almekinders, L. C. Types and epidemiology of tendinopathy. Clin Sports Med. 22 (4), 675-692 (2003).
- Bah, I., et al. Tensile mechanical changes in the Achilles tendon due to Insertional Achilles tendinopathy. J Mech Behav Biomed Mater. 112, 104031(2020).
- Chondral Metaplasia in Calcific Insertional Tendinopathy of the Achilles Tendon. Clin J Sport Med. Maffulli, N., Reaper, J., Ewen, S. W. B., Waterston, S. W., Barrass, V. 16 (4), 329-334 (2006).
- Corps, A. N., et al. Increased expression of aggrecan and biglycan mRNA in Achilles tendinopathy. Rheumatology (Oxford). 45 (3), 291-294 (2006).
- Scott, A., et al. Increased versican content is associated with tendinosis pathology in the patellar tendon of athletes with jumper's knee. Scand J Med Sci Sports. 18 (4), 427-435 (2008).
- Attia, M., et al. Greater glycosaminoglycan content in human patellar tendon biopsies is associated with more pain and a lower VISA score. Br J Sports Med. 48 (6), 469-475 (2014).
- Kujala, U. M., Sarna, S., Kaprio, J. Cumulative Incidence of Achilles Tendon Rupture and Tendinopathy in Male Former Elite Athletes. Clin J Sport Med. 15 (3), 133-135 (2005).
- Corps, A. N., et al. Changes in matrix protein biochemistry and the expression of mRNA encoding matrix proteins and metalloproteinases in posterior tibialis tendinopathy. Ann Rheum Dis. 71 (5), 746-752 (2012).
- Neer, C. S. 2nd Anterior acromioplasty for the chronic impingement syndrome in the shoulder: a preliminary report. J Bone Joint Surg Am. 54 (1), 41-50 (1972).
- Bigliani, L. U., Ticker, J. B., Flatow, E. L., Soslowsky, L. J., Mow, V. C. The relationship of acromial architecture to rotator cuff disease. Clin Sports Med. 10 (4), 823-838 (1991).
- Chimenti, R. L., Cychosz, C. C., Hall, M. M., Phisitkul, P. Current Concepts Review Update Insertional Achilles Tendinopathy. Foot Ankle Int. 38 (10), 1160-1169 (2017).
- Nicholson, C. W., Berlet, G. C., Lee, T. H. Prediction of the Success of Nonoperative Treatment of Insertional Achilles Tendinosis Based on MRI. Foot Ankle Int. 28 (4), 472-477 (2007).
- Lohrer, H., David, S., Nauck, T. Surgical treatment for achilles tendinopathy - a systematic review. BMC musculoskelet disord. 17 (1), 207(2016).
- McGarvey, W. C., Palumbo, R. C., Baxter, D. E., Leibman, B. D. Insertional Achilles Tendinosis: Surgical Treatment Through a Central Tendon Splitting Approach. Foot Ankle Int. 23 (1), 19-25 (2002).
- Maffulli, N., et al. Surgery for chronic Achilles tendinopathy produces worse results in women. Disabil Rehabil. 30 (20-22), 1714-1720 (1714).
- Wunderli, S. L., Blache, U., Snedeker, J. G. Tendon explant models for physiologically relevant in vitro study of tissue biology - a perspective. Connect Tissue Res. 61 (3-4), 262-277 (2020).
- Dyment, N. A., et al. A brief history of tendon and ligament bioreactors: Impact and future prospects. J Orthop Res. 38 (11), 2318-2330 (2020).
- Screen, H. R. C., Berk, D. E., Kadler, K. E., Ramirez, F., Young, M. F. Tendon Functional Extracellular Matrix. J Orthop Res. 33 (6), 793-799 (2015).
- Theobald, P., et al. The functional anatomy of Kager's fat pad in relation to retrocalcaneal problems and other hindfoot disorders. J Anat. 208 (1), 91-97 (2006).
- Ghazzawi, A., Theobald, P., Pugh, N., Byrne, C., Nokes, L. Quantifying the motion of Kager's fat pad. J Orthop Res. 27 (11), 1457-1460 (2009).
- Malagelada, F., et al. Pressure changes in the Kager fat pad at the extremes of ankle motion suggest a potential role in Achilles tendinopathy. Knee Surg Sports Traumatol Arthrosc. 28 (1), 148-154 (2020).
- Shaw, H. M., Benjamin, M. Structure-function relationships of entheses in relation to mechanical load and exercise. Scand J Med Sci Sports. 17 (4), 303-315 (2007).
- Soslowsky, L. J., et al. Rotator cuff tendinosis in an animal model: role of extrinsic and overuse factors. Ann Biomed Eng. 30 (8), 1057-1063 (2002).
- Schneeberger, A. G., Nyffeler, R. W., Gerber, C. Structural changes of the rotator cuff caused by experimental subacromial impingement in the rat. J Shoulder Elbow Surg. 7 (4), 375-380 (1998).
- Croen, B. J., et al. Chronic subacromial impingement leads to supraspinatus muscle functional and morphological changes: Evaluation in a murine model. J Orthop Res. 39 (10), 2243-2251 (2021).
- Andarawis-Puri, N., Flatow, E. L. Tendon fatigue in response to mechanical loading. J Musculoskelet Neuronal Interact. 11 (2), 106-114 (2011).
- Gains, C. C., Giannapoulos, A., Zamboulis, D. E., Lopez-Tremoleda, J., Screen, H. R. C. Development and application of a novel in vivo overload model of the Achilles tendon in rat. J Biomech. 151, 111546(2023).
- Williamson, P. M., et al. A passive ankle dorsiflexion testing system to assess mechanobiological and structural response to cyclic loading in rat Achilles tendon. J Biomech. 156, 111664(2023).
- Pedaprolu, K., Szczesny, S. E. A Novel, Open-Source, Low-Cost Bioreactor for Load-Controlled Cyclic Loading of Tendon Explants. J Biomech Eng. 144 (8), 084505(2022).
- Orishimo, K. F., et al. Effect of Knee Flexion Angle on Achilles Tendon Force and Ankle Joint Plantarflexion Moment During Passive Dorsiflexion. J Foot Ankle Surg. 47 (1), 34-39 (2008).
- Liu, C. L., et al. Influence of different knee and ankle ranges of motion on the elasticity of triceps surae muscles, Achilles tendon, and plantar fascia. Sci Rep. 10 (1), 6643(2020).
- Cruz-Montecinos, C., et al. Soleus muscle and Achilles tendon compressive stiffness is related to knee and ankle positioning. J Electromyogr Kinesiol. 66, 102698(2022).
- Connizzo, B. K., Grodzinsky, A. J. Lose-dose administration of dexamethasone is beneficial in preventing secondary tendon damage in a stress-deprived joint injury explant model. J Orthop Res. 38 (1), 139-149 (2020).
- Wunderli, S. L., et al. Tendon response to matrix unloading is determined by the patho-physiological niche. Matrix Biol. 89, 11-26 (2020).
- Yabusaki, K., et al. A Novel Quantitative Approach for Eliminating Sample-To-Sample Variation Using a Hue Saturation Value Analysis Program. PloS one. 9 (3), e89627(2014).
- Gao, J., Messner, K., Ralphs, J. R., Benjamin, M. An immunohistochemical study of enthesis development in the medial collateral ligament of the rat knee joint. Anat Embryol. 194 (4), 399-406 (1996).
- Han, S. K., Wouters, W. A. J., Clark, A., Herzog, W. Mechanically induced calcium signaling in chondrocytes in situ. J Orthop Res. 30 (3), 475-481 (2012).
- Han, W., et al. Impact of cellular microenvironment and mechanical perturbation on calcium signalling in meniscus fibrochondrocytes. Eur Cell Mater. 27, 321-331 (2014).
- Rossetti, L., et al. The microstructure and micromechanics of the tendon-bone insertion. Nat Mater. 16 (6), 664-670 (2017).
- Sartori, J., Köhring, S., Witte, H., Fischer, M. S., Löffler, M. Three-dimensional imaging of the fibrous microstructure of Achilles tendon entheses in Mus musculus. J Anat. 233 (3), 370-380 (2018).
- Eliasberg, C. D., et al. Identification of Inflammatory Mediators in Tendinopathy Using a Murine Subacromial Impingement Model. J Orthop Res. 37 (12), 2575-2582 (2019).
- Zhang, Y., et al. Expression of alarmins in a murine rotator cuff tendinopathy model. J Orthop Res. 38 (11), 2513-2520 (2020).
- Zhang, X., et al. Assessment of Mitochondrial Dysfunction in a Murine Model of Supraspinatus Tendinopathy. J Bone Joint Surg. Am. 103 (2), 174-183 (2021).
- Liu, Y., et al. The role of Indian Hedgehog Signaling in tendon response to subacromial impingement: evaluation using a mouse model. Am J Sports Med. 50 (2), 362-370 (2022).
- Wang, T., et al. Load-induced regulation of tendon homeostasis by SPARC, a genetic predisposition factor for tendon and ligament injuries. Sci Transl Med. 13 (582), eabe5738(2021).
- Passini, F. S., et al. Shear-stress sensing by PIEZO1 regulates tendon stiffness in rodents and influences jumping performance in humans. Nat Biomed Eng. 5 (12), 1457-1471 (2021).
- Jones, D. L., et al. Mechanoepigenetic regulation of extracellular matrix homeostasis via Yap and Taz. Proc Natl Acad Sci U S A. 120 (22), e2211947120(2023).
- Connizzo, B. K., Grodzinsky, A. J. Release of pro-inflammatory cytokines from muscle and bone causes tenocyte death in a novel rotator cuff in vitro explant culture model. Connect Tissue Res. 59 (5), 423-436 (2018).
- Rees, S. G., et al. Catabolism of aggrecan, decorin and biglycan in tendon. Biochem J. 350 (Pt 1), 181-188 (2000).
- Samiric, T., Ilic, M. Z., Handley, C. J. Large aggregating and small leucine-rich proteoglycans are degraded by different pathways and at different rates in tendon. Eur J Biochem. 271 (17), 3612-3620 (2004).
- Rees, S. G., Curtis, C. L., Dent, C. M., Caterson, B. Catabolism of aggrecan proteoglycan aggregate components in short-term explant cultures of tendon. Matrix Biol. 24 (3), 219-231 (2005).
- Taye, N., Karoulias, S. Z., Hubmacher, D. The "other" 15-40%: The Role of Non-Collagenous Extracellular Matrix Proteins and Minor Collagens in Tendon. J Orthop Res. 38 (1), 23-35 (2020).
- Carvalho, H. F., Felisbino, S. L. The development of the pressure-bearing tendon of the bullfrog, Rana catesbeiana. Anat Embryol. 200 (1), 55-64 (1999).
- Carvalho, H. F., Felisbino, S. L., Covizi, D. Z., Della Colleta, H. H., Gomes, L. Structure and proteoglycan composition of specialized regions of the elastic tendon of the chicken wing. Cell Tissue Res. 300 (3), 435-446 (2000).
- van Sterkenburg, M. N., Kerkhoffs, G. M., Kleipool, R. P., Niek van Dijk, C. The plantaris tendon and a potential role in mid-portion Achilles tendinopathy: an observational anatomical study. J Anat. 218 (3), 336-341 (2011).
- Lee, A. H., Elliott, D. M. Comparative multi-scale hierarchical structure of the tail, plantaris, and Achilles tendons in the rat. J Anat. 234 (2), 252-262 (2019).
- Lee, A. H., Elliott, D. M. Multi-Scale Loading and Damage Mechanisms of Plantaris and Rat Tail Tendons. J Orthop Res. 37 (8), 1827-1837 (2019).
- Fan, H. M., Shrestha, L., Guo, Y., Tao, H. R., Sun, Y. L. The twisted structure of the rat Achilles tendon. J Anat. 239 (5), 1134-1140 (2021).
- Cutlip, R. G., Stauber, W. T., Willison, R. H., McIntosh, T. A., Means, K. H. Dynamometer for rat plantar flexor muscles in vivo. Med Biol Eng Comput. 35 (5), 540-543 (1997).
- Rijkelijkhuizen, J. M., Baan, G. C., de Haan, A., de Ruiter, C. J., Huijing, P. A. Extramuscular myofascial force transmission for in situ rat medial gastrocnemius and plantaris muscles in progressive stages of dissection. J Exp Biol. 208 (Pt 1), 129-140 (2005).
- Saxena, A., Bareither, D. Magnetic Resonance and Cadaveric Findings of the Incidence of Plantaris Tendon. Foot Ankle Int. 21 (7), 570-572 (2000).
- dos Santos, M. A., Bertelli, J. A., Kechele, P. R., Duarte, H. Anatomical study of the plantaris tendon: reliability as a tendo-osseous graft. Surg Radiol Anat. 31 (1), 59-61 (2009).
- Sartori, J., Köhring, S., Bruns, S., Moosmann, J., Hammel, J. U. Gaining Insight into the Deformation of Achilles Tendon Entheses in Mice. Adv Eng Mater. 23 (11), 2100085(2021).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
