Ten protokół opisuje zbieranie w terenie i regularną konserwację laboratoryjną substratów obsianych gigantycznymi wodorostami tworzącymi baldachim do wykorzystania w próbach rekultywacji, aby rozwiązać sukces i ograniczenia techniki "zielonego żwiru" w warunkach polowych.
Artykuł metodologiczny
Zbieranie w terenie i konserwacja laboratoryjna gigantycznych wodorostów tworzących baldachim w celu ułatwienia odbudowy
W tym artykule
Podsumowanie
Streszczenie
Wodorosty tworzące korony drzew są niezbędnymi gatunkami podstawowymi, wspierającymi bioróżnorodność i świadczącymi usługi ekosystemowe o wartości ponad 500 miliardów dolarów rocznie. Globalny spadek liczebności gigantycznych lasów wodorostów spowodowany ekologicznymi czynnikami stresogennymi spowodowanymi zmianami klimatu podkreśla potrzebę opracowania innowacyjnych strategii odbudowy. Pojawiająca się technika odbudowy, znana jako "zielony żwir", ma na celu wysiewanie młodych wodorostów na dużych obszarach bez intensywnej pracy podwodnej i stanowi obiecujące narzędzie do odbudowy ze względu na opłacalność i skalowalność. Ten artykuł wideo ilustruje protokół i narzędzia do hodowli gigantycznych wodorostów, Macrocystis pyrifera. Stanowi również źródło informacji dla dalszych badań mających na celu omówienie sukcesów i ograniczeń tej metody w warunkach terenowych. Przedstawiamy terenowe i laboratoryjne metody zbierania tkanki rozrodczej, zarodnikowania, inokulacji, hodowli, utrzymania i monitorowania substratów wysianych we wczesnych stadiach rozwojowych przy użyciu techniki "zielonego żwiru". Protokół upraszcza i centralizuje obecne praktyki rekultywacyjne w tej dziedzinie, aby wspierać badaczy, menedżerów i interesariuszy w osiąganiu celów ochrony wodorostów.
Wprowadzenie
Wodorosty tworzące baldachim (brązowe makroalgi w rzędzie Laminariales) są globalnie ważnymi gatunkami podstawowymi, dominującymi na przybrzeżnych skalistych rafach w morzach umiarkowanych i arktycznych1. Te wodorosty tworzą strukturalnie złożone i wysoce produktywne siedliska biogenne znane jako lasy wodorostów, które wspierają zróżnicowane taksonomicznie społeczności morskie2. Lasy wodorostów na całym świecie zapewniają ludziom wiele usług ekosystemowych, w tym komercyjną produkcję rybną, obieg węgla i składników odżywczych oraz możliwości rekreacyjne, o łącznej szacowanej wartości 500 miliardów USD rocznie3.
Pomimo swojej znacznej wartości, lasy wodorostów w wielu regionach są narażone na rosnące naciski antropogeniczne3. Zmiany klimatyczne stanowią jedno z największych zagrożeń dla wodorostów ze względu na długotrwałe ocieplenie oceanów w połączeniu z rosnącą częstotliwością anomalii temperaturowych3,4,5,6,7. Wzrost temperatury oceanów wiąże się z ograniczeniem składników odżywczych8, podczas gdy narażenie na stres cieplny powyżej progów fizjologicznych może skutkować śmiertelnością9. W połączeniu ze zmiennymi regionalnymi lokalnymi czynnikami stresogennymi7, populacje wodorostów globalnie zmniejszają się o około 2% rocznie10 ze znacznymi stratami i trwałymi zmianami do alternatywnych stanów społeczności w niektórych regionach6,11,12,13,14. Sama naturalna odbudowa populacji wodorostów może nie wystarczyć do odwrócenia zakresu obecnych i prognozowanych strat15,16,17,18, podkreślając znaczenie aktywnej odbudowy.
Obecne wysiłki na rzecz odbudowy wodorostów mogą wykorzystywać kombinację metodologii do przywrócenia tych ważnych gatunków fundamentowych na przybrzeżnych skalistych rafach3,19. Metodologie wybrane w celu rozwiązania problemów specyficznych dla danego miejsca zależą od kontekstu geograficznego, konkretnych przeszkód w odbudowie wodorostów oraz kontekstu społeczno-ekologicznego11. Zrozumienie powiązań i współzależności systemów społeczno-ekologicznych jest kluczowe, a interwencje, które angażują lokalne instytucje i uzyskują wsparcie lokalnych społeczności, zwiększają prawdopodobieństwo udanych działań rekultywacyjnych20.
Oprócz zmian klimatycznych, presja roślinożerców lub konkurencja międzygatunkowa napędza, zmniejsza lub hamuje odbudowę (np. przez jeżowce13, ryby roślinożerne21,22, glony darniowe9,23, lub inwazyjne glony24). Odbudowa może koncentrować się na usuwaniu tych stresorów biotycznych25, chociaż metody te wymagają znacznych zasobów i ciągłego utrzymania11. Aby katalizować odbudowę gatunków wodorostów, podjęto wysiłki w kierunku podejścia do siewu bezpośredniego, na przykład ważąc worki siatkowe wypełnione żyznymi ostrzami wodorostów do bentosu, który uwalnia zoospory do środowiska26. Metoda ta jest jednak czasochłonna i wymaga technicznej instalacji i demontażu pod wodą. Inne przypadki koncentrują się na przesadzaniu dużych ilości całych dorosłych roślin dawców, co może zagrozić blisko powiązanym i wrażliwym populacjom dawców i często ogranicza się do małych skali ze względu na poleganie na ciągłym przeszczepianiu27.
Dla regionów, gdzie ograniczenie zarodników wodorostów może utrudniać regenerację lasów wodorostów z powodu fragmentacji siedlisk, wprowadzono stosunkowo nowe podejście do odtwarzania wodorostów zwane techniką 'zielonego żwiru'. Technika ta została z powodzeniem przetestowana w Stacji Badawczej Flødevigen w południowej Norwegii28 i stanowiła obiecującą opcję renowacji ze względu na opłacalność i skalowalność. Przebieg pracy tej techniki jest następujący: (1) roztwór zarodników jest tworzony z żyznej tkanki pobranej z rozrodczych dorosłych wodorostów na polu, a następnie wysiewany na małe podłoża, takie jak żwir; (2) wodorosty we wczesnym stadium hodowli są hodowane w kontrolowanych laboratoryjnie warunkach abiotycznych na podłożach; (3) Substraty z widocznymi sporofitami są rozmieszczane w terenie na określonych rafach jako "zielony żwir", gdzie sporofity nadal się rozwijają. Zauważ, że typowe wysiłki transplantacyjne dorosłych osobników wymagają pracochłonnej i kosztownej instalacji podwodnej przez nurków, a technika "zielonego żwiru" wykorzystuje proste rozmieszczenie z powierzchni28.
Technika 'zielonego żwiru' jest obecnie testowana przez członków licznych międzynarodowych grup roboczych29 w różnych środowiskach i kilku gatunkach wodorostów laminarnych. Protokół ten opisuje wymagane obiekty, materiały i metody pobierania tkanek, zarodnikowania, siewu, warunków hodowli, regularnej konserwacji i monitorowania wodorostów we wczesnym stadium przed zastosowaniem tej techniki odbudowy w terenie przy użyciu gigantycznych wodorostów, Macrocystis pyrifera. Protokół ten jest cennym źródłem informacji dla badaczy, menedżerów i interesariuszy, którzy chcą uzyskać wgląd w sukcesy i ograniczenia tej metody z M. pyrifera w różnych warunkach terenowych.
Protokół
Tkanki wodorostów użyte zgodnie z opisem w tym protokole zostały zebrane i nadzorowane przez Kalifornijski Departament Ryb i Dzikiej Przyrody na podstawie zezwolenia S-202020004-20205-001.
1. Przygotowanie obiektów i materiałów
- Upewnij się, że urządzenia do hodowli wodorostów mogą utrzymywać temperaturę (10-15 °C), zapewniać pełne spektrum światła (0-180 μmol fotonów m-2 s-1) i napowietrzać filtr (wielkość porów 0,2 μm). Używaj systemów inkubatorów z wbudowanym gniazdkiem lub portem dostępowym do przewodów i przewodów, świateł i źródła powietrza (Rysunek 1). Jeśli system inkubatora nie mieści się w zakresie projektu, budżecie lub zamierzonej skali, należy użyć kąpieli wodnych hartowanych chłodną, naturalną wodą morską lub agregatem chłodniczym (Rysunek 2). Szczegółowe informacje można znaleźć w Tabeli materiałów.
- Umieść termometr w pożywce wzrostowej lub użyj pistoletu do pomiaru temperatury, aby upewnić się, że temperatura wynosi 10-18 °C.
UWAGA: Temperatury chowu są zależne od miejsca i pory roku30. - Zaprogramuj światła o pełnym spektrum na fotoperiod 12 h światła: 12 h ciemności, zmieniając ustawienia czasu w źródle światła lub wykorzystując mechaniczny timer. Zmierz natężenie światła za pomocą wodoodpornego miernika kwantowego promieniowania aktywnego fotosyntetycznie (PAR) pod powierzchnią w pobliżu żwiru i wyreguluj za pomocą ściemnialnego źródła światła lub nakładając warstwy celofanu (w przypadku wegetatywnej hodowli gametofitów, patrz sekcja 9) lub siatkę na źródle światła (szczegółowe informacje na temat regulacji natężenia światła, patrz sekcja 6.3).
- Zapewnij prawidłowe napowietrzenie za pomocą pomp powietrznych31 dzień po zarodnikowaniu. Używaj filtrów (wielkość porów 0,2 μm), aby zmniejszyć zanieczyszczenie bakteryjne przenoszone przez powietrze.
UWAGA: W przypadku hodowli "zielonego żwiru" ciśnienie napowietrzania musi być wystarczające, aby zapewnić cyrkulację wody we wszystkich pojemnikach hodowlanych, nie zakłócając jednocześnie przyczepiania wodorostów we wczesnym stadium do wysiewanych substratów. Jeżeli obecna jest wypełniająca biomasa gametofitów (patrz sekcja 9.2), ciśnienie napowietrzania musi być wystarczające do utrzymania gametofitów zawieszonych w pożywkach hodowlanych.
- Umieść termometr w pożywce wzrostowej lub użyj pistoletu do pomiaru temperatury, aby upewnić się, że temperatura wynosi 10-18 °C.
- Sterylizuj materiały i stacje. Przygotuj je z wyprzedzeniem (patrz Tabela materiałów).
- Oczyść powierzchnie za pomocą 70% alkoholu izopropylowego. Jeśli to możliwe, należy obchodzić się z tkanką rozrodczą i czystym sprzętem do zbierania na zewnątrz szkółki "zielony żwir".
- Zastosuj następujące metody sterylizacji: spłucz detergentem laboratoryjnym, a następnie dokładnie spłucz wodą destylowaną, zanurz w rozcieńczonym roztworze wybielacza (zgodnie z instrukcjami producenta), a następnie dokładnie spłucz wodą destylowaną i autoklaw przy użyciu odpowiednich ustawień (szkło lub instrumenty). Po sterylizacji materiały można przechowywać w szczelnie zamkniętym pojemniku lub owinąć folią.
- Wyszoruj i wyczyść pojemniki z pokrywkami, które mają być używane do hodowli, za pomocą detergentu klasy laboratoryjnej, a następnie dokładnie spłucz wodą destylowaną.
UWAGA: Pojemniki hodowlane z pokrywką pomogą zmniejszyć parowanie pożywki wzrostowej. Pozostaw pokrywy lekko uchylone, aby umożliwić wymianę powietrza, lub użyj zaworu zwrotnego, aby zmniejszyć zanieczyszczenie powietrza. Jeśli pojemniki z pokrywką nie są dostępne, należy uszczelnić pojemniki hodowlane tworzywem termoplastycznym, takim jak folia parafinowa, i wykonać 2-3 perforacje. Jeśli używane są większe zbiorniki, należy użyć osłon zapobiegających parowaniu wykonanych z przezroczystego tworzywa sztucznego. - Upewnij się, że żwir ma teksturowaną lub lekko podziurawioną powierzchnię, ponieważ jest bardziej prawdopodobne, że gametofity zostaną zatrzymane na podłożach o wysokiej chropowatości32,33. Wyszoruj i spłucz żwir, aż woda będzie czysta, aby usunąć kurz i zanieczyszczenia. Namocz żwir w 10% rozcieńczonym roztworze wybielacza przez co najmniej 24 godziny i spłucz wysterylizowaną wodą morską z filtrem (patrz sekcja 2.1). Alternatywnie, po szorowaniu i spłukaniu, namocz żwir przez 1 tydzień w wodzie dejonizowanej (DI)32.
UWAGA: Idealnie byłoby, gdyby podłoże zbierane lokalnie było używane w celu zmniejszenia zanieczyszczenia miejsca rekultywacji. Alternatywnie zalecany jest żwir akwariowy. Unikaj podłoży wapiennych, takich jak wapień, które mogą prowadzić do blaknięcia tkanek i późniejszej śmiertelności przeszczepionych wodorostów32.
2. Przygotowanie podłoża wzrostowego
- Filtruj i sterylizuj wodę morską zgodnie z poniższymi metodami, w zależności od dostępności zasobów. Oblicz objętość wysterylizowanej przez filtr wody morskiej potrzebnej do odświeżenia pojemników do hodowli każdego tygodnia (patrz sekcja 7) i odpowiednio zaplanuj to zadanie filtracji/sterylizacji. Przechowuj duże partie wysterylizowanej przez filtr wody morskiej w ciemnych pojemnikach przez okres do 6 miesięcy w temperaturze 8-10 °C. Jeśli chłodzenie nie jest dostępne, przechowuj w ciemnym, chłodnym miejscu.
- Filtruj wodę za pomocą systemu filtracji próżniowej o wielkości porów 0,55-1 μm. Wyłącz źródło podciśnienia przed przeciągnięciem całej wody, aby uniknąć uszkodzenia filtra, a przefiltrowaną wodę wlej do dedykowanego sterylnego pojemnika. W przypadku większych objętości należy użyć przepływowego systemu filtracji. Na przykład przepuść wodę morską przez szereg trzech harmonijkowych filtrów (10 μm, 5 μm i 1 μm) rozmieszczonych od największego do najmniejszego rozmiaru porów.
UWAGA: Jeśli naturalna woda morska nie jest dostępna, można przygotować sztuczną wodę morską. Alternatywnie, naturalną wodę morską można kupić w sklepach akwarystycznych, luzem i często jest filtrowana, odkażana i ma zrównoważone pH. W przypadku tych opcji nadal konieczne jest wzbogacenie nośnika. - Sterylizuj przefiltrowaną wodę morską metodami UV i/lub autoklawowania. Podłącz systemy przepływowe do lampy UV w akwarium o natężeniu przepływu zalecanym przez producenta. Autoklaw wody morskiej w szklanym naczyniu bezpiecznym dla autoklawu z lekko otwartymi pokrywkami lub pokrytymi folią i w cyklu płynów (121°C; 1-2 PSI, 15-30 min w zależności od objętości płynu34.
UWAGA: Autoklawowanie przefiltrowanej wody morskiej jest zalecane we wczesnych stadiach hodowli.
- Filtruj wodę za pomocą systemu filtracji próżniowej o wielkości porów 0,55-1 μm. Wyłącz źródło podciśnienia przed przeciągnięciem całej wody, aby uniknąć uszkodzenia filtra, a przefiltrowaną wodę wlej do dedykowanego sterylnego pojemnika. W przypadku większych objętości należy użyć przepływowego systemu filtracji. Na przykład przepuść wodę morską przez szereg trzech harmonijkowych filtrów (10 μm, 5 μm i 1 μm) rozmieszczonych od największego do najmniejszego rozmiaru porów.
- Wzbogacenie sterylizowanej przez filtr wody morskiej w składniki odżywcze i witaminy ma kluczowe znaczenie dla wzrostu M. pyrifera. Pożywka wzbogacona wodą morską Provasoli (PES) jest szeroko stosowaną pożywką przeznaczoną do hodowli glonów35. Kup to podłoże w ośrodkach hodowli glonów. Preparaty PES i dodatkowych witamin dla wzrostu M. pyrifera są opisane w34.
- Wzbogać każdy 1 l przefiltrowanej wody morskiej o 20 ml PES. Alternatywnie użyj pożywek do hodowli na poziomie przemysłowym.
- Roztwory uszlachetniające należy przechowywać zgodnie z zaleceniami producenta. Wzbogacaj sterylizowaną filtrem wodę morską, gdy potrzebne jest podłoże wzrostowe, aby uniknąć degradacji roztworów wzbogacających.
3. Kolekcja pól
- Określ czas zbierania sporofilów, aby naśladować naturalny cykl rozrodczy lokalnych populacji M. pyrifera. Skonsultuj się z lokalnymi ekspertami (np. badaczami wodorostów, menedżerami, ekologami, naukowcami-obywatelami, grupami nurkowymi), aby zapewnić odpowiedni czas na zbieranie sporofilu.
- Uzyskaj niezbędne pozwolenia na pobieranie tkanki wodorostów, które są zgodne z lokalnymi przepisami i regulacjami. Może to być czasochłonna część procesu hodowli i musi zostać uwzględniona w harmonogramie projektu.
- Za pomocą niezależnego podwodnego aparatu oddechowego (SCUBA) wybrać 3-5 ostrzy sporofilu spośród 10-15 płodnych osobników M. pyrifera z widocznymi sori, oddalonymi od siebie o co najmniej 2 m. Wybierz czyste i nienaruszone sporofile, jeśli to możliwe, z niewielkim lub zerowym zanieczyszczeniem lub degradacją. Od tego momentu należy przechowywać ostrza sporofilu oddzielnie w zależności od osoby rodzicielskiej.
UWAGA: Sporofile rosną w gęstej "spódnicy" u podstawy, powyżej uchwytu dorosłego wodorostu, i można je rozpoznać po braku wypełnionych gazem pneumatocyst 1. Dojrzała tkanka sorus jest często lekko wypukła i ma ciemniejszy kolor niż otaczająca tkanka1. - Ostrza sporofilu należy transportować w ciemnych workach zbiorczych, aby uniknąć nadmiernej ekspozycji na światło słoneczne, przy minimalnej ilości wody morskiej z miejsca, aby ostrza były mokre, i przechowywać w chłodziarkach w temperaturze około 12 °C do czasu przybycia do miejsca hodowli. Upewnij się, że próbki nie mają bezpośredniego kontaktu z lodem.
UWAGA: Sporofile mogą być wysyłane do lub z innych lokalizacji.- Opłucz sporofile wodą morską. Owiń ostrza, zebrane od pojedynczego osobnika M. pyrifera, w wilgotne ręczniki papierowe nasączone wodą morską i ponownie w folię aluminiową, aby uniknąć przenikania światła i dodatkowego wysuszenia36. Ta metoda przechowywania jest powszechnie znana jako "metoda burrito".
- Umieść te paczki w chłodziarce z lodem, z barierą ochronną, taką jak folia bąbelkowa z recyklingu lub karton. Przygotuj lodówkę do wysyłki przez noc. Upewnij się, że ktoś jest dostępny, aby odebrać przesyłkę i umieścić paczki w lodówce.
4. Zarodnikowanie
- Jeśli to możliwe, przetwarzaj sporofile w środowisku o kontrolowanej temperaturze między 10-15 °C i z dala od innych kultur. Przygotuj i wysterylizuj instrumenty i stacje z wyprzedzeniem. Podczas obchodzenia się z tkanką wodorostów należy nosić rękawice ochronne, aby zmniejszyć zanieczyszczenie.
- Opcjonalnie przechowuj sporofile przez 12-48 godzin w warunkach chłodniczych, zachęcając do uwalniania zarodników z sorus tissue37. Do przechowywania należy stosować "metodę burrito" opisaną w sekcji 3.3.
- Wybierz dojrzałą tkankę sorus i pokrój ją na 25 cm2 sekcje za pomocą sterylnych nożyczek. Wybierz 1-2 czyste skrawki sori od 10-15 indywidualnych rodziców wodorostów, aby promować różnorodność genetyczną.
UWAGA: W przypadku przechowywania opcjonalnie znajdź dowody częściowego zarodnikowania na ręcznikach papierowych, wskazując na obecność płodnej tkanki sorusa. Tkanka Sorus jest często lekko uniesiona i ciemniejsza niż otaczająca tkanka. - Aby wyczyścić, delikatnie wyszoruj obie strony tkanki sorus tylko w jednym kierunku sterylną gazą zwilżoną wysterylizowaną wodą morską z filtrem. W razie potrzeby delikatnie zeskrob tkankę sorus sterylną żyletką, aby całkowicie usunąć zanieczyszczenia. Zanurz sekcję sori w kąpieli słodkowodnej na 30 s do 1 minuty i spłucz wysterylizowaną wodą morską z filtrem.
UWAGA: Odśwież kąpiel słodkowodną i wysterylizuj materiały używane podczas pracy z różnymi sekcjami sori od różnych osób, aby zmniejszyć zanieczyszczenie krzyżowe. - Zanurz każdą sekcję sori w wysterylizowanej przez filtr wodzie morskiej o temperaturze 10-15 °C w sterylnej probówce wirówkowej o pojemności 50 ml. Umieścić probówki w temperaturze 4-12 °C w ciemności do zarodnikowania przez maksymalnie 4 godziny. Jeśli lodówka jest niedostępna, przechowuj ją w chłodnym miejscu o słabym oświetleniu.
UWAGA: Alternatywnie, skrawki sori można zarodnikować w jednym, sterylnym pojemniku. - Za pomocą mikroskopu złożonego i hemocytometru obserwuj gęstość zarodników w 3-4 próbkach co 30 minut do 4 godzin. Zmieniaj końcówki pipet między próbkami. Jeśli gęstość wynosi co najmniej 10 000 zarodników mL-1 (patrz sekcja 5.1.1), przejdź do następnego kroku. Jeśli po 4 godzinach w skrawku sori nie ma zarodników, należy wyrzucić próbkę. Zarodniki mogą osiąść w ciągu kilku godzin po uwolnieniu, ale można je zaobserwować pływając w ruchu okrężnym.
- Usuń każdą cząstkę sori z probówek za pomocą sterylnej pęsety. Połącz powstałe roztwory zarodników w jednym, wysterylizowanym pojemniku i określ ilościowo ostateczną łączną gęstość.
5. Szczepienie
- Oblicz końcową objętość roztworu zarodników potrzebnego do zaszczepienia. Upewnij się, że końcowe stężenie wynosi około 500-1,000 zarodników mL−1 w pojemnikach hodowlanych.
- Aby obliczyć stężenie połączonej próbki zarodników na podstawie zliczeń środkowej siatki hemocytometru, podziel liczbę przez 10-4 ml (reprezentujące objętość roztworu oglądaną w hemocytometrze).
- Aby określić objętość roztworu zarodników, który należy dodać do każdego pojemnika, określ ilość pożywki wzrostowej potrzebnej do zanurzenia substratów w pojemnikach hodowlanych.
- Aby znaleźć całkowitą liczbę zarodników w każdym pojemniku, pomnóż tę objętość wody morskiej przez pożądane stężenie.
- Aby określić całkowitą objętość roztworu zarodników, który ma zostać dodany, należy podzielić całkowitą ilość zarodników przez stężenie zarodników na ml w roztworze zarodników.
- Umieść sterylne szklane szkiełko (szkiełka) w pojemnikach hodowlanych, aby monitorować rozwój wodorostów. Należy dołączyć co najmniej 30 szkiełek rozmieszczonych losowo w pojemnikach hodowlanych w celu wystarczającego monitorowania (zob. szczegółowe informacje w sekcji 7).
- Zaszczepić obliczoną objętość roztworu zarodników do pojemnika hodowlanego za pomocą sterylnej końcówki pipety, która zawiera substraty zanurzone w pożywce wzrostowej. Zamknij pojemnik i delikatnie wymieszaj, aby rozprowadzić zarodniki. Zamknij i umieść pojemnik w systemie hodowli.
6. Warunki chowu
- Ustaw temperaturę w zakresie 10-15 °C w zależności od temperatury w miejscu wdrożenia.
- Po 1 dniu zapewnić lekkie napowietrzanie za pomocą przefiltrowanego źródła powietrza.
- Ustaw światła LED o pełnym spektrum dla roślin wodnych na 12-godzinny cykl świetlny: 12-godzinny cykl ciemny, o natężeniu światła w zakresie 0-180 μmol foton m-2 s-1:
- Ustaw natężenie światła na 5-10 μmol fotonu m-2 s-1 od 0-1 dnia i zwiększ do 20 - 30 μmol fotonu m-2 s-1 do końca 1 tygodnia.
- Od tego momentu należy zwiększać natężenie promieniowania o 10-20 μmol fotonu m-2 s-1 co 3-4 dni, aż do osiągnięcia natężenia promieniowania 180 μmol fotonu m-2 s-1 pod koniec 6 tygodni.
- Kontynuuj hodowlę kultur w temperaturze 180 μmol fotonu m-2 s-1 do końca 8 tygodni lub gdy sporofity osiągną około 1-2 cm długości.
7. Monitorowanie
- Monitoruj co najmniej dwa losowe szkiełka dziennie/co drugi dzień przez pierwsze dwa tygodnie, aby ocenić rozwój.
- Aby monitorować, obejmij się ze szkiełkiem za pomocą wysterylizowanej pęsety i umieść go na czystej szalce Petriego zawierającej wystarczającą ilość wysterylizowanej wody morskiej, aby zanurzyć szklane szkiełko. Nie należy zwracać szkiełek szklanych do kultur po ich wyjęciu, aby uniknąć zanieczyszczenia krzyżowego.
- Użyj mikroskopu złożonego lub odwróconego o powiększeniu 40-400x, aby obserwować wodorosty we wczesnym stadium. Śledź rozwój za pomocą następującej osi czasu (patrz rysunek 3, aby zapoznać się z przykładami etapów historii rozwoju).
UWAGA: Osiadłe zarodniki obserwuje się w temperaturze 0-1 d. Zarodniki mogą wykiełkować w ciągu kilku godzin, o czym świadczy utworzenie rurki zarodkowej. Kiełkowanie obserwuje się zwykle w wieku 1-2 dni. Wczesne gametofity są zwykle obserwowane w wieku 1-4 dni. Gametogeneza, proces, w którym komórki przechodzą podział i różnicowanie w celu utworzenia gamet męskich i żeńskich, jest zwykle obserwowana w ciągu pierwszych dwóch tygodni. Komórki żeńskie są 5-7 razy większe niż męskie. Samce gametofitów mają cienkie, nitkowate gałęzie, podczas gdy samice są bardziej okrągłe lub jajowate. Samice zazwyczaj produkują jaja lub komórki jajowe w ciągu 2-3 tygodni. Plemniki uwolnione od samców dopływają do samic i zapładniają jaja, co powoduje powstawanie diploidalnych zygot. Odpowiednia gęstość inokulacji zapewni pomyślne rozmnażanie przez bliskość38,39. Zapłodnione jaja rozwijają się w embrionalne sporofity. Sporofity obserwuje się zwykle w ciągu 2-4 tygodni. Zygota ulega szybkiemu podziałowi komórkowemu, w wyniku czego w ciągu około 6-8 tygodni powstają 1-2 cm blaszki.
- Po dwóch tygodniach monitoruj co najmniej dwa losowe szkiełka 1-2 razy w tygodniu pod kątem zdrowego wzrostu i zanieczyszczenia, aż sporofity osiągną rozmiar 1-2 cm.
UWAGA: Zdrowy wzrost charakteryzuje się złocistobrązowym (w przeciwieństwie do zielonego lub przezroczystego) ubarwieniem. Istnieje kilka wskaźników ilościowych, które można zaobserwować na szkiełkach za pomocą odwróconego mikroskopu, w tym przeżywalność, szybkość kiełkowania, rozwój wegetatywny, dojrzałość reprodukcyjną i płodność oraz stosunek płci40. - Oceń zanieczyszczenie bakteriami, grzybami, orzęskami i okrzemkami za pomocą mikroskopu. Usuń izolowane zanieczyszczenia. Wczesne objawy zanieczyszczenia okrzemek należy kontrolować za pomocą ditlenku germanu (GeO2) (patrz punkt 8.3).
8. Konserwacja
- Dostosuj warunki oświetleniowe zgodnie z sekcją 6.3.
- Co tydzień zmieniaj pożywkę wzrostową, aby uzupełnić niezbędne składniki odżywcze i minerały do wzrostu M. pyrifera.
- Schłodzić świeżą pożywkę wzrostową do odpowiedniej temperatury. Upewnij się, że podczas tego procesu temperatura nie przekracza 15 °C.
- Wysysać pożywkę z pojemników do hodowli, aby uniknąć naruszania wysianych substratów. Pozwól nośnikowi spłynąć, aż pojemnik będzie prawie pusty. Natychmiast odśwież nośnik, aby zminimalizować wysuszenie. Podczas napełniania pojemników wzrostowych należy je lekko przechylić, tak aby pożywka spływała po boku pojemnika do hodowli, aby w minimalnym stopniu naruszyć substraty.
- Losowo zmieniaj pozycje pojemników lub wanien podczas cotygodniowych zmian pożywki, aby uwzględnić różnice w natężeniu światła.
UWAGA: Zobacz plik uzupełniający 1, aby zapoznać się z kalendarzem do śledzenia działań i oczekiwań dotyczących posiewów Macrocystis. Wskazuje czas regulacji światła i napowietrzania, a także tygodniowe zmiany mediów.
- Opcjonalnie należy kontrolować zanieczyszczenie okrzemek za pomocą ditlenku germanu (GeO2). Dodaj 0,3-0,5 ml 250 mg/ml GeO2 do każdego 1 litra wody morskiej dodanej do wysiewanych substratów, aby zmniejszyć powszechne zanieczyszczenie okrzemkami.
UWAGA: GeO2 może hamować produkcję gamet glonów. Zastosować obróbkę GeO2 w krótkim oknie po wykiełkowaniu i przed szczytami produkcji jaj i plemników (1-7 d) i/lub po zapłodnieniu jaj i obserwacjach sporofitów (>21 d), a następnie zmienić pożywkę 48 godzin po usunięciu substancji chemicznej. Te ramy czasowe mogą się różnić w zależności od warunków hodowli, więc monitorowanie rozwoju etapu życia za pomocą mikroskopii jest najlepszym sposobem oceny czasu aplikacji GeO2. Jeśli zanieczyszczenie okrzemkami utrzymuje się w pojemnikach hodowlanych i obserwuje się przerost wodorostów we wczesnym stadium, należy rozważyć ponowne wysianie substratów.
9. Hodowla wegetatywnych gametofitów z wodorostów
- Rozmnażaj kultury gametofitów w warunkach wegetatywnych przez cały rok, aby zmniejszyć zależność od sezonowego zbierania sporofilu z naturalnej rafy.
- Przechowywać kultury gametofitów zgodnie z populacją źródłową w kolbach wypełnionych pożywką wzrostową w temperaturze 4–12 °C w świetle czerwonym o intensywności 5–20 μmol fotonu m-2 s-1 w cyklu 12 światła: 12 ciemności.
- Zapewnij stałe napowietrzanie i zmieniaj media co 2-6 miesięcy.
- Aby zwiększyć biomasę gametofitów, które rosły bezpłciowo w celu wykorzystania do siewu "zielonego żwiru", należy zwiększyć napowietrzanie w celu zawieszenia gametofitów, zwiększyć częstotliwość zmian pożywki do tygodniowej i rozdrobnić gametofity co dwa tygodnie.
- Zawiesić biomasę gametofitów w kolbie hodowlanej, potrząsając lub mieszając, i w razie potrzeby zeskrobać boki kolby hodowlanej sterylnym narzędziem w celu usunięcia przyczepionych gametofitów.
- Wlej zawieszone gametofity do sterylnego blendera lub młynka do kawy i pulsuj roztwór gametofitów przez 1-2 s około 5-15 razy, w zależności od stężenia biomasy, aż nie będą widoczne zbrylone masy.
- Aby skłonić do rozmnażania w celu wysiewu "zielonego żwiru", należy rozdrobnić gametofity, jak wyjaśniono powyżej. Następnie zaszczepić substrat i zwiększyć pełne spektrum światła LED od 5-20 do 45-60 μmol fotonu m-2 s-1 (+10 μmol fotonu m-2 s-1 dziennie dla fotoaklimatyzacji), a następnie zwiększać o 10-20 μmol fotonu m-2 s-1 co 3-4 d, aż do osiągnięcia natężenia promieniowania 180 μmol fotonu m-2 s-1.
10. Wdrożenie
- Po 6-8 tygodniach hodowli laboratoryjnej upewnij się, że młode sporofity mają 1-2 cm długości i są gotowe do użycia (Rysunek 4). Odśwież pożywkę wzrostową w kontenerach hodowlanych na 24 godziny przed wdrożeniem.
- Uzyskaj niezbędne pozwolenia na rozmieszczenie żwiru, które są zgodne z lokalnymi przepisami i regulacjami. Może to być czasochłonna część procesu hodowli i musi zostać uwzględniona w harmonogramie projektu.
- Transportuj "zielony żwir" w tacach pokrytych ręcznikami nasączonymi wodą morską, aby utrzymać nawodnienie wodorostów. Umieść tace w izolowanych chłodziarkach z lodem, upewniając się, że nie mają bezpośredniego kontaktu z lodem. Upewnij się, że "zielony żwir" jest szczelnie upakowany, aby uniknąć zwijania się substratów i oderwania sporofitów podczas transportu.
UWAGA: W zależności od dostępnej przestrzeni, substraty mogą być również transportowane w pojemnikach lub pojemnikach do hodowli, aby ograniczyć obsługę. - Transport "zielonego żwiru" do 6 godzin w zacienionej chłodni. Rozmieszczenie powinno odbywać się w czasie, aby uniknąć najbardziej bezpośredniego światła słonecznego. Jeśli wystrzeliwujesz z łodzi, użyj zacienionej konstrukcji, aby uniknąć bezpośredniego nasłonecznienia podczas procesu rozmieszczania.
- Ostrożnie rozsypuj "zielony żwir" z powierzchni na rafę poniżej lub przez SCUBA podczas prób w nowych miejscach i na małą skalę.
Wyniki
Technika renowacji „green gravel” znajduje się wciąż w fazie pilotażowej, z ograniczonymi danymi dotyczącymi przeżywalności przesadzonych osobników innych gatunków28 i brakiem opublikowanych danych dla Macrocystis pyrifera. Wykorzystując metodę poboru z terenu i utrzymania laboratoryjnego opisane w niniejszym protokole, zbadaliśmy znaczenie warunków hodowlanych specyficznych dla danej lokalizacji dla dwóch odrębnych populacji dawców kelpu przed hipotetycznym wdrożeniem metody „green gravel” (Rycina 5). Reprodukcyjną tkankę kelpu zebrano w Kalifornii (USA) z chłodniejszej populacji K1 (Santa Cruz 36.60167°N, 121.88508°W) oraz cieplejszej populacji K4 (San Diego, 32.85036°N, -117.27600°W) i hodowano w dwóch temperaturach: (1) 12 °C (standardowa temperatura hodowli w akwakulturze wodorostów oraz średnia zimowa SST dla K1) oraz (2) 20 °C (średnia letnia SST dla K4 oraz fala upałów o wartości 4 °C dla K1). Wszystkie szkiełka przedmiotowe użyte do monitorowania rozwoju etapów życiowych kelpu oznaczono ustandaryzowaną siatką, a wysokorozdzielcze obrazy rejestrowano, wykorzystując tę siatkę jako punkt odniesienia, aby umożliwić obserwację stałych pól w czasie przy użyciu mikroskopu odwróconego i kamery (N = 5 obrazów na próbkę, 2.479 mm x 1.859 mm).
Po 24 dniach od sporulacji policzono gametofity na podstawie obrazów mikroskopowych (N = 300 obrazów z 60 próbek). Aby przetestować różnice w liczbie gametofitów, zastosowano uogólnione liniowe modele mieszane z rozkładem Poissona, korzystając z funkcji glmmTMB() w pakiecie glmmTMB41, a porównania parowe przeprowadzono za pomocą funkcji emtrends() z pakietu emmeans42 w programie R. Nasze wyniki pokazują, że odpowiedź gametofitów na zmienność termiczną różniła się pomiędzy populacjami K1 i K4 (t = 2.7, p = 0.007), przy czym temperatura nie miała wpływu na cieplejszą populację K4 (estymacja = -0.01, błąd standardowy [SE] = 0.01, przedział ufności [CI] = [-0.03, 0.01]), ale miała wpływ na chłodniejszą populację K1 (estymacja = -0.06, SE = 0.02, CI = [-0.10, -0.03]) (Rysunek 6A), co sugeruje możliwą dywergencję adaptacyjną w cechach tolerancji termicznej. Gametofity wodorostów z rodzaju kelp są często przedstawiane jako stadium oporności43, co oznacza, że wytwarzają one fenotyp uniwersalny, który jest odporny na stres i stosunkowo niewrażliwy na zmienność środowiskową. Jednakże niniejsze wyniki wskazują, że zmienność termiczna wywiera znaczną presję na tym wczesnym etapie.
Po 32 dniach od sporulacji policzono widoczne sporofity o długości przekraczającej około 1 mm na całej powierzchni każdego szkiełka przedmiotowego o wymiarach 2,5 cm na 7,5 cm (łącznie N = 72 próbki). Aby przetestować różnice w liczbie widocznych sporofitów, zastosowano uogólnione liniowe modele mieszane z rozkładem Poissona, wykorzystując funkcję glmmTMB() z pakietu glmmTMB, a porównania parowe przeprowadzono za pomocą funkcji emtrends() z pakietu emmeans w środowisku R. Nasze wyniki wykazują, że odpowiedź sporofitów na zmienność termiczną jest podobna w zróżnicowanych populacjach K1 i K4 (z = 0,92, p = 0,36), przy czym temperatura miała wpływ zarówno na populację cieplejszą K4 (estymacja = -0,66, SE = 0,04, CI = [-0,74, - 0,57]), jak i populację chłodniejszą K1 (estymacja = -0,85, SE = 0,13, CI = [-1,10, -0,60]) (Rysunek 6B). Próbki hodowane w 20 °C wykazały niewielką liczbę widocznych sporofitów (średnia ± SE = 0,4 ± 0,2) w porównaniu do tych hodowanych w 12 °C (średnia ± SE = 82,4 ± 9,8). Wynik ten sugeruje, że produkcja sporofitów jest bardziej wrażliwa na temperaturę niż stadium gametofitu i że temperatury hodowli specyficzne dla danego stanowiska nie mogą przekroczyć 15 °C, aby uzyskać rozwój sporofitów zgodnie z opisanym protokołem.
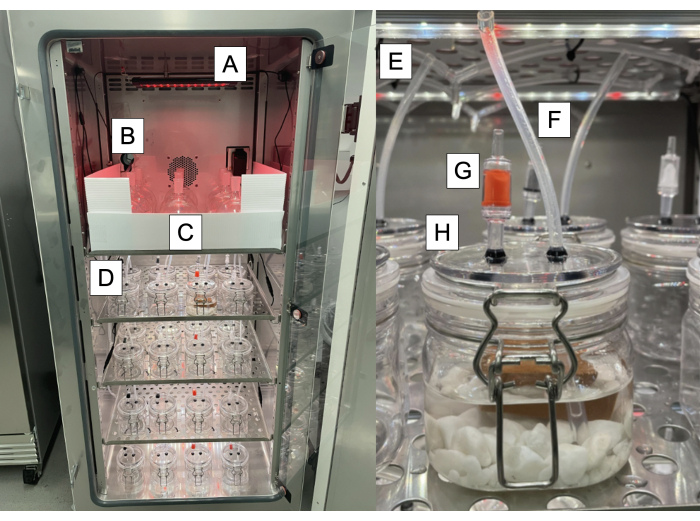
Rysunek 1: Schemat systemu inkubatora 'green gravel' . (A) Czerwone źródło światła do wegetatywnego zwiększania masy kultur gametofitów. (B) Port dostępu dla przewodów elektrycznych i rurek, prowadzący do zewnętrznego wyjścia. (C) Struktura blokująca światło pełnego spektrum w sekcji z czerwonym światłem. (D) Sekcja hodowlana 'green gravel' . (E) Źródła światła pełnego spektrum. (F) Linie rurek połączone z zewnętrznym źródłem przefiltrowanego powietrza. (G) Zawory zwrotne w celu ograniczenia zanieczyszczeń przenoszonych przez powietrze. (H) Pojedyncze pojemniki hodowlane minimalizujące ryzyko kontaminacji. Aby zobaczyć powiększoną wersję tego rysunku, kliknij tutaj.
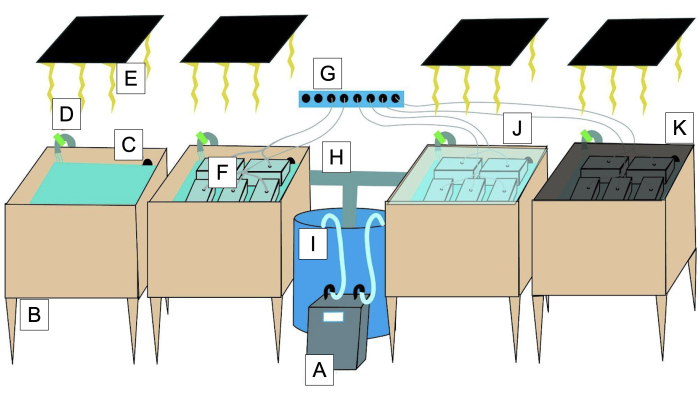
Rysunek 2: Schemat systemu kąpieli wodnej z tzw. „zielonym żwirem” ('green gravel'). (A) Chłodziarka z pompą zanurzeniową (w I). (B) Kuweta o pojemności 20 galonów do kąpieli wodnej. (C) Odpływ do recyrkulacji kąpieli wodnej. (D) Zawór do recyrkulacji kąpieli wodnej. (E) Źródło światła. (F) Pojemnik o pojemności 2.5 L z „zielonym żwirem” ('green gravel'), z przezroczystą pokrywą i otworem napowietrzającym. (G) Źródło napowietrzania. (H) Rury do recyrkulacji wody przy użyciu pomp zanurzeniowych. (I) Odbiornik kąpieli wodnej z/do chłodziarki z/do kuwet z pompami zanurzeniowymi. (J) Przykrycie akrylowe w celu zminimalizowania parowania kąpieli wodnej. (K) Siatka zacieniająca do regulacji natężenia światła. Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
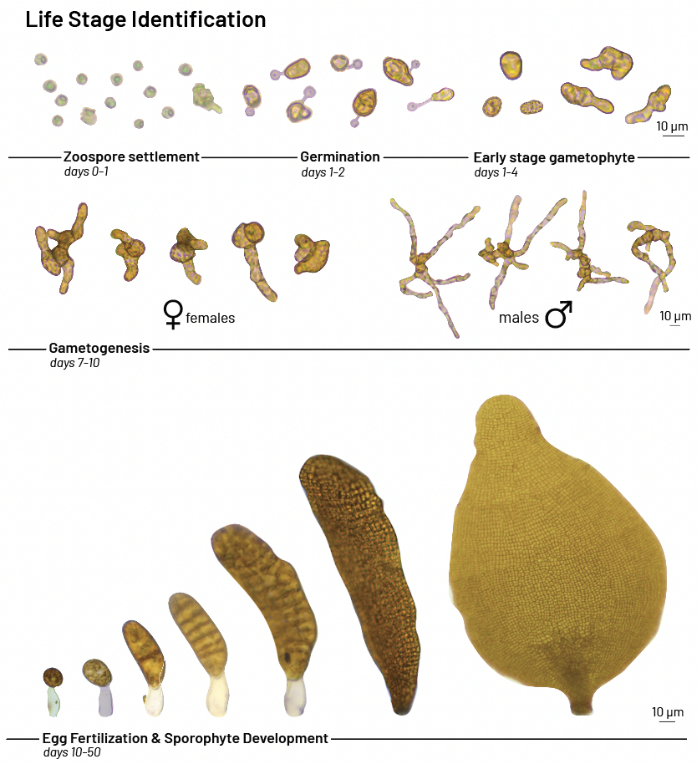
Rycina 3: Rozwój Macrocystis pyrifera. Stadia rozwojowe cyklu życiowego Macrocystis pyrifera z laboratoryjnych prób wzrostu. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
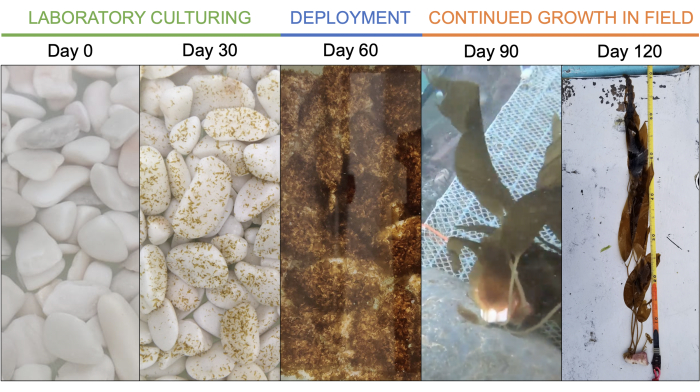
Rycina 4: 'Zielony żwirzasiane z Macrocystis pyrifera. 'Zielony żwir zasianymi z Macrocystis pyrifera hoduje się w laboratorium, aż sporofity osiągną wysokość 1-2 cm.Zielny żwir jest następnie rozmieszczany i kontynuuje wzrost w terenie. Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tej figury.
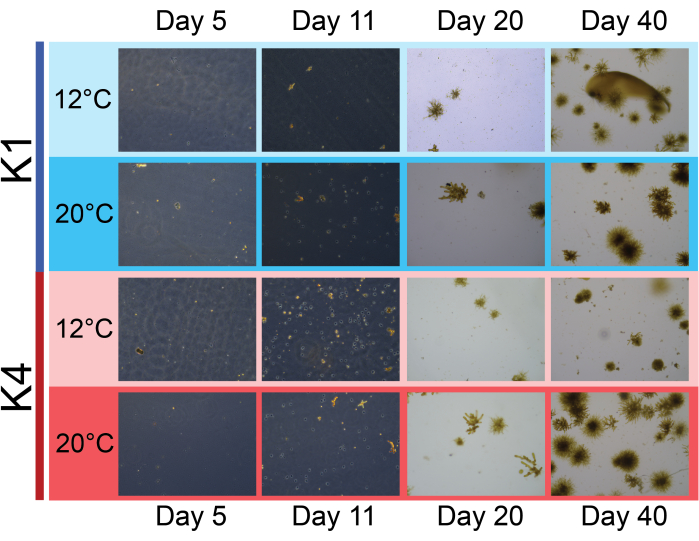
Rycina 5: Eksperymentalne szeregi czasowe. Przykładowe obrazy z szeregu czasowego monitorującego eksperymentalny wzrost i rozwój gametofitów oraz sporofitów Macrocystis pyrifera pochodzących z dwóch populacji zebranych w Kalifornii (USA) i hodowanych w dwóch różnych temperaturach. K1 = Santa Cruz, K4 = San Diego. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
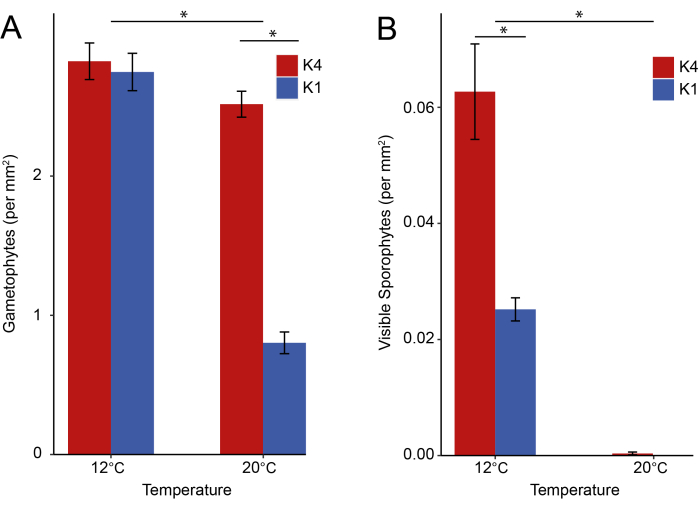
Rysunek 6: Reprezentatywne wyniki. Macrocystis pyrifera na różnych etapach cyklu życiowego, obserwowani dla populacji pochodzących z K1 Santa Cruz i San Diego K4 Santa Cruz, hodowani w stałych warunkach termicznych 12 i 20 °C. Słupki błędu, średnia ± 1 SE. Gwiazdka (*) oznacza różnice istotne statystycznie (p < 0.05). (A) Gametofity w 24. dniu (N = 300 obrazów łącznie z 60 próbek). (B) Widoczne sporofity w 32. dniu (N = 72 próbki, w zestandaryzowanym obszarze 2,5 cm na 7,5 cm). Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Plik uzupełniający 1. Kliknij tutaj, aby pobrać ten plik.
Dyskusja
Antropogeniczna zmiana klimatu stanowi coraz większe zagrożenie dla zdrowia oceanów na świecie 44,45,46,47,48, powodując poważne zakłócenia i utratę różnorodności biologicznej 49,50,51,52. Aby przyspieszyć odbudowę zdegradowanych ekosystemów, Organizacja Narodów Zjednoczonych ogłosiła lata 2021–2030 "Dekadą Odbudowy Ekosystemów ONZ", co zbiega się z "Dekadą Nauki o Oceanach ONZ na rzecz Zrównoważonego Rozwoju", której celem jest odwrócenie pogarszającego się stanu zdrowia oceanów53. Zgodnie z tym globalnym wezwaniem do działania, Kelp Forest Alliance uruchomił Kelp Forest Challenge, aby odtworzyć 1 milion hektarów i chronić 3 miliony hektarów lasu wodorostów do roku 204054. Odbudowa mórz i oceanów jest niedoceniana55 , a ekosystemom wodorostów poświęca się znacznie mniej uwagi niż siedliskom takim jak rafy koralowe, lasy namorzynowe i łąki trawy morskiej56. Wykazano, że odbudowa zdegradowanych ekosystemów jest skuteczna w odbudowie ekosystemów morskich, ale może kosztować średnio od 80 000 do 1 600 000 USD za hektar, przy czym mediana całkowitych kosztów może być od dwóch do czterech razy wyższa57. Obecne i prognozowane straty wymagają opracowania skalowalnych, wykonalnych i opłacalnych metodologii odbudowy wodorostów jako pilnych interwencji ochronnych.
Obecne wysiłki na rzecz odbudowy wodorostów wykorzystują kombinację metodologii w celu rozwiązania specyficznych dla danego miejsca czynników powodujących utratę wodorostów, w tym przesadzanie dorosłych wodorostów, bezpośrednie siew zoospor i/lub gametofitów, kontrola wypasu i instalacja sztucznych raf11. Metody te wymagają jednak znacznych zasobów i mają ograniczoną skalowalność. Typowy przeszczep dorosłych wodorostów wymaga pracochłonnego rozmieszczenia sztucznych materiałów lub struktur na bentosie przez nurków. Interwencje oddolne mające na celu odtworzenie przybrzeżnych raf skalistych, takie jak kontrolowanie konkurentów i pasących się zwierząt, są również ograniczone przez koszty pracy, ponieważ opierają się na ręcznym podwodnym usuwaniu lub wykluczaniu tych biotycznych czynników stresogennych11. Technika "zielonego żwiru" pozwala przezwyciężyć te ograniczenia dzięki prostemu rozmieszczeniu z powierzchni, bez konieczności instalowania pod wodą lub wiedzy technicznej oraz skalowalności przy stosunkowo niskich kosztach28. To innowacyjne podejście stanowi obiecujące narzędzie do renowacji, zachęcając do przeprowadzenia szeroko zakrojonych prób w różnych lokalizacjach i środowiskach, aby uwolnić jego pełny potencjał32.
Podczas gdy udane działania związane z odbudową za pomocą "zielonego żwiru" zostały udokumentowane w osłoniętych fiordach w Norwegii przy użyciu wodorostów cukrowych, Saccharina latissima26, technika ta jest nadal w fazie pilotażowej w przypadku Macrocystis pyrifera na wschodnim Pacyfiku. Potrzebne są dodatkowe badania, aby odpowiedzieć na oczekiwaną przeżywalność roślin zewnętrznych M. pyrifera w jego zasięgu. W warunkach narażonych na fale, typowych dla wzrostu M. pyrifera , mniejszy żwir może być bardziej podatny na przemieszczanie się i ścieranie, co prowadzi do uszkodzenia roślin zewnętrznych. Co więcej, dodatnia wyporność zapewniana przez wypełnione gazem pneumatocysty M. pyrifera może prowadzić do skutecznego odprowadzania roślin zewnętrznych "zielonego żwiru" z miejsca odbudowy, a zatem rozmiar i waga żwiru są ważnymi czynnikami, które należy zbadać w przypadku tego gatunku. W niedawnym badaniu pilotażowym (maj 2022 r.; Ensenada, Kalifornia Dolna, Meksyk), zaobserwowano wstępne sukcesy w polu z M. pyrifera , na co wskazuje przyczepianie się haptera do otaczającego podłoża i wzrost młodych osobników osiągających 1,2 m długości po dwóch miesiącach na polu (ryc. 4). Pokazuje to wyraźną możliwość, która nie została jeszcze zbadana, w zakresie wykorzystania "zielonego żwiru" dla M. pyrifera na wschodnim Pacyfiku. Ten film prezentuje technikę "zielonego żwiru" z M. pyrifera i jest cennym zasobem, który upraszcza i centralizuje istniejące praktyki w fazie hodowli w celu wsparcia badań, które odnoszą sukcesy i ograniczenia w różnych warunkach terenowych.
Dzięki technice "zielonego żwiru" wiele mniejszych, pojedynczych jednostek żwiru może być wysiewanych w skali, która może zwiększyć prawdopodobieństwo sukcesu w porównaniu z bardziej powszechnymi metodami przesadzania dorosłych roślin. Jednak kluczowym skalowalnym aspektem tej techniki jest jej proste rozmieszczenie z powierzchni, co może ułatwić odtworzenie dużych obszarów za pomocą łodzi. W przypadku warunków polowych, w których rozmieszczenie małego żwiru nie jest odpowiednie, protokół ten można dostosować do przesadzania M. pyrifera na szeroką gamę podłoży, w tym większy żwir, a nawet małe głazy, sznurek, który można przywiązać do naturalnych lub rozłożonych podwodnych kotwic, lub płytki, które można przykręcić lub przykleić za pomocą morskiej żywicy epoksydowej do dna morskiego w bardziej odsłoniętych warunkach. Te dostosowania dotyczące rozmieszczenia nie zmienią obiektów potrzebnych do hodowli M. pyrifera, ale w konsekwencji zwiększą koszty wdrożenia.
Zakłócenia antropogeniczne i zmiana klimatu przewyższają obecnie zdolność naturalnych populacji do przystosowania się. Stanowi to poważne wyzwanie dla tradycyjnych działań konserwatorskich, które przywracają ekosystemy do ich historycznego stanu 58,59,60,61,62,63. W związku z tym ramy ochrony zostały rozszerzone o zarządzanie wyprzedzające z uwzględnieniem odporności i zdolności adaptacyjnych64. Zarządzanie wyprzedzające w celu przeciwdziałania zmianom klimatu jest wdrażane w odniesieniu do gatunków drzew w ekosystemach leśnych65 i zaproponowano dalsze działania na rzecz odtworzenia w celu zwiększenia potencjału ewolucyjnego roślin zewnętrznych66,67. Chociaż strategie te są z natury łatwiejsze do manipulowania w środowiskach lądowych, kilka badań zaczyna badać ich zastosowanie w środowiskach morskich 62,68,69,70. Na przykład rafy koralowe są zagrożone przez liczne antropogeniczne czynniki stresogenne, które doprowadziły do bezprecedensowego spadkuliczebności 71,72. W odpowiedzi na straty tych ważnych gatunków fundamentowych, coraz częściej zaleca się aktywną odbudowę i techniki wspomaganej adaptacji w celu ochrony pozostałych raf koralowych i związanych z nimi funkcji 62,73,74. Jedna z technik polega na przenoszeniu osobników w obrębie ich obecnego zasięgu występowania gatunków w celu zwiększenia tolerancji na stres cieplny75. Jeśli chodzi o odbudowę wodorostów tworzących baldachim, "zielony żwir" ma konfigurowalne ramy do badania technik wspomaganej adaptacji, takich jak translokacja odpornych genotypów do wrażliwych obszarów, manipulacje niegenetyczne, takie jak hybrydyzacja lub aklimatyzacja osobników do stresu środowiskowego62 z wynikami mającymi na celu uzyskanie bardziej odpornych szczepów dla programów odbudowy76,77.
Wykorzystanie lokalnego wsparcia w celu wzmocnienia wysiłków na rzecz odbudowy ma kluczowe znaczenie dla utrzymania sukcesu w ochronie ekosystemu wodorostów. Zaangażowanie lokalnych zainteresowanych stron może zwiększyć lokalne poparcie dla potrzeb w zakresie odbudowy 6,50 i promować zarządzanie wybrzeżem, co może następnie skutkować zwiększonym finansowaniem i długowiecznością ochrony ekosystemu wodorostów. Podobnie jak w przypadku wszystkich innych metodologii odbudowy wodorostów, ustrukturyzowane ramy decyzyjne integrujące różne cele ekologiczne, społeczno-ekonomiczne i ochronne pomogą osiągnąć optymalne wyniki dla ekosystemów wodorostów i społeczności,które wspierają.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Ta praca została sfinansowana przez California Sea Grant Kelp Recovery Research Program R/HCE-17 dla JBL i MESB, nagrodę National Science Foundation Research Traineeship DGE-1735040 dla PDD, The Nature Conservancy, Schmidt Marine Technology Partners, Sustainable Ocean Alliance, Tinker Foundation dla AP-L oraz The Climate Science Alliance Baja Working Group dla RBL i JL. Dziękujemy Stevenowi Allisonowi, Cascade Sorte, Samancie Cunningham, Samowi Weberowi i Caitlin Yee z Uniwersytetu Kalifornijskiego w Irvine; Mark Carr, Peter Raimondi, Sarah Eminhizer, Anne Kapuscinski z Uniwersytetu Kalifornijskiego w Santa Cruz; Walter Heady i Norah Eddy w The Nature Conservancy; Filipe Alberto i Gabriel Montecinos z Uniwersytetu Wisconsin w Milwaukee; José Antonio Zertuche-González, Alejandra Ferreira-Arrieta i Liliana Ferreira-Arrieta na Universidad Autónoma de Baja California; Luis Malpica-Cruz, Alicia Abadía-Cardoso i Daniel Díaz-Guzmán z Meksyku; nurkowie MexCalitos Alejandra Reyes, Monica Peralta, Teresa Tavera, Julia Navarrete, Ainoa Vilalta, Jeremie Bauer i Alfonso Ferreira; oraz Nancy Caruso w celu uzyskania porady technicznej. Dziękujemy Instituto de Investigaciones Oceanológicas, Universidad Autónoma de Baja California za udostępnienie obiektów wykorzystywanych do rozwoju systemu kąpieli wodnych. Dziękujemy Irze Spitzerowi za materiały wideo z nurkowania i drona.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 0,22 &mikro; m filtry | Milipore | SCGPS05RE | Naturalna sterylizacja wodą morską |
| 1 L szklane butelki | Amazon | B07J6JP4D1 | Naturalna sterylizacja wodą morską |
| 1 i mikro; m filtry (woda + powietrze) | Amazon | B01M1VWUWL | Naturalna sterylizacja wodą morską |
| 1 '' Kolanko PVC 90 stopni | Home Depot | 203812125 | Opcja 2 - Średnia skala - Systemy kąpieli wodnych |
| 10 i mikro; m filtry | Amazon | B00D04BG56 | Naturalna sterylizacja wodą morską |
| 20 i mikro; m filtry | Amazon | B082WS9NPH | Naturalna sterylizacja wodą morską |
| Rurki 3x5mm | Amazon | B0852HXPN6 | Opcja 1 Mała skala - Inkubator |
| 4x4'' Sterylna gaza | Amazon | B07NDK8XM3 | Rurki do zarodnikowania |
| 4x6mm | Amazon | B08BCRV1FY | Opcja 1 Mała skala - Inkubator |
| 5 i mikro; M filtry | Amazon | B082WS9NPH | Naturalna sterylizacja wodą morską |
| 50 ml rurki sokoła | Amazon | B01M04HGPJ | Sporulacja |
| Rurki 8x10mm | Amazon | B01MSM3LLZ | Opcja 1 Mała skala - Inkubator |
| Filtry powietrza | Thermo Fisher | MTGR85010 | Opcja 1 Mała skala - Inkubator |
| Lampa alkoholowa | Amazon | B07XWD9WWC | Zarodnikowanie |
| Sześciowodny odczynnik ACS siarczanu żelaza amonu (II), 99% | Sigma | 215406-100G | Chemikalia do tworzenia Provasoli ' s Wzbogacona woda morska (PES) i witaminy do wzbogacania pożywki |
| Żwir akwariowy | Amazon | B07XRCKFBJ | Opcja 1 Mała skala - Inkubator |
| Biotyna w proszku, Bioodczynnik, odpowiedni do hodowli komórek, odpowiedni do hodowli komórek owadów, odpowiedni do hodowli komórek roślinnych, 99% | Sigma | B4639-100MG | Chemikalia do tworzenia Provasoli' s Wzbogacona woda morska (PES) i witaminy do wzbogacania pożywki |
| Kwas borowy, 99,8%, 10043-35-3, MFCD00011337, BH3O3, 61,83, 500g | Thermo Fisher | 5090113707 Chemikalia do tworzenia Provasoli' s Wzbogacona woda morska (PES) i witaminy do wzbogacania pożywki | |
| D-pantotenian wapnia, ge98,0% (T),C9H17NO5,137-08-6,25g,Kwas D-pantotenowy Sól wapniowa, P0012-25G 1/EA | Thermo Fisher | P001225G | Chemikalia do tworzenia Provasoli' s Wzbogacona woda morska (PES) i witaminy do wzbogacania pożywki |
| Zawory zwrotne | Amazon | B08HRZR4MM | Opcja 1 Mała skala - Inkubator |
| Przezroczysta rurka 3/8 '' - 10 stóp | Amazon | B07MTYMW13 | Opcja 2 - Średnia skala - Systemy kąpieli wodnych |
| COBALT(II) SULFATE HEPTAH-100G, OSTRZEŻENIE - Kalifornia - Zagrożenie rakiem, 93-2749-100G 1 / EA | Thermo Fisher | 5090114752 | Chemikalia do stworzenia Provasoli" s Wzbogacona woda morska (PES) i witaminy do wzbogacania pożywki |
| Mikroskop złożony z kamerą | OMAX | M83EZ-C50S | Monitorowanie |
| kolby hodowlanej | Thermo Fisher | 07-250-080 | Opcja 1 Mała skala - Inkubator |
| Światło do hodowli | Amazon | B07RRRPJ63 | Opcja 1 Mała skala - Inkubator |
| Zatyczki do kultur | Amazon | B07DX6J7QD | Opcja 1 Mała skala - |
| Złącze drenażowe | Amazon | B00GUZ6CV0 | Opcja 2 - Średnia skala - Systemy kąpieli wodnej |
| EDTA Numer CAS: 6381-92-6 Wzór cząsteczkowy: C10H14N2O8Na2- 2H2O Masa cząsteczkowa: 372,2 | Thermo Fisher | 50213299 | Chemicals do stworzenia Provasoli' s Wzbogacona woda morska (PES) i witaminy do wzbogacania pożywki |
| Pakiet bezpieczeństwa Eisco Zestawy cylindrów z podziałką Klasa A, ASTM, Pojemność: 10 mL, 25 mL, 50 mL, Podziałka: 0,2 mL, 0,5 mL, 1,0 mL, Szkło borokrzemianowe 3,3, Autoklawowalne: Tak, Klasa: Klasa A, Z podziałką: Tak, Tolerancja: 0,10 ml, 0,17 mL, 0,25 ml | Thermo Fisher | S81273 | Chemikalia do tworzenia Provasoli' s Wzbogacona woda morska (PES) i witaminy do wzbogacania podłoża |
| Zestaw bezpieczeństwa Eisco Zestawy cylindrów z podziałką Klasa A, ASTM, Pojemność: 50 mL, 100 mL, 250 mL, Podziałka: 1,0 mL, 1,0 mL, 2,0 mL, szkło borokrzemianowe 3,3, Autoklawowalne: Tak, Klasa: Klasa A, Z podziałką: Tak, Tolerancja: 0,25 mL, 0,50 mL, 1,0 ml | Thermo Fisher | S81275 | Chemikalia do tworzenia Provasoli' s Wzbogacona woda morska (PES) i witaminy do wzbogacania podłoża |
| Zestaw bezpieczeństwa Eisco Zestawy kolb miarowych - klasa A, ASTM, Pojemność: 10 mL, 25 mL, 50 mL, szkło borokrzemianowe 3,3, Autoklawowalne: Tak, Klasa: Klasa A, Materiał zamknięcia: Szkło, Rozmiar zamknięcia: Numer korka: 9, 9, 13, Typ zamknięcia: Penny Stopper, Stopniowane: Ye | Thermo Fisher | S81271 | Chemikalia do tworzenia Provasoli' s Wzbogacona woda morska (PES) i witaminy do wzbogacania pożywki |
| Uchwyt filtra | Amazon | B07LCKBKCT | Naturalna sterylizacja wodą morską |
| Cylindry z podziałką Fisherbrand, Pojemność: 500 mL, Podziałka: 5 mL, Szkło borokrzemianowe, Autoklawowalne: Tak, Granica błędu: +/- 4,0 ml, Zalecane zastosowania: Edukacja, Podział: 5 ml, S63460 1/EA | Thermo Fisher | S63460 | Chemikalia do stworzenia Provasoli" s Wzbogacona woda morska (PES) i witaminy do wzbogacania podłoża |
| Aparat fotograficzny FLEXACAM C1 | Leica | FLEXACAM C1 | Monitoring |
| Kwas foliowy, C19H19N7O6, numer CAS59303, witamina M, kwas pteroylglutaminowy, witamina B9, folvite, folacyna, folacid, kwas pteroyloglutaminowy, pteglu, kwas foliowy, kwas foliowy, 25g, 100781, CHEBI:27470, Yellow to Orange, 2004190, 441.41, OVBPIULPVIDEAOLBPRGKRZSAN | Thermo Fisher | AAJ6083314 | Chemikalia do stworzenia Provasoli" s Wzbogacona woda morska (PES) i witaminy do wzbogacania pożywki |
| Wolnostojący zlewozmywak użytkowy o pojemności 20 galonów | Amazon | B094TLH19L | Opcja 2 - Średnia skala - Systemy kąpieli wodnych |
| DWUTLENEK GERMANU 99,99 10GR Thermo | Fisher | AC190000100 | Chemikalia do tworzenia Provasoli' s Wzbogacona woda morska (PES) i witaminy do wzbogacania pożywki |
| Szklane cylindry z podziałką, klasa A z okrągłą podstawą, Eisco, Do użytku z: Ciecze miarowe, Pojemność: 1000 mL, Podziałka: 10 ml Biały, CH0344OWT 1/EA | Thermo Fisher | S88442 | Chemikalia do tworzenia Provasoli' s Wzbogacona woda morska (PES) i witaminy do wzbogacania pożywki |
| Szkiełka szklane | Amazon | B00L1S93PS | Opcja 2 - Średnia skala - Systemy kąpieli wodnych |
| Mieszanina izomeryczna wodoru fosforanu glicerolu i soli disodowej | Sigma | G6501-100G | Chemikalia do tworzenia Provasoli' s Wzbogacona woda morska (PES) i witaminy do wzbogacania pożywki |
| Pojemniki wzrostowe -3,4 Qt- 3,25 litra przezroczyste pojemniki z przezroczystą pokrywką | Magazyn kontenerowy | #10014828 | Opcja 2 - Średnia skala - Systemy kąpieli wodnych |
| Światło wzrostu | Amazon | B086R14MFW | Opcja 1 Mała skala - Inkubator |
| Hemocytometr | Amazon | B07TJQDKLJ | Zarodnikowanie |
| Plastikowe słoiki | na zawiasachButelka SKS & Opakowanie | 40280125.01S | Opcja 1 Mała skala - Inkubator |
| Klasa badawcza inozytolu, USP / NF Do bakteriologii. Optycznie nieaktywny. Przetestowany pod kątem przydatności w hodowli tkankowej. Rozmiar - 100G Warunki przechowywania - +15 C DO +30 C Numer katalogowy - 26310.01 CAS 87-89-8 | Thermo Fisher | 50247745 | Chemikalia do tworzenia Provasoli' s Wzbogacona woda morska (PES) i witaminy do wzbogacania pożywki |
| Instant Ocean - 50 G | Amazon | B000255NKA | Opcja 1 Mała skala - Inkubator |
| Mikroskop odwrócony Leica DMi1 Leica | DMi1 | Monitorowanie | |
| chlorku żelaza(III) sześciowodny odczynnik ACS, 97% | Sigma | 236489-100G | Chemikalia do tworzenia Provasoli' s Wzbogacona woda morska (PES) i witaminy do wzbogacania pożywki |
| Rejestrator danych miernika szerokości | Licor | LI-250A | Monitorowanie |
| światła/temperatury Rejestrator danych HOBO | Amazon | B075X2SWKN Światła monitorujące | |
| 150W | Amazon | B0799DQM9V | Opcja 2 - Średnia skala - Systemy kąpieli wodnej |
| Monohydrat siarczanu manganu spełnia specyfikacje testowe USP | Sigma | M8179-100G | Chemikalia do tworzenia Provasoli' s Wzbogacona woda morska (PES) i witaminy do wzbogacania podłoża |
| Średniej wielkości skały 2-3 cale, 20 funtów | Home Depot | 206823930 | Opcja 2 - Średnia skala - Systemy kąpieli wodnych |
| Kwas nikotynowy, 99%, C6H5NO2, numer CAS59676, daskil, apelagryna, acidum nicotinicum, akotin, 3karboksyrydyna, niacyna, 3kwas pirydynokarboksylowy, kwas nikotynowy, pelagryna, wampocap, 250g, 109591, CHEBI:15940, 1.4, 2004410, 293 st. C (559 st. F), 123.11,Thermo | Fisher | AAA1268330 | Chemicals w celu stworzenia Provasoli" s Wzbogacona woda morska (PES) i witaminy do wzbogacania pożywki |
| Kwas p-aminobenzoesowy 99,82% Kwas 4-aminobenzoesowy, C7H7NO2, Numer CAS: 150-13-0, 25g, 0210256925 1/EA | Thermo Fisher | ICN10256925 | Chemikalia do tworzenia Provasoli' s Wzbogacona woda morska (PES) i witaminy do wzbogacania w podłoża |
| Cement PCV | Amazon | B001D9WRWG | Opcja 2 - Średnia skala - Systemy kąpieli wodnej |
| Plastikowy zawór wodny | Amazon | B0006JLVE4 | Opcja 2 - Średnia skala - Systemy kąpieli wodnych |
| Plastikowy zawór wodny | Amazon | B07G5FY7X1 | Opcja 2 - Średnia skala - Systemy kąpieli wodnej |
| Precyzyjna skala 1mg | Amazon | B08DTH95FN | Materiały do stworzenia Provasoli" s Wzbogacona woda morska (PES) i witaminy do wzbogacania pożywki |
| Pompa do filtrowanego powietrza | Amazon | B0BG2BT9RX | Opcja 1 Mała skala - Inkubator |
| Rurki PVC 1x24'' | Home Depot | 202300505 | Opcja 2 - Średnia skala - Systemy kąpieli wodnych |
| Miernik światła kwantowego | Apogee Instruments | MQ-510 | Monitorowanie |
| inkubatora chłodniczego | Thermo Fisher | 15-103-1566 | Opcja 1 Mała skala - Gumowe |
| przelotki inkubatora | Amazon | B07YZD22ZP | Opcja 1 Mała skala - Inkubator |
| Refraktometr zasolenia | ATC | B018LRO1SU | Monitorowanie |
| Siatka zacieniająca 6x50 ft | Home depot | 316308418 | Opcja 2 - Średnia skala - Systemy kąpieli wodnych |
| Azotan sodu ge 99.0% Kwas azotowy, Sól sodowa, NNaO3, Numer CAS: 7631-99-4, 500g, 1/EA | Thermo Fisher | BP360500 | Chemicals do stworzenia Provasoli" s Wzbogacona woda morska (PES) i witaminy do wzbogacania pożywki |
| do otworu napowietrzającego | Amazon | B08R3515SF | Opcja 2 - Średnia skala - Systemy kąpieli wodnej |
| Rozpyl alkohol isporopylowy | Amazon | B08LW5P844 | Zarodnikowanie |
| Sisarki ze stali nierdzewnej | Amazon | B07BT4YLHT | Sporulacja |
| Taca ze stali nierdzewnej | Amazon | B08CV33YXG | Sporulacja |
| Twizzery ze stali nierdzewnej | Amazon | B01JTZTAJS | Pręty do zarodnikowania |
| Amazon | B07C4TNKXB | Materiały do tworzenia Provasoli' s Wzbogacona woda morska (PES) i witaminy do wzbogacania pożywki | |
| Zatapialna pompa obiegowa 400 GPH | Amazon | B07RZKRM13 | Opcja 2 - Średnia skala - Systemy kąpieli wodnej |
| Zatapialny sferyczny czujnik kwantowy | Monitorowanie Waltz | US-SQS/L | Pistolet |
| do pomiaru temperatury | Termometr na podczerwień 749 | B07VTPJXH9 | Monitorowanie |
| Chlorowodorek tiaminy BioReodczynnik, odpowiedni do hodowli komórek, odpowiedni do hodowli komórek owadów, odpowiedni do hodowli komórek roślinnych | Sigma | T1270-25G | Chemikalia do tworzenia Provasoli' s Wzbogacona woda morska (PES) i witaminy do wzbogacania pożywek |
| Tymina 99% 2, 4-dihydroksy-5-metylopirymidyna, C5H6N2O2, Numer CAS: 65-71-4, 25g, 157850250 1/EA | Thermo Fisher | AC157850250 | Chemikalia do tworzenia Provasoli' s Wzbogacona woda morska (PES) i witaminy do wzbogacania pożywki |
| Przezroczysty arkusz akrylowy 24x48 cali | Home Depot | 202038048 | Opcja 2 - Średnia skala - Systemy kąpieli wodnych |
| Cyrkulacja wody w rurkach 1''x10 ft | Amazon | B07ZC1PSF3 Opcja 2 - Średnia skala - Systemy kąpieli wodnych | |
| Światło UV do naturalnej sterylizacji wodą morską | Amazon | B018OI7PYS | Naturalna sterylizacja wodą morską |
| Pompa próżniowa | Amazon | B087XBTPVW | Naturalna sterylizacja wodą morską |
| Bioodczynnik witaminy B12, odpowiedni do hodowli komórek, odpowiedni do hodowli komórek owadów, odpowiedni do hodowli komórek roślinnych, 98% | Sigma | V6629-100MG | Chemikalia do tworzenia Provasoli' s Wzbogacona woda morska (PES) i witaminy do wzbogacania podłoża |
| Kolby miarowe, szkło klasy A, Eisco, z korkiem polipropylenowym, z podziałką, Białe nadrukowane oznaczenia, Pojemność: 1000 mL, CH0446IWT 1/EA | Thermo Fisher | S89446 | Chemikalia do tworzenia Provasoli' s Wzbogacona woda morska (PES) i witaminy do wzbogacania podłoża |
| Kolby miarowe, szkło klasy A, Eisco, z korkiem polipropylenowym, z podziałką, Białe nadrukowane oznaczenia, Pojemność: 500 mL, CH0446HWT 1/EA | Thermo Fisher | S89445 | Chemikalia do tworzenia Provasoli' s Wzbogacona woda morska (PES) i witaminy do wzbogacania pożywki |
| Agregat wody lodowej 200-600GPM | Amazon | B07BHHP71C | Opcja 2 - Średnia skala - Systemy kąpieli wodnej |
| Rozdzielacze Y do rur 4x6mm | Amazon | B08XTJKFCH | Opcja 1 Mała skala - Inkubator |
| Siarczan siedmiowodny BioReagent, odpowiedni do hodowli komórkowych | Sigma | Z0251-100G | Chemikalia do stworzenia Provasoli" s Wzbogacona woda morska (PES) i witaminy do wzbogacania pożywek |
Bibliografia
- Schiel, D. R., Foster, M. S. The Biology and Ecology of Giant Kelp Forests. , Univ of California Press. (2015).
- Smale, D. A., Burrows, M. T., Moore, P., O'Connor, N., Hawkins, S. J. Threats and knowledge gaps for ecosystem services provided by kelp forests: a northeast Atlantic perspective. Ecol Evol. 3 (11), 4016-4038 (2013).
- Eger, A. M., et al. The value of ecosystem services in global marine kelp forests. Nat Comm. 14 (1), 1894(2023).
- Bennett, S., Wernberg, T., Arackal Joy, B., de Bettignies, T., Campbell, A. H. Central and rear-edge populations can be equally vulnerable to warming. Nat Comm. 6 (1), 10280(2015).
- Jueterbock, A., et al. Climate change impact on seaweed meadow distribution in the North Atlantic rocky intertidal. Ecol Evol. 3 (5), 1356-1373 (2013).
- Rogers-Bennett, L., Catton, C. A. Marine heat wave and multiple stressors tip bull kelp forest to sea urchin barrens. Sci Rep. 9 (1), 15050(2019).
- Krumhansl, K. A., et al. Global patterns of kelp forest change over the past half-century. PNAS. 113 (48), 13785-13790 (2016).
- Zimmerman, R. C., Kremer, J. N. Episodic nutrient supply to a kelp forest ecosystem in Southern California. J Mar Res. 42 (3), 591-604 (1984).
- Rothäusler, E., et al. Physiological performance of floating giant kelp Macrocystis pyrifera (phaeophyceae): Latitudinal variability in the effects of temperature and grazing. J Phycol. 47 (2), 269-281 (2011).
- Wernberg, T., Krumhansl, K., Filbee-Dexter, K., Pedersen, M. F. Chapter 3 - Status and trends for the world's kelp forests. World Seas: An Environmental Evaluation (Second Edition). , 57-78 (2019).
- Eger, A. M., Layton, C., McHugh, T. A., Gleason, M., Eddy, N. Kelp restoration guidebook: Lessons learned from kelp restoration projects around the world. TNCKelp Forest Alliance. , (2022).
- Filbee-Dexter, K., et al. Marine heatwaves and the collapse of marginal North Atlantic kelp forests. SciRep. 10 (1), 13388(2020).
- Filbee-Dexter, K., Scheibling, R. E. Sea urchin barrens as alternative stable states of collapsed kelp ecosystems. Mar Ecol Prog Ser. 495, 1-25 (2014).
- Filbee-Dexter, K., Wernberg, T. Rise of turfs: A new battlefront for globally declining kelp forests. BioSci. 68 (2), 64-76 (2018).
- Assis, J., Araújo, M. B., Serrão, E. A. Projected climate changes threaten ancient refugia of kelp forests in the North Atlantic. Glob Change Biol. 24 (1), e55-e66 (2018).
- Davis, T., Champion, C., Coleman, M. Ecological interactions mediate projected loss of kelp biomass under climate change. Divers Distrib. 28 (2), 306-317 (2021).
- Goldsmit, J., et al. Kelp in the eastern Canadian arctic: Current and future predictions of habitat suitability and cover. Front Mar Sci. 18, 742209(2021).
- Ling, S. D., Cornwall, C. E., Tilbrook, B., Hurd, C. L. Remnant kelp bed refugia and future phase-shifts under ocean acidification. PLoS One. 15 (10), e239136(2020).
- Eger, A. M., et al. Global kelp forest restoration: past lessons, present status, and future directions. Biol Rev. 97 (4), 1449-1475 (2022).
- Waylen, K. A., Fischer, A., McGowan, P. J., Thirgood, S. J., Milner-Gulland, E. J. Effect of local cultural context on the success of community-based conservation interventions. Biol Consv. 24 (4), 1119-1129 (2010).
- Vergés, A., et al. The tropicalization of temperate marine ecosystems: climate-mediated changes in herbivory and community phase shifts. Proc Royal Soc. B. 281 (1789), 20140846(2014).
- Zarco-Perello, S., Wernberg, T., Langlois, T. J., Vanderklift, M. A. Tropicalization strengthens consumer pressure on habitat-forming seaweeds. Sci Rep. 7 (1), 820(2017).
- Worm, B., Lotze, H. K. Chapter 21 - Marine biodiversity and climate change. Climate Change (Third Edition). , 445-464 (2021).
- Félix-Loaiza, A. C., Rodríguez-Bravo, L. M., Beas-Luna, R., Lorda, J., de La Cruz-González, E., Malpica-Cruz, L. Marine heatwaves facilitate invasive algae takeover as foundational kelp. Botanica Marina. 65 (5), 315-319 (2022).
- Miller, K. I., Blain, C. O., Shears, N. T. Sea urchin removal as a tool for macroalgal restoration: A review on removing "the spiny enemies". Fron Mar Sci. 9, 831001(2022).
- Westermeier, R., et al. Repopulation techniques for Macrocystis integrifolia (Phaeophyceae: Laminariales) in Atacama, Chile. J Appl Phycol. 26, 511-518 (2014).
- Layton, C., et al. Kelp forest restoration in Australia. Fron Mar Sci. 7, 74(2020).
- Fredriksen, S., et al. Green gravel: a novel restoration tool to combat kelp forest decline. Sci Rep. 10 (1), 3983(2020).
- Projects of the Green Gravel Action Group. Green Gravel Action Group. (n.d.) . , Available from: https://www.greengravel.org/ (2024).
- Fain, S. R., Murray, S. N. Effects of light and temperature on net photosynthesis and dark respiration of gametophytes and embryonic sporophytes of macrocystis pyrifera. J Phycol. 18 (1), 92-98 (1982).
- Westermeier, R., Patiño, D., Piel, M. I., Maier, I., Mueller, D. G. A new approach to kelp mariculture in Chile: production of free-floating sporophyte seedlings from gametophyte cultures of Lessonia trabeculata and Macrocystis pyrifera. Aquac Res. 37 (2), 164-171 (2006).
- Alsuwaiyan, N., et al. A et al. Green gravel as a vector of dispersal for kelp restoration. Fron Mar Sci. 9, 910417(2022).
- Falace, A., Kaleb, S., De La Fuente, G., Asnaghi, V., Chiantore, M. Ex situ cultivation protocol for Cystoseira amentacea var. stricta (Fucales, Phaeophyceae) from a restoration perspective. PloS One. 13 (2), e0193011(2018).
- Redmond, S., Green, L., Yarish, C., Kim, J., Neefus, C. New England seaweed culture handbook. , (2014).
- Provasoli, L., McLaughlin, J. J. A., Droop, M. R. The development of artificial media for marine algae. Arch Mikrobiol. 25, 392-428 (1957).
- Navarro, D., Navarro, D. E. California Kelp Forest Restoration: Science Activity Guide for Teachers. , (2006).
- Alsuwaiyan, N. A., et al. A review of protocols for the experimental release of kelp (Laminariales) zoospores. Ecol Evol. 9 (14), 8387-8398 (2019).
- Lüning, K., Müller, D. G. Chemical interaction in sexual reproduction of several Laminariales (Phaeophyceae): release and attraction of spermatozoids. Z. Pflanzenphysiol. 89 (4), 333-341 (1978).
- Müller, D. G., Maier, I., Gassmann, G. Survey on sexual pheromone specificity in Laminariales (Phaeophyceae). Phycologia. 24 (4), 475-477 (1985).
- Vieira, V. M., Oppliger, L. V., Engelen, A. H., Correa, J. A. A new method to quantify and compare the multiple components of fitness-a study case with kelp niche partition by divergent microstage adaptations to temperature. Plos One. 10 (3), e0119670(2015).
- Brooks, M. E., et al. glmmTMB balances speed and flexibility among packages for zero-inflated generalized linear mixed modeling. The R Journal. 9 (2), 378-400 (2017).
- Russell, L. emmeans: estimated marginal means, aka least-squares means. R package version. 1 (2), (2018).
- Ladah, L. B., Zertuche-González, J. A. Survival of microscopic stages of a perennial kelp (Macrocystis pyrifera) from the center and the southern extreme of its range in the Northern Hemisphere after exposure to simulated El Niño stress. Mar Biol. 152, 677-686 (2007).
- Halpern, B. S., et al. A global map of human impact on marine ecosystems. Science. 319 (5865), 948-952 (2008).
- Halpern, B. S., et al. Spatial and temporal changes in cumulative human impacts on the world's ocean. Nat Comm. 6 (1), 1-7 (2015).
- Halpern, B. S., et al. Recent pace of change in human impact on the world's ocean. Sci Rep. 9 (1), 11609(2019).
- Micheli, F., et al. Cumulative human impacts on Mediterranean and Black Sea marine ecosystems: assessing current pressures and opportunities. PloS One. 8 (12), e79889(2013).
- Portner, H. -O., et al. IPCC, 2022: Summary for policymakers. IPCC. , (2022).
- Butchart, S. H. M., et al. Global biodiversity: Indicators of recent declines. Science. 328 (5982), 1164-1168 (2010).
- Rocha, J., Yletyinen, J., Biggs, R., Blenckner, T., Peterson, G. Marine regime shifts: Drivers and impacts on ecosystems services. Phil Trans Roy Soc. B. 370 (1659), 20130273(2015).
- Worm, B., et al. Impacts of biodiversity loss on ocean ecosystem services. Science. 314 (5800), 787-790 (2006).
- Worm, B., Lotze, H. K. Marine biodiversity and climate change. Climate Change (Third Edition). , Chapter 21 445-464 (2021).
- Waltham, N. J., et al. UN decade on ecosystem restoration 2021-2030-What chance for success in restoring coastal ecosystems. Fron Mar Sci. 7, (2020).
- Kelp Forest Challenge. Kelp Forest Alliance. , Available from: https://kelpforestalliance.com/ (2024).
- Gordon, T. A. C., Radford, A., Simpson, S. D., Meekan, M. G. Marine restoration projects are undervalued. Science. 367 (6478), 635-636 (2020).
- Morris, R. L., et al. Key principles for managing recovery of kelp forests through restoration. BioScience. 70 (8), 688-698 (2020).
- Bayraktarov, E., et al. The cost and feasibility of marine coastal restoration. Ecol Appl. 26 (4), 1055-1074 (2016).
- Breed, M. F., et al. Priority actions to improve provenance decision-making. BioScience. 68 (7), 510-516 (2018).
- Breed, M. F., et al. The potential of genomics for restoring ecosystems and biodiversity. Nat Rev Genet. 20 (10), 615-628 (2019).
- Gurgel, C. F. D., Camacho, O., Minne, A. J. P., Wernberg, T., Coleman, M. A. Marine heatwave drives cryptic loss of genetic diversity in underwater forests. Curr Biol. 30 (7), 1199-1206 (2020).
- Hobbs, R. J., Higgs, E., Harris, J. A. Novel ecosystems: implications for conservation and restoration. Trends Ecol Evol. 24 (11), 599-605 (2009).
- van Oppen, M. J. H., Oliver, J. K., Putnam, H. M., Gates, R. D. Building coral reef resilience through assisted evolution. PNAS. 112 (8), 2307-2313 (2015).
- Perring, M. P., et al. Advances in restoration ecology: Rising to the challenges of the coming decades. Ecosphere. 6 (8), (2015).
- Coleman, M. A., et al. Restore or redefine: Future Trajectories for Restoration. Fron MarSci. 7, 237(2020).
- O'Neill, G. A. Assisted migration to address climate change in British Columbia: recommendations for interim seed transfer standards. Ministry of Forests and Range, Forest Science Program. , Victoria, B.C. (2008).
- Broadhurst, L. M., et al. Seed supply for broadscale restoration: maximizing evolutionary potential. Evol App. 1 (4), 587-597 (2008).
- Vitt, P., Havens, K., Kramer, A. T., Sollenberger, D., Yates, E. Assisted migration of plants: Changes in latitudes, changes in attitudes. Biol Cons. 143 (1), 18-27 (2010).
- Buerger, P., et al. Heat-evolved microalgal symbionts increase coral bleaching tolerance. Sci Adv. 6 (20), 2498(2020).
- Chakravarti, L. J., van Oppen, M. J. H. Experimental evolution in coral photosymbionts as a tool to increase thermal tolerance. Fron Mar Sci. 5, (2018).
- van Oppen, M. J. H., et al. Shifting paradigms in restoration of the world's coral reefs. Global Change Biology. 23 (9), 3437-3448 (2017).
- Harborne, A. R., Rogers, A., Bozec, Y. -M., Mumby, P. J. Multiple Stressors and the Functioning of Coral Reefs. Ann Rev Mar Sci. 9 (1), 445-468 (2017).
- Hughes, T. P., et al. Climate change, human impacts, and the resilience of coral reefs. Science. 301 (5635), 929-933 (2003).
- Anthony, K., et al. New interventions are needed to save coral reefs. Nat Ecol & Evol. 1 (10), 1420-1422 (2017).
- Darling, E. S., Côté, I. M. Seeking resilience in marine ecosystems. Science. 359 (6379), 986-987 (2018).
- van Oppen, M. J. H., Puill-Stephan, E., Lundgren, P., De'ath, G., Bay, L. K. First-generation fitness consequences of inter-populational hybridization in a Great Barrier Reef coral and its implications for assisted migration management. Coral Reefs. 33 (3), 607-611 (2014).
- Coleman, M. A., Goold, H. D. Harnessing synthetic biology for kelp forest conservation1. J Phycol. 55 (4), 745-751 (2019).
- Liboureau, P., Pearson, G. A., Barreto, L., Serrao, E. A., Kreiner, A., Martins, N. Effects of thermal history on reproductive success and cross-generational effects in the kelp Laminaria pallida (Phaeophyceae). Mar Ecol Prog Ser. 715, 41-56 (2023).
Przedruki i uprawnienia
