W tym protokole opisujemy metodę jednoczesnego pobierania tkanki mózgowej płodu, jak również wysokiej jakości, niehemolizowanej surowicy z tego samego zarodka myszy. Wykorzystaliśmy tę technikę do zbadania, w jaki sposób narażenie matki na dietę wpływa na profile makroskładników odżywczych i rozwój neurologiczny płodu u myszy heterozygotycznych pod kątem Nf1 (nerwiakowłókniakowatość typu 1).
Artykuł metodologiczny
Równoczesne pobieranie płodu mysiego mózgu i surowicy w celu oceny wpływu diety matki na odżywianie i rozwój neurologiczny w nerwiakowłókniakowatości typu 1
W tym artykule
Podsumowanie
Streszczenie
Wykazano, że otyłość wywołana dietą matki zmienia rozwój neurologiczny u potomstwa, co może prowadzić do zmniejszenia zdolności poznawczych, nadpobudliwości i upośledzenia zachowań społecznych. Pacjenci z klinicznie heterogenną chorobą genetyczną nerwiakowłókniakowatość typu 1 (NF1) mogą wykazywać podobne deficyty, ale obecnie nie jest jasne, czy czynniki środowiskowe, takie jak dieta matki, wpływają na rozwój tych fenotypów, a jeśli tak, to jaki jest mechanizm, dzięki któremu taki efekt mógłby wystąpić. Aby umożliwić ocenę, w jaki sposób narażenie matki na dietę otyłą wpływa na czynniki ogólnoustrojowe istotne dla rozwoju neurologicznego w NF1, opracowaliśmy metodę jednoczesnego zbierania niehemolizowanej surowicy i całych lub regionalnie mikrowypreparowanych mózgów od płodowego potomstwa mysich matek karmionych dietą kontrolną w porównaniu z dietą wysokotłuszczową i bogatą w sacharozę. Mózgi poddano procesowi kriosekcji lub błyskawicznego zamrożenia w celu wykorzystania do późniejszej izolacji RNA lub białka; Jakość pobranej tkanki zweryfikowano za pomocą barwienia immunologicznego. Jakość surowicy została zweryfikowana poprzez analizę profili makroskładników. Korzystając z tej techniki, stwierdziliśmy, że dieta otyła matki zwiększa poziom cholesterolu w surowicy płodu podobnie u młodych heterozygotycznych WT i Nf1.
Wprowadzenie
Nerwiakowłókniakowatość typu 1 (NF1) jest uważana za RASopatię, grupę zaburzeń charakteryzujących się mutacjami genetycznymi linii zarodkowej, które skutkują aktywacją szlaku sygnałowego RAS/MAPK (wirus mięsaka RAt/kinaza białkowa aktywowana mitogenem). Pacjenci z NF1 RASopatia są narażeni na rozwój wielu różnych objawów, w tym zarówno łagodnych, jak i złośliwych nowotworów centralnych (glejak szlaku wzrokowego1,2, glejak wysokiego stopnia3,4) i obwodowe (nerwiakowłókniak splotowaty5,6, złośliwy guz osłonki nerwu obwodowego7,8) układ nerwowy oraz dysplazje kostne9 i nieprawidłowości pigmentowe skóry10 (piegi pachowe, plamki żółte). Wpływ tego zaburzenia na funkcje poznawcze i rozwój neurologiczny jest coraz częściej uznawany, a pacjenci z NF1 wykazują zwiększoną częstość występowania deficytów w uczeniu się, nadpobudliwości i zaburzeń ze spektrum autyzmu11,12,13. Istnieje jednak znaczna heterogeniczność w rozwoju tych fenotypów między pacjentami13,14,15,16,17, i nie jest jasne, dlaczego niektórzy pacjenci wykazują znaczne upośledzenie funkcji poznawczych, podczas gdy inni nie są dotknięci. Wykazano, że otyłość wywołana dietą matki podobnie wpływa na uczenie się i zachowanie w populacji ogólnej18,19,20,21,22,23,24,25,26,27,28, co sugeruje, że zróżnicowane narażenie matki w NF1 może być jednym ze źródeł tej klinicznej niejednorodności. W szczególności dzieci otyłych matek wykazują zwiększone ryzyko rozwoju nadpobudliwości18,19,20,23,25,26, autism19,24,27, deficyty funkcji wykonawczych21,23, i mają niższe wyniki IQ w pełnej skali22,28. Jednak pacjenci z NF1 mają zmienione fenotypy metaboliczne w porównaniu z populacją ogólną, w tym zmniejszoną częstość występowania otyłości i cukrzycy29,30,31, co sprawia, że nie jest jasne, czy będą reagować podobnie na bodźce dietetyczne.
Aby odpowiedzieć na te pytania, chcieliśmy ustalić, czy wywołane przez dietę otyłości zmiany profilu makroskładników odżywczych u płodowego potomstwa z Nf1 przyczyniły się do zmian neurorozwojowych. Wcześniej zebraliśmy wysokiej jakości całą i regionalnie mikrowypreparowaną tkankę odpowiednią do zastosowań neurorozwojowych z mózgu płodu32. Jednak pobieranie krwi płodu jest trudne ze względu na mały rozmiar ciała i małą objętość krwi33. Pobieranie krwi za pomocą drenażu wspomaganego grawitacyjnie po dekapitacji doprowadziło do małej objętości pobierania i znacznej hemolizy w naszych próbkach, co może wpływać na dalszą interpretację aplikacji. Pobieranie za pomocą aspiracji z serca płodu lub naczyń piersiowych, jak już wcześniej informowaliśmy33, było technicznie trudne, a także skutkowało częstą hemolizą. W ten sposób opracowaliśmy metodę pobierania surowicy płodu, która wykorzystuje specjalistyczne rurki kapilarne, aby umożliwić pobranie większej objętości bez znacznego naprężenia ścinającego.
Tutaj prezentujemy tę metodę jednoczesnego pobierania embrionalnych mózgów i płodowej surowicy od heterozygotycznych szczeniąt Nf1 narażonych na dietę wysokotłuszczową i wysokocukrową w porównaniu z dietą kontrolną w macicy (Rysunek 1 i Tabela uzupełniająca S1). Mózgi zostały osadzone w kriogenicznym roztworze w celu późniejszej analizy za pomocą immunofluorescencji lub regionalnie mikrowypreparowane i zamrożone w celu późniejszego wykorzystania w zastosowaniach biologii molekularnej. Uzyskano wysokiej jakości surowicę, odpowiednią do dalszych zastosowań, takich jak profilowanie makroskładników. Stosując tę metodę, stwierdziliśmy, że narażenie matki na dietę wysokotłuszczową i wysokosacharozową prowadzi do podniesienia poziomu cholesterolu w surowicy zarówno u szczeniąt heterozygotycznych WT, jak i Nf1.
Protokół
Wszystkie procedury na zwierzętach w tym badaniu były zgodne z wytycznymi NIH i zostały zatwierdzone przez Institutional Animal Care and Use Committee Uniwersytetu Waszyngtońskiego w St. Louis. Zwierzęta były trzymane w pomieszczeniach ze standardowym 12-godzinnym cyklem światło-ciemność oraz swobodnym dostępem do jedzenia i wody.
1. Dieta matczyna
- Umieść samice myszy na karwie kontrolnej (CD) lub diecie otyłej (Ob) w wieku 4 tygodni .
- W wieku 8-12 tygodni należy rozpocząć krycie w określonym czasie, monitorując czop śluzowy matki wczesnym rankiem, aby określić prawidłowy wiek zbierania. Aby zweryfikować otyłość wywołaną dietą, zważ samice podczas krycia.
UWAGA: Do początkowej konfiguracji krycia zastosowano zakres 8-12 tygodni, aby upewnić się, że otyłe samice karmione dietą mają nadwagę w porównaniu z ich odpowiednikami, co nie zawsze występowało w wieku 8 tygodni. Dzień zatyczki jest uważany za dzień embrionalny 1 (E1), a wszystkie zwierzęta użyte w tym badaniu zostały zebrane w E19. Późny punkt czasowy płodu został wybrany ze względu na zmiany neurorozwojowe obserwowane wcześniej w tym czasie u otyłych zwierząt narażonych na dietę (dane nie pokazane).
2. Usunięcie płodu z matki
- Po pierwsze, upewnij się, że matka wydaje się grawitacyjna (kształt i pełność brzucha, badanie palpacyjne brzucha lub ruchy płodu). W razie wątpliwości ponownie zważ samicę, aby zmierzyć przyrost masy ciała.
UWAGA: Myszy w późnej ciąży powinny wykazywać przyrost masy ciała co najmniej 3-4 g. Aby zwiększyć prawdopodobieństwo zapłodnienia w pożądanym czasie, brudne (zawierające mocz i feromony) trociny z klatki samca mogą być dodawane do klatki samicy codziennie przez 3 dni przed kryciem, aby wywołać ruję34. - Poddaj zaporę eutanazji, umieszczając ją w komorze z ręcznikiem papierowym zawierającym 3 ml izofluranu, uważając, aby uniknąć bezpośredniego kontaktu koferdamu z ręcznikiem papierowym nasączonym środkiem znieczulającym. Po uspokojeniu zwierzęcia połóż je na ręczniku papierowym, przytrzymaj za ogon, umieść nożyczki preparacyjne na szyi, a następnie popchnij nożyczki w górę w kierunku głowy, aby wykonać zwichnięcie szyjki macicy. Alternatywnie, należy wykonać dekapitację po sedacji izofluranem.
UWAGA: Na tym etapie surowicę można pobrać z zapory, stosując podobną metodologię, jak opisano poniżej, ale z większymi rurkami kapilarnymi. Jeśli jest to pożądane, należy wykonać dekapitację, a nie zwichnięcie szyjki macicy. Należy dołożyć starań, aby zapewnić, że fenotyp będący przedmiotem zainteresowania nie zostanie zmieniony przez podanie izofluranu bezpośrednio przed eutanazją. - Umieść zaporę brzuszną do góry w naczyniu o średnicy 100 mm. Uszczypnij skórę pokrywającą brzuch i wykonaj nacięcie w linii środkowej nożyczkami preparacyjnymi. Wykonaj dodatkowe nacięcia prostopadłe do nacięcia w linii środkowej, aby utworzyć płaty skóry odsłaniające macicę zawierającą zarodki.
- Wyciągnij macicę z jamy brzusznej. Za pomocą nożyczek odłącz macicę od tamy. Umieść nienaruszony woreczek embrionalny ("perły na sznurku") zawierający zarodki w naczyniu z zimnym sterylnym 1x soli fizjologicznej buforowanej fosforanami (PBS). Umieść naczynie z płodami na lodzie.
UWAGA: Ponieważ każdy miot zazwyczaj zawiera 6-10 szczeniąt, które zostaną zebrane zarówno na mózg, jak i surowicę, płody są trzymane na lodzie, aby uniknąć degradacji tkanek. Umieszczenie szczeniąt na lodzie dodatkowo zapewnia odpowiednią eutanazję szczeniąt, ponieważ sama eutanazja matki może nie zawsze być wystarczająca. Jeśli pożądane jest tylko pobranie surowicy, preferowane może być pobranie w temperaturze pokojowej.
3. Pobieranie surowicy płodowej
- Usuń płód z worka embrionalnego, ostrożnie preparując kleszczami #5. Przenieś zarodek do naczynia za pomocą zakrzywionych kleszczy ze świeżym, zimnym, sterylnym 1x PBS.
- Delikatnie osusz zwierzę na ręczniku papierowym, aby usunąć resztki płynu owodniowego i PBS z próbki.
- Trzymaj zwierzę za brzuch. Częściowo odetnij głowę zwierzęcia mikronożyczkami, wykonując nacięcie na brzusznej szyi. Upewnij się, że naczynia krwionośne są przecięte, ale skóra podtrzymująca głowę jest nadal przyczepiona.
UWAGA: Głowa musi pozostać przymocowana, aby można było jednocześnie pobrać krew z ciała i głowy. - Trzymaj ciało pod kątem 45° z nacięciem skierowanym w dół. Trzymaj miniwet (rurkę kapilarną) o pojemności 50 μl równolegle do miejsca nacięcia zapory, gdzie krew tworzy kropelkę. Ostrożnie pozwól, aby rurka kapilarna o pojemności 50 μl wypełniła się krwią.
UWAGA: Rurka kapilarna x2 lub rurka kapilarna 100 μL może być używana do pobierania do ~75 μL krwi. - Umieścić głowę w świeżym naczyniu o średnicy 60 mm zawierającym zimny, sterylny 1x PBS do dalszego pobierania tkanek (sekcja 4).
- Gdy krew znajdzie się w rurce kapilarnej, szybko wciśnij tłok do probówki o pojemności 1,5 ml. Przesuń probówkę lub szybko ją obróć, aby upewnić się, że krew znajduje się na dnie probówki.
- Powtórz dla pozostałej części miotu.
UWAGA: Trzymanie szczeniąt na lodzie i szybkie przemieszczanie się między nimi jest niezbędne, aby zmniejszyć ryzyko koagulacji pośmiertnej, która ograniczy objętość pobrania. - Koagulować krew w temperaturze pokojowej przez 30 minut.
- Odwirować próbki krwi w temperaturze 4 °C, 16 000 × g przez 20 minut.
- Przenieść surowicę do świeżych probówek o pojemności 500 μl za pomocą pipety o pojemności 200 μl, nie naruszając osadu krwinek na dnie probówki.
UWAGA: Serum powinno być koloru słomkowego i nie powinno zawierać czerwonych zanieczyszczeń. Z każdego płodu powinno wyprodukować 15-30 μl surowicy. - Pobraną surowicę przechowywać w temperaturze -80 °C.
4. Kolekcja mózgu płodu
- Patrząc przez mikroskop preparacyjny, przytrzymaj pysk za pomocą zakrzywionych kleszczy i użyj kleszczy #5, aby ostrożnie zdjąć skórę z czapki czaszki, trzymając ją przymocowaną do pyska, aby ułatwić trzymanie. Kąt #5 kleszczy do 45 ° w stosunku do czaszki, ostrożnie nakłuj przezroczystą błonę, którą jest rozwijająca się czaszka, przesuń kleszcze równolegle do czaszki, włóż je pod czapkę czaszki, a następnie uszczypnij i oderwij na bok. Po usunięciu jednej strony chwyć pozostałą stronę kleszczami #5 i oderwij na drugą stronę.
- Delikatnie zgarnij mózg z czaszki za pomocą mikro łyżki i przenieś mózg do świeżego naczynia o średnicy 60 mm zawierającego zimne 1x PBS.
UWAGA: W tym momencie całe mózgi mogą zostać unieruchomione i osadzone w celu barwienia immunologicznego. Zobacz poprzednio opublikowaną metodologię32. - Jeśli tkanka musi zostać zamrożona na zatrzask do innych zastosowań molekularnych, należy przeprowadzić subsekcję obszaru zainteresowania. Izolacja tkanki okołokomorowej wokół komory bocznej, trzeciej i czwartej opisano poniżej.
- Używając zakrzywionych kleszczy, przytrzymaj mózg na styku tyłomózgowia i przodomózgowia ręką niedominującą. Ręką dominującą trzymaj skalpel z ostrzem równolegle do powierzchni mózgu. Mocno dociśnij środkową część kory mózgowej (Rysunek 1).
- Trzymając tyłomózgowie, wykonaj drugie nacięcie przed tyłomózgowiem, aby oddzielić je od przodomózgowia (Ryc. 1). W najbardziej wysuniętej do przodu części poszukaj dwóch małych półkolistych przestrzeni znajdujących się w płaszczyźnie poziomej, które są komorami bocznymi. Użyj zakrzywionych kleszczy umieszczonych pośrodku każdej komory, aby utrzymać mózg na miejscu, ostrożnie wypreparuj wyściółkę za pomocą kleszczy #5 i wyjmij do świeżej, czystej probówki do mikrowirówki o pojemności 1,5 ml.
- W środkowej części poszukaj małej liniowej przestrzeni na powierzchni brzusznej, która jest trzecią komorą. Za pomocą kleszczy #5 ostrożnie ściśnij wyściółkę po obu stronach powierzchni komory, a następnie wyjmij do świeżej, czystej probówki do mikrowirówki o pojemności 1,5 ml.
- W najbardziej tylnej części poszukaj małej liniowej przestrzeni centralnie w tyłomózgowiu, która jest czwartą komorą. Rozetnij wyściółkę po obu stronach za pomocą kleszczy #5, a następnie wyjmij do świeżej, czystej probówki do mikrowirówki o pojemności 1,5 ml.
UWAGA: Jeśli przecięcie tyłomózgowia nie jest czystym cięciem, tkanka czwartej komory może być zasłonięta i/lub zniszczona. - Dla etapów 4.3.2-4.3.4, natychmiast po umieszczeniu tkanki w probówkach do mikrowirówek, należy szybko umieścić probówki w kriobezpiecznym pojemniku zawierającym ciekły azot.
UWAGA: Probówki można przechowywać w ciekłym azocie do czasu wycięcia pozostałych próbek. UWAGA: Ciekły azot może powodować poważne odmrożenia. Nie wkładaj rąk bezpośrednio do ciekłego azotu i unikaj rozprysków. - Umieść zamrożoną probówkę (probówki) na suchym lodzie i przenieś zamrożoną tkankę do zamrażarki o temperaturze -80 °C do czasu użycia.
Wyniki
Aby zilustrować jakość tkanki mózgowej uzyskanej za pomocą tej techniki, prezentujemy próbki mózgu płodowego myszy Nestin-CFPnuc35, poddane immunobarwieniu na GFAP zgodnie z wcześniej opisaną metodą32. Widoczne są komórki Nestin+ wyściełające komorę boczną (Rysunek 2A), z włóknami GFAP+ wychodzącymi z powierzchni. Nie zaobserwowano różnic w ekspresji Nestin lub GFAP w komorze bocznej myszy z grupy CD w porównaniu z myszami eksponowanymi na Ob, zarówno w szczepach WT, jak i Nf1-heterozygotycznych (Rysunek 2A,B). Następnie oceniono jakość tkanki poddanej mikrodysekcji. W pierwszej kolejności wykonano western blotting36 dla białka kontrolnego β-aktyny w tkance poddanej mikrodysekcji, wyizolowanej z komór bocznych myszy z grupy CD oraz myszy eksponowanych na Ob. Wszystkie próbki wykazały silną ekspresję β-aktyny (Rysunek 2C), zgodnie z oczekiwaniami. Następnie wyizolowano RNA z tkanki poddanej mikrodysekcji zgodnie z wcześniej opisaną metodologią32. Wyizolowane RNA wykazywało zarówno wysoką czystość (260/280 ≥ 2), jak i integralność (wartości RIN ≥ 9), co świadczy o wysokiej czystości i braku degradacji RNA (Rysunek 2D).
Następnie porównaliśmy różne metody izolacji surowicy. Stosując naszą metodę z użyciem minivette, rutynowo pobieraliśmy większe objętości surowicy niehemolizowanej, podczas gdy drenaż grawitacyjny i punkcja klatki piersiowej skutkowały bardzo zmienną objętością pobranych próbek oraz hemolizą w wielu z nich (Rycina 3A,B). Aby zobrazować jakość surowicy uzyskanej tą techniką, zmierzyliśmy całkowity poziom cholesterolu w surowicy, używając odczynnika do oznaczania cholesterolu całkowitego zgodnie z instrukcjami producenta. Poziomy cholesterolu u płodów mieściły się w zakresie oczekiwanym dla szczeniąt w późnej ciąży, w oparciu o wcześniejsze badania na ludzkich płodach37. Poziomy te były podwyższone u myszy eksponowanych na Ob w porównaniu do eksponowanych na CD, zarówno dla typu dzikiego (Rycina 3C, lewa), jak i dla szczeniąt heterozygotycznych pod względem Nf1 (Rycina 3C, prawa). Należy zauważyć, że prawy panel przedstawia połączone dane z dwóch różnych szczepów heterozygotycznych Nf1 z zidentyfikowanymi u pacjentów mutacjami w linii zarodkowej (R681X, C383X)32,38,39, ponieważ w obu szczepach zaobserwowano podobne profile.
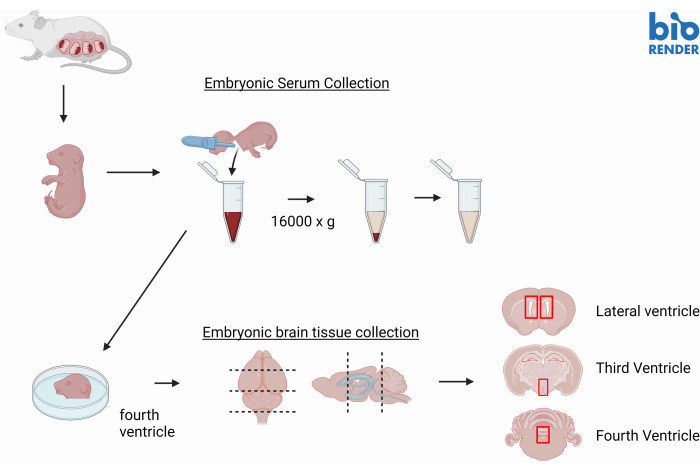
Rycina 1: Graficzny schemat przebiegu pracy. W pierwszej kolejności młode myszy są izolowane od ciężarnych matek. Następnie z młodych myszy pobierana jest surowica. Na koniec izoluje się całe mózgi, które w razie potrzeby poddaje się mikrodissekcji w celu wyodrębnienia interesujących obszarów. Grafika stworzona przy użyciu BioRender.com. Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.
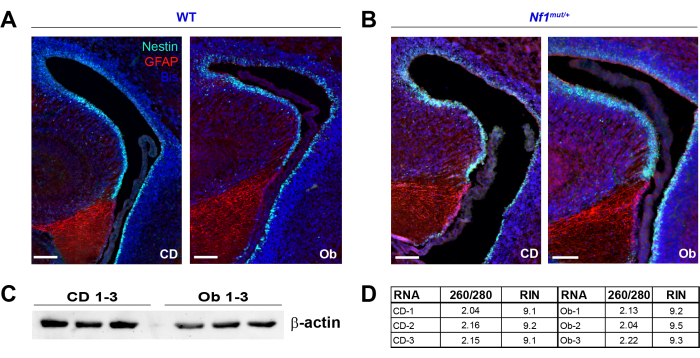
Rysunek 2: Przykładowe wyniki, tkanka mózgowa. (A) Przekroje mrożone mózgów myszy Nestin-CFPnuc, które wykazują ekspresję zlokalizowanego w jądrze cyjanowego białka fluorescencyjnego pod kontrolą promotora Nestiny, pobrano tą metodą i poddano uodznaczeniu dla GFAP (czerwony) zgodnie z wcześniej opisaną metodologią32. Komórki Nestin-dodatnie są widoczne dzięki endogennej ekspresji Nestin-CFPnuc (zielony). Jądra komórkowe wybarwiono bis-benzimidem (niebieski). Nie stwierdzono istotnych różnic między mózgami WT w grupie CD i Ob. Pasek skali = 100 µm. (B) W podobny sposób oceniono młode myszy Nestin-CFPnuc; Nf1mut/+. Rozkład GFAP i Nestin-CFP wydawał się podobny do grupy WT i nie zmieniał się w zależności od warunków żywieniowych. Pasek skali = 100 µm. (C) Białko wyizolowano z mikrodysekcyjnej tkanki z LV. Western blotting przeprowadzono zgodnie z wcześniej opisaną metodologią36, nakładając 20 µg białka na każdą ścieżkę. Silna ekspresja β-aktyny była wykrywalna we wszystkich próbkach. (D) RNA wyizolowano z mikrodysekcyjnej tkanki zgodnie z wcześniej opisaną metodologią32. Jakość RNA oceniono za pomocą stosunków 260/280 oraz wartości RIN. Wszystkie próbki wykazały doskonałe stosunki 260/280 (≥2) i wartości RIN (≥9), co wskazuje na prawidłową izolację niedegradowanego RNA. Skróty: CFP = cyjanowe białko fluorescencyjne; GFAP = kwaśne białko włókienstwa gljalnego; WT = typ dziki; LV = komora boczna; RIN = wskaźnik integralności RNA. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
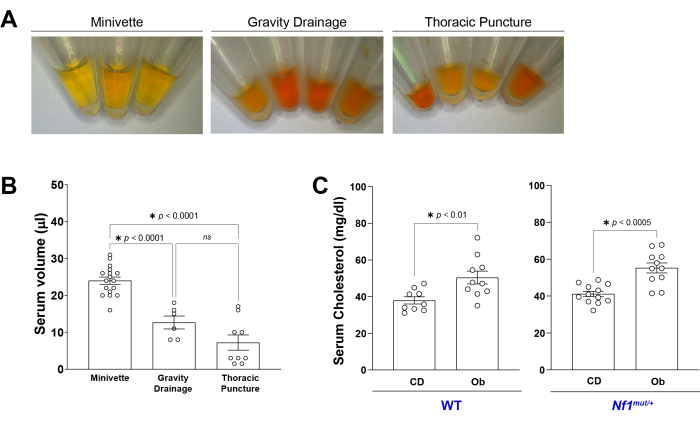
Rysunek 3: Ilustracyjne wyniki i surowica. (A) Surowica została pobrana każdą z opisanych metod. Pobieranie za pomocą minivette umożliwiło rutynowe pozyskiwanie surowicy niehemolizowanej w porównaniu z drenażem grawitacyjnym i punkcją klatki piersiowej. (B) Przedstawiono typowe objętości pobranej surowicy. Pobieranie minivette pozwoliło na bardziej powtarzalne pozyskiwanie większych objętości surowicy. Istotność statystyczną określono za pomocą jednoczynnikowej analizy ANOVA z wielokrotnymi porównaniami. Słupki błędów: SEM. (C) Całkowity poziom cholesterolu w surowicy zmierzono w próbkach z CD vs Ob-exposed WT (lewo) oraz Nf1-heterozygotycznych (prawo) z połączonej surowicy płodowej; zwierzęta poddane diecie Ob wykazały wyższy poziom cholesterolu w surowicy w obu genotypach. Istotność statystyczną określono za pomocą testu t. Słupki błędów: SEM. Skróty: WT = typ dziki; CD = dieta kontrolna; Ob = dieta obesogenna. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Tabela uzupełniająca S1: Składy diet. Przedstawiono skład diety kontrolnej i diet obesogennych wykorzystanych w niniejszym opracowaniu. UWAGA: W przypadku potrzeby zastosowania diety niskotłuszczowej bez sacharozy, która lepiej kontroluje poszczególne składniki dietetyczne w D12331, preferowana może być dieta D12328 (researchdiets.com). Kliknij tutaj, aby pobrać ten plik.
Dyskusja
Tradycyjne metody pobierania krwi od myszy obejmują krwawienie z żyły zagałkowej, żyły ogonowej, żyły odpiszczelowej, żyły twarzowej i krwawienia z żyły szyjnej 40,41,42. Niestety, metody te nie są idealne do pobierania krwi embrionalnej ze względu na wielkość zwierzęcia i małe, delikatne unaczynienie. Pobieranie krwi za pomocą drenażu wspomaganego grawitacyjnie po dekapitacji doprowadziło zarówno do małych objętości pobrania, jak i znacznej hemolizy w naszych próbkach. Poprzednie protokoły informowały o poprawie objętości dzięki użyciu zmodyfikowanej igły o wadze 20 G do odprowadzania krwi z naczyń krwionośnych klatki piersiowej33; Uznaliśmy jednak, że ta technika jest technicznie trudna i zaobserwowaliśmy wysokie wskaźniki hemolizy, co sprawia, że nie nadaje się ona do wielu dalszych zastosowań. Nasza metoda ma tę zaletę, że pobiera się ją poprzez pasywny przepływ krwi, co zmniejsza ryzyko hemolizy z powodu zwykłego stresu wywołanego aspiracją. Tłok na rurce kapilarnej zapewnia również szybki i skuteczny sposób dostarczania krwi do probówki zbiorczej, minimalizując ekspozycję na powietrze i ograniczając fragmentację skrzepów krwi. Co ważne, cała lub regionalnie mikrowypreparowana tkanka mózgowa może być następnie pobrana od tego samego zwierzęcia, co zmniejsza całkowite zapotrzebowanie zwierząt doświadczalnych.
Protokół ten nie jest pozbawiony zmian mających na celu optymalizację jakości i wydajności zbierania. W przypadku pobierania surowicy ważne jest, aby delikatnie usunąć płyn embrionalny i dodatkowy PBS ze zwierzęcia przed pobraniem krwi, ponieważ nadmiar płynu może sprawić, że zwierzę stanie się śliskie i zwiększyć prawdopodobieństwo złego lub niestabilnego ułożenia, co negatywnie wpłynie na jakość pobierania krwi. Ponadto ułożenie palca podczas trzymania zarodka ma kluczowe znaczenie, ponieważ krew będzie przyklejać się do palca w rękawiczce podczas pobierania, jeśli palec przylega do rurki kapilarnej. Ważne jest również, aby otwór rurki kapilarnej przylegał do przepływającej krwi, a nie był w niej zanurzony; Zbieranie kapilarne zostanie zakłócone, jeśli rurka zostanie zanurzona. Na koniec należy dokładnie rozważyć dalszą aplikację, aby zoptymalizować zbieranie surowicy. Na przykład glukoza ulega degradacji z czasem w nietraktowanych probówkach w temperaturze pokojowej, więc zbieranie do fluorku sodu lub probówek zawierających EDTA może być konieczne do dokładnego ilościowego określenia poziomu glukozy43,44.
W przypadku pobrania tkanki mózgowej staranne usunięcie skóry i przezroczystej czaszki po obu stronach głowy ma kluczowe znaczenie dla czystej ekstrakcji. Jeśli wypreparowana zostanie tylko jedna strona, mózg może przykleić się do czaszki przy próbie usunięcia, powodując rozerwanie i zniekształcenie tkanki. Do podziału mózgu ważne jest, aby zrobić pojedyncze, czyste plasterki, aby oddzielić przednią korę od środkowej i środkową korę od tyłomózgowia. Wielokrotne nacięcia mogą zakłócić integralność strukturalną tkanki lub zaciemnić punkt odniesienia dla późniejszej mikrodysekcji. Wreszcie, utrzymywanie próbek na lodzie do czasu utrwalenia lub natychmiastowego zamrożenia ma kluczowe znaczenie dla zapobieżenia degradacji próbki.
Chociaż preferujemy tę metodę ze względu na rutynowe pobieranie większej objętości, niehemolizowanej surowicy, nie jest ona pozbawiona wad. Chociaż hemoliza jest zmniejszona w porównaniu z innymi technikami, ta metoda nie eliminuje ryzyka. Rurka kapilarna może również zostać zatkana skrzepem krwi, gdy krew przestanie płynąć, dlatego ważne jest, aby działać szybko po dekapitacji, aby zmniejszyć ryzyko nieudanego pobrania z powodu krzepnięcia. Przechowywanie próbek na lodzie, co w tym protokole ma na celu zachowanie integralności próbki, może również niekorzystnie wpływać na niektóre fenotypy i może nie być odpowiednie dla wszystkich zastosowań.
Podsumowując, metodologia ta może być stosowana do jednoczesnego izolowania surowicy, a także całych lub regionalnie mikropreparowanych mózgów od tego samego płodu. Technika ta może być wykorzystana do określenia, w jaki sposób czynniki ogólnoustrojowe, takie jak zmiana profilu makroskładników odżywczych wywołana dietą matki, mogą wpływać na rozwój neurologiczny w NF1 lub innych zaburzeniach.
Oświadczenia
Autorzy nie pozostają w konflikcie interesów.
Podziękowania
N Brossier jest wspierany przez Francis S. Collins Scholars Program in Neurofibromatosis Clinical and Translational Research, finansowany przez Neurofibromatosis Therapeutic Acceleration Program (NTAP, Grant # 210112). Publikacja ta została częściowo wsparta przez fundusze NTAP w Johns Hopkins University School of Medicine. Wyłączną odpowiedzialność za jego treść ponoszą autorzy i niekoniecznie reprezentują one oficjalne poglądy The Johns Hopkins University School of Medicine. Dodatkowe wsparcie ze strony Szpitala Dziecięcego St. Louis (FDN-2022-1082 dla NMB) oraz Washington University in St. Louis Diabetes Research Core (NIH P30 DK020579). Mikroskopię przeprowadzono przy użyciu Centrum Obrazowania Komórkowego Uniwersytetu Waszyngtońskiego (WUCCI), wspieranego przez Washington University School of Medicine, The Children's Discovery Institute of Washington University oraz St. Louis Children's Hospital (CDI-CORE-2015-505 i CDI-CORE-2019-813) oraz Foundation for Barnes-Jewish Hospital (3770 i 4642). Nestin-CFPnuc35 myszy zostało hojnie dostarczonych przez Grigorija Enikolopova (Renaissance School of Medicine, Stony Brook University, NY), a myszy Nf1 heterozygotyczne pod względem mutacji linii zarodkowej R681X lub C383X32,38,39 zostały hojnie dostarczone przez Davida Gutmanna (Washington University School of Medicine, St. Louis, MO). Rysunek 1 został utworzony za pomocą BioRender.com.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| #5/45 Kleszcze | Dumont | 11251-35 | Kształt końcówki: kątowa 45& |
| 4200 Tapestation | Agilent | G2991BA | Sprawdź integralność i jakość RNA, pomiar wartości RIN |
| Stacjonarny pojemnik na ciekły azot | Thermo Fisher | 2122 | Lub inny pojemnik kriobezpieczny |
| Control Chow | PicoLab | 5053 | Diety badawcze D12328 (niskotłuszczowe, niskocukrowe) mogą być również stosowane. |
| Kleszcze zakrzywione | Cole Parmer | UX-10818-25 | Kształt końcówki: zakrzywiona 90° |
| Rękojeść ostrza preparacyjnego | Cole-Parmer Essentials | 10822-20 | SS Siegel-Type, ostrza #10 do #15 |
| Nożyczki preparacyjne EMS SuperCut | Mikroskop elektronowy nauki | 72996-01 | 5½ " (139,7 mm), Proste |
| przeciwciało GFAP | Abcam | ab7260 | Rozcieńczone w stosunku 1:350. Blok z 10% serum zawierającym 0,3 M Glicyny. |
| Ostrza chirurgiczne ze stali węglowej Glassvan, rozmiar 11 | MYCO medical | 2001T-11 | #11 umożliwiają proste, płaskie cięcie |
| Łyżka laboratoryjna Micro | Az Scilab | A2Z-VL001 | ze stali nierdzewnej, autoklawowalne |
| Nożyczki Micro | Rubis | 78180-1C3 | model 1C300 |
| Minivette POCT neutralny | Sarstedt | 17.2111.050 | objętość nominalna: 50 &mikro; L, bez preparatu |
| Nanorop | Thermo Fisher | 13-400-519 | Zmierz stężenie RNA, proporcje 260/280 Dieta |
| otyłości | Researchdiets.com | D12331 | wysokiej zawartości tłuszczu i wysokiej zawartości sacharozy |
| Thermo Fisher | TR13421 | Detekcja kolorymetryczna | |
| i przeciwciało beta;-aktyny | Sygnalizacja komórkowa | 8457 | Rozcieńczyć 1:1,000. |
Bibliografia
- Listernick, R., Darling, C., Greenwald, M., Strauss, L., Charrow, J. Optic pathway tumors in children: the effect of neurofibromatosis type 1 on clinical manifestations and natural history. J Pediatr. 127 (5), 718-722 (1995).
- Fisher, M. J., et al. Integrated molecular and clinical analysis of low-grade gliomas in children with neurofibromatosis type 1 (NF1). Acta Neuropathol. 141 (4), 605-617 (2021).
- Cimino, P. J., et al. Expanded analysis of high-grade astrocytoma with piloid features identifies an epigenetically and clinically distinct subtype associated with neurofibromatosis type 1. Acta Neuropathol. 145 (1), 71-82 (2023).
- Lucas, C. -H. G., et al. Multiplatform molecular analyses refine classification of gliomas arising in patients with neurofibromatosis type 1. Acta Neuropathol. 144 (4), 747-765 (2022).
- Fisher, M. J., et al. Management of neurofibromatosis type 1-associated plexiform neurofibromas. Neuro-Oncol. 24 (11), 1827-1844 (2022).
- Packer, R. J., et al. Plexiform neurofibromas in NF1. Neurology. 58 (10), 1461-1470 (2002).
- Evans, D. G. R., et al. Malignant peripheral nerve sheath tumours in neurofibromatosis 1. J Med Genet. 39 (5), 311(2002).
- Prudner, B. C., Ball, T., Rathore, R., Hirbe, A. C. Diagnosis and management of malignant peripheral nerve sheath tumors: Current practice and future perspectives. Neurooncol Adv. 2, Suppl 1 i40-i49 (2020).
- Ma, Y., et al. A molecular basis for neurofibroma-associated skeletal manifestations in NF1. Genet Med. 22 (11), 1786-1793 (2020).
- Ozarslan, B., Russo, T., Argenziano, G., Santoro, C., Piccolo, V. Cutaneous findings in neurofibromatosis Type 1. Cancers. 13 (3), 463(2021).
- Hyman, S. L., Shores, A., North, K. N. The nature and frequency of cognitive deficits in children with neurofibromatosis type 1. Neurology. 65 (7), 1037-1044 (2005).
- Morris, S. M., et al. Disease burden and symptom structure of autism in neurofibromatosis type 1: a study of the International NF1-ASD Consortium Team (INFACT). JAMA Psychiatry. 73 (12), 1276-1284 (2016).
- Geoffray, M. -M., et al. Predictors of cognitive, behavioural and academic difficulties in NF1. J Psychiatr Res. 140, 545-550 (2021).
- Monroe, C. L., Dahiya, S., Gutmann, D. H. Dissecting clinical heterogeneity in neurofibromatosis type 1. Ann Rev Pathol. 12 (1), 53-74 (2017).
- Kehrer-Sawatzki, H., Mautner, V. -F., Cooper, D. N. Emerging genotype-phenotype relationships in patients with large NF1 deletions. Hum Genet. 136 (4), 349-376 (2017).
- Hou, Y., et al. Predictors of cognitive development in children with neurofibromatosis type 1 and plexiform neurofibromas. Dev Med Child Neurol. 62 (8), 977-984 (2020).
- Biotteau, M., et al. Sporadic and familial variants in NF1: an explanation of the wide variability in neurocognitive phenotype. Front Neurol. 11, 368(2020).
- Rodriguez, A., et al. Maternal adiposity prior to pregnancy is associated with ADHD symptoms in offspring: evidence from three prospective pregnancy cohorts. Int J Obes (Lond). 32 (3), 550-557 (2008).
- Andersen, C. H., Thomsen, P. H., Nohr, E. A., Lemcke, S. Maternal body mass index before pregnancy as a risk factor for ADHD and autism in children). Eur Child Adolesc Psychiatry. 27 (2), 139-148 (2018).
- Pugh, S. J., et al. Gestational weight gain, prepregnancy body mass index and offspring attention-deficit hyperactivity disorder symptoms and behaviour at age 10. Bjog. 123 (13), 2094-2103 (2016).
- Mina, T. H., et al. Prenatal exposure to maternal very severe obesity is associated with impaired neurodevelopment and executive functioning in children. Pediatr Res. 82 (1), 47-54 (2017).
- Oken, E., et al. Analysis of maternal prenatal weight and offspring cognition and behavior: Results from the Promotion of Breastfeeding Intervention Trial (PROBIT) Cohort. JAMA Netw Open. 4 (8), e2121429-e2121429 (2021).
- Buss, C., et al. Impaired executive function mediates the association between maternal pre-pregnancy body mass index and child ADHD symptoms. PLOS ONE. 7 (6), e37758(2012).
- Li, Y. -M., et al. Association between maternal obesity and autism spectrum disorder in offspring: a meta-analysis. J Autism Dev Disord. 46 (1), 95-102 (2016).
- Dow, C., Galera, C., Charles, M. -A., Heude, B. Maternal pre-pregnancy BMI and offspring hyperactivity-inattention trajectories from 3 to 8 years in the EDEN birth cohort study. Eur Child Adolesc Psychiatry. 32 (10), 2057-2065 (2023).
- Fast, K., et al. Prevalence of attention-deficit/hyperactivity disorder and autism in 12-year-old children: A population-based cohort. Devl Med Child Neurol. 66 (4), 493-500 (2023).
- Carter, S. A., et al. Maternal obesity and diabetes during pregnancy and early autism screening score at well-child visits in standard clinical practice. Autism. 28 (4), 975-984 (2023).
- West, Z., et al. Relationships between maternal body mass index and child cognitive outcomes at 3 years of age are buffered by specific early environments in a prospective Canadian birth cohort. J Dev Orig Health Dis. 14 (1), 42-52 (2023).
- Gutmann, D. H., et al. Neurofibromatosis type 1. Nat Rev Dis Primers. 3, 17004(2017).
- Martins, A. S., et al. Lower fasting blood glucose in neurofibromatosis type 1. Endocr Connect. 5 (1), 28-33 (2016).
- Martins, A. S., et al. Increased insulin sensitivity in individuals with neurofibromatosis type 1. Arch Endocrinol Metab. 62 (1), 41-46 (2018).
- Brossier, N. M., Thondapu, S., Cobb, O. M., Dahiya, S., Gutmann, D. H. Temporal, spatial, and genetic constraints contribute to the patterning and penetrance of murine Neurofibromatosis-1 optic glioma. Neuro Oncol. 23 (4), 625-637 (2020).
- de Lurdes Pinto, M., et al. Technical Report: Mouse fetal blood collection taking the best out of the old needle-syringe method. Scandinavian Journal of Laboratory Animal Science. 35 (1), 5(2008).
- Musillo, C., et al. Bdnf-Nrf-2 crosstalk and emotional behavior are disrupted in a sex-dependent fashion in adolescent mice exposed to maternal stress or maternal obesity. Transl Psychiatry. 13 (1), 399(2023).
- Encinas, J. M., Vaahtokari, A., Enikolopov, G. Fluoxetine targets early progenitor cells in the adult brain. Proc Natl Acad Sci U S A. 103 (21), 8233-8238 (2006).
- Anastasaki, C., et al. Human induced pluripotent stem cell engineering establishes a humanized mouse platform for pediatric low-grade glioma modeling. Acta Neuropathol Commun. 10 (1), 120(2022).
- Cai, H. -J., Xie, C. -L., Chen, Q., Chen, X. -Y., Chen, Y. -H. The relationship between hepatic low-density lipoprotein receptor activity and serum cholesterol level in the human fetus. Hepatology. 13 (5), 852-857 (1991).
- Toonen, J. A., et al. NF1 germline mutation differentially dictates optic glioma formation and growth in neurofibromatosis-1. Hum Mol Genet. 25 (9), 1703-1713 (2016).
- Guo, X., Pan, Y., Gutmann, D. H. Genetic and genomic alterations differentially dictate low-grade glioma growth through cancer stem cell-specific chemokine recruitment of T cells and microglia. Neuro Oncol. 21 (10), 1250-1262 (2019).
- Parasuraman, S., Raveendran, R., Kesavan, R. Blood sample collection in small laboratory animals. J Pharmacol Pharmacother. 1 (2), 87-93 (2010).
- Meyer, N., et al. Impact of three commonly used blood sampling techniques on the welfare of laboratory mice: Taking the animal's perspective. PLOS ONE. 15 (9), e0238895(2020).
- Diehl, K. H., et al. A good practice guide to the administration of substances and removal of blood, including routes and volumes. J Appl Toxicol. 21 (1), 15-23 (2001).
- Jung, J., Garnett, E., Rector, K., Jariwala, P., Devaraj, S. Effect of collection tube type on glucose stability in whole blood. Ann Clin Lab Sci. 50 (4), 557-559 (2020).
- Bonetti, G., et al. Which sample tube should be used for routine glucose determination. Prim Care Diabetes. 10 (3), 227-232 (2016).
Przedruki i uprawnienia
