Ten protokół przedstawia zmodyfikowany mysi model powtarzalnego łagodnego urazowego uszkodzenia mózgu (rmTBI) wywołanego metodą zamkniętego urazu głowy (CHI). Podejście to obejmuje cieńsze okienko czaszki i płynną stymulację w celu zmniejszenia stanu zapalnego często spowodowanego ekspozycją opon mózgowych, a także lepszą odtwarzalność i dokładność w modelowaniu rmTBI u gryzoni.
Artykuł metodologiczny
Zmodyfikowany mysi model powtarzającego się łagodnego urazowego uszkodzenia mózgu z przerzedzonym okienkiem czaszki i płynną stymulacją
* These authors contributed equally
W tym artykule
Informacja o sprostowaniu
Important: There has been an erratum issued for this article. View Erratum Notice
Podsumowanie
Streszczenie
Łagodne urazowe uszkodzenie mózgu jest klinicznie wysoce heterogennym zaburzeniem neurologicznym. Wysoce powtarzalne modele zwierzęce urazowego uszkodzenia mózgu (TBI) z dobrze zdefiniowanymi patologiami są pilnie potrzebne do badania mechanizmów neuropatologii po łagodnym TBI i testowania środków terapeutycznych. Odtworzenie wszystkich następstw TBI w modelach zwierzęcych okazało się wyzwaniem. W związku z tym dostępność wielu modeli zwierzęcych TBI jest niezbędna, aby uwzględnić różnorodne aspekty i nasilenia obserwowane u pacjentów z TBI. CHI jest jedną z najczęstszych metod wytwarzania modeli rmTBI gryzoni. Metoda ta jest jednak podatna na wiele czynników, w tym zastosowaną metodę uderzeniową, grubość i kształt kości czaszki, bezdech zwierzęcy oraz rodzaj zastosowanego podparcia głowy i unieruchomienia. Celem tego protokołu jest zademonstrowanie kombinacji metod cienkiego okienka czaszki i płynnego uszkodzenia udarowego (FPI) w celu uzyskania precyzyjnego mysiego modelu rmTBI związanego z CHI. Głównym celem tego protokołu jest zminimalizowanie czynników, które mogą wpływać na dokładność i spójność modelowania CHI i FPI, w tym grubości, kształtu kości czaszki i podparcia głowy. Dzięki zastosowaniu metody przerzedzonego okna czaszki, potencjalny stan zapalny spowodowany kraniotomią i FPI jest zminimalizowany, co skutkuje ulepszonym modelem mysim, który replikuje cechy kliniczne obserwowane u pacjentów z łagodnym TBI. Wyniki analizy behawioralnej i histologicznej z użyciem barwienia hematoksyliną i eozyną (HE) sugerują, że rmTBI może prowadzić do skumulowanego urazu, który powoduje zmiany zarówno w zachowaniu, jak i ogólnej morfologii mózgu. Ogólnie rzecz biorąc, zmodyfikowany rmTBI związany z CHI stanowi użyteczne narzędzie dla naukowców do zbadania podstawowych mechanizmów, które przyczyniają się do ogniskowych i rozlanych zmian patofizjologicznych w rmTBI.
Wprowadzenie
Łagodne TBI, w tym wstrząśnienie mózgu i podwstrząs mózgu, stanowią większość wszystkich przypadków TBI (>80% wszystkich TBI)1. Łagodne TBI często wynika z upadków, wypadków drogowych, aktów przemocy, sportów kontaktowych (np. piłki nożnej, boksu, hokeja) i walk wojskowych2,3. Łagodne TBI może prowadzić do zdarzeń neurobiologicznych, które wpływają na funkcje neurobehawioralne przez całe życie pacjenta i zwiększają ryzyko chorób neurodegeneracyjnych4,5,6. Modele zwierzęce zapewniają skuteczny i kontrolowany sposób badania łagodnego TBI, z nadzieją na dalszą poprawę diagnostyki i leczenia łagodnego TBI. Opracowano różne modele łagodnego TBI, takie jak kontrolowane uderzenie korowe (CCI), spadek masy ciała (WD), płynne uszkodzenie udarowe (FPI) i modele blast-TBI7,8. Żaden pojedynczy model eksperymentalny nie jest w stanie odwzorować całej złożoności patologii wywołanej przez TBI9,10. Heterogeniczność tych modeli jest korzystna dla zajęcia się różnorodnymi cechami związanymi z łagodnymi pacjentami z TBI i zbadania odpowiadających im mechanizmów komórkowych i molekularnych. Jednak każdy zwierzęcy model TBI ma swoje ograniczenia3, co ogranicza naszą obecną wiedzę na temat łagodnego TBI u zwierząt i ich znaczenia klinicznego.
Modele WD i CCI są wykorzystywane do replikowania stanów klinicznych, takich jak utrata tkanki mózgowej, ostry krwiak podtwardówkowy, uszkodzenie aksonów, wstrząśnienie mózgu, dysfunkcja bariery krew-mózg, a nawet śpiączka po TBI3,11,12. Model WD polega na wywołaniu uszkodzenia mózgu poprzez uderzenie w oponę twardą lub czaszkę swobodnie spadającymi ciężarkami. Uderzenie obciążonego przedmiotu w nienaruszoną czaszkę może replikować mieszane urazy ogniskowe/rozproszone; Jednak ta metoda wiąże się ze słabą dokładnością i powtarzalnością miejsca urazu, urazem odbicia i wyższą śmiertelnością z powodu złamań czaszki3,11,12. Model CCI polega na zastosowaniu metalu napędzanego powietrzem, który bezpośrednio uderza w odsłoniętą oponę twardą. W porównaniu z modelem WD, model CCI jest dokładniejszy i bardziej powtarzalny, ale nie powoduje uszkodzeń rozproszonych ze względu na małą średnicę końcówki uderzającej11. Podczas modelowania FPI tkanka mózgowa jest na krótko przemieszczana i deformowana przez uderzenie. FPI może wywoływać mieszane uszkodzenie ogniskowe / rozproszone i replikować krwotok śródczaszkowy, obrzęk mózgu i postępujące uszkodzenie istoty szarej po TBI. Jednak FPI ma wysoki wskaźnik śmiertelności z powodu uszkodzenia pnia mózgu i przedłużającego się bezdechu3,12. Kraniotomia stosowana w konwencjonalnych modelach WD, CCI i FPI może prowadzić do stłuczenia kory mózgowej, zmian krwotocznych, uszkodzenia bariery krew-mózg, infiltracji komórek odpornościowych, aktywacji komórek glejowych, wydłużenia czasu modelowania i możliwych śmiertelnych skutków3,12.
Łagodne TBI charakteryzuje się wynikiem GCS (skala śpiączki Glasgow, GCS) w zakresie od 13 do 152. Łagodne TBI może być ogniskowe lub rozlane i jest związane zarówno z ostrymi urazami, takimi jak załamanie homeostazy komórkowej, ekscytotoksyczność, wyczerpanie glukozy, dysfunkcja mitochondriów, zaburzenia przepływu krwi i uszkodzenie aksonów, jak i urazy podostre, w tym uszkodzenie aksonów, zapalenie nerwów i glejoza2,3. Pomimo znacznego postępu w nakreśleniu skomplikowanej patofizjologii TBI, mechanizmy leżące u podstaw łagodnego TBI/rmTBI pozostają nieuchwytne i wymagają dalszych badań9. Biorąc pod uwagę, że CHI jest najpowszechniejszym typem TBI12, protokół ten prezentuje nowatorskie podejście do tworzenia bardziej precyzyjnie kontrolowanego mysiego modelu rmTBI przy użyciu zmodyfikowanego urządzenia FPI do wykonywania uderzenia w okno z przerzedzoną czaszką13. Unikając urazów wywołanych kraniotomią, zmiennej grubości czaszki i niedokładności spowodowanych kształtem oraz urazów związanych z odbiciem, podejście to ma na celu przezwyciężenie głównych wad związanych z modelami WD, CCI i FPI. Zastosowanie wpływu FPI na okienko z rozrzedzoną czaszką jest wygodne do oceny uszkodzenia naczyń mózgowych po rmTBI i pomaga zminimalizować wysokie wskaźniki śmiertelności w niektórych modelach, co skutkuje bliższym podobieństwem do cech klinicznych pacjentów z TBI.
Protokół
Wszystkie procedury związane z tym protokołem zostały przeprowadzone za zgodą Komitetu ds. Opieki i Użytkowania Zwierząt (Zhejiang Normal University, Numer Zezwolenia, dw2019005) oraz zgodnie z ARRIVE i NIH Guide for the Care and Use of Laboratory Animals. Specyfikacje techniczne można znaleźć w Tabeli Materiałów.
1. Procedura postępowania ze zwierzętami
- Myszy trzymane w kontrolowanym środowisku o temperaturze 22-24 °C, wilgotności w zakresie 40%-60%, 12-godzinny cykl światło/ciemność i zapewniają ad libitum dostęp do wody i standardowej karmy dla myszy. Do celów tego eksperymentu wykorzystano 25 samców myszy ICR (25-30 g, 8 tygodni).
- Losowo przydziel myszy do grupy kontrolnej (n = 12) lub grupy rmTBI (n = 13). Aby zapobiec potencjalnej agresji ze strony myszy pozorowanych w stosunku do myszy, które przeszły rmTBI, należy je umieścić w oddzielnych klatkach.
- Daj myszom co najmniej 1 tydzień na aklimatyzację w środowisku klatki przed rozpoczęciem eksperymentu. Ten okres aklimatyzacji zapewnia, że myszy zapoznają się z otoczeniem i minimalizują potencjalny wpływ stresu lub lęku na reakcje fizjologiczne lub behawioralne podczas badania.
2. Przygotowanie urządzenia TBI
- Wytwarzanie modelu rmTBI na myszach za pomocą zmodyfikowanego urządzenia FPI (patrz Tabela materiałów; Rysunek 1A)13. Przed użyciem urządzenia FPI dokładnie sprawdź wszystkie połączenia pod kątem oznak wycieku lub pęknięć, zwracając szczególną uwagę na połączenia między cylindrem a rurką oraz między łącznikiem trójdrożnym a rurką. Aby dokładnie określić ciśnienie uderzenia, zainstalowano przetwornik ciśnienia do punktu uderzenia w urządzenie do uszkadzania płynów udarowych13.
- Przeprowadź dokładną kontrolę urządzenia FPI, aby upewnić się, że tłok porusza się płynnie wewnątrz cylindra i że uderzenia mogą być skutecznie przeprowadzane ( Rysunek 1B). Sprawdź, czy w systemie nie ma pęcherzyków powietrza. W przypadku wykrycia pęcherzyków powietrza należy ostrożnie dodać wodę destylowaną do systemu za pomocą strzykawki o pojemności 50 ml i usunąć pęcherzyki powietrza, szybko przepychając pręt butli przez pobliskie złącze 3-drożne i/lub przez strzykawkę.
UWAGA: System FPI składa się z wody destylowanej w butli i podłączonych przewodów. Bardzo ważne jest, aby skalibrować urządzenie przed rozpoczęciem pracy, aby zapewnić dokładność i wiarygodność wyników.
3. Przygotowanie cienkiej czaszki
UWAGA: Operacja na zwierzętach i przygotowanie cienkiej czaszki nie powinny być wykonywane w obecności innych myszy. Okienko z przerzedzoną czaszką jest przydatne do oceny uszkodzenia naczyń mózgowych po zabiegu FPI.
- Przestrzegaj wymagań centrum dla zwierząt, instruując operatora doświadczalnego, aby nosił sterylny fartuch i maskę podczas wszystkich procedur związanych ze zwierzętami.
- Przed rozpoczęciem eksperymentu zdezynfekuj blat stołu laboratoryjnego, urządzenie FPI, rurkę anestezjologiczną i przyległą przestrzeń przed rozpoczęciem eksperymentu za pomocą sprayu z 70% etanolem.
- Zważ myszy zarówno w grupie pozorowanej, jak i rmTBI przed operacją i porównaj ich wagę z wagą zarejestrowaną 1 tydzień przed eksperymentem. Wyklucz z badania każdą mysz wykazującą zły stan zdrowia, taki jak szorstkie futro, biegunka, utrata masy ciała lub letarg. Dodatkowo należy wykluczyć myszy ważące mniej niż 20 g, aby zapewnić im zdolność do tolerowania powtarzających się uderzeń. Środki te mają zasadnicze znaczenie dla utrzymania dobrostanu zwierząt i zapewnienia wiarygodnych wyników doświadczeń.
- Znieczulaj myszy 4%-5% izofluranem (w 100% tlenu przy natężeniu przepływu 1 l/min) przez 3-4 minuty w komorze indukcyjnej. Podaj smar okulistyczny (patrz Tabela materiałów) do oczu zwierzęcia, aby utrzymać nawilżenie przez cały czas trwania operacji. W celu złagodzenia bólu buprenorfinę należy podawać podskórnie (0,05 mg/kg) w środkowy punkt między uszami 20 minut przed znieczuleniem, a następnie co 6 godzin przez 24 godziny. Ponadto pod koniec znieczulenia każdemu zwierzęciu należy podać podskórnie pojedynczą dawkę 5 mg/kg karprofenu.
- Zdezynfekuj głowę po tym, jak mysz straciła odruch prostowania i wycofywania pedału. Przytnij futro na głowie myszy za pomocą nożyczek chirurgicznych i użyj golarki, aby usunąć pozostałe futro. Zdezynfekuj skórę głowy za pomocą trzech sekwencyjnych aplikacji 2% chlorheksydyny, przeplatanych peelingami z 75% etanolu.
- Umieść jednorazową sterylną podkładkę chirurgiczną pod zwierzęciem i jego otoczeniem, aby zapewnić odpowiednią higienę. Wykonaj 1,5 cm nacięcie za pomocą cienkich małych nożyczek chirurgicznych wzdłuż linii środkowej skóry głowy myszy, aby całkowicie odsłonić pole operacyjne (Rysunek 2A).
- Zabezpiecz mysz za pomocą nieterminalnych nauszników w konwencjonalnej ramie stereotaktycznej (patrz Tabela materiałów). Dostosuj pozycję głowicy myszy w ramce stereotaktycznej na płaskim poziomie lub pod lekkim kątem nachylenia zgodnie z określonym obszarem docelowym, który będzie badany. Oczyść sierść z obszaru operacyjnego, aby uniknąć późniejszego stanu zapalnego.
- Utrzymuj temperaturę ciała myszy na poziomie 37 °C za pomocą konwencjonalnej izotermicznej poduszki grzewczej (patrz Tabela materiałów).
- Podczas procesu instalacji piasty chirurgicznej i udarowej (żeńskiego Luer Lock) utrzymuj znieczulenie myszy (bez reakcji na uszczypnięcie palca lub ogona) za pomocą stożka nosowego, który zapewnia ciągłe stężenie izofluranu na poziomie 2%, regulowane przez skalibrowany waporyzator.
- Ostrożnie oczyść obszar operacyjny wokół okienka z przerzedzoną czaszką za pomocą sterylnego wacika nasączonego solą fizjologiczną.
- Stwórz okienko z przerzedzoną czaszką o średnicy około 2,5 mm i grubości 20 μm w prawej przedniej korze ruchowej za pomocą wiertła do mikrowiertła z płaską końcówką (patrz Tabela materiałów, Rysunek 2B) i ostrza mikrochirurgicznego. Zlokalizuj pole operacyjne na 1,5 mm przed bregmą i 1,3-2,0 mm bocznie do linii środkowej (Rysunek 2C).
- Aby zapobiec przebiciu się mikrowiertła do czaszki podczas tworzenia okienka z przerzedzoną czaszką, należy co jakiś czas zwilżać czaszkę solą fizjologiczną podczas szlifowania mikrowiertłem.
- Potwierdź grubość czaszki, delikatnie badając przerzedzoną czaszkę spłaszczoną końcówką cienkiej igły strzykawkowej i oceniając jej miękkość. Oszacuj wizualnie przejrzystość odsłoniętych mikronaczyń korowych, aby określić grubość czaszki.
- Aby sprawdzić grubość czaszki, nałóż sterylną sól fizjologiczną na rozrzedzony obszar i sprawdź wzrokowo za pomocą konwencjonalnego mikroskopu preparacyjnego (patrz Tabela materiałów). Ta technika może pomóc w zapewnieniu, że czaszka została odpowiednio przerzedzona.
UWAGA: Smaruj oko myszy przez cały czas przygotowania rozrzedzonej czaszki i procedury modelowania rmTBI, aby zapobiec wysuszeniu. Ścieńczenie czaszki do mniej niż 15 μm niesie ze sobą ryzyko łagodnego urazu kory mózgowej, który może skutkować łagodnym zapaleniem kory mózgowej14.
- Przymocuj wyregulowany żeński zamek Luer Lock (średnica wewnętrzna 2,2 mm, utworzony z piasty igły 19G, jak pokazano na Rysunek 2D) do miejsca przerzedzonej czaszki. Zabezpiecz Luer Lock za pomocą kleju i cementu dentystycznego (Rysunek 2E).
UWAGA: W przypadku używania kleju do mocowania żeńskiego zamka Luer do obszaru wokół okienka z rozrzedzoną czaszką, ważne jest, aby dokładnie osuszyć obszar czaszki i zapobiec przedostawaniu się kleju do samego okna. Klej w oknie może znacznie zmniejszyć siłę uderzenia FPI.
4. Procedura modelowania rmTBI związana z CHI
- Wprowadź rmTBI za pomocą metody bocznego udaru płynu ze zmodyfikowanym urządzeniem FPI, jak opisano wcześniej13,15.
- Po zakończeniu procedur przerzedzonego okna czaszki i koncentratora uderzeniowego, przenieś mysz z aparatu stereotaktycznego na platformę impaktora.
- Biorąc pod uwagę potencjalny wpływ znieczulenia na czas odruchu prostowania zwierzęcia i nasilenie obrażeń po uderzeniu9,16, monitoruj głębokość znieczulenia, oceniając odruchy powiekowe i odruchy wycofania łapy (Rysunek 2F).
- Podłącz żeński zamek Luer Lock, który został przyklejony do okienka z cieńszą czaszką, do męskiego zamka Luer Lock na końcu rurki urządzenia FPI (Rysunek 2G).
UWAGA: W modelowaniu rmTBI znieczulenie wywołane izofluranem u myszy było przedłużone z powodu wywołania bezdechu i utraty przytomności przez opukiwanie. - Wprowadź dwa łagodne TBI (odstęp 48 godzin) ze zmodyfikowanym urządzeniem. Zastosuj pierwsze uderzenie FPI natychmiast po zakończeniu operacji okienka z cieńszą czaszką i zainstalowaniu Luer Lock. Wpływ FPI należy podawać tylko wtedy, gdy mysz za każdym razem wykazuje powrót odruchu wycofania do uszczypnięcia łapy (Rysunek 2H). Zastosowanie wpływu FPI u głęboko znieczulonych myszy może spowodować przedłużony bezdech i śmierć.
- Aby zastosować uderzenie FPI, podnieś wahadło do wyznaczonego stopnia wzdłuż kątomierza na urządzeniu i zwolnij wahadło za pomocą sterowania programowego13,15. Uderzenie powinno osiągnąć intensywność uderzenia 2,0 ± 0,1 atm, zgodnie z ustalonymi protokołami stosowanymi w badaniach na gryzoniach10,17,18. Należy wykluczyć zwierzęta z dalszych badań, jeśli uderzenie nie zostało zarejestrowane między 1,9-2,1 atm lub jeśli pęknięcie czaszki wystąpiło podczas FPI.
- W przypadku myszy pozorowanych przymocuj je do aparatu, ale nie wywieraj wpływu.
- Po uderzeniu natychmiast odłącz złącze Luer Lock i przenieś myszy do izotermicznej poduszki grzewczej w celu odzyskania sprawności. Gdy mysz odzyska czujność i przytomność, przywróć ją do klatki domowej bez zdejmowania żeńskiego zamka Luer. Drugie uderzenie FPI należy podać w ten sam sposób 48 godzin później.
- Po wykonaniu rmTBI ostrożnie usuń żeński zamek Luer i cement dentystyczny. Zszyj skórę głowy za pomocą kleju tkankowego i użyj płaskich kleszczyków do uszczypnięcia skóry głowy, aby ułatwić proces adhezji (patrz Tabela materiałów; Rysunek 2I).
- Aby zapobiec stanom zapalnym, infekcjom oraz złagodzić ból i dyskomfort pooperacyjny, należy nałożyć na ranę mieszaninę erytromycyny i maści diklofenakowej sodu w stosunku 1:1 (patrz tabela materiałów). Przenieś myszy do izotermicznej poduszki grzewczej w celu odzyskania sprawności.
- Zapisać czas trwania odruchu prostującego, który rozpoczyna się w momencie wyjęcia myszy z aparatu stereotaktycznego i umieszczenia jej bocznie na platformie impaktora dla FPI i trwa do momentu, gdy mysz będzie w stanie samodzielnie stać prosto.
- Gdy mysz odzyska czujność i przytomność, przywróć ją do klatki domowej. Myszy są zazwyczaj w pełni przytomne i są w stanie chodzić w ciągu 1,5 godziny po urazie.
- W ciągu kilku dni po modelowaniu TBI obserwuj myszy pod kątem różnych objawów, w tym wzorców oddychania, obecności śluzu wokół nosa i ust oraz zaczerwienienia, obrzęku, wysięku lub ponownego otwarcia obszaru rany. Należy wykluczyć zwierzęta z badania z co najmniej jednym z powyższych nieprawidłowych objawów.
UWAGA: Wstępna mikroiniekcja AAV-GCaMP6s pozwala na obserwację leżącej u podstaw homeostazy i pobudliwości neuronów Ca2 + w uszkodzonej korze przez okienko przerzedzonej czaszki za pomocą dwufotonowej laserowej mikroskopii skaningowej 15.
5. Test labiryntu wodnego Morrisa (MWM)
UWAGA: MWM (patrz Tabela Materiałów) jest powszechnie uznaną metodą oceny uczenia się przestrzennego i deficytów pamięci u myszy po TBI.
- Przeprowadź test MWM zaczynając od 7 dni po urazie (DPI). Okrągły basen MWM miał średnicę 120 cm i wysokość 50 cm, a temperatura wody utrzymywała się na poziomie 25 °C. Okrągły basen należy podzielić na cztery ćwiartki, przy czym platforma ewakuacyjna, okrągła platforma o średnicy 6 cm i wysokości 30 cm, zanurzona 1 cm pod powierzchnią wody w północno-wschodniej ćwiartce.
- Umieść kamerę bezpośrednio nad okrągłym basenem, aby zarejestrować trajektorię ruchu myszy. Oznacz myszy czarną taśmą na ich grzbietach, aby ułatwić rozpoznawanie przez oprogramowanie do akwizycji obrazu i rejestrowanie danych, w tym opóźnienia, odległości pływania i trajektorii ruchu.
- Umieść myszy w wodzie, zwrócone twarzą do wewnętrznej ściany każdego z czterech kwadrantów, jeden raz dla każdej ćwiartki. Gdy myszy znajdą platformę, pozwól im odpocząć na niej przez 10 sekund. Jeśli mysz nie znajdzie platformy w ciągu 60 sekund, poproś operatora, aby poprowadził mysz do platformy, pozwól jej odpocząć na platformie przez 10 sekund, a następnie wróć do klatki domowej w celu odpoczynku.
- Powtórz dla każdej myszy próbę akwizycji 4 razy dziennie. Po próbach akwizycji, na 12 DPI, przeprowadź 60-sekundowy eksperyment z sondą przestrzenną i zapisz, ile razy myszy przekroczyły pierwotny obszar platformy oraz czas przebywania myszy w kwadrancie, w którym znajdowała się platforma.
- Po każdej próbie szybko osusz myszy ręcznikiem lub umieść je pod lampą rozgrzewającą, aby utrzymać temperaturę ciała i zapobiec hipotermii podczas próby akwizycji 60 s od DPI 7 do DPI 11.
- Po zakończeniu procedur eksperymentalnych opisanych powyżej, znieczulij myszy pentobarbitalem (45 mg/kg, i.p.) w temperaturze 13 DPI. Perfuzję izotoniczną soli fizjologicznej przezsercowo, a następnie perfuzję z 4% paraformaldehydem w roztworze soli fizjologicznej buforowanej fosforanami (pH 7,2). Pobranie mózgów do konwencjonalnego barwienia HE w celu oceny dużych zmian morfologii kory mózgowej i hipokampa. Szczegółowy opis protokołu barwienia HE można znaleźć we wcześniejszych publikacjach13,15.
- Po zakończeniu wszystkich eksperymentów należy poddać mysz eutanazji przez wstrzyknięcie przedawkowania pentobarbitalu (≥100 mg / kg, i.p.), jeśli nie są potrzebne próbki myszy. Przed pobraniem tkanek lub usunięciem tuszy należy obserwować mysz do momentu, gdy nie nastąpi bicie serca przez co najmniej 60 sekund.
Wyniki
Protokół opisany w niniejszym badaniu przedstawia metodę indukowania rmTBI poprzez okno w ścieńczonej czaszce, co stanowi rozwiązanie problemu urazu mózgu spowodowanego przygotowaniem kraniotomii podczas konwencjonalnego modelowania TBI metodą perkusyjną. Dzięki zastosowaniu tej zmodyfikowanej procedury perkusyjnej z wykorzystaniem zmodyfikowanego urządzenia osiągnięto lepszą precyzję i powtarzalność uderzenia FPI13. Zmodyfikowany impaktor charakteryzuje się wszechstronnością, pozwalającą na jego zastosowanie w modelowaniu zarówno CHI, jak i FPI, z wykonaniem kraniotomii czaszki lub bez niej. Ponadto stopień nasilenia urazu jest regulowany poprzez dostosowanie parametrów urazu, takich jak kąt opadania wahadła uderzeniowego, lub poprzez dodanie do płyty końcowej trzpienia tłoka dodatkowych piankowych podkładek z etylenu i octanu winylu o różnej twardości.
Zmodyfikowany model rmTBI zapewnia istotne zalety, takie jak wywoływanie patologii ogniskowej i rozlanej bez odsłaniania opony twardej kory, co minimalizuje stan zapalny wynikający z ekspozycji opon mózgowych i/lub bezpośredniego FPI na miąższ. Ponadto model ten redukuje zmienność grubości i kształtu kości czaszki, co pozwala na uzyskanie wiarygodnych wyników urazu. W związku z tym zmodyfikowany model rmTBI jest skuteczny i niezawodny w symulowaniu klinicznie istotnych deficytów neuropatologicznych i behawioralnych związanych z objawami powstrzęśowymi (PCS) przy różnych stopniach urazu. Model ten jest szczególnie użyteczny w badaniu mechanizmów patologicznych TBI, które wymagają dokładności i powtarzalności zwierzęcych modeli TBI, zwłaszcza w przypadku badania mechanizmów związanych z łagodnym TBI.
Przednia boczna gałąź środkowej tętnicy mózgowej myszy oraz tylna żyła nosowa19, znajdujące się pod ścieńczoną czaszką, umożliwiły wyraźną wizualizację za pomocą kamery. Po dwóch uderzeniach rmTBI, każde z ciśnieniem około 2,0 atm, u wszystkich myszy stwierdzono krwiaki podtwardówkowe w 0 DPI. Choć nie stwierdzono naruszenia ciągłości ścieńczonej czaszki, zaobserwowano zmniejszenie liczby mikronaczyń oraz zmiany w morfologii mikrokrążenia (Rysunek 2H), co zgadza się z wcześniejszymi doniesieniami15. Do 2 DPI krwiaki w dużej mierze ustąpiły. Śmiertelność wynika głównie z uderzenia, gdy mysz znajduje się pod głęboką narkozą, co może znacznie przedłużyć bezdech. Regularna ocena głębokości anestezji przed uderzeniem poprzez odruchy powiekowy i wycofania łapy może znacząco zredukować śmiertelność. Dodatkowe czynniki, które mogą wpływać na wskaźniki śmiertelności po urazie płynowym, to szczep myszy, twardość czaszki, płeć i wiek. W poprzednim badaniu z zastosowaniem tego samego protokołu rmTBI jedna mysz C57BL/6J padła15. W niniejszym protokole do przeprowadzenia wszystkich procedur wykorzystano wyłącznie samce myszy ICR.
Zarówno badania na ludziach, jak i na zwierzętach wykazały, że nawet powtarzające się uderzenia w głowę o sile poniżej progu wstrząśnienia mogą powodować rozległe mikrostrukturalne uszkodzenia istoty białej20,21,22, które wiążą się z gorszymi wynikami funkcji poznawczych21,22. W 7–12 DPI rmTBI może prowadzić do upośledzenia uczenia się przestrzennego i pamięci, co badano z wykorzystaniem paradygmatu MWM. Rysunek 4 przedstawia wyniki uzyskane w tej ocenie.
Analiza ostatniej próby nabytej w MWM wykazała istotny wzrost (p< 0.05) czasu dotarcia myszy z rmTBI do zanurzonej platformy w porównaniu z grupą kontrolną. W próbie sprawdzającej analiza procentowego czasu spędzonego w kwadrancie pierwotnego położenia platformy wykazała istotny spadek (p<0.01) w grupie rmTBI w stosunku do grupy kontrolnej, co wskazuje na pogorszenie zdolności uczenia się i pamięci przestrzennej u myszy z rmTBI.
Metoda opisana w niniejszym opracowaniu została wykorzystana w poprzedniej publikacji15 z użyciem myszy szczepu C57BL/6J. Oprócz MWM przeprowadzono trzy dodatkowe analizy, zgodnie z poniższym opisem.
Test otwartego pola (OFT) wykorzystano do oceny zdolności lokomocyjnych i eksploracyjnych poprzez pomiar średniej prędkości przemieszczania się, całkowitego przebytego dystansu oraz procentowego udziału dystansu pokonanego w strefach centralnych. Przeprowadź test otwartego pola (OFT) w 6 DPI w celu oceny lokomocji, eksploracji i lęku u myszy. Urządzenie testowe o wymiarach 40 x 40 x 40 cm zostało podzielone na 16 stref (każda o wymiarach 18 x 18 cm). Myszy umieszczano w centrum urządzenia i pozwalano im na swobodną eksplorację przez 5 min. Zarejestrowano dystans pokonany w 4 strefach centralnych, całkowity przebyty dystans, średnią prędkość poruszania się oraz czas spędzony w strefach brzegowych. Poziom lęku oceniano na podstawie procentowego udziału dystansu pokonanego w strefach centralnych oraz czasu spędzonego przez gryzonie w strefach brzegowych podczas 5-minutowego okresu obserwacji. W 6 DPI rmTBI może nie mieć znaczącego wpływu na ogólne zdolności lokomocyjne myszy, ale może wywołać znaczny lęk i zmienić zachowania eksploracyjne, co pokazano na Rysunku 415. Ponadto zmodyfikowany model rmTBI indukuje rozlane uszkodzenia aksonalne, które można ocenić za pomocą dodatkowych testów behawioralnych, takich jak test zdolności poznawczych opisany w niniejszym protokole.
Wykazano, że RmTBI upośledza przestrzenną pamięć roboczą i referencyjną u myszy, co zilustrowano na Rysunku 515. Funkcje poznawcze te oceniano za pomocą testu labiryntu Y. Test przeprowadzono w 8. dniu po urazie (DPI), aby zmierzyć deficyty krótkotrwałej pamięci roboczej u myszy. W celu oceny zachowania polegającego na spontanicznej alternacji wykorzystano akrylowe urządzenie w kształcie litery Y (wysokość 20 cm, długość 50 cm i szerokość podstawy 10 cm). Po umieszczeniu myszy w centrum urządzenia i umożliwieniu jej eksploracji przez 8 min zarejestrowano liczbę wejść do ramion. Zachowanie spontanicznej alternacji definiuje się jako kolejne wchodzenie myszy do trzech ramion w zestawach trójek. Współczynnik spontanicznej alternacji (%) oblicza się jako (liczba kolejnych zestawów trójek / całkowita liczba wejść do ramion minus 2) x 100. W celu oceny przestrzennej pamięci referencyjnej podczas 8-minutowego treningu losowo zamknięto jedno ramię labiryntu Y. Godzinę po pierwszej ekspozycji mysz ponownie wprowadzono do labiryntu z otwartymi trzema ramionami, umożliwiając jej swobodną eksplorację przez 3 min. Zarejestrowano czas spędzony na eksploracji nowego ramienia w porównaniu z dwoma pozostałymi ramionami. Indeks preferencji oblicza się jako stosunek czasu spędzonego w nowym ramieniu do czasu spędzonego we wszystkich trzech ramionach.
Ponadto sugerujemy ocenę makroskopowych zmian strukturalnych w mózgu przy użyciu prostego barwienia HE (Rysunek 6)15 po zakończeniu wszystkich testów behawioralnych. Należy wykorzystać region kory przecięty koronalnie od 1 mm przed miejscem uszkodzenia do tylnej krawędzi uszkodzenia oraz region hipokampa przecięty koronalnie w typowej strefie w kształcie półksiężyca (Bregma: -1,7 do -2,2 mm). Liczenie neuronów na każdym preparacie w sześciu randomizowanych polach przy użyciu siatki okularowej (powiększenie 400x) i wyciągnięcie średniej liczby neuronów pozwoliło na określenie gęstości liczbowej na pole widzenia (gęstość liczbowa). Stwierdzono, że regiony mózgu objęte rmTBI wykazują różny stopień uszkodzeń neuronów15. W szczególności kora ruchowa wykazała silniejszy i bardziej zróżnicowany zakres takich uszkodzeń niż hipokamp. Barwienie HE wykazało znaczne przesunięcie w stronę morfologii pikinotycznej w porównaniu z normalnymi neuronami (Rysunek 6A,B,E,F). Ponadto zaobserwowano rozluźnienie macierzy zewnątrzkomórkowej konkretnie w obszarze uszkodzenia (Rysunek 6F). Oprócz zaobserwowanych obszarów o rozluźnionej macierzy, u myszy z rmTBI stwierdzono również istotny wzrost barwienia hiperchromatycznego, widocznego jako ciemniejszy czerwony kolor, w znacznej liczbie neuronów subgranularnych w zakręcie zębatym oraz w niektórych neuronach kory i obszaru CA1. Co ciekawe, wzorce barwienia te nie wykazywały żadnych towarzyszących oznak obkurczania się cytoplazmy ani pikinotycznego jądra (Rysunek 6C,D,G,H,K)15. Metody behawioralne (z wyjątkiem testu WMM) oraz metoda barwienia HE wspomniane powyżej zostały szczegółowo opisane w niedawnej publikacji, w której wprowadzono zmodyfikowany model rmTBI15.

Rycina 1: Zmodyfikowane urządzenie FPI oraz zrzut ekranu oprogramowania. (A) Zmodyfikowane urządzenie FPI. (B) Zrzut ekranu przedstawia przebieg ciśnienia FPI oraz automatyczny pomiar i eksport parametrów ciśnienia uderzenia w czasie rzeczywistym, takich jak czas narastania, czas opadania i czas trwania połowy szerokości impulsu. Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.
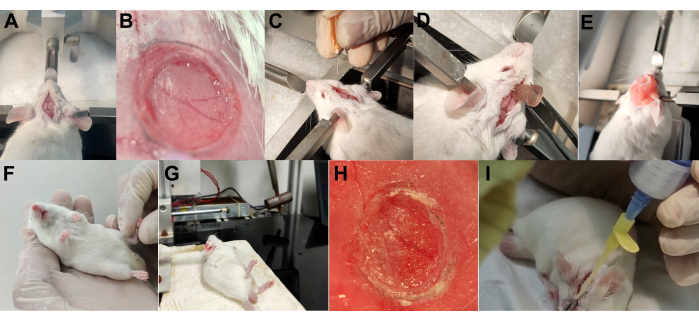
Rysunek 2: Zmodyfikowany model rmTBI u myszy szczepu ICR. (A) Wykonano nacięcie w linii środkowej, aby odsłonić obszar operacyjny. (B) W obrębie kory ruchowej wykonano okno z odcieńczonej czaszki. Do określenia grubości czaszki wykorzystano przejrzystość odsłoniętych mikronaczyń korowych. (C) Grubość czaszki można również zweryfikować, delikatnie badając odcieńczone miejsce spłaszczonym końcem cienkiej igły strzykawki i oceniając jego miękkość. (D) Gniazdo Luer Lock przyklejono do okna z odcieńczonej czaszki. (E) Przymocowane gniazdo Luer Lock zabezpieczono za pomocą cementu dentystycznego. (F) Głębokość anestezji monitorowano poprzez sprawdzanie odruchów powiekowych oraz odruchu cofania łapy. (G) Uderzenie FPI wykonano po powrocie odruchu cofania w odpowiedzi na uciśnięcie łapy. (H) Obraz okna z odcieńczonej czaszki po rmTBI w 0 DPI. (I) Skórę głowy zszyto przy użyciu kleju tkankowego. Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.

Rysunek 3: Wpływ rmTBI na uczenie się i pamięć przestrzenną u myszy ICR. (A) Ścieżka nawigacyjna myszy podczas ostatniej próby nabywania zarejestrowana w 11 DPI, (B) trasa w próbie badawczej (probe trial) zarejestrowana w 12 DPI oraz (C) czas ucieczki potrzebny myszom na zlokalizowanie platformy podczas ostatniej próby nabywania. Wyniki wykazały, że grupa rmTBI potrzebowała znacznie więcej czasu na dotarcie do ukrytej platformy niż grupa kontrolna (p<0.05). (D) Procent czasu spędzonego przez myszy w pierwotnej kwadrancie z platformą w stosunku do całkowitego czasu nawigacji podczas próby badawczej był znacznie niższy w grupie rmTBI niż w grupie kontrolnej (p<0.01). n=8. *p<0.05, **p<0.01 vs. grupa kontrolna, test t-Studenta dla prób niezależnych. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.

Rycina 4: Wpływ rmTBI na lokomocję, eksplorację i lęk u myszy C57BL/6J. (A) Reprezentatywne ślady ruchu myszy z grupy kontrolnej i grupy rmTBI podczas 5 min OFT. (B-E) Podsumowane dane przedstawiają odpowiednio: dystans pokonany w strefach centralnych, całkowity dystans pokonany, średnią prędkość poruszania się oraz czas spędzony w strefach peryferyjnych. Kontrola, n=13; rmTBI, n =12. ***p<. 01 vs. kontrola, test t-Studenta dla prób niezależnych. Rycina została zmodyfikowana na podstawie źródła 15. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
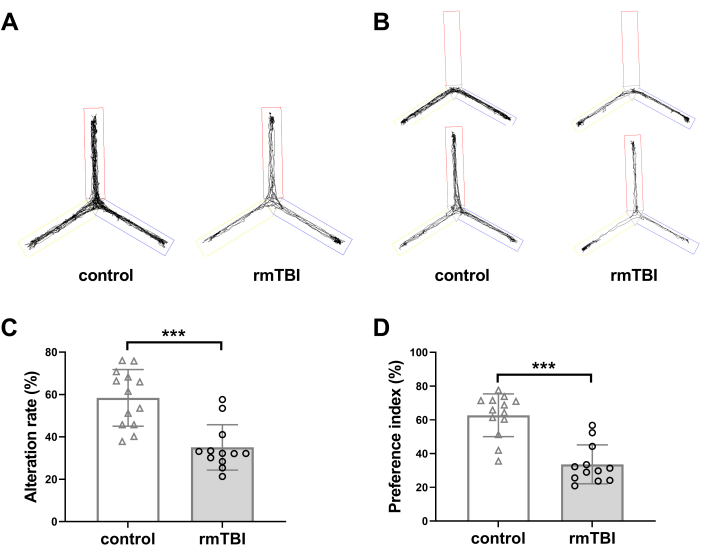
Rycina 5: Wpływ rmTBI na przestrzenną pamięć operacyjną i pamięć referencyjną u myszy C57BL/6J. (A, B) Reprezentatywne ścieżki ruchu myszy z grupy kontrolnej i rmTBI podczas oceny przestrzennej pamięci operacyjnej i referencyjnej w labiryncie Y. Test spontanicznej alternacji w labiryncie Y jest powszechnie stosowaną metodą oceny pamięci krótkotrwałej w modelach gryzoni15. (C) Podsumowanie wskaźników spontanicznej alternacji myszy z grupy kontrolnej i rmTBI podczas oceny przestrzennej pamięci operacyjnej. Gryzonie zazwyczaj preferują eksplorację nowego ramienia labiryntu zamiast powrotu do ramienia, które już zostały zbadane. Na podstawie czasu spędzonego przez gryzonia w nowym ramieniu w stosunku do czasu spędzonego we wszystkich trzech ramionach obliczany jest indeks preferencji, który następnie poddaje się analizie. (D) Podsumowanie indeksu preferencji myszy z grupy kontrolnej i rmTBI podczas oceny przestrzennej pamięci operacyjnej. Grupa kontrolna, n=13; rmTBI, n=12. ***p<. 01 vs. grupa kontrolna w nieparzystym teście t. Rycina została zmodyfikowana na podstawie źródła15. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
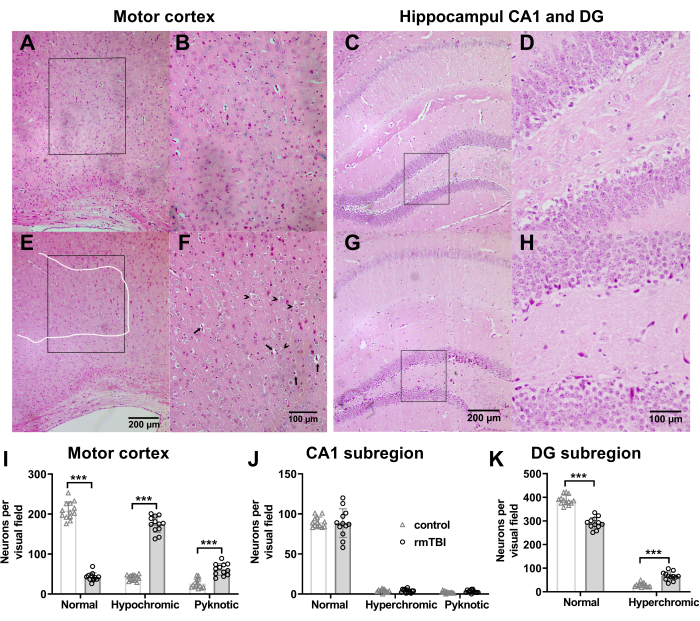
Rycina 6: Porównanie barwienia HE jednostronnie uszkodzonej kory ruchowej i podregionu zakrętu zębatego hipokampa pomiędzy grupą kontrolną a grupą rmTBI u myszy C57BL/6J. (A, B) Norma w korze ruchowej oraz (C, D) region hipokampa myszy kontrolnych przy różnych powiększeniach. (E, F) Uszkodzona kora ruchowa oraz (G, H) regiony hipokampa myszy z rmTBI. Neurony hiperchromatyczne w korze i obszarze CA1 mogły zostać nieznacznie dotknięte przygotowaniem do operacji lub trwałym rmTBI; jednak w korze ruchowej myszy rmTBI zaobserwowano neurony hipochromatyczne (prawdopodobnie w stanie umiarkowanego uszkodzenia) oraz pyknotyczne (neurony apoptotyczne) w porównaniu do prawidłowych neuronów u myszy kontrolnych. Cechy apoptozy neuronów obejmowały kurczenie się cytoplazmy i jądra neuronów, którym towarzyszyła wyraźna wakuolizacja. Warto zaznaczyć, że biała linia demarkacyjna na obrazie (E) reprezentuje granicę między uszkodzoną a otaczającą tkanką. Ponadto hiperchromatyczne neurony w podregionie DG (H) prawdopodobnie odnoszą się do nowo powstałych niedojrzałych i dojrzałych neuronów ziarnistych. Poniższe wykresy słupkowe przedstawiają rozkład prawidłowych i dotkniętych rmTBI neuronów w (I) korze ruchowej oraz w podregionach hipokampa (J) CA1 i (K) DG. Kontrola, n=13; rmTBI, n=12, ***p< 0,001 vs kontrola w teście t nieparzystym. Rycina została zmodyfikowana na podstawie źródła15. Kliknij tutaj, aby zobaczyć powiększoną wersję tej ryciny.
Dyskusja
TBI odnosi się do dwóch podstawowych typów, zamkniętego i penetrującego, przy czym ten ostatni charakteryzuje się rozerwaniem czaszki i opony twardej. Dane kliniczne sugerują, że CHI są bardziej rozpowszechnione niż urazy penetrujące 1,2. Po pojedynczym łagodnym TBI większość pacjentów doświadcza objawów PCS, które zwykle ustępują w krótkim czasie, i istnieją kontrowersje dotyczące odsetka pacjentów, u których PCS rozwija się w długoterminowe następstwa23,24. W związku z tym naukowcy skupili się na powtarzalnych modelachCHI, aby lepiej zrozumieć skumulowane skutki wielokrotnych wstrząsów mózgu, które często występują podczas upadków, wypadków drogowych i sportów kontaktowych. Te powtarzające się oddziaływania mogą prowadzić do poważniejszych i długotrwałych skutków26,27. Korzystając z powtarzalnych modeli CHI, naukowcy mogą zbadać potencjalne addytywne lub synergiczne skutki wielokrotnych wstrząsów mózgu i lepiej zrozumieć mechanizmy leżące u podstaw PCS. Takie modele mogą ułatwić opracowanie ukierunkowanych interwencji terapeutycznych w celu złagodzenia długoterminowych konsekwencji powtarzających się uderzeń głową.
Chociaż niektóre modele CHI próbują symulować zarówno ogniskowe pojedyncze, jak i rmTBI, uwzględniając zarówno siły liniowe, jak i obrotowe, modele te mogą powodować urazy z odbicia i niedokładności w ciężkości obrażeń ze względu na takie czynniki, jak pęknięcie czaszki, morfologia i grubość czaszki, rozszerzony bezdech zwierzęcy10 oraz zmienność mechanicznych parametrów wejściowych, szczególnie gdy włączony jest ruch głowy rotacyjnej9. Metody uderzenia i spadku masy sterowane tłokiem są powszechnie stosowane do indukcji rmTBI w modelach zwierzęcych CHI25. Uderzenie sterowane tłokiem pozwala na precyzyjne i regulowane ustawienie parametrów uderzenia za pomocą elektromagnetycznych lub pneumatycznych urządzeń udarowych, umożliwiając w ten sposób wysoką powtarzalność uderzenia. Jednak użycie uderzenia kontrolowanego tłokiem, czy to na odsłoniętą korę, jak w CCI, czy na zamkniętą czaszkę, nadal wymaga rygorystycznego unieruchomienia głowy zwierzęcia w stereotaktycznym kadrze podczas uderzenia. I odwrotnie, metody obniżania masy ciała wymagają prostych i opłacalnych materiałów, które są łatwe do ustawienia, ale kompromisem jest dość duża zmienność ciężkości urazu25.
Model FPI zazwyczaj wywołuje mieszane urazy ogniskowe i rozlane, co pozwala na wytworzenie TBI o różnym nasileniu. Pomimo swoich zalet, model FPI ma również potencjalne ograniczenia. Podobnie jak model CCI, FPI nadal wymaga kraniotomii, zabiegu chirurgicznego, który może wywołać stan zapalny w tkance mózgowej17. Co więcej, nawet łagodny FPI często przenika do opony twardej na różnych głębokościach, co może powodować zakłócenia w interpretacji danych. W związku z tym modele CCI i FPI mają ograniczenia w replikowaniu cech klinicznych obserwowanych u pacjentów z łagodnym TBI9. W związku z tym przedstawiamy protokół, który łączy w sobie metodę przerzedzonego okna czaszki i FPI, które można wykorzystać do stworzenia bardziej precyzyjnego mysiego modelu rmTBI związanego z CHI. Celem tego protokołu jest dokładne odzwierciedlenie cech klinicznych pacjentów z łagodnym TBI. Wysoce powtarzalny model byłby nieocenionym narzędziem do badania mechanizmów leżących u podstaw patofizjologii łagodnego TBI i oceny potencjalnych interwencji terapeutycznych.
Wyniki naszych badań nad rmTBI są zgodne z wcześniejszymi publikacjami, w których wykorzystano okienka z cieńszą czaszką do łagodnych badań TBI28,29. Na przykład Ren i wsp. stworzyli cieńsze okienko czaszki o grubości około 30 μm w lewej korze asocjacyjnej ciemieniowej, wywołując łagodne TBI poprzez delikatne naciskanie okienka za pomocą końca o średnicy 1 mm z chirurgicznego narzędzia stereotaktycznego29. Ich badanie wykazało znaczne rozszerzenie śmierci komórki i ekspresji reaktywnych form oksydacyjnych (ROS) w uszkodzonej korzemózgowej 29. Aby zbadać rmTBI, Nguyen i in. zastosowali trzy CCI ze zmodyfikowaną końcówką impaktora (okrągła silikonowa końcówka o średnicy 3 mm i grubości 1,5 mm) na okienku myszy z cieńszą czaszką (o grubości 20-40 μm) w korze asocjacyjnej ciemieniowej28. Aby chronić i utrzymać przezroczystość obszaru przerzedzonej czaszki do długotrwałego obrazowania, pokryli okienko przerzedzonej czaszki cienką warstwą kleju cyjanoakrylowego. Trzy CCI wykonywano raz w tygodniu przez 3 tygodnie, przy parametrach uderzenia 4 m/s prędkości i 2 mm głębokości. W wyniku trzech CCI myszy wykazywały wyraźną astroglejozę i aktywację mikrogleju28. Biorąc pod uwagę, że zastosowanie okienka z rozrzedzoną czaszką jako modelu łagodnego TBI/rmTBI jest stosunkowo nowe, konieczne są dalsze badania w celu zbadania związku między ciężkością/progresją urazu a różnymi technikami oddziaływania. Na przykład w poprzednim badaniu byliśmy w stanie zaobserwować oczywiste zmiany w morfologii komórek po dwóch FPI, które zostały podane w odstępie 2 dni15. Tymczasem, w innych badaniach, pojedynczy delikatny ucisk na rozrzedzone okno czaszki wywołał łagodne TBI z widoczną śmiercią komórki i reaktywną ekspresją gatunków oksydacyjnych29, a trzy tygodniowe CCI spowodowały silną astroglejozę i aktywację mikrogleju28.
Należy ostrożnie postępować w kilku krokach w celu stworzenia spójnego modelu urazu przy użyciu opisanej metody. Podczas operacji z przerzedzonym oknem czaszki, w oparciu o różne obszary docelowe (np. skupiliśmy się na korze ruchowej), głowa myszy powinna być zamocowana w ramce stereotaktycznej na poziomie poziomym lub pod niewielkim kątem bocznym w kierunku przeciwnej strony okna cienkiej czaszki w tym protokole. To specyficzne ułożenie może ułatwić stworzenie okienka z przerzedzoną czaszką w obszarze odpowiadającym korze ruchowej. Dokładne umieszczenie wkładek usznych jest jednym z najtrudniejszych aspektów tej procedury, a opanowanie jej może zająć czas i praktykę. Przed przystąpieniem do operacji rozrzedzonego okienka czaszki lub wywołania CHI należy upewnić się, że czaszka jest wypoziomowana. Jeśli czaszka nie jest prawidłowo ustawiona, głowę należy odpowiednio wyregulować. Ze względu na nierówny kształt i grubość kości czaszki, wzrost czaszki jest zmienny nawet w obrębie określonej kości30, bardzo ważne jest, aby dostosować ustawienie głowy przed podjęciem procedury rozrzedzonego okienka czaszki lub CHI. Niezastosowanie się do tego zwiększa ryzyko złamań czaszki, co może znacząco wpłynąć na dokładność i niezawodność CHI. Aby uzyskać bardziej wyczerpujące wskazówki dotyczące procedury okienka z przerzedzoną czaszką, zapoznaj się z protokołem opisanym przez Guang i wsp.14.
Wybór obszaru modelowania TBI różni się w zależności od obszaru badań, na których się skupiają. Biorąc pod uwagę znaczną zmienność w rzeczywistej lokalizacji urazu w CHI, pomimo większości badań podających, że miejsce uderzenia znajduje się centralnie między bregmą a lambdą, zaleca się zmianę miejsca uderzenia w przyszłych badaniach eksperymentalnych, jak zauważono w przeglądzie modeli zwierzęcych CHI25. Aby zweryfikować zmodyfikowany model uszkodzenia cienkiej czaszki CHI, zalecamy rozpoczęcie od kory ruchowej, jak opisano w niniejszym protokole. rmTBI może powodować ogniskowe uszkodzenia kory ruchowej, które można łatwo ocenić za pomocą metod oceny lokomotorycznej, takich jak OFT w tym protokole. Nacięcie wykonane podczas tej procedury wymaga czasu na zagojenie, a to może potencjalnie wywołać obwodową odpowiedź immunologiczną, ostatecznie wprowadzając zmienność do eksperymentu. Aby zminimalizować ryzyko wystąpienia stanu zapalnego, infekcji oraz bólu i dyskomfortu pooperacyjnego, zalecamy nałożenie na ranę maści miejscowej zawierającej kombinację erytromycyny i diklofenaku sodu. Wykazano, że takie podejście jest skuteczne w zmniejszaniu stanu zapalnego i bólu związanego z zabiegami chirurgicznymi u zwierząt.
Protokół płynnej stymulacji opartej na rozrzedzonej czaszce jest obiecującą metodą modelowania rmTBI u gryzoni, ponieważ zmniejsza stan zapalny często spowodowany wystawieniem opon mózgowych na FPI. Technika ta, zastosowana w okienku z przerzedzoną czaszką, może skutecznie generować klinicznie istotne PCS w różnym stopniu, stanowiąc potencjalną alternatywę dla naukowców badających rmTBI. Ponadto okienko z cieńszą czaszką ułatwia obserwację homeostazyCa2+ i nadpobudliwości neuronów w korze mózgowej in vivo15. Zastosowanie tej techniki może poprawić nasze zrozumienie mechanizmów leżących u podstaw progresji PCS w krótkim/umiarkowanym/długim okresie, zwiększając w ten sposób zdolność przewidywania jej rozwoju i opracowywania skuteczniejszych metod leczenia.
Oświadczenia
Autorzy nie mają do ujawnienia żadnych konfliktów interesów.
Podziękowania
Ta praca była wspierana przez Fundację Kluczowego Rozwoju Społecznego Gminy Jinhua (nr 2020-3-071), Program Szkolenia Studentów Innowacji i Przedsiębiorczości Zhejiang College (No: S202310345087, S202310345088) oraz Projekt Planu Działań Innowacyjnych w Dziedzinie Nauki i Technologii Studentów Zhejiang Provincial College (2023R404044). Autorzy dziękują Pani Emmie Ouyang (studentce pierwszego roku Uniwersytetu Johnsa Hopkinsa, Bachelor of Science, Baltimore, USA) za redakcję językową artykułu.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 75% etanol | Shandong XieKang Technologia Medyczna Co., Ltd. | ||
| Chlorowodorek buprenorfiny | Tianjin Pharmaceutical Research Institute Pharmaceutical Co., Ltd | H12020272 | Solution, Analgesic |
| Carprofen | Shanghai Guchen Biotechnology Co., Ltd | 53716-49-7 | Proszek, Przeciwbólowy |
| diglukonian chlorheksydyny | Shanghai Macklin Biochemical Co., Ltd. | 18472-51-0 | 19%-21% roztwór wodny, Przeciwbakteryjny |
| zestaw cementu dentystycznego i rozpuszczalnika | Shanghai New Century Dental Materials Co., Ltd. | 20220405, 3# | Proszek odtworzony w dopasowanym rozpuszczalniku |
| Mikroskop preparacyjny | Shenzhen RWD Life Science Inc. | 77019 | |
| Maść erytromycyny | Wuhan Mayinglong Grupa Farmaceutyczna Co., Ltd. | 220412 | Antybiotykowe |
| światłowodowe źródło zimnego światła | Shenzhen RWD Life Science Inc. | F-150C | |
| Wiertło mikrowiertło z płaską końcówką | Shenzhen RWD Life Science Inc. | HM31008 | 2 mm, stalowe |
| oprogramowanie urządzenia FPI | Jiaxing Bocom Biotech Inc. | Biocom Animal Brain Impactor V1.0 | |
| ICR | myszy Jinhua Laboratory Animal Center | Stock#2023091 | 25 samców myszy, 25-30g, 8 tygodni |
| Isoflurane | Shandong Ante Animal Husbandry Technology Co., Ltd. | ||
| Izotermiczna poduszka grzewcza | Wenzhou Repshop Pet Products Co., Ltd. | ||
| Luer Loc hup | Wykonane na zamówienie przy użyciu ręcznej wiertarki do czaszki 19G z piastą igłową | ||
| Micro | Shenzhen RWD Life Science Inc. | 78001 | Max: 38 000 obr./min |
| Zmodyfikowane urządzenie FPI | Jiaxing Bocom Biotech Inc. | ||
| Labirynt wodny Morris, | Shenzhen, RWD, Life Science, Inc. | 63031 | Ocena zdolności myszy w zakresie uczenia się przestrzennego i zapamiętywania |
| Otwarte pole | Shenzhen RWD Life Science, Inc. | 63008 | Oceń lokalizację myszy i lęk |
| Smar okulistyczny | Suzhou Tianlong Pharmaceutical Co., Ltd. | ||
| Maść diklofenakowa sodu | Wuhan Mayinglong Grupa Farmaceutyczna Co., Ltd. | 221207 | niesteroidowy lek przeciwzapalny |
| System znieczulenia małych zwierząt-Enhanced | Shenzhen RWD Life Science Inc. | R530IP | |
| Inteligentny system śledzenia wideo | Panlab Harvard Apparatus Inc., MA, USA | V3.0 | Śledzenie i analiza zwierząt |
| Ramka stereotaktyczna | Shenzhen RWD Life Science Inc. | 68043 | |
| Klej tkankowy Vetbond | 3M, St Paul, MN, USA | 202402AX | Zszyj ranę zwierzęcia |
| Labirynt Y | Shenzhen RWD Life Science Inc. | 63005 | Ocena przestrzennej pamięci roboczej myszy |
Bibliografia
- Jiang, J. Y., et al. Traumatic brain injury in china. Lancet Neurol. 18 (3), 286-295 (2019).
- Naumenko, Y., Yuryshinetz, I., Zabenko, Y., Pivneva, T. Mild traumatic brain injury as a pathological process. Heliyon. 9 (7), e18342(2023).
- Zhao, Q., Zhang, J., Li, H., Li, H., Xie, F. Models of traumatic brain injury-highlights and drawbacks. Front Neurol. 14, 1151660(2023).
- Grant, D. A., et al. Repeat mild traumatic brain injury in adolescent rats increases subsequent β-amyloid pathogenesis. J Neurotrauma. 35 (1), 94-104 (2018).
- Clark, A. L., et al. Repetitive mtbi is associated with age-related reductions in cerebral blood flow but not cortical thickness. J Cereb Blood Flow Metab. 41 (2), 431-444 (2021).
- Mcallister, T., Mccrea, M. Long-term cognitive and neuropsychiatric consequences of repetitive concussion and head-impact exposure. J Athl Train. 52 (3), 309-317 (2017).
- Xiong, Y., Mahmood, A., Chopp, M. Animal models of traumatic brain injury. Nat Rev Neurosci. 14 (2), 128-142 (2013).
- Pham, L., et al. proteomic alterations following repeated mild traumatic brain injury: Novel insights using a clinically relevant rat model. Neurobiol Dis. 148, 105151(2021).
- Fehily, B., Fitzgerald, M. Repeated mild traumatic brain injury: Potential mechanisms of damage. Cell Transplant. 26 (7), 1131-1155 (2017).
- Ma, X., Aravind, A., Pfister, B. J., Chandra, N., Haorah, J. Animal models of traumatic brain injury and assessment of injury severity. Mol Neurobiol. 56 (8), 5332-5345 (2019).
- Freeman-Jones, E., Miller, W. H., Work, L. M., Fullerton, J. L. Polypathologies and animal models of traumatic brain injury. Brain Sci. 13 (12), 1709(2023).
- Petersen, A., Soderstrom, M., Saha, B., Sharma, P. Animal models of traumatic brain injury: A review of pathophysiology to biomarkers and treatments. Exp Brain Res. 239 (10), 2939-2950 (2021).
- Ouyang, W., et al. Modified device for fluid percussion injury in rodents. J Neurosci Res. 96 (8), 1412-1429 (2018).
- Yang, G., Pan, F., Parkhurst, C. N., Grutzendler, J., Gan, W. B. Thinned-skull cranial window technique for long-term imaging of the cortex in live mice. Nat Protoc. 5 (2), 201-208 (2010).
- Liu, Y., Fan, Z., Wang, J., Dong, X., Ouyang, W. Modified mouse model of repeated mild traumatic brain injury through a thinned-skull window and fluid percussion. J Neurosci Res. 101 (10), 1633-1650 (2023).
- Bolton-Hall, A. N., Hubbard, W. B., Saatman, K. E. Experimental designs for repeated mild traumatic brain injury: Challenges and considerations. J Neurotrauma. 36 (8), 1203-1221 (2019).
- Aleem, M., Goswami, N., Kumar, M., Manda, K. Low-pressure fluid percussion minimally adds to the sham craniectomy-induced neurobehavioral changes: Implication for experimental traumatic brain injury model. Exp Neurol. 329, 113290(2020).
- Katz, P. S., Molina, P. E. A lateral fluid percussion injury model for studying traumatic brain injury in rats. Methods Mol Biol. 1717, 27-36 (2018).
- Xiong, B., et al. Precise cerebral vascular atlas in stereotaxic coordinates of whole mouse brain. Front Neuroanat. 11, 128(2017).
- Hoogenboom, W. S., et al. Evolving brain and behaviour changes in rats following repetitive subconcussive head impacts. Brain Commun. 5 (6), 316(2023).
- Lipton, M. L., et al. Soccer heading is associated with white matter microstructural and cognitive abnormalities. Radiology. 268 (3), 850-857 (2013).
- Rubin, T. G., et al. Mri-defined white matter microstructural alteration associated with soccer heading is more extensive in women than men. Radiology. 289 (2), 478-486 (2018).
- Mcinnes, K., Friesen, C. L., Mackenzie, D. E., Westwood, D. A., Boe, S. G. Mild traumatic brain injury (mtbi) and chronic cognitive impairment: A scoping review. PLoS One. 12 (4), e0174847(2017).
- Marschner, L., et al. Single mild traumatic brain injury results in transiently impaired spatial long-term memory and altered search strategies. Behav Brain Res. 365, 222-230 (2019).
- Hoogenboom, W. S., Branch, C. A., Lipton, M. L. Animal models of closed-skull, repetitive mild traumatic brain injury. Pharmacol Ther. 198, 109-122 (2019).
- Cunningham, J., Broglio, S. P., O'grady, M., Wilson, F. History of sport-related concussion and long-term clinical cognitive health outcomes in retired athletes: A systematic review. J Athl Train. 55 (2), 132-158 (2020).
- Fidan, E., et al. Repetitive mild traumatic brain injury in the developing brain: Effects on long-term functional outcome and neuropathology. J Neurotrauma. 33 (7), 641-651 (2016).
- Nguyen, T., et al. Repeated closed-head mild traumatic brain injury-induced inflammation is associated with nociceptive sensitization. J Neuroinflammation. 20 (1), 196(2023).
- Ren, H., et al. Enriched endogenous omega-3 fatty acids in mice ameliorate parenchymal cell death after traumatic brain injury. Mol Neurobiol. 54 (5), 3317-3326 (2017).
- Lillie, E. M., Urban, J. E., Lynch, S. K., Weaver, A. A., Stitzel, J. D. Evaluation of skull cortical thickness changes with age and sex from computed tomography scans. J Bone Miner Res. 31 (2), 299-307 (2016).
Przedruki i uprawnienia
Sprostowanie
Formal Correction: Erratum: Modified Mouse Model of Repetitive Mild Traumatic Brain Injury Incorporating Thinned-Skull Window and Fluid Percussion
Posted by JoVE Editors on 6/04/2025. Citeable Link.
This corrects the article 10.3791/66440
