Opisujemy tutaj metody indukowania i analizowania zależnej od doświadczenia węchowego przebudowy synaptycznych kłębuszków nerkowych płata czułkowego w mózgu młodocianych Drosophila.
Artykuł metodologiczny
Zależna od doświadczenia przebudowa połączeń synaptycznych neuronów czuciowych młodzieńczych neuronów czuciowych we wczesnym okresie życia
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Doświadczenie zmysłowe węchu we wczesnym okresie życia powoduje dramatyczną przebudowę kłębuszków synaptycznych w mózgu młodocianych Drosophila, która jest empirycznie zależna od dawki, ograniczona czasowo i przejściowo odwracalna tylko w krótkim, dobrze zdefiniowanym okresie krytycznym. Kierunkowość przebudowy połączeń synaptycznych obwodów mózgu jest określana przez specyficzny zapach działający na klasę receptorów respondenta węchowych neuronów czuciowych. Ogólnie rzecz biorąc, każda klasa neuronów wyraża tylko jeden receptor zapachowy i unerwia pojedynczy węchowy kłębuszek synaptycznych. W modelu genetycznym Drosophila pełny wachlarz kłębuszków węchowych został precyzyjnie zmapowany na podstawie reakcji na zapach i wyników behawioralnych. Środek zapachowy maślanu etylu (EB) aktywuje neurony receptora Or42a unerwiające kłębuszki VM7. W krytycznym okresie wczesnego życia doświadczenia z EB napędzają zależną od dawki eliminację synaps w węchowych neuronach czuciowych Or42a. Czasowe okresy ekspozycji na dozowany zapach EB pozwalają na badanie zależnego od doświadczenia przycinania połączeń obwodowych w mózgu młodocianych. Obrazowanie pod mikroskopią konfokalną kłębuszków synaptycznych płata czułkowego odbywa się za pomocą markerów transgenicznych sterowanych receptorem Or42a, które zapewniają ilościowe określenie liczby synaps i objętości unerwienia. Zaawansowany zestaw narzędzi genetycznych Drosophila umożliwia systematyczną analizę mechanizmów komórkowych i molekularnych pośredniczących w przebudowie obwodów mózgowych.
Wprowadzenie
Przebudowa obwodów mózgowych u młodych osobników we wczesnym okresie życia stanowi ostatnią szansę na duże zmiany w połączeniach synaptycznych, aby dopasować się do bardzo zmiennego, nieprzewidywalnego środowiska, w którym rodzi się zwierzę. Jako najliczniejsza grupa zwierząt, owady dzielą ten ewolucyjnie zachowany, fundamentalny mechanizm przebudowy okresu krytycznego1. Okresy krytyczne otwierają się wraz z nadejściem bodźca sensorycznego, wykazują odwracalne zmiany obwodu w celu optymalizacji łączności, a następnie zamykają się, gdy siły stabilizacyjne opierają się dalszej przebudowie2. Owady są szczególnie zależne od węchowych informacji sensorycznych i wykazują dobrze zdefiniowany węchowy okres krytyczny. Drosophila stanowi doskonały model genetyczny do badania tego zależnego od doświadczenia okresu krytycznego w mózgu młodocianego. Doświadczenie odorantu w ciągu pierwszych kilku dni po eklozji powoduje uderzające zmiany łączności obwodów w indywidualnie zidentyfikowanych kłębuszkach synaptycznych 3,4. Kierunek przebudowy zależy od konkretnego doświadczenia z wejściowym odorantem. Niektóre substancje zapachowe powodują wzrost objętości kłębuszka synaptycznego na kilka dni po ekklonizacji (DPE)3,5,6,7, podczas gdy inne substancje zapachowe powodują szybką eliminację synaps w krytycznym okresie 0-2 DPE, co skutkuje zmniejszeniem objętości unerwienia8,9,10. W szczególności, doświadczenie z zapachem maślanu etylu (EB) napędza zależne od dawki przycinanie synaptyczne neuronów receptora węchowego Or42a tylko w tym krytycznym okresie wczesnego życia8. Eliminacja synaps jest całkowicie odwracalna poprzez modulację dopływu zapachu EB w okresie krytycznym, ale staje się trwała po zamknięciu okresu krytycznego. To zależne od doświadczenia węchowego przycinanie synaptyczne stanowi cenny system eksperymentalny do wyjaśnienia czasowo ograniczonych mechanizmów leżących u podstaw przebudowy obwodów mózgu u młodych ludzi.
Tutaj prezentujemy szczegółowy protokół używany do indukowania i analizowania zależnego od doświadczenia EB przycinania synaptycznego węchowych neuronów czuciowych receptora Or42a we wczesnym okresie życia. Pokazujemy, że zakończenia synaptyczne Or42a w płacie anteny kłębuszków nerkowych VM7 mogą być specyficznie znakowane przez transgeniczne kierowanie markerem mCD8::GFP na uwięzi błonowej, albo bezpośrednio połączonym z promotorem Or42a (Or42a-mCD8::GFP)11 lub przy użyciu systemu wyrażeń binarnych Gal4/UAS (Or42a-Gal4 sterujący UAS-mCD8::GFP)12. Poszczególne synapsy neuronów Or42a mogą być podobnie znakowane za pomocą ukierunkowanej transgenicznej ekspresji markerów presynaptycznej strefy aktywnej połączonych z szeregiem znaczników fluorescencyjnych (np. Bruchpilot::RFP)8 lub sygnału o dużej gęstości elektronów do analiz synaps ultrastrukturalnych (np. miniSOG-mCherry)8. Zakończenia synaptyczne Or42a można obrazować za pomocą kombinacji laserowej skaningowej mikroskopii konfokalnej i transmisyjnej mikroskopii elektronowej. Pokazujemy, że przycinanie kłębuszków synaptycznych Or42a jest zależne od dawki EB, skalując się do stężenia doznania zapachowego w czasie. Procentowa zawartość substancji zapachowej EB rozpuszczonej w oleju mineralnym używanym jako nośnik może być różna, podobnie jak czas trwania ekspozycji na środek zapachowy u zwierząt w stadium rozwoju. Na koniec pokazujemy metody stosowane do analizy zakresu przycinania kłębuszków synaptycznych poprzez pomiar intensywności i objętości fluorescencji unerwienia VM7. Liczbę synaps można również określić ilościowo, licząc znakowane punkty synaptyczne i mierząc parametry ultrastruktury synaptycznej za pomocą transmisyjnej mikroskopii elektronowej8. Ogólnie rzecz biorąc, przedstawiony tutaj protokół jest potężnym podejściem, które umożliwia systematyczną analizę zarówno komórkowych, jak i molekularnych mechanizmów pośredniczących w przycinaniu połączeń synaptycznych obwodu węchowego Drosophila w młodzieńczym okresie krytycznym. Ogólna konfiguracja ekspozycji na zapach opisana w tym badaniu została wykorzystana w poprzednich badaniach z wykorzystaniem innych zapachów i oznaczaniem innych kłębuszków nerkowych3,7.
Protokół
1. Ekspozycja na substancje zapachowe
- Za pomocą cienkiego pędzla posortuj 40-50 zwierząt w stadium rozwojowym jako ciemne poczwarki pharate (90+ h po poczwarzeniu w temperaturze 25 °C) do fiolek z polistyrenu Drosophila o wymiarach 25 mm x 95 mm zawierających standardowy pokarm z melasy z mąki kukurydzianej (Rysunek 1A).
- Umieść drobną siatkę drucianą ze stali nierdzewnej na końcu fiolek Drosophila, aby zatrzymać muchy, a jednocześnie umożliwić dobry przepływ powietrza. Zabezpiecz nasadki z siatki drucianej przyklejoną przezroczystą folią z boku fiolek Drosophila.
- W probówce do mikrowirówek o pojemności 1,5 ml umieść 1 ml 100% oleju mineralnego (kontrola nośnika) lub rozpuść środek zapachowy na bazie maślanu etylu (EB) w oleju mineralnym w innej probówce, aby uzyskać pożądane stężenie (np. 15% (150 μL) lub 25% (250 μL)).
- Umieść probówki do sterowania pojazdem lub mikrowirówki do nawaniania w pozycji pionowej w hermetycznym pojemniku Glasslock o pojemności 3700 ml. Za pomocą taśmy zakotwicz rurki bezpiecznie w środku komór nawaniających razem z fiolkami Drosophila (Rysunek 1B).
- Umieścić szczelnie zamknięte komory kontrolne nośnika i komory nawaniacza EB zawierające etapowe fiolki poczwarek Drosophila pharate w wilgotnym (70%) inkubatorze o kontrolowanej temperaturze (25 °C) w cyklu 12 godzin/12 godzin światła/ciemności.
- Usuń nowo zamknięte muchy po 4 godzinach ekspozycji w komorze nawaniającej i szybko przenieś 20-25 much do świeżych fiolek Drosophila w komorach ze świeżo przygotowanym środkiem zapachowym (Rysunek 1A,B). Wyrzuć niezamknięte poczwarki.
- Muchy należy przechowywać w szczelnych komorach nawaniających w inkubatorach przez łącznie 24 godziny. Aby uzyskać dłuższe dozowanie środka zapachowego, należy co 24 godziny szybko przenosić muchy do nowych fiolek Drosophila w świeżo przygotowanych komorach zapachowych.
- Znieczulenie muszek w stadium rozwojowym poprzez zanurzenie ich w naczyniu z 70% etanolem na 1 minutę w ramach przygotowań do natychmiastowego wypreparowania mózgu i przetworzenia immunocytochemicznego.
2. Sekcja mózgu
- Oznacz fiolki jako kontrolne nośnika (tylko 100% oleju mineralnego) lub narażone na EB (% EB) poprzez etykietowanie i utrzymuj te oznaczenia przez cały czas trwania sekcji mózgu i późniejszego przetwarzania. Przetwórz 10-20 zwierząt dla każdego genotypu/stanu zapachowego.
- Za pomocą kleszczy przenieś pojedynczą znieczuloną muchę do małego naczynia ze świeżo przygotowanym roztworem soli fizjologicznej buforowanej fosforanami (PBS)13. Zanurz muchę w PBS i kontynuuj pełną sekcję mózgu z muchą całkowicie zanurzoną.
- Z cienkimi (#4) zaostrzonymi kleszczami w obu rękach, połóż muchę brzuszną stroną do góry i chwyć górną część klatki piersiowej jednym kleszczem, a głowę pod trąbką drugimi kleszczami. Uważaj, aby nie przeniknąć do mózgu.
- Zdejmij głowę z reszty ciała, delikatnie pociągając obiema rękami w przeciwnych kierunkach. Głowa powinna łatwo odczepić się od klatki piersiowej; pozostawić odizolowaną głowę do rozwarstwienia (Rysunek 1C).
- Wsuń kleszcze używane wcześniej do chwytania klatki piersiowej pod przeciwną stronę trąbki. Zacznij delikatnie ciągnąć naskórek egzoszkieletu w przeciwnych kierunkach, tak aby rozerwał się między oczami, odsłaniając mózg.
- Podczas ciągnięcia płaty wzrokowe mózgu mogą oddzielić się wraz z egzoszkieletem. Aby temu zapobiec, użyj powolnego, stałego pociągnięcia dwoma kleszczami podczas usuwania naskórka egzoszkieletu (Rysunek 1C, środek).
- Kontynuuj usuwanie naskórka egzoszkieletu z głowy. Upewnij się, że wszystkie części egzoszkieletu zostały usunięte. Usuń wszelkie tkanki przyczepione do mózgu, w tym ciało tłuszczowe i wystającą tchawicę.
- Aby zapobiec przywieraniu, przepłukać końcówkę pipety P20 środkiem PBS + 0,2% Triton-X 100 (PBST). Natychmiast po rozbiorze przenieś mózgi do roztworu utrwalającego (4% paraformaldehydu (PFA) + 4% sacharozy) w zaślepionej probówce (Rysunek 1C,D).
3. Immunocytochemia mózgu
- Unieruchom mózg przez 30 minut w temperaturze pokojowej (RT) z rotacją od końca do końca. Trzymając mózg w probówce, odpipetuj i odpowiednio zutylizuj niebezpieczny utrwalacz. Szybko umyj stałe mózgi 3x za pomocą PBS (Rysunek 1D).
- Mózgi często można znaleźć utknięte w nasadce rurek po obróceniu. Aby zapobiec przypadkowej utracie mózgu, która stanowi stałe zagrożenie we wszystkich transferach, podczas pipetowania płynów należy używać mikroskopu preparacyjnego.
- Przygotowując się do znakowania przeciwciałami, zablokuj utrwalone mózgi na 1 godzinę w RT w PBST + 1% albuminy surowicy bydlęcej (BSA) + 0,5% normalnej surowicy koziej (NGS) ze stałą rotacją końca końca (Rysunek 1D).
- Usunąć blok i inkubować mózgi z wybranym pierwszorzędowym przeciwciałem odpowiednio rozcieńczonym w PBST + 0,2% BSA + 0,1% NGS. Inkubować mózgi przez noc (14-16 godzin) w temperaturze 4 °C ze stałą rotacją.
UWAGA: Przykładowe użyte przeciwciała: szczurzy anty-CadN (rozcieńczenie 1:50)14 do oznaczania kłębuszków synaptycznych i kurczaka anty-GFP (1:1000)8 do oznaczania Or42a-mCD8::GFP (Rysunek 1D). - Odpipetować przeciwciało pierwotne. Myj mózgi 3x po 20 minut za pomocą PBST. Inkubować mózgi z przeciwciałami drugorzędowymi rozcieńczonymi w PBST z 0,2% BSA + 0,1% NGS przez 2 godziny w RT ze stałą rotacją.
UWAGA: Alternatywnie, inkubować mózgi przez noc (14-16 godzin) w temperaturze 4 °C. Rozcieńczyć przeciwciała w PBST 0,2% BSA + 0,1% NGS; Zastosowano tu przeciwciała drugorzędowe: 488 kozich anty-kurczaków (1:250) i 546 kozich antyszczurów (1:250). - Odpipetować przeciwciała drugorzędowe. Myj mózgi 3x po 20 minut za pomocą PBST. Na koniec myj mózgi przez 20 minut za pomocą PBS (Rysunek 1D).
- Przygotować szklane szkiełka mikroskopowe (75 mm x 25 mm), dodając do szkiełka dwa cienkie paski dwustronnej taśmy klejącej w odległości ~25 mm od siebie. Zapewnia to przekładkę, aby uniknąć zmiażdżenia mózgu.
- Odpipetować ~10-15 μL medium montażowego między dwoma paskami taśmy, aby zamontować mózgi. Za pomocą końcówki pipety P20 wstępnie przepłukanej PBST, przenieś oznaczone mózgi na szkiełko mikroskopowe (Rysunek 1E).
- Po przeniesieniu mózgów użyj cienkiego pędzla, aby je wyrównać, upewniając się, że płaty czułków są skierowane do góry. Poszukaj strony, która ma łukowaty garb, który będzie zawierał płaty czułków.
- Gdy mózgi są już odpowiednio zorientowane, przykryj je szklanym szkiełkiem nakrywkowym (nr 1.5H), upewniając się, że szkiełko nakrywkowe jest dobrze przymocowane do taśmy. Następnie wypełnij boki szkiełka nakrywkowego dodatkowym medium montażowym (Rysunek 1E).
- Uszczelnij krawędzie szkiełka nakrywkowego przezroczystym lakierem do paznokci. Pozostaw szkiełko do całkowitego wyschnięcia, a następnie przechowuj je w lodówce do późniejszego obrazowania.
4. Obrazowanie konfokalne
- Zaślep wszystkie preparaty mózgowe zarówno na genotyp, jak i warunki doświadczenia przed obrazowaniem, oznaczając szkiełko zakodowaną etykietą w celu późniejszego odkodowania.
- Użyj laserowego skaningowego mikroskopu konfokalnego z obiektywem zanurzonym w oleju 63x. Używamy mikroskopu Zeiss 510 META na wszystkich pokazanych tutaj obrazach (Rysunek 1F).
- Użyj odpowiednich linii laserowych dla zastosowanych fluoroforów. W tym przypadku użyj lasera Argon 488 i HeNe 543 do obrazowania kłębuszków synaptycznych płata antenowego i węchowych neuronów czuciowych Or42a (Rysunek 2).
- Określ optymalne wzmocnienie i przesunięcie dla obu kanałów, najlepiej zachowując wzmocnienie dla obu kanałów <750 i przesunięcie ≈0. Ma to na celu zapewnienie optymalnego stosunku sygnału do szumu przy jednoczesnym ograniczeniu tła.
- Umieść obrazowanie w centrum mózgu. Podczas obrazowania kłębuszki VM7 znajdują się proksymalnie do otworu pozostawionego w środku mózgu po usunięciu przełyku podczas sekcji (Rysunek 2A).
UWAGA: Kłębuszki nerkowe VM7 zawsze będą znajdować się blisko otworu przełyku. Jednak dokładna lokalizacja i rozmiar różnią się nieznacznie w zależności od sekcji mózgu i różnic w narastaniu, więc weź to pod uwagę podczas obrazowania. - Wybierz rozdzielczość obrazowania i grubość warstwy optycznej. W tym przypadku używana jest rozdzielczość 1024 x 1024 z grubością warstwy Z-stack wynoszącą 0,37 μm.
- Wykonaj całą konfokalną projekcję stosu Z przez płat antenowy, zapewniając uchwycenie pełnego unerwienia neuronu Or42a kłębuszków nerkowych VM7.
5. Pomiary synaptyczne
- Załaduj obraz z zaślepionym genotypem/kondycją na Fidżi (1.54f). Podziel kanały linii laserowej, klikając Obraz > Kolor > Podziel kanały.
- W węchowym kanale czuciowym Or42a określ, które wycinki zawierają unerwienie Or42a, przewijając cały stos Z, identyfikując, gdzie zaczyna się i kończy fluorescencja.
- Utwórz projekcję wycinków sumy zawierającą tylko wycinki zawierające unerwienie neuronu Or42a, klikając Stosy obrazów > > Z Projektuj > Sumuj wycinki i wprowadzając żądany zakres.
- Na Fidżi kliknij narzędzie Lasso na górnym pasku, aby prześledzić kontur unerwienia neuronu Or42a w kłębuszkach nerkowych VM7, traktując każde kłębuszki nerkowe po stronie mózgu niezależnie (Rysunek 3).
- Pomnóż obwód przez liczbę plasterków stosu Z i grubość każdego plasterka, aby uzyskać objętość unerwienia kłębuszka synaptycznego VM7. Aby określić ilościowo liczbę synaps, narzędzie find maxima może być używane wraz z makrem find maxima stacks do liczenia punktów synaps w zaznaczonym regionie8,15.
Wyniki
Rysunek 1 przedstawia schemat pracy dla metod ekspozycji na odoranty w okresie krytycznym zależnym od doświadczeń węchowych oraz obrazowania mózgu. Protokół rozpoczyna się od dopasowania wieku poczwarek w stadium pharate przed samym wyjściem z poczwarki (Rysunek 1A). Poczwarki umieszcza się w komorach z odorantem na 4 h, a następnie nowo wyklute osobniki przenosi się do świeżych fiolek, albo do komór kontrolnych z nośnikiem, albo do komór z dawką odorantu EB (Rysunek 1B). Zazwyczaj stosujemy ekspozycję na odorant przez 24 h, choć możliwy jest dowolny czas trwania. Po ekspozycji na odorant przystępuje się do sekcji mózgu, zaczynając od oddzielenia głowy od tułowia, a następnie usunięcia chitynowego egzoszkieletu za pomocą precyzyjnej pęsety (Rysunek 1C). Wyizolowany mózg oczyszcza się z wszelkich tkanek towarzyszących, które mogłyby zakłócić obrazowanie, a następnie natychmiast utrwala w 4% paraformaldehydzie i 4% sacharozie w PBS. Krótka fiksacja trwająca 30 min jest wystarczająca dla zachowania dobrej integralności tkanki mózgowej. Protokół immunocytochemiczny rozpoczyna się od 1 h blokowania (np. BSA, NGS), inkubacji przez noc w przeciwciałach pierwszorzędowych (np. anty-GFP, -CadN), a następnie krótkiej 2 h inkubacji w przeciwciałach wtórnych (Rysunek 1D). Oznakowane mózgi montuje się na szkiełkach przedmiotowych pod szczelnie zamkniętymi szkiełkami nakrywkowymi, stroną grzbietową mózgu do góry, aby uzyskać najlepszy obraz płatów antennych (Rysunek 1E). Należy pamiętać, że wszystkie próbki są ślepe względem genotypu i warunków doświadczalnych poprzez oznaczenie szkiełka zakodowanym symbolem do późniejszego odszyfrowania. Do obrazowania płatów antennych w centrum mózgu wykorzystuje się konfokalny mikroskop skaningowy z obiektywem imersyjnym 63x (Rysunek 1F). Dobiera się linie laserowe optymalne dla zastosowanych fluoroforów (np. Argon 488 i HeNe 543), aby zobrazować unerwienie VM7 przez sensoryczne neurony węchowe Or42a w kontekście otaczających kłębków.
Ważne jest wybranie optymalnego wzmocnienia, przesunięcia, rozdzielczości obrazowania oraz grubości warstwy optycznej, aby uchwycić pełną projekcję stosu Z (Z-stack) unerwienia neuronów Or42a w kłębuszkach VM7. Wszystkie genotypy i warunki doświadczalne poddawane porównaniu są obrazowane przy identycznych ustawieniach mikroskopu. Stosy Z są przetwarzane przy użyciu oprogramowania ImageJ, a zmiany zależne od doświadczenia są oceniane przede wszystkim na podstawie objętości unerwienia7,14. Zastosowano dwa sposoby obliczania pomiarów objętościowych. Pierwszy polega na obliczaniu powierzchni unerwienia warstwa po warstwie przy użyciu funkcji lasso w programie ImageJ, a następnie mnożeniu każdej wartości przez grubość pojedynczej warstwy (µm)8,9. Drugi wykorzystuje projekcje Z sumaryczne (sum slice Z-projections), mnożąc liczbę warstw stosu Z przez grubość warstwy w celu wyznaczenia średniej objętości. Obie metody dają spójne wyniki. Oprócz pomiarów objętości można ocenić intensywność fluorescencji za pomocą projekcji maksymalnej intensywności (maximum intensity projection) kłębuszków VM716. Ważoną sumę wszystkich pikseli ocenia się za pomocą funkcji sum slice max projection w ImageJ, sumując liczbę pikseli na każdym poziomie intensywności w celu obliczenia całkowitej intensywności8,9. Tło można odjąć, kwantyfikując obszar pozakłębuszkowy o tej samej wielkości. Metoda odejmowania ta jest bardziej czasochłonna, ale dokładniejsza, ponieważ uwzględnia zmienne poziomy tła znakowania przeciwciałami w każdej próbce mózgu, co pozwala na uzyskanie bardziej reprezentatywnej kwantyfikacji wartości intensywności fluorescencji unerwienia. Pomiary intensywności wykonuje się w typowym zakresie od 18 do 30 warstw optycznych (0,37 µm/warstwa) w obrębie stosu Z, wyliczając średnią dla każdego mózgu16. W niemal wszystkich przypadkach pomiary intensywności fluorescencji oraz objętości unerwienia dają spójne wyniki.
We wszystkich modalnościach pomiarowych reprezentatywne wyniki pozostają niezmienne; doświadczenie zapachowe EB w wczesnej fazie życia prowadzi do znacznej utraty unerwienia neuronów Or42a. Kłębek VM7 można niezawodnie zidentyfikować po rozmiarze, kształcie i położeniu wśród innych precyzyjnie zmapowanych kłębków węchowych płata antennego (Rysunek 2A) oraz poprzez ukierunkowaną ekspresję znacznika błonowego Or42a-mCD8::GFP w połączeniu z obrazowaniem kłębków przeciwciałem przeciwko kadherynie neuronalnej (CadN; Rysunek 2B). Kontrolowana czasowo ekspozycja na nośnik zapachowy (olej mineralny) skutkuje unerwieniem neuronów Or42a nieodróżnialnym od zwierzęcia nieleczonego, normalnego. Niemniej jednak, doświadczenie zapachowe EB w ciągu pierwszych kilku dni po wyjściu z poczwarki (dpe) powoduje przycinanie synaptyczne kłębków (Rysunek 2C). Mechanizm ten jest całkowicie ograniczony do krótkiego, krytycznego okresu we wczesnej fazie życia8,10. Obecnie zazwyczaj stosujemy 24 h ekspozycji na zapach, aby ocenić przycinanie synaptyczne kłębków VM7 oraz wynikający z niego spadek objętości unerwienia w mózgu młodego osobnika Drosophila . 24 h ekspozycji (0-1 dpe) na kontrolny nośnik zapachowy (olej mineralny) utrzymuje normalne, gęste unerwienie Or42a-mCD8::GFP (zielone) w synaptycznych kłębkach VM7 (białe przerywane okręgi) w płatach antennych obu półkul mózgu (Rysunek 2D, lewo). W rażącym kontraście, 24 h ekspozycji (0-1 dpe) na 25% zapachu EB rozpuszczonego w oleju mineralnym prowadzi do silnego przycinania unerwienia Or42a-mCD8::GFP (zielone) i utraty objętości synaptycznej kłębka (Rysunek 2D, prawo). Wyniki te są zarówno wizualnie oczywiste, jak i konsekwentnie jasne. Jedną z największych zalet tego protokołu doświadczenia zapachowego jest przejrzystość wyników obrazowania mózgu, które są również niezwykle podatne na proste ilościowe oznaczenia intensywności fluorescencji i objętości unerwienia.
Główną zaletą tego protokołu doświadczeń zapachowych jest możliwość wykorzystania go do badania ograniczeń czasowych oraz mechanizmów zależnych od dawki zapachu podczas przycinania synaptycznego w okresie krytycznym. W przypadku eliminacji synaps neuronów Or42a indukowanej przez EB w kłębuszku VM7, mechanizm przebudowy jest ograniczony głównie do wczesnej fazy młodzieńczej (0-2 dpe), przy czym w fazie dojrzałości (7-9 dpe) nie stwierdzono zależnego od doświadczenia przycinania synaptycznego, z wyjątkiem niewielkiej modulacji przy najwyższych poziomach ekspozycji na EB8. Takie ograniczenie czasowe definiuje okres krytyczny, a zrozumienie tego mechanizmu czasowego jest ważnym celem. Inną cechą tego protokołu jest to, że zależne od doświadczenia przycinanie synaptyczne zależy od dawki EB (Rycina 3). Określona czasowo ekspozycja na kontrolny nośnik zapachu (olej mineralny) z 0% zapachu EB skutkuje prawidłową innerwacją kłębuszka synaptycznego VM7 przez neurony Or42a, która jest nieodróżnialna od innerwacji u zwierzęcia niepoddanego działaniu preparatu. Obliczenie trójwymiarowej objętości innerwacji neuronów Or42a wykazuje rozmiar typowy dla prawidłowego mózgu młodzieńczego (2260 µm3; Rycina 3A, lewa). Reprezentatywne wyniki pokazują, że zwiększenie stężenia zapachu EB powoduje sukcesywnie większe przycinanie kłębuszków synaptycznych. Na przykład 24-godzinna ekspozycja (0-1 dpe) na 15% zapachu EB skutkuje wyraźną i spójną utratą innerwacji (Rycina 3A, środek). Kwantyfikacja trójwymiarowej objętości innerwacji wykazuje uderzającą redukcję w porównaniu z kontrolami nośnika (760 µm3 vs. 2260 µm3). 24-godzinna ekspozycja (0-1 dpe) na 25% zapachu EB powoduje jeszcze większą utratę innerwacji (281 µm3; Rycina 3A, prawa). Reprezentatywne kwantyfikacje dla tego zakresu stężeń zapachu EB wykazują spójne wyniki dla intensywności fluorescencji (Rycina 3B) oraz objętości innerwacji (Rycina 3C). Ta zależność od dawki pozwala na badanie sposobów zapobiegania przycinaniu synaptycznemu, a także zwiększania przycinania przy niższych ekspozycjach na zapach, aby wykazać zwiększoną przebudowę kłębuszków synaptycznych. Niektóre wcześniejsze badania z wykorzystaniem tego protokołu i innych zapachów wykazały przeciwny efekt w postaci zwiększenia objętości kłębuszków10. Ekspozycja na zapach EB w okresie krytycznym zawsze skutkuje uderzającym i łatwo wykrywalnym przycinaniem kłębuszków synaptycznych.
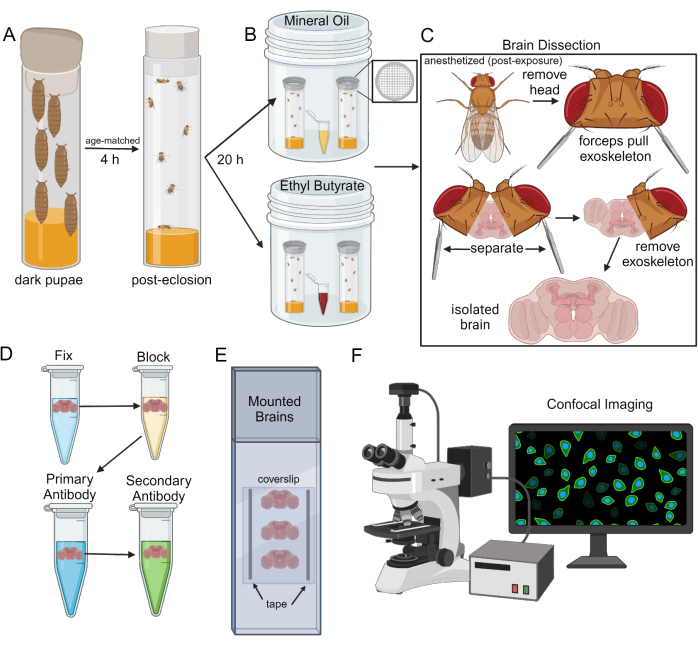
Rysunek 1: Schemat blokowy badań nad ekspozycją na substancje zapachowe w młodzieńczym mózgu Drosophila. (A) Ciemne poczwarki w stadium przedwykluciu (90+ h po pupariacji w 25 °C) są zbierane i umieszczane w komorach zapachowych. W warunkach ekspozycji na zapach pozostawia się 4 h na wyklucie, a następnie młode muchy przenosi się do nowej fiolki. (B) Muchy w tym samym wieku są dzielone na grupę kontrolną z nośnikiem (100% olej mineralny) lub grupę eksponowaną na maślan etylu (EB; % v/v w oleju mineralnym). Drobna siatka druciana (wstawka) umożliwia dostęp do substancji zapachowej. Muchy są zazwyczaj eksponowane przez dodatkowe 20 h, co daje łącznie 24 h ekspozycji, 0-1 dzień po wykluciu (dpe). (C) Muchy są poddawane dysekcji poprzez najpierw usunięcie głowy, a następnie za pomocą precyzyjnej pęsety delikatnie usuwa się egzoszkielet kutykularny i izoluje młodzieńczy mózg. Wyizolowany mózg jest oczyszczany ze wszystkich otaczających tkanek i wystających tchawek. (D) Wyizolowane mózgi są utrwalane, blokowane, a następnie sekwencyjnie inkubowane z przeciwciałami pierwotnymi i wtórnymi. Zakres stosowanych przeciwciał obejmuje zazwyczaj ogólną sondę błonową w celu uwidocznienia kłębuszków synaptycznych płata antenalnego oraz specyficzną sondę błonową dla neuronów sensorycznych węchowych Or42a. (E) Oznakowane mózgi są umieszczane w medium montażowym na szklanym szkiełku mikroskopowym z odlegaczami z taśmy pod szczelnym szkiełkiem nakrywką. Prawidłowa orientacja mózgu (powierzchnia grzbietowa skierowana do góry) jest kluczowa dla optymalnego obrazowania płatów antenalnych. (F) Mózgi są obrazowane przy użyciu laserowego skanującego fluorescencyjnego mikroskopu konfokalnego. Wszystkie próbki są ślepe pod kątem genotypu i warunków doświadczalnych przed obrazowaniem i późniejszymi analizami ilościowymi. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
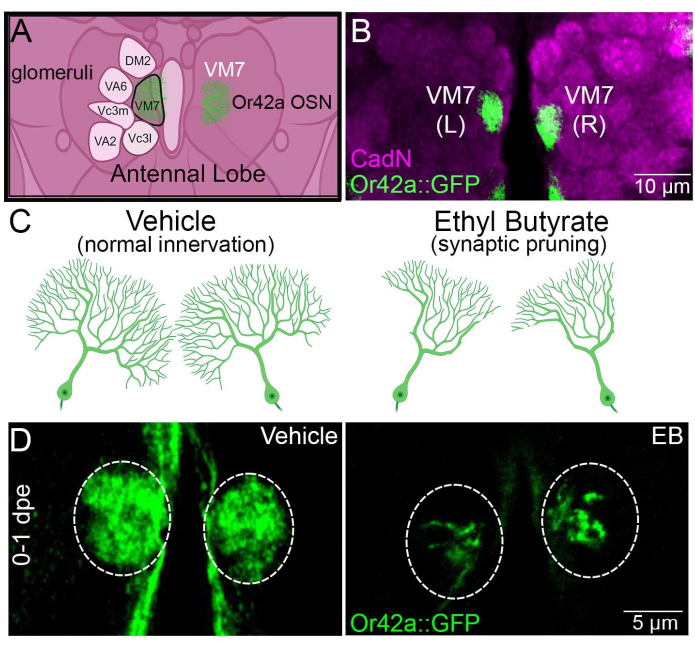
Rysunek 2: Zależne od doświadczenia zapachowego przycinanie synaptyczne kłaczków w okresie krytycznym. (A) Precyzyjne mapowanie kłaczków węchowych płata antenowego (AL). Przedstawiono kilka reprezentatywnych kłaczków synaptycznych. Klasa neuronów sensorycznych węchowych (OSN) z receptorem Or42a specyficznie unerwia kłaczki VM7. (B) Neurony znakowane Or42a-mCD8::GFP (zielone) gęsto unerwiają sparowane kłaczki VM7 po lewej (L) i prawej (R) stronie mózgu, przy zastosowaniu przeciwciał przeciwko N-kadherynie (CadN) do znakowania wszystkich kłaczków synaptycznych AL (magenta). Linia muchy to w1118; Or42a-mCD8::GFP/+. (C) Schematyczne przedstawienie unerwienia kłaczków synaptycznych VM7 przez Or42a OSN w warunkach kontrolnych z nośnikiem (100% oleju mineralnego; lewo) oraz po ekspozycji na maślan etylu (% EB v/v w oleju mineralnym; prawo) podczas młodzieńczego okresu krytycznego. Zależne od doświadczenia przycinanie unerwienia występuje tylko przy wczesnej ekspozycji na EB, co prowadzi do eliminacji synaps i utraty aksonów, skutkując zmniejszeniem objętości unerwienia. (D) Reprezentatywne obrazy konfokalne unerwienia sparowanych kłaczków synaptycznych VM7 przez Or42a OSN (białe przerywane okręgi; Or42a-mCD8::GFP, zielone) po kontroli z olejem nośnikowym (lewo) oraz ekspozycji na 25% EB (prawo) przez 24 h (0-1 dpe). Doświadczenie zapachowe z EB stymuluje przycinanie synaptyczne i utratę objętości unerwienia. Ten zależny od doświadczenia mechanizm jest ograniczony czasowo i przejściowo odwracalny tylko w obrębie ściśle zdefiniowanego węchowego okresu krytycznego w ciągu pierwszych kilku dni po wyjściu z poczwarki. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
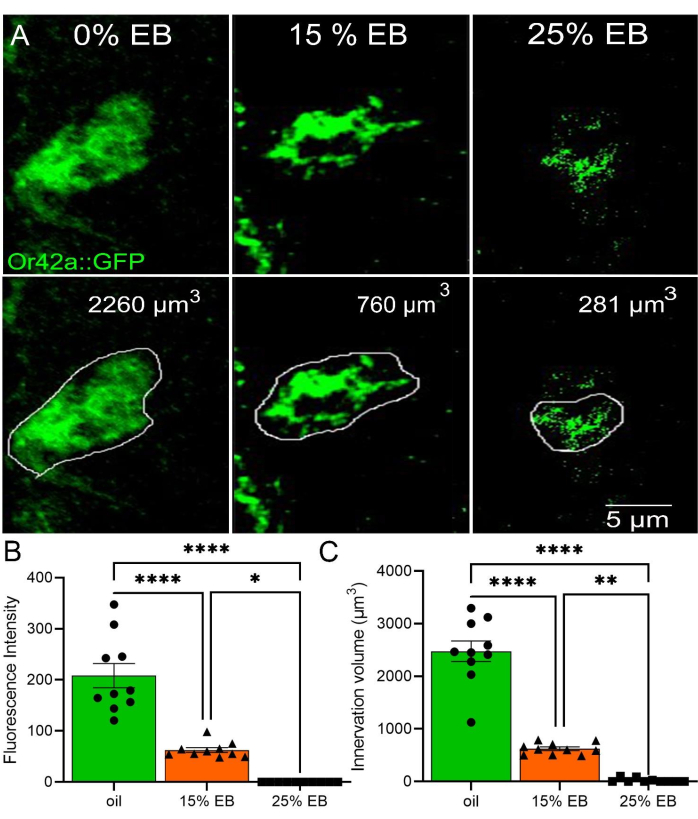
Rycina 3: Ilościowe określenie natężenia fluorescencji i objętości unerwienia kłębków synaptycznych zależne od dawki EB. (A) Unerwienie znakowane Or42a-mCD8::GFP w kłębku synaptycznym VM7 (zielony) eksponowanym od 0-1 dpe na kontrolny nośnik zapachowy w postaci oleju mineralnego (0% EB, lewo), 15% EB (środek) lub 25% EB (prawo). Poniżej: te same obrazy z obrysowanym unerwieniem kłębka (białe okręgi) i obliczoną trójwymiarową objętością unerwienia. W kontroli z nośnikiem unerwienie kłębka synaptycznego VM7 przez neurony Or42a jest nieodróżnialne od zwierząt niepoddanych działaniu substancji. Doświadczenie w okresie krytycznym z ekspozycją na zapach 15% EB skutkuje wyraźnym przycinaniem (pruningiem) kłębka synaptycznego, co w tym przypadku objawia się spadkiem trójwymiarowej objętości unerwienia o 66%. Ekspozycja na wyższe stężenie 25% EB prowadzi do silniejszego przycinania, z niemal 90% utratą objętości kłębka synaptycznego w tym przypadku. Zatem można obrazować zależne od dawki przycinanie wraz ze wzrostem intensywności doświadczenia zapachowego. (B) Reprezentatywne wyniki natężenia fluorescencji znakowanej Or42a-mCD8::GFP w kłębkach synaptycznych VM7 eksponowanych od 0-1 dpe na kontrolny nośnik zapachowy (olej, zielony), 15% EB (środek, pomarańczowy) lub 25% EB (prawo, czarny). (C) Reprezentatywne wyniki trójwymiarowych objętości unerwienia kłębków VM7 w tych samych warunkach ekspozycji na zapachy w okresie krytycznym. Wykresy rozrzutu przedstawiają wszystkie poszczególne punkty danych wraz ze średnią ± SEM. Istotność statystyczną oznaczono jako p≤0.05 (*), p ≤ 0.01 (**), p ≤ 0.001 (***) oraz p ≤ 0.0001 (****). Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Dyskusja
Przedstawiony tutaj protokół ekspozycji na substancje zapachowe i obrazowania mózgu może być wykorzystany do wiarygodnego indukowania i ilościowego określania zależnego od doświadczenia węchowego przycinania kłębuszków nerkowych węchowych neuronów czuciowych we wczesnym okresie życia. Wcześniejsze badania wykorzystujące ten paradygmat leczenia do zbadania przebudowy obwodu węchowego rozpoczęły ekspozycję na zapach w 2dobie po eklozji 3,4,5. W przeciwieństwie do tego, rozpoczynamy ekspozycję na zapach u poczwarek pharate przed dorosłą eklozją i stwierdzamy, że zdecydowana większość przebudowy następuje w ciągu pierwszych 24 godzin po eklozji 8,9. Tak więc niezbędnym krokiem w tym protokole ekspozycji na zapach jest umieszczenie etapowych ciemnych poczwarek w komorach zapachowych przed eklozją (ryc. 1). Nie chodzi o narażenie poczwarki na zapach jako taki, ale raczej o zapewnienie ekspozycji na zapach natychmiast po eklencji dorosłego osobnika. Wybraliśmy zamkniętych młodocianych osobników dorosłych 4 godziny po inscenizacji, aby zsynchronizować wiek w ciasnym oknie czasowym i uniknąć różnic w czasie ekspozycji na zapach. Ten wcześniejszy interwał doświadczeń jest zgodny z ostatnimi badaniami wykazującymi, że przyzwyczajenie węchu EB zamyka się już po 2 dniach od eklozji10. Jednak konsekwencje różnic w czasie ekspozycji na nawaniacz w okresie krytycznym (np. 0-1 vs. 1-2 dni) nie zostały dobrze scharakteryzowane. Węchowe neurony czuciowe Or42a selektywnie unerwiają kłębuszki VM7 w płacie antenowym, który można łatwo zidentyfikować na podstawie precyzyjnych map kłębuszków nerkowych i docelowego znakowania unerwienia (np. Or42a-mCD8::GFP; Rysunek 2). Narażenie na zapach EB w okresie krytycznym nie zmienia ekspresji promotora Or42a ani poziomów reporterowych8. Czasowa ekspozycja na zapach powoduje sekwencyjną eliminację synaps i utratę unerwienia aksonów z neuronów receptora Or42a. Przycinanie to jest całkowicie odwracalne we wczesnym okresie krytycznym (0-2 dpe), ale nie w wieku dojrzałości dorosłego (7-9 dpe), kiedy zmiany w środowisku zapachowym nie wpływają już na unerwienie. Ścisłe ograniczenie czasowe tego zależnego od doświadczenia sensorycznego mechanizmu jest głównym nierozstrzygniętym pytaniem w tej dziedzinie. Podejmuje się wiele prób ponownego otwarcia krytycznej plastyczności przypominającej okres dojrzałości. Podany tutaj protokół jest potężną drogą do zbadania.
Opisana tutaj łatwość ekspozycji na substancje zapachowe i protokół obrazowania mózgu pozwalają na szeroką dostępność i szerokie możliwości adaptacji. Początek, zakończenie i czas trwania ekspozycji na zapach są całkowicie zależne od uznania badacza, aby umożliwić ukierunkowane badania krytycznych właściwości okresowych, odwracalności przebudowy i ponownego otwarcia krytycznej plastyczności podobnej do okresu. Podobnie, siłą doświadczenia zapachowego można łatwo manipulować w celu zbadania zależnego od dawki przycinania kłębuszków synaptycznych (ryc. 3). Co ważne, badania, w których stosuje się niższe stężenia EB (np. 15% EB) można wykorzystać do testowania manipulacji, które mogłyby zwiększyć tempo lub zakres przebudowy kłębuszków synaptycznych. Na przykład wyniki mogą wykazać, że przycinanie synaptyczne przy niższych poziomach EB (np. 15%) jest nie do odróżnienia od wyższych poziomów EB (np. 25%). W przypadku różnych manipulacji wyniki można porównać ze stałym unerwieniem kontroli nośnika odorantu i silnym przycinaniem kłębuszków synaptycznych zachodzącym przy 25% EB (ryc. 3). Jednym z ograniczeń tej metody jest to, że narażenie na działanie substancji zapachowej całkowicie zależy od lotności rozpuszczonego środka zapachowego. Zmienne czynniki, takie jak temperatura i wilgotność względna, wpływają na skuteczność ekspozycji na nazapach8. Zagęszczenie much w komorach nawaniających może również potencjalnie wpływać na narażenie na substancje zapachowe, na przykład poprzez produkcję substancji zapachowych pochodzących z much. Zalecana jest gęstość nie większa niż 20-25 much na fiolkę. Stężenie odorantu wymagane do wywołania bardzo silnego przycinania kłębuszków synaptycznych jest prawdopodobnie wyższe niż to, co jest zwykle doświadczane w naturze10,17. Techniki obrazowania o znacznie wyższej rozdzielczości byłyby wymagane do oceny eliminacji synaps przy niższych stężeniach substancji zapachowych. Jednak obecny protokół pozwala na spójne i wiarygodne badania szeregu manipulacji.
Istnieje wiele korzyści z tej ekspozycji na substancje zapachowe i protokołu obrazowania mózgu. Drosophila jest niezwykle korzystnym modelem zwierzęcym opartym na obszernym i wyrafinowanym zestawie narzędzi genetycznych, który może być systematycznie wykorzystywany do szerokiego badania interakcji gen-środowisko w krytycznym okresie przebudowy obwodu węchowego. Pokazane tutaj przykłady obejmują transgeniczną linię sterownika Or42a-Gal4, marker błonowy UAS-mCD8::GFP i bezpośrednią fuzję Or42a-mCD8::GFP. Nie ma wyraźnych różnic między przycinaniem kłębuszków synaptycznych za pomocą bezpośredniej fuzji Or42a a metodami pośredniego znakowania Gal4/UAS 8,9. Sterownik Or42a-Gal4 zapewnia możliwość zarówno manipulowania docelowymi neuronami receptorów węchowych, jak i wizualizacji zależnych od doświadczenia zmian w unerwieniu VM7, podczas gdy bezpośrednia linia fuzji uwalnia binarny system transgeniczny UAS-Gal4 do innych manipulacji ukierunkowanych na komórki. Wiele innych zmutowanych i transgenicznych linii z obszernego zestawu narzędzi Drosophila można wykorzystać do testowania ograniczeń czasowych i mechanizmów zależnych od doświadczenia, w tym identyfikacji komórek pośredniczących w przycinaniu synaptycznym, międzykomórkowych szlaków sygnałowych przekazujących informacje o doświadczeniu węchowym oraz wewnątrzkomórkowej maszynerii wymaganej do docelowej eliminacji synaps. Ogólnie rzecz biorąc, protokół ten pozwala na systematyczne badanie wielu mechanizmów napędzających zależną od doświadczenia węchowego przebudowę obwodu mózgu. Ten protokół ekspozycji na zapach i obrazowania mózgu może być również wykorzystany do badania krytycznych modyfikacji behawioralnych doświadczeń węchowych specyficznych dla okresu, manipulacji genetycznych i farmaceutycznych, które mogą umożliwić ponowne otwarcie krytycznej plastyczności podobnej do okresu w okresie dojrzałości i innych aspektów plastyczności obwodu węchowego poza przycinaniem kłębuszków synaptycznych.
Oświadczenia
Autorzy deklarują brak sprzecznych interesów.
Podziękowania
Dziękujemy pozostałym członkom Broadie Lab za ich cenny wkład. Figury zostały stworzone przy użyciu BioRender.com. Prace te były wspierane przez granty Narodowego Instytutu Zdrowia MH084989 i NS131557 dla K.B.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Do ekspozycji na zapach | |||
| Drosophila fiolki | Genesee Scientific | 32-110 | |
| Maślan etylu | Sigma Aldrich | E15701 | |
| Probówki do mikrowirówek | Fisher Naukowy | 05-408-129 | |
| Olej mineralny | Sigma Aldrich | M3516 | |
| Komory zapachowe | Glasslock | ||
| Pędzle malarskie | Winsor & Newton | Series 233 | |
| Parafilm | Thermofisher | S37440 | |
| Siatka druciana | Scienceware | 378460000 | |
| Brain Dissection | |||
| Etanol, 190 proof | Decon Labs | 2801 | Rozcieńczony do 70% |
| kleszczy | Fine Science Tools | 11251-30 | Dumont #5 |
| Paraformaldehyd | Mikroskop elektronowy Sciences | 157-8 | Rozcieńczony do 4% |
| szalki Petriego | Fisher Scientific | 08-757-100B | |
| Solanka buforowana fosforanami | Thermo Fisher Scientific | 70011-044 | Rozcieńczona do 1x |
| sacharozy | Fisher Scientific | BP220-1 | |
| Sylgard | Mikroskop Elektronowy Nauki | 24236-10 | |
| Triton-X 100 | Fisher Scientific | BP151-100 | |
| Brain Immunocytochemia | |||
| 488 kozia anty-kurczak | Invitrogen | A11039 | |
| 546 kozia antyszczura | Invitrogen | A11081 | |
| Albumina surowicy bydlęcej | Sigma Aldrich | A9647 | |
| Kurczak anty-GFP | Abcam | 13970 | |
| Szkiełka nakrywkowe | Avantor | 48366-067 | 25 x 25 mm |
| Taśma dwustronna | Scotch | 34-8724-5228-8 | |
| Fluoromount-G | Mikroskop elektronowy Sciences | 17984-25 | |
| Szkiełka mikroskopowe | Fisher Scientific | 12-544-2 | 75 x 25 mm |
| Lakier do paznokci | Sally Hansen | 109 | Xtreme Wear, Niewidoczna |
| Normalna kozia surowica | Sigma Aldrich | G9023 | |
| Szczurze badania rozwojowe anty-CadN | Bank hybrydoma | AB_528121 | |
| Mikroskop konfokalny/Analiza | |||
| dowolny komputer/laptop | |||
| Carl Zeiss | Zeiss 510 META | ||
| Oprogramowanie | Fidżi Fidżi | Wersja 2.14.0/1.54f |
Bibliografia
- English, S., Barreaux, A. M. The evolution of sensitive periods in development: insights from insects. Curr Opinion Behav Sci. 36, 71-78 (2020).
- Fabian, B., Sachse, S. Experience-dependent plasticity in the olfactory system of Drosophila melanogaster and other insects. Fron Cell Neurosci. 17, 1130091(2023).
- Devaud, J. M., Acebes, A., Ferrús, A. Odor exposure causes central adaptation and morphological changes in selected olfactory glomeruli in Drosophila. J Neurosci. 21 (16), 6274-6282 (2001).
- Devaud, J. M., Acebes, A., Ramaswami, M., Ferrús, A. Structural and functional changes in the olfactory pathway of adult Drosophila take place at a critical age. J Neurobiol. 56 (1), 13-23 (2003).
- Sachse, S., et al. Activity-dependent plasticity in an olfactory circuit. Neuron. 56 (5), 838-850 (2007).
- Das, S., et al. Plasticity of local GABAergic interneurons drives olfactory habituation. Pro Natl Acad Sci U S A. 108 (36), E646-E654 (2011).
- Kidd, S., Struhl, G., Lieber, T. Notch is required in adult Drosophila sensory neurons for morphological and functional plasticity of the olfactory circuit. PLoS Genet. 11 (5), e1005244(2015).
- Golovin, R. M., Vest, J., Vita, D. J., Broadie, K. Activity-dependent remodeling of Drosophila olfactory sensory neuron brain innervation during an early-life critical period. J Neurosci. 39 (16), 2995-3012 (2019).
- Golovin, R. M., Vest, J., Broadie, K. Neuron-specific FMRP roles in experience-dependent remodeling of olfactory brain innervation during an early-life critical period. J Neurosci. 41 (6), 1218-1241 (2021).
- Chodankar, A., Sadanandappa, M. K., Raghavan, K. V., Ramaswami, M. Glomerulus-selective regulation of a critical period for interneuron plasticity in the drosophila antennal lobe. J Neurosci. 40 (29), 5549-5560 (2020).
- Stephan, D., et al. Drosophila Psidin regulates olfactory neuron number and axon targeting through two distinct molecular mechanisms. J Neurosci. 32 (46), 16080(2012).
- Doll, C. A., Broadie, K. Activity-dependent FMRP requirements in development of the neural circuitry of learning and memory. Development. 142 (7), 1346-1356 (2015).
- Tito, A. J., Cheema, S., Jiang, M., Zhang, S. A simple one-step dissection protocol for whole-mount preparation of adult Drosophila brains. J Vis Exp. (118), e55128(2016).
- Okumura, M., Kato, T., Miura, M., Chihara, T. Hierarchical axon targeting of Drosophila olfactory receptor neurons specified by the proneural transcription factors Atonal and Amos. Genes to Cells. 21 (1), 53-64 (2016).
- Schindelin, J., et al. Fiji: an open-source platform for biological-image analysis. Nature Methods. 9 (7), 676-682 (2012).
- Vita, D. J., Meier, C. J., Broadie, K. Neuronal fragile X mental retardation protein activates glial insulin receptor mediated PDF-Tri neuron developmental clearance. Nat Comm. 12 (1), 1160(2021).
- Gugel, Z. V., Maurais, E. G., Hong, E. J. Chronic exposure to odors at naturally occurring concentrations triggers limited plasticity in early stages of Drosophila olfactory processing. eLife. 12, 85443(2023).
Przedruki i uprawnienia
