Wcześniaki (poród < 37. tygodniu) to pilny globalny problem zdrowotny z nieoptymalnymi opcjami profilaktyki i leczenia. Przedstawiamy myszy model wcześnianego porodu wywołanego infekcją bakteryjną pochwy oraz opisujemy, jak analizować wynikającą z tego chorobność i śmiertelność noworodków.
Artykuł metodologiczny
Modelowanie wznoszącej się infekcji pochwy, przedwczesnych porodów i noworodkowej zachorowalności u myszy
W tym artykule
Podsumowanie
Streszczenie
Przedwczesne porody nadal są główną przyczyną śmiertelności i zachorowalności noworodków na całym świecie, z ograniczonymi terapiami profilaktycznymi. Istnieje konieczność klinicznej
istotne i powtarzalne modele zwierzęce do przenoszenia innowacyjnych interwencji
by stać się rzeczywistością. Istnieje wiele myszowych modeli przedwczesnych porodów. Jednak nie powtarzają one ludzkich zachorowań noworodkowych, w tym zmian neuropatologicznych i
urazy płuc, które są charakterystycznymi konsekwencjami infekcji wstępującej i przedwczesnego porodu. Scharakteryzowaliśmy model, który, o ile nam wiadomo, jest jedynym, który naśladuje scenariusz ludzki, w którym te noworodkowe zachorowania występują po wywołaniu przedwczesnego porodu przez żywą bakterię wychodzącą z pochwy. Niniejszy artykuł demonstruje dopochwowe podanie bioluminescencyjnego szczepu Escherichia coli oraz szczegółowo opisuje ocenę neuropatologicznych wyników i uszkodzeń płuc z wykorzystaniem technik immunohistochemii i histologii.
Wprowadzenie
Wcześniaki (PTB; poród < 37. tygodniu) jest głównym czynnikiem przyczyniającym się do śmiertelności noworodków na świecie 1,2. Odpowiadając za 11% wszystkich urodzeń, jest to poważny globalny problem zdrowotny o złożonej etiologii, która jest słabo poznana, co utrudnia przewidywanie i zapobieganie 3,4,5. Noworodkowie po PTB mogą doświadczać niekorzystnych skutków neurorozwojowych, w tym porażenia mózgowego, zaburzeń układu oddechowego, takich jak dysplazja oskrzelowo-monowodła (BPD) oraz zaburzeń przewodu pokarmowego, takich jak martwicze zapalenie jelit (NEC)6,7,8. Dlatego pilnie potrzebne są klinicznie istotne, powtarzalne modele zwierzęce, które pomogą uwzględnić biologiczne szlaki przyczyniające się do PTB i opracować innowacyjne interwencje.
Istnieje wiele możliwych mechanizmów leżących u podstaw spontanicznego PTB, takich jak starzenie dziedziczątne, załamanie tolerancji matki i płodu, stres, skrócona długość szyjki macicy lub uszkodzenie szyjkimacicy 9. Jednak co najmniej 40% spontanicznych PTB jest zgłaszanych jako powiązanych z infekcją mikrobiologiczną10,11. Hipoteza się, że mikroorganizmy przemieszczające się z kanału pochwy przez szyjkę macicy do macicy są powszechnie akceptowane jako powszechna droga zakażenia ze względu na korelację między mikroorganizmami wyizolowanymi z płynu owodniowego a tymi zamieszkującymi mikrobiotę pochwy 12,13,14. Mikroorganizmy często kojarzone z przedwczesnym porodem to gatunki Mycoplasma, Ureaplasma, Fusobacterium i Streptococcus, a większość przypadków to polimikrobiologiczne15,16.
Myszy są często wykorzystywane do modelowania PTB, a najczęstszym podejściem jest podawanie bakteryjnej toksyny lipopolisacharydowej (LPS), która może być podawana drogą wewnątrzmaciczną, wewnątrzotrzewnową lub wewnątrzowodniową, aby wywołać poziom zapalny niezbędny do rozpoczęcia porodu17. Jednak LPS nie modeluje żywej infekcji mikroorganizmów, a co istotne, wyniki noworodków nie mogą być mierzone w tych modelach, ponieważ LPS powoduje śmierć płodu18. W ostatnich latach opracowano modele zwierzęce wznoszącego się zakażenia bakteryjnego pochwy, ale powtórzenie zarówno przedwczesnych porodów, jak i związanych z nimi wyników noworodkowych stanowiło wyzwanie 19,20,21,22,23,24.
Nasza grupa opracowała nowy model wspinającej się infekcji bakteryjnej pochwy, przedwczesnych porodów i noworodkowej zachorowalności, który odzwierciedla patofizjologię ludzkiego PTB25. Tutaj pokazujemy, jak ocenić neuropatologię noworodków i uszkodzenia płuc u młodych narażonych na wznoszącą infekcję pochwy matki z patogennym szczepem Escherichia coli (E. coli), który został powiązany z zapaleniem opon mózgowych u ludzi u ludzi. Model ten daje wyjątkową możliwość zbadania patofizjologii infekcji wstępującej, a także umożliwia ocenę skuteczności interwencji przedwczesnych w leczeniu wyników noworodków.
Protokół
Procedury były przeprowadzane na podstawie licencji UK Home Office (PAD4E6357) zgodnie z Animal Scientific Procedures Act (1986) oraz wytycznymi ARRIVE. Temperatura (19-23 °C), wilgotność (~55%) oraz 12-godzinne cykle światła/ciemności były ściśle kontrolowane. Dziewicze samice myszy C57BL/6 Tyrc-2J (w wieku 6-12 tygodni) były kryte przez noc przez 16-18 godzin. Dowody na obecność koreka kopulacyjnego przypisano jako dzień embrionalny (E) 0,5.
Patogenny E. coli O18:K1 (A192PP)26, szczep A192 przechodzony przez szczura (DSM. Nr 10719)27, został zmodyfikowany, aby zawierać operon luksowy (luxCDABE), pochodzący od symbionta nicieni Photorhabdus Luminescens ATCC29999 (szczep Hb), zawierający kasetę oporną na kanamycynę (Km2)28. Ten szczep jest klasyfikowany jako Grupa Zagrożeń 2 przez Rządowy Komitet Doradczy Rządu Brytyjskiego ds. Patogenów Niebezpiecznych (ACDP). Noszenie odpowiedniego sprzętu ochrony osobistej (PPE) oraz przestrzeganie lokalnych wytycznych podczas obchodzenia się z i utylizacją środków biologicznych.
1. Model myszy z wstępującą infekcją bakteryjną pochwy
- Przygotowanie hodowli E. coli
- Przygotuj bulion Luria-Bertani (LB), rozpuszczając proszek w wodzie destylowanej (dH2O), aby uzyskać roztwór 20% i zastosować do autoklawu. Gdy LB ostygnie do temperatury pokojowej, dodaj 50 μg/mL kanamycyny. Przechowuj w temperaturze 4 °C do tygodnia.
- Przygotuj 20% roztwór żelu pluronowego F127, rozpuszczając ciało stałe w jałowej soli fosforanowej (PBS). Wir mieszać i mieszać w temperaturze 4 °C przez noc.
- Dodaj 10 mL bulionu LB z antybiotykiem do sterylnego uniwersalnego pojemnika o pojemności 30 mL. Wyjmij zamrożony zapas glicerolowy E. coli z magazynowania w temperaturze -80 °C. Używając sterylnej końcówki pipety, zeskrobaj zamrożony bulion glicerolu E. coli, aby lekko pokryć koniec końcówki i wyrzuć końcówkę bezpośrednio do bulionu LB. Zabezpiecz uniwersalny pojemnik parafilmem, oznacz go jako zagrożenie biologiczne i umieść na noc w orbitalnym shakerze (200 obr./min) w temperaturze 37 °C.
- Następnego ranka rozcieńcz hodowlę bakteryjną w stosunku 1:100 (0,1 mL hodowli + 9,9 mL świeżego bulionu LB) i oddaj ją do wstrząsania orbitalnego na 1,5-3 godziny (200 obr./min w 37 °C), regularnie sprawdzając wzrost hodowli poprzez pomiar absorpcji na poziomie 600 nm. Pipeta 100 μL hodowli w duplikacie na przezroczystą, płaską płytkę z 96 dołkami. Zmierz absorpcję na spektrofotometrze z aktywną korekcją długości ścieżki. OD600 między 0,5 a 0,7 oznacza fazę średnioarytmiczną wzrostu.
- Gdy osiągniemy OD600 0,5-0,7 (~108-9 jednostek kolonii [CFU]), usuń 100 μL z hodowli bakteryjnej i rozcieńcz w 900 μL bezpłodnego PBS. Wiruj w 14 000 × g przez 1 minutę, aby przemyć granulat bakteryjny i usunąć bulion LB. Usuń supernatant, ponownie zawiesij granulat bakteryjny w sterylnym PBS i rozcieńcz w stosunku 1:10 000 w sterylnym PBS (do 102-3 CFU).
- Dezynfekuj wszystkie końcówki i pojemniki narażone na działanie bakterii przed utylizacją.
- Znieczulenie
- Na E16.5 znieczulać ciężarne myszy poprzez wdychanie izofluranu (5% na indukcję, 1,5% na utrzymanie tlenu). Przenieś strumień znieczulenia, a następnie zwierzę do stożka nosa, umieszczając samicę w pozycji leżącej. Potwierdź znieczulenie bez odruchu szczypania palców i utrzymuj izofluran na minimalnym wymaganym do zabiegu.
UWAGA: Izofluran to drażniący środek dla oczu i skóry oraz toksyczny ośrodkowy układ nerwowy. Noś odpowiedni sprzęt ochronny. Zawsze używaj systemu zbierania. - Podaj 20 μL E. coli w fazie środkowoarytmicznej (1 × 10²-3 CFU zawieszonych w sterylnym PBS) lub sterylnego PBS (kontrola pojazdu) do pochwy za pomocą sterylnej końcówki pipety 200 μL (Rysunek 1). Używając świeżej sterylnej końcówki pipety o pojemności 200 μL, podaj do pochwy 20 μL żelu pluronowego F127, aby zapobiec wyciekowi bakterii. Używając sterylnej gazy, nałóż proszek chininy na introitus, aby zniechęcić myszy do oczyszczania zawiesiny bakteryjnej. Zanotuj datę i godzinę zabiegu.
UWAGA: CFU zastosowane były oparte na eksperymentach miareczkowych, aby osiągnąć pożądany fenotyp (przedwczesny poród u żywych młodych). CFU można określić, wykonując seryjne rozcieńczenia i powłoki na płytkach agarowych LB29. - Indywidualnie zamykaj zwierzęta w indywidualnie wentylowanych klatkach (IVC) i pozwalaj im dojść do siebie po znieczuleniu, zanim klatka zostanie zwrócona do pomieszczenia tymczasowego; Wyraźnie oznacz klatkę jako zagrożenie biologiczne. Obserwuj zwierzęta, aż ich zachowanie wróci do normy.
UWAGA: Zabieg ten nie powinien trwać dłużej niż 5 minut, a zwierzęta powinny szybko się regenerować (w ciągu 2-5 minut).
- Na E16.5 znieczulać ciężarne myszy poprzez wdychanie izofluranu (5% na indukcję, 1,5% na utrzymanie tlenu). Przenieś strumień znieczulenia, a następnie zwierzę do stożka nosa, umieszczając samicę w pozycji leżącej. Potwierdź znieczulenie bez odruchu szczypania palców i utrzymuj izofluran na minimalnym wymaganym do zabiegu.
- Pomiar wyników ciążowych
- Ustaw monitoring, montując jedną kamerę na zewnątrz każdej klatki, aby monitorować myszy pod kątem oznak porodu i porodu. Zapisz czas do porodu jako liczbę godzin od momentu podania dopochwy E. coli lub PBS (krok 1.2.2) do porodu pierwszego szczeniaka.
- Zapisz liczbę żywych/martwych szczeniąt w momencie porodu i oblicz procent przeżycia na miot. Codziennie obserwuj matę i młode, rejestrując przeżywalność do 7 dni poporodowych i dbając o odbudowę tam. W tym okresie wykonuj inne pomiary, takie jak waga i długość szczeniaka.
UWAGA: Sygnały porodu to zwiększone pielęgnowanie, kręcenie się w kółko oraz rozciąganie i wymachiwanie tylnymi nogami. Ponieważ jest to żywa infekcja bakteryjna, samice z czasem rozwijają objawy (zwykle 24 godziny po leczeniu). Samica powinna wyzdrowieć po infekcji, ale jeśli po porodzie nadal wykazuje objawy infekcji, nie zbudowała gniazda ani nie nakarmiła szczeniąt w ciągu pierwszego dnia, to humanitarnie ofiarować zwierzęta metodami z Listy 1 (takimi jak ekspozycja na COw rosnącym stężeniu i potwierdzenie śmierci przez zwichnięcie szyjki macicy).
- Obrazowanie bioluminescencji
- Po szczepieniu bakteryjnym zrób zdjęcia kobiet po 24 i 48 godzinach, aby śledzić rozprzestrzenianie się infekcji, jak opisano poniżej. Zrób zdjęcia szczeniąt w dniu poporodowym (P)0 do P14 bez potrzeby znieczulenia.
- Po otwarciu oprogramowania do obrazowania kliknij Inicjalizuj i poczekaj, aż aparat osiągnie temperaturę operacyjną (pasek temperatury zmieni się na zielony i "zablokuje"). Zaznacz pole do obrazowania luminescencyjnego i potwierdzi, że filtr wzbudzenia jest ustawiony na Blok, a Filtr Emisyjny na Otwarte.
- Znieczulać dorosłe kobiety poprzez wdychanie izofluranu (5% przy indukcji, 1,5% w utrzymaniu tlenu). Umieść zwierzęta w pozycji leżącej w urządzeniu do obrazowania bioluminescencji (z podgrzewanym stopniem), utrzymując znieczulenie myszy. Wybierz automatyczny czas ekspozycji lub ręcznie ustaw czas naświetlania (zakres ekspozycji: 1 min - 5 min). Po zdjęciach należy odłożyć zwierzęta do klatek, aby mogły dojść do siebie po znieczuleniu, zanim zostaną skierowane do pomieszczenia zatrzymania.
- Aby ilościowo zmierzyć promieniowanie fotonów, wybierz obszary zainteresowania (ROI) na obrazach myszy i zapisz fotony na sekundę na centymetr do kwadratu na steradian (fotony∙(sekunda2)-1∙sr-1).
2. Analizy tkanek płodowych i noworodkowych
- Pobieranie tkanek okołoporodowych
- Na E18.5 poświęcaj tamę przez ekspozycję na rosnące stężenieCO2 i potwierdzenie śmierci przez zwichnięcie szyjki i wykonaj mini laparotomię usunięcia macicy; Następnie wykonaj nacięcie w macicy nożyczkami.
- Jeśli pobierasz płyn owodniowy, wykonaj niewielkie nacięcie w błonach płodowych i zbieraj płyn za pomocą pipety Pasteura lub bezigłowej strzykawki.
- Za pomocą kleszczy jedną ręką trzymam zewnętrzną stronę macicy w miejscu, gdzie przymocowana jest łożysko, a drugą delikatnie odłączamy łożysko od wewnętrznej ściany macicy, rozrywając tkanki i ostrożnie prowadząc płód z błonami i łożyskiem na zewnątrz. Ponownie, z kleszczemi w każdej ręce, delikatnie przytrzymaj łożysko i chwyć oraz wyciągnij błony w miejscu, gdzie łączą się z łożyskiem (upewnij się, że są czyste).
- Teraz, gdy tkanki są rozdzielone, należy zebrać wymagane tkanki ciążowe (np. macica, łożysko, błony płodowe, szyjka macicy i pochwa) i rozcinać tkanki płodowe (np. mózg, płuca i jelita).
- Natychmiast zamroz tkanki na suchym lodzie lub w ciekłym azonie i/lub utrwal tkanki paraformaldehydem (PFA; 4% w PBS).
- Przechowuj tkanki zamrożone na zachwycie w temperaturze -80 °C i utrwalaj je przez 24-48 godzin; następnie przechowuj 30% sacharozy w temperaturze 4 °C.
UWAGA: PFA jest łatwopalne i może powodować podrażnienia oczu, skóry i układu oddycha. Przygotuj roztwór 4% w szafce na zabezpieczenia biologicznego i używaj odpowiedniej ochrony osobistej podczas obchodzenia.
- Pobieranie tkanek poporodowych
- Na P7 znieczulaj młode za pomocą izofluranu (5% do indukcji, 1,5% do utrzymania tlenu).
- Wykonaj wykrwawienie i perfuzję tkanek poprzez nacięcie prawego przedsionka i wstrzyknięcie 10 mL PBS do lewej komory. Odetnij głowę padlinie i usuń mózg oraz płuca za pomocą sterylnych nożyczek i kleszczy. Przetwarzaj i magazynuj tkankę zgodnie z opisaną powyżej.
UWAGA: Tkanki matczyne i płodowe zamrożone na szybko-załamanie mogą być analizowane pod kątem mediatorów zapalnych i innych metod qPCR, ELISA oraz western blot. Protokoły dla tych technik są łatwo dostępne u producentów odczynników lub w innych publikacjach podnumerami 25,30,31.
- Kriosekcja mózgów płodu i noworodka
- Używając ostrza, usuń móżdżek, aby uzyskać płaską powierzchnię i zamrozić tkankę na suchym lodzie. Zamontuj zamrożoną tkankę na uchwytie preparatu przy użyciu preparatu o temperaturze optymalnej (OCT) i pokryj tkankę cienką warstwą OCT. Pozostawić do zamrożenia (1-2 minuty).
- Używając kriostatu ustawionego na -20 °C, upewnij się, że dźwignia jest zablokowana i załaduj uchwyt próbki. Precyzyjnie dostosuj pozycję tkanki i zablokuj ją na miejscu. Przytnij tkankę i zacznij pobierać przekroje tkanki na mikroslajdach z zespolenia ciała modzelowatego, natychmiast zamrażając fragmenty na suchym lodzie. Wytnij 50 sekcji seryjnej o pojemności 40 μm każdej tkanki.
UWAGA: Uważaj na ostry ostrze. - Przechowuj mrożone fragmenty na mikroslajdach w temperaturze -80 °C.
- Immunohistochemia
UWAGA: Poniższy protokół może być użyty do identyfikacji astrocytów (białko kwaśne włókniste glejowe; GFAP), mikroglej (czynnik zapalny przeszczepu 1; IBA-1) oraz neutrofile (członek rodziny G, antygen limfocytów 6; Ly6G). Informacje o przeciwciałach można znaleźć w Tabeli 1.- Wybierz pięć sekcji na mózg, oddalonych od siebie o 400 μm, co pozwoli ocenić różne obszary mózgu na różnych głębokościach. Nawilż zamrożone fragmenty kroplądH2 Oi rozłóż tkankę za pomocą dwóch cienkich pędzelek. Susz chusteczkę pod wentylatorem przez 20-30 minut. Używając hydrofobowego (PAP) długopisu, ostrożnie rysuj wokół tkanki, nie dotykając jej.
- Pierwszego dnia przygotuj 4% formaldehyd (FA), dodając 5,4 mL formaldehydu do 50 mL buforu fosforanowego 0,1 M (PB) dla jednej 50 mL kuwety (pojemność 15 preparatów). Zanurz szkiełka w FA na 5 minut, aby utrwalić kriosekcje, umożliwiając przyczepność do szkiełek i unieruchomić antygeny.
UWAGA: FA jest łatwopalna i może powodować podrażnienia oczu, skóry oraz układu oddechowego. Przygotuj roztwór 4% w szafce na zabezpieczenie biologiczne i używaj odpowiedniej ochrony osobistej podczas obchodzenia. - Przygotuj 0,1% surowicy albuminy bydłej (BSA), dodając 0,4 g BSA do 400 mL 0,1 M PB. Przemyj sekcje 2 razy, zanurzając je w 0,1 M PB, a następnie jedno pranie w BSA (~3 s na pranie). Składuj slajdy
kuwety zawierające BSA do momentu potrzeby. - Przygotuj komory wilgoci, zwilżając bibułędH2 Oi umieszczając je w komorze, odprowadzając nadmiar wody.
- Przygotuj 5% surowicę kozą (50 μL surowicy koziej w 1 ml 0,1 M PB). Ostrożnie wysusz szkiełko wokół sekcji bibuły bibułką, upewniając się, że obramowanie pióra PAP jest nienaruszone, następnie nałóż 50 μL roztworu na każdy fragment tkanki. Inkubuj w komorze wilgotności przez 30 minut.
- Usuń surowicę, stukając preparatem w czystą bibułkę i dodając pierwotne przeciwciało rozcieńczone w BSA (przeciwciała i rozcieńczenia przedstawiono w Tabeli 1). Inkubuj przez noc w temperaturze 4 °C.
- Drugiego dnia inkubuj przeciwciało wtórne w surowicy myszy (patrz Tabela 1) przez 30 minut w temperaturze 37 °C, a następnie dodaj do BSA (rozcieńczenie 1:100) (np. 5 mL BSA + 100 μL surowicy mysiej + 50 μL przeciwciał wtórnych).
- Płucz preparaty 2 razy, zanurzając je (~3 s) w BSA, a potem raz w 0,1 m PB. Trzymaj szkiełka w kuwetach zawierających BSA i susz brzegi wokół każdego fragmentu tkanki. Należy nałożyć 50 μL roztworu przeciwciał wtórnych na przekrój tkanki i inkubować przez 1 godzinę w komorze wilgotności.
- Przygotuj awidynowy kompleks biotynowy (ABC) (rozcieńczenie 0,1%) poprzez dodanie 10 μL A i 10 μL B w 1 mL 0,1 M PB. Zanurz (~3 s) slajdy 2 razy w BSA i raz w 0,1 M PB, a następnie umieść je w kuwecie zawierającej 0,1 M PB. Susz szkiełka po wplątaniu, nakładaj 50 μL roztworu ABC na jedno szkiełko i inkubuj przez 1 godzinę w komorze wilgotności.
- Przygotuj roztwór diaminobenzydyny (DAB). Waż 25 mg DAB na kuwetę, rozpuszczaj w 50 mL 10 mM PB i filtruj papierem filtracyjnym nr 4.
UWAGA: DAB stanowi zagrożenie dla zdrowia z możliwą mutagennością komórek rozrodczych i rakotwórczością. Noś odpowiednie środki ochrony osobistej i bezpiecznie się jej pozbyć. - Umyj szkiełka 3 x 3 s 10 mM masła masowego i umieść je w kuwetach zawierających 10 mM masa. Dodaj nadtlenek wodoru (H2, O2) do roztworu DAB, a następnie natychmiast wlanie roztworu do świeżych cuwet (16,7 μL H2O2 na kuwetę). Przenieś szkiełka do kiwety DAB i zostawić na ~3 minuty (maksymalnie 5 minut), stale sprawdzając pod mikroskopem intensywność zabarwienia.
UWAGA: H2O2 może podrażniać oczy, skórę i gardło. Noś odpowiedni sprzęt ochronny. - Płucz szkiełki (3 s) raz na 10 mM PB i 2x na dH2O i pozwól szkiełkom wyschnąć. Zanurz suche szkiełka 3 razy w ksylenie. Nałóż kroplę medium montażowego DPX na pokrywkę i nałóż ją na fragment tkanki, uważając, by nie powstawać pęcherzyków powietrza.
UWAGA: Ksylen i DPX są łatwopalne i mogą powodować podrażnienia oczu, skóry i układu oddechowego. Trzymaj się w szafie na zabezpieczenia biologicznego i zawsze zakładaj rękawiczki podczas obchodzenia.
- Barwienie Nissl
- Pierwszego dnia nawilż i rozprowadź tkankęwdH2O. Przygotuj 4% aromatu aromatu, dodając 5,4 ml aromatu masowego w 50 ml 0,1 m kwasu masowego i natychmiast go wykorzystaj. Inkubuj preparaty w 4% FA przez noc.
- Drugiego dnia przesuń preparaty z 4% FA na 70% etanolu (EtOH) i inkubuj przez noc.
- Przygotuj barwę Nissl, rozpuszczając 4 g Cresyl Violet w 40 mL 100% EtOH w zamkniętej stożkowej tubce o pojemności 50 mL. Odwróć przez 15 minut, dodaj roztwór do 360 mL ciepłejdH2Oi mieszaj na talerzu do mieszania przez 20 minut. Przefiltruj roztwór przed użyciem.
- Trzeciego dnia postępuj zgodnie z procedurą barwienia opisaną w Tabeli 2 i przesuwaj przekroje tkanek DPX.
- Terminalne deoksynukleotydylowe transferaza dUTP nick end labeling (TUNEL)
- Nawilż i rozłóż tkankę wdH2 O, a następnie inkubuj szkiełka w 4% FA przez 5 minut. Przemieszczę szkiełki do roztworuH2,O2 i metanolu (CH3OH) (1:10) i inkubuj przez 15 minut. Płucz szkiełki na 2 x 3 sekundy w 0,1 M PB i umieść je w kuwetach zawierających 0,1 M PB.
- Przygotuj roztwór TUNEL na lodzie zgodnie z instrukcjami producenta. Dodaj roztwór do szkiełków (50 μL na przekrój tkanki) i inkubuj w komorze wilgotności w temperaturze 37 °C przez 2 godziny.
- Po 1 godzinie inkubacji przygotuj roztwór ABC zgodnie z krokiem 2.4.9 i inkubuj w temperaturze pokojowej.
- Po 2 godzinach przenieś preparaty do roztworu TUNEL STOP (300 mM NaCl, 30 mM cytrynianu sodu) na 10 minut i zanurz je do przepłukania 3 x 3 sekundy w roztworze PBS o pojemności 10 mM wody. Inkubuj preparaty w roztworze ABC przez 1 godzinę.
- Przygotuj siarczan kobaltu (1,55 g bezwodnego CoSO4 w 100 mLdH2O) oraz heksahydrat chlorku niklu (2,38 g NiCl2,6H 2O w 100 mLdH2O). Przygotuj roztwór DAB Co-Ni (10 mM PB + 25 mg DAB + 1 mL/100 mL Co + 1 mL/100 mL Ni). Przefiltruj roztwór pod próżnią i trzymaj go w ciemności. Bezpośrednio przed wlaniem roztworu DAB do cuwette należy dodać 16,7 μL H2O2 na 50 mL cuwette.
- Po 1 godzinie przenieś szkiełki do kuwet DAB i inkubuj przez ~3 minuty w temperaturze pokojowej, stale sprawdzając intensywność zabarwienia. Zatrzymaj reakcję, przenosząc szkiełki do kuwett zawierających 10 mM PB. Przemyj je zanurzając 2 x 3 s w dH2O i pozwól wyschnąć fragmentom tkanki przed nałożeniem DPX.
- Barwienie hematoksyliny i eozyny (H&E)
- Nawilż i rozłóż tkankę wdH200oraz pozwól wyschnąć na powietrzu.
- Zanurz szkiełka w hematoksylinie na 2 minuty.
UWAGA: Hematoksylina może powodować podrażnienia oczu i skóry. Noś odpowiedni sprzęt ochronny. - Płucz szkiełka w bieżącej wodzie z kranu przez 5 minut, odkoloruj w alkoholu kwaśnym przez 1 sekundę, a następnie płucz wodą z kranu.
- Kontrastuj w 0,5% eozyny (1,5 g rozpuszczonego w 300 ml 95% EtOH) przez 30 sekund.
UWAGA: Eozyna jest łatwopalna i może powodować podrażnienia oczu oraz skóry. Przygotuj roztwory w szafce do zabezpieczeń biologicznych i noś odpowiednie środki ochrony osobistej. - Odwodnić fragmenty tkanek w stopniu EtOH: 50%, 70%, 95% i na końcu 100%, każdy przez 3 minuty. Przenieś szkiełki do ksylenu na 2 x 5 minut. Pokrywka z DPX.
3. Oceny histologiczne i immunohistochemiczne dla neuropatologii i urazów płuc
UWAGA: Oceny można przeprowadzić w następujących obszarach: korze, korze pireowatej, torebce zewnętrznej, prążkowiu, hipokampie i wzgórzu (Rysunek 2). W przypadku mózgów E18.5 można również uwzględnić korpus modzelowaty, ponieważ różnicowanie komórek nie jest jeszcze zakończone, a komórki glejowe nie przeniosły się do wszystkich obszarów mózgu. Oceniający powinien być ślepy na grupy leczenia.
- Śmierć komórek TUNEL+
- Za pomocą konwencjonalnego mikroskopu policz komórki pozytywne na TUNEL barwienie obustronnie przy 20-krotnym powiększeniu we wszystkich obszarach mózgu (Rysunek 2).
- Oceń trzy losowo wybrane pola optyczne na każdy obszar mózgu i oblicz średnią liczbę komórek w każdym regionie.
- Ocena morfologii Nissl
- Uchwyć zdjęcia całej tkanki za pomocą kolorowego aparatu z powiększeniem 1x i zapisać go jako plik TIFF lub inny pożądany format. Zaimportuj obrazy do ImageJ do dalszej analizy.
- Określ obszary mózgu zainteresowania (np. korę mózgową i hipokamp) i zmierz za pomocą narzędzia ręcznego (Rysunek 2).
- Aby uzyskać pomiar tkanki, należy zastosować wzór: (mm2 × 400 μm) = objętość × 100 (poprawiona32).
- Indeks rozgałęzienia mikrogleju
- Używając mikroskopu z siatką 0,049 mm x 0,049 mm, przy 40-krotnym powiększeniu licz liczbę ciał komórek IBA-1+ w siatce (C) oraz średnią liczbę gałęzi przecinających linie siatki (B). Wykonaj to w trzech losowo wybranych polach (patrz Rysunek 3) dla każdego regionu mózgu pokazanego na Rysunku 2.
- Do obliczenia wskaźnika rozgałęzienia mikrogleju użyj wzoru (B2/C).
- Optyczna jasność dla intensywności barwienia GFAP
- Korzystając z cytowanego oprogramowania (Tabela materiałów) oraz kolorowej kamery z powiększeniem 40x, uchwyć trzy losowo wybrane pola na obszar mózgu (Rysunek 2). Naciśnij Ctrl+H , aby uzyskać histogram pokazujący średnią i odchylenie standardowe (SD). Zapisz wartości średniej i SD w arkuszu kalkulacyjnym. Wykonaj obraz kontrolny tylko otaczającego szkła (czyli bez tkanki) i zapisz wartości średniej i SD jak wcześniej
- Użyj następującego wzoru do obliczenia wartości optycznej jasności (OLV) w arkuszu kalkulacyjnym:
OLV = (średnia szkła − odchylenie standardowe szkła) − (średnia [średnia na obraz − odchylenie standardowe na obraz])
UWAGA: Na przykład:
Otaczające szkło
Średnia ± SD = 143,5 ± 8,56
Obszar mózgu (np. kora)
1. 136,7 ± 10,6
2. 140.6 ± 10.4
3. 137.4 ± 11.3
OLV = (143,5 - 8,56) - (średnia [136,7 - 10,6], [140,6 - 10,4], [137,4 - 11,3])
OLV = 134,94 - 127,47
OLV = 7,47 - Uśrednij każdą wartość na region, na zwierzę, a następnie na każdą grupę eksperymentalną.
- Oceny morfologii płuc
- Uchwyćcie fragmenty H&E z powiększeniem 40x (trzy pola optyczne na slajd, pomiar przestrzeni powietrznych na pole), zapisz jako TIFF (lub równoważny) i importuj obrazy do ImageJ. Losowo wybierz pola reprezentujące całą sekcję płucną.
- Używając narzędzia odręcznego, wyznacz przestrzeń powietrzną i zapisz pomiar (Rysunek 4A). Znajdź średnią trzech przestrzeni powietrznych na pole, następnie pomiędzy trzema polami na sekcję, a ostatecznie między trzema sekcjami na próbkę.
- Napływ neutrofili do płuc
- Wykonaj zdjęcia próbne za pomocą kolorowej kamery z powiększeniem 40x, trzy razy na przekrój tkanki płucnej, a oryginalny plik zapisz jako plik TIFF lub inny pożądany format. Zaimportuj obrazy do ImageJ i ręcznie policzysz poszczególne neutrofile w trzech polach tego samego płuca. Oblicz średnią liczbę neutrofilów na płuco.
Wyniki
Protokół ten przedstawia myszy model wznoszącej się infekcji pochwy oraz opisuje metody oceny neuropatologii noworodków oraz wyników układu oddechowego. Zabieg wywołania infekcji pochwy powinien być szybki (w ciągu 5 minut), a myszy powinny wrócić do zdrowia w ciągu kilku minut. Dams rozwinął objawy infekcji po około 24 godziniei 25. Obejmuje to powolne ruchy, piloerekcję i pochyloną postawę. Przybliżony średni czas porodu u zakażonych myszy wynosił 40,3 godziny po podaniu E. coli (średnia w grupie kontrolnej PBS 52,7 godzin), w porównaniu do terminu dostawy grupy kontrolnej PBS w E19,531. Odsetek żywo urodzonych młodych w miocie został zmniejszony (z 100% do 71,4%) z powodu infekcji, podobnie jak ich przeżywalność przez 7 dni po urodzeniu (Rysunek 5)25. Gdy stosuje się bioluminescencyjne bakterie, obrazowanie może śledzić rozprzestrzenianie się infekcji u samic i młodych. Bakterie zaobserwowano w macicy, błonach płodowych, łożysku oraz u niektórych płodów w ciągu 18 godzin od podania (Rysunek 6), a mediatory zapalne, mierzone za pomocą qPCR i ELISA, zostały zwiększone w tych tkankach, a także w tkankach okołoporodowych, takich jak mózg, płuca i jelita 25,29,31.
Przeprowadzono szereg ocen neuropatologicznych, takich jak morfologia, śmierć komórek, aktywacja mikrogleju i aktywacja astrocytów, na płodach i noworodkach z wykorzystaniem histologii i immunohistochemii 25,31,33. Można również ocenić tkankę płucną (Rysunek 4 i Rysunek 7). Pozytywne barwienie dla TUNEL sugeruje degradację DNA, późniejszy etap śmierci komórki34. Obserwujemy znaczący wzrost barwienia TUNEL w korze, korze piryformatej, torebce zewnętrznej, hipokampie oraz wzgórzu w mózgach młodych narażonych na zakażenie E. coli w czasie ciąży (rysunek 8A,B)31. Mikroglej znakowany IBA-1, czyli rezydentne komórki odpornościowe mózgu, można sklasyfikować według stanu morfologicznego, gdzie rozgałęzienie sugeruje fenotyp spoczynkowy, podczas gdy aktywowane i fagocytowe komórki stają się ameboidalne lub zaokrąglone w kształcie35. Dlatego zamiast ilościowo określać komórki mikroglejowe, przedstawiamy strategię oceny ich fenotypu jako wskaźnika ich stanu. Obserwujemy wzrost rozgałęzienia IBA1+ w korze zewnętrznej i pręciku E. coli w porównaniu do grupy PBS (rysunek 8C,D)31. GFAP-znakowane reaktywne astrocyty, które mogą być powiązane ze stanem zapalnym i uszkodzeniami neurologicznymi, zostały zwiększone w korze piryformnej oraz w torebce zewnętrznej u młodych E. coli (Rysunek 8E,F)31,36,37. Barwienie Nissl pozwala ocenić grube zmiany morfologiczne struktury mózgu; Fiolet kresylowy jest standardowym barwieniem histologicznym dla neuronów i oznaczającym zarówno dodatkowe granulki RNA, jak i jądra komórkowe. W grupie E. coli obserwujemy zmniejszoną grubość kory (Rysunek 9)31. Podobnie H&E, które odpowiednio barwią jądro i cytoplazmę komórek, umożliwiają ocenę morfologii płuc (Rysunek 4)31. Widzimy zwiększone przestrzenie powietrzne u myszy narażonych na E. coli, a także wzrost liczby neutrofilów Ly6G+, co wskazuje na stan zapalny (Rysunek 7)31.
W analizach danych czas do dostarczenia analizowano za pomocą niesparowanego testu t, jeśli dane były normalnie rozłożone. Dla danych procentowych dla żywo urodzonych młodych, najpierw wymagana była transformacja pierwiastka kwadratowego łukowatego, aby przekształcić rozkład proporcji (ograniczony zakresem od 0 do 1) w rozkład normalny, co jest jednym z wymagań do przeprowadzenia testu t-test. Przeżywalność szczeniąt została przeanalizowana za pomocą testu rangi logaritmicznego (Mantel-Cox). W histologii i immunohistochemii stosowano albo test Mann-Whitney U, albo wiele testów t z korekcją Welsh, w zależności od rodzaju danych i tego, czy były one rozkładane prawidłowo. Aby uzyskać wystarczającą moc statystyczną, zalecamy stosowanie co najmniej pięciu tam na grupę oczyszczającą.
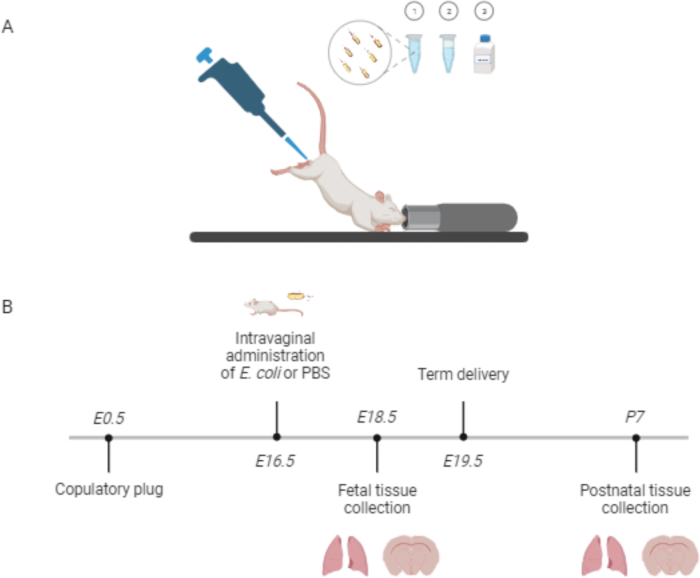
Rysunek 1: Podawanie Escherichia coli dopochwowe i harmonogram leczenia wywołającego przedwczesny poród oraz zachorowalność noworodkową u myszy. (A) E. coli [1], a następnie 20% żel pluronowy F127 [2], podaje się do pochwy myszy za pomocą sterylnej końcówki pipety o pojemności 200 μL. Do introitusa dodaje się proszek chininy [3]. (B) E. coli jest dostarczana do pochwy w dniu zarodku 16.5. Tkanki, takie jak płuca i mózg, mogą być pobierane w okresie płodowym lub noworodkowym. Skrót: EN = dzień embrionalny N; PN = dzień poporodowy N; PBS = sól fizjologiczna buforowana fosforanami. Proszę kliknąć tutaj, aby zobaczyć większą wersję tej figurki.
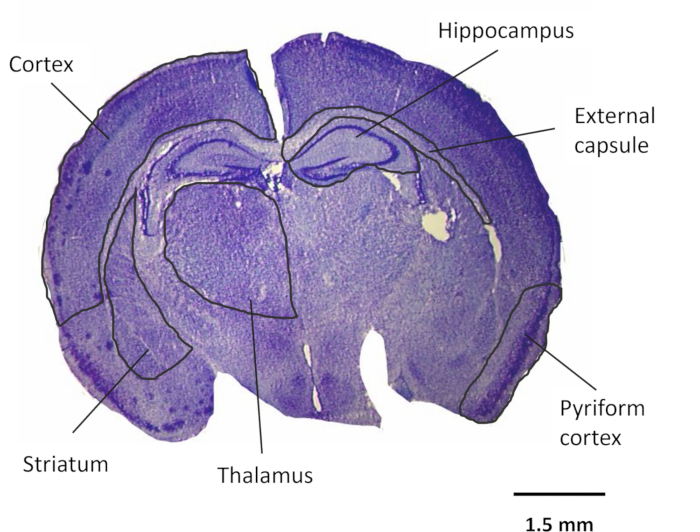
Rysunek 2: Obszary mózgu oceniane pod kątem neuropatologii. Przykład barwienia Nissl mózgu noworodka i obszarów, które można ocenić pod kątem neuropatologii. Wszystkie obszary mózgu można ocenić pod kątem TUNEL, IBA-1 i GFAP. Zdecydowaliśmy się ocenić morfologię kory i hipokampa za pomocą Nissl. Powiększenie: 1x. Pasek skalowy = 1,5 mm. Skróty: TUNEL = końcowe oznakowanie końcówek deoksynukleotydylazy transferazy dUTP; IBA-1 = czynnik zapalny przeszczepu 1; GFAP = białko kwaśne włókniste w kształcie włókna glejowego. Proszę kliknąć tutaj, aby zobaczyć większą wersję tej figurki.
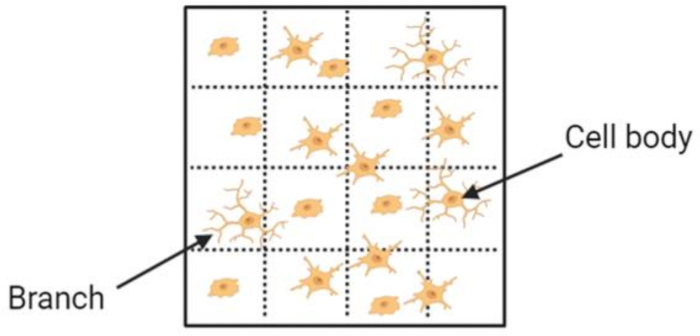
Rysunek 3: Pozytywna ocena IBA-1 barwienia i wskaźnika rozgałęzienia. Aby określić współczynnik ramifikacji komórek IBA-1+ , policz liczbę ciał komórek w siatce oraz średnią liczbę rozgałęzień przecinających poziome i pionowe linie siatki. Skrót: IBA-1 = czynnik zapalny przeszczepu allagraftu 1. Proszę kliknąć tutaj, aby zobaczyć większą wersję tej figurki.
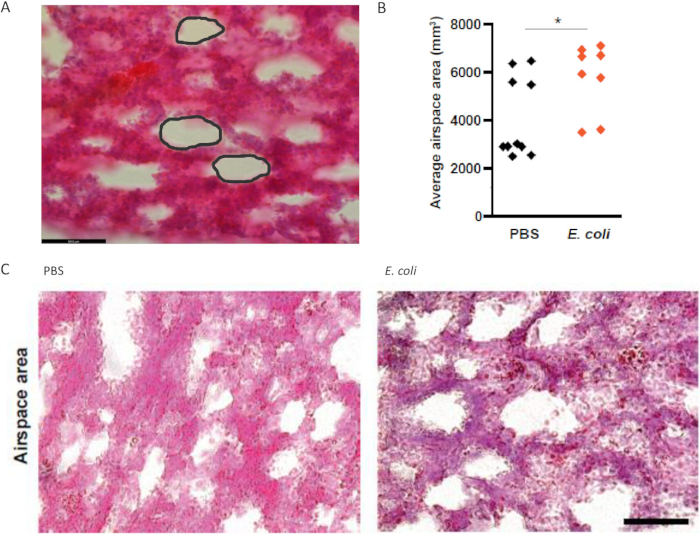
Rysunek 4: Pomiary przestrzeni powietrznej w płucach młodych (barwienie H&E). (A) Wyznacz przestrzeń powietrzną i zmierz za pomocą narzędzia odręcznego na Obrazku J. (B) Średnia powierzchnia przestrzeni powietrznej jest zwiększona u młodych narażonych na E. coli w porównaniu do PBS. (C) Reprezentatywne obrazy H&E płuc szczeniąt wystawionych na PBS i E. coli in utero. Powiększenie: 40x. Pasek skali = 59,5 μm. Skróty: H = hematoksylina; E = eosyna. n = 2 z 4 miotów. *p < 0,05. Ta figura została zaadaptowana z Boyle i in.31. Proszę kliknąć tutaj, aby zobaczyć większą wersję tej figurki.
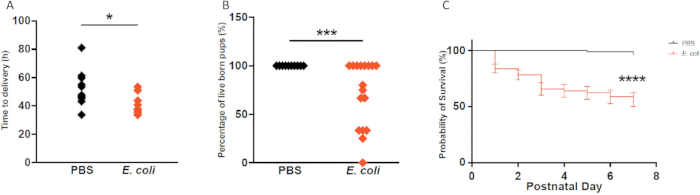
Rysunek 5: Wpływ dopochwowe E. coli na czas porodu i przeżywalność szczeniąt. (A) Czas do porodu jest skrócony w obecności E. coli. (B) Odsetek żywych młodych jest znacząco zmniejszony, a (C) przeżywalność młodych u młodych narażonych na E. coli jest zmniejszona. Czas do porodu: n = 8-10 miotów na grupę; żywo urodzone szczenięta: n = 10-17 miotów na grupę; Przeżywalność młodych: n = 10-12 miotów na grupę. *p < 0,05, ***p < 0,001. Ta figura została zaadaptowana z Boyle i in.31. Proszę kliknąć tutaj, aby zobaczyć większą wersję tej figurki.
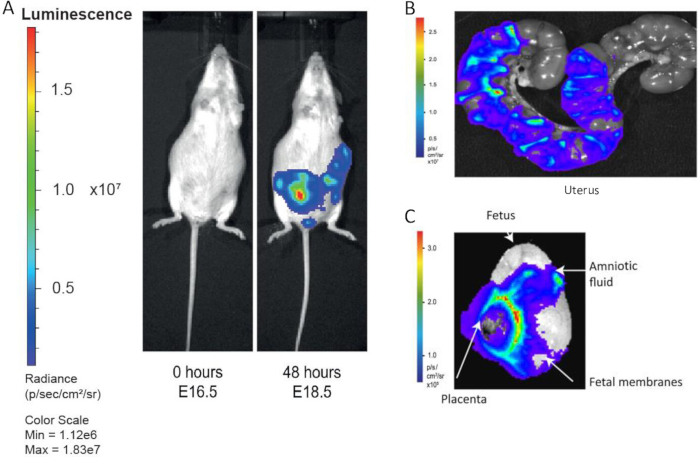
Rysunek 6: Obrazowanie bioluminescencji do monitorowania rozprzestrzeniania się E. coli . (A) Bioluminescencyjna E. coli wznosi się z pochwy do rogów macicy w ciągu 48 godzin. (B) Rozcięte rogi macicy wykazują zakażenie E. coli w ciągu 18 godzin, (C) podobnie jak łożysko i błony płodowe. Ta figurka została zaadaptowana z Suff i in.25 oraz Boyle i in.31. Proszę kliknąć tutaj, aby zobaczyć większą wersję tej figurki.
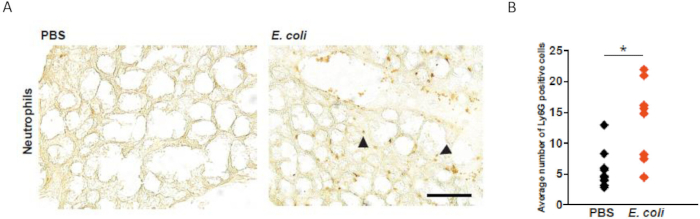
Rysunek 7: Barwienie Ly6G na neutrofile w płucach płodu. (A) Barwienie dla Ly6G (pozytywnie: groty strzał), w celu oceny napływu neutrofili, u płodów narażonych na PBS i E. coli . (B) Średnia liczba komórek Ly6G+ jest istotnie zwiększona u płodów E. coli . Powiększenie: 40x. Pasek skali = 59,5 μm. n = 10 z 5 miotów na grupę. *p < 0,05. Skróty: Ly6G = Złożony locus antygenu limfocytu 6 G6D. Ta figura została zaadaptowana z Boyle i in.31. Proszę kliknąć tutaj, aby zobaczyć większą wersję tej figurki.
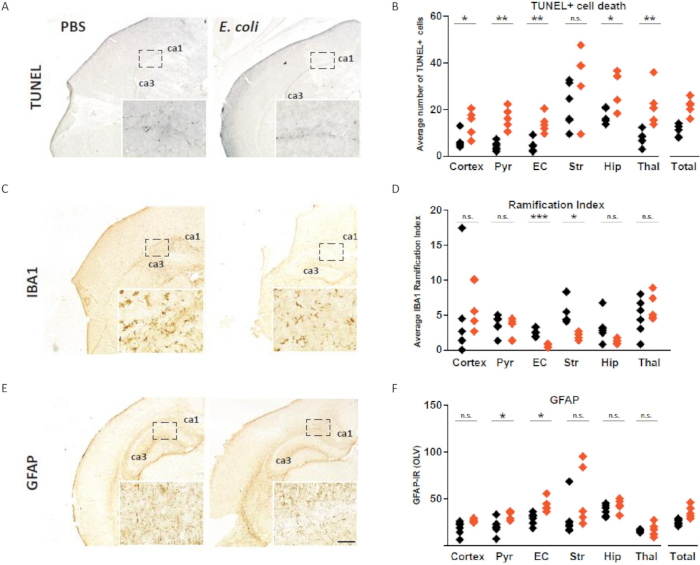
Rysunek 8: Przykłady barwienia TUNEL, IBA1 i GFAP. (A) Barwienie TUNEL w celu śmierci komórek w mózgu młodego po porodzie wystawionym na PBS lub E. coli. (B) Średnia liczba komórek TUNEL+ wzrasta w korze, korze pirolistej, torebce zewnętrznej, hipokampie i wzgórzu. (C) Immunohistochemia IBA1 dla mikrogleju w grupach PBS i E. coli . (D) Wskaźnik ramienia, jako miara aktywacji mikrogleju, jest zwiększony w zewnętrznej torebce i prążku u młodych E. coli . (E) Barwienie GFAP dla astrocytów, (F), która jest zwiększona w korze pieriformowatej i zewnętrznej torebce u młodych E. coli . Pasek skali = 59,5 μm. Skróty: GFAP = kwaśne białko włókniste glejowe; TUNEL = końcowe oznakowanie deoksynukleotydylowej transferazy dUTP na końcu; Pyr = kora pireowata; EC = kapsuła zewnętrzna; Str = prążkowie; Biodro = hipokamp; thal = wzgórze; łącznie = wszystkie regiony; CA = cornu ammonis; OLV = wartości jasności optycznej. Analizy immunohistochemii: n = 5-7 z 5 miotów w grupie. *p < 0,05, **p < 0,01, ***p < 0,001, n.s. - nieistotne. Ta figura została zaadaptowana z Boyle i in.31. Proszę kliknąć tutaj, aby zobaczyć większą wersję tej figurki.
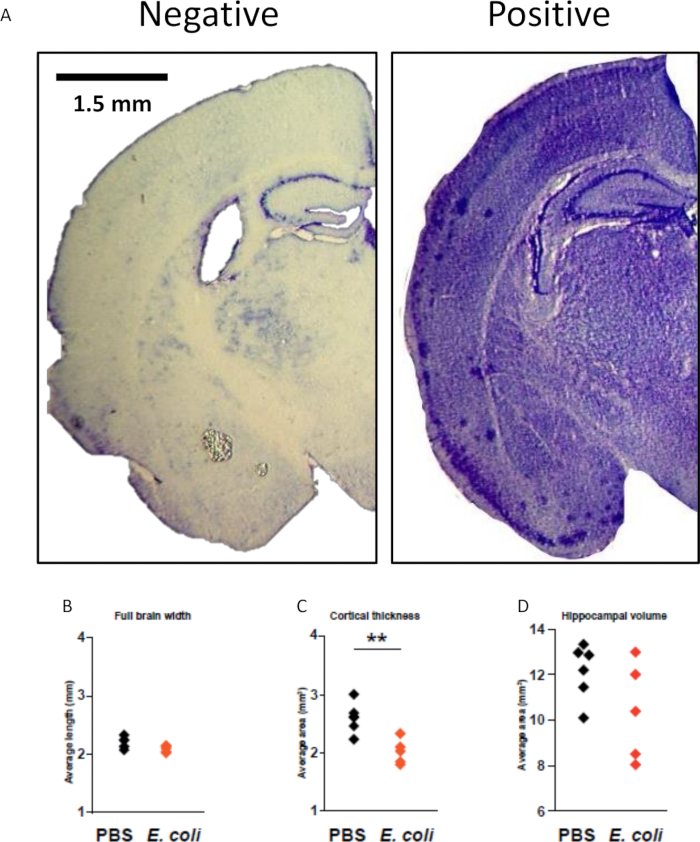
Rysunek 9: Przykład pozytywnego i negatywnego barwienia i oceny morfologii Nissl. (A) Barwienie Nissl mózgu młodego potomka poporodowego w celu oceny struktury tkanek i morfologii. (B) Nie wpływa to na szerokość mózgu, ale (C) grubość kory mózgowej zmniejsza się u młodych narażonych na E. coli. (D) Nie ma różnicy w objętości hipokampa. Powiększenie: 1x. Pasek skali = 1,5 mm. n = 5-7 z 5 miotów w grupie. **p < 0,01. Ta figura została zaadaptowana z Boyle i in.31. Proszę kliknąć tutaj, aby zobaczyć większą wersję tej figurki.
| Przeciwciała pierwotne | Rozcieńczenie | Przeciwciała/rozcieńczenie wtórne | Rozcieńczenie |
| Króliczy anty-GFAP | 1:6000 | Antykrólikowy anty-koziczy | 1:100 |
| Króliczy anty-IBA1 | 1:1000 | Antyszczur z kozami | 1:100 |
| Mysz anty-Ly6G | 1:1000 | Antykrólikowy anty-koziczy | 1:100 |
Tabela 1: Przeciwciała do immunohistochemii.
| Krok | Odczynnik | Czas (min) |
| 1 | Bejca NISSL | 10 |
| 2 | Świeża woda destylowana | 2 |
| 3 | Świeża woda destylowana | 2 |
| 4 | 70% EtOH | 2 |
| 5 | 90% EtOH | 2 |
| 6 | 96% EtOH | 2 |
| 7 | 96% EtOH z 3-5 kroplami kwasu octowego lodowcowego | 2-5 (SPRAWDZAM CIĄGLE) |
| 8 | 100% EtOH | 2 |
| 9 | Izopropanol | 2 |
| 10 | Ksylen | 2 |
| 11 | Ksylen | 2 |
| 12 | Ksylen | 2 |
Tabela 2: Procedura Nissl.
Dyskusja
Tutaj opisujemy indukcję nowego modelu mysiego przedwczesnego porodu i noworodkowej zachorowalności poprzez bakteryjną ascensję pochwy. Wybraliśmy E. coli K1, ponieważ jest to częsta przyczyna sepsy noworodkowej i zapalenia opon mózgowych, a następnie jest pionowo przenoszona z matki na płód 38,39,40. Kluczem do sukcesu tego modelu jest zastosowanie żelu termosensulnego plurona, który zapobiega wyciekowi zawiesiny bakteryjnej z pochwy, umożliwiając rozprzestrzenianie się infekcji do macicy. Ponieważ ten model wykorzystuje żywe bakterie pochodzące z izolatu sepsy, kluczowe jest uważne monitorowanie tam. Jeśli zwierzęta odmawiają ruchu lub jedzenia lub nie dbają o swoje szczenięta (np. zaniedbują gniazdowanie i karmienie), muszą być natychmiast humanitarnie złożone w ofierze.
Przeważnie objawy związane z infekcją ustępują w ciągu 24 godzin od porodu. Ważne jest również, aby pamiętać, że różne serotypy E. coli i innych szczepów bakterii mają różny wpływ na długość ciąży, zakres infekcji/stanu zapalnego oraz wyniki neonatologiczne. Sugerujemy przeprowadzenie wstępnych eksperymentów dawkowych z różnymi CFU przy użyciu nowych serotypów/szczepów bakterii, aby określić minimalne stężenie potrzebne dla pożądanego fenotypu oraz ustalić ścisłe, humanitarne punkty końcowe, aby zapobiec cierpieniu. Należy zachować szczególną ostrożność przy dostarczaniu żywego patogenu; pozwól literaturze wskazać właściwe wykorzystanie tych organizmów przy modelowaniu infekcji wstępnej.
Szczep myszy jest również istotny, ponieważ ich układ odpornościowy różni się. Na przykład pomiar czasu i CFU użyte w tym modelu nie dają takich samych rezultatów u myszy C57BL/6. Wybraliśmy myszy C57BL/6 Tyrc-2J , ponieważ eksperymenty z przebiegiem czasu wykazały istotnie więcej infekcji w tym szczepie w porównaniu do CD-1, BALB/c i C57BL/6. Ponadto istnieją dowody na to, że sierść tłumi sygnały bioluminescencyjne, co jest użytecznym mierzalnym wynikiem w tym modelu29. Optymalny dzień ciążowy do podawania bakterii może się również różnić w zależności od patogenu i szczepu myszy. W przedklinicznych modelach PTB występuje ogromna heterogeniczność; dlatego ważne jest, aby uwzględnić te zmienne, aby uzyskać powtarzalne wyniki17.
Kolejnym czynnikiem jest długość ekspozycji zwierząt na znieczulenie. Ponieważ nadmierna ekspozycja w ciąży wiąże się z neurotoksycznością u szczeniąt, kluczowe jest ograniczenie czasu spędzonego pod narkozą do minimum (np. maksymalnie 5 minut) oraz zawsze uwzględnianie kontroli wystawionych na działanie tego samego środowiska i poddanych substancji pojazdowej 41,42,43. Dodatkowe grupy kontrolne przydatne dla tego modelu to osoby nieleczone, podawane dopochwowe wyłącznie żel pluronowy oraz wyłącznie znieczulenie.
Immunohistochemia jest szeroko wykorzystywana jako narzędzie eksperymentalne do identyfikacji różnych białek i komórek, a także może służyć do charakteryzowania struktury i łączności w mózgu. Tutaj opisujemy, jak analizować kluczowe komórki ośrodkowego układu nerwowego związane z neurozapaleniem i uszkodzeniami neurologicznymi. Przedstawiamy także metody oceny apoptozy komórkowej i barwienia histologicznego, które są przydatne do pomiaru morfologii mózgu i płuc. Ważne kwestie, które mają zapewnić sukces tych protokołów, zaczynają się od ostrożnego używania pióra PAP; jeśli pióro PAP dotknie tkanki, barwienie nie zadziała, ale jeśli parametr jest zbyt szeroki, przekroje mogą wyschnąć przez noc. Podobnie komora wilgotności musi być utrzymywać wilgotną, aby nie wysuszać sekcji.
Podczas barwienia Nissl najbardziej krytyczny jest krok kwasu octowego lodowcowego; Sekcje trzeba regularnie sprawdzać. Gdy główne struktury mózgu stają się widoczne, sekcje należy natychmiast przenieść do EtOH, aby zatrzymać reakcję. Zdecydowaliśmy się ocenić korę i hipokamp, ponieważ u ludzkich wcześniaków i innych modeli zwierzęcych zgłaszano zmniejszenie grubości kory i zmniejszonej objętości hipokampa, ale inne regiony można ocenić pod kątem zmian morfologicznych 44,45,46,47. Należy również zwrócić szczególną uwagę na rozwój barwienia DAB. Powinno to być zamierzone w czasie i utrzymywane w regularnym czasie między eksperymentami.
Analiza danych jest najczęstszym ograniczeniem immunohistochemii ze względu na trudności w ilościowym określeniu wyników, które często są uznawane za subiektywne. Chociaż analiza GFAP przeprowadza się za pomocą komputerowych pomiarów optycznej jasności, niespójne barwienia mogą wpływać na te pomiary. Ponadto oceny morfologii mózgu i płuc obejmują ręczne, odręczne pomiary, oparte na ocenie obserwatora. Aby uniknąć niespójności, powtarzamy te oceny dwukrotnie i w krótkim czasie. Aby jeszcze bardziej ograniczyć wszelkie uprzedzenia, ważne jest, aby oceniający był ślepy na grupy leczenia. Niska immunoreaktywność może być również czynnikiem ograniczającym. Brak sygnału może sugerować, że antygen jest nieobecny lub może być spowodowany awarią protokołu. Aby temu zaradzić, włączamy próbkę tkanki, która może działać jako dodatnia kontrola, gdzie to możliwe, oraz powtarzamy procedurę barwienia przy zaobserwowaniu niskiego lub brakującego sygnału, aby upewnić się, że nie był to wynik błędu eksperymentalnego.
Oprócz opisanych protokołów, analizy immunologiczne tkanek matczynej, płodowej i noworodkowej mogą być wykonywane za pomocą qPCR i ELISA. Zaobserwowaliśmy podwyższone poziomy mRNA i białka zapalnych u zwierząt narażonych nainfekcję 25,31,48. Hipotezujemy, że neuropatologia noworodkowa, którą wykazujemy histologicznie, może być wynikiem zapalenia mózgu, płuc i jelit płodu25,31. Inne badania neuropatologiczne, które przeprowadzaliśmy, obejmują białko zasadowe mieliny (MBP) do badania mielinizacji oraz NeuN do barwienia jąder neuronalnych25,31. Ponadto można ocenić inne markery neutrofilów i mikroglej, aby lepiej zrozumieć fenotyp i zachowanie tych komórek po ekspozycji na zakażenie w łonie macicy49,50. Dodatkowo można przeprowadzić testy behawioralne, aby określić długoterminowy wpływ na potomstwo.
Ten model nie jest pozbawiony ograniczeń. Na przykład obserwujemy zróżnicowanie patologii zarówno pomiędzy, jak i wewnątrz miotów. Może to być efekt użycia żywej bakterii, gdzie nie da się kontrolować rozprzestrzeniania się infekcji. W konsekwencji wzór i zasięg zakażenia wchodzącego do rogów macicy są zróżnicowane i często asymetryczne. Kolejnym ograniczeniem jest patogenność E. coli, która czasem może powodować zbyt duże chorość matek w opiece nad młodymi. Myszy nie są też najlepszym modelem urazu płuc, ponieważ alveologeneza zachodzi po urodzeniu, a nie prenatalis, jak u ludzi51. Nie napompowaliśmy tkanek płuc podczas pobierania próbek, co mogło wpłynąć na nasze wyniki. Jednak nasze wyniki są zgodne ze zmianami obserwowanymi w noworodkowych modelach BPD 52,53.
Model ten powtarza postulowaną ludzką kondycję, w której infekcja bakteryjna rozprzestrzenia się z pochwy do macicy, stymulując wczesny poród. Po naszej pierwszej publikacji tego modelu inni powielali lub stworzyli podobne modele, co dodatkowo podkreśla powtarzalność i znaczenie tej metodologii19,54. Co istotne, model ten wykazuje typowe zachorowania doświadczane przez przedwczesne noworodki, podczas gdy inne modele zawiodły. Może to wynikać z zastosowania szczepu bakteryjnego, który jest szczególnie związany z sepsą noworodkową. LPS, najczęściej stosowany do wywoływania przedwczesnego porodu w modelach zwierzęcych, jest śmiertelny dla młodych, więc wyników neonatologicznych nie można zmierzyć18. Inne modele infekcji wznoszącej również miały trudności z płodnością młodych lub wykazywaniem zachorowalności noworodkowej 19,20,21,22,23,24,55,56. Klinicznie istotne modele zwierzęce, takie jak opisany przez nas, są kluczowe dla zrozumienia patofizjologii wcześniaków oraz opracowania innowacyjnych interwencji poprawiających wyniki noworodków.
Oświadczenia
Autorzy nie mają żadnych istotnych ujawnień.
Podziękowania
Escherichia coli K1 A192PP-luxABCDE został uprzejmie podarowany przez profesora Petera Taylora z University College London. Rysunek 1 i Rysunek 3 zostały stworzone w BioRender.com. Badania te zostały wsparte przez Wellcome Clinical Research Career Development Fellowship 222970/Z/21/Z (N.S.), Action Medical Research oraz grant Borne GN2647 (N.S., S.N.W. i D.P.); oraz grant na dobrostan kobiet RG2365 (A.K.B., N.S., M.H., S.N.W. i D.P.).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Anty-GFAP, króliczku | Agilent Technologies | Z033429-2 | |
| Anty-IBA1, rabbit | Wako | 019-19741 | |
| Anti-Ly6G, myszka | BioLegend | 127601 | |
| Kamera AVT-Horn 184 3CCD | Sony | ||
| Biotin-16-DUTP | Merck | 11093070910 | |
| Prostokątne pokrywki z borosilikatowego szkła | FisherScientific | 12363128 | |
| Octan fioletu krezylskiego | ThermoFisher Scientific | 405760100 | |
| Kriostat CM1900 | Leica | ||
| Szklana kuweta | Merck | BR472700 | |
| Diaminobenzydyna (DAB) | Generon | 40480004-3 | |
| Kleszcze do rozcinania, stal nierdzewna, 10 cm, ząbkowane, zakrzywione | World Precision Instruments Ltd | 15915 | |
| Kleszcze do rozcinania, stal nierdzewna, 10 cm, ząbkowane, proste | World Precision Instruments Ltd | 15914 | |
| Nożyczki do sekcji, 10 cm długości, proste | World Precision Instruments Ltd | 14393 | |
| DPX | Merck | 100579 | |
| Eosin | Sigma-Aldrich | HT110116 | |
| Roztwór formaldehydu 4% buforowany | Merck | 100496 | |
| Przeciwciało przeciw IgG dla kóz (H+L), biotinylowane | Laboratoria Vector | BP-9100-50 | |
| Przeciwciało przeciw IgG dla kóz (H+L), biotynowo | Laboratoria Vector | BA-9400-1.5 | |
| GraphPad Prism v.8 | Oprogramowanie GraphPad | ||
| H2O2 | Sigma-Aldrich | 7722-84-1 | |
| Hematoksylyna | Sigma-Aldrich | MHS16 | |
| ImageJ | Narodowe Instytuty Zdrowia | ||
| Izofluran (IsoFlo) | Zoetis | 50019100 | |
| IVIS Lumina II System obrazowania in vivo/Oprogramowanie do obrazów żywych | Perkin Elmer/Revvity | ||
| Mikroslajdy | VWR | ISO8037/I | |
| Optimas 6.51 | Media Cybernetics Inc. | ||
| Paraformaldehyd | Sigma-Aldrich | 158127 | |
| Sól fizjologiczna z buforem fosforanowym (PBS) | Thermo Fisher Scientific (Life Technologies) | 14190094 | |
| Pluronic F-127 | Sigma-Aldrich | P2443 | |
| Chinina | Zaopatrzenie laboratoryjne naukowe | Q0132 | |
| ReadyProbes Hydrofobowy barierowy Pap Pen | Thermo Fisher Scientific | R3777 | |
| Wodorotlenek sodu | Honeywell | S8045 | |
| Fosforan sodu jednozasadowy bezwodny | FisherScientific | BP329-1 | |
| Sacharoza | Merck | S9378 | |
| Transferaza końcowa | Merck | 3333574001 | |
| ZESTAW VECTASTAIN ABC-HRP, PEROKSYDAZA | Laboratoria Vector | PK-4000 | |
| Ksyleny (stopień histologiczny) | Sigma-Aldrich | 534056 |
Bibliografia
- WHO. WHO: recommended definitions, terminology and format for statistical tables related to the perinatal period and use of a new certificate for cause of perinatal deaths. Modifications recommended by FIGO as amended October 14, 1976. Acta Obstet Gynecol Scand. 56 (3), 247-253 (1977).
- Liu, L., et al. Global, regional, and national causes of under-5 mortality in 2000–15: an updated systematic analysis with implications for the sustainable development goals. Lancet. 388 (10063), 3027-3035 (2016).
- Chawanpaiboon, S., et al. regional, and national estimates of levels of preterm birth in 2014: a systematic review and modelling analysis. Lancet Glob Health. 7 (1), e37-e46 (2019).
- Unicef. Levels and trends in child mortality report 2017. , Unicef. (2017).
- Blencowe, H., et al. National, regional, and worldwide estimates of preterm birth rates in the year 2010 with time trends since 1990 for selected countries: a systematic analysis and implications. Lancet. 379 (9832), 2162-2172 (2012).
- Jung, E., et al. The fetal inflammatory response syndrome: the origins of a concept, pathophysiology, diagnosis, and obstetrical implications. Semin Fetal Neonatal Med. 25 (4), 101146(2020).
- Humberg, A., et al. Preterm birth and sustained inflammation: consequences for the neonate. Semin Immunopathol. 42 (4), 451-468 (2020).
- Boyle, A. K., Rinaldi, S. F., Norman, J. E., Stock, S. J. Preterm birth: inflammation, fetal injury and treatment strategies. J Reprod Immunol. 119, 62-66 (2017).
- Romero, R., Dey, S. K., Fisher, S. J. Preterm labor: one syndrome, many causes. Science. 345 (6198), 760-765 (2014).
- Goldenberg, R. L., Culhane, J. F., Iams, J. D., Romero, R. Epidemiology and causes of preterm birth. Lancet. 371 (9606), 75-84 (2008).
- Jones, H. E., et al. Differing prevalence and diversity of bacterial species in fetal membranes from very preterm and term labor. PLoS One. 4 (12), e8205(2009).
- Cobo, T., et al. Characterization of vaginal microbiota in women with preterm labor with intra-amniotic inflammation. Sci Rep. 9 (1), 18963(2019).
- Romero, R., et al. Microbial invasion of the amniotic cavity in patients with suspected cervical incompetence: prevalence and clinical significance. Am J Obstet Gynecol. 167 (4 Pt 1), 1086-1091 (1992).
- Mendz, G. L., Kaakoush, N. O., Quinlivan, J. A. Bacterial aetiological agents of intra-amniotic infections and preterm birth in pregnant women. Front Cell Infect Microbiol. 3, 58(2013).
- DiGiulio, D. B., et al. Prevalence and diversity of microbes in the amniotic fluid, the fetal inflammatory response, and pregnancy outcome in women with preterm pre-labor rupture of membranes. Am J Reprod Immunol. 64 (1), 38-57 (2010).
- DiGiulio, D. B. Diversity of microbes in amniotic fluid. Semin Fetal Neonatal Med. 17 (1), 2-11 (2012).
- Miller, F. A., Sacco, A., David, A. L., Boyle, A. K. Interventions for infection and inflammation-induced preterm birth: a preclinical systematic review. Reprod Sci. , (2022).
- Migale, R., et al. Specific lipopolysaccharide serotypes induce differential maternal and neonatal inflammatory responses in a murine model of preterm labor. Am J Pathol. 185 (9), 2390-2401 (2015).
- Spencer, N. R., et al. Development of a mouse model of ascending infection and preterm birth. PLoS One. 16 (12), e0260370(2021).
- Pavlidis, I., et al. Cervical epithelial damage promotes Ureaplasma parvum ascending infection, intrauterine inflammation and preterm birth induction in mice. Nat Commun. 11 (1), 199(2020).
- Vornhagen, J., et al. Group B streptococcus exploits vaginal epithelial exfoliation for ascending infection. J Clin Invest. 128 (5), 1985-1999 (2018).
- Bernardini, R., et al. Neonatal protection and preterm birth reduction following maternal group B streptococcus vaccination in a mouse model. J Matern Fetal Neonatal Med. 30 (23), 2844-2850 (2017).
- Tantengco, O. A. G., et al. Modeling ascending Ureaplasma parvum infection through the female reproductive tract using vagina-cervix-decidua-organ-on-a-chip and feto-maternal interface-organ-on-a-chip. Faseb J. 36 (10), e22551(2022).
- Randis, T. M., et al. Group B streptococcus β-hemolysin/cytolysin breaches maternal-fetal barriers to cause preterm birth and intrauterine fetal demise in vivo. J Infect Dis. 210 (2), 265-273 (2014).
- Suff, N., et al. Ascending vaginal infection using bioluminescent bacteria evokes intrauterine inflammation, preterm birth, and neonatal brain injury in pregnant mice. Am J Pathol. 188 (10), 2164-2176 (2018).
- Mushtaq, N., Redpath, M. B., Luzio, J. P., Taylor, P. W. Treatment of experimental Escherichia coli infection with recombinant bacteriophage-derived capsule depolymerase. J Antimicrob Chemother. 56 (1), 160-165 (2005).
- Achtman, M., et al. Six widespread bacterial clones among Escherichia coli K1 isolates. Infect Immun. 39 (1), 315-335 (1983).
- Winson, M. K., et al. Engineering the luxCDABE genes from Photorhabdus luminescens to provide a bioluminescent reporter for constitutive and promoter probe plasmids and mini-Tn5 constructs. FEMS Microbiol Lett. 163 (2), 193-202 (1998).
- Suff, N. The use of cervical gene therapy for the prevention of infection-related preterm birth [Ph. D. Thesis]. , University College London. (2017).
- Boyle, A. K., Rinaldi, S. F., Rossi, A. G., Saunders, P. T. K., Norman, J. E. Repurposing simvastatin as a therapy for preterm labor: evidence from preclinical models. Faseb J. 33 (2), 2743-2758 (2019).
- Boyle, A. K., et al. Ascending vaginal infection in mice induces preterm birth and neonatal morbidity. Am J Pathol. 195 (5), 891-906 (2025).
- Kendall, G. S., Robertson, N. J., Iwata, O., Peebles, D., Raivich, G. N-methyl-isobutyl-amiloride ameliorates brain injury when commenced before hypoxia ischemia in neonatal mice. Pediatr Res. 59 (2), 227-231 (2006).
- Rocha-Ferreira, E., et al. Curcumin: novel treatment in neonatal hypoxic-ischemic brain injury. Front Physiol. 10, 1351(2019).
- Kyrylkova, K., Kyryachenko, S., Leid, M., Kioussi, C. Detection of apoptosis by TUNEL assay. Methods Mol Biol. 887, 41-47 (2012).
- Lier, J., Streit, W. J., Bechmann, I. Beyond activation: characterizing microglial functional phenotypes. Cells. 10 (9), (2021).
- Schmidt-Kastner, R., Wietasch, K., Weigel, H., Eysel, U. T. Immunohistochemical staining for glial fibrillary acidic protein (GFAP) after deafferentation or ischemic infarction in rat visual system: features of reactive and damaged astrocytes. Int J Dev Neurosci. 11 (2), 157-174 (1993).
- Pekny, M., Pekna, M. Astrocyte reactivity and reactive astrogliosis: costs and benefits. Physiol Rev. 94 (4), 1077-1098 (2014).
- Witcomb, L. A., Collins, J. W., McCarthy, A. J., Frankel, G., Taylor, P. W. Bioluminescent imaging reveals novel patterns of colonization and invasion in systemic Escherichia coli K1 experimental infection in the neonatal rat. Infect Immun. 83 (12), 4528-4540 (2015).
- Obata-Yasuoka, M., Ba-Thein, W., Tsukamoto, T., Yoshikawa, H., Hayashi, H. Vaginal Escherichia coli share common virulence factor profiles, serotypes and phylogeny with other extraintestinal E. coli. Microbiology (Reading). 148 (Pt 9), 2745-2752 (2002).
- Bonacorsi, S., Bingen, E. Molecular epidemiology of Escherichia coli causing neonatal meningitis. Int J Med Microbiol. 295 (6-7), 373-381 (2005).
- Hartling, L., Liang, Y., Lacaze-Masmonteil, T. Chorioamnionitis as a risk factor for bronchopulmonary dysplasia: a systematic review and meta-analysis. Arch Dis Child Fetal Neonatal Ed. 97 (1), F8-F17 (2012).
- Liang, G., et al. Isoflurane causes greater neurodegeneration than an equivalent exposure of sevoflurane in the developing brain of neonatal mice. Anesthesiology. 112 (6), 1325-1334 (2010).
- Yang, B., et al. Comparison of neurodegeneration and cognitive impairment in neonatal mice exposed to propofol or isoflurane. PLoS One. 9 (6), e99171(2014).
- Schmitz-Koep, B., et al. Decreased cortical thickness mediates the relationship between premature birth and cognitive performance in adulthood. Hum Brain Mapp. 41 (17), 4952-4963 (2020).
- Nagy, Z., Lagercrantz, H., Hutton, C. Effects of preterm birth on cortical thickness measured in adolescence. Cereb Cortex. 21 (2), 300-306 (2011).
- Dimitrova, R., et al. Preterm birth alters the development of cortical microstructure and morphology at term-equivalent age. Neuroimage. 243, 118488(2021).
- Dada, T., et al. Mouse model of intrauterine inflammation: sex-specific differences in long-term neurologic and immune sequelae. Brain Behav Immun. 38, 142-150 (2014).
- Suff, N., et al. Cervical gene delivery of the antimicrobial peptide, human beta-defensin (HBD)-3, in a mouse model of ascending infection-related preterm birth. Front Immunol. 11, 106(2020).
- McKenna, E., et al. Neutrophils: need for standardized nomenclature. Front Immunol. 12, 602963(2021).
- Jurga, A. M., Paleczna, M., Kuter, K. Z. Overview of general and discriminating markers of differential microglia phenotypes. Front Cell Neurosci. 14, 198(2020).
- Jackson, C. M., et al. Pulmonary consequences of prenatal inflammatory exposures: clinical perspective and review of basic immunological mechanisms. Front Immunol. 11, 1285(2020).
- Durrani-Kolarik, S., et al. miR-29b supplementation decreases expression of matrix proteins and improves alveolarization in mice exposed to maternal inflammation and neonatal hyperoxia. Am J Physiol Lung Cell Mol Physiol. 313 (2), L339-L349 (2017).
- Nguyen, L., et al. Sex-differences in LPS-induced neonatal lung injury. Sci Rep. 9 (1), 8514(2019).
- Zhang, Y., Edwards, S. A., House, M. Cerclage prevents ascending intrauterine infection in pregnant mice. Am J Obstet Gynecol. , (2023).
- Kammala, A. K., et al. Extracellular vesicles-mediated recombinant IL-10 protects against ascending infection-associated preterm birth by reducing fetal inflammatory response. Front Immunol. 14, 1196453(2023).
- Tantengco, O. A. G., et al. Inflammatory response elicited by Ureaplasma parvum colonization in human cervical epithelial, stromal, and immune cells. Reproduction. 163 (1), 1-10 (2021).
Przedruki i uprawnienia
