Ten artykuł opisuje użycie komórek HepG2 indukowanych kwasem oleinowym jako modelu dla stłuszczeniowej choroby wątroby związanej z dysfunkcją metaboliczną.
Artykuł metodologiczny
Modelowanie in vitro odkładania się tłuszczu w stłuszczeniowej chorobie wątroby związanej z dysfunkcją metaboliczną
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Częstość występowania stłuszczeniowej choroby wątroby (MASLD) związanej z dysfunkcją metaboliczną gwałtownie wzrosła z powodu zmian w wzorcach ekonomicznych i stylu życia, co prowadzi do poważnych problemów zdrowotnych. Poprzednie raporty dotyczyły tworzenia modeli zwierzęcych i komórkowych dla MASLD, podkreślając różnice między nimi. W tym badaniu stworzono model komórkowy poprzez indukowanie akumulacji tłuszczu w MASLD. Komórki HepG2 stymulowano nienasyconym kwasem tłuszczowym kwasem oleinowym w różnych stężeniach (0,125 mM, 0,25 mM, 0,5 mM, 1 mM) w celu emulacji MASLD. Skuteczność modelu oceniono za pomocą testów zliczania komórek-8, barwienia czerwienią olejową O i analizy zawartości lipidów. Badanie to miało na celu stworzenie prostego w obsłudze modelu komórkowego dla komórek MASLD. Wyniki testów zliczania komórek kit-8 wykazały, że przeżycie komórek HepG2 zależało od stężenia kwasu oleinowego, przy IG50 wynoszącym 1,875 mM. Żywotność komórek w grupach 0,5 mM i 1 mM była istotnie niższa niż w grupie kontrolnej (P < 0,05). Ponadto w ramach analizy barwienia czerwienią olejową O i zawartości lipidów badano odkładanie się tłuszczu przy różnych stężeniach kwasu oleinowego (0,125 mM, 0,25 mM, 0,5 mM, 1 mM) na komórkach HepG2. Zawartość lipidów w grupach 0,25 mM, 0,5 mM i 1 mM była istotnie wyższa niż w grupie kontrolnej (P < 0,05). Ponadto poziom trójglicerydów w grupach z chorobą zwyrodnieniową stawów był istotnie wyższy niż w grupie kontrolnej (P < 0,05).
Wprowadzenie
Stłuszczeniowa choroba wątroby związana z dysfunkcją metaboliczną (MASLD) obejmuje szereg schorzeń, w tym proste stłuszczenie, niealkoholowe stłuszczeniowe zapalenie wątroby (NASH), marskość wątroby i raka wątrobowokomórkowego1,2,3,4,5,6, wszystkie przypisane czynnikom innym niż Alcohol Conuption7. MASLD jest najbardziej rozpowszechnioną chorobą wątroby spowodowaną metabolicznym uszkodzeniem wątroby, dotykającą prawie jedną czwartą światowej populacji8,9,10,11,12. Chociaż dokładna patogeneza MASLD nie została jeszcze wyjaśniona, różne teorie próbują wyjaśnić jej rozwój. Jeden z dominujących poglądów sugeruje odejście od klasycznej teorii "dwóch trafień" w kierunku modelu "wielokrotnego trafienia"1. Centralnym punktem tych hipotez jest rola insulinooporności, która jest uważana za kluczową w patogenezie MASLD13. Badania wskazują, że insulinooporność hepatocytów prowadzi do zwiększonego poziomu wolnych kwasów tłuszczowych, a następnie do powstania trójglicerydów przechowywanych w wątrobie14,15.
Badacze użyli zarówno modeli in vivo, jak i in vitro, aby symulować odkładanie się tłuszczu w MASLD; jednak pełne odtworzenie jego patomechanizmu pozostaje wyzwaniem. Pomimo tego ograniczenia, modele te odegrały zasadniczą rolę w badaniu potencjalnych celów terapeutycznych dla MASLD. Kluczowe znaczenie ma jednak opracowanie stabilnego modelu MASLD. Chociaż modele zwierzęce są skuteczne, są czasochłonne i kosztowne, co podkreśla rosnące zainteresowanie modelami komórkowymi in vitro. Modele te często wykorzystują jeden lub wiele wolnych kwasów tłuszczowych, takich jak kwas oleinowy (OA) i kwas palmitynowy, aby odtworzyć MASLD wywołany dietą. Wśród nich ludzka linia komórkowa hepatoblastoma HepG2 jest często wykorzystywana do tworzenia modeli komórkowych MASLD in vitro.
Indukcja OA stymuluje komórki HepG2 do replikacji depozycji tłuszczu podobnej do MASLD, metody o ugruntowanej historii. Celem tego badania było wykazanie żywotności, barwienia czerwienią olejową O (ORO), zawartości lipidów i poziomu trójglicerydów (TG) komórek HepG2 poddanych działaniu 0,25 mM OA. Celem tego eksperymentu było dostarczenie dalszych dowodów na rozwój badań modelowych MAFLD.
Protokół
UWAGA: Zobacz Tabelę Materiałów, aby uzyskać szczegółowe informacje dotyczące wszystkich materiałów, instrumentów i odczynników używanych w tym protokole.
1. Hodowla komórkowa
- Hodowla komórek HepG2 w kolbach hodowlanych zawierających zmodyfikowane podłoże orła (DMEM) firmy Dulbecco (zawierające 10% płodowej surowicy bydlęcej [FBS], 100 jednostek/ml penicyliny i 100 μg/ml streptomycyny). Utrzymywać kolby hodowlane w temperaturze 37 °C w inkubatorze o stężeniu 5% CO2 .
2. Wpływ kwasu oleinowego na żywotność komórek mierzoną za pomocą zestawu do liczenia komórek-8
- Rozpuścić określoną objętość OA w dimetylosulfotlenku (DMSO) do uzyskania stężenia 200 mM. Przechowywać roztwór w temperaturze -20 °C do wykorzystania w przyszłości.
- Umieść komórki HepG2 w 96-dołkowej płytce o gęstości komórek 6 × 10³ komórki na dołek. Dodaj 100 μl DMEM do każdej studzienki. Inkubować i hodować komórki w temperaturze 37 °C w inkubatorze o stężeniu 5% CO2 przez 24 godziny. Podziel komórki HepG2 na dwie grupy:
- Grupa kontrolna: dodać pożywkę do hodowli komórkowych.
- Grupa OA: dodać OA do pożywki do hodowli komórkowej, aby osiągnąć końcowe stężenia 0,125 mM, 0,25 mM, 0,5 mM i 1 mM.
- Po 24 godzinach od początkowej inkubacji odrzucić supernatant z każdej studzienki i dodać OA zgodnie z określonym grupowaniem, dodając 100 μl na studzienkę. W przypadku grupy kontrolnej dodać 100 μl pożywki do hodowli komórkowych do każdego dołka. Kontynuuj inkubację komórek przez kolejne 24 godziny
UWAGA: Upewnij się, że każda grupa ma sześć dołków replikowanych. Aby zapobiec parowaniu, dodać 100 μl soli fizjologicznej buforowanej fosforanami (PBS) do zewnętrznego pierścienia studzienek w płytce 96-dołkowej. - Po 24 godzinach inkubacji dodać 10 μl zestawu do liczenia komórek-8 (CCK-8) do każdej studzienki, delikatnie wymieszać i inkubować przez 2 godziny w ciemności. Wyjąć 96-dołkową płytkę z inkubatora, umieścić ją w czytniku mikropłytek i zmierzyć wartość absorbancji przy 450 nm (A450). Wartości IG50 zostały policzone zgodnie z OD.
3. Barwienie czerwienią olejową O w celu obserwacji wewnątrzkomórkowego tworzenia się kropelek lipidowych
- Umieść komórki HepG2 na 6-dołkowych płytkach do hodowli komórkowych o gęstości 5 × 10⁵ komórek na studzienkę i hoduj płytki w inkubatorze o stałej temperaturze przez 24 godziny. Patrz Rysunek 1, aby uzyskać wizualną reprezentację opisanych kroków.
- Po 24 godzinach hodowli komórkowej dodać 2 ml pożywki do hodowli komórkowej zawierającej OA do każdego dołka, uzyskując końcowe stężenia 0,125 mM, 0,25 mM, 0,5 mM i 1 mM. Po dodatkowych 24 godzinach wyjąć pożywkę do hodowli komórkowych z każdej studzienki i przemyć dwukrotnie PBS. Dodać 1 ml utrwalacza ORO do każdej studzienki i inkubować przez 30 minut.
- Przygotować roztwór barwiący ORO, mieszając roztwór barwiący A z roztworem barwiącym B w stosunku 3:2. Pozostaw mieszaninę w temperaturze pokojowej na 10 minut, a następnie przefiltruj ją raz przez filtr 0,45 μm. Przefiltrowany roztwór należy przechowywać w probówce wirówkowej chronionej przed światłem do czasu użycia.
- Wyrzuć utrwalacz i przemyj dwukrotnie wodą destylowaną. Dodaj 1 ml 60% izopropanolu do każdej studzienki i inkubuj przez 30 s. Odrzucić 60% roztworu izopropanolu i dodać 1 ml świeżo przygotowanego roztworu barwienia ORO do każdego dołka przed inkubacją przez 20 minut. Odrzuć roztwór barwiący OR, dodaj 1 ml 60% izopropanolu do każdej studzienki i inkubuj przez 30 s. Umyj 5x wodą, aby usunąć nadmiar barwnika.
- Przykryj komórki wodą destylowaną i obserwuj pod mikroskopem. Po zebraniu obrazów wylej płyn z płytki i pozostaw do wyschnięcia. Następnie dodaj 2 ml izopropanolu do każdej studzienki i potrząsaj płytką na wytrząsarce orbitalnej przez 10 minut. Przenieś ciecz na nową 96-dołkową płytkę, z 16 dołkami w każdej grupie, dodając 100 μl na dołek. Obliczyć zawartość lipidów, mierząc gęstość optyczną (OD) każdej studzienki za pomocą czytnika mikropłytek przy długości fali 510 nm (A510).
4. Wpływ różnych stężeń kwasu oleinowego na całkowitą ilość trójglicerydów w supernatancie komórek HepG2
- Wyrównaj zestaw w temperaturze pokojowej przez 20 minut i przygotuj wymagane płytki do eksperymentu.
- Zebrać supernatant komórek i odwirować przy stężeniu 1,570 × g przez 10 minut. Ustawić studzienki standardowe i dołki testowe na próbki. Dodać 50 μl wzorca ([S0 → S5] stężenia, a następnie: 0, 0,5, 1, 2, 4, 8 mmol/L) do studzienek wzorcowych. Oprócz studzienek ślepych i standardowych dodać 10 μl różnych próbek do studzienek na próbki, a następnie dodać 40 μl rozcieńczalnika do próbek do każdej studzienki. Dodać 100 μl wykrywającej peroksydazy przeciwciało-chrzan do każdej studzienki, uszczelnić membraną płytkową i inkubować w temperaturze 37 °C przez 1 godzinę w piecu o stałej temperaturze.
- Wyrzuć supernatant, osusz na papierze bezpyłowym i umyj każdą studzienkę 1x roztworem myjącym. Odstawić w temperaturze pokojowej na 1 minutę. Powtórz proces prania 5x.
- Do każdej studzienki dodać 50 μl substratu A i 50 μl substratu B. Delikatnie wymieszać i inkubować przez 15 minut w temperaturze 37 °C. Dodać 50 μl roztworu terminacyjnego do każdego dołka i zmierzyć wartość OD każdego dołka przy 450 nm (A450) w ciągu 15 minut.
- Wykreślić stężenie wzorca wzdłuż osi x i odpowiadającą jej wartość absorbancji (OD) wzdłuż osi y, aby przeprowadzić regresję liniową i wyprowadzić równanie krzywej, aby obliczyć wartość stężenia każdej próbki.
5. Analiza statystyczna
- Określ znaczące różnice w danych ilościowych.
- Oblicz średnią ± odchylenie standardowe (SD) i graficznie przedstaw dane. Uznajmy, że P < 0,05 jest statystycznie istotne.
Wyniki
Wpływ kwasu oleinowego na żywotność komórek
Komórki HepG2 poddano działaniu różnych stężeń OA (0 mM, 0,125 mM, 0,25 mM, 0,5 mM, 1 mM), co doprowadziło do spadku przeżywalności komórek przy stężeniach 0,125 mM, 0,25 mM, 0,5 mM i 1 mM w porównaniu do 0 mM. Istotność statystyczną zaobserwowano przy stężeniach 0,5 mM (P < 0,05) i 1 mM (P < 0,05) w porównaniu do 0 mM. Wyniki wpływu OA na żywotność komórek, ocenione za pomocą zestawu CCK-8, przedstawiono na Rysunku 2. Wartość GI50 dla komórek HepG2 traktowanych OA obliczono na poziomie 1,875 mM.
Barwienie Oil Red O w celu obserwacji wewnątrzkomórkowego tworzenia się kropli lipidowych
Barwienie ORO jest powszechnie stosowaną metodą wizualizacji lipidów16,17. W związku z tym, po przeprowadzeniu barwienia ORO, pod mikroskopem obserwowano tworzenie się kropli lipidowych w komórkach HepG2 inkubowanych z OA przez 24 h. Jak pokazano na Rysunku 3 i Rysunku 4, intensywność czerwonego barwienia w komórkach traktowanych OA była wyższa niż w komórkach nietraktowanych. W cytoplazmie komórek HepG2 po traktowaniu OA obecne były czerwone krople lipidowe, przy czym liczba kropli lipidowych i ilość lipidów zwiększały się wraz ze wzrostem stężenia OA (Rysunek 5).
Wpływ różnych stężeń kwasu oleinowego na całkowitą zawartość triglicerydów w supernatancie komórek HepG2
Wyniki eksperymentalne, przedstawione na Rysunku 6, wykazały, że w porównaniu z grupą kontrolną, traktowanie komórek HepG2 różnymi stężeniami OA (0,125 mM, 0,25 mM, 0,5 mM, 1 mM) doprowadziło do istotnego wzrostu zawartości TG w supernatancie komórkowym w grupach OA (P < 0,05).
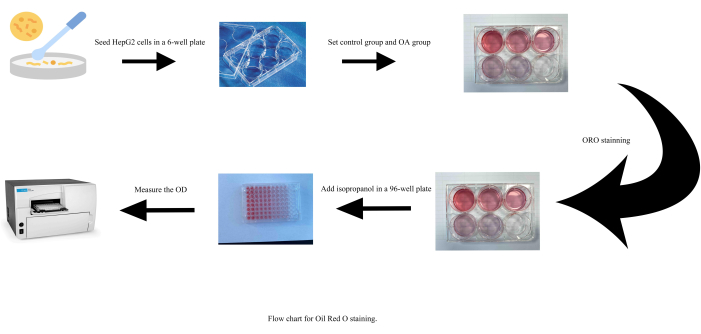
Rysunek 1: Schemat blokowy barwienia Oil Red O. Skróty: OA = kwas oleinowy; OD = gęstość optyczna. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.

Rysunek 2: Wpływ kwasu oleinowego na żywotność komórek, oceniany za pomocą testu CCK-8. Każdy słupek przedstawia średnią ± SD (n = 6). *P < 0,05. Skrót: OA = kwas oleinowy. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
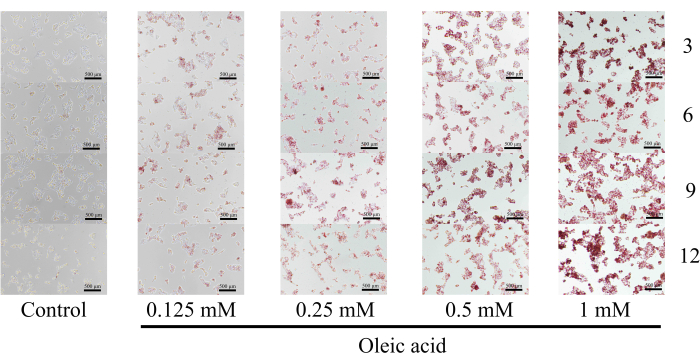
Rycina 3: Obrazy barwienia Oil Red O dla wielu punktów czasowych (kierunki godziny 3, 6, 9 i 12). Tworzenie się kropel lipidowych wykryto za pomocą odwróconego mikroskopu do hodowli komórkowych przy powiększeniu 40x. Pasek skali = 500 µm. Aby zobaczyć powiększoną wersję tej ryciny, kliknij tutaj.
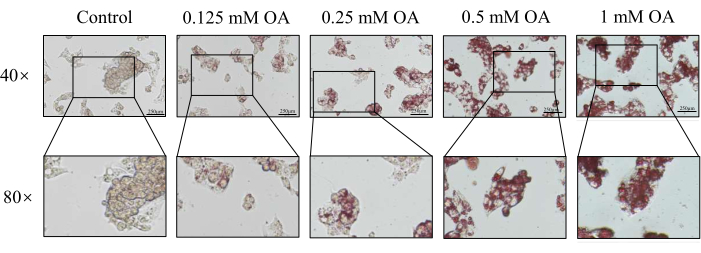
Rycina 4: Wpływ kwasu oleinowego na kropelki lipidowe w komórkach, oceniany za pomocą barwienia Oil Red O. Tworzenie kropel lipidowych wykryto przy użyciu odwróconego mikroskopu do hodowli komórkowych przy powiększeniu 40x. Pasek skali = 250 µm. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
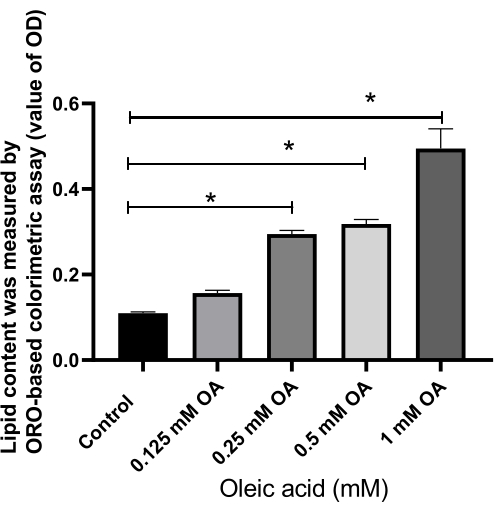
Rysunek 5: Wpływ kwasu oleinowego na zawartość lipidów w komórkach, oceniany na podstawie wartości gęstości optycznej. Względne zmiany krotności przedstawiono jako wartości gęstości optycznej w różnych grupach. Każdy słupek reprezentuje średnią ± SD (n = 16). *P < 0,05. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
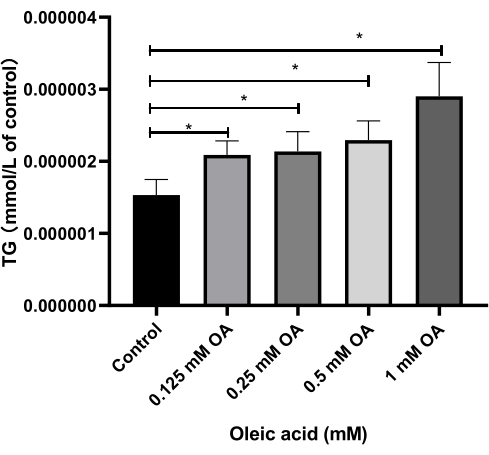
Rysunek 6: Wpływ różnych stężeń kwasu oleinowego na całkowite poziomy triglicerydów w supernatancie komórek HepG2. Przedstawiono względne zmiany krotności w wartościach poziomów triglicerydów w różnych grupach. Każdy słupek reprezentuje średnią ± SD (n = 3). *P < 0.05. Aby zobaczyć powiększoną wersję tego rysunku, kliknij tutaj.
Dyskusja
MASLD jest zespołem kliniczno-patologicznym charakteryzującym się nadmiernym wewnątrzkomórkowym odkładaniem się tłuszczu w hepatocytach z powodu czynników innych niż alkohol i inne uznane czynniki uszkadzające wątrobę18. MASLD jest ściśle związany z nabytym stresem metabolicznym uszkodzeniem wątroby, w szczególności związanym z insulinoopornością i podatnością genetyczną. Aby skutecznie badać i badać przesiewowo leki w kierunku MASLD, kluczowe jest wybranie odpowiedniego modelu eksperymentalnego. Stworzenie modelu komórkowego jest szczególnie istotne w badaniach nad MASLD, ułatwiając głębsze zrozumienie mechanizmów patologicznych i ocenę skutków działania nowych leków.
Protokół ten opisuje model in vitro MASLD ustalony przez komórki HepG2 indukowane przez chorobę zwyrodnieniową stawów. Barwienie ORO i analiza zawartości lipidów służą jako kluczowe metody tworzenia tego modelu. Ponadto ocena żywotności komórek i całkowitej zawartości TG w supernatantach komórkowych ma zasadnicze znaczenie dla oceny odpowiedniego stężenia choroby zwyrodnieniowej stawów. Kryterium diagnostycznym MASLD jest obecność ponad 5% TG zmagazynowanego w komórkach wątroby19,20. Modele komórkowe MASLD opierają się głównie na komórkach HepG2 21,22,23,24,25,26,27,28, znanych z udanego wykorzystania w konstruowaniu modeli stłuszczenia zwyrodnienia wątroby w różnych badaniach krajowych i międzynarodowych. Pomimo tego, że pochodzą z komórek wątrobiaka, komórki HepG2 mają wiele cech fenotypowych wspólnych z hepatocytami i są łatwe w hodowli i rozmnażaniu 29,30. Testy takie jak zestaw CCK-8, barwienie ORO, zawartość lipidów i pomiary całkowitej TG oferują proste, obiektywne i rozsądne podejścia do oceny żywotności komórek, akumulacji tłuszczu i zawartości lipidów u badanych. W tym kontekście, choroba zwyrodnieniowa stawów jest zgodna z patogenezą MASLD31, w której nadmiar energii jest magazynowany w postaci lipidów, gdy spożycie energii przewyższa konsumpcję.
Naukowcy wykorzystali OA 23,28,31,32,33, kwas palmitynowy34,35 i kombinacje kwasu oleinowego/palmitynowego26,36 do replikacji modelu MASLD. Zarówno kwas palmitynowy, jak i choroba zwyrodnieniowa stawów przyczyniają się do zwyrodnienia tłuszczowego wątroby i akumulacji TG. Kwas palmitynowy, najobficiej występujący nasycony kwas tłuszczowy w organizmie człowieka, wykazuje znaczną lipotoksyczność, prowadząc do akumulacji lipidów w hepatocytach, zwiększonego wewnątrzkomórkowego reaktywnego rodnika tlenowego oraz śmierci lub martwicy komórek37. I odwrotnie, choroba zwyrodnieniowa stawów prowadzi do wyraźniejszego wewnątrzkomórkowego odkładania TG (ryc. 6) i mniejszej modulacji komórkowej38. W związku z tym naukowcy często wykorzystują komórki HepG2 indukowane przez chorobę zwyrodnieniową stawów do tworzenia modeli MASLD in vitro. Jak opisano w kroku 2.2.2 protokołu, ważne jest, aby podgrzać roztwór OA podczas jego dodawania. W tym badaniu barwienie ORO i analiza zawartości lipidów opierały się na osadzaniu lipidów w komórkach HepG2, skutecznie wspierając eksplorację modeli in vitro MASLD o złożonych mechanizmach oraz skracając czas i koszty wymagane do badań.
ORO łatwo wiąże się z TG w kształcie kropelki, wytwarzając pomarańczowe lub czerwone zabarwienie wskazujące na tłuszcz, o intensywności koloru zależnej od stężenia lipidów. Jednak roztwór barwiący ORO jest niestabilny i podatny na wytrącanie się, przez co nie nadaje się do wcześniejszego przygotowania. W związku z tym roztwór do barwienia ORO przygotowano po kroku protokołu 3.2, z zachowaniem środków ostrożności w celu uniknięcia ekspozycji na światło podczas przygotowania i inkubacji (kroki protokołu 3.2, 3.3). W kroku 3.5 protokołu wybieranie obrazów w wielu punktach czasowych (kierunek godziny 3, 6, 9 i 12) stanowi kluczową modyfikację eksperymentu, która jest niezbędna do poprawy dokładności wyników. Chociaż podwyższone stężenie choroby zwyrodnieniowej stawów wpływa na przeżywalność komórek, stanowiąc tym samym ograniczenie tej metody, wykazano, że odpowiednie stężenie choroby zwyrodnieniowej stawów zapewnia żywotność komórek.
W badaniu tym zastosowano kompleksowe podejście, wykorzystując zestaw CCK-8, barwienie OR, analizę zawartości lipidów i całkowity pomiar TG w celu ustalenia i walidacji modelu MASLD. Zestaw CCK-8 wykorzystano do oceny wpływu leków na żywotność komórek, służąc jako kluczowy etap walidacji. W przyszłości model ten jest obiecujący w badaniach przesiewowych leków i mechanizmach mających na celu zrozumienie patogenezy MASLD i identyfikację potencjalnych celów terapeutycznych. Aby jeszcze bardziej zapewnić jakość wiarygodności walidacji, poziomy ekspresji docelowych białek zaangażowanych w model zostaną przeanalizowane przy użyciu Western blotting i ilościowych analiz reakcji łańcuchowej polimerazy.
Oświadczenia
Autorzy deklarują brak konfliktu interesów.
Podziękowania
Obecne badanie zostało przyznane przez "Badanie kluczowych zagadnień leczniczego wpływu Kumysu na regionalne choroby medycyny mongolskiej" w 2018 roku Wspierany projekt programu naukowo-technologicznego Departamentu Nauki i Technologii Regionu Autonomicznego Mongolii Wewnętrznej.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 0,22 &mikro; m filtr | Millex | ||
| 0,25% Trypsyna-EDTA (1x) Trypsyna-EDTA | Gibco | 25200-056 | |
| 0,45 &mikro; M filtr | Millex | ||
| 2 mL Fiolki krygeniczne | CORNING | 430659 | |
| 25 cm2 Kolba do hodowli komórkowych | CORNING | 430639 | |
| 6-dołkowa płytka do hodowli komórkowej | CORNING | 3516 | |
| 96-dołkowa płytka do hodowli komórkowej | CORNING | 3599 | |
| Płytka do liczenia krwi | Shanghai Jing Jing Odczynnik biochemiczny & Instrument Co. | ||
| Zestaw do liczenia komórek-8 testy | Beijing Solarbio Science & Technology Co., Ltd. | CA1210-1000T | |
| Inkubator CO2 | NUAIRE | NU-5710E | |
| DMSO Dimetylosulfotlenek | Beijing Solarbio Nauka & Technology Co., Ltd. | D8371 | |
| Zmodyfikowany Eagle Medium firmy Dulbecco | enzymów | Gibco | |
| Tecan | Spark | ||
| Płodowa surowica bydlęca, kwalifikowana | Gibco | ||
| HepG2 | Pekin Północnochiński Instytut Badawczy Biotechnologii Chuanglian (BNCC) | 221031 | |
| ELISA ludzkiego trójglicerydu (TG) instrukcja | Instytut Bioinżynierii Nanjing Jiacheng | 20170301 | |
| Mikroskop odwrócony do hodowli komórkowych | Leica | DMi1 | |
| Izopropanol | Tianjin Zhiyuan Odczynnik chemiczny Co. | ||
| Zestaw czerwonych plam 2021030141 oleju, do komórek hodowlanych | Beijing Solarbio Science & Technology Co., Ltd. | G1262 | |
| Kwas oleinowy | Sangon Biotech (Szanghaj) Co., Ltd. | ||
| Penicylina Streptomycyna | Gibco | 15140122 | |
| Oprogramowanie | statystyczne SPSS 24.0 |
Bibliografia
- Alisi, A., Feldstein, A. E., Villani, A., Raponi, M. Pediatric nonalcoholic fatty liver disease: a multidisciplinary approach. Nat Rev Gastroenterol Hepatol. 9 (3), 152-161 (2012).
- Anania, C., Perla, F. M., Olivero, F., Pacifico, L., Chiesa, C. Mediterranean diet and nonalcoholic fatty liver disease. World J Gastroenterol. 24 (19), 2083-2094 (2018).
- Bessone, F., Razori, M. V., Roma, M. G. Molecular pathways of nonalcoholic fatty liver disease development and progression. Cell Mol Life Sci. 76 (1), 99-128 (2019).
- Katsiki, N., Mikhailidis, D. P., Mantzoros, C. S. Non-alcoholic fatty liver disease and dyslipidemia: An update. Metabolism. 65 (8), 1109-1123 (2016).
- European Association for the Study of the Liver (EASL); European Association for the Study of Diabetes (EASD); European Association for the Study of Obesity (EASO). EASL-EASD-EASO Clinical Practice Guidelines for the Management of Non-Alcoholic Fatty Liver Disease. Obes Facts. 9 (2), 65-90 (2016).
- Chalasani, N., et al. The diagnosis and management of nonalcoholic fatty liver disease: Practice guidance from the American Association for the Study of Liver Diseases. Hepatology. 67 (1), 328-357 (2018).
- Díaz, L. A., Arab, J. P., Louvet, A., Bataller, R., Arrese, M. The intersection between alcohol-related liver disease and nonalcoholic fatty liver disease. Nat Rev Gastroenterol Hepatol. 20 (12), 764-783 (2023).
- Cotter, T. G., Rinella, M. Nonalcoholic fatty liver disease 2020: The state of the disease. Gastroenterology. 158 (7), 1851-1864 (2020).
- Lonardo, A., et al. Metabolic mechanisms for and treatment of NAFLD or NASH occurring after liver transplantation. Nat Rev Endocrinol. 18 (10), 638-650 (2022).
- Papatheodoridi, M., Cholongitas, E. Diagnosis of non-alcoholic fatty liver disease (NAFLD): Current concepts. Curr Pharm Des. 24 (38), 4574-4586 (2018).
- Van Herck, M. A., Vonghia, L., Francque, S. M. Animal models of nonalcoholic fatty liver disease-a starter's guide. Nutrients. 9 (10), 1072(2017).
- Wieckowska, A., Feldstein, A. E. Diagnosis of nonalcoholic fatty liver disease: invasive versus noninvasive. Semin Liver Dis. 28 (4), 386-395 (2008).
- Stein, L. L., Dong, M. H., Loomba, R. Insulin sensitizers in nonalcoholic fatty liver disease and steatohepatitis: Current status. Adv Ther. 26 (10), 893-907 (2009).
- Milić, S., Lulić, D., Štimac, D. Non-alcoholic fatty liver disease and obesity: biochemical, metabolic and clinical presentations. World J Gastroenterol. 20 (28), 9330-9337 (2014).
- Neuschwander-Tetri, B. A., Caldwell, S. H. Nonalcoholic steatohepatitis: summary of an AASLD Single Topic Conference. Hepatology. 37 (5), 1202-1219 (2003).
- Du, J., Zhao, L., Kang, Q., He, Y., Bi, Y. An optimized method for Oil Red O staining with the salicylic acid ethanol solution. Adipocyte. 12 (1), 2179334(2023).
- Mehlem, A., Hagberg, C. E., Muhl, L., Eriksson, U., Falkevall, A. Imaging of neutral lipids by Oil Red O for analyzing the metabolic status in health and disease. Nat Protoc. 8 (6), 1149-1154 (2013).
- Estes, C., Razavi, H., Loomba, R., Younossi, Z., Sanyal, A. J. Modeling the epidemic of nonalcoholic fatty liver disease demonstrates an exponential increase in burden of disease. Hepatology. 67 (1), 123-133 (2018).
- Watkins, P. A., Ellis, J. M. Peroxisomal acyl-CoA synthetases. Biochim Biophys Acta. 1822 (9), 1411-1420 (2012).
- Heeren, J., Scheja, L. Metabolic-associated fatty liver disease and lipoprotein metabolism. Mol Metab. 50, 101238(2021).
- Kim, S. H., et al. Effect of isoquercitrin on free fatty acid-induced lipid accumulation in HepG2 cells. Molecules. 28 (3), 1476(2023).
- Lee, M. R., Yang, H. J., Park, K. I., Ma, J. Y. Lycopus lucidus Turcz. ex Benth. attenuates free fatty acid-induced steatosis in HepG2 cells and non-alcoholic fatty liver disease in high-fat diet-induced obese mice. Phytomedicine. 55, 14-22 (2019).
- Li, J., et al. Hesperetin ameliorates hepatic oxidative stress and inflammation via the PI3K/AKT-Nrf2-ARE pathway in oleic acid-induced HepG2 cells and a rat model of high-fat diet-induced NAFLD. Food Funct. 12 (9), 3898-3918 (2021).
- Li, Y., et al. Protopanaxadiol ameliorates NAFLD by regulating hepatocyte lipid metabolism through AMPK/SIRT1 signaling pathway. Biomed Pharmacother. 160, 114319(2023).
- Liu, H., et al. Zeaxanthin prevents ferroptosis by promoting mitochondrial function and inhibiting the p53 pathway in free fatty acid-induced HepG2 cells. Biochim Biophys Acta Mol Cell Biol Lipids. 1868 (4), 159287(2023).
- Mun, J., et al. Water extract of Curcuma longa L. ameliorates non-alcoholic fatty liver disease. Nutrients. 11 (10), 2536(2019).
- Park, M., Yoo, J. H., Lee, Y. S., Lee, H. J. Lonicera caerulea extract attenuates non-alcoholic fatty liver disease in free fatty acid-induced HepG2 hepatocytes and in high fat diet-fed mice. Nutrients. 11 (3), 494(2019).
- Xia, H., et al. Alpha-naphthoflavone attenuates non-alcoholic fatty liver disease in oleic acid-treated HepG2 hepatocytes and in high fat diet-fed mice. Biomed Pharmacother. 118, 109287(2019).
- Alkhatatbeh, M. J., Lincz, L. F., Thorne, R. F. Low simvastatin concentrations reduce oleic acid-induced steatosis in HepG(2) cells: An in vitro model of non-alcoholic fatty liver disease. Exp Ther Med. 11 (2), 1487-1492 (2016).
- Cui, W., Chen, S. L., Hu, K. Q. Quantification and mechanisms of oleic acid-induced steatosis in HepG2 cells. Am J Transl Res. 2 (1), 95-104 (2010).
- Guo, X., Yin, X., Liu, Z., Wang, J. Non-alcoholic fatty liver disease (NAFLD) pathogenesis and natural products for prevention and treatment. Int J Mol Sci. 23 (24), 15489(2022).
- Rafiei, H., Omidian, K., Bandy, B. Dietary polyphenols protect against oleic acid-induced steatosis in an in vitro model of NAFLD by modulating lipid metabolism and improving mitochondrial function. Nutrients. 11 (3), 541(2019).
- Tie, F., et al. Kaempferol and kaempferide attenuate oleic acid-Induced lipid accumulation and oxidative stress in HepG2 cells. Int J Mol Sci. 22 (16), 8847(2021).
- Fang, K., et al. Diosgenin ameliorates palmitic acid-induced lipid accumulation via AMPK/ACC/CPT-1A and SREBP-1c/FAS signaling pathways in LO2 cells. BMC Complement Altern Med. 19 (1), 255(2019).
- Wu, X., et al. MLKL-dependent signaling regulates autophagic flux in a murine model of non-alcohol-associated fatty liver and steatohepatitis. J Hepatol. 73 (3), 616-627 (2020).
- Scavo, M. P., et al. The oleic/palmitic acid imbalance in exosomes isolated from NAFLD patients induces necroptosis of liver cells via the elongase-6/RIP-1 pathway. Cell Death Dis. 14 (9), 635(2023).
- Chavez-Tapia, N. C., Rosso, N., Tiribelli, C. Effect of intracellular lipid accumulation in a new model of non-alcoholic fatty liver disease. BMC Gastroenterol. 12, 20(2012).
- Ricchi, M., et al. Differential effect of oleic and palmitic acid on lipid accumulation and apoptosis in cultured hepatocytes. J Gastroenterol Hepatol. 24 (5), 830-840 (2009).
Przedruki i uprawnienia
