Ten protokół opisuje hodowlę in vitro patogenu kiły Treponema pallidum subsp. pallidum w kokulturze z komórkami ssaków. Metoda jest skalowalna; może być stosowany do produkcji dużych ilości T. pallidum i do generowania kultur klonalnych.
Artykuł metodologiczny
Procedury hodowli in vitro Treponema pallidum, krętka kiły
W tym artykule
Podsumowanie
Streszczenie
Przez ponad sto lat, Treponema pallidum subsp. pallidum, spiralna bakteria wywołująca kiłę, mogła być rozmnażana tylko przez inokulację i zbiór organizmów z jąder królików. W 2018 roku opisaliśmy metodę ciągłej hodowli T. pallidumin vitro. System ten wykorzystuje kohodowlę z komórkami nabłonkowymi królika (komórki Sf1Ep) w pożywce do hodowli tkankowej zawierającej surowicę o nazwie TpCM-2. Czas podwojenia T. pallidum w hodowli jest podobny do tego, który szacuje się, że występuje podczas naturalnej infekcji (około 33-45 godzin). Organizm może być hodowany w sposób ciągły ze standardowym czasem pasażu wynoszącym 1 tydzień w środowisku o niskiej zawartości tlenu (1,5%) w temperaturze 34 °C. Niniejszy artykuł zawiera protokoły hodowli T. pallidum, metody hodowli i utrzymania wymaganych komórek hodowli tkankowej oraz technikę wytwarzania szczepów izogenicznych poprzez ograniczenie rozcieńczenia. Zdolność do hodowli T. pallidum in vitro otwiera nowe możliwości eksperymentalne w celu zbadania i zrozumienia tego enigmatycznego organizmu.
Wprowadzenie
Treponema pallidum to gatunek bakterii o spiralnym kształcie (zwanych krętkami), który powoduje kiłę i podobne infekcje u ludzi i innych naczelnych. Kiła jest poważną chorobą o długotrwałych skutkach dla osób zakażonych i szacuje się, że każdego roku na całym świecie występuje ponad 8 milionów nowych przypadków kiły1. T. pallidum został podzielony na trzy podgatunki w oparciu o choroby, które wywołują u ludzi, a także niewielkie różnice genetyczne: podgatunek pallidum (który powoduje chorobę przenoszoną drogą płciową kiłę), podgatunek pertenue (ziewa) i podgatunek endemicum (powodujący bejel lub endemiczną kiłę)2,3. T. pallidum subsp. pertenue powoduje również infekcje u pawianów, szympansów i innych naczelnych. Blisko spokrewniony organizm o nazwie Treponema paraluiscuniculi (zwany również Treponema paraluisleporidarum) powoduje infekcję u królików i zajęcy4,5. Wszystkie te bakterie są bardzo blisko spokrewnione, z ponad 98% identycznością sekwencji DNA na poziomie genomu6,7,8. Każdy z nich ma pojedynczy, mały okrągły chromosom o wielkości około 1,14 miliona par zasad (Mb). Członkowie tej grupy T. pallidum występują tylko w połączeniu ze swoimi ssaczymi gospodarzami; W związku z tym są to obowiązkowe patogeny, które są zależne od gatunku żywiciela w celu przetrwania i wzrostu9,10.
Próby hodowli T. pallidum in vitro rozpoczęły się wkrótce po jego zidentyfikowaniu przez Schaudinn i Hoffmana w 1905 roku11,12. Wysiłki te nie doprowadziły jednak do stałego, powtarzalnego wzrostu organizmu. W rezultacie, badania naukowe nad T. pallidum wymagały namnażania organizmu poprzez eksperymentalne zakażenie zwierząt laboratoryjnych, najczęściej rabbit13,14. W 1981 roku Fieldsteel et al.15 wprowadzili system hodowli tkankowej, który promował namnażanie szczepów T. pallidum przez okres do 2 tygodni. System ten obejmował jednoczesną hodowlę T. pallidum z komórkami nabłonkowymi królika bawełnianego Sf1Ep w zmodyfikowanym pożywce do hodowli tkankowej (T. pallidum Culture Medium 1, TpCM-1) opartej na Eagle's Minimum Essential Medium (MEM) i 20% płodowej surowicy bydlęcej (FBS). Inne wymagane warunki hodowli to inkubacja w temperaturze 34 °C w atmosferze zawierającej 1,5% O2 i 5% CO29,16. W tym systemie T. pallidum przyłącza się do komórek Sf1Ep i namnaża się, gdy jest w ścisłym związku z powierzchnią komórki ssaków. Pomimo wielu prób subkultur i innych modyfikacji, system Fieldsteel i in. nie był w stanie promować ciągłego wzrostu in vitro.
W 2018 roku nasze laboratorium poinformowało, że użycie zmodyfikowanej pożywki o nazwie TpCM-2 (w której MEM Eagle'a zostało zastąpione bardziej złożonym podłożem do hodowli tkankowej, CMRL 1066) dostarczyło T. pallidum niezbędnych składników odżywczych, aby umożliwić konsekwentną długoterminową hodowlę17. Do tej pory ta modyfikacja doprowadziła do spójnej, ciągłej hodowli co najmniej 5 szczepów T. pallidum subsp. pallidum (Nichols, SS14, Mexico A, UW231B i UW249B) i jednego szczepu T. pallidum subsp. endemicum (Bośnia A)18,19. Na przykład szczep Nichols jest obecnie hodowany nieprzerwanie in vitro od ponad 6 lat. Do tej pory próby hodowli izolatów ziewających (T. pallidum subsp. pertenue) lub T. paraluiscuniculiin vitro zakończyły się niepowodzeniem18. System TpCM-2 nadal wymaga obecności komórek Sf1Ep, niskich stężeń tlenu i inkubacji w temperaturze 34 °C, co czyni system bardziej złożonym niż większość technik hodowli bakteryjnych. Jednak ten zmodyfikowany system hodowli T. pallidum okazał się przydatny do dalszego definiowania wymagań wzrostu bakterii18, określając minimalne stężenia hamujące (MIC) związków przeciwdrobnoustrojowych i peptydów20,21,22,23,24,25, rozmnażanie nowych szczepów z aspiratów tkanek pacjenta26, izolowanie klonalnych populacji organizmu27, charakteryzowanie systemu zmienności antygenowej tprK27,28, badanie ekspresji genów29, oraz przeprowadzanie analizy mutacji30,31,32.
Tutaj opisujemy obecne metody uprawy T. pallidum in vitro. Mamy nadzieję, że informacje te ułatwią szersze zastosowanie tej techniki hodowli in vitro w celu poprawy diagnostyki, leczenia i zapobiegania kile i związanym z nią infekcjom krętkowym.
Protokół
UWAGA: Wszystkie kroki wymagają użycia techniki aseptycznej oraz sterylnych materiałów i odczynników. Zaleca się stosowanie okapu z przepływem laminarnym do hodowli tkankowych w celu zmniejszenia zarówno a) narażenia personelu na materiał zakaźny, jak i b) możliwości zanieczyszczenia mikrobiologicznego kultur.
1. Ustalanie zasobów komórek Sf1Ep
UWAGA: Komórki nabłonkowe królika bawełnianego Sf1Ep można nabyć jako mrożone zapasy z American Type Culture Collection (zobacz Tabelę Materiałów). Powolny wzrost i niskie tempo metabolizmu komórek Sf1Ep wydają się być kluczem do ich zdolności do wspierania długoterminowego przetrwania i wzrostu T. pallidum33; Dlatego nie zaleca się zastępowania innymi hodowlami komórek ssaków. Komórki Sf1Ep nie są unieśmiertelnioną linią komórkową i mogą być utrzymywane tylko przez 25-30 pasaży w hodowli. Dlatego ważne jest, aby utrzymać zamrożony zapas komórek Sf1Ep o niskim pasażowaniu do wykorzystania w przyszłości. Unieśmiertelnione linie Sf1Ep czasami powstają podczas długotrwałej hodowli komórek Sf1Ep. (uwagi niepublikowane). Linie te często rosną szybciej i są łatwiejsze w obsłudze; czasami jednak tracą zdolność do wspierania wzrostu T. pallidum. Unieśmiertelnione linie Sf1Ep mogą być używane, a następnie wymieniane, gdy krętki zaczną powoli rosnąć.
- Przygotować pożywkę komórkową Sf1Ep i ogrzać ją w inkubatorze o temperaturze 37 °C, 5%CO2.
UWAGA: Pożywka komórkowa Sf1Ep składa się z MEM Eagle'a uzupełnionego 10% FBS, 1x MEM aminokwasów endogennych, 2 mM L-glutaminy i 1 mM pirogronianu sodu. (patrz Tabela materiałów). Pożywka powinna być sterylizowana filtrem i może być przechowywana w temperaturze 4 °C przez okres do 2 miesięcy. Antybiotyki (takie jak penicylina i streptomycyna) nie powinny być stosowane w pożywce komórkowej Sf1Ep, ponieważ przeniesienie nawet śladowych ilości antybiotyków będzie zakłócać wzrost T. pallidum. - Szybko rozmrozić zamrożony bulion Sf1Ep w temperaturze 37 °C. Przetrzeć zewnętrzną część fiolki 70% etanolem.
- Dodaj 1 ml pożywki komórkowej Sf1Ep do kriowialu i delikatnie wymieszaj. Dodać mieszaninę pożywki/komórki do sterylnej stożkowej probówki wirówkowej o pojemności 15 ml zawierającej 5 ml pożywki komórkowej Sf1Ep i delikatnie wymieszać.
- Osadzać komórki przez odwirowanie w stężeniu 100 x g przez 7 minut. Usunąć i wyrzucić supernatant, uważając, aby nie naruszyć osadu komórkowego.
- Delikatnie zawiesić rozmrożone komórki Sf1Ep w 15 ml świeżej pożywki komórkowej Sf1Ep i przenieść je do kolby do hodowli tkankowych T75.
UWAGA: Odzyskiwanie nowo rozmrożonych komórek Sf1Ep jest poprawiane przez wirowanie w celu usunięcia DMSO używanego do zamrażania komórek. Jednak kroki 1.4-1.7 można pominąć, a rozmrożone komórki z kroku 3 można bezpośrednio wysiać do kolby do hodowli tkankowej T75 zawierającej 14 ml pożywki komórkowej Sf1Ep. Po całonocnej inkubacji zastąp połowę pożywki świeżą pożywką Sf1Ep, aby rozcieńczyć resztki DMSO. - Inkubować kultury Sf1Ep w standardowym, wilgotnym inkubatorze do hodowli tkankowych w temperaturze 37 °C, 5% CO2 . Poluzować nakrętki niewentylowanych kolb do hodowli tkankowych, aby utrzymać odpowiednie pH podłoża.
2. Przenikanie komórek Sf1Ep
UWAGA: Wzrost hodowli komórek Sf1Ep jest monitorowany za pomocą odwróconego mikroskopu przy użyciu optyki kontrastu fazowego. Zazwyczaj komórki potrzebują około tygodnia, aby osiągnąć bliskie zbiegowisko. Gdy komórki osiągną ~90% zbieżności, można je przepuścić, wykorzystać do hodowli T. pallidum lub przygotowania mrożonych wywarów. Okres hodowli można przedłużyć do dwóch tygodni poprzez wymianę połowy pożywki po tygodniu hodowli.
- Odessać i wyrzucić pożywkę wzrostową Sf1Ep z kolby. Przepłukać warstwę komórkową 5 ml sterylnego PBS w temperaturze pokojowej (RT), a następnie odessać i wyrzucić płukany PBS.
- Dodać 2,5 ml trypsyny-EDTA do kolby i zamknąć nakrętkę. Kołysać kolbą w przód i w tył, aby pokryć warstwę komórkową trypsyną-EDTA i inkubować kolbę w temperaturze 37 °C przez 5 minut.
- Delikatnie postukaj w kolbę, aby usunąć komórki. Obserwuj pod odwróconym mikroskopem, aby potwierdzić rozproszenie komórek Sf1Ep.
- Dodać 5 ml pożywki wzrostowej Sf1Ep i rozkołysać kolbę, aby zmieszać z trypsyną-EDTA i zatrzymać działanie trypsyny. Usuń zawieszone komórki Sf1Ep do sterylnej stożkowej probówki.
- Określ ilościowo komórki za pomocą hemocytometru lub automatycznego licznika komórek.
- Aby utrzymać działające zapasy komórek, przenieś podwielokrotność (0,5-1,0 ml lub ~8 x 10⁵ komórek) mieszaniny pożywki/trypsyny-EDTA/komórek do nowej kolby do hodowli tkankowych T75 zawierającej 15 ml świeżej pożywki Sf1Ep.
- W przypadku hodowli T. pallidum rozcieńczyć komórki w pożywce Sf1Ep do 0,25-0,5 x 10⁵ komórek/ml i umieścić nasiona w odpowiednich naczyniach hodowlanych (Tabela 1).
- Aby zamrozić komórki Sf1Ep, wirować w wirówce stołowej o sile 100 x g przez 7 minut. Ostrożnie usunąć supernatant, nie naruszając osadu komórkowego. Ponownie zawiesić osad komórkowy w pożywce Sf1Ep uzupełnionej 10% DMSO klasy hodowli tkankowej.
- Rozprowadzić 1 ml zawiesiny komórkowej do każdego kriowialu i zamrozić przez noc w temperaturze od -70 °C do -80 °C w izolowanym pojemniku (takim jak styropianowy uchwyt na probówki) w celu zwiększenia trwałości żywotności przed przeniesieniem fiolek do naczynia kriogenicznego z ciekłym azotem.
3. Uprawa T. pallidum
UWAGA: Wszystkie podgatunki i szczepy T. pallidum są chorobotwórcze dla ludzi i są klasyfikowane jako Patogeny o Poziomie Bezpieczeństwa Biologicznego 2 (BSL-2) class34. Konieczne są odpowiednie środki w celu ochrony personelu; Obejmują one stosowanie rękawic i innych środków ochrony osobistej (PPE), a także dezynfekcję powierzchni, materiałów i płynów potencjalnie narażonych na T. pallidum. T. pallidum jest łatwo inaktywowany przez narażenie na 70% etanol lub dostępne w handlu środki dezynfekujące. Zaleca się konsekwentne stosowanie okapów z przepływem laminarnym do obchodzenia się z próbkami zawierającymi T. pallidum.
UWAGA: T. pallidum to mikroaerofilny organizm, który może zostać zabity przez kilka godzin ekspozycji na atmosferyczne poziomy tlenu9,16,35. Dlatego zaleca się, aby obchodzenie się z T. pallidum w powietrzu było ograniczone do mniej niż godziny, jeśli to możliwe. Ponadto podłoże TpCM-2 powinno być wstępnie zrównoważone w 1,5% O2, 5% CO2, równowadze N2 i należy ograniczyć energiczne mieszanie (np. użycie wiru). Ponieważ hodowla T. pallidum jest zwykle przeprowadzana przy braku antybiotyków, należy zachować szczególną ostrożność, aby uniknąć zanieczyszczenia bakteriami lub grzybami. Procedura Sf1Ep-TpCM-2 do hodowli T. pallidum jest podsumowana w Rysunek 1 i obejmuje wiele etapów, w tym wysiew naczyń hodowlanych komórkami Sf1Ep, przygotowanie pożywki TpCM-2 i inokulację kultur T. pallidum. Inaktywowana termicznie płodowa surowica bydlęca (FBS) jest krytycznym składnikiem, a jej skuteczność różni się w zależności od różnych dostawców i partii19. Konieczne jest wstępne badanie przesiewowe partii FBS pod kątem skuteczności.
- Wybierz odpowiedni rozmiar kultury.
UWAGA: Kultura T. pallidum jest skalowalna od dużych formatów (takich jak 75-centymetrowe2 kolby dające ~1 x 10⁹ T. pallidum na kulturę) do 96-dołkowych płytek (odpowiednich do eksperymentów klonowania)17,18,19,27.- Dostosowując wielkość hodowli, należy wziąć pod uwagę liczbę komórek Sf1Ep i T. pallidum zaszczepionych na kulturę, a także ilość potrzebnej pożywki, jak pokazano w tabeli 1. Używaj kolb z odpowietrzonymi nasadkami, ponieważ umożliwiają one swobodną cyrkulację gazów ze zmniejszoną utratą objętości w wyniku parowania.
- Do początkowych hodowli należy stosować format płytki 6-dołkowej, ponieważ wygodnie jest dołączyć potrójne powtórzenia i dodatkowe studzienki w przypadku wystąpienia zanieczyszczenia mikrobiologicznego.
- Wysiewaj komórki Sf1Ep 1-2 dni przed eksperymentem.
- Przygotować zawiesinę komórek Sf1Ep przez trypcynizację kultur podstawowych, jak opisano w kroku 2.7.
- Określić stężenie komórek Sf1Ep w zawiesinie za pomocą hemacytometru lub automatycznego licznika komórek.
- Dodać odpowiednią liczbę komórek Sf1Ep i pożywki Sf1Ep (Tabela 1) do każdej hodowli. Inkubować kultury w temperaturze 37 °C w standardowym inkubatorze do hodowli tkankowych z 5% stężeniem CO2 aż do użycia.
- Przygotuj TpCM-2 1 dzień przed eksperymentem.
UWAGA: TpCM-2 można przygotować i przechowywać w temperaturze -20 °C przez kilka miesięcy. Pożywkę należy rozmrozić i zrównoważyć w inkubatorze o niskiej zawartości tlenu na dzień przed eksperymentem.- Uzyskać sterylne roztwory dla składników TpCM-2 (Tabela 2) komercyjnie lub przygotować je z suchych odczynników i przefiltrować-wysterylizować. Roztwory należy przechowywać w temperaturze 4 °C przez okres do 2 miesięcy. Dostosuj pH buforu MOPS do 7,5 przed sterylizacją filtra; w przeciwnym razie składniki lub końcowy TpCM-2 nie muszą być regulowane pH.
UWAGA: Do przygotowania składników pożywki zaleca się stosowanie sterylnej wody destylowanej do hodowli tkankowych. - Połączyć odczynniki wymienione w Tabeli 2 w sterylnym pojemniku, dodając ditiotreitol (DTT) jako suchy proszek na końcu (w celu zminimalizowania jego utleniania). Zwiększ (lub zmniejsz) ilości każdego składnika, aby przygotować potrzebną ilość TpCM-2. Delikatnie wymieszaj i wysterylizuj pożywkę za pomocą jednostki filtrującej 0,22 μm.
- Poluzować pokrywkę kolby zawierającej TpCM-2. Wstępnie zrównoważyć pożywkę, umieszczając ją w słoiku beztlenowym (zaparzanym), opróżniając i ponownie napełniając trzykrotnie mieszaniną gazów 95% N2, 5% CO2 , a następnie napełniając mieszaniną gazów 1,5% O2, 5% CO2, balance N2 po ostatecznym opróżnieniu. Przykładowy system do przeprowadzania tego procesu wymiany gazowej jest przedstawiony na Rysunek 2.
- Szybko przenieść pożywkę do inkubatora trójgazowego ustawionego w taki sposób, aby zapewnić 1,5%O2, 5% CO2 i zrównoważyć atmosferę N2 w temperaturze 34 °C. Alternatywnie, słoik beztlenowy zawierający pożywkę może zostać szczelnie zamknięty po wymianie gazowej opisanej w ppkt 3.3.3 i przeniesiony do standardowego inkubatora.
- Uzyskać sterylne roztwory dla składników TpCM-2 (Tabela 2) komercyjnie lub przygotować je z suchych odczynników i przefiltrować-wysterylizować. Roztwory należy przechowywać w temperaturze 4 °C przez okres do 2 miesięcy. Dostosuj pH buforu MOPS do 7,5 przed sterylizacją filtra; w przeciwnym razie składniki lub końcowy TpCM-2 nie muszą być regulowane pH.
- Rano w dniu eksperymentu sprawdź kultury Sf1Ep za pomocą odwróconego mikroskopu. Upewnij się, że komórki są połączone i zlewają się w 5%-10%. Usunąć pożywkę w aseptyce.
- Przepłukać krótko studzienki przy użyciu małej objętości (0,2 ml do 2 ml, w zależności od wielkości naczynia) wstępnie zbalansowanego TpCM-2, usunąć płukanie i dodać odpowiednią ilość TpCM-2 (Tabela 1). Zrównoważyć płytki w 1,5%O2, 5% CO2 i zrównoważyć atmosferę N2 w temperaturze 34 °C przez 3-4 godziny, jak opisano wcześniej.
- Przenieść płytki do okapu z przepływem laminarnym i zaszczepić odpowiednią liczbą (Tabela 1) T. pallidum z zamrożonych wywarów lub preparatów trypsynizowanych ze świeżo zebranych kultur (jak opisano poniżej). Można również użyć świeżo przygotowanego lub zamrożonego bulionu zebranego w aseptyki od zakażonych królików13. Ponownie wyrównać płytki zgodnie z opisem w ppkt 3.3.3 i inkubować kultury w 1,5%O2, 5% CO2 i zrównoważyć atmosferę N2 w temperaturze 34 °C.
4. Zbieranie i przekazywanie kultur T. pallidum
UWAGA: Ponieważ większość T. pallidum w hodowli jest przyczepiona do powierzchni komórek Sf1Ep, konieczne jest oddzielenie treponemów od komórek ssaków, aby je odzyskać i uzyskać dokładne zliczenie organizmów. Takie "zbiory" i przejście do świeżych kultur odbywa się zwykle w 7 dniu hodowli. Opisana tutaj procedura dotyczy płytek 6-dołkowych; ilość użytego roztworu trypsyny-EDTA jest dostosowywana w górę lub w dół w zależności od wielkości kultury formatu17,19,27.
- W czasie zbiorów usuń kultury z inkubatora. Zbadaj warstwę komórek Sf1Ep w każdym dołku za pomocą mikroskopu z kontrastem z odwróconymi fazami i zarejestruj gęstość komórek (np. 80% konfluencji) i wygląd. Zwróć także uwagę na kolor TpCM-2; wskaźnik resazuryny często zmienia kolor z różowego na żółty w wyniku niższego pH.
- Odpipetować pożywkę z każdej studzienki do sterylnej stożkowej probówki o pojemności 15 ml, używając oddzielnych pipet dla każdej studzienki, aby zapobiec zanieczyszczeniu krzyżowemu. Przepłucz każdą studzienkę 0,35 ml wstępnie podgrzanego roztworu trypsyny-EDTA i dodaj płukanie do pożywki.
- Dodać kolejne 0,35 ml roztworu trypsyny-EDTA do każdego dołka i inkubować płytkę przez 5 minut w standardowym inkubatorze o temperaturze 37 °C; atmosfera o niskiej zawartościO2 nie jest wymagana przez ten krótki okres czasu.
- Sprawdź zaokrąglenie i oderwanie komórek Sf1Ep, co również koreluje z dysocjacją T. pallidum od komórek ssaków. Monitoruj ten proces za pomocą odwróconego mikroskopu i w razie potrzeby zapewnij dodatkowy czas lub roztwór trypsyny-EDTA. Proces dysocjacji jest ułatwiony przez delikatne stukanie w bok unieruchomionej płytki plastikowym stojakiem na probówki lub podobnym przedmiotem.
- Odpipetować zarezerwowaną pożywkę i spłukać do studzienki, aby odzyskać zdysocjowany T. pallidum i komórki. Należy zanotować całkowitą objętość pobraną w celu obliczenia plonu z jednej kultury.
- W większości eksperymentów należy przenieść określoną objętość zebranego T. pallidum na płytki hodowlane ze świeżymi komórkami Sf1Ep i TpCM-2. W takich przypadkach należy przenieść około 1/20 objętości kultury (np. 200 μl w przypadku 6-dołkowej kultury na płytce o pojemności 4 ml); Dostosuj tę głośność w górę lub w dół w zależności od tego, czy szczep T. pallidum rośnie szybko, czy wolno. Usunąć komórki Sf1Ep z inokulum przez odwirowanie przy 100 x g przez 5 minut, ale ten krok nie jest konieczny w przypadku rutynowych transferów.
- Natychmiast po zaszczepieniu płytek do eksperymentu, należy wymienić atmosferę w płytkach, stosując proces opróżniania i ponownego napełniania (krok 3.3.3). Inkubować płytki w temperaturze 34 °C w słoiku Brewer lub przenieść je do inkubatora trójgazowego.
- Wyliczyć T. pallidum za pomocą mikroskopii ciemnego pola przy użyciu komory liczącej Helber lub podobnego urządzenia, postępując zgodnie z instrukcjami producenta.
UWAGA: Komora Helbera to skalibrowane szkiełko podstawowe i szkiełko nakrywkowe, które znacznie poprawia dokładność i powtarzalność zliczania bakterii; Komora jest łatwa do dezynfekcji, czyszczenia i suszenia przy użyciu 70% etanolu i chusteczek papierowych i może być ponownie używana w nieskończoność. Idealnie byłoby, gdyby mikroskop ciemnego pola był wyposażony w obiektyw 40x i okulary 15x. Wykonaj zduplikowane liczenie dla każdej kultury i zapisz liczbę ruchliwych i nieruchliwych T. pallidum oraz wszelkie zmiany morfologiczne, które mają być zarejestrowane. Ilościowy PCR (qPCR) może być również stosowany w przypadkach, gdy dokładne określenie ilościowe i określenie ruchliwości nie jest wymagane17,24. - W eksperymentach, w których leczenie trypsyną może nie być pożądane (takich jak te badające zawartość białka T. pallidum), użyj pożywki dysocjacyjnej EDTA, aby zdysocjować T. pallidum i monowarstwę komórkową17,19.
UWAGA: Pożywka dysocjująca składa się z FBS, który został poddany dializie w stosunku do soli fizjologicznej buforowanej fosforanami (PBS) lub roztworu soli zasadowej Earle'a (EBSS) bez chlorku wapnia i chlorku magnezu w celu usunięcia kationów dwuwartościowych w uproszczonym podłożu hodowlanym T. pallidum (Tabela 2). Procedura ta może trwać dłużej (do 30 minut) lub powtarzać leczenie w celu pełnej dysocjacji.
5. Zamrażanie i przechowywanie kultur T. pallidum
UWAGA: T. pallidum może być przechowywany w nieskończoność w temperaturze -70 °C lub niższej, z żywotnością po rozmrożeniu zazwyczaj wynoszącą 50%-90%.
- Zamrozić kultury T. pallidum podczas zbiorów z dodatkiem 10% (v/v) glicerolu. Rozprowadzić glicerol w całym preparacie poprzez delikatne pipetowanie lub odwrócenie. Następnie rozprowadzić preparat w 1-2 ml porcji do zakręcanych fiolek zamrażających i natychmiast umieścić fiolki w zamrażarce o temperaturze -80 °C lub zamrażarce z płynnym roztworemN2.
- Aby rozpocząć hodowlę T. pallidum z zamrożonego bulionu, najpierw należy przygotować odpowiednie naczynia hodowlane zawierające komórki Sf1Ep i TpCM-2, jak opisano w sekcji 3. Szybko rozmrozić fiolkę zawierającą zamrożony bulion T. pallidum; Pomocne w tym zakresie jest ostrożne korzystanie z łaźni wodnej lub bloku grzewczego o temperaturze 37 °C.
- Następnie przenieść rozmrożony preparat do naczynia hodowlanego. Upewnij się, że stosunek objętości zamrożonego materiału do podłoża Tp-CM2 wynosi 1:5 lub więcej, aby zapewnić wystarczające rozcieńczenie glicerolu w celu wspierania przetrwania i wzrostu T. pallidum.
- Inkubować kulturę w warunkach mikrotlenowych przez 7 dni i przenieść do świeżych kultur, jak opisano w sekcji 4.
6. Generowanie izogenicznych klonów T. pallidum
UWAGA: Ta procedura jest szczegółowo opisana w poprzednim badaniu27.
- W typowym eksperymencie należy przygotować i wstępnie zrównoważyć dwie 96-dołkowe płytki z 1000 komórek Sf1Ep i 200 μl TpCM-2 na studzienkę, jak opisano w sekcji 3.
UWAGA: Wielokanałowy pipetor o pojemności 200 μl i kompatybilne sterylne jednorazowe zbiorniki na odczynniki znacznie upraszczają etapy inokulacji komórek Sf1Ep, wymiany pożywki i inokulacji. - Określić ilościowo stężenie T. pallidum w świeżo zebranym preparacie za pomocą mikroskopu ciemnego pola i komory Helbera (krok 4.8). Rozcieńczyć zawiesinę T. pallidum w TpCM-2 w celu otrzymania dwóch preparatów o stężeniach 10 treponemów/ml i 40 treponomów/ml; 10 ml każdego preparatu jest więcej niż wystarczające do zaszczepienia jednej 96-dołkowej płytki przy każdym rozcieńczeniu. Jako kontrolę przygotować 1 ml innego rozcieńczenia zawierającego 2 x 10³ T. pallidum/ml.
- Używając standardowej pipety jednokanałowej lub pipety wielokanałowej, zaszczepić 50 μl preparatu 10 T. pallidum/ml na studzienkę do jednej z przygotowanych 96 płytek dołkowych, pomijając dwie studzienki kontrolne. Powtórzyć ten proces z preparatem o stężeniu 40 T. pallidum/ml i drugą płytką. W dwóch studzienkach kontrolnych na każdej płytce zaszczepić rozcieńczenie 2 x 10³ T. pallidum/ml. W wyniku tego procesu powstaną płytki zawierające (średnio) 0,5 lub 2 T. pallidum na studzienkę, wraz z dołkami kontroli pozytywnej zawierającymi 100 T. pallidum.
UWAGA: Wydajność posiewu T. pallidum jest niska w tych warunkach, więc nawet studnie obsiane ~2 organizmami prawdopodobnie dadzą populacje klonów. - Zrównoważyć płytki mieszaniną gazów o niskiej zawartościO2 (etap 3.3.3) i inkubować je w słoiku browarnianym lub inkubatorze trzygazowym w temperaturze 34 °C.
- Po 7 dniach usunąć 100 μl pożywki z każdej studzienki hodowlanej i zastąpić ją 100 μl świeżej, zrównoważonej TpCM-2. Sprawdź żywotność i wzrost T. pallidum w studzienkach kontrolnych za pomocą mikroskopii ciemnego pola i liczenia, aby upewnić się, że warunki hodowli sprzyjają namnażaniu T. pallidum.
UWAGA: Należy pamiętać, aby użyć nowej końcówki pipety dla każdej studzienki, aby zapobiec zanieczyszczeniu krzyżowemu kultur klonalnych. - Po 14 dniach przenieść 50 μl supernatantu z każdej studzienki na świeże płytki przygotowane w sposób opisany w kroku 6.1.
- W razie potrzeby powtórz naprzemienne karmienie i pasażowanie.
- Monitoruj obecność T. pallidum w każdej studzience za pomocą mikroskopii ciemnego pola lub qPCR26.
UWAGA: Przy powolnym tempie wzrostu T. pallidum i koniecznej utracie organizmów podczas żerowania i przenoszenia, studzienki obsiane 0,5 lub 2 T. pallidum zazwyczaj nie są dodatnie żadną metodą do 28 dnia lub później. - Po zidentyfikowaniu dodatnich dołków trypsynizuj i przenieś te studzienki na płytki 24-dołkowe w celu dalszej ekspansji. Określ klonalność na podstawie przewagi pojedynczej sekwencji tprK i obecności pojedynczych sekwencji w miejscach, które są niejednorodne w rodzicielskim szczepie27.
Wyniki
W opisanych warunkach T. pallidum zazwyczaj zachowuje >90% ruchliwości i namnaża się logarytmicznie, przy czasie podwojenia od 33 h do 45 h, przez około 7 dni przed wejściem w fazę stacjonarną (Rysunek 3). W ciągu 1 tygodnia spirochety przechodzą około 4-5 podwojeń (Rysunek 4). Ponadto różne szczepy T. pallidum mogą rosnąć w różnym tempie. Szczepy z grupy SS14 T. pallidum wykazują tendencję do dłuższego czasu podwojenia niż szczepy z grupy Nichols17.
Dokarmianie kultur może przedłużyć czas ich hodowli o kilka dni, jednak warstwa komórek Sf1Ep często ulega zniszczeniu po tygodniu hodowli. Ponadto treponemy osiągają górną granicę zagęszczenia organizmów wynoszącą około 5 x 10⁷/mL. Kultury przenoszone w odstępach 7-dniowych zazwyczaj kontynuują mnożenie logarytmiczne z minimalną lub żadną fazą adaptacyjną. Organizmy w fazie stacjonarnej często stają się trudne do pasażowania.
Większość T. pallidum przyczepia się do komórek Sf1Ep. Jednak w supernatancie pozostaje wystarczająca ilość T. pallidum, aby można było okresowo pobierać próbki pożywki w celu sprawdzenia żywotności i mnożenia. Jeśli wymagane jest dokładne ilościowe oznaczenie, należy zmierzyć objętość pobranej pożywki, określić liczbę T. pallidum i dodać całkowitą liczbę usuniętych organizmów do końcowego przeliczenia podczas zbioru.
W poprzednich badaniach wydajność klonowania (liczba kultur dodatnich na zaszczepiony organizm) wynosiła 12,5% dla 2 zaszczepionych T. pallidum na studzienkę oraz 6,7% dla 0,5 zaszczepionych T. pallidum na studzienkę27. Zatem prawdopodobne jest, że każda dodatnia studzienka reprezentuje namnożenie pojedynczego organizmu przy obu tych dawkach inokulum. Niemniej jednak klonalność otrzymanych populacji musi zostać zweryfikowana poprzez badanie homogeniczności kultury w miejscach, które w kulturze macierzystej są heterogeniczne. Najbardziej rozstrzygającym sposobem wykazania, że kultura jest izogeniczna, jest sekwencjonowanie całego genomu27.
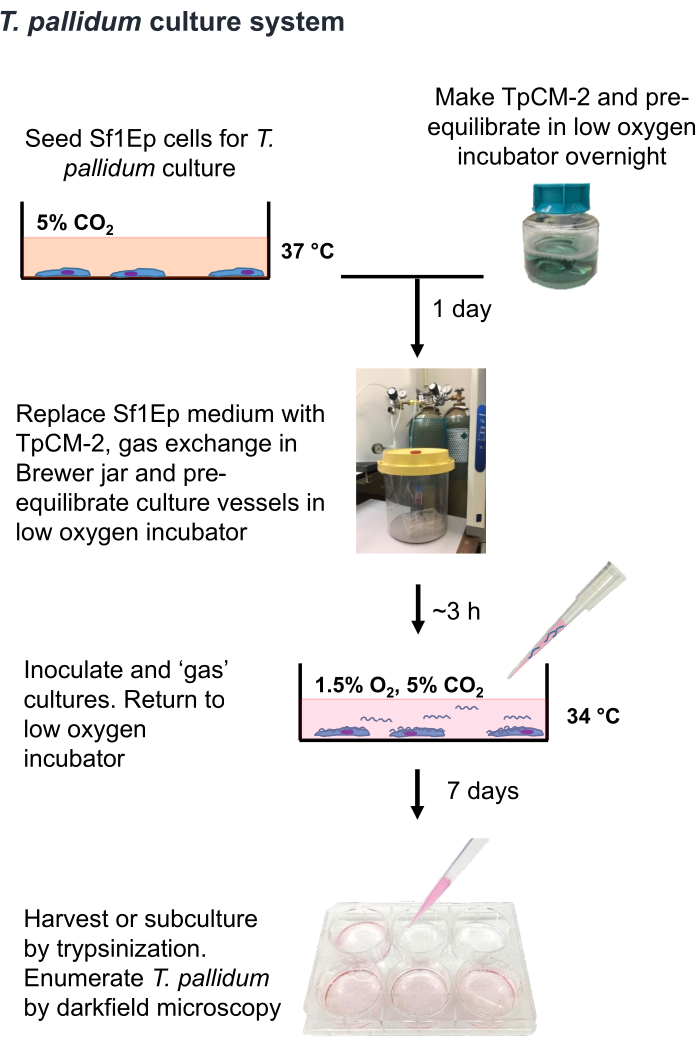
Rycina 1: Schemat procedury hodowli T. pallidum in vitro. Rycina ta została przedrukowana za zgodą Edmondsona i Norrisa (2021)19. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
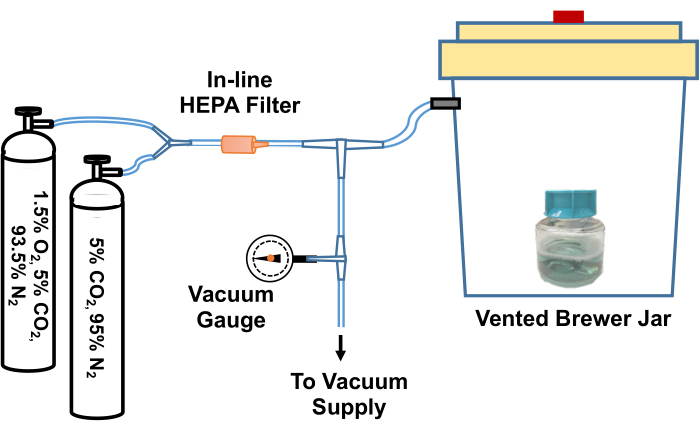
Rycina 2: Schemat systemu do równoważenia odczynników hodowli T. pallidum w środowisku o niskiej zawartości tlenu. Wylot słoika Brewera jest połączony za pomocą trójnika ze źródłem próżni (np. próżnią instalacyjną) oraz z butlami z niestandardowymi mieszankami gazów (5% CO2, reszta azot oraz 1,5% O2, 5% CO2, reszta azot). Przepływowy manometr próżniowy mierzy podciśnienie wytworzone w słoiku. W słoiku wytwarza się próżnię do około -58 kPa. Następnie opróżniony słoik jest powoli napełniany mieszankami gazów. Słoik Brewera jest napełniany trzykrotnie mieszanką 5% CO2, reszta azot przed końcowym odessaniem powietrza, a następnie napełniany mieszanką 95% N2, 5% CO2, 1,5% O2. Hodowle lub pożywki są następnie wyjmowane ze słoika i szybko przenoszone do inkubatora z niską zawartością tlenu. Alternatywnie, rurkę między słoikiem Brewera a pierwszym trójnikiem można szczelnie zacisnąć, odłączyć rurkę od trójnika i przenieść cały słoik Brewera do inkubatora w temperaturze 34 °C. Rycina ta została przedrukowana za zgodą Edmondsona i Norrisa (2021)19. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
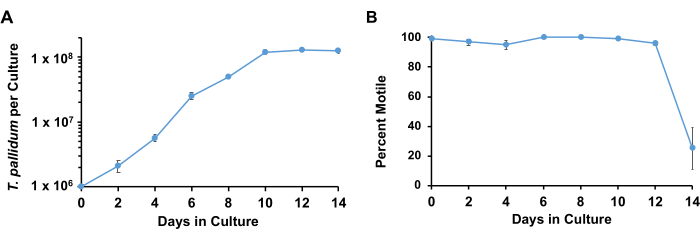
Rycina 3: Krzywe wzrostu T. pallidum hodowanych z komórkami Sf1Ep w podłożu TpCM-2. Równoległe hodowle w trzech powtórzeniach zaszczepiono T. pallidum. Próbki z powtórzeń pobierano w każdym punkcie czasowym; wyniki przedstawiają średnią + SEM dla tych hodowli. (A) Przedstawiono zmiany liczby T. pallidum na hodowlę oraz (B) procent ruchliwości. Rycina została opracowana za zgodą Edmondsona i wsp.18. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
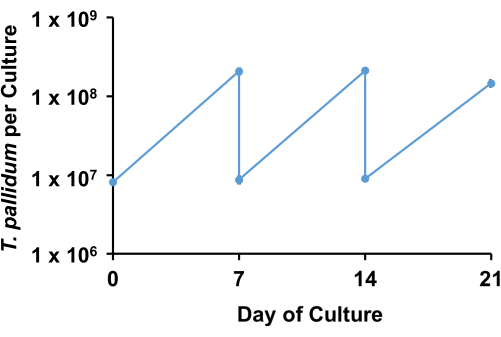
Rycina 4Przykład pasażowania in vitro hodowla *T. pallidum*szczep Nichols. Równolegle w trzech powtórzeniach wysiano hodowle z T. pallidum i pasażowano co tydzień, stosując rozcieńczenie 1:20. Wykres piłokształtny przedstawia liczbę T. pallidum na kulturę oraz liczba przeniesiona do nowych kultur w każdym punkcie czasowym. Wyniki przedstawiają średnią ± SEM dla trzech powtórzeń biologicznych. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Tabela 1: Objętość medium i stosunki wysiewu dla naczyń hodowlanych. Kliknij tutaj, aby pobrać tę tabelę.
Tabela 2: Pożywki do hodowli T. pallidum. Wszystkie pożywki po przygotowaniu należy wysterylizować przez filtrowanie. Pożywkę Sf1Ep można przechowywać w temperaturze 4 °C do dwóch miesięcy. Pożywkę TpCM-2 zazwyczaj przygotowuje się na jeden dzień przed użyciem. Pożywkę do dysocjacji należy podzielić na alikwoty i zamrozić. Kliknij tutaj, aby pobrać tę tabelę.
Dyskusja
System Sf1Ep-TpCM-2 jest pierwszą dostępną procedurą, która wspomaga ciągłą hodowlę in vitro T. pallidum. System jest złożony ze względu na ekstremalne wymagania wzrostowe tego organizmu: 1) złożone potrzeby żywieniowe ze względu na ograniczone zdolności biosyntetyczne; 2) słabo poznane zapotrzebowanie na małe ilości tlenu, pomimo wysokiej wrażliwości na reaktywne formy tlenu 9,10,16,36; oraz 3) obecna potrzeba obecności komórek Sf1Ep. Chociaż kuszące jest "pójście na skróty" w procedurze, zaleca się uważne przestrzeganie kroków, aż do osiągnięcia udanej długoterminowej hodowli przed wypróbowaniem modyfikacji. W miarę gromadzenia się dodatkowych informacji na temat wymagań metabolicznych T. pallidum możliwe może być rozwinięcie się stanów aksenicznych, które nie wymagają obecności komórek Sf1Ep. Jednak tempo wzrostu in vitro prawdopodobnie pozostanie powolne (z minimalnym czasem podwojenia wynoszącym od 33 godzin do 46 godzin, w zależności od szczepu)17,18, biorąc pod uwagę, że T. pallidum rozmnaża się w szacowanym czasie podwojenia wynoszącym od 30 godzin do 33 godzin, nawet podczas infekcji ssaków37,38. Podobnie jak w przypadku każdej hodowli bakteryjnej, zaleca się utrzymanie stad o niskim pasażu i przeprowadzenie eksperymentów na kulturach T. pallidum, które mają mniej niż 10 pasaży od tych stad, aby uniknąć "dryfu genetycznego" i związanych z nim zmian fenotypowych spowodowanych mutacjami.
Komórki Sf1Ep najwyraźniej dostarczają treponomom niezbędnych składników odżywczych lub aktywności enzymatycznej. Jednak zużywają również składniki odżywcze (takie jak glukoza i tlen) i mogą powodować warunki toksyczne, takie jak niskie pH 9,16,39. W związku z tym istnieje równowaga między posiadaniem wystarczającej ilości komórek Sf1Ep do wspierania namnażania T. pallidum a zapobieganiem przerostowi i toksyczności komórek ssaków. Wysoka liczba pasaży komórek Sf1Ep ma tendencję do szybszego wzrostu i czasami traci zdolność do wspierania namnażania T. pallidum. W związku z tym liczba pasaży Sf1Ep powinna być monitorowana, a zapasy komórkowe powinny być okresowo zastępowane preparatami mrożonymi o niskiej pasażowości. Obecność komórek Sf1Ep komplikuje również badanie właściwości T. pallidum, takich jak zawartość DNA, RNA i białek oraz aktywność enzymów. Usunięcie komórek króliczych jest możliwe do pewnego stopnia przy użyciu wielokrotnego wirowania na niskiej prędkości (100 x g przez 5 minut) lub bardziej efektywnie przy użyciu gradientów Percoll lub Hypaque40,41. Jednak metody wirowania gradientowego są na ogół skuteczne tylko w przypadku dużej liczby T. pallidum. Alternatywne metody rozmnażania T. pallidum ograniczają się do zakażenia zwierząt laboratoryjnych, takich jak króliki13,14. Takie podejście ma względy etyczne i staje się coraz bardziej kosztowne; jednak model królika jest bardzo przydatny do badania patogenezy T. pallidum i odpowiedzi immunologicznej gospodarza. Ponadto prawdopodobnie istnieją pewne różnice w ekspresji genów, wzroście lub zachowaniu T. pallidum podczas hodowli in vitro i infekcji królików27.
W chwili sporządzania niniejszego raportu system Sf1Ep-TpCM-2 został opracowany w co najmniej 6 grupach badawczych w Stanach Zjednoczonych i Europie i zaowocował 16 publikacjami na tematy od podstawowej biologii i genetyki T. pallidum po podatność na środki przeciwdrobnoustrojowe. Wartość hodowli in vitro w badaniu tego enigmatycznego patogenu prawdopodobnie wzrośnie wraz z szerszym zastosowaniem i przyszłymi ulepszeniami.
Oświadczenia
Autorzy nie mają do ujawnienia żadnych konfliktów interesów.
Podziękowania
Ta praca była wspierana przez grant R01 AI141958 z Narodowych Instytutów Zdrowia Stanów Zjednoczonych/NIAID. Fundatorzy nie odgrywali żadnej roli w projektowaniu badania, gromadzeniu i analizie danych, podejmowaniu decyzji o publikacji lub przygotowaniu manuskryptu.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 0,5 M EDTA, pH 8,0 | Sigma | E8008 | |
| 10x Earle' s Sole zbilansowane, bez Mg2+, Ca2+ | Gibco | 14155063 | |
| stożkowe sterylne jednorazowe probówki wirówkowe o pojemności 15 i 50 ml | Nie dotyczy | dotyczy | |
| 2 ml fiolki kriogeniczne | Corning | 430659 | |
| 6-dołkowe płytki do hodowli T. pallidum | Falcon | 353046 | Talerze muszą mieć pokrywki o niskim parowaniu. |
| 70% etanolu | Nie dotyczy | ||
| 75 cm2 kolby do hodowli tkankowych z wentylowanymi nakrętkami | Corning | 43061U | |
| 93,5% azotu, 5% CO2 i 1,5% tlenu do pożywki i kultur | N/A | N/A | |
| 95% azotu i 5% CO2 do pożywki wstępnej i kultur | N/A | DOTYCZY | |
| 96-dołkowe, klarowne, niskoparne, poddane hodowli tkankowej mikropłytki | Corning Falcon | 353072 | |
| Regulowana pipeta wielokanałowa o pojemności 200 ul | N/A | N/A | Opcjonalne, ale bardzo pomocne do klonowania |
| Woda klasy hodowlanej | Sigma | W3500 | |
| CMRL 1066 bez L-glutaminy lub czerwieni fenolowej | US Biological | C5900-03A | |
| CO2 do inkubatorów trójgazowych i inkubatorów do kultur tkankowych | N / A | N / A | |
| Kriogeniczny zbiornik do przechowywania komórek z ciekłym azotem | N / A | N / A | |
| D-glucose | Sigma-Aldrich | G6152 | |
| Jednorazowe jednostki filtrujące, 0,2 i mikro; m , > 100 ml pojemność | nie | dotyczy | |
| Pipety jednorazowe: 25 mL, 10 mL, 5 mL, zasysające | N/A | N/A | |
| DL-Dithiothreitol | Sigma-Aldrich | D9779 | |
| D-Mannitol | Sigma-Aldrich | M1902 | |
| DMSO (sterylna klasa hodowli komórkowej) | Sigma-Aldrich | D2650 | |
| Eagle' s MEM | Sigma-Aldrich | M4655 | |
| Płodowa surowica bydlęca, inaktywowana termicznie | Sigma-Aldrich | F4135 | Gorąco polecamy ten produkt. Należy przeprowadzić wstępną kontrolę pod kątem zgodności kultur T. pallidum w przypadku korzystania z innej marki lub numeru katalogowego. |
| Zamrażarka z możliwością utrzymywania temperatury -70 stopni Celsjusza; C lub -80 ° C | N | /A N/A | Do przechowywania T. pallidum można zamiast tego stosować przechowywanie ciekłym azotem |
| Medium zamrażające (podłoże Sf1Ep + 10% [v/v] DMSO) | N/A | /D | |
| Butle gazowe z odpowiednim wyposażeniem | N/A | N/A | |
| GasPak 150 wentylowany słoik anaerobowy (Brewer Jar) | Fisher Scientific | 11-816 | |
| Glicerol | N/A | N/A N/A | |
| Komory liczące Helber z orzeczeniami Thoma | Hawksley Sprzęt medyczny i laboratoryjny | Do oznaczania ilościowego T. pallidumhemocytometr | |
| Do oznaczania ilościowego komórek Sf1Ep | |||
| Przełącznik zbiornika inkubatora | NuAire | NU-1550 TankGuard Automatyczny przełącznik zbiornika inkubatora CO2 | Opcjonalny, ale bardzo pomocny w utrzymaniu odpowiednich warunków O2. |
| Mikroskop odwrócony z optyką z kontrastem fazowym | N/A | N/A | Do oglądania kultur komórkowych Sf1Ep |
| L-Glutamina | Sigma-Aldrich | G7513 | |
| L-histydyna | Sigma-Aldrich | H6034 | |
| MEM Aminokwasy endogenne | Gibco | 11140-050 | |
| Mikroskop z kondensorem ciemnego pola | N/A | N/A | Mikroskop powinien mieć obiektyw 40x i okulary 15x. |
| MOPS | Sigma-Aldrich | M3183 | |
| Wielokanałowy adapter do aspiratora | Integra | 155520 | Opcjonalny, ale przydatny do klonowania |
| NaHCO3 (7,5%) | Sigma-Aldrich | S8761 | |
| Azot do inkubatora trójgazowego | N/A | N/A | |
| Resazurin | Sigma-Aldrich | R7017 | |
| Sf1Ep (NBL-11) | Kolekcja kultur typu amerykańskiego | CCL-68 | |
| Pirogronian | soduSigma-Aldrich | S8636 | |
| Sterylny PBS (bez chlorku wapnia i chlorku magnezu) | Sigma-Aldrich | D8537 | |
| Sterylne zbiorniki na odczynniki, rozmiar 50 lub 100 ml | N/A | N/A | |
| T. pallidum próbka, mrożona lub świeża | z zakażenia królika lub hodowli in vitro | ||
| Inkubator do hodowli tkankowych utrzymywany w temperaturze 37 °; C, 5% CO2 | N/A | N/A | |
| Trójgazowy inkubator do hodowli tkankowych utrzymywany w temperaturze 34 ° C, 5% CO2, 1,5% O2 | Thermofisher | Heracell™ Inkubator CO2 trójgazowy VIOS 160i | Opcjonalnie; zamiast tego można użyć słoików beztlenowych (patrz Ref. 17) |
| Roztwór trypsyny-EDTA | Sigma-Aldrich | T4049 | |
| Źródło próżni (np. próżnia domowa), rurki próżniowe, wakuometr i złącza | N/A | N/A | |
| Woda, odpowiednia do hodowli komórkowych, sterylizowana filtrem, oczyszczona | Sigma-Aldrich | W3500 | Zalecany do przygotowania podłoża; zmniejsza zmienność kultur |
Bibliografia
- Implementing the global health sector strategies on HIV, viral hepatitis and sexually transmitted infections, 2022-2030: Report on progress and gaps. World Health Organization. , Available from: https://www.who.int/publications/i/item/9789240094925 2022-2030 (2024).
- Antal, G. M., Lukehart, S. A., Meheus, A. Z. The endemic treponematoses. Microbes Infect. 4 (1), 83-94 (2002).
- Norris, S. J., Paster, B. J., Smibert, R. M. Bergey's Manual of Systematic Bacteriology. 4, Springer. New York, NY. (2010).
- Lumeij, J. T., Mikalová, L., Šmajs, D. Is there a difference between hare syphilis and rabbit syphilis? Cross infection experiments between rabbits and hares. Vet Microbiol. 164 (1-2), 190-194 (2013).
- Knauf, S., et al. High prevalence and genetic diversity of Treponema paraluisleporidarum isolates in European lagomorphs. Microbiol Spectr. 12 (1), e0177423(2024).
- Šmajs, D., et al. Complete genome sequence of Treponema paraluiscuniculi, strain Cuniculi A: the loss of infectivity to humans is associated with genome decay. PLoS One. 6 (5), e20415(2011).
- Šmajs, D., Norris, S. J., Weinstock, G. M. Genetic diversity in Treponema pallidum: implications for pathogenesis, evolution and molecular diagnostics of syphilis and yaws. Infect Genet Evol. 12 (2), 191-202 (2012).
- Šmajs, D., Strouhal, M., Knauf, S. Genetics of human and animal uncultivable treponemal pathogens. Infect Genet Evol. 61, 92-107 (2018).
- Norris, S. J., Cox, D. L., Weinstock, G. M. Biology of Treponema pallidum: correlation of functional activities with genome sequence data. J Mol Microbiol Biotechnol. 3 (1), 37-62 (2001).
- Radolf, J. D., et al. Treponema pallidum, the syphilis spirochete: making a living as a stealth pathogen. Nat Rev Microbiol. 14 (12), 744-759 (2016).
- Schaudinn, F. R., Hoffman, E. Vorläufiger bericht über das Vorkommen für Spirochaeten in syphilitischen Krankheitsprodukten und bei Papillomen. Arb Gesundh Amt Berlin. 22, 528-534 (1905).
- Schaudinn, F., Hoffmann, E. Über Spirochaetenbefunde im Lymphdrüsensaft Syphilitischer. Deut Med Wochenschr. 31 (18), 711-714 (1905).
- Turner, T. B., Hollander, D. H. Biology of the treponematoses. World Health Organization. , (1957).
- Lukehart, S. A., Marra, C. M. Isolation and laboratory maintenance of Treponema pallidum. Curr Protoc Microbiol. , Chapter 12, Unit 12A.1 (2007).
- Fieldsteel, A. H., Cox, D. L., Moeckli, R. A. Cultivation of virulent Treponema pallidum in tissue culture. Infect Immun. 32, 908-915 (1981).
- Cox, D. L. Culture of Treponema pallidum. Meth Enzymol. 236, 390-405 (1994).
- Edmondson, D. G., Hu, B., Norris, S. J. Long-term in vitro culture of the syphilis spirochete Treponema pallidum subsp. pallidum. mBio. 9 (3), e01153-e01218 (2018).
- Edmondson, D. G., DeLay, B. D., Kowis, L. E., Norris, S. J. Parameters affecting continuous in vitro culture of Treponema pallidum strains. mBio. 12 (1), e03536-e03620 (2021).
- Edmondson, D. G., Norris, S. J. In vitro cultivation of the syphilis spirochete Treponema pallidum. Curr Protoc. 1 (2), e44(2021).
- Edmondson, D. G., Wormser, G. P., Norris, S. J. In vitro susceptibility of Treponema pallidum subsp. pallidum to doxycycline. Antimicrob Agents Chemother. 64 (10), e00979-e01020 (2020).
- Leimer, N., et al. A selective antibiotic for Lyme disease. Cell. 184 (21), 5405-5418 (2021).
- Haynes, A. M., et al. Efficacy of linezolid on Treponema pallidum, the syphilis agent: A preclinical study. EBioMedicine. 65, 103281(2021).
- Houston, S., et al. Identification and functional characterization of peptides with antimicrobial activity From the syphilis spirochete, Treponema pallidum. Front Microbiol. 13, 888525(2022).
- Tantalo, L. C., et al. Antimicrobial susceptibility of Treponema pallidum subspecies pallidum: an in-vitro study. Lancet Microbe. 4 (12), e994-e1004 (2023).
- Hayes, K. A., Dressler, J. M., Norris, S. J., Edmondson, D. G., Jutras, B. L. A large screen identifies beta-lactam antibiotics which can be repurposed to target the syphilis agent. NPJ Antimicrob Resist. 1 (1), 4(2023).
- Tantalo, L. C., Molini, B. J., Bose, M., Klausner, J. D., Giacani, L. In vitro isolation of Treponema pallidum subsp. pallidum from fresh and frozen needle aspirates of primary experimental syphilis lesions. Sex Transm Dis. 50 (3), 180-183 (2023).
- Edmondson, D. G., De Lay, B. D., Hanson, B. M., Kowis, L. E., Norris, S. J. Clonal isolates of Treponema pallidum subsp. pallidum Nichols provide evidence for the occurrence of microevolution during experimental rabbit infection and in vitro culture. PLoS One. 18 (3), e0281187(2023).
- Lin, M. J., et al. Longitudinal TprK profiling of in vivo and in vitro-propagated Treponema pallidum subsp. pallidum reveals accumulation of antigenic variants in absence of immune pressure. PLoS Negl Trop Dis. 15 (9), e0009753(2021).
- De Lay, B. D., Cameron, T. A., De Lay, N. R., Norris, S. J., Edmondson, D. G. Comparison of transcriptional profiles of Treponema pallidum during experimental infection of rabbits and in vitro culture: Highly similar, yet different. PLoS Pathog. 17 (9), e1009949(2021).
- Romeis, E., et al. Genetic engineering of Treponema pallidum subsp. pallidum, the syphilis spirochete. PLoS Pathog. 17 (7), e1009612(2021).
- Phan, A., Romeis, E., Tantalo, L., Giacani, L. In vitro transformation and selection of Treponema pallidum subsp. pallidum. Curr Protoc. 2 (8), e507(2022).
- Romeis, E., et al. Treponema pallidum subsp. pallidum with an artificially impaired TprK antigenic variation system is attenuated in the rabbit model of syphilis. bioRxiv. , 524629(2023).
- Fieldsteel, A. H., Becker, F. A., Stout, J. G. Prolonged survival of virulent Treponema pallidum (Nichols strain) in cell-free and tissue culture systems. Infect Immun. 18, 173-182 (1977).
- U.S. Department of Health and Human Services. Biosafety in Microbiological and Biomedical Laboratories (BMBL) 6th Edition. U.S. Department of Health and Human Services, Centers for Disease Control and Prevention, National Institutes of Health. , (2020).
- Norris, S. J., Miller, J. N., Sykes, J. A., Fitzgerald, T. J. Influence of oxygen tension, sulfhydryl compounds, and serum on the motility and virulence of Treponema pallidum (Nichols strain) in a cell- free system. Infect Immun. 22 (3), 689-697 (1978).
- Cox, C. D., Barber, M. K. Oxygen uptake by Treponema pallidum. Infect Immun. 10 (1), 123-127 (1974).
- Magnuson, H. J., Eagle, H. The minimal infectious inoculum of Spirochaeta pallida (Nichols strain), and a consideration of its rate of multiplication in vivo. Am J Syph. 32, 1-18 (1948).
- Cumberland, M. C., Turner, T. B. The rate of multiplication of Treponema pallidum in normal and immune rabbits. Am J Syph. 33, 201-211 (1949).
- Norris, S. J., Edmondson, D. G. Factors affecting the multiplication and subculture of Treponema pallidum subsp. pallidum in a tissue culture system. Infect Immun. 53, 534-539 (1987).
- Baseman, J. B., Nichols, J. C., Rumpp, O., Hayes, N. S. Purification of Treponema pallidum from infected rabbit tissue: resolution into two treponemal populations. Infect Immun. 10, 1062-1067 (1974).
- Hanff, P. A., Norris, S. J., Lovett, M. A., Miller, J. N. Purification of Treponema pallidum, Nichols strain, by Percoll density gradient centrifugation. Sex Transm Dis. 11, 275-286 (1984).
Przedruki i uprawnienia
