Niniejszy protokół opisuje pomiary pH w organoidach żołądkowych pochodzących z tkanek ludzkich za pomocą mikroelektrod do czasoprzestrzennej charakterystyki fizjologii wewnątrzświetlnej.
Artykuł metodologiczny
Profilowanie pH światła w trójwymiarowych organoidach przewodu pokarmowego za pomocą mikroelektrod
W tym artykule
Podsumowanie
Streszczenie
Optymalizacja i szczegółowa charakterystyka modeli organoidów przewodu pokarmowego wymaga zaawansowanych metod analizy ich środowiska świetlnego. W artykule przedstawiono wysoce powtarzalną metodę precyzyjnego pomiaru pH w świetle 3D ludzkich organoidów żołądkowych za pomocą mikroelektrod sterowanych mikromanipulatorem. Mikroelektrody pH są dostępne na rynku i składają się ze ściętych szklanych końcówek o średnicy 25 μm. W celu pomiarów mikroelektroda pH jest wprowadzana do światła organoidu (>200 μm), który jest zawieszony w Matrigel, podczas gdy elektroda referencyjna spoczywa zanurzona w otaczającym podłożu na płytce hodowlanej.
Używając takich mikroelektrod do profilowania organoidów pochodzących z ludzkiego żołądka, pokazujemy, że pH światła jest względnie stałe w każdej hodowli na poziomie ~7,7 ± 0,037 i że ciągłe pomiary można uzyskać przez minimum 15 minut. W przypadku niektórych większych organoidów pomiary ujawniły gradient pH między powierzchnią nabłonka a światłem, co sugeruje, że pomiary pH w organoidach można uzyskać z wysoką rozdzielczością przestrzenną. W poprzednim badaniu mikroelektrody z powodzeniem wykorzystano do pomiaru stężenia tlenu w świetle organoidów, co wykazało wszechstronność tej metody w analizach organoidów. Podsumowując, protokół ten opisuje ważne narzędzie do funkcjonalnej charakterystyki złożonej przestrzeni świetlnej w organoidach 3D.
Wprowadzenie
Organoidy - miniaturowe struktury wielokomórkowe wywodzące się z komórek macierzystych - zrewolucjonizowały naszą zdolność do badania fizjologii człowieka i zaczynają zastępować modele zwierzęce, nawet w ustawieniach regulacyjnych1. Od czasu pierwszego opisu organoidów jelitowych przez Sato i in. w 2009 roku, technologia organoidów stała się niezwykle popularna2. Wiele badań bardzo szczegółowo scharakteryzowało skład komórkowy i funkcję modeli organoidów3,4,5,6. Jednak przestrzeń świetlna tych wielokomórkowych struktur 3D pozostaje w dużej mierze niezdefiniowana7,8. Światło jest centralną jamą organoidów pochodzących z tkanek błony śluzowej, która jest otoczona wierzchołkowymi częściami spolaryzowanych komórek nabłonka. Ponieważ wydzielanie i wchłanianie komórkowe zachodzi głównie na wierzchołkowej powierzchni nabłonka, mikrośrodowisko świetlne organoidów jest kontrolowane przez te ważne procesy fizjologiczne. Obecnie używane modele organoidów wykazują różnice we wzorcach sygnalizacji komórkowej, ogólnej macierzystości, gradientach stężenia metabolitów i warunkach środowiskowych9. Zrozumienie fizjologii luminalnej organoidów jest zatem niezbędne do dokładnego modelowania funkcji i patologii narządów. Niestety, względna niedostępność światła znacznie utrudnia funkcjonalne analizy fizjologii światła w organoidach 3D10.
Możliwość badania profili pH jest szczególnie ważna w żołądku, który jest znany z tego, że ma najbardziej stromy gradient protonów w ciele, od około 1-3 w świetle, do prawie neutralnego w nabłonku11,12,13. Pozostaje znacząca luka w naszej wiedzy na temat utrzymania gradientu pH w żołądku w mikroskali oraz znaczenia modeli organoidowych w rekapitulacji tego dynamicznego środowiska w warstwie śluzu żołądkowego. Tradycyjne podejścia do analizy pH organoidów obejmowały stosowanie barwników wrażliwych na pH, które mogą być wskaźnikami fluorescencyjnymi lub kolorymetrycznymi. McCracken i in. zastosowali wstrzyknięcie światła SNARF-5F-ratiometrycznego wskaźnika pH do organoidów, aby przeanalizować spadek pH światła w odpowiedzi na leczenie histaminą. Takie barwniki mogą być włączane do pożywek hodowlanych, co pozwala na nieinwazyjne monitorowanie pH w czasie rzeczywistym. Barwniki wrażliwe na pH nie tylko wymagają skomplikowanych etapów kalibracji, które przyczyniają się do niskiej wiarygodności i dokładności pomiarów, ale takie barwniki mają również tendencję do działania w określonych zakresach wykrywania, które mogą nie być reprezentatywne dla pełnego zakresu pH w interesującym nas mikrośrodowisku14,15. Można jednak uznać za rozsądne stosowanie barwników wskaźnikowych do eksperymentów potwierdzających. Opracowano również nanoczujniki optyczne, które wykorzystują fluorescencyjne metody wykrywania pH oparte na optodach; Jednak takie techniki wykrywania wymagają obrazowania mikroskopowego i są również podatne na fotowybielanie, fototoksyczność, a także stronniczość obrazowania16,17. Dodatkowo, Brooks i in. mają wydrukowane w 3D płytki wielodołkowe zawierające mikroelektrody, na których można platerować organoidy18. Takie podejście nie pozwala jednak na pomiary bezpośrednio w świetle organoidu.
Pomiary pH oparte na elektrodach mogą osiągnąć większą dokładność w porównaniu z innymi metodami, a także zapewnić monitorowanie pH w czasie rzeczywistym. Ponadto elektrody pH zamontowane na mikromanipulatorach pozwalają na uzyskanie doskonałej rozdzielczości przestrzennej pomiarów pH, ponieważ precyzyjnie można kontrolować położenie końcówki elektrody. Umożliwia to najwyższą możliwą elastyczność i powtarzalność w analizach modeli organoidów. Zastosowane tutaj elektrody to zminiaturyzowane mikroelektrody pH, które działają w oparciu o dyfuzję protonów przez selektywne szkło pH, które otacza cienki drut platynowy. Mikroelektroda jest podłączona do zewnętrznej elektrody referencyjnej Ag-AgCl, a następnie podłączona do miliwoltomierza o wysokiej impedancji. Potencjał elektryczny między dwiema końcówkami elektrod zanurzonych w tym samym roztworze będzie odzwierciedlał pH roztworu19. Takie systemy mikroprofilowania były wykorzystywane w analizie metabolicznej biofilmów20,21, glony planktonowe22, próbki ludzkiej plwociny23, a nawet w sferoidach mezenchymalnych komórek macierzystych24. Zarówno nasze laboratorium, jak i Murphy i wsp. używali wcześniej mikroelektrod O2 sterowanych mikromanipulatorem do oceny stężenia tlenu w przestrzeniach świetlnych organoidów. Murphy i in. połączyli tę metodę z modelowaniem matematycznym, aby ujawnić gradient tlenu w swoich sferoidach. Nasza grupa była w stanie znaleźć obniżony poziom tlenu w organoidach żołądka pochodzących z tkanek w porównaniu z otaczającą macierzą zewnątrzkomórkową25.
Tutaj udostępniamy szczegółową metodę ręcznego profilowania pH światła przez mikroelektrody w sferycznych organoidach przewodu pokarmowego, która umożliwi lepsze zrozumienie fizjologiczne ich złożonego mikrośrodowiska świetlnego. Przewidujemy, że technika ta nada nowy wymiar eksploracji fizjologii organoidów poprzez pomiary poziomów pH w czasie rzeczywistym w wysokiej rozdzielczości w mikroskali. Co więcej, poniższy protokół można łatwo dostosować do analizyO2, N2O, H2, NO, H2S, redoks i temperatury w różnych typach modeli organoidów. Profilowanie fizjologiczne służy jako cenne narzędzie do optymalizacji warunków hodowli organoidów w celu lepszego naśladowania środowisk in vivo, zwiększając w ten sposób znaczenie i użyteczność modeli organoidów w badaniach biomedycznych.
Protokół
Ten protokół wymaga organoidów 3D o średnicy co najmniej 200 μm, które mają wyraźne światło i które są osadzone w sztucznej macierzy zewnątrzkomórkowej (ECM, np. Matrigel). Ludzkie tkanki żołądka do wyprowadzenia organoidów uzyskano za zgodą Instytucjonalnej Komisji Rewizyjnej Uniwersytetu Stanowego Montana i świadomą zgodą pacjentów poddawanych endoskopii górnego odcinka kręgosłupa w Bozeman Health (protokół # 2023-48-FCR, do DB) lub jako próbki zwolnione z resekcji żołądka całego żołądka lub rękawa z National Disease Research Interchange (protokół #DB062615-EX). Informacje na temat linii organoidów i numerów pasaży wykorzystanych w tym badaniu przedstawiono w Tabeli 1, a skład pożywki wymieniono w Tabeli 2. Zapoznaj się z wcześniej opublikowanymi protokołami generowania i utrzymywania linii organoidów przewodu pokarmowego6,26,27.
1. Przygotowanie ludzkich organoidów żołądkowych do profilowania pH
- Inicjuj i utrzymuj hodowle organoidów żołądkowych przy użyciu standardowych protokołów. Utrzymać organoidy na płytkach 24-dołkowych w 500 μl pożywki ekspandującej na basenik (tabela 2). Pasaż zakładał linie organoidowe co 5-7 dni, przenosząc do naczynia ze szklanym dnem o średnicy 35 mm w ramach przygotowań do eksperymentów z profilowaniem pH.
UWAGA: Hodowle organoidów do naszych eksperymentów pochodzą z preparatów gruczołów żołądkowych, które są uzyskiwane z dorosłej tkanki, jak opisano powyżej. Używamy metody trawienia tkanek kolagenazy, aby wyizolować te gruczoły przed ich zawieszeniem w ECM, jak opisano wcześniej25,28,29. - Z aktywnie rosnących kultur organoidów w przejściach 1-15 wybierz studzienki, które zawierają co najmniej 100 organoidów (około 2 milionów komórek) o średnicach od 200 do 700 μm do przeniesienia i ekspansji na 3,5 mm szalkach Petriego.
- Przygotowując organoidy do posiewu (kroki 1.4-1.8), pozwól podwielokrotności macierzy zewnątrzkomórkowej (ECM) rozmrozić się na lodzie przez co najmniej 45 minut. Utrzymuj ECM na lodzie przez cały czas trwania tego protokołu, aby zapobiec żelowaniu. Wstępnie podgrzej płytki do hodowli komórkowych, umieszczając je w inkubatorze o temperaturze 37 °C, 5% CO2 .
- Usuń pożywkę z dołków i zbierz kultury organoidów żołądkowych, pipetując lodowaty PBS na każdą kroplę ECM i drapiąc żel końcówką pipety P1000. Odpipetować PBS z fragmentami ECM zawierającymi organoidy do stożkowej probówki o pojemności 15 ml.
- Odwirować probówkę o stężeniu 200 × g w temperaturze 4 °C przez 5 minut. Fragmenty ECM zawierające organoidy będą widoczne jako warstwa na dnie probówki. Ostrożnie odessać supernatant i odpipetować 350 μl 0,25% trypsyny-EDTA do każdej probówki, delikatnie mieszając, pipetując w górę i w dół. Inkubować probówki w łaźni wodnej o temperaturze 37 °C przez 2-5 minut.
- Po inkubacji z trypsyną-EDTA, dodać 600 μl lodowatego DMEM z penicyliną/streptomycyną do każdej probówki i energicznie pipetować w górę i w dół co najmniej 40 razy. Odwirować przy 200 × g w temperaturze 4 °C przez 5 minut. Zassać supernatant. Aby skonfigurować kultury do pomiarów pH, ponownie zawiesić osad komórkowy w lodowatym, płynnym ECM w stosunku 1:4 v/v osadu organoidowego do ECM w celu posiewu.
- Dla każdej próbki należy umieścić na płytce 40 μl płynnego ECM zawierającego organoidy/fragmenty organoidów w cienkiej poziomej linii wzdłuż średnicy naczynia ze szklanym dnem o średnicy 35 mm.
UWAGA: Dozowanie żelu na płytkę w linii, a nie w okrągłej kropelce, umożliwia łatwiejszy dostęp do poszczególnych organoidów poprzez rozrzedzenie kultury. - Pozostawić żel do polimeryzacji przez 15-30 minut, a następnie ostrożnie dodać 2 ml organoidowej pożywki ekspanderowej do płytki, pipetując wzdłuż krawędzi dołka, aby uniknąć naruszenia żelu.
- Wymieniaj nośniki co drugi dzień. Odczekaj 4-8 dni, aby co najmniej 10 organoidów wyrosło do minimalnej średnicy 400 μm.
- Aby przystąpić do eksperymentu z profilowaniem pH, upewnij się, że każda kultura zawiera co najmniej 10 organoidów, które spełniają następujące kryteria: średnica >200 μm, zdrowy wygląd (niewiele lub brak ciemnego materiału widocznego w organoidach obserwowanych za pomocą mikroskopu jasnego pola) i nie jest przepełniony innymi organoidami.
2. Rozpakowywanie i kalibracja mikroelektrod
UWAGA: Aby umożliwić pomiary w mikroskali, oprócz mikroelektrody czujnika pH, zamiast używać zintegrowanej (a więc większej) konstrukcji. Zarówno mikroelektroda pH, jak i elektroda referencyjna muszą być przechowywane w stanie mokrym. Nie dopuszczaj do wystawienia na działanie powietrza jednorazowo dłużej niż 10 minut. Określ odpowiedni rozmiar końcówki do danego zastosowania. W tym przypadku użyliśmy potencjometrycznej mikroelektrody pH o średnicy fazowanej końcówki 25 μm.
- Trzymając mikroelektrodę nadal w rurce ochronnej, sprawdź wzrokowo końcówkę pod kątem uszkodzeń.
- Podłącz elektrodę odniesienia do elektrody pH za pomocą złącza. Następnie podłącz mikroelektrodę do amplifier, a amplifier do uziemionego komputera z oprogramowaniem za pomocą USB (Rysunek 1A).
- Napełnij dwie stożkowe probówki o pojemności 50 ml 2/3 70% etanolem i dejonizowanymH2O(diH2O). Umieść mikroelektrodę i elektrodę odniesienia w rurce diH2O, upewniając się, że obie końcówki wydają się zanurzone co najmniej 1 cm w cieczy.
UWAGA: Do tego i podobnych kroków można również użyć wysokich zlewek. - Pozwól elektrodom zrównoważyć się przez ~10 min.
UWAGA: Na tym etapie procedurę można również wstrzymać i wznowić później, ponieważ elektrody mogą być przechowywane w diH2O. - Gdy elektrody się równoważą, otwórz oprogramowanie (czerwona ikona) na stacji roboczej komputera. Na karcie Ustawienia upewnij się, że pole obok mikroelektrody jest zaznaczone, co oznacza, że jest ona prawidłowo podłączona i rozpoznawana przez oprogramowanie. Kliknij Rozpocznij eksperyment w lewym górnym rogu okna i wprowadź żądaną nazwę pliku oraz miejsce docelowe. W oknie Ustawienia kalibracji czujnika i eksperymentu kliknij opcję Wyczyść wszystkie punkty, aby przygotować oprogramowanie do nowej kalibracji.
- Napełnij dwie stożkowe probówki o pojemności 50 ml w proporcji 2/3 kalibracyjnymi o pH 4,01 i 9,21. Delikatnie osusz rurkę ochronną i elektrodę odniesienia delikatną chusteczką laboratoryjną.
- Zaczynając od elektrod w buforze pH 4,01, wprowadź 4,01 jako znaną wartość pH. Po ustabilizowaniu się odczytu mV wybierz dodaj punkt. Upewnij się, że sygnał jest stabilny przy ~380 mV. Po dodaniu punktu umieścić obie elektrody z powrotem w diH2O do wypłukania, a następnie ponownie osuszyć.
- Powtórz poprzedni krok z buforem 9.21 i kliknij dodaj punkt, gdy sygnał jest stabilny (~83 mV). Sprawdzić, czy mikroelektrody reagują liniowo w zakresie pH od 4,01 do 9,21; Dlatego konieczna jest tylko dwupunktowa krzywa kalibracyjna. Upewnij się, że wynikowa linia między tymi punktami ma ujemne nachylenie 50-70 mV/jednostkę pH. Kliknij Zapisz i użyj kalibracji.
UWAGA: Jesteś teraz gotowy do rozpoczęcia rejestrowania pomiarów30.
3. Profilowanie pH ludzkich organoidów żołądkowych
UWAGA: Następujący protokół jest opisany dla praworęcznego użytkownika. UWAGA: Wyłącz wszystkie opcje oszczędzania energii na komputerze, ponieważ trwające pomiary zostaną zakłócone, jeśli komputer przejdzie w tryb uśpienia.
- Zamontuj statyw pierścieniowy z zaciskiem po lewej stronie mikroskopu stereoskopowego, aby przytrzymać elektrodę odniesienia. Umieść mikromanipulator przymocowany do ciężkiego stojaka laboratoryjnego po prawej stronie mikroskopu (Rysunek 1A).
- Ostrożnie wyjmij mikroelektrodę z etui ochronnego, kładąc ją płasko na stole i ściągając obudowę szybkim, szybkim ruchem.
UWAGA: Mikroelektrody są niezwykle delikatne i należy uważać, aby końcówka nie stykała się ze sztywnym, twardym materiałem. Aby uzyskać najlepsze wyniki, wykonuj pomiary na solidnym blacie stołu, wolnym od urządzeń, które mogłyby powodować wibracje stołu lub niepożądany ruch elektrod. - Zamontuj mikroelektrodę na mikromanipulatorze i ustaw stereoskop i mikromanipulator w taki sposób, aby mikroelektroda mogła przesuwać się w kierunku szalki hodowlanej bez uderzania w obiektyw lub inne części mikroskopu.
- Umieść szalkę hodowlaną zawierającą organoidy tak, aby mieć odpowiednią wizualizację pierwszego organoidu, który ma być profilowany (Rysunek 1B).
- Lekko przymocuj elektrodę odniesienia do clamp na stojaku pierścieniowym po lewej stronie stereoskopu. Ustawić elektrodę odniesienia tak, aby spoczywała w medium otaczającym ECM. Należy upewnić się, że nie zakłóci to działania organoidów podczas przesuwania stolika między pomiarami.
- Patrząc bezpośrednio na płytkę hodowlaną (nie do mikroskopu), przesuwaj końcówkę mikroelektrody, aż zostanie wystarczająco zanurzona w pożywce. Na karcie Rejestrator danych w oprogramowaniu kliknij przycisk Start (pojedynczy trójkąt skierowany w prawo), aby rozpocząć nagrywanie. Upewnij się, że pole wyboru Skalibrowane jest zaznaczone po prawej stronie ekranu.
UWAGA: Odczekaj ~10 s na ustabilizowanie się każdego odczytu przed przejściem do następnego regionu. - Przed wejściem do ECM upewnij się, że końcówka elektrody jest widoczna pod mikroskopem i że jest ustawiona tak, aby przesuwała się liniowo w kierunku pierwszego interesującego organoidu. Powoli wsuń elektrodę do żelu, nie kontaktując się z żadnymi organoidami. Zapisz co najmniej trzy odczyty pH i oblicz średnią.
- Ustawić mikroelektrodę tak, aby była przygotowana do przesuwania się w kierunku pierwszego organoidu zainteresowania wzdłuż osi prostopadłej do powierzchni. Pozwól, aby elektroda zrobiła niewielkie wgłębienie na powierzchni nabłonka bez penetracji (Rysunek 1C).
UWAGA: Ten krok zapewni również wgląd w to, czy organoid pozostanie na swoim miejscu, czy też może poruszać się swobodniej w ECM. - Jednym szybkim ruchem wsuń mikroelektrodę do organoidu. Jeśli organoid porusza się wokół mikroelektrody lub oddala się, spróbuj ustawić nieco inny kąt lub cofnij go o inny organoid lub plastikową obwódkę otaczającą szklane dno naczynia. Zmierz pH światła (trzy indywidualne razy) 10 różnych organoidów dla każdego warunku doświadczalnego. Po zakończeniu rejestrowania pomiarów kliknij kwadratowy przycisk Stop.
UWAGA: Oszacuj średnicę organoidu, aby zdecydować, jak daleko przesunąć elektrodę do światła organoidu, uważając, aby jej nie przebić. Aby zwiększyć dokładność, zmierz średnicę za pomocą oprogramowania kamery mikroskopu, jeśli jest dostępne. UWAGA: Jeśli końcówka mikroelektrody zostanie zauważalnie pokryta zanieczyszczeniami po jednym lub wielu pomiarach, przed kontynuowaniem umyj mikroelektrodę w roztworze dysocjacyjnym komórek, PBS, EtOH, a następnie diH2O.
4. Profilowanie zmotoryzowane (opcjonalnie)
UWAGA: Ta opcja wymaga mikromanipulatora, który jest zamontowany na mechanicznym stopniu silnika, który jest ostatecznie kontrolowany przez oprogramowanie komputerowe za pomocą sterownika silnika31.
- Otwórz oprogramowanie do profilowania (brązowa ikona) i rozpocznij nowy eksperyment na karcie Profilowanie.
- Ustawienia osi z automatycznie rozpoznają silnik, gdy aparat silnikowy jest prawidłowo podłączony.
UWAGA: W tej konfiguracji ruch w kierunkach x i y jest nadal kontrolowany ręcznie. - Znajdź kartę Interakcja z profilem30. Przed naciśnięciem przycisku start upewnij się, że możliwe jest szybkie przejście do patrzenia na okular mikroskopu, aby zapewnić wejście organoidu z żądanej odległości. Przejdź do ustawień profilu i wykonaj następujące czynności:
- Wskaż, że odległość początkowa wynosi 0 μm.
UWAGA: Jeśli powłoka nabłonkowa jest szczególnie twarda na danym organoidzie, organoid może zostać odepchnięty lub zdeformowany zamiast przebić. W przypadku parcia kontynuuj przesuwanie elektrody, ale zanotuj punkt, w którym następuje wejście, ponieważ oprogramowanie nie może tego zarejestrować automatycznie. - Oceniając rozmiar profilowanego organoidu, należy wskazać odległość końcową, która nie przekracza 3/4 drogi przez szacowaną średnicę organoidu.
UWAGA: Ten konkretny krok ma na celu zapobieżenie uszkodzeniu końcówki elektrody. - Wskaż żądany rozmiar kroku — 100 μm, jak pokazano na rysunku Rysunek 2E. Upewnij się, że minimalny rozmiar kroku odpowiada rozmiarowi końcówki elektrody (np. 25 μm dla końcówki elektrody o pH 25 μm).
- Wskaż bezpieczną pozycję, do której silnik przywróci końcówkę elektrody między profiles.
UWAGA: Powinna to być wygodna wysokość nad próbką (na zewnątrz organoidu), na której czujnik można bezpiecznie przesuwać na boki w kierunkach x i y za pomocą ręcznego mikromanipulatora. Pozostaw kąt czujnika na domyślnym ustawieniu. - Aby elektroda mogła się zrównoważyć, należy wskazać co najmniej 3 s w polu Poczekaj przed pomiarem (środkami).
- Ustaw okres(y) pomiaru na co najmniej 1 s. Pomiary z tego okresu zostaną uśrednione.
UWAGA: W przypadku wykonywania pomiarów w środowisku o wysokim poziomie szumu elektrycznego pomocne może być wskazanie dłuższego okresu. - Ustaw opóźnienie między sesjami na co najmniej 1 s.
- Ustaw preferowaną liczbę powtórzeń, które mają być mierzone na każdej głębokości.
- Rozpocznij rejestrowanie pomiarów, naciskając przycisk Start.
- Wskaż, że odległość początkowa wynosi 0 μm.
5. Czyszczenie elektrod
- Umieść elektrodę, która ma być czyszczona, z powrotem w rurce ochronnej.
- Po pomiarach przepłukać elektrody diH2O.
- Przepłucz elektrody 70% etanolem przez kilka minut.
- Przepłukać elektrody buforem o pH 4,01.
- Przed przystąpieniem do pomiarów ponownie przepłukać elektrody za pomocą diH2O.
6. Przechowywanie elektrod
UWAGA: Obie elektrody powinny być przechowywane w temperaturze pokojowej w miejscu o niskiej aktywności, zabezpieczonym przed przypadkowym uszkodzeniem.
- Po użyciu mikroelektrody pH ostrożnie wsuń ją poziomo z powrotem do rurki ochronnej (przesuwając się wzdłuż stołu laboratoryjnego w celu poziomego podparcia).
- Trzymając mikroelektrodę pionowo (końcówka skierowana do góry), delikatnie napełnij rurkę ochronną sterylną wodą. Zatkaj rurkę ochronną korkiem, z którym dostarczono elektrodę. Upewnij się, że wszelkie otwory w rurze ochronnej są uszczelnione taśmą izolacyjną. Przechowywać w nietłukącym pudełku do następnego użycia.
UWAGA: Zaleca się korzystanie z oryginalnego pudełka, w którym dostarczono elektrody, ponieważ będzie ono zawierało wkładki ochronne zaprojektowane tak, aby utrzymać elektrody na miejscu podczas przechowywania. - Elektrodę odniesienia należy przechowywać w zlewce lub cylindrze z podziałką wypełnionym roztworem 3M KCl. Przykryj zlewkę/cylinder z podziałką parafilmem, aby zapobiec parowaniu roztworu.
UWAGA: W przypadku korzystania z cylindra z podziałką zaleca się przymocowanie go do stołu laboratoryjnego za pomocą taśmy, aby zapobiec przypadkowemu ruchowi.
7. Wtrysk czerwieni metylowej (opcjonalnie)
UWAGA: Czerwień metylowa jest barwnikiem kolorymetrycznym, który może być użyty do walidacji pomiarów mikroelektrod.
- Napełnij szklaną kapilę o pojemności 2 μl sterylnym olejem mineralnym, załaduj ją do automatycznego wstrzykiwacza nL sterowanego mikromanipulatorem, a następnie napełnij go roztworem zawierającym 0,02% czerwieni metylowej i 150 mM HCl.
UWAGA: Roztwór powinien być czerwono-różowy w kapilarze ze względu na kwasowość HCl. - Wstrzyknąć organoidy o średnicy co najmniej 300 μm z 9,2 μl roztworu25.
- Rejestruj zdjęcia lub nagrywaj filmy za pomocą kamery przystosowanej do mikroskopu stereoskopowego (Rysunek 2G).
Wyniki
Wydzielanie kwasu jest kluczową funkcją ludzkiego żołądka. Jednak w jakim stopniu wydzielanie kwasu można modelować w organoidach, wciąż pozostaje kwestią sporną6,32,33,34. Opracowaliśmy zatem opisany powyżej protokół, aby dokładnie zmierzyć produkcję kwasu w organoidach żołądkowych. Co istotne, wykorzystaliśmy niestymulowane organoidy pochodzące z dorosłych komórek macierzystych, hodowane w standardowych warunkach ekspansji i poddane kilkukrotnym pasażom, co prowadziło do utraty komórek okładzinowych35. W związku z tym w naszym systemie modelowym nie oczekiwano obecności wydzielających kwas komórek okładzinowych ani aktywnego uwalniania kwasu.
W naszych eksperymentach wykorzystaliśmy organoidy o średnicach od 200 µm do 1 000 µm wysiane na szalkach z szklanym dnem. W pierwszej kolejności przetestowaliśmy dwa różne rozmiary końcówek mikroelektrod — pH-25 o średnicy końcówki 25 µm oraz pH-50 o średnicy końcówki 50 µm. Jak pokazano na Rysunku 2A, nie stwierdzono istotnych różnic między pomiarami uzyskanymi przy użyciu mniejszych i większych końcówek. Co ciekawe, pH bazowe w organoidach miało tendencję do bycia lekko zasadowym, wynosząc ~pH 8. Następnie, używając końcówki pH-25 o średnicy 25 µm, oceniliśmy zmienność pH w świetle (luminale) dziesięciu różnych organoidów utrzymywanych na tej samej płytce hodowlanej, wykonując trzy pomiary z każdego organoidu (Rysunek 2B). W obrębie jednej płytki pH w świetle poszczególnych organoidów wykazywało jedynie niewielkie, nieistotne statystycznie różnice (8,16 ± 0,12; p ≥0,0445-0,99) (Rysunek 2B). Porównaliśmy również pomiary pH wewnątrzświetlnego w pięciu różnych liniach organoidów o numerach pasaży od 3 do 16 (Rysunek 2C). Ponownie stwierdziliśmy spójne pomiary pH w obrębie każdej hodowli, ale znaczną zmienność pomiędzy liniami organoidów. Jednakże pH w świetle zazwyczaj utrzymywało się w zakresie od pH 7,3 do pH 8,2, w obrębie jednego rzędu wielkości, i nie zaobserwowano wyraźnego trendu dla średniego pH przy porównywaniu wczesnych i późnych numerów pasaży (Rysunek 2C). Następnie zbadaliśmy, czy pH w świetle organoidu jest bezpośrednio powiązane z pH pożywki do ekspansji organoidów i macierzy zewnątrzkomórkowej (ECM). Porównanie pożywki, ECM otaczającej organoidy oraz światła organoidu ujawniło istotne różnice w pH, przy czym pH w świetle organoidów było niższe niż pH ECM, a pH ECM było niższe niż pH otaczającej pożywki do ekspansji organoidów (Rysunek 2D), co sugeruje, że pH w świetle organoidów jest fizjologicznie istotne, a nie bezpośrednio determinowane przez środowisko hodowlane. W sześciu niezależnych eksperymentach zmierzyliśmy średnie pH w świetle, które było bliskie neutralnemu i wynosiło 7,13 ± 0,09.
Do pomiarów pH w świetle organoidu z większą rozdzielczością przestrzenną wykorzystano zmotoryzowany mikromanipulator. Podejście to jest zasadne w przypadku konieczności zarejestrowania gradientów pH lub innych gradientów w wypełnionym śluzem świetle organoidu29. Rysunek 2E przedstawia dwie reprezentatywne serie pomiarów pH w dużych organoidach (średnica >1 000 µm), wskazując punkt wejścia do każdego organoidu i kończąc na głębokości ~800 µm. Ponieważ dwa analizowane organoidy nie miały tej samej średnicy, pomiary nie są bezpośrednio porównywalne. Niemniej jednak wykazano istnienie niewielkiego gradientu pH o wartości Δ0,6 pomiędzy powierzchnią nabłonkową a głębszym światłem organoidu (Rysunek 2E). Aby ocenić możliwość wykonywania pomiarów pH w organoidach w czasie, co pozwoliłoby na pomiar odpowiedzi na leczenie w czasie rzeczywistym, rejestrowano pH wewnątrzświatlowe w reprezentatywnym organoidzie przez około 20 min; stwierdzono, że odczyt pozostawał wysoce spójny po początkowym okresie adaptacji (Rysunek 2F). W celu walidacji pomiarów pH w świetle za pomocą niezależnej metody zastosowano pH-czuły barwnik kolorymetryczny (czerwień metylową), który wstrzyknięto do światła organoidu przy użyciu nanolitrowego autowtryskiwacza zamontowanego na mikromanipulatorze (Rysunek 2G). Żółte zabarwienie barwnika potwierdziło, że pH w świetle organoidu wynosiło >6,2, co jest zgodne z pomiarami mikroelektrodą, które wykazały pH bliskie obojętnemu. Podsumowując, te reprezentatywne wyniki ilustrują wykonalność i powtarzalność pomiarów pH z wykorzystaniem mikroelektrod w kulturach organoidów.
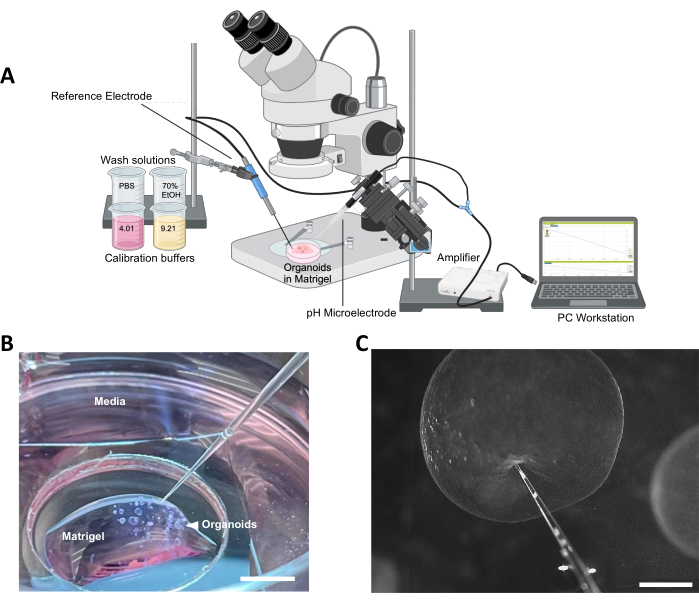
Rysunek 1: Przegląd metody. (A) Schematyczny rysunek zestawu do profilowania. Mikroelektroda na Rysunku 1A została pobrana ze strony internetowej Unisense.36 (B) Reprezentatywny obraz kultury organoidów przygotowanej do profilowania, otaczającej ECM i otaczającego medium (pasek skali = 5 mm). (C) Przykład prawidłowego ustawienia mikroelektrody w przygotowaniu do badania organoidu (pasek skali = 500 µm). Skrót: ECM = macierz zewnątrzkomórkowa. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
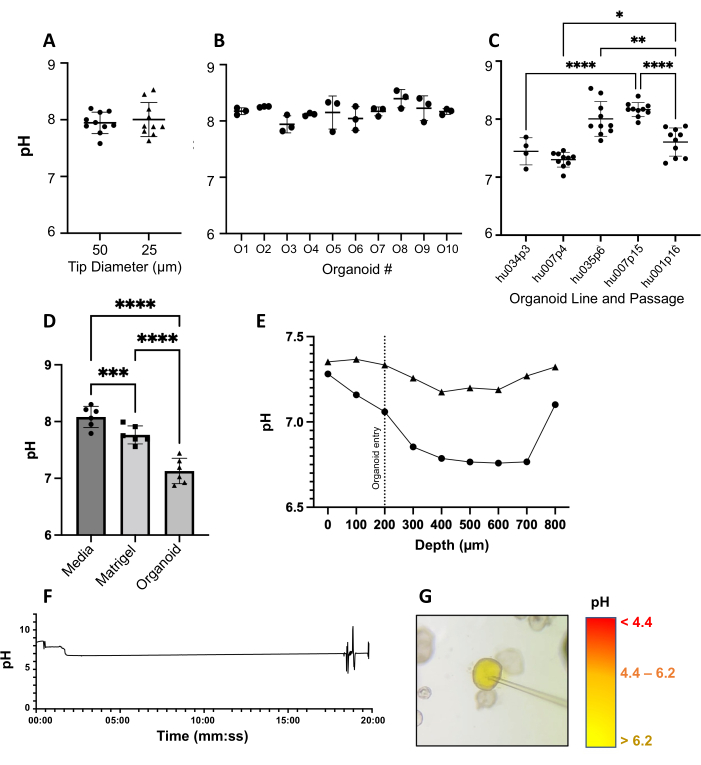
Rysunek 2: Walidacja profilowania mikrosensorem w ludzkich organoidach żołądka. (A) Porównanie pomiarów pH w środkowej części światła z użyciem końcówek mikroelektrod 25 µm (pH-25) i 50 µm (pH-50). Dane z 10 poszczególnych organoidów, każdy z jednego reprezentatywnego eksperymentu. (B) Uzyskano trzy powtórne pomiary pH dla 10 poszczególnych organoidów. Jednoczynnikowa analiza ANOVA z porównaniami wielokrotnymi (p = 0,1229). (C) Pomiary pH uzyskane za pomocą elektrody pH-25 są spójne w obrębie każdej z pięciu analizowanych linii organoidów przy różnych numerach pasaży; zmierzono od 4 do 10 organoidów na linię w zależności od wielkości i dostępności. Jednoczynnikowa analiza ANOVA z porównaniami wielokrotnymi (p < 0,0001). (D) Pomiary pH w obrębie organoidów żołądka oraz w otaczającym Matrigelu i medium (n = 6 niezależnych eksperymentów). Pomiary uzyskane poprzez penetrację nabłonkowych organoidów żołądka za pomocą pH-25. Każdy punkt danych stanowi średnią z 10 poszczególnych pomiarów pH w obrębie jednego organoidu. Jednoczynnikowa analiza ANOVA (p < 0,0001). (E) Profile pH od nabłonka do światła dwóch reprezentatywnych organoidów z użyciem zmotoryzowanego mikromanipulatora. (F) Stabilność pH w czasie (~19,8 min) w jednym reprezentatywnym organoidzie. (G) Mikrowstrzyknięcie barwnika wskaźnikowego pH czerwieni metylowej i HCl do światła organoidu żołądka. Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tego rysunku.
| Dawca | |||||
| Rycina | Linia | Fragment | Płeć | Wiek | Przynależność etniczna |
| 2A | 35 | 6 | F | 40 | B |
| 2B | 7 | 15 | F | 26 | B |
| 7 | 4 | F | 26 | B | |
| 1 | 16 | F | 45 | C | |
| 34 | 3 | F | 44 | Nieznany | |
| 35 | 6 | F | 40 | B | |
| 2C | 7 | 15 | F | 26 | B |
| 2D | 36 | 1 | Nieznany | ||
| 7 | 5 | F | 26 | B | |
| 37 | 1 | Nieznany | |||
| 31 | 3 | F | 45 | H | |
| 7 | 9 | F | 26 | B | |
| 7 | 4 | F | 26 | B | |
| 2E | 10 | 15 | F | 43 | Nieznane |
| 2F | 34 | 3 | F | 33 | C |
| 2G | 7 | 5 | F | 26 | B |
Tabela 1.
| Pożywka do ekspansji ludzkich organoidów żołądka (L-WRN) | |
| pożywka warunkowa L-WRN | 50% |
| Advanced DMEM/F12 | 37% |
| Płytka surowica bydlęca z płodu | 10% |
| Penicylina/streptomycyna | 1% |
| L-glutamina | 1% |
| Gentamycyna | 0.10% |
| Amfoterycyna B | 0.10% |
| bufor HEPES | 0.40% |
| Y-27632 | 0.10% |
| SB-431542 | 0.10% |
Tabela 2.
Rycina dodatkowa S1: Ekspresja transporterów jonowych w ludzkich organoidach żołądka. Względna liczba kopii znormalizowana względem 18S rRNA. Proszę kliknąć tutaj, aby pobrać ten plik.
Rycina dodatkowa S2: Ludzki organoid żołądka z zdeformowaną architekturą po nakłuciu sondą mikrosensora pH. Pasek skali = 1 mm. Proszę kliknąć tutaj, aby pobrać ten plik.
Wideo uzupełniające S1: Nieudana próba profilowania w hodowli organoidów żołądkowych. Mikroelektroda pH o średnicy 25 µm jest przesuwana ręcznie w stronę wybranego organoidu. Po nieudanej próbie spowodowanej błędnym oszacowaniem kąta, podjęto próbę pod innym kątem, co wykazało, że organoid nie posiada wystarczającej integralności strukturalnej do profilowania (struktura sferyczna nie jest stabilna i odkształca się podczas penetracji elektrodą). Następnie użytkownik zmienia kierunek, aby spróbować profilowania innego organoidu. Kliknij tutaj, aby pobrać ten plik.
Dyskusja
Ograniczony dostęp do przestrzeni świetlnej organoidów poważnie ograniczył nasze zrozumienie fizjologicznej dynamiki tego mikrośrodowiska. Niezawodne narzędzie do analiz funkcjonalnych fizjologii światła poszerzy nasze możliwości wykorzystania organoidów jako modeli in vitro w fizjologii, farmakologii i badaniach nad chorobami. Organoidy są wysoce przestrajalnymi, fizjologicznie istotnymi modelami z dodatkowym potencjałem do replikowania zmienności genetycznej w populacji ludzkiej. Istniejące metody pomiaru pH wewnątrz światła organoidu wykorzystywały barwniki lub nanocząstki wrażliwe na pH, metody, które często muszą być sprzężone z mikroskopią fluorescencyjną lub spektroskopią 16,17,37. Opisana metoda profilowania oparta na mikrosensorach zapewnia nową drogę pomiaru pH śródświetlnego organoidów przewodu pokarmowego z nową precyzją przestrzenną. Nasza metoda wykazuje spójny i wiarygodny pomiar pH światła organoidów przewodu pokarmowego, a także dowody na gradient pH. W niepublikowanych eksperymentach potwierdziliśmy ekspresję genów rodziny SLC SLC4A2 i 26A7, o których wiadomo, że są odpowiedzialne za wydzielanie wodorowęglanów, a także SLC9A3, 9A4 i 9A8, które są odpowiedzialne za wymianę protonów (rysunek uzupełniający S1)38,39,40,41. Nasze badania sugerują dominację wydzielania wodorowęglanów i brak komórek okładzinowych w naszych organoidach, co może wyjaśniać zasadowość.
Ważne jest, aby upewnić się, że zastosowane mikroelektrody są dobrze przystosowane do mikroprofilowania organoidów - obejmuje to wybór odpowiedniej średnicy końcówki. Wypróbowaliśmy zarówno końcówki 25 μm, jak i 50 μm i uzyskaliśmy podobne wyniki (rysunek 2A), ale zdecydowaliśmy się pójść naprzód z mniejszym rozmiarem końcówki zgodnie z zaleceniami producenta, ponieważ oczekiwano, że będzie ona mniej inwazyjna i zapewni wyższą rozdzielczość przestrzenną, ponieważ pomiary są uśredniane w całym obszarze skośnej końcówki. Minusem jest jednak to, że mniejsze końcówki są bardziej kruche. Przy określaniu pożądanej rozdzielczości przestrzennej należy wziąć pod uwagę rozmiar organoidu.
Kluczowym krokiem w protokole było zapewnienie możliwości rozróżnienia śródświetlnego pH organoidu od pH w ECM, a następnie w otaczającej pożywce hodowlanej. Można by oczekiwać rozsądnej ilości przepływu metabolitów do i z organoidów42. Spodziewamy się, że na pH organoidu będzie miało wpływ jego środowisko i stwierdziliśmy, że organoidy były konsekwentnie mniej zasadowe niż ich otoczenie w sześciu niezależnych eksperymentach (ryc. 2D). Ponadto stabilność jest tak samo ważna podczas profilowania, jak i podczas kalibracji czujnika.
Oczekuje się, że organoidy pochodzące z tkanek będą wykazywać pewien stopień zmienności między dawcami, dlatego konieczne jest profilowanie dowolnej linii organoidów na początku badania przed zastosowaniem jakichkolwiek interwencji eksperymentalnych, takich jak leczenie farmakologiczne43. Stawiamy hipotezę, że wahania pH w obrębie dowolnej kultury organoidowej mogą być spowodowane lokalnymi gradientami jonów w mikroskali i niejednorodnym rozmieszczeniem śluzu świetlnego określonym przez immunofluorescencję i barwienie immunohistochemiczne (dane niepublikowane). Obserwowane różnice pH między poszczególnymi liniami i pasażami organoidów mogą wynikać z indywidualnych różnic w składzie komórek i aktywności wydzielniczej organoidów. Odkryliśmy również, że niektóre linie organoidów były z natury trudniejsze do penetracji niż inne. Podobnie, niektóre mogą stracić swoją integralność strukturalną i zapaść się po wejściu elektrody (Rysunek Uzupełniający S2 i Film Uzupełniający S1). Nie wydaje się, aby było to związane z pasażem organoidów, ale zaobserwowano je najczęściej u organoidów o średnicy powyżej ~1,5 mm. W poprzednim badaniu wykazaliśmy, że śluz wewnątrz organoidów był niejednorodnie rozmieszczony29. Ze względu na tę niejednorodność trudno jest określić, czy (lub w jakim stopniu) dystrybucja śluzu wpłynęła na pomiar.
Mikroczujniki to minimalnie inwazyjne narzędzia, które mogą profilować organoidową fizjologię śródświetlną z dużą prędkością i wysoką rozdzielczością przestrzenną. Takie czujniki nie zaburzają również gradientów chemicznych i są minimalnie wrażliwe na turbulencje w interesującym nas mikrośrodowisku. Mała konstrukcja jest możliwa dzięki oddzieleniu elektrody czujnika od elektrody referencyjnej - standardowe laboratoryjne sondy pH łączą te dwie elektrody, co prowadzi do większego rozmiaru. Optyczne nanoczujniki pH iO2 do pomiarów wewnątrzkomórkowych zostały opracowane przez grupę Cash z Colorado School of Mines i odniosły sukces w pomiarze metabolitów zarówno w modelach mysich, jak i biofilmowych. Jednak ze względu na niejednorodność światła organoidu, takie czujniki mogą prowadzić do niemożliwych do zinterpretowania wyników17. McCracken i in. przeanalizowali pH światła w organoidach żołądka pochodzących z embrionalnych komórek macierzystych, wstrzykując SNARF-5F i wizualizując barwnik wrażliwy na pH za pomocą mikroskopii konfokalnej w czasie rzeczywistym37. Warto zauważyć, że pomiary zgłoszone przez McCrackena były bardzo podobne do wartości pH uzyskanych w naszym obecnym badaniu (Rysunek 2B, C). Być może nasza technika mogłaby być zastosowana w architekturze jednowarstwowej, z bardziej pionowym ustawieniem, jak w przypadku profilowania biofilmu, chociaż może to stwarzać ryzyko uszkodzenia elektrod44. Przyszłe badania mogą również obejmować sekwencyjne pomiary pH przez wiele dni w celu oceny zmian związanych z rozwojem komórek. Ponieważ organoidy średniej wielkości na ogół regenerują się i goją po badaniu, jeden organoid mógłby teoretycznie być badany wielokrotnie, o ile można utrzymać sterylność kultur. W miarę jak pogłębiamy naszą wiedzę na temat dynamiki pH w modelach organoidów, rozdzielczość przestrzenna musi być priorytetem dla precyzyjnego mapowania złożonego i historycznie niedostępnego mikrośrodowiska 3D w ich wnętrzu.
Podsumowując, protokół ten zapewnia szczegółową metodę dokładnych pomiarów pH z wysoką rozdzielczością czasoprzestrzenną przy użyciu mikroelektrod pH zamontowanych na mikromanipulatorze i mikroskopie stereoskopowym. Metoda ta została zwalidowana na organoidach pochodzących z dorosłych ludzkich komórek macierzystych i jest odpowiednia dla organoidów nabłonkowych o średnicy co najmniej 200 μm, które mają wyraźne światło. Przewidujemy, że wybierając alternatywne mikroelektrody, metodę tę można łatwo dostosować do innych typów organoidów i pomiaru alternatywnych związków, takich jak NO lubO2.
Oświadczenia
Autorzy nie mają do ujawnienia żadnych konfliktów interesów.
Podziękowania
Autorzy chcieliby podziękować dr Ellen Lauchnor, dr Philowi Stewartowi i Bengisu Kilic za ich wcześniejszą pracę i pomoc przy mikroczujnikach O2; Andy'ego Sebrella za szkolenie w zakresie hodowli organoidów i mikromanipulacji; Lexi Burcham za pomoc w hodowli organoidów, przygotowaniu pożywki, rejestrowaniu danych i organizacji; oraz dr Susy Kohout w celu uzyskania ogólnych porad w zakresie elektrofizjologii. Chcielibyśmy podziękować dr Heidi Smith za jej pomoc w obrazowaniu i wyrazić uznanie dla Centrum Inżynierii Biofilmu Bioobrazowania na Uniwersytecie Stanowym Montany, które jest wspierane przez fundusze z National Science Foundation MRI Program (2018562), M.J. Murdock Charitable Trust (202016116), Departamentu Obrony USA (77369LSRIP & W911NF1910288) oraz Montana Nanotechnology Facility (członek NNCI wspierany przez NSF Grant ECCS-2025391).
Specjalne podziękowania dla całego zespołu Unisense, który umożliwił tę pracę, szczególnie dla Dr. Andrew Cerskus, Dr. Laury Woods, Dr. Larsa Larsena, Dr. Tage Dalsgaarda, Dr. Line Daugaard, Dr. Karen Maegaard i Mette Gammelgaard. Finansowanie naszego badania zostało zapewnione przez National Institutes of Health granty R01 GM13140801 (D.B., R.B.) i UL1 TR002319 (K.N.L.) oraz nagrodę Research Expansion Award od Biura Badań i Rozwoju Gospodarczego Uniwersytetu Stanowego Montana (D.B.). Rysunek 1A został utworzony za pomocą BioRender.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 3 m KCl | Unisense | ||
| 5 ml Chybotliwa pipeta serologiczna, pakowana pojedynczo, papier/plastik, torba, sterylna | CellTreat | 229091B | |
| 10 ml pipeta serologiczna chybotliwa, pakowana pojedynczo, papier/plastik, torba, sterylna | CellTreat | 229092B | |
| 15 ml probówka wirówkowa - stojak piankowy, sterylny | CellTreat | 229412 | |
| 24-dołkowa płytka do hodowli tkankowej, sterylna | CellTreat | 229124 | |
| 25 ml pipeta serologiczna bez wahań, pakowana pojedynczo, papier/plastik, torba, sterylna | CellTreat | 229093B | |
| 35 mm | Nr 1.5 Szkiełko nakrywkowe | Średnica szkła 20 mm | Niepowlekana | MatTek | P35G-1.5-20-C | |
| 50 ml - stojak piankowy, sterylny | CellTreat | 229422 | |
| 70% etanolu | BP82031GAL BP82031GAL | ||
| 70 μ m Sitko do komórek, pakowane pojedynczo, sterylne | CellTreat | 229483 | |
| 1 000 i mikro; l Wydłużone końcówki do pipet o niskiej retencji, stojakowe, sterylne | CellTreat | 229037 | |
| roztwór amfoterycyny B (grzybzone) | HyClone Laboratories, Inc | SV30078.01 | |
| Szafka bezpieczeństwa biologicznego | Nuaire | NU-425-600 | Klasa II Typ A / B3 |
| Albumina surowicy bydlęcej | Bioodczynniki | Fisher BP1605-100 | |
| Roztwór do odzyskiwania komórek | Corning | 354253 | Roztwór do dysocjacji komórek |
| DMEM/F-12 (Advanced DMEM) | Gibco | 12-491-015 | |
| Modyfikacja pożywki Eagles firmy Dulbecco (DMEM) | Fisher Scientific | 15017CV | |
| Surowica bydlęca | płodu HyClone Laboratories, Inc | SH30088 | |
| G418 Siarczan | Corning | 30-234-CR | |
| Siarczan gentamycyny | IBI Scientific | IB02030 | |
| HEPES, Wolny kwas | Cytiva | SH30237.01 | |
| HP Pavillion 2-w-1 14-calowy laptop Intel Core i3 | HP | M03840-001 | |
| Kwas solny | Fisher Inkubator Scientific | A144C-212 | |
| Fisher Scientific | 11676604 | ||
| aparat do iPhone'a 12 | Apple | ||
| L-glutamina | Cytiva | SH3003401 | |
| Duża Kimberly-Clark Professional Kimtech Science Kimwipes Delikatne wycieraczki zadaniowe, 1-warstwowe | Fisher Scientific | 34133 | |
| M 205 FA Stereomikroskop | Leica | ||
| Matrigel Membrane Matrix 354234 | Corning | CB-40234 | |
| MC-1 Sterownik UniMotor Unisense | |||
| Czerwień | |||
| MM33 Mikromanipulator | Marzhauser Wetzlar | 61-42-113-0000 | Praworęczny |
| MS-15 Zmotoryzowany stolik | Unisense | ||
| Nanoject-II | Drummond | 3-000-204 | nanolitr |
| Penicylina/Streptomycyna (10 000 U/mL) | Gibco | 15-140-148 | |
| pH Mikroelektrody | Unisense | 50-109158, 25-203452, 25-205272, 25-111626, 25-109160 | Oprogramowanie SensorTrace nie jest kompatybilne z komputerami Apple |
| Elektroda referencyjna | Unisense | REF-RM-001652 | Oprogramowanie SensorTrace nie jest kompatybilne z Komputery Apple |
| SB 431542 | Tocris Bioscience | 16-141-0 | |
| Adapter do aparatu w smartfonie | Dane techniczne Gosky | ||
| Stoisko laboratoryjne LS | Unisense | LS-009238 | |
| Trypsyna-EDTA 0,025%, czerwień fenolowa | Gibco | 25-200-056 | |
| UniAmp Unisense | 11632 | ||
| United Biosystems Inc MINI SKROBAKI KOMÓRKOWE 200/PK | Fisher | MCS-200 | |
| Y-27632 dichlorowodorek | Tocris Bioscience | 12-541-0 | |
| &mikro; Zestaw do kalibracji czujników | Unisense/ Mettler Toledo | 51-305-070, 51-302-069 | pH 4,01 i 9,21, pakiety 20 ml |
Bibliografia
- Zhang, N., et al. Tissue spatial omics dissects organoid biomimicry. GEN Biotechnology. 2 (5), 372-383 (2023).
- Sato, T., et al. Single lgr5 stem cells build crypt-villus structures in vitro without a mesenchymal niche. Nature. 459 (7244), 262-265 (2009).
- Lancaster, M. A., et al. Cerebral organoids model human brain development and microcephaly. Nature. 501 (7467), 373-379 (2013).
- Dutta, D., Heo, I., Clevers, H. Disease modeling in stem cell-derived 3d organoid systems. Trends Mol Med. 23 (5), 393-410 (2017).
- Achberger, K., et al. Merging organoid and organ-on-a-chip technology to generate complex multi-layer tissue models in a human retina-on-a-chip platform. Elife. 8, e46188(2019).
- Bartfeld, S., et al. In vitro expansion of human gastric epithelial stem cells and their responses to bacterial infection. Gastroenterology. 148 (1), 126-136 (2015).
- Fatehullah, A., Tan, S. H., Barker, N. Organoids as an in vitro model of human development and disease. Nat Cell Biol. 18 (3), 246-254 (2016).
- Clevers, H. Modeling development and disease with organoids. Cell. 165 (7), 1586-1597 (2016).
- Davies, J. A. Organoids and Mini-organs. Davies, J. A., Lawrence, M. L. , Academic Press. Ch. 1-2 3-40 (2018).
- Ambrosini, Y. M., et al. Recapitulation of the accessible interface of biopsy-derived canine intestinal organoids to study epithelial-luminal interactions. PLoS One. 15 (4), e0231423(2020).
- Williams, S. E., Turnberg, L. A. Demonstration of a pH gradient across mucus adherent to rabbit gastric mucosa: Evidence for a 'mucus-bicarbonate' barrier. Gut. 22 (2), 94-96 (1981).
- Schubert, M. L. Gastric secretion. Curr Opin Gastroenterol. 20 (6), 519-525 (2004).
- Celli, J. P., et al. Rheology of gastric mucin exhibits a pH-dependent sol−gel transition. Biomacromolecules. 8 (5), 1580-1586 (2007).
- Takeshita, Y., et al. Assessment of pH-dependent errors in spectrophotometric pH measurements of seawater. Marine Chemistry. 223, 103801(2020).
- Mccracken, K. W., et al. Wnt/β-catenin promotes gastric fundus specification in mice and humans. Nature. 541 (7636), 182-187 (2017).
- Larsen, M., Borisov, S. M., Grunwald, B., Klimant, I., Glud, R. N. A simple and inexpensive high resolution color ratiometric planar optode imaging approach: Application to oxygen and ph sensing. Limnology and Oceanography: Methods. 9 (9), 348-360 (2011).
- Jewell, M. P., Galyean, A. A., Kirk Harris, J., Zemanick, E. T., Cash, K. J. Luminescent nanosensors for ratiometric monitoring of three-dimensional oxygen gradients in laboratory and clinical pseudomonas aeruginosa biofilms. Appl Environ Microbiol. 85 (20), e01116-e01119 (2019).
- Brooks, E. L., Hussain, K. K., Kotecha, K., Abdalla, A., Patel, B. A. Three-dimensional-printed electrochemical multiwell plates for monitoring food intolerance from intestinal organoids. ACS Sens. 8 (2), 712-720 (2023).
- pH and reference electrode manual. Unisense. , Available from: https://unisense.com/wp-content/uploads/2023/05/2023.05-pH-and-ref-sensor-manual.pdf (2023).
- Villahermosa, D., Corzo, A., Garcia-Robledo, E., Gonzalez, J. M., Papaspyrou, S. Kinetics of indigenous nitrate reducing sulfide oxidizing activity in microaerophilic wastewater biofilms. PLoS One. 11 (2), 0149096(2016).
- Pabst, B., Pitts, B., Lauchnor, E., Stewart, P. S. Gel-entrapped staphylococcus aureus bacteria as models of biofilm infection exhibit growth in dense aggregates, oxygen limitation, antibiotic tolerance, and heterogeneous gene expression. Antimicrob Agents Chemother. 60 (10), 6294-6301 (2016).
- Ploug, H., Stolte, W., Epping, E. H. G., Jørgensen, B. B. Diffusive boundary layers, photosynthesis, and respiration of the colony-forming plankton algae, phaeocystis sp. Limnology and Oceanography. 44 (8), 1949-1958 (1999).
- Kolpen, M., et al. Nitrous oxide production in sputum from cystic fibrosis patients with chronic pseudomonas aeruginosa lung infection. PLoS One. 9 (1), 84353(2014).
- Murphy, K. C., et al. Measurement of oxygen tension within mesenchymal stem cell spheroids. J R Soc Interface. 14 (127), 20160851(2017).
- Sebrell, T. A., et al. A novel gastric spheroid co-culture model reveals chemokine-dependent recruitment of human dendritic cells to the gastric epithelium. Cell Mol Gastroenterol Hepatol. 8 (1), e153 157-171 (2019).
- Miyoshi, H., Stappenbeck, T. S. In vitro expansion and genetic modification of gastrointestinal stem cells in spheroid culture. Nat Protoc. 8 (12), 2471-2482 (2013).
- Takase, Y., Fujishima, K., Takahashi, T. The 3d culturing of organoids from murine intestinal crypts and a single stem cell for organoid research. J Vis Exp. (194), e65219(2023).
- Cherne, M. D., et al. A synthetic hydrogel, vitrogel((r)) organoid-3, improves immune cell-epithelial interactions in a tissue chip co-culture model of human gastric organoids and dendritic cells. Front Pharmacol. 12, 707891(2021).
- Sebrell, T. A., et al. Live imaging analysis of human gastric epithelial spheroids reveals spontaneous rupture, rotation and fusion events. Cell Tissue Res. 371 (2), 293-307 (2018).
- Sensortrace suite user manual. 3.3. Unisense. , Available from: https://unisense.com/wp-content/uploads/2021/10/SensorTrace-Suite-Manual.pdf (2023).
- Microprofiling system user manual. Unisense. , Available from: https://unisense.com/wp-content/uploads/2021/09/2023.11-MicroProfiling-System-2.pdf (2023).
- Wolffling, S., et al. Egf and bmps govern differentiation and patterning in human gastric glands. Gastroenterology. 161 (2), e616 623-636 (2021).
- Boccellato, F., et al. Polarised epithelial monolayers of the gastric mucosa reveal insights into mucosal homeostasis and defence against infection. Gut. 68 (3), 400-413 (2019).
- Mccracken, K. W., et al. Modelling human development and disease in pluripotent stem-cell-derived gastric organoids. Nature. 516 (7531), 400-404 (2014).
- Schumacher, M. A., et al. The use of murine-derived fundic organoids in studies of gastric physiology. J Physiol. 593 (8), 1809-1827 (2015).
- Unisense. , Available from: https://unisense.com/products/ph-microelectrode/ (2024).
- Mccracken, K. W., et al. Wnt/beta-catenin promotes gastric fundus specification in mice and humans. Nature. 541 (7636), 182-187 (2017).
- Schreiber, S., et al. In situ measurement of ph in the secreting canaliculus of the gastric parietal cell and adjacent structures. Cell Tissue Res. 329 (2), 313-320 (2007).
- Xu, H., Li, J., Chen, H., Wang, C., Ghishan, F. K. Nhe8 plays important roles in gastric mucosal protection. Am J Physiol Gastrointest Liver Physiol. 304 (3), G257-G261 (2013).
- Gawenis, L. R., et al. Impaired gastric acid secretion in mice with a targeted disruption of the nhe4 na+/h+ exchanger. J Biol Chem. 280 (13), 12781-12789 (2005).
- Lewis, O. L., Keener, J. P., Fogelson, A. L. A physics-based model for maintenance of the ph gradient in the gastric mucus layer. Am J Physiol-Gastrointest Liver Physiol. 313 (6), G599-G612 (2017).
- Okkelman, I. A., Neto, N., Papkovsky, D. B., Monaghan, M. G., Dmitriev, R. I. A deeper understanding of intestinal organoid metabolism revealed by combining fluorescence lifetime imaging microscopy (flim) and extracellular flux analyses. Redox Biol. 30, 101420(2020).
- Pleguezuelos-Manzano, C., et al. Establishment and culture of human intestinal organoids derived from adult stem cells. Curr Protoc Immunol. 130 (1), e106(2020).
- Guimera, X., et al. A minimally invasive microsensor specially designed for simultaneous dissolved oxygen and ph biofilm profiling. Sensors (Basel). 19 (21), 4747(2019).
Przedruki i uprawnienia
