Ten protokół opisuje podstawowe kroki do przeprowadzenia kampanii selekcji powierzchni drożdży w celu wzbogacenia wariantów białek wiążących się z interesującym nas antygenem.
Artykuł metodologiczny
Inżynieria białkowa za pomocą wyświetlacza powierzchni drożdży
W tym artykule
Podsumowanie
Streszczenie
Inżynieria białkowa umożliwia poprawę istniejących funkcji danego białka lub generowanie nowych funkcji. Jednym z najczęściej stosowanych i wszechstronnych narzędzi w dziedzinie inżynierii białek jest wyświetlanie powierzchni drożdży, w którym pula losowych białek ulega ekspresji na powierzchni drożdży. Powiązanie fenotypu (np. wiązania białka wyświetlanego przez drożdże z antygenem będącym przedmiotem zainteresowania) i genotypu (kodowania plazmidu dla wariantu białka) umożliwia wybór tej biblioteki pod kątem pożądanych właściwości i późniejsze sekwencjonowanie wzbogaconych wariantów. Łącząc selekcję kulek magnetycznych z sortowaniem metodą cytometrii przepływowej, można wybrać i wzbogacić warianty białek o zwiększonym wiązaniu z docelowym antygenem. Warto zauważyć, że oprócz dojrzewania powinowactwa, wiązanie z celem można również osiągnąć bez żadnego początkowego powinowactwa wiązania. W tym miejscu przedstawiamy protokół krok po kroku, który obejmuje wszystkie istotne elementy kampanii wyboru ekspozycji powierzchni drożdży i podaje przykłady typowych wyników ekspozycji powierzchni drożdży. Pokazujemy, że wyświetlanie powierzchni drożdży jest szeroko stosowaną i solidną metodą, którą można ustalić w każdym laboratorium biologii molekularnej z dostępem do cytometrii przepływowej.
Wprowadzenie
Ekspozycja na powierzchni drożdży (yeast surface display) jest jedną z kluczowych technologii w dziedzinie inżynierii białek. Umożliwia ona selekcję wariantów białek o pożądanych właściwościach, takich jak poprawione powinowactwo lub stabilność. Po raz pierwszy wprowadzona w 1997 roku1, jest jedną z najczęściej stosowanych technologii ekspozycji, obok ekspozycji fagowej2,3, ekspozycji rybosomalnej4 oraz ekspozycji na komórkach ssaków5,6,7. Białko docelowe (POI) jest eksponowane na powierzchni komórek drożdży poprzez połączenie go z białkami kotwiczącymi. Dostępny jest szereg różnych białek kotwiczących, a najczęściej POI jest łączone z końcem C białka Agn2p, będącego białkiem sprzęgającym aglutyniny drożdżowej1,8. Ponadto POI jest zazwyczaj flankowane przez dwa znaczniki, takie jak znacznik hemaglutyniny (HA-tag) i znacznik c-myc, co umożliwia detekcję poziomu ekspozycji przy użyciu przeciwciał znakowanych fluorescencyjnie i cytometrii przepływowej (Rycina 1A). Typowe kampanie selekcji drożdży obejmują kombinację selekcji za pomocą kulek magnetycznych i sortowania cytometrycznego. Selekcje na kuleczkach umożliwiają przetwarzanie dużej liczby komórek i wzbogacanie wariantów białek wiążących antygen docelowy, także tych o niskim powinowactwie, ponieważ wielowartościowe oddziaływania z kuleczkami obciążonymi antygenem prowadzą do efektów awidności i tym samym zapobiegają utracie wariantów o niskim powinowactwie (Rycina 1B). Analiza i selekcja metodą cytometrii przepływowej dają korzyść w postaci wizualizacji wiązania eksponowanych wariantów POI z znakowanym antygenem. W konsekwencji populacje wiążące mogą być sortowane i hodowane, co prowadzi do wzbogacenia wariantów białek o pożądanych właściwościach w ciągu kilku rund sortowania. Ponadto można przeprowadzić dodatkowe rundy randomowej mutagenezy, aby dalej zwiększyć różnorodność, a tym samym prawdopodobieństwo znalezienia dodatkowych mutacji przyczyniających się do powinowactwa i/lub stabilności białka.
Prezentacja białek na powierzchni drożdży (yeast surface display) oferuje pewne zalety, takie jak (a) eukariotyczny aparat ekspresyjny, umożliwiający oksydacyjne fałdowanie białek oraz eukariotyczne modyfikacje posttranslacyjne (np. N-glikozylację), (b) normalizację ekspresji dzięki detekcji dwóch znaczników peptydowych flankujących białko, (c) wizualną inspekcję postępów selekcji za pomocą cytometrii przepływowej (np. procent wiążących komórek i intensywność wiązania) oraz (d) możliwość analizy poszczególnych mutantów białek na drożdżach (np. analizy termostabilności oraz powinowactwa), co stanowi oszczędzającą czas alternatywę dla żmudnej ekspresji i oczyszczania białek9. W rzeczywistości zarówno powinowactwa (wartości KD), jak i stabilności (wartości T50) białek prezentowanych na powierzchni drożdży wykazały dobre korelacje z danymi uzyskanymi za pomocą metod biofizycznych i rozpuszczalnych białek9,10,11,12. Prezentacja na powierzchni drożdży była wykorzystywana do inżynierii różnorodnych białek, np. fragmentów przeciwciał13,14,15,16, 10tej domeny III fibronektyny17,18, rcSso7d19,20 lub knottinów21. Podobnie, podjęto szeroko zakrojone badania nad optymalizacją projektów bibliotek drożdżowych poprzez zmianę pozycji randomizowanych oraz wykorzystania kodonów aminokwasowych17,22,23. Prezentacja na powierzchni drożdży okazała się skuteczna w inżynierii stabilności14,15,24,25, powinowactwa18,26,27, aktywności enzymatycznej28,29,30,31 oraz ekspresji białek32. Dodatkowo, za pomocą prezentacji na powierzchni drożdży zrealizowano bardziej zaawansowane zastosowania, takie jak wiązanie warunkowe w obecności lub przy braku małej cząsteczki20.
W niniejszym protokole opisujemy wszystkie kluczowe etapy kampanii selekcyjnej z wykorzystaniem ekspozycji powierzchniowej drożdży na przykładzie biblioteki G4 (opartej na 10th domena III fibronektyny (Fn3) wyselekcjonowana przeciwko antygenowi ludzkiej białku wiążącej retinol 4 (hRBP4) w obecności małej cząsteczki A112020Selekcję tę przeprowadzono w celu uzyskania oddziaływania białko-białko zależnego od małej cząsteczki, która może służyć jako przełącznik molekularny. Warto zauważyć, że choć przy zastosowaniu ekspozycji powierzchniowej drożdży możliwe są alternatywne podejścia, typowe selekcje drożdżowe zazwyczaj mają na celu uzyskanie wiązania z antygenem docelowym bez wcześniejszego powinowactwa wiązania. Opisujemy wszystkie etapy kampanii selekcji drożdżowej, obejmujące hodowlę biblioteki drożdży, selekcje na kuleczkach, sortowanie cytometryczne oraz dojrzewanie powinowactwa za pomocą PCR podatnego na błędy (epPCR). Niniejszy protokół stanowi zatem uzupełnienie wcześniejszych protokołów dotyczących ekspozycji powierzchniowej drożdży.33,34 i może służyć jako podstawa do selekcji w metodzie prezentacji na powierzchni drożdży (Rycina 1z dowolną wybraną biblioteką drożdżową i dowolnym antygenem docelowym.

Rysunek 1: Zasada ekspozycji powierzchniowej drożdży oraz typowy przebieg selekcji w systemie ekspozycji powierzchniowej drożdży. (A) POI jest klonowane do wektora do ekspozycji powierzchniowej drożdży i zazwyczaj flankowane N-końcowym znacznikiem HA oraz C-końcowym znacznikiem c-myc. Konstrukt jest fuzowany z białkiem kojarzenia drożdżowego Aga2p w celu ekspozycji na powierzchni. Przedstawione białko to zmodyfikowany ligand „RS3” z PDB ID: 6QBA20. (B) Schemat blokowy ilustrujący typowy przebieg kampanii selekcyjnych w systemie ekspozycji powierzchniowej drożdży, które łączą wzbogacanie wariantów białek o pożądanych właściwościach poprzez selekcję na kuleczkach i sortowanie cytometryczne, a także epPCR w celu dojrzewania powinowactwa. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
Protokół
1. Rozmrażanie i hodowla bibliotek drożdży
- Rozmrozić wystarczającą ilość porcji zamrożonej biblioteki drożdży w temperaturze pokojowej i natychmiast rozcieńczyć w SD-CAA (patrz Tabela 1) do OD600 około 1 (odpowiada to 1 x 10⁷ komórek/ml).
UWAGA: Upewnij się, że różnorodność biblioteki jest pokryta co najmniej 10-krotnie. Tak więc, jeśli rozmiar biblioteki odpowiada 2,5 x 10⁸ klonów (jest to różnorodność biblioteki G4 użytej w tym przykładzie), zaszczepij co najmniej 2,5 x 10⁹ komórek w 250 ml SD-CAA, aby osiągnąć OD600 równe 1. Protokół ten można również rozpocząć od kultur płynnych (komórki drożdży świeżo przekształcone za pomocą biblioteki). - Oceń liczbę żywotnych komórek.
- Pobrać 100 μl podwielokrotności z tej zawiesiny drożdży (przy OD600 z 1) i przeprowadzić serię rozcieńczeń 1:10 z 900 μl pożywki SD-CAA w probówkach do mikrowirówek.
- Przygotować rozcieńczenia do 10-5 i rozlać 100 μl rozcieńczeń 10-3, 10-4 i 10-5 na płytkach SD-CAA (Tabela 1). Inkubować płytki w temperaturze 30 °C przez 2-3 dni. Upewnij się, że liczba żywotnych komórek po rozmrożeniu przekracza różnorodność biblioteki co najmniej 10-krotnie.
- W międzyczasie kontynuować z pozostałą zawiesiną komórkową i hodować kulturę drożdży zawierającą bibliotekę G4 w szklanych kolbach przez noc w temperaturze 30 °C, wytrząsając (180 obr./min). Po całonocnej inkubacji przejdź do sekcji 2 (Indukcja ekspresji białka na powierzchni drożdży).
- Po 2-3 dniach inkubacji policz kolonie na płytkach SD-CAA przez oględziny. Obliczając ostateczną liczbę żywotnych komórek po rozmrożeniu, należy wziąć pod uwagę współczynnik rozcieńczenia i stosunek posianej (tj. 100 μl) do pierwotnej objętości kultury (tj. 250 ml).
Komórki żywotne/ml = liczba kolonii na płytce × współczynnik rozcieńczenia
Komórki żywotne (ogółem) = (komórki żywotne/ml) × objętość kultury
| Medium/bufor | Komponent | Stężenie [g/L] | Komentarze/Opis | |||
| SD-CAA (Urząd Certyfikacji) | D-glukoza | 20 | Rozpuść wszystkie składniki pożywki w 1000 ml ddH2O i sterylnym filtracie za pomocą jednorazowych sterylnych filtrów 0,22 μm. | |||
| Baza azotowa drożdży | 6.7 | |||||
| Kwasy kasminowe | 5 | |||||
| Monohydrat kwasu cytrynowego | 7,4 | |||||
| Dwuwodny cytrynian trisodu | Godzina 10,83 | |||||
| SG-CAA (Urząd Lotnictwa Cywilnego) | D-galaktoza | 20 | Rozpuść wszystkie składniki pożywki w 1000 ml ddH2O i sterylnym filtracie za pomocą jednorazowych sterylnych filtrów 0,22 μm. | |||
| D-glukoza | cyfra arabska | |||||
| Baza azotowa drożdży | 6.7 | |||||
| Aminokwasy | 5 | |||||
| wodorofosforan di-sodowy siedmiowodny | Rozdział 10.2 | |||||
| Diwodorofosforan sodu jednowodny | 8,56 | |||||
| Tabliczki SD-CAA | Sorbitol | Rozdział 182 | Rozpuść sorbitol, wodorofosforan sodu siedmiowodny, diwodorofosforan sodu jednowodny i agar-agar w 900 ml ddH2O i autoklawie. Rozpuścić i sterylnie przefiltrować pozostałe składniki w 100 ml ddH2O i dodać, gdy autoklawowane podłoże jest letnie. | |||
| wodorofosforan di-sodowy siedmiowodny | Rozdział 10.2 | |||||
| Diwodorofosforan sodu jednowodny | Klasa 7,44 | |||||
| Agar-agar | 15 | |||||
| D-glukoza | 20 | |||||
| Baza azotowa drożdży | 6.7 | |||||
| Aminokwasy | 5 | |||||
| YPD (Młodzież | pepton | 20 | Przygotuj 10x bulion D-glukozy (200 g/L) i sterylny filtrat z jednorazowymi sterylnymi filtrami 0,22 μm. Rozpuść pepton i ekstrakt drożdżowy w 900 ml ddH2O i autoklawie. Gdy będzie letnia, dodaj 100 ml 10x D-glukozy. | |||
| Ekstrakt drożdżowy | 10 | |||||
| D-glukoza | 20 | |||||
| Płyty YPD | pepton | 20 | Przygotuj 10x D-glukozę (200 g/L) i sterylny filtrat z jednorazowymi sterylnymi filtrami 0,22 μm. Pepton, ekstrakt drożdżowy i agar-agar rozpuścić w 900 ml ddH2O i w autoklawie. Gdy będzie letnia, dodaj 100 ml 10x D-glukozy. | |||
| Ekstrakt drożdżowy | 10 | |||||
| D-glukoza | 20 | |||||
| Agar-agar | 15 | |||||
| PBSA (Międzynarodowa Organizacja Zarządzania | BSA | 1 | Rozpuść BSA w PBS i sterylnym filtracie za pomocą jednorazowych sterylnych filtrów 0,22 μm. | |||
Tabela 1: Kompozycja mediów i bufora.
2. Indukcja ekspresji białka na powierzchni drożdży
- Po całonocnej inkubacji kultury drożdży zwykle osiągają OD600 w zakresie 2-20. Zmierz OD600 za pomocą fotometru, aby określić gęstość kultury drożdży.
UWAGA: Pomiary OD są liniowe tylko w zakresie 0,1-1. Dlatego wykonaj rozcieńczenia (zwykle 1:20 i 1:50) w SD-CAA, aby określić OD600.- Rozcieńczyć komórki w SD-CAA do OD600 1 i upewnić się, że różnorodność jest pokryta 10x (tj. 2,5 x 10⁹ komórek jest używanych do rozcieńczania biblioteki G4). Kontynuować inkubację w temperaturze 30 °C, wytrząsając, aby umożliwić komórkom osiągnięcie fazy wzrostu wykładniczego.
- Przygotować zapasy glicerolu (pokrywające różnorodność 50x) z bibliotek drożdży (w SD-CAA zawierających 15% glicerolu) z nocnej hodowli. W tym celu odwirować wymaganą liczbę komórek drożdży (2000 x g, 3 min, 4 °C), odrzucić supernatant i ponownie zawiesić osad komórkowy w 1 ml pożywki SD-CAA uzupełnionej 15% glicerolem. Natychmiast zamrozić zapasy glicerolu w temperaturze -80 °C.
UWAGA: Żywotność komórek drożdży wzrasta, jeśli kultury drożdży są hodowane do fazy stacjonarnej przed zamrożeniem. W późniejszych rundach selekcji, gdy różnorodność bibliotek jest mniejsza, zwykle wystarczy użyć 700 μl kultury drożdży i zmieszać ją z 300 μl SD-CAA uzupełnionego 50% glicerolem. W tym przypadku kultury drożdży zazwyczaj wykazują wartości OD600 wynoszące 15 w fazie stacjonarnej, ale rzeczywista wartość może zależeć od używanego fotometru. W ten sposób fazę stacjonarną można określić za pomocą powtarzających się pomiarów OD600. Jeżeli wartość OD600 nie wzrośnie w okresie inkubacji wynoszącym 2 godziny, osiągana jest faza stacjonarna.
- Odwirować odpowiednią objętość komórek, aby pokryć różnorodność 10x przy 2000 x g przez 5 minut, 4-6 godzin po rozcieńczeniu kultury drożdży (typowe wartości OD600 wynoszą między 4-6) i odrzucić supernatant.
- Zawiesić osad komórek w SG-CAA (patrz Tabela 1) do uzyskania OD600 równego 1 i przenieść go do świeżej szklanej kolby.
UWAGA: Ponowne zawieszenie w pożywce zawierającej galaktozę indukuje ekspresję białka na powierzchni przez promotor indukowany galaktozą. - Inkubować kultury drożdży przez noc w temperaturze 20 °C, wytrząsając przy 180 obr./min, aby wywołać ekspresję powierzchniową POI. Po indukcji przez noc kultury drożdży zwykle osiągają wartości OD600 w zakresie 2-5; jeśli temperatura indukcji zostanie podniesiona do 37 °C, spodziewaj się wartości OD600 4-10,
UWAGA: Obniżenie temperatury do 20°C spowalnia wzrost komórek i zazwyczaj zapewnia lepsze poziomy wyświetlania. Jednak indukcja w temperaturze 37 °C może być przydatna w celu zwiększenia presji selekcyjnej w kierunku ustabilizowanych mutantów35.
3. Pierwsza runda wyboru koralików w bibliotekach drożdży (selekcja pozytywna)
UWAGA: Standardowa procedura wyboru koralików składa się z 6 kroków (Tabela 2).
| dzień | Krok | |
| 0 | Nocny pokrój | |
| 1 | Indukcja ekspresji białka na powierzchni komórek drożdży | |
| cyfra arabska | Pierwszy wybór koralików z 1 pozytywnym wyborem | |
| 3 | Usunięcie koralików, pasażowanie, indukcja ekspresji białek na powierzchni komórek drożdży i zamrożenie biblioteki | |
| 4 | Drugi wybór koralików z 3 negatywnymi i 1 pozytywnym wyborem | |
| 5 | Usunięcie koralików i zamrożenie biblioteki | |
Tabela 2: Typowy harmonogram przeprowadzania selekcji koralików w bibliotece drożdży.
- Przygotowanie koralików
- Przygotuj kulki (patrz Tabela materiałów) do pierwszego wyboru kulek: Dla każdej probówki ponownie zasmów 10 μl kulek magnetycznych ze spoiwem biotyny (4 × 10⁵ kulek/μL) w 990 μL PBSA (Tabela 1) do mycia, umieść probówkę na stojaku magnetycznym na 2 minuty z otwartą pokrywą. Ostrożnie usunąć supernatant. Powtórz etap mycia z 1 ml PBSA.
UWAGA: Jeśli potrzebnych jest wiele probówek z kulkami z tym samym biotynylowanym antygenem, można je przygotować w jednej probówce na tym etapie, aby uzyskać jednolity roztwór antygenu i kulki. W takim przypadku ilość antygenu należy odpowiednio zwiększyć w następnym kroku. - Zawiesić kulki w łącznej objętości 1 ml PBSA z 6,7-33 molami biotynylowanego antygenu (tutaj: 6,86 μl hRBP4 o stężeniu 0,125 mg/ml) w probówce mikrowirówkowej o pojemności 1,5 ml.
UWAGA: Podczas gdy 6,7 pmoli antygenu jest wystarczających, należy użyć 33 pmoles, jeśli antygen nie jest ograniczający. Jeżeli selekcja jest przeprowadzana dla antygenu związanego z małocząsteczkowym lekiem lub ligandem, jak w tym przypadku, ten lek/ligand musi być obecny podczas selekcji i powinien zostać dodany na tym etapie (tutaj: 5 μM A1120). - Inkubować w temperaturze 4 °C przez 2 godziny, delikatnie wstrząsając lub obracając.
UWAGA: Na tym etapie można przygotować komórki. - Po inkubacji, a przed dodaniem do komórek, umieść probówkę na stojaku magnetycznym na 2 minuty z otwartą pokrywką. Usunąć supernatant i przemyć kulki obciążone antygenem 1 ml PBSA, jak opisano powyżej. Powtórz krok prania.
UWAGA: W przypadku wybrania antygenu związanego z lekiem lub ligandem, bufor płuczący powinien zawierać ten lek lub ligand w nadmiarze (tutaj: 5 μM A1120). - Zawiesić kulki obciążone antygenem w 50 μl PBSA (w obecności leku lub liganda, jeśli dotyczy).
UWAGA: Jeśli te same koraliki obciążone antygenem zostały przygotowane dla wielu probówek, odpowiednio dostosuj objętość (w przypadku biblioteki G4 ostateczna objętość to 100 μl, co daje kulki na dwie probówki).
- Przygotuj kulki (patrz Tabela materiałów) do pierwszego wyboru kulek: Dla każdej probówki ponownie zasmów 10 μl kulek magnetycznych ze spoiwem biotyny (4 × 10⁵ kulek/μL) w 990 μL PBSA (Tabela 1) do mycia, umieść probówkę na stojaku magnetycznym na 2 minuty z otwartą pokrywą. Ostrożnie usunąć supernatant. Powtórz etap mycia z 1 ml PBSA.
- Przygotowanie komórek drożdży
- Zmierzyć OD600 indukowanej kultury drożdży, jak opisano powyżej.
- Osad komórek w wystarczającej ilości wystarczającej do pokrycia 10-krotności różnorodności biblioteki (2000 x g, 10 min, 4 °C). W przypadku biblioteki G4 użyj 2,5 x 10⁹ komórek do wirowania. Usunąć supernatant i przemyć komórki 10 ml PBSA.
- Ponownie odwirować (2000 x g, 10 min, 4 °C) i ponownie zawiesić komórki do stężenia 1,25 x 10⁹ komórek/ml w odpowiedniej objętości PBSA (tutaj: 2 ml) i przenieść do probówki mikrowirówkowej.
UWAGA: Objętość PBSA zależy od liczby komórek. - Odwirować (2000 x g, 3 min, 4 °C) i ponownie zawiesić w 950 μl PBSA.
- Inkubacja komórek drożdży z kulkami naładowanymi antygenem
- Dodać 50 μl kulek obciążonych antygenem do 950 μl zawiesiny komórek i inkubować przez 2 godziny w temperaturze 4 °C, wstrząsając lub obracając.
- Po inkubacji umieść roztwór kulki antygenu komórkowego na stojaku magnetycznym z otwartą pokrywą. Odpipetuj płyn z pokrywki do probówki, aby poddać całą kulturę drożdży selekcji magnetycznej. Odczekaj 2 minuty, zanim ostrożnie wyrzucisz niezwiązane komórki. Natychmiast umyć 1 ml PBSA.
UWAGA: Jeśli selekcja jest przeprowadzana w obecności leku/liganda - w tym przykładzie A1120 - musi on być obecny w PBSA. - Po etapie płukania PBSA należy szybko ponownie zawiesić komórki w 1 ml SD-CAA, aby zapobiec ich wysuszeniu.
- Dodać 200 ml SD-CAA i wykonać seryjne rozcieńczenia, jak opisano powyżej. Umieścić 100 μl na płytkach SD-CAA i inkubować przez 2-3 dni w temperaturze 30 °C w celu określenia nowej maksymalnej różnorodności. Tutaj różnorodność biblioteki G4 po pierwszym zaznaczeniu koralików wynosi 1,25 x10⁶ komórek.
UWAGA: Ponieważ oryginalna biblioteka została przepróbkowana 10-krotnie w tej rundzie selekcji, rozsądnie jest założyć, że większość klonów będzie obecna wiele razy w wzbogaconej puli po selekcji. W konsekwencji rzeczywista różnorodność będzie mniejsza, a liczbę tę należy traktować jako wartość maksymalną. Zazwyczaj różnorodność jest zmniejszana co najmniej 100-krotnie w pierwszej rundzie selekcji. Pozostałą kulturę (200 ml) inkubować w temperaturze 30 °C, wytrząsając (180 obr./min) przez co najmniej 16 godzin. Protokół można wstrzymać po całonocnej inkubacji, umieszczając komórki w temperaturze 4 °C.
4. Usuwanie koralików i uprawa przed następną rundą wyboru koralików
- Zmierz OD600, jak opisano powyżej. Zebrać wystarczającą ilość komórek, aby pokryć różnorodność co najmniej 10x (2000 x g, 3 min, RT). Odrzucić supernatant i ponownie zawiesić komórki w 1 ml SD-CAA.
- Przenieś do probówki do mikrowirówki i umieść na stojaku magnetycznym na 2 minuty przy otwartej pokrywie. Przenieś niezwiązane komórki do nowej probówki mikrowirówkowej i powtórz proces rozdzielania.
- Rozcieńczyć niezwiązane komórki w 100 ml SD-CAA i inkubować w temperaturze 30 °C z wytrząsaniem z prędkością 180 obr./min, aż do osiągnięcia OD600 wynoszącej 3-4.
UWAGA: Jeśli OD600 jest niższy niż 4 przed usunięciem kulek, komórki można indukować bezpośrednio po inkubacji. - Po osiągnięciu OD600 wynoszącej 3-4, odwirować wystarczającą liczbę komórek, aby pokryć różnorodność co najmniej 10x (2000 x g, 3 min, RT) i ponownie zawiesić w SG-CAA do OD600 1 w celu indukcji ekspresji białka i inkubować w temperaturze 20 °C, wytrząsając przez noc z prędkością 180 obr./min.
- Gdy pozostała kultura drożdży SD-CAA osiągnie stacjonarną fazę wzrostu (OD600 powyżej 15), należy osadzać wystarczającą ilość komórek, aby pokryć różnorodność 50x (2000 x g, 3 min, RT). Zamrozić komórki przez odwirowanie (2000 x g, 3 min), a następnie ponownie zawiesić osad komórkowy w SD-CAA zawierającym 15% glicerolu i przechowywać w temperaturze -80 °C.
5. Druga runda wyboru koralików z 3 negatywnymi i 1 pozytywną selekcją
- Przygotuj komórki i kulki antygenu zgodnie z powyższym opisem. Przygotuj roztwór gołych kulek (bez dodawania antygenu) do selekcji negatywnej.
UWAGA: Ponieważ wykonywane są 3 selekcje negatywowe, koraliki można przygotować razem dla wszystkich trzech rund. - Po umyciu ponownie zawiesić kulki antygenu w 50 μl PBSA i ponownie zawiesić gołe kulki w 150 μl PBSA (jeśli były przygotowane do wszystkich trzech negatywnych selekcji).
- W przypadku pierwszej selekcji negatywnej dodać 50 μl przemytych gołych kulek do 950 μl umytych komórek w PBSA i inkubować przez 1,5 godziny w temperaturze 4 °C.
- Po inkubacji umieścić probówki zawierające zawiesiny gołych komórek perełkowych na stojaku magnetycznym z otwartą pokrywą. Odpipetuj płyn z pokrywki do probówki i odczekaj 2 minuty. Przenieść niezwiązane komórki do świeżej probówki do mikrowirówki i dodać 50 μl przemytych gołych kulek.
- Powtórz procedurę dla dwóch kolejnych rund selekcji negatywnej. W międzyczasie przygotuj koraliki załadowane antygenem do pozytywnej selekcji.
- Po 3 rundach selekcji negatywnej dodać do komórek 50 μl roztworu kulek obciążonego antygenem i inkubować przez 2 godziny w temperaturze 4 °C.
- Umieść komórki zawierające kulki naładowane antygenem na stojaku magnetycznym z otwartą pokrywką i odpipetuj dowolny płyn znajdujący się w pokrywce do probówki. Odczekaj 2 minuty przed wyrzuceniem niezwiązanych komórek.
- Wykonaj wszystkie pozostałe kroki zgodnie z opisem dla pierwszego wyboru kulki antygenu. Jedyną różnicą w stosunku do pierwszej selekcji dodatniej (krok 3.3.2) jest liczba etapów mycia: Zamiast myć raz za pomocą PBSA, przemyj zawiesinę komórek perełkowych dwukrotnie za pomocą PBSA, aby zwiększyć rygorystyczność selekcji.
UWAGA: Zazwyczaj różnorodność jest ponownie zmniejszana o 10x-100x. Maksymalna różnorodność biblioteki G4 po tym drugim wyborze koralików wynosiła 3,45 x 10⁵ komórek. Jak wspomniano powyżej, oczekuje się, że rzeczywista różnorodność będzie mniejsza ze względu na nadpróbkowanie biblioteki.
6. Wybór bibliotek za pomocą sortowania metodą cytometrii przepływowej
- Po całonocnej indukcji ekspresji powierzchniowej w SG-CAA, zmierz OD600, jak opisano powyżej. Osad wystarczającą ilość komórek, aby pokryć 10-krotność różnorodności (2000 x g, 5 min, RT). Odrzucić supernatant.
- Ponownie zawiesić osad w PBSA i przenieść go do probówek do mikrowirówek. Użyj 3 x 10⁷ komórek do barwienia dla każdej probówki. Przygotuj tyle probówek, ile potrzeba, w zależności od odmiany. Przygotować jedną probówkę kontrolną do barwienia bez antygenu.
UWAGA: Na przykład, jeśli ma być posortowanych 30 x 106 komórek, należy zebrać 300 x 106 komórek, aby uzyskać widoczną osadkę komórkową i zapobiec utracie komórek w kolejnych krokach. Zawiesić w 5 ml PBSA i przenieść 3-4 podwielokrotności po 500 μl każdy do probówek mikrowirówek. Przygotuj około 3 razy więcej komórek niż liczba, która powinna zostać posortowana, ponieważ część komórek zostanie utracona podczas procesu barwienia. Jeżeli selekcja jest przeprowadzana w obecności leku/liganda, należy przygotować dodatkową kontrolę z samym antygenem, ale bez leku/ligandu. - Ponownie odwirować (2000 x g, 5 min, RT), zawiesić osad w 200 μl PBSA zawierającego antygen (hRBP4 z 5 μM A1120) i inkubować przez 1 godzinę w temperaturze 4 °C.
UWAGA: Wszystkie czynności od tego momentu powinny być wykonywane na lodzie i przy użyciu zimnych odczynników. Aby zapobiec wyczerpaniu przeciwciał lub antygenu, wszystkie odczynniki powinny być dodawane w nadmiarze stechiometrycznym w porównaniu z całkowitą liczbą białek wyświetlanych przez drożdże w probówce. W przeciwnym razie może istnieć ryzyko ograniczenia wiązania wariantów wykazywanych przez drożdże ze względu na ograniczoną dostępność antygenów i/lub przeciwciał. Zwykle do obliczeń używa się 5 x 10⁴ cząsteczek na komórkę drożdży i zaleca się dodanie co najmniej 10-krotnego stochiometrycznego nadmiaru antygenu i przeciwciał. Jeśli antygen jest bardzo ograniczony, nadmiar można zmniejszyć do 5-krotności. Bardziej szczegółowe wyjaśnienie, w tym przykłady obliczeń mających na celu uniknięcie wyczerpania ligandów, znajduje się w poprzednim protokole9. - Po inkubacji odwirować komórki (2000 x g, 5 min, 4 °C) i przemyć 1 ml PBSA (jeśli podczas selekcji obecny jest lek/ligand - jak w tym przypadku A1120 - musi on być obecny w buforze myjącym).
- Zawiesić komórki w 100 μl zimnego PBSA zawierającego przeciwciała do barwienia wyświetlacza i wykrywania związanego antygenu i inkubować przez 30 minut w temperaturze 4 °C.
- Użyj przeciwciała anty-c-myc (końcowe rozcieńczenie 1:100), aby wykryć wyświetlany punkt POI na całej długości. Użyj przeciwciała anty-HA (końcowe rozcieńczenie 1:50), aby wykryć całkowitą ilość wyświetlanych białek. Użyj przeciwciała Penta-His (końcowe rozcieńczenie 1:20) lub streptawidyny (końcowe rozcieńczenie 1:200), aby wybrać komórki drożdży wiążące się z rozpuszczalnym antygenem zawierającym odpowiednio 6-krotny znacznik HIS lub biotynę.
- Stosuj naprzemiennie odczynniki detekcyjne między rundami sortowania, aby zapobiec wzbogaceniu wariantów białek, które wiążą się z odczynnikiem wtórnym.
UWAGA: Można stosować różne kombinacje fluoroforów, ale Alexa Fluor 488 i Alexa Fluor 647 są dobrymi opcjami, ponieważ nie wymagają kompensacji w cytometrii przepływowej. Aby zapobiec wyczerpaniu przeciwciał, należy je dodawać w nadmiarze stechiometrycznym w porównaniu z całkowitą liczbą białek wyświetlanych przez drożdże w probówce. Zwykle obliczenia opierają się na 5 x 10⁴ cząsteczkach na komórkę drożdży. Bardziej szczegółowe wyjaśnienie znajduje się w poprzednich protokołach9.
- Po inkubacji odwirować komórki (2000 x g, 5 min, 4 °C) i dodać 1 ml PBSA (zawierającego lek/ligand, dla biblioteki G4 wybranej przez hRBP4 5 μM A1120) do osadu i ponownie odwirować. Usuń większość supernatantu i zachowaj tylko 20-30 μl, aby zapobiec wysychaniu osadu.
- Zawiesić osad w zimnym PBSA tylko tuż przed sortowaniem i posortować pod kątem komórek drożdży wykazujących cząsteczki Fn3 o pożądanych właściwościach (tj. wiązanie z hRBP4 w obecności A1120).
UWAGA: Strategia bramkowania jest przedstawiona w Rysunek 2A. - Posortuj komórki bezpośrednio na pożywce SD-CAA, po sortowaniu dodaj więcej pożywki SD-CAA i inkubuj w temperaturze 30 °C z wytrząsaniem przy 180 obr./min.
UWAGA: W przypadku, gdy objętość znacznie się zwiększy po sortowaniu, należy przeprowadzić etap wirowania (2000 x g, 5 min, RT) w celu usunięcia nadmiaru płynu osłonowego, a komórki zawiesić ponownie w świeżej pożywce SD-CAA. Zapisz liczbę komórek posortowanych w nowej probówce, ponieważ staje się to nową maksymalną różnorodnością dla następnej rundy sortowania. Jak wspomniano powyżej, rzeczywista różnorodność biblioteki będzie mniejsza ze względu na nadpróbkowanie biblioteki. - Powtórz sortowanie metodą cytometrii przepływowej przez kilka rund, aby zobaczyć wzbogacenie wariantów białek wiążących w bibliotece drożdży ( Rysunek 2B).
UWAGA: Przydatne może być porównanie bibliotek obok siebie w eksperymencie analitycznej cytometrii przepływowej. W późniejszych rundach selekcyjnych obniżenie stężenia antygenu może być korzystne w rozróżnianiu spoiw o niższym i wyższym powinowactwie oraz sortowaniu specyficznie dla wariantów białka, które wykazują wyższy sygnał wiązania z celem przy niskich stężeniach (Figura 2C). W późniejszych rundach selekcji możliwe jest również sortowanie w celu zwiększenia termostabilności. W tym celu przeprowadzono mutagenezę losową biblioteki metodą epPCR, jak opisano w punkcie 7. Przygotuj komórki podobnie jak inne rundy sortowania cytometrycznego przepływowego przez indukcję, oznaczanie OD600 i mycie komórek. Umieść komórki drożdży w PBSA na lodzie na 10 minut, a następnie 10-minutową inkubację w termocyklerze w celu uzyskania szoku cieplnego w podwyższonej temperaturze. Następnie umieść je ponownie na lodzie na 10 minut i postępuj zgodnie z protokołem barwienia. Warianty stabilizowane są odporne na denaturację termiczną, a zatem wykazują trwałe wiązanie po inkubacji cieplnej. Różne temperatury mogą być testowane pod kątem szoku cieplnego, w zależności od początkowej termostabilności białka typu dzikiego. Zazwyczaj odpowiednie są temperatury w zakresie 40-80 °C. Jednak powyżej 48 °C żywotność komórek drożdży drastycznie spadnie. Dlatego konieczne jest wyekstrahowanie plazmidów po posortowaniu biblioteki drożdży poddanych szokowi cieplnemu, jak omówiono w kroku 7.1. W tym przypadku komórki EBY100 muszą zostać świeżo przekształcone za pomocą wzbogaconych wariantów przed przejściem do następnej rundy sortowania36. Bardziej szczegółowy protokół zwiększania termostabilności można znaleźć gdzie indziej37. Jeśli denaturacja wyświetlanego białka jest odwracalna, ta metoda nie zadziała. Alternatywnie, indukować ekspresję białka w temperaturze 37 °C zamiast 20 °C w dniu poprzedzającym sortowanie i sortować pod kątem wariantów białka, które nadal wykazują wydajną ekspozycję na całej długości.
7. Dojrzewanie powinowactwa z epPCR w celu wprowadzenia losowych mutacji
UWAGA: Dojrzewanie powinowactwa za pomocą epPCR może być przeprowadzone przed pierwszą rundą sortowania metodą cytometrii przepływowej lub pomiędzy rundami sortowania metodą cytometrii przepływowej. W celu wyboru biblioteki G4 z hRBP4 w obecności A1120 przeprowadzono dojrzewanie powinowactwa przed pierwszą rundą sortowania metodą cytometrii przepływowej. Zależy to również od wielkości biblioteki po wybraniu kulki i sygnału wiązania, który można wykryć za pomocą cytometrii przepływowej. W szczególności w przypadkach, gdy powinowactwo po selekcji kulek nie jest wystarczające do uzyskania sygnału w eksperymentach z cytometrią przepływową (ponieważ antygen szybko dysocjuje podczas etapów mycia), epPCR może generować ulepszone warianty, które można następnie wykryć i wybrać za pomocą cytometrii przepływowej.
- Wykonaj ekstrakcję DNA miniprep drożdży ze wzbogaconej biblioteki drożdży przy użyciu komercyjnego zestawu miniprep II plazmidu (patrz Tabela materiałów) z następującymi modyfikacjami:
- Zmierzyć gęstość komórek hodowli przeprowadzonej przez noc, rozcieńczyć do 0,2 OD rano i inkubować w temperaturze 30 °C z wytrząsaniem.
- Gdy OD600 osiągnie 0,6, zbierz 3 ml kultury, odwirowując komórki przy 600 x g przez 2 minuty.
- Dodać 200 μl roztworu 1 do granulki. Dodać 6 μl zymolyazy. Zawiesić osad przez strzepywanie lub łagodne wirowanie i inkubować w temperaturze 37 °C przez 3 godziny.
- Dodać 200 μl roztworu 2 i delikatnie wymieszać. Dodać 400 μl roztworu 3 i delikatnie wymieszać.
- Wirować z maksymalną prędkością przez 3 min.
- Przenieść supernatant do kolumny spin-I, odwirować z maksymalną prędkością przez 30 s i odrzucić przepływ.
- Przemyć 550 μl buforu płuczącego zawierającego etanol i odwirować z maksymalną prędkością przez 2 minuty.
- Przenieść kolumnę do czystej probówki mikrowirówkowej i wirować z maksymalną prędkością przez 2 minuty w celu usunięcia resztek buforu do płukania.
- Przenieś kolumnę do nowej probówki do mikrowirówki, dodaj 10 μl wody wolnej od nukleaz i wiruj przez 1 minutę z maksymalną prędkością, aby wymyć DNA.
- Wykonaj wstępny PCR, aby amplifikować matrycę do epPCR.
- Amplifikuj DNA metodą PCR za pomocą starterów wyżarzających na zewnątrz wkładki na powierzchni drożdży wyświetlaj wektor.
UWAGA: Ponieważ dużo genomowego DNA drożdży jest eluowane wraz z plazmidem będącym przedmiotem zainteresowania podczas miniprzygotowania drożdży, ten krok jest zalecany w celu uzyskania czystego fragmentu DNA, który ma być użyty jako matryca do epPCR. - W przypadku pCTCON2 użyj podkładów fwd 5'- GGCTCTGGTGGAGGGTAGCGGAGGGGAG
GGTCGGCTAGC i rev 5'- CTATTACAAGTCC
TCTTCAGAGAATAAGCTTTTTTGTTCGGATCC ze składnikami reakcji opisanymi w tabeli 3 i warunkami cyklicznymi przedstawionymi w tabeli 4. - Oczyść PCR za pomocą zestawu do czyszczenia PCR i DNA. Elute w 20 μl H2O, wolnej od nukleaz.
- Amplifikuj DNA metodą PCR za pomocą starterów wyżarzających na zewnątrz wkładki na powierzchni drożdży wyświetlaj wektor.
- Wykonaj epPCR, aby wprowadzić losowe mutacje.
- Wykonaj epPCR z analogami nukleotydów ze wskazanymi składnikami (Tabela 5) i warunkami (Tabela 6).
- Uruchomić cały produkt epPCR na preparatywnym 1% żelu agarozowym pod napięciem 120 V przez 45 minut. Dołączyć marker i pozostawić jeden pas między produktem epPCR a drabiną. Wyciąć żądane pasmo odpowiadające oczekiwanemu rozmiarowi wkładki, oczyścić je za pomocą zestawu do ekstrakcji żelu i zmierzyć stężenie DNA.
- Amplifikuj randomizowane DNA metodą PCR.
- Amplifikować 50 ng DNA za pomocą polimerazy Q5. Ustawić 2 x 100 μl reakcji PCR dla każdej elektroporacji (Tabela 7) we wskazanych warunkach (Tabela 8). Użyj tych samych starterów, które zostały użyte do pierwszego PCR.
UWAGA: Do elektroporacji drożdży potrzebne są duże ilości DNA. - Przeanalizować 5 μl produktu PCR na 1% żelu agarozowym, uruchamiać pod napięciem 120 V przez 45 minut.
- Amplifikować 50 ng DNA za pomocą polimerazy Q5. Ustawić 2 x 100 μl reakcji PCR dla każdej elektroporacji (Tabela 7) we wskazanych warunkach (Tabela 8). Użyj tych samych starterów, które zostały użyte do pierwszego PCR.
- Oczyść amplifikowane DNA za pomocą wytrącania etanolu.
- Zebrać razem 2 x 100 μL. Dodać 20 μl (10% objętości) sterylnego, przefiltrowanego 3 M octanu sodu o pH 5.2.
UWAGA: Ten bufor może być przygotowany z wyprzedzeniem i przechowywany przez kilka miesięcy w temperaturze pokojowej. - Dodać 440 μl 100% etanolu (lub co najmniej 2 x objętość) i inkubować w temperaturze pokojowej przez 2 minuty.
- Wirować przy 20 000 x g przez 5 minut w temperaturze pokojowej. Usunąć supernatant, dodać 500 μl 70% etanolu i krótko wymieszać.
- Wirować przy 20 000 x g przez 5 minut w temperaturze pokojowej. Usunąć supernatant, dodać 500 μl 100% etanolu i krótko wymieszać.
- Wirować przy 20 000 x g przez 5 minut w temperaturze pokojowej. Usunąć supernatant i pozostawić osad DNA do wyschnięcia pod okapem z przepływem laminarnym, aż cały etanol wyparuje.
UWAGA: Użyj bloku grzewczego o temperaturze 48 °C, aby przyspieszyć ten proces. Osad DNA może nie być widoczny przez cały czas. - Rozpuścić wysuszony osad DNA w 10 μl wolnego od nukleaz H2O.
UWAGA: DNA powinno być rozpuszczone w jak najmniejszej objętości. Nie mierz stężenia DNA.
- Zebrać razem 2 x 100 μL. Dodać 20 μl (10% objętości) sterylnego, przefiltrowanego 3 M octanu sodu o pH 5.2.
| Objętość [μL] | Końcowe stężenie | |
| 5x wzmacniacz Q5 | 10 | 1x |
| 5x bufor Q5 | 10 | 1x |
| Podkład fwd 10 μM | Rozdział 2.5 | 0,5 μM |
| Podkład rev 10 μM | Rozdział 2.5 | 0,5 μM |
| dNTP 10 mM | 1 | 200 μM |
| Polimeraza Q5 | 0,5 | 20 j./ml |
| DNA z minipreparatu drożdżowego | 10 | |
| H2O wolne od nukleaz | Rozdział 13,5 |
Tabela 3: Warunki dla pierwszego etapu PCR dla amplifikacji genów POI z izolowanego minipreparatu drożdżowego.
| krok | temperatura | Godzina |
| Początkowa denaturacja | 98 °C | 30 sekund |
| 25 cykli | 98 °C | 10 sekund |
| 72 °C | 30 sekund | |
| 72 °C | 30 sekund | |
| Końcowe przedłużenie | 72 °C | Czas trwania: 2 min |
| trzymać | 4 °C |
Tabela 4: Warunki cykliczne dla 1 etapu PCR dla amplifikacji genów POI z izolowanego miniprepu drożdżowego.
| Objętość [μL] | Końcowe stężenie | |
| H2O wolne od nukleaz | do 50 | |
| 10x bufor Thermopol | 5 | 1x |
| Primer_fwd (10 μM) | Rozdział 2.5 | 0,5 μM |
| Primer_rev (10 μM) | Rozdział 2.5 | 0,5 μM |
| dNTP (10 mM) | 1 | 200 μM |
| 8-oxo-dGTP (100 μM) | 1 | 2 μM |
| dPTP (100 μM) | 1 | 2 μM |
| Produkt PCR z 1. PCR | Xx | 50 ng |
| Polimeraza DNA Taq | 0,5 | 0,05 U/μL |
Tabela 5: Warunki dla epPCR, który jest wykonywany po amplifikacji DNA POI za pomocą pierwszego kroku PCR.
| krok | temperatura | Godzina |
| Początkowa denaturacja | 94 °C | 30 sekund |
| 15 cykli | 94 °C | 45 sekund |
| 60 °C | 30 sekund | |
| 72 °C | 1 min | |
| Końcowe przedłużenie | 72 °C | Czas trwania: 10 min |
| trzymać | 4 °C |
Tabela 6: Warunki cykliczne dla epPCR.
| Objętość [μL] | Końcowe stężenie | |
| 5x wzmacniacz Q5 | 20 | 1x |
| 5x bufor Q5 | 20 | 1x |
| Podkład fwd 10 μM | 5 | 0,5 μM |
| Podkład rev 10 μM | 5 | 0,5 μM |
| dNTP 10 mM | 1 | 200 μM |
| Polimeraza Q5 | 1 | 20 j./ml |
| 50 ng DNA | Xx | |
| ddH20 | do 100 |
Tabela 7: Warunki dla drugiego etapu PCR dla amplifikacji produktu epPCR przed elektroporacją komórek EBY100.
| krok | temperatura | Godzina |
| Początkowa denaturacja | 98 °C | 30 sekund |
| 25 cykli | 98 °C | 10 sekund |
| 72 °C | 30 sekund | |
| 72 °C | 30 sekund | |
| Końcowe przedłużenie | 72 °C | Czas trwania: 2 min |
| trzymać | 4 °C |
Tabela 8: Warunki cykliczne dla 2. etapu PCR dla amplifikacji produktu epPCR.
8. Linearyzacja wektora wyświetlacza drożdży do elektroporacji
- Linearyzuj wektor wyświetlania powierzchni drożdży pCTCON2 (plazmid Addgene #41843).
- Wykonaj trawienie na dużą skalę i użyj tego strawionego linearyzowanego wektora do wszystkich dalszych elektroporacji.
- Trawić 2 x 200 μg plazmidowego DNA pCTCON2 za pomocą Sal I przez 24 godziny w temperaturze 37 °C w celu wstępnej linearyzacji (Tabela 9).
- Trawić za pomocą NheI i BamHI przez 24 godziny w temperaturze 37 °C w celu usunięcia wkładki (tabela 10).
- Na koniec dodać 5 μl każdego enzymu do probówki (Sal I, NheI, BamHI) i ponownie inkubować przez 24 godziny w temperaturze 37 °C.
- Uruchom strawiony wektor na preparatywnym żelu agarozowym. Wytnij pasma i oczyść za pomocą zestawu do ekstrakcji żelu. Eluować wektor w 20 μl, zmierzyć stężenie DNA i dostosować je do około 2 μg/μL.
UWAGA: Trawienie plazmidu przez dłuższy czas zapewnia wystarczające rozszczepienie wkładki i spowoduje zmniejszenie tła od wektora po elektroporacji.
| DNA | 200 μg |
| 10x CutSmartBuffer | 50 μL |
| Sal I-HF (NEB) | 30 μL (60 U) |
| H2O | Do 500 μL |
Tabela 9: Warunki pierwszego etapu wielkoskalowego trawienia wektora wyświetlania powierzchni drożdży pCTCON2.
| pCTCON2 (Sal I strawiony) | 500 μL |
| 10x CutSmartBuffer | 37,5 μL |
| NheI-HF (NEB) | 15 μL (30 U) |
| BamHI-HF (NEB) | 15 μL (30 U) |
| H2O | do 875 μL |
Tabela 10: Warunki dla drugiego etapu wielkoskalowego trawienia powierzchni drożdży wektora wyświetlania pCTCON2.
9. Elektroporacja EBY100 z randomizowanym DNA i linearyzowanym wektorem
- Przygotuj ogniwa drożdży EBY100 (ATCC, patrz Tabela Materiałów), uderzając je z zapasu glicerolu 3 dni przed elektroporacją. Ponieważ nieprzekształcone komórki EBY100 nie zawierają wektora wyświetlania powierzchni drożdży, należy użyć pełnych płytek YPD (Tabela 1). Inkubować w temperaturze 30 °C.
- Na dzień przed elektroporacją należy zaszczepić jedną pojedynczą kolonię EBY100 w 30 ml świeżo przygotowanej pożywki YPD (Tabela 1). Inkubować przez noc w temperaturze 30 °C, wytrząsając z prędkością 180 obr./min.
UWAGA: Pożywka YPD nie powinna być starsza niż 1 miesiąc. - Następnego ranka rozcieńczyć nocną hodowlę EBY100 do OD600 0,2 w 100 ml pożywki YPD i inkubować w temperaturze 30 °C, wytrząsając z prędkością 180 obr./min.
UWAGA: Objętość hodowli 50 ml wystarcza na 2 elektroporacje. Zazwyczaj przygotowuje się 100 ml, aby mieć wystarczającą ilość komórek dla kontroli (tylko komórki i komórki plus wektor). - Po osiągnięciu OD600 1,3-1,5 należy zagnieździć komórki w probówkach o pojemności 50 ml o pojemności 2000 x g przez 3 minuty i usunąć supernatant.
- Zawiesić osad w 25 ml sterylnego, przefiltrowanego octanu litu o pojemności 100 mM (patrz tabela materiałów). Dodać świeżo przygotowany sterylny, przefiltrowany DTT (1 M) (patrz tabela materiałów) do końcowego stężenia 10 mM.
UWAGA: Objętość octanu litu powinna być o połowę mniejsza od pierwotnej objętości YPD. W razie potrzeby zmniejsz lub zwiększ skalę. Octan litu (100 mM) można przygotować z wyprzedzeniem i przechowywać przez kilka miesięcy w temperaturze pokojowej, ale zapas 1 M DTT powinien być przygotowany tuż przed użyciem i przechowywany na lodzie. - Inkubować komórki w temperaturze 30 °C, wytrząsając przez 10 minut.
- Wirować przy 2000 x g przez 3 minuty, odrzucić supernatant i umieścić komórki na lodzie.
UWAGA: Wszystkie poniższe czynności należy wykonywać na lodzie i schłodzonych odczynnikach, kuwetach i probówkach do mikrowirówek. - Zawiesić osad w 25 ml chłodnego sterylnego H2O. Wirować przy 2000 x g przez 3 min.
UWAGA: Używana objętość H2O powinna stanowić połowę oryginalnej objętości YPD. - Zawiesić w 350 μl sterylnego H2O.
UWAGA: Całkowita objętość po ponownym zamieszaniu powinna wynosić 500 μL. W razie potrzeby dodać więcejH2O. - Przygotuj bibliotekę DNA równolegle: Umieść probówki do mikrowirówek zawierające wkładki oczyszczone etanolem na lodzie i dodaj 4 μg zlinearyzowanego wektora pCTCON2.
- Dodaj 250 μl komórek do DNA i delikatnie wymieszaj, przecinając. Przenieść do wstępnie schłodzonej kuwety do elektroporacji o średnicy 2 mm i trzymać na lodzie aż do elektroporacji.
UWAGA: Dodaj kontrole (tylko komórki bez DNA i komórki z linearyzowanym wektorem tylko bez wstawki), aby określić powodzenie elektroporacji. - Elektroporacja za pomocą kuwet do elektroporacji 2 mm (patrz tabela materiałów) w następujących warunkach: protokół fali prostokątnej, pojedynczy impuls, 500 V, czas trwania impulsu 15 ms.
UWAGA: Typowe opadanie wynosi 3%- 9%. Można użyć innych elektroporatorów, ale wskazane warunki są zoptymalizowane dla instrumentu użytego w tym badaniu. - Uratować komórki za pomocą 1 ml wstępnie podgrzanego YPD, przenieść do wstępnie podgrzanej probówki wirówkowej i inkubować bez wstrząsania przez 1 godzinę w temperaturze 30 °C.
UWAGA: Umieść blok grzewczy obok elektroporatora, aby upewnić się, że rurki regeneracyjne pozostają w odpowiedniej temperaturze. - Na płytkach SD-CAA należy umieścić 100 μl rozcieńczeń 10-3, 10-4, 10-5 i 10-6 komórek (patrz Tabela 1) i umożliwić wzrost transformantów w temperaturze 30 °C.
UWAGA: Teoretyczne zróżnicowanie biblioteki uzyskuje się poprzez obliczenie z powrotem liczby transformantów do oryginalnej objętości kultury, tutaj 1 ml. Zazwyczaj ten protokół transformacji daje około 107-10 8 przekształconych komórek.
Pozostałe komórki osadzać - w temperaturze 2000 x g przez 3 minuty, ponownie zawiesić w 200 ml SD-CAA i inkubować w temperaturze 30 °C z wytrząsaniem przy 180 obr./min przez noc. Przekształcone komórki zawierające bibliotekę randomizowaną epPCR mogą być albo pasażowane w SD-CAA i indukowane do ekspresji powierzchniowej w SG-CAA następnego dnia, albo przechowywane w temperaturze 4 °C do dalszego użycia. Zamrozić zapasy glicerolu w bibliotece po epPCR po określeniu różnorodności. Ponieważ następnego dnia część komórek będzie nadal nieprzekształconymi komórkami, które zostały przeniesione w procedurze transformacji bez uzyskania plazmidu, zaleca się przejście co najmniej 20-krotnego zwiększenia różnorodności biblioteki w pierwszym etapie pasażowania, aby skompensować ten efekt.
10. Sekwencjonowanie bibliotek drożdży po kilku rundach selekcji
- Wyekstrahuj DNA drożdży, wykonując miniprep drożdży, jak opisano powyżej.
- Elektroporować komercyjne komórki elektrokompetentne E. coli 10-beta (patrz tabela materiałów) za pomocą wyizolowanego DNA.
- Umieść kuwety do elektroporacji (1 mm, patrz tabela materiałów) i probówki do mikrowirówek na lodzie. Wstępnie ogrzej probówki do mikrowirówek z 950 μl pożywki w temperaturze 37 °C w celu odzyskania komórek po elektroporacji.
- Rozmrozić komórki na lodzie i wymieszać, delikatnie przesuwając rurkę. Przenieść 50 μl komórek do schłodzonej probówki mikrowirówkowej. Dodać 1 μl drożdżowego miniprepu DNA.
- Ostrożnie przenieś mieszaninę komórka i DNA do schłodzonej kuwety do elektroporacji.
UWAGA: Unikaj pęcherzyków i upewnij się, że ogniwa osadzają się na dnie kuwety. - Elektroporować za pomocą urządzenia do elektroporacji w następujących warunkach: 2,0 kV; 200 Ω; 25 μF.
UWAGA: Typowe stałe czasowe to 4,8-5,1 ms. Można użyć innych elektroporatorów, ale wskazane warunki są zoptymalizowane dla instrumentu użytego w tym badaniu. - Natychmiast dodać 950 μl wstępnie podgrzanego podłoża o temperaturze 37 °C (patrz Tabela Materiałów) do kuwet, delikatnie wymieszać i przenieść z powrotem do ciepłych probówek do mikrowirówek.
UWAGA: Umieść blok grzewczy obok elektroporatora, aby upewnić się, że rurki regeneracyjne pozostają w odpowiedniej temperaturze. - Inkubować przez 40 minut w temperaturze 37 °C i 300 obr./min. Płytkę 10 μl, 100 μl i resztę komórek (po odwirowaniu) na wstępnie ogrzaną selektywną płytkę LB (patrz Tabela 1). Inkubować płytki przez noc w temperaturze 37 °C.
UWAGA: W przypadku wektora pCTCON2 ampicylina jest używana do selekcji antybiotyków. - Przygotować płytkę kopiującą z agarem LB i wymaganym antybiotykiem (tutaj stosuje się ampicylinę): odpipetować 200 μl agaru LB ze 100 μg/ml ampicyliny w każdym dołku na płytce 96-dołkowej i pozostawić do zestalenia.
- Przygotować 96-dołkową płytkę do sekwencjonowania z 50 μl LB i 100 μg/ml ampicyliny na studzienkę.
- Wybierz pojedynczą kolonię z płytek i najpierw zaszczepij płytkę kopiującą i ten sam dołek płytki sekwencjonującej.
UWAGA: Płytka kopiująca zapewnia, że pożądane plazmidy można łatwo uzyskać poprzez zaszczepienie płynnej kultury i wykonanie miniprepucji. - Inkubować płytkę kopiującą przez noc w temperaturze 37 °C, a następnie przechowywać w temperaturze 4 °C.
- Inkubować płytkę sekwencyjną przez 3-4 godziny w temperaturze 37 °C, wytrząsając (180 obr./min), przykrytą folią z tworzywa sztucznego lub aluminium.
- Uszczelnij płytkę sekwencyjną i wyślij ją do sekwencjonowania wraz z 500 μL 10 μM startera sekwencjonowania pCTCON2 (5'-CGTTTGTCAGTAATTGCGGTTCTC).
- W celu analizy sekwencji należy przetłumaczyć uzyskane sekwencje DNA na sekwencje aminokwasów za pomocą odpowiedniego wybranego programu, na przykład EMBOSS Transeq38. Następnie użyj Multiple Sequence Alignment (MUSCLE)39 lub podobnego narzędzia do wyrównywania, aby wyrównać sekwencje wariantów względem siebie i do rodzicielskiego białka typu dzikiego.
UWAGA: Przeprowadzając sekwencjonowanie bibliotek różnych rund selekcji (na przykład po wcześniejszej rundzie selekcji, a także po dodatkowych rundach selekcji o niższych stężeniach antygenu w celu wzbogacenia wariantów o wysokim powinowactwie), możliwa jest identyfikacja różnych wariantów. Jest to w dużym stopniu uzależnione od surowości bramek stosowanych podczas rund sortowania, a co za tym idzie, od różnorodności bibliotek .
Wyniki
Bibliotekę G4 wyselekcjonowano przeciwko antygenowi hRBP4 związanemu z małocząsteczkowym lekiem A1120. Barwienie bibliotek do sortowania cytometrycznego przeprowadzono zgodnie z opisem w Metodzie 6, a zastosowaną strategię bramkowania przedstawiono na Rysunku 2A. Pierwsza brama obejmowała wszystkie komórki na podstawie ich morfologii, a druga brama (histogram szerokości FSC) wykazała rygorystyczną strategię bramkowania zastosowaną w celu wyselekcjonowania pojedynczych komórek i usunięcia agregatów komórkowych. Trzecia i ostatnia brama przedstawiała ekspresję wariantów białkowych (oś x) w stosunku do wiązania antygenu (oś y). Sortowano komórki drożdży wykazujące zarówno sygnał ekspresji, jak i wiązania. Co istotne, brama sortowania została ustawiona w sposób rygorystyczny, aby wzbogacić domeny wiążące o silny sygnał wiązania, a tym samym wysokim powinowactwie. Ta rygorystyczna selekcja doprowadziła do wzbogacenia populacji ekspresyjnych komórek drożdży specyficznie wiążących docelowy antygen w trakcie całego procesu selekcji (Rysunek 2B). W późniejszych rundach sortowania cytometrycznego stężenie antygenu zmniejszono 10-krotnie (ze 100 nM do 10 nM). W konsekwencji całkowity sygnał wiązania uległ zmniejszeniu, a wykrywalne i sortowane były nadal jedynie białka wiążące o wysokim powinowactwie (Rysunek 2C).
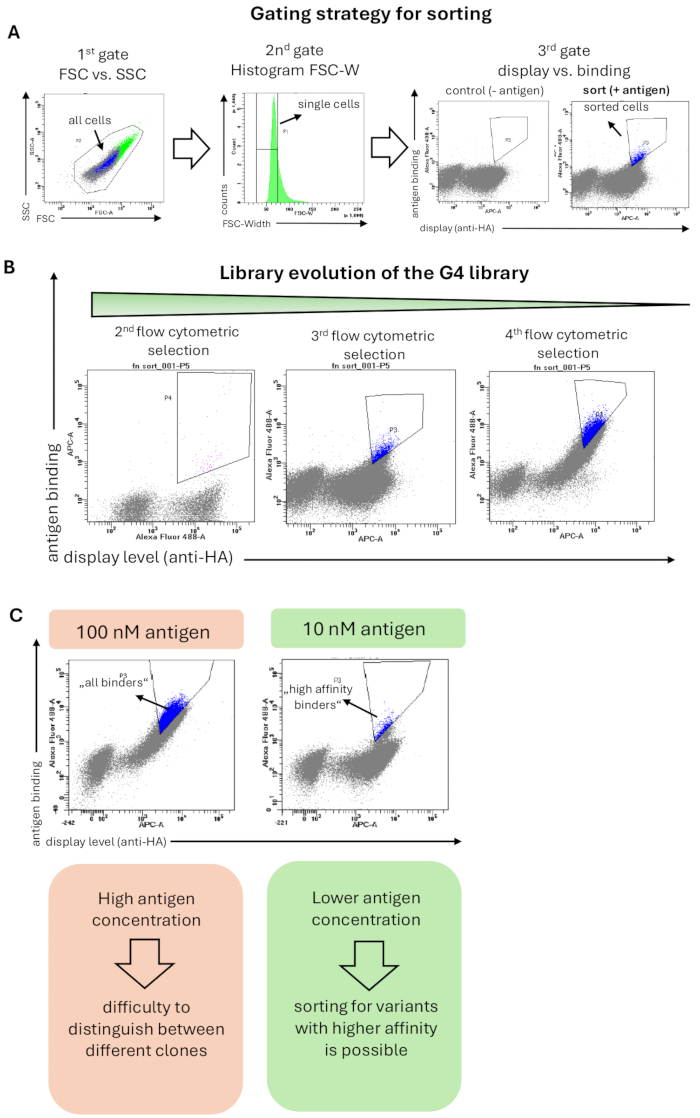
Rycina 2: Reprezentatywne wyniki selekcji biblioteki G4 opartej na Fn3 z wykorzystaniem ekspozycji powierzchniowej drożdży w celu wiązania antygenu (hRBP4 w obecności A1120). (A) Ogólna strategia bramkowania dla sortowania bibliotek drożdżowych. Pierwsza brama (FSC vs. SSC) służy do wyboru wszystkich komórek drożdży i wykluczenia zdarzeń rozproszenia; druga brama (histogram FSC-W) ma na celu usunięcie agregatów komórkowych i wybór wyłącznie pojedynczych komórek drożdży. Trzecia brama przedstawia poziom ekspozycji powierzchniowej (detekcja znacznika HA lub c-myc) w stosunku do wiązania antygenu (tutaj hRBP4 w obecności 5 µM A1120, wykrywanego za pomocą przeciwciał anty-His). Bibliotekę barwiono dodatkowo wyłącznie przeciwciałami wtórnymi (bez antygenu), gdzie nie oczekuje się wiązania antygenu. Posortowane komórki zaznaczono kolorem niebieskim. (B) Ewolucja biblioteki G4 w ciągu 3 rund sortowania cytometrycznego. W każdej rundzie selekcji można zaobserwować wzbogacenie populacji wiążącej. (C) Zastosowanie niższych stężeń antygenu umożliwia selekcję wariantów białkowych o wyższym powinowactwie do docelowego antygenu. Po 10-krotnym zmniejszeniu stężenia antygenu (tutaj hRBP4) pojawiają się inne przekątne, co wskazuje na obecność klonów o wyższym (posortowane komórki, kolor niebieski) lub niższym powinowactwie. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
Dyskusja
Wyświetlanie powierzchni drożdży ewoluowało jako jedna z kluczowych metod stosowanych w inżynierii białek. Chociaż jest powszechnie stosowany do inżynierii powinowactwa 1,18,40,41, ekspresji/stabilności 24,27,42,43 i aktywności28,44, dalsze zastosowania, takie jak mapowanie epitopów45,46 lub charakterystyka poszczególnych mutantów na powierzchni komórek drożdży9 są również możliwe. W tym protokole przedstawiamy podstawowe kroki do rozpoczęcia kampanii wyboru powierzchni drożdży, w tym selekcję za pomocą kulek magnetycznych i sortowania metodą cytometrii przepływowej, a także dywersyfikację biblioteki drożdży przez epPCR w celu dojrzewania powinowactwa.
Jednym z podstawowych wymagań przy konwencjonalnym wyborze powierzchni drożdży jest dostępność rozpuszczalnego białka o odpowiedniej jakości. Rozpoczęcie od dobrze sfałdowanego białka docelowego o wysokiej czystości i określonym stanie oligomeryzacji (tj. białko monomeryczne powinno być obecne tylko jako monomer) zapewnia najwyższy wskaźnik sukcesu w selekcji wariantu białka wiążącego się z docelowym antygenem o wysokim powinowactwie. Alternatywą dla trudnych do ekspresji białek docelowych jest selekcja komórkowa, która stanowi rozsądną strategię obejścia tego ograniczenia47. Wyświetlanie powierzchni drożdży ma jednak wiele zalet, takich jak możliwość charakteryzowania otrzymanych wariantów białek bezpośrednio na powierzchni drożdży bez konieczności wykonywania pracochłonnego i czasochłonnego klonowania, ekspresji w postaci rozpuszczalnej i oczyszczania białka. Zarówno powinowactwo, jak i stabilność wariantów można analizować bezpośrednio na powierzchni drożdży9.
W tym protokole pokazujemy, w jaki sposób biblioteka wariantów białek G4, a dokładniej 10.domeny typu III ludzkiej fibronektyny, została wybrana do wiązania się z antygenem hRBP4 w obecności małej cząsteczki A1120. Połączenie selekcji kulek i sortowania metodą cytometrii przepływowej dało wzbogacenie wariantów, które wykazały zwiększone wiązanie z docelowym antygenem podczas rund selekcyjnych (Figura 2B). Wykazaliśmy, że zastosowanie niższych stężeń antygenu umożliwia selekcję wariantów białka o wysokim powinowactwie (ryc. 2C). Zazwyczaj powinowactwo, które można osiągnąć za pomocą selekcji drożdży, mieści się w zakresie nanomolowym lub nawet pikomolarnym18. Końcowe powinowactwo zależy od docelowego antygenu, liczby rund selekcyjnych i dojrzewania powinowactwa, użytego rusztowania wiążącego i zastosowanej strategii bramkowania. Charakterystyka poszczególnych wariantów białek nie jest objęta tym protokołem, ale została szczegółowo wyjaśniona w naszej poprzedniej pracy9. Chociaż wyświetlanie drożdży było pierwotnie stosowane do inżynierii fragmentów przeciwciał, takich jak scFvs 1,40, metoda ta jest szeroko stosowana również w przypadku białek nieopartych na przeciwciałach10.
Podsumowując, wyświetlanie powierzchni drożdży jest potężnym narzędziem inżynierii białkowej, które umożliwia generowanie wariantów białek o nowych lub ulepszonych właściwościach, takich jak wiązanie się z prawie każdym białkiem docelowym i/lub zwiększona stabilność.
Oświadczenia
M.W.T. otrzymuje dofinansowanie od Miltenyi Biotec. Wszyscy autorzy są wynalazcami w zgłoszeniach patentowych dotyczących technologii i zmodyfikowanych białek, które zostały opracowane przy użyciu wyświetlacza powierzchni drożdży.
Podziękowania
Ta praca była wspierana przez Austriacki Fundusz Naukowy (FWF Project W1224 - Doctoral Program on Biomolecular Technology of Proteins - BioToP and FWF Project ESP 465-B), Federalne Ministerstwo Cyfryzacji i Gospodarki Austrii, Narodową Fundację Badań, Technologii i Rozwoju Austrii do Christian Doppler Research Association (Christian Doppler Laboratory for Next Generation CAR T Cells), oraz poprzez prywatne darowizny na rzecz Instytutu Badań nad Rakiem Dziecięcym im. św. Anny (Wiedeń, Austria). E.S. jest stypendystką Austriackiej Akademii Nauk w Instytucie Badań nad Rakiem Dziecięcym im. św. Anny. Figury zostały stworzone przy użyciu BioRender.com.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 10-beta elektrokompetentna E. coli | NEB | C3020K | |
| Agar-Agar, Kobe I | Carl Roth | 5210.5 | |
| Sól sodowa ampicyliny | Carl Roth | K029.2 | |
| Przeciwciało anty-c-myc, klon 9E10, AF488 | Invitrogen | MA1-980-A488 (Thermo Fisher) | |
| Przeciwciało anty-c-myc, klon 9E10, AF647 | Invitrogen | MA1-980-A647 (Thermo Fisher) | |
| Przeciwciało anty-HA, klon 16B12, AF488 | BioLegend | 901509 (Biozym)Przeciwciało | |
| anty-HA, klon 16B12, AF647 | BioLegend | 682404 (Biozym) | |
| BamHI-HF | NEB | R3136S Albumina | |
| surowicy bydlęcej, zimna frakcja etanolowa | Sigma-Aldrich | A4503 | |
| Monohydrat kwasu cytrynowego | Sigma-Aldrich | C1909 | |
| D-Galaktoza | Carl Roth | 4987.2 | |
| D-Glucose | Sigma-Aldrich | G8270 | |
| Drożdże Difco baza azotowa | Becton Dickinson (BD) | 291940 | |
| Wodorofosforan di-sodowy siedmiowodny | Carl Roth | X987.3 | |
| DL-Dithiothreitol | Sigma-Aldrich | D0632 | |
| D-Sorbitol | Carl Roth | 6213.1 | |
| Dulbecco' s sól fizjologiczna buforowana fosforanami (10x) | Thermo Scientific | 14190169 | |
| Dynabeads Biotyna Binder | Invitrogen | 11047 (Fisher Scientific) | |
| Magnes DynaMag-2 | Thermo Fisher | 12321D | |
| EBY100 | ATCC | MYA-4941 | |
| Kuweta do elektroporacji 1 mm (do E.coli) | VWR | 732-1135 | |
| Kuweta elektroporacyjna 2 mm (do drożdży) | VWR | 732-1136 | |
| Absolutny etanol | MERCK | 1070172511 | |
| Zestaw do mutagenezy losowej GeneMorph II | Agilent Technologies | 200550 | |
| Gibco Bacto Casamino Acids | Becton Dickinson (BD) | 223120 | |
| Glicerol | AppliChem | 131339.1211 | |
| LE agaroza& nbsp; | Biozym | 840004 | |
| Octan litu dwuwodny | Sigma-Aldrich | L4158 | |
| Zestaw do ekstrakcji żelem DNA Monarch | NEB | T1020S | |
| Monarch PCR & Zestaw do oczyszczania DNA | NEB | T1030S | |
| Multifuge 1S-R | Heraeus | ||
| NheI-HF | NEB | R3131S | |
| Pożywka wzrostowa | NEB | B9035S | |
| pCTCON2 | Addgene | #41843 | |
| Sól sodowa penicyliny G | Przeciwciało Sigma-Aldrich | P3032 | |
| Penta-He, AF488 | Qiagen | 35310 | |
| Przeciwciało Penta-His, AF647 | Qiagen | 35370 | |
| Pepton ex kazeina trawiona tryptycznie | Carl Roth | 8986.3 | |
| Q5 Polimeraza DNA o wysokiej wierności | NEB | M0491S | |
| SaII-HF | NEB | R3138S | |
| Octan sodu | Sigma-Aldrich | S8750-1KG | |
| Chlorek sodu | Carl Roth | 3957.2 | |
| Diwodorofosforan sodu jednowodny | Carl Roth | K300.2 | |
| Filtr butelkowy z gwintem Steritop | MERCK | S2GPT01RE | |
| Streptawidyna, AF488 | Invitrogen | S32354 (Thermo Fisher) | |
| Streptawidyna, AF647 | Invitrogen | S32357 (Thermo Fisher) | |
| Siarczan streptomycyny | Sigma-Aldrich | S6501 | |
| Cytrynian tri-sodu dwuwodny | Carl Roth | 4088.1 | |
| Spektrofotometr UV-Vis | Agilent | 8453 | |
| Ekstrakt drożdżowy, mikrogranulat | Carl Roth | 2904.4 | |
| Zymoprep Plazmid drożdżowy Miniprep II | Zymo Research | D2004 |
Bibliografia
- Boder, E. T., Wittrup, K. D. Yeast surface display for screening combinatorial polypeptide libraries. Nat Biotechnol. 15 (6), 553-557 (1997).
- Scott, J. K., Smith, G. P. Searching for peptide ligands with an epitope library. Science. 249 (4967), 386-390 (1990).
- Smith, G. P. Filamentous fusion phage: novel expression vectors that display cloned antigens on the virion surface. Science. 228 (4705), 1315-1317 (1985).
- Schaffitzel, C., Hanes, J., Jermutus, L., Pluckthun, A. Ribosome display: an in vitro method for selection and evolution of antibodies from libraries. J Immunol Methods. 231 (1-2), 119-135 (1999).
- Ho, M., Nagata, S., Pastan, I. Isolation of anti-CD22 Fv with high affinity by Fv display on human cells. Proc Natl Acad Sci U S A. 103 (25), 9637-9642 (2006).
- Wagner, A., et al. Identification of activating mutations in the transmembrane and extracellular domains of EGFR. Biochemistry. 61 (19), 2049-2062 (2022).
- Wagner, A., et al. PhosphoFlowSeq - A high-throughput kinase activity assay for screening drug resistance mutations in EGFR. J Mol Biol. 433 (22), 167210(2021).
- Cherf, G. M., Cochran, J. R. Applications of yeast surface display for protein engineering. Methods Mol Biol. 1319, 155-175 (2015).
- Zajc, C. U., Teufl, M., Traxlmayr, M. W. Affinity and stability analysis of yeast displayed proteins. Methods Mol Biol. 2491, 155-173 (2022).
- Gai, S. A., Wittrup, K. D. Yeast surface display for protein engineering and characterization. Curr Opin Struct Biol. 17 (4), 467-473 (2007).
- Orr, B. A., Carr, L. M., Wittrup, K. D., Roy, E. J., Kranz, D. M. Rapid method for measuring ScFv thermal stability by yeast surface display. Biotechnol Prog. 19 (2), 631-638 (2003).
- Teufl, M., Zajc, C. U., Traxlmayr, M. W. Engineering strategies to overcome the stability-function trade-off in proteins. ACS Synth Biol. 11 (3), 1030-1039 (2022).
- Wozniak-Knopp, G., et al. Introducing antigen-binding sites in structural loops of immunoglobulin constant domains: Fc fragments with engineered HER2/neu-binding sites and antibody properties. Protein Eng Des Sel. 23 (4), 289-297 (2010).
- Traxlmayr, M. W., et al. Directed evolution of stabilized IgG1-Fc scaffolds by application of strong heat shock to libraries displayed on yeast. Biochim Biophys Acta. 1824 (4), 542-549 (2012).
- Traxlmayr, M. W., et al. Directed evolution of Her2/neu-binding IgG1-Fc for improved stability and resistance to aggregation by using yeast surface display. Protein Eng Des Sel. 26 (4), 255-265 (2013).
- Hasenhindl, C., et al. Stability assessment on a library scale: a rapid method for the evaluation of the commutability and insertion of residues in C-terminal loops of the CH3 domains of IgG1-Fc. Protein Eng Des Sel. 26 (10), 675-682 (2013).
- Koide, A., Wojcik, J., Gilbreth, R. N., Hoey, R. J., Koide, S. Teaching an old scaffold new tricks: monobodies constructed using alternative surfaces of the FN3 scaffold. J Mol Biol. 415 (2), 393-405 (2012).
- Hackel, B. J., Kapila, A., Wittrup, K. D. Picomolar affinity fibronectin domains engineered utilizing loop length diversity, recursive mutagenesis, and loop shuffling. J Mol Biol. 381 (5), 1238-1252 (2008).
- Traxlmayr, M. W., et al. Strong enrichment of aromatic residues in binding sites from a charge-neutralized hyperthermostable Sso7d scaffold library. J Biol Chem. 291 (43), 22496-22508 (2016).
- Zajc, C. U., et al. A conformation-specific ON-switch for controlling CAR T cells with an orally available drug. Proc Natl Acad Sci U S A. 117 (26), 14926-14935 (2020).
- Moore, S. J., Cochran, J. R. Engineering knottins as novel binding agents. Methods Enzymol. 503, 223-251 (2012).
- Hackel, B. J., Ackerman, M. E., Howland, S. W., Wittrup, K. D. Stability and CDR composition biases enrich binder functionality landscapes. J Mol Biol. 401 (1), 84-96 (2010).
- Hackel, B. J., Wittrup, K. D. The full amino acid repertoire is superior to serine/tyrosine for selection of high affinity immunoglobulin G binders from the fibronectin scaffold. Protein Eng Des Sel. 23 (4), 211-219 (2010).
- Laurent, E., et al. Directed evolution of stabilized monomeric CD19 for monovalent CAR interaction studies and monitoring of CAR-T cell patients. ACS Synth Biol. 10 (5), 1184-1198 (2021).
- Julian, M. C., et al. Co-evolution of affinity and stability of grafted amyloid-motif domain antibodies. Protein Eng Des Sel. 28 (10), 339-350 (2015).
- Cochran, J. R., Kim, Y. S., Lippow, S. M., Rao, B., Wittrup, K. D. Improved mutants from directed evolution are biased to orthologous substitutions. Protein Eng Des Sel. 19 (6), 245-253 (2006).
- Kieke, M. C., et al. High affinity T cell receptors from yeast display libraries block T cell activation by superantigens. J Mol Biol. 307 (5), 1305-1315 (2001).
- Lipovsek, D., et al. Selection of horseradish peroxidase variants with enhanced enantioselectivity by yeast surface display. Chem Biol. 14 (10), 1176-1185 (2007).
- Fushimi, T., et al. Mutant firefly luciferases with improved specific activity and dATP discrimination constructed by yeast cell surface engineering. Appl Microbiol Biotechnol. 97 (9), 4003-4011 (2013).
- Lam, S. S., et al. Directed evolution of APEX2 for electron microscopy and proximity labeling. Nat Methods. 12 (1), 51-54 (2015).
- Park, S. W., Lee, D. S., Kim, Y. S. Engineering a U-box of E3 ligase E4B through yeast surface display-based functional screening generates a variant with enhanced ubiquitin ligase activity. Biochem Biophys Res Commun. 612, 147-153 (2022).
- Schutz, M., et al. Directed evolution of G protein-coupled receptors in yeast for higher functional production in eukaryotic expression hosts. Sci Rep. 6, 21508(2016).
- Angelini, A., et al. Protein engineering and selection using yeast surface display. Methods Mol Biol. 1319, 3-36 (2015).
- Chen, T. F., de Picciotto, S., Hackel, B. J., Wittrup, K. D. Engineering fibronectin-based binding proteins by yeast surface display. Methods Enzymol. 523, 303-326 (2013).
- Shusta, E. V., Holler, P. D., Kieke, M. C., Kranz, D. M., Wittrup, K. D. Directed evolution of a stable scaffold for T-cell receptor engineering. Nat Biotechnol. 18 (7), 754-759 (2000).
- Traxlmayr, M. W., Obinger, C. Directed evolution of proteins for increased stability and expression using yeast display. Arch Biochem Biophys. 526 (2), 174-180 (2012).
- Traxlmayr, M. W., Shusta, E. V. Directed evolution of protein thermal stability using yeast surface display. Methods Mol Biol. 1575, 45-65 (2017).
- Madeira, F., et al. The EMBL-EBI Job Dispatcher sequence analysis tools framework in 2024. Nucleic Acids Res. 52 (W1), W521-W525 (2024).
- Edgar, R. C. MUSCLE: multiple sequence alignment with high accuracy and high throughput. Nucleic Acids Res. 32 (5), 1792-1797 (2004).
- Chao, G., et al. Isolating and engineering human antibodies using yeast surface display. Nat Protoc. 1 (2), 755-768 (2006).
- VanAntwerp, J. J., Wittrup, K. D. Fine affinity discrimination by yeast surface display and flow cytometry. Biotechnol Prog. 16 (1), 31-37 (2000).
- McConnell, A. D., et al. A general approach to antibody thermostabilization. MAbs. 6 (5), 1274-1282 (2014).
- Pavoor, T. V., Wheasler, J. A., Kamat, V., Shusta, E. V. An enhanced approach for engineering thermally stable proteins using yeast display. Protein Eng Des Sel. 25 (10), 625-630 (2012).
- Chen, I., Dorr, B. M., Liu, D. R. A general strategy for the evolution of bond-forming enzymes using yeast display. Proc Natl Acad Sci U S A. 108 (28), 11399-11404 (2011).
- Traxlmayr, M. W., et al. Construction of a stability landscape of the CH3 domain of human IgG1 by combining directed evolution with high throughput sequencing. J Mol Biol. 423 (3), 397-412 (2012).
- Chao, G., Cochran, J. R., Wittrup, K. D. Fine epitope mapping of anti-epidermal growth factor receptor antibodies through random mutagenesis and yeast surface display. J Mol Biol. 342 (2), 539-550 (2004).
- Stern, L. A., et al. Cellular-based selections aid yeast-display discovery of genuine cell-binding ligands: Targeting oncology vascular biomarker CD276. ACS Comb Sci. 21 (3), 207-222 (2019).
Przedruki i uprawnienia
