W pracy przedstawiono prosty, przyjazny dla użytkownika ratiometryczny test FRET do wykrywania i ilościowej oceny aktywności DNazy oraz wykazano jego zastosowanie w analizie słabej nukleazy.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Ocena aktywności DNazy za pomocą ratiometrycznego transferu energii rezonansu fluorescencji
W tym artykule
Podsumowanie
Streszczenie
Niniejszy protokół opisuje prosty i czuły ratiometryczny test rezonansowego transferu energii Förstera (FRET) do wykrywania i ilościowej oceny aktywności DNazy. Ratiometryczne pomiary FRET wykorzystują stosunek sygnałów emisyjnych donorowych i akceptorowych. Test wykrywa pęknięcia jednoniciowego DNA za pomocą zszywkowatej, podwójnie znakowanej 38-merowej oligosondy FRET, wykorzystywanej jako czujnik rozszczepienia DNA w czasie rzeczywistym. Głównym zastosowaniem opisanego podejścia jest ilościowa ocena wpływu warunków reakcji, takich jak pH, temperatura i skład buforu, na aktywność DNazy. Ze względu na swoją zdolność do wykrywania nawet niewielkiego i powolnego rozszczepienia DNA, test ten szczególnie dobrze nadaje się do badania słabej aktywności nukleolitycznej wymagającej dłuższych okresów obserwacji oraz do badania wpływu pH na aktywność DNazy. Te szczególne zalety tego ratiometrycznego protokołu FRET ilustruje jego zastosowanie do wykrywania i analizy aktywności DNazy inhibitora elastazy leukocytarnej (LEI).
Wprowadzenie
Metoda fluorescencji ratiometrycznej to metoda analityczna wykorzystująca stosunki sygnałów fluorescencyjnych zamiast polegania wyłącznie na intensywności pojedynczego sygnału1,2. Zaletą stosowania stosunków jest to, że zapewniają one wewnętrzną kalibrację i kompensują wiele czynników losowych, takich jak różnice w stężeniach próbek i sond, parametry aparatury itp. Zwiększa to dokładność i czułość sond fluorescencyjnych.
W konkretnym kontekście sond do transferu energii rezonansowej Förstera (FRET), termin „ratiometryczny” odnosi się do faktu, że pomiar opiera się na stosunku dwóch sygnałów emisji pochodzących z pary fluoroforów: donora i akceptora FRET. Aby ilościowo określić aktywność badanego analitu, ratiometryczne sondy FRET wykorzystują stosunek intensywności emisji akceptora do donora (lub w niektórych przypadkach odwrócony stosunek donora do akceptora). Stosunek ten jest bezpośrednio powiązany z wydajnością FRET. Zapewnia on mechanizm samonormalizacji, który minimalizuje szum tła i uwzględnia różnice w warunkach oświetlenia oraz stężeniu sondy3.
Niedawne interesujące zastosowania metody ratiometrycznej obejmują jej wykorzystanie w ratiometrycznych biosensorach elektrochemicznych do wykrywania krążącego DNA nowotworowego (ctDNA)4,5, w bio-nanomaszynach napędzanych ruchem Browna do detekcji FRET fazy fagocytycznej apoptozy6 oraz do ekspresyjnego znakowania FRET i analizy oczyszczania fagocytycznego7. Opisane w niniejszej pracy podejście ratiometryczne FRET jest przydatne do ilościowej oceny aktywności DNazy. Pomiary w tym teście opierają się na stosunkach emisji pary FRET. Dzięki zdolności do wykrywania nawet niewielkiego i powolnego rozszczepienia DNA, test ten jest szczególnie odpowiedni do badania słabej aktywności nukleolitycznej wymagającej dłuższych okresów obserwacji oraz do eksperymentów przy różnych poziomach pH.
W niniejszym opracowaniu niektóre konkretne zalety ratiometrycznego testu FRET zostaną zilustrowane poprzez jego zastosowanie w badaniu aktywności DNazy słabego inhibitora nukleazy-elastazy leukocytowej (LEI). Raport zawiera szczegółowy protokół z instrukcjami krok po kroku oraz opis ratiometrycznej analizy danych.
Opis ratiometrycznej sondy FRET
Ratiometryczna sonda FRET to samouzupełniający się 38-merowy oligonukleotyd DNA zawierający parę FRET donor-akceptor FAM-TAM (fluoresceina-tetrametylorodamina). Jego sekwencja to 5'-AAGGGT(TAM) CCTGCTGCAGGACCCTTAACGCATTATGCGT(FAM)T-3'. Samohybrydyzujący 38-mer przyjmuje konformację w kształcie zszywki, składającą się z dwóch połączonych spinek o długości 23 i 15 nukleotydów, co pozycjonuje oba fluorofory w odległości 23,8 Å od siebie. Jest to znacznie mniejsza odległość niż promień Förstera dla tej pary, R0 = 55 Å8. Takie rozmieszczenie odpowiada bardzo wysokiej wydajności przeniesienia energii z donora na akceptor7: EFRET = 0,993477. W rezultacie, przy naświetlaniu długością fali wzbudzenia FAM (488 nm), sonda FRET emituje fluorescencję o długości fali emisji akceptora TAM (580 nm), podczas gdy emisja FAM (525 nm) jest tłumiona.
Rysunek 1A przedstawia przewidzianą przez UNAFold strukturę drugorzędową sondy, z małymi pętlami w obu wierzchołkach spinek do włosów, wynikającymi z zawady sterycznej spowodowanej dużym zakrzywieniem. Schemat wykrywania pęknięć DNA za pomocą sondy FRET przedstawiono na Rysunku 1B. Pokazuje on, że rozszczepienie oligosondy przez DNazę rozdziela parę FRET. Separacja ta powoduje drastyczne zmiany w widmach emisji obu fluoroforów w sondzie. Rysunek 1C prezentuje widma emisji sondy przed i po jej przecięciu i demonstruje, że rozdzielenie pary FRET po przecięciu sondy przez DNazę II zwiększa emisję donora przy 525 nm (ID 525 nm) i jednocześnie zmniejsza emisję akceptora przy 580 nm (IA 580 nm). Rysunek 1D przedstawia żel PAGE oraz stosunki FRET odpowiadające widmom emisji. Przecięcie sondy przez DNazę II spowodowało powstanie dwóch szerokich prążków odpowiadających fragmentom FAM (zielony) o długości 12–16 nukleotydów oraz TAM (czerwony) o długości 20–24 nukleotydów, co wskazuje na losowe cięcia 38-meru po obu stronach T23 w pobliżu obszaru połączenia między spinkami do włosów.
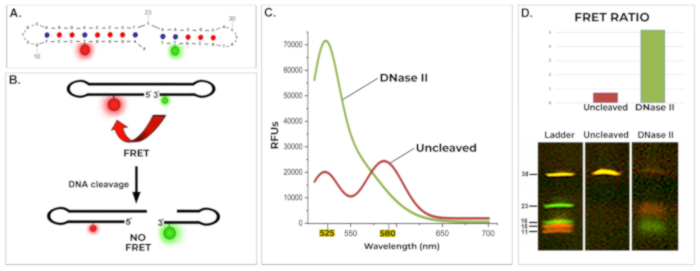
Rycina 1: Budowa i zasada działania ratiometrycznej sondy FRET. (A) Przewidywana struktura drugorzędowa sondy FRET wygenerowana przez program UNAFold. (B) Schematyczna reprezentacja działającej sondy FRET. Ratiometryczna sonda FRET to 38-merowy oligonukleotyd w kształcie zszywki, znakowany donorem FRET (FAM) i akceptorem (TAM) w efektywnej odległości FRET wynoszącej 23,8 Å, co zapewnia wydajność FRET >99%. Cięcie oligosondy przez DNazę rozdziela parę FRET, znosząc efekt FRET. (C) Widma emisji sondy FRET przed i po cięciu zapośredniczonym przez DNazę II. Przed cięciem emisja FAM jest stłumiona, a emisja TAM jest wyraźna. Cięcie zapośredniczone przez DNazę rozdziela FAM i TAM, przywracając emisję FAM (piki przy 525 nm) i znosząc emisję TAM (spadek przy 580 nm). λwzbudzenia = 488 nm. (D) Ocena ratiometryczna i elektroforetyczna sondy FRET przed i po cięciu przez DNazę II. Panel górny: stosunki FRET (RD/A = ID 525 nm / IA 580 nm), stanowiące ilościową miarę stanu sondy. Kolor czerwony: niecięta; kolor zielony: cięta przez DNazę II. Panel dolny: denaturujący żel PAGE odpowiadający danym fluorometrycznym. Cięcie przez DNazę II daje fragmenty znakowane FAM (12-16 nt, kolor zielony) i fragmenty znakowane TAM (20-24 nt, kolor czerwony), co wskazuje na cięcie w pobliżu połączenia między spinkami, flankującego T23. Kontrola niecięta wykazuje fluorescencję żółtą. Marker: oligonukleotydy znakowane FAM i TAM odpowiadające segmentom 5′ i 3′ 38-merowej sondy, z etykietami fluorescencyjnymi w ich oryginalnych pozycjach. Warunki reakcji: 10 mM bufor octanu sodu (pH 5,2), 1 pmol/µL sondy FRET, 0,0033 U/µL DNazy II, 24 h w 37 °C. RD/A = ID 525 nm/IA 580 nm; λwzbudzenia = 488 nm. Warunki UNAFold: 1 µM sondy FRET, 10 mM Na+, 0 mM Mg2+, 37 °C. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
Podczas gdy zmiany w poszczególnych widmach emisji testowych są oczywiste, porównania ilościowe pomiędzy dużą liczbą widm emisji wymagają bardziej przyjaznego dla użytkownika i kompaktowego parametru ilościowego. Rolę tę pełni stosunek FRET. Przedstawiona metoda fluorescencyjna należy do grupy podejść ratiometrycznych, które w swoich ocenach ilościowych opierają się na bezpośrednich (dwukanałowych) stosunkach emisji fluorescencji członków pary FRET2,9.
Metoda ta wykorzystuje stosunek emisji donora do akceptora (RD/A = ID 525 nm / IA 580 nm), który jest powiązany z wydajnością FRET i ilościowo charakteryzuje stan 38-meru (przerwanego lub nienaruszonego). Stosunek ID / IA zapewnia mechanizm samonormalizacji, który z natury uwzględnia zmienność czynników takich jak stężenie sondy, natężenie wzbudzenia oraz fotoblaknięcie3. Podejście to jest odpowiednie wyłącznie dla sond FRET, w których donor i akceptor są połączone w obrębie tej samej sondy, a ich stosunek jest znany i stały. Z tego powodu w tej metodzie nie ma konieczności uwzględniania bezpośredniego wzbudzenia akceptora ani przesłuchów donora2. Stała stechiometria donor-akceptor w sondzie gwarantuje, że stosunki emisji donora do akceptora nie są zależne od tych zmiennych i bezpośrednio odzwierciedlają stan sondy. W rezultacie stosunek emisji donor-akceptor stanowi ilościowy parametr rozszczepienia DNA z wbudowaną normalizacją sygnału2,3.
W teście zastosowano stosunek ID / IA (zamiast przeciwnego stosunku IA / ID), ponieważ stosunek ten opisuje ustanie zjawiska FRET po rozszczepieniu sondy, a zatem zmienia się w tym samym kierunku co aktywność DNazy – wzrasta wraz ze zwiększeniem stopnia rozszczepienia. Zostało to zilustrowane na Rysunku 1D, który przedstawia stosunek FRET sondy ratiometrycznej oraz jej elektroforezę PAGE przed i po rozszczepieniu przez DNazę II, co odpowiada widmom na Rysunku 1C. Aby zademonstrować wygodę, oszczędność czasu i łatwość użycia ratiometrycznego testu FRET, zastosowano go w celu wykrycia i zbadania aktywności nukleazowej słabego inhibitora elastazy leukocytowej (LEI).
Słaba nukleaza LEI
Inhibitor proteazy LEI jest naturalnie metastabilny, t. j. niezrównoważony topologicznie. Cecha ta jest niezbędna dla jego mechanizmu hamowania. Gdy docelowa proteaza rozcina pętlę miejsca reaktywnego (RSL) inhibitora LEI, cząsteczka inhibitora przechodzi drastyczną zmianę konformacyjną, mechanicznie rozciągając proteazę do formy nieaktywnej10,11. Co niezwykłe, powoduje to również zerwanie i rozciągnięcie samej cząsteczki LEI oraz odsłonięcie kryptycznego miejsca DNazy, które w natywnej strukturze jest zakryte, co przekształca LEI w aktywną endonukleazę L-DNase II (DNaza II pochodna z LEI)11,12. Kryptyczne miejsce DNazy może zostać odsłonięte również poprzez denaturację i rozpad LEI wywołany inkubacją przez noc w kwasie siarkowym przy pH 210,13. Wykorzystanie tego testu FRET do badania LEI wykazało, że drastyczne zabiegi denaturacji chemicznej i ukierunkowane rozszczepienie enzymatyczne nie są ściśle wymagane do odsłonięcia utajonej aktywności nukleolitycznej LEI.
Przedstawione zastosowanie i protokół podejścia ratiometrycznego FRET opisują wykrywanie słabej aktywności DNazy naturalnie występującej w normalnym, niedenaturowanym LEI. Odkrycie wrodzonej zdolności nukleolitycznej niepociętego LEI oraz jego analiza były możliwe dzięki przydatności testu do długotrwałych obserwacji przy różnych poziomach pH w środowisku kwasowym.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
Ocena aktywności DNazy za pomocą ratiometrycznego transferu energii rezonansu fluorescencji
Metoda jest odpowiednia do wykrywania i analizy właściwości nukleolitycznych rozpuszczalnego białka. Aby zbadać zależność pH badanej DNazy, procedura jednocześnie ocenia aktywność DNazy w zakresie wartości pH. Technika ta może być stosowana do badania słabej i powolnej aktywności nukleazy. Szczegółowe informacje na temat odczynników i sprzętu używanego w tym badaniu są wymienione w Tabeli Materiałów.
1. Przygotowanie składników mieszaniny inkubacyjnej do systemu oceny fluorometrycznej
- Przygotuj roztwory buforowe w pożądanych zakresach pH. W przypadku zakresu pH od 6,8 do 8,0 należy użyć Tris-HCl lub fosforanowych. Bufor Tris-HCl należy stosować w fizjologicznych warunkach pH (pH od 7,2 do 8,0) ze względu na jego stabilność i minimalną ingerencję w aktywność enzymów.
UWAGA: fosforanowe są odpowiednie dla tego zakresu pH, ale są mniej odpowiednie dla wyższych wartości pH (>7,5) ze względu na ich ograniczenia pojemności buforowej.
W przypadku zakresu pH od 4,2 do 7,2 należy użyć octanowych lub cytrynianowych. Bufor octanowy jest skuteczny w warunkach niższego pH, aż do pH 4,2.
UWAGA: Bufor cytrynianowy nadaje się do stosowania przy nieco wyższych wartościach pH (pH 5,6 do 7,2) i zapewnia dobrą zdolność buforowania. Bufor te są odpowiednie do badania aktywności DNazy w warunkach od kwaśnego do obojętnego. W prezentowanym badaniu aktywności nukleolitycznej LEI wykorzystano 10 mM octanu sodu o pH w zakresie od 4,8 do 6,5. - Rozcieńczyć próbkę białka do odpowiedniego stężenia w każdym roztworze buforowym. Gdy aktywność w próbce jest całkowicie nieznana, należy przygotować szereg rozcieńczeń białka. Optymalne rozcieńczenie zależy od siły aktywności DNazy i musi być określone doświadczalnie poprzez badanie kilku stężeń białka.
UWAGA: W prezentowanym badaniu ultrasłabej aktywności nukleolitycznej LEI wykorzystano go w stężeniu 1 μM.- W przypadku stosowania wysoce skoncentrowanych należy zawsze sprawdzać pH roztworu końcowego, ponieważ pH stężonych może ulec zmianie po rozcieńczeniu.
- Przygotować ratiometryczny roztwór sondy FRET w wodzie wolnej od nukleaz. Stosować sondę FRET o stężeniach bliskich 1 μM (1 pmol/μL). Unikaj używania bardzo wysokich stężeń sondy.
Szybko podgrzej i schłodź roztwór sondy przed aplikacją, aby zapewnić całkowitą dysocjację niepożądanych par zasad.
UWAGA: W prezentowanym badaniu aktywności nukleolitycznej LEI wykorzystano stężenie 1 μM (1 pmol/μL) sondy FRET w wodzie wolnej od nukleaz.
2. Indukcja reakcji DNazy przy użyciu ratiometrycznej sondy FRET jako substratu
- Przygotuj trzy studzienki na 96-dołkowej płytce dla każdego badanego warunku pH. Uwzględnij trzy dodatkowe studzienki, z których każda jest przeznaczona dla kontroli dodatniej i ujemnej.
- W każdym studzience dla serii pH połącz następujące elementy:
70 μL wody wolnej od nukleaz
10 μL buforu 10X (bufor do wyboru)
10 μL próbki z białkiem
10 μl roztworu sondy ratiometrycznej (stężenie podstawowe 10 pmol/μl)
UWAGA: W prezentowanym badaniu aktywności nukleolitycznej LEI w kwaśnym pH wykorzystano następujący bufor 10X: 100 mM Na Acetate pH 5.2 - W każdym basenie kontroli dodatniej należy połączyć następujące elementy:
79 μL wody wolnej od nukleaz
10 μL 10X buforu DNazy II (100 mM na octan pH 5,2)
0,33 μl DNazy II (zapas 1 U/μL)
10 μl roztworu sondy ratiometrycznej (stężenie podstawowe 10 pmol/μl)
UWAGA: W przypadku badań przy kwaśnym pH należy użyć DNazy II jako kontroli dodatniej. Oceniając aktywność DNazy w pobliżu pH 7 (w szczególności pH 6,5-8), należy przełączyć się na DNazę I i związany z nią bufor (np. 10 mM Tris-HCl, 2,5 mM MgCl2, 0,5 mM CaCl2, pH 7,6) zamiast DNazy II i buforu octanowego. - Do każdej studzienki kontroli ujemnej dodać wodę wolną od nukleaz w miejsce próbki białka.
- W każdym studzience dla serii pH połącz następujące elementy:
- Indukować reakcję DNazy poprzez dodawanie roztworów sondy do mieszanin reakcyjnych zawierających białko DNazy o różnych wartościach pH.
UWAGA: Dokładnie wymieszaj wszystkie próbki, unikając tworzenia się pęcherzyków. W przypadku aktywnych próbek DNazy należy rozpocząć wszystkie reakcje jak najbliżej równoczesności. W przypadku bardzo słabych działań, takich jak LEI, ścisły czas jest mniej istotny.
UWAGA: Aby zapewnić stałe czasy inkubacji, zwłaszcza w przypadku aktywnych nukleaz, należy rozłożyć dodawanie próbek w czasie w zależności od czasu wymaganego dla każdego pomiaru. Na przykład, jeśli każdy pomiar trwa 10 s, dodaj drugą próbkę 10 s po pierwszej.
3. Inkubacja
- Badaną DNazę inkubować za pomocą ratiometrycznej sondy FRET w temperaturze 37°C w łaźni wodnej lub inkubatorze o regulowanej temperaturze przez różne okresy czasu. Używaj wielu punktów czasowych z regularnymi odstępami między próbkami, aby dokładnie ocenić tempo wymiany enzymów i zminimalizować artefakty. W prezentowanym badaniu ultrasłabej aktywności nukleolitycznej LEI wykorzystano 24-godzinne inkubacje do rejestracji powolnej reakcji nukleolitycznej.
UWAGA: W eksperymentach wstępnych należy określić optymalny czas inkubacji, ponieważ zależy on od mocy badanej DNazy. Aktywna nukleaza wymagałaby bardzo krótkiego czasu, aby zakończyć rozszczepienie sondy, więc zacznij od 15-30 minutowej inkubacji. Jeśli próbka jest zbyt zagęszczona, a reakcja jest zbyt szybka, stężenie białka należy zmniejszyć. Jeśli białko próbki jest zbyt słabe, czas inkubacji może się wydłużyć w razie potrzeby.
4. Normalizacja sygnału do tych samych warunków pH
- Zatrzymaj wszystkie reakcje inkubacji, dodając 100 μl 250 mM Tris-HCL (pH 8,0). Ten etap wyrównuje również pH we wszystkich próbkach.
UWAGA: Etap wyrównywania pH jest ważny przy porównywaniu reakcji zainicjowanych w różnych warunkach pH. Procedura zapewnia całkowitą separację fragmentów sondy, maksymalizując jej sygnał oparty na FRET. Ponadto emisja fluoroforu FAM przez sondę jest zmniejszona w kwaśnym pH i jest optymalna przy pH 8,0. W przypadku próbek o wyższej sile jonowej niż te użyte w tym badaniu, może być wymagane bardziej skoncentrowane (>250 mM) i wyższe pH (>8,0) roztwór wyrównujący w celu uzyskania skutecznej korekty pH.
UWAGA: Alkaliczne pH skutecznie hamuje aktywność nukleaz kwasowych, takich jak LEI, jak wykazano w obecnym badaniu. W przypadku nukleaz obojętnych lub zasadowych należy określić i zastosować odpowiednie specyficzne metody inaktywacji przed oceną sygnału.
5. Wykrywanie sygnału fluorometrycznego i obliczanie współczynników FRET
- Bezpośrednio po etapie wyrównania pH użyj spektrofluorometru, aby zarejestrować widma emisyjne zarówno fluoroforów donorowych, jak i akceptorowych. Wykonuj pomiary bezpośrednio w 96-dołkowej płytce, wzbudzając fluorofor donorowy przy 488 nm i jednocześnie wykrywając emisje przy 525 nm (donor) i 580 nm (sygnał akceptorowy pochodzący z FRET).
- Użyj zarejestrowanych intensywności fluorescencji do oceny aktywności DNazy w każdej próbce. Zastosuj odpowiednie metody statystyczne do analizy danych i oceny istotności.
UWAGA: Oblicz stosunek FRET za pomocą wzoru: RFRET = emisja donora przy 525 nm/emisja akceptora przy 580 nm. W tym teście rozszczepienie DNA zakłóca FRET poprzez oddzielenie fluoroforów, co skutkuje zwiększoną emisją donora i zmniejszoną emisją akceptora. To przesunięcie podnosi współczynnik FRET (RFRET), który służy jako wskaźnik aktywności DNazy.
6. Weryfikacja dekoltu na podstawie PAGE
- Sprawdź rozszczepienie sondy FRET, wykonując elektroforezę w żelu poliakrylamidowym z denaturacją (STRONA)14. Sonda FRET i jej produkty rozszczepienia są znakowane fluorescencyjnie i widoczne bez dodatkowego barwienia.
UWAGA: W reprezentatywnym badaniu potwierdzono rozszczepienie 38-merowej sondy FRET za pośrednictwem LEI poprzez denaturację PAGE (patrz rysunek 2). Analiza wykazała, że LEI wytworzył 6-8-merowe fragmenty oznaczone FAM i 15-16-merowe fragmenty oznaczone TAM, zgodne z rozszczepieniem w pobliżu obu wierzchołków spinki do włosów. Wzorzec ten różnił się od profilu fragmentu generowanego przez DNazę II.- Załaduj 15 μl każdej próbki na 20% denaturujący żel PAGE.
- Uruchom żel na 1 godzinę przy napięciu 100 V.
- Pozyskiwanie obrazów żeli za pomocą systemu dokumentacji wyposażonego w kolorową kamerę o wysokiej rozdzielczości.
UWAGA: Obrazy w reprezentatywnym badaniu zostały wykonane za pomocą lustrzanki cyfrowej.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Niniejsze reprezentatywne badanie podkreśla konkretne zalety ratiometrycznego podejścia FRET w badaniu powolnych reakcji enzymatycznych, które wymagają wydłużonego okresu obserwacji. W szczególności zastosowanie to demonstruje detekcję i analizę wrodzonej aktywności DNazy LEI przy użyciu ratiometrycznego systemu FRET. Wyniki tego badania przedstawiono na Rysunku 2.
Stosując to podejście, wykazaliśmy...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Badanie to demonstruje zastosowanie ratiometrycznego FRET do wykrywania i oceny aktywności DNazy przy użyciu słabego inhibitora elastazy nukleazy - leukocytów (LEI). Podejście to zapewnia wygodną i ilościową metodę oceny właściwości DNazy białek i biomolekuł. Jego protokół jest prosty, a procedura analizy danych bezpośrednia i prosta. W teście wykorzystuje się 38-merową sondę FRET, która toleruje długie inkubacje przy różnym kwaśnym pH. Ta właściwość, jak wykazaliśmy, umożliwia testowi wykrycie nawet niewielkiego i powol...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Badania te były wspierane przez grant R01 GM148812 z National Institute of General Medical Sciences, NIH; dzięki grantom R21 CA255979 z National Cancer Institute, NIH; i przyznaje R21 AG073887 i R21 AG071978 oba z National Institute on Aging, NIH (wszystkie VDD).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Płytka 96-dołkowa | Sokół | 353219 | |
| Sonda DNA FRET | IDT DNA | 5'-AAG GGT(TAM)CCT GCT GCA GGA CCC TTA ACG CAT TAT GCG T(FAM)T- 3'; FAM – fluoresceina-dT; TAM – Tetrametylorodamina-dT. | |
| DNaza II | Sigma Aldrich | Zobacz materiał D8764 | |
| Lustrzanka cyfrowa EVOLT | Olympus | E500 Zobacz materiał | |
| Aparat do elektroforezy żelowej z zasilaczem | Bio-Rad | ||
| LEI | Nowobiałko | CJ01 powiedział: | |
| System obrazowania żelowego LiCOR | LiCOR | ||
| Woda wolna od nukleaz | Invitrogen | 10977015 | |
| Pre-Cast PAGE Żel | Invitrogen | EC68852 | |
| Roztwór buforowy octanu sodu pH 5,2 | Sigma Aldrich | S2899-100ML | |
| Spektrofluorometr | Tecan (tekan) | Pożar 2 |
Bibliografia
- A guide to ratiometric fluorescence. , AZoM. https://www.azom.com/article.aspx?ArticleID=16081 (2018).
- Müller, S. M., Galliardt, H., Schneider, J., Barisas, B. G., Seidel, T. Quantification of Förster resonance energy transfer by monitoring sensitized emission in living plant cells. Front Plant Sci. 4, 413(2013).
- Lakowicz, J. R. Principles of fluorescence spectroscopy. , Springer Science & Business Media. (2006).
- Chai, H., Tang, Y., Guo, Z., Miao, P. Ratiometric electrochemical switch for circulating tumor DNA through recycling activation of blocked DNAzymes. Anal Chem. 94 (6), 2779-2784 (2022).
- Liu, G., Ma, X., Tang, Y., Miao, P. Ratiometric fluorescence method for ctDNA analysis based on the construction of a DNA four-way junction. Analyst. 145 (4), 1174-1178 (2020).
- Minchew, C. L., Didenko, V. V. Nanoblinker: Brownian motion powered bio-nanomachine for FRET detection of phagocytic phase of apoptosis. PLoS One. 9 (9), e108734(2014).
- Didenko, V. V. Express FRET labeling and analysis of phagocytic clearance. Methods Mol Biol. 1644, 3-11 (2017).
- Domingo, B., Sabariegos, R., Picazo, F., Llopis, J. Imaging FRET standards by steady-state fluorescence and lifetime methods. Microsc Res Tech. 70 (12), 1010-1021 (2007).
- Lee, M. H., Kim, J. S., Sessler, J. L. Small molecule-based ratiometric fluorescence probes for cations, anions, and biomolecules. Chem Soc Rev. 44 (13), 4185-4191 (2015).
- Torriglia, A., Leprêtre, C., Padrón-Barthe, L., Chahory, S., Martin, E. Molecular mechanism of L-DNase II activation and function as a molecular switch in apoptosis. Biochem Pharmacol. 76 (11), 1490-1502 (2008).
- Padron-Barthe, L., Leprêtre, C., Martin, E., Counis, M. F., Torriglia, A. Conformational modification of serpins transforms leukocyte elastase inhibitor into an endonuclease involved in apoptosis. Mol Cell Biol. 27 (11), 4028-4036 (2007).
- Torriglia, A., Martin, E., Jaadane, I. The hidden side of SERPINB1/leukocyte elastase inhibitor. Semin Cell Dev Biol. 62, 178-186 (2017).
- Torriglia, A., et al. L-DNase II, a molecule that links proteases and endonucleases in apoptosis, derives from the ubiquitous serpin leukocyte elastase inhibitor. Mol Cell Biol. 18 (6), 3612-3619 (1998).
- Summer, H., Grämer, R., Dröge, P. Denaturing urea polyacrylamide gel electrophoresis (Urea PAGE). J Vis Exp. (32), e1485(2009).
- Lauková, L., Konečná, B., Janovičová, Ľ, Vlková, B., Celec, P. Deoxyribonucleases and their applications in biomedicine. Biomolecules. 10 (7), 1036(2020).
- Minchew, C. L., Didenko, V. V. Dual detection of nucleolytic and proteolytic markers of lysosomal cell death: DNase II-type breaks and cathepsin D. Methods Mol Biol. 1554, 229-236 (2017).
- Nucleases (DNases and RNases). , Sigma-Aldrich. https://www.sigmaaldrich.com/US/en/products/protein-biology/proteins-and enzymes/nucleases (2025).
- Altairac, S., Zeggai, S., Perani, P., Courtois, Y., Torriglia, A. Apoptosis induced by Na+/H+ antiport inhibition activates the LEI/L-DNase II pathway. Cell Death Differ. 10 (5), 548-557 (2003).
- Li, J. J., Geyer, R., Tan, W. Using molecular beacons as a sensitive fluorescence assay for enzymatic cleavage of single-stranded DNA. Nucleic Acids Res. 28 (11), E52(2000).
- Ma, C., Tang, Z., Huo, X., Yang, X., Li, W., Tan, W. Real-time monitoring of double-stranded DNA cleavage using molecular beacons. Talanta. 76 (2), 458-461 (2008).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
