Ten protokół ilustruje metodę optogenetycznej stymulacji wewnętrznych neuronów serca w transgenicznych sercach myszy. Opisane podejście służy do badania kinetyki nagłej aktywacji neuronów sercowych w sercach perfundowanych ex vivo oraz interakcji między aktywnością cholinergiczną i katecholaminergiczną.
Artykuł metodologiczny
Optogenetyczna aktywacja wewnętrznych autonomicznych neuronów serca w wyciętych perfundowanych sercach myszy
W tym artykule
Podsumowanie
Streszczenie
Równowaga między aktywacją cholinergiczną i katecholaminergiczną jest niezbędna do utrzymania zdrowia serca. Badanie interakcji między tymi szlakami można przeprowadzić za pomocą optogenetyki poprzez selektywną ekspresję rodopsyny kanałowej-2 (ChR2) w neuronach autonomicznych serca. Takie kardiologiczne zastosowania optogenetyki pozwalają na badanie wewnętrznego uwalniania neuroprzekaźników w sposób czasoprzestrzenny. Metoda ta ilustruje podejście ex vivo do specyficznej stymulacji optogenetycznej neuronów sercowych w perfundowanych sercach myszy. Myszy transgeniczne zostały wyhodowane w celu ekspresji ChR2 w neuronach acetylotransferazy choliny (ChAT) lub hydroksylazy tyrozynowej (TH) w całym ciele. Przygotowano mikrodiodę LED (465 nm) obudowaną elastomerem silikonowym, która służy do stymulacji neuronów prawego przedsionka, które unerwiają węzeł zatokowo-przedsionkowy. Mikrodioda LED została podłączona do generatora funkcyjnego ustawionego na fale impulsowe o częstotliwości 10 Hz z szerokością impulsu 30 ms. Serca z potwierdzoną ekspresją zostały wycięte i wstecznie perfundowane w systemie Langendorffa z krążącym roztworem Krebsa-Henseleita. Elektrokardiogram (EKG), temperaturę i natężenie przepływu w naczyniu wieńcowym rejestrowano za pomocą oprogramowania LabChart. Gdy serce się ustabilizowało, mikrodioda LED została umieszczona w prawym przedsionku i przetestowana pod kątem optymalnej reakcji tętna. Zastosowanie tego podejścia łączy wewnętrzne uwalnianie neuroprzekaźnika cholinergicznego (acetylocholiny) podczas optogenetycznej aktywacji serca myszy ChAT-ChR2 jednocześnie ze wzrostem egzogennego neuroprzekaźnika katecholaminergicznego (noradrenaliny) dodawanego do perfuzatu. Przedstawiono wynikające z tego zmiany częstości akcji serca podczas jednoczesnej aktywacji cholinergicznej i katecholaminergicznej. Metoda ta opisuje cenne podejście eksperymentalne do badania kinetyki nagłej wewnętrznej aktywacji neuronów autonomicznych w perfundowanych sercach oraz interakcji między czynnością cholinergiczną serca i katecholaminergiczną.
Wprowadzenie
Optogenetyka to metoda wprowadzania białek wrażliwych na światło (opsyn) do docelowych populacji komórek. Umożliwia to czasoprzestrzenną modulację określonych komórek i tkanek, której nie można osiągnąć za pomocą środków elektrycznych lub chemicznych1. W ciągu ostatnich 15 lat zastosowania optogenetyki w kardiologii stawały się coraz bardziej popularne2. Fotostymulacja pobudzających opsyn, takich jak rodopsyna kanałowa-2 (ChR2), kation, w miocytach serca lub neuronach powoduje depolaryzację komórkową, powodując zmiany w rytmie serca3. Istnieją dwa sposoby selektywnej ekspresji opsyn w populacjach komórkowych przy użyciu podejścia Cre-lox: transdukcja wirusa4 i krzyżowanie transgenicznych zwierząt5. Selektywna ekspresja ChR2 w określonych neuronach autonomicznych może być osiągnięta przez krzyżowanie w celu stworzenia potomstwa, które wyraża ChR2 w neuronach cholinergicznych lub katecholaminergicznych przy użyciu promotorów specyficznych dla komórek6. Jeden rodzic z floksowanym genem ChR2 może być kojarzony z rodzicem, który wyraża rekombinazę Cre pod kontrolą promotora, takiego jak hydroksylaza tyrozynowa (TH, neurony katecholaminergiczne) lub acetylotransferaza choliny (ChAT, neurony cholinergiczne). Potomstwo następnie wyraża ChR2 w neuronach TH lub ChAT w całym ciele7.
Funkcjonalna reakcja serca na ostrą aktywację autonomicznych neuronów może być badana za pomocą ekspresji ChR2 napędzanej przez promotor w określonych populacjach neuronów, na przykład w neuronach cholinergicznych lub katecholaminergicznych. Interwał i intensywność impulsów fotostymulacji można zmieniać, aby kontrolować szybkość depolaryzacji neuronów wykazujących ekspresję ChR2 w celu zbadania, w jaki sposób poziomy aktywacji neuronalnej modulują czynność serca8. W tej metodzie neurony będą używane w odniesieniu do dowolnych ciał komórkowych, aksonów i / lub projekcji aksonalnych, które są aktywowane optogenetycznie dla uproszczenia. Możliwe jest również połączenie fotostymulacji z aktywacją chemiczną poprzez wprowadzenie leków lub neuroprzekaźników w celu zbadania jednoczesnego wpływu na rytm serca i kurczliwość9. Na przykład optogenetyczna stymulacja cholinergiczna może być połączona z wstrzyknięciem egzogennej noradrenaliny (NE) w celu zbadania wpływu jednoczesnej aktywacji autonomicznej w sercu. Prowadzenie takich badań z użyciem izolowanych perfuzjowanych serc ma tę zaletę, że zapewnia dobrze kontrolowaną platformę eksperymentalną do badania zmian funkcjonalnych spowodowanych przez fotoaktywację10. Zmiany w morfologii EKG, częstości akcji serca i szybkości przepływu wieńcowego można monitorować, gdy temperatura, natlenienie i ciśnienie perfuzji są ściśle kontrolowane.
Celem tego protokołu jest przedstawienie eksperymentalnego podejścia do aktywacji określonej populacji autonomicznych neuronów w sercach myszy w celu zbadania zmian w częstości akcji serca. Przedstawiono również budowę i zastosowanie urządzenia micro-LED do aktywacji optogenetycznej w perfuzji serca. Serca myszy wykazujące ekspresję ChR2 w neuronach cholinergicznych lub katecholaminergicznych zostały wycięte i wstecznie perfundowane natleniznym roztworem Krebsa-Henseleita pod stałym ciśnieniem. ChR2 ulegający ekspresji w neuronach prawego przedsionka (RA) był fotostymulowany z częstotliwością impulsów 10 Hz z szerokością impulsu 30 ms. Chwilowe tętno obliczono przy użyciu interwału RR i monitorowano pod kątem zmian podczas fotostymulacji. Opisano również przykładowy eksperyment mający na celu zbadanie kinetyki rytmu serca podczas wewnętrznej optogenetycznej fotostymulacji neuronów ChAT jednocześnie z aktywacją beta-adrenergiczną przy użyciu egzogennej noradrenaliny.
Protokół
Wszystkie protokoły dotyczące zwierząt zostały zatwierdzone przez Komitet ds. Opieki i Wykorzystania Zwierząt Uniwersytetu George Washington i były zgodne z wytycznymi National Institute of Health dotyczącymi opieki i wykorzystania zwierząt laboratoryjnych.
1. Konstrukcja źródła światła Micro-LED
- Pod mikroskopem stereoskopowym w dobrze wentylowanym pomieszczeniu przylutuj odsłonięte końce dwóch izolowanych miedzianych przewodów o długości co najmniej 20 cm do punktów styku mikro-LED o długości fali 465 nm (Rysunek 1). Przetestuj lutowanie, podłączając LED do źródła zasilania i włączając go.
- Odetnij dolny 1 cm filtrowanej końcówki do pipety o pojemności 200 µL. Wypchnij filtr za pomocą pręta o małej średnicy. Wsuń mikro-LED z przewodami do końcówki pipety tak, aby dioda LED znajdowała się na równi z końcem końcówki. Ponownie umieść filtr w górnej części końcówki pipety, aby utrzymać LED i przewody na miejscu, a następnie przyklej krawędzie LED do końcówki pipety superglue. Pozostaw superglue do wyschnięcia.
- Przygotuj elastomer silikonowy, łącząc bazę i utwardzacz w stosunku 10:1 i dokładnie wymieszaj. Usuń pęcherzyki powietrza z mieszaniny, korzystając z komory próżniowej lub poprzez wirowanie.
- Weź probówkę do wirowania o pojemności 0,5 mL i nacinaj boki, aby ułatwić późniejsze wyjęcie LED (w tym miejscu do wnętrza probówki można również dodać środek smarny, jeśli jest to pożądane). Oklej zewnętrzną stronę probówki taśmą, aby zapobiec wyciekom. Wlej do probówki około 0,2 mL mieszaniny elastomeru silikonowego, a następnie umieść w niej końcówkę pipety z mikro-LED, pozostawiając co najmniej 1 mm odstępu między LED a dnem probówki. Jeśli utworzyły się pęcherzyki powietrza, uderz probówką o twardą powierzchnię, aby je usunąć.
UWAGA: Końcówkę pipety można wcześniej pokryć elastomerem silikonowym, aby zmniejszyć powstawanie pęcherzyków podczas umieszczania LED. - Umieść probówkę z mikro-LED w pozycji pionowej w piecyku laboratoryjnym lub inkubatorze w temperaturze 50 °C i pozostaw na co najmniej 8 h lub na noc. Podczas pracy z piecykiem używaj rękawic odpornych na wysoką temperaturę. Po utwardzeniu elastomeru wyjmij LED z probówki. Jeśli elastomer jest nadal lepki, umieść go ponownie w piecyku.
- Po pełnym utwardzeniu usuń nadmiar elastomeru z końcówki LED za pomocą precyzyjnego nożyka introligatorskiego, pozostawiając nie więcej niż 1 mm. Prawidłowa enkapsulacja LED zminimalizuje nagrzewanie tkanki podczas fotostymulacji.
- Wyznacz moc optyczną LED za pomocą miernika mocy optycznej. Włącz miernik i ustaw długość fali na 465 nm. Umieść LED w linii z czujnikiem mocy fotodiody i włącz LED za pomocą generatora funkcji. Miernik mocy optycznej wyświetli odczyt w watach. Oblicz natężenie promieniowania, dzieląc odczytaną moc przez powierzchnię oświetlaną (0,88 mm2).
UWAGA: Idealne natężenie promieniowania powinno wynosić około 2,4 mW/mm2 dla odpowiedniej aktywacji ChR211.
2. Przygotowanie eksperymentalne
- Hodować myszy zgodnie z poprzednią publikacją w celu ekspresji ChR2 w neuronach cholinergicznych (ChAT-ChR2) lub neuronach katecholaminergicznych (TH-ChR2)12 (Rycina 2). Potwierdź ekspresję TH-Cre lub ChAT-Cre u myszy wykorzystanych w doświadczeniach, stosując metodę genotypowania opisaną wcześniej12.
- Przygotować co najmniej 225 mL roztworu Krebsa-Henseleita (KH) (w mM: 118 NaCl, 4,7 KCl, 1,25 CaCl2, 0,57 MgSO44, 25 NaHCO33, 1,17 KH2PO44, 6 glukozy) i przefiltrować za pomocą 0.2 µm filtr membranowy z azotanu celulozy. Po napowietrzeniu dostosować pH do 7,4 przy użyciu 95% O22 oraz 5% CO22.
- Przed rozpoczęciem eksperymentu należy przepłukać system perfuzji Langendorffa wodą oczyszczoną i usunąć nadmiar wody.
- Dodaj a 10 µm filtr membranowy do układu przed rozpoczęciem cyrkulacji KH. Włączyć łaźnie wodne ustawione na utrzymywanie temperatury perfuzatu na poziomie 37 °C przy prędkościach przepływu od 2 do 5 mL/min.
- Do systemu perfuzyjnego należy dodać 175 ml KH i rozpocząć cyrkulację. Roztwór należy napowietrzyć 95% O22 / 5% CO2 w celu zapewnienia odpowiedniego dotlenienia.
UWAGA: Objętość krążąca KH będzie różnić się w zależności od systemu, w zależności od rozmiarów przewodów i zbiornika. - Zkalibrować przepływomierz, zatrzymując przepływ w systemie perfuzyjnym za pomocą kurka i naciskając przycisk Przycisk zerowania na przepływomierzu.
- Przygotuj oprogramowanie do akwizycji danych fizjologicznych, takie jak LabChart, w taki sposób, aby posiadało 12 kanałów: temperaturę kąpieli serca, temperaturę perfuzyjnego roztworu aorty, odprowadzenia EKG I-III oraz cztery dodatkowe odprowadzenia obliczeniowe, obliczanie częstości akcji serca, szybkość przepływu oraz wyjście generatora funkcji do śledzenia impulsów LED.
- Korzystając z kanału zarezerwowanego dla częstości akcji serca, oblicz tę wartość w programie LabChart, ustawiając funkcję pomiarów cyklicznych (cyclic measurements) na wykrywanie EKG myszy w odprowadzeniu I. Rozszerzenie Cardiac Axis w programie LabChart wykorzystuje odprowadzenie I i odprowadzenie II do obliczenia odprowadzenia III oraz aVR, aVL i aVF.
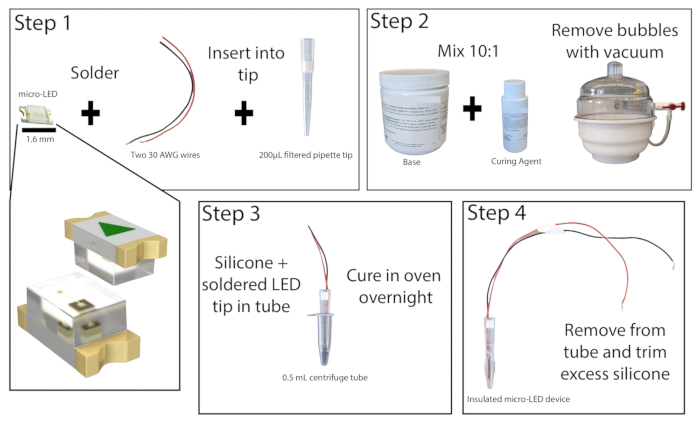
Rycina 1: Konstrukcja Micro-LED. Uproszczony przegląd etapów konstrukcji źródła światła Micro-LED. Dwa przewody zostają przylutowane do Micro-LED i włożone do końcówki pipety 200 µL, a następnie przyklejone superklejem (Krok 1). Elastomer silikonowy jest mieszany w stosunku 10:1 i umieszczany w komorze próżniowej w celu usunięcia pęcherzyków powietrza (Krok 2). Elastomer silikonowy jest wlewany do probówki do mikrocentryfugi, a następnie wstawia się końcówkę pipety z Micro-LED i pozostawia do utwardzenia przez noc (Krok 3). Izolowany Micro-LED jest następnie wyjmowany z probówki, a nadmiar silikonu należy przyciąć (Krok 4). Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
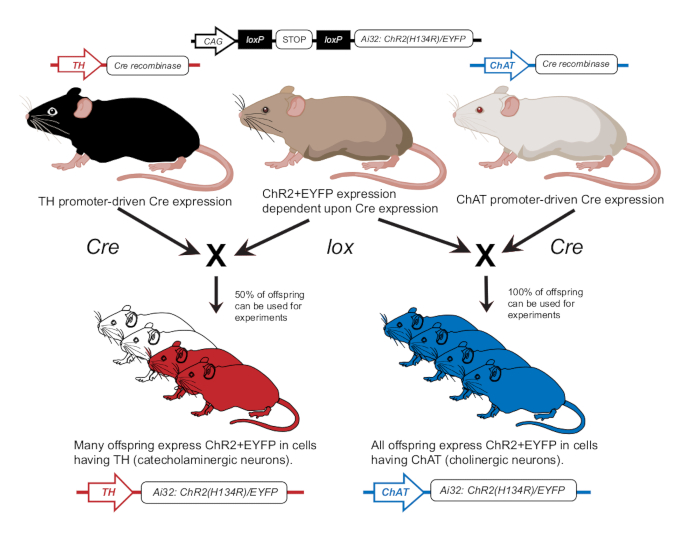
Rycina 2: Schemat krzyżowania myszy transgenicznych. Mysz rodzicielska z genem ChR2 zależnym od sekwencji lox jest krzyżowana z drugą myszą posiadającą promotor Cre. Mysz rodzicielska z promotorem Cre tyrozynowej hydroksylazy (TH) doprowadzi do powstania potomstwa heterozygotycznego, w którym 50% osobników będzie wykazywać ekspresję ChR2 w komórkach katecholaminergicznych. Mysz rodzicielska z promotorem Cre cholinoacetylotransferazy (ChAT) doprowadzi do powstania potomstwa homozygotycznego, w którym 100% osobników będzie wykazywać ekspresję ChR2 w komórkach cholinergicznych. Ekspresję potwierdzono za pomocą genotypowania. Rycina została zmodyfikowana za zgodą autorów12. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
3. Wycięcie i perfuzja serca
- Przed wycięciem podać 250 jednostek heparyny (około 8 U/g) poprzez wstrzyknięcie doszprytnowe za pomocą strzykawki 1 ml. Odczekać co najmniej 10 minut przed kontynuowaniem procedury.
- Umieść dorosłą mysz w komorze do indukcji znieczulenia. Podaj około 4% izofluranu i poczekaj, aż częstość oddechów spadnie, a oddechy staną się głębsze. Wyjmij mysz z komory i przed wykonaniem zwichnięcia kręgów szyjnych zweryfikuj brak odruchu bólowego poprzez uciśnięcie palca u nogi.
- Uchwyć wyrostek mieczowaty pęsetą i przetnij ścianę jamy brzusznej za pomocą nożyczek chirurgicznych. Otwórz jamę klatki piersiowej, ostrożnie przecinając przeponę. Przetnij żebra, aby odsłonić serce i płuca. Delikatnie uchwyć płuca, a następnie wyciśnij serce i płuca.
- Umieść serce w naczyniu z ksawianem Krebsa-Henseleit (KH) z dodatkiem heparyny. Usuń płuca oraz wszelkie duże fragmenty tłuszczu. Umieść oczyszczone serce w 2nd płytka z heparynowanym roztworem KH pod mikroskopem stereoskopowym ustawionym na 2-krotne powiększenie. Zlokalizować aortę i nasunąć ją na kaniulę za pomocą pęsety precyzyjnej. Przymocować serce do kaniuli za pomocą nici jedwabnej 4-0.
UWAGA: Kanulację można przeprowadzić w lodzie, aby zmniejszyć aktywność metaboliczną serca. - Przepłucz naczynia wieńcowe dawką bolusowej iniekcji heparynowanego KH przez kaniulę w celu usunięcia krwi przed podłączeniem do systemu perfuzyjnego.
- Podłącz kaniulowane serce do systemu perfuzyjnego i umieść je w naczyniu z PDMS wypełnionym perfuzatem. Umieść igłowe elektrody EKG w naczyniu z PDMS zgodnie z trójkątem Einhovena.13Aklimatyzuj serce przez co najmniej 5 min.
- Obrócić serce tak, aby lewy przedsionek był dostępny, a następnie za pomocą mikro-nożyczek samorozwiernych wyciąć w lewym przedsionku otwór o średnicy ok. 1 mm. Przez to nacięcie wprowadzić rurkę o średnicy 1 mm do lewej komory, aby usunąć uwięziony tam perfuzat.
UWAGA: Użycie stereomikroskopu do obserwacji serca może ułatwić wykonanie tego kroku. - Obróć serce tak, aby prawy przedsionek (RA) był skierowany do góry, a węzeł zatokowo-przedsionkowy (SA) był dostępny do oświetlenia (Rycina 3).
- W razie potrzeby dostosuj położenie elektrod EKG, przesuwając je bliżej serca lub zanurzając w perfuzacie, aby uzyskać sygnały z odpowiednim stosunkiem sygnału do szumu. Ustawienia mogą się różnić w zależności od zastosowanego sprzętu i oprogramowania do akwizycji sygnału EKG. W tej metodzie wykorzystano moduł Einthovena-Goldbergera ze wzmocnieniem 2000 i filtrem odcinającym 500 Hz, a ustawienia oprogramowania obejmowały filtr sieciowy oraz częstotliwość próbkowania 1000 Hz.
4. Aktywacja optogenetyczna
- Podłącz urządzenie micro-LED do generatora funkcji ustawionego na generowanie fal impulsowych o następujących parametrach: częstotliwość 10 Hz, szerokość impulsu 30 ms, amplituda 10Vpp.
- Ostrożnie umieść micro-LED na węźle SA. Unikaj zbyt mocnego dociskania micro-LED, ponieważ może to doprowadzić do spadku częstotliwości i funkcji pracy serca.
- Włącz generator funkcji i zmierz zmiany tętna wywołane fotostymulacją. Natychmiastowe zmiany tętna wskazują na skuteczną aktywację. Aktywacja katecholaminergiczna powoduje wykładniczy wzrost tętna10, podczas gdy aktywacja cholinergiczna powoduje jego natychmiastowy spadek8.
- Wyłącz generator funkcji. Pozostaw czas na powrót tętna do poziomu sprzed aktywacji.
- Jeśli aktywacja optogenetyczna spowoduje zmianę tętna o mniej niż 100 bpm, zmień położenie micro-LED, aby lepiej oświetlić neurony prawego przedsionka (RA). Powtórz w razie potrzeby.
5. Procedura eksperymentalna i analiza danych
- Aby przetestować hipotezę, że wewnątrzpochodna optogenetyczna stymulacja cholinergiczna może hamować egzogenną aktywację beta-adrenergiczną wywołaną przez norepinefrynę (NE), należy przygotować w dygestorium roztwory stokowe NE o stężeniu 10 µM i 100 µM.
- Za pomocą portu wtryskowego podać dawkę bolusową NE do układu perfuzyjnego. Gdy wzrost częstości akcji serca osiągnie plateau, włączyć micro-LED na ok. 10 s. Wyłączyć światło i monitorować zmiany częstości akcji serca.
- Po powrocie częstości akcji serca do rytmu zatokowego zwiększyć dawkę NE i powtórzyć stymulację optogenetyczną. Postępować analogicznie dla każdej kolejnej dawki NE.
- Po zakończeniu badania wyłączyć dopływ gazów, wyjąć serce z układu i, w razie potrzeby, utrwalić je w utrwalaczu.
- Przepłukać zbiorniki i przewody układu perfuzyjnego wodą dejonizowaną lub detergentem, zależnie od potrzeb. Dokładnie osuszyć układ, aby zapobiec rozwojowi pleśni.
- Zapisać plik LabChart. Wyeksportować sygnał częstości akcji serca oraz kanały EKG do analizy offline i prezentacji graficznej.
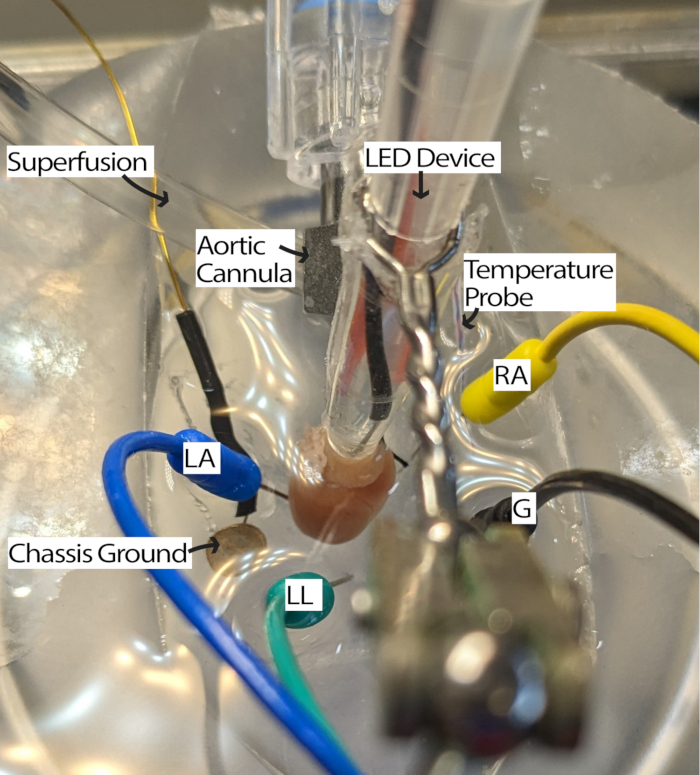
Rysunek 3: Konfiguracja kąpieli serca myszy. Kaniulowane serce myszy z zaznaczonym rozmieszczeniem urządzenia LED i elektrod EKG. Zastosowano uziemienie chassis w celu redukcji szumów z otaczającej elektroniki. Igłowe elektrody EKG rozmieszczono zgodnie z trójkątem Einthovena. Skróty: LA = lewa ręka; RA = prawa ręka; LL = lewa noga; G = uziemienie. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Wyniki
System perfuzji z stałym ciśnieniem Langendorffa (Rycina 4) powinien być w stanie utrzymać częstotliwość pracy serca myszy na poziomie co najmniej 300 bpm przez ponad godzinę, pod warunkiem zapewnienia odpowiedniego natlenienia, temperatury i przepływu wieńcowego. W tej konfiguracji temperatura perfuzatu w aorcie zależy od przepływu wieńcowego, dlatego może być konieczne dostosowanie temperatury kąpieli wodnej wraz ze zmianami szybkości przepływu, aby utrzymać temperaturę aortalną na poziomie 37 °C. Szybkość przepływu wieńcowego w sercu myszy zazwyczaj mieści się w zakresie 1,5-4,5 mL/min, w zależności od wielkości serca. Utrzymanie temperatury perfuzatu na poziomie 37 °C podczas wahań szybkości przepływu jest niezbędne dla zapewnienia stałej funkcji serca i jest szczególnie istotne w przypadku perfuzji z stałym ciśnieniem. Opisany system perfuzji został zaprojektowany tak, aby utrzymać ciśnienie hydrostatyczne 70 mmHg dzięki wysokości kolumny perfuzatu. Jest to osiągane za pomocą szybkości pompowania, która zapewnia stały przelew z górnego zbiornika. Perfuzat można uzupełnić o 20 µM kromakaliny, która jest lekami rozszerzającymi naczynia krwionośne, aby poprawić i utrzymać prawidłowy lub nadnormalny przepływ wieńcowy w celu zapewnienia pełnego natlenienia mięśnia sercowego14.
Fotostymulacja neuronów cholinergicznych w sercach myszy ChAT-ChR2 przy częstotliwości 10 Hz i szerokości impulsu 30 ms powinna skutkować niemal natychmiastowym spadkiem częstości akcji serca. Efektywna fotostymulacja neuronów cholinergicznych w odpowiednio perfundowanych sercach powinna prowadzić do zmniejszenia częstości akcji serca o co najmniej 100 bpm. Rysunek 5 pokazuje natychmiastowy spadek o 75 bpm w momencie włączenia mikro-LED, który trwa do momentu osiągnięcia maksymalnego spadku wynoszącego 135 bpm. W ciągu pół sekundy od wyłączenia mikro-LED częstość akcji serca wzrasta do 175 bpm, po czym stopniowo powraca do poziomu sprzed stymulacji. Przedstawiono sześciokanałowy zapis EKG, aby zilustrować różnice w odstępie RR przed, w trakcie i po stymulacji (Rysunek 5B). Odprowadzenia aVR, aVL i aVF są obliczane w oprogramowaniu LabChart na podstawie odprowadzeń I i II.
Fotostymulacja neuronów katecholaminergicznych w sercach myszy TH-ChR2 powoduje bardziej stopniową (wykładniczą) zmianę częstotliwości akcji serca w porównaniu do fotostymulacji neuronów cholergicznych. Prawdopodobnie wynika to z faktu, że aktywacja beta1-adrenergiczna wymaga systemu drugiego przekaźnika cAMP aktywującego PKA, która fosforyluje białka docelowe, podczas gdy aktywacja muskarynowa tego procesu nie wymaga. Rycina 6 przedstawia wzrost częstotliwości akcji serca o 135 bpm w ciągu 10 s. Po wyłączeniu światła potrzeba dodatkowych 10 s, aby powrócić do normalnego rytmu zatokowego. Jeśli mikro-LED nie jest odpowiednio izolowany, może on doprowadzić do nagrzania serca, powodując wzrost częstotliwości akcji serca. Ta odpowiedź termiczna jest mniej intensywna niż stymulacja TH-ChR2; w związku z tym zmiana częstotliwości akcji serca jest mniej wyraźna.
Jednym z zastosowań niniejszego protokołu jest wykorzystanie stymulacji optogenetycznej do depolaryzacji neuronów, co prowadzi do uwalniania endogennych neuroprzekaźników przy jednoczesnym dodawaniu egzogennych neuroprzekaźników do perfuzatu. Rysunek 7A ilustruje endogenne uwalnianie acetylocholiny z serca myszy ChAT-ChR2 po dodaniu do perfuzatu dawki bolusa NE. Wobec braku NE fotostymulacja spowodowała spadek tętna o ponad 100 bpm, a spadek ten utrzymywał się przez cały czas trwania stymulacji. Natomiast przy dużej dawce NE (2000 nM) maksymalny spadek tętna podczas fotostymulacji wyniósł 40 bpm. Tętno zaczęło natychmiast rosnąć, niemal osiągając poziomy sprzed stymulacji jeszcze przed wyłączeniem światła. Wynik ten wskazuje, że optogenetyczne tłumienie tętna poprzez fotostymulację neuronów ChAT nie było w stanie w pełni zniwelować wzrostów tętna wynikających z wysokiej dawki NE, co spowodowało krótszy czas tłumienia tętna i mniejsze spadki tętna (Rysunek 7B). Wyniki te są zgodne z wcześniejszymi badaniami na dużych zwierzętach, które wykazały postępujący blok węzła AV podczas jednoczesnej stymulacji nerwu błędnego i zwojów gwiaździstych12,13.
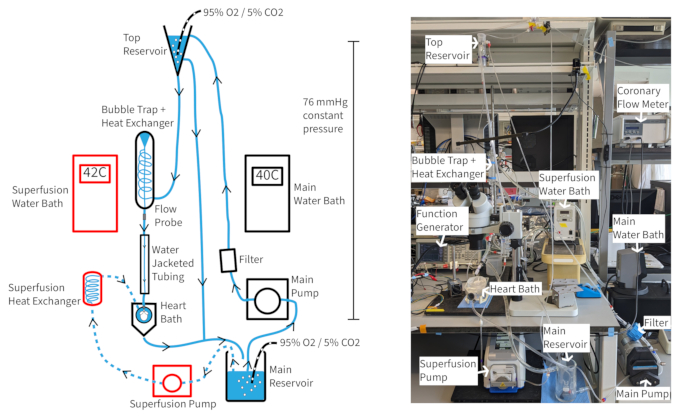
Rysunek 4: Układ eksperymentalny. Schemat układu perfuzyjnego. Strzałki wskazują kierunek przepływu perfuzatu. Perfusat do superperfuzji zaznaczono liniami przerywanymi, a komponenty obramowano na czerwono. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
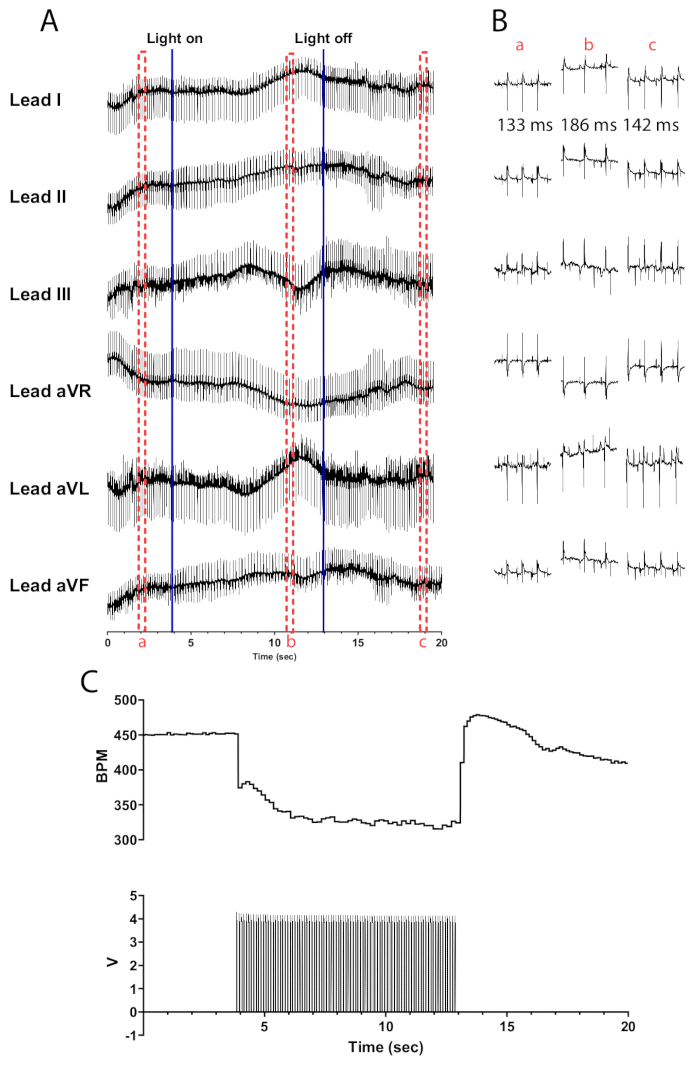
Rysunek 5: Reprezentatywna odpowiedź na cholinergiczną fotostymulację. (A) EKG z 6 odprowadzeń podczas optogenetycznej aktywacji ChAT-ChR2. Ciągłe niebieskie linie wskazują moment włączenia/wyłączenia mikro-LED. Czerwone przerywane ramki wskazują czas dla fragmentów (B). (B) Półsekundowe fragmenty sygnału EKG przed (a), w trakcie (b) i po fotostymulacji (c). Odstęp RR pokazano dla każdej sekcji. (C) Tętno (góra) przedstawiono wraz z falami impulsów z generatora funkcji (dół). Tętno zaczyna się od 450 bpm i spada do 315 bpm po 8 s fotostymulacji, a następnie powraca do 410 bpm 7 s po zakończeniu fotostymulacji. Aby zobaczyć większą wersję tego rysunku, kliknij tutaj.
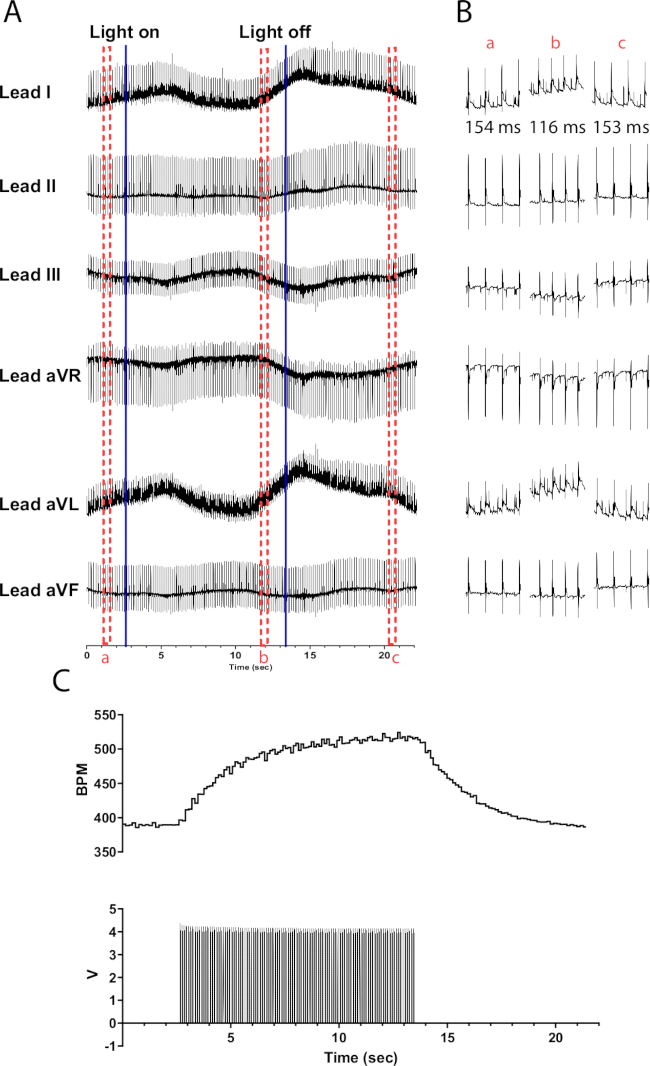
Rysunek 6: Reprezentatywna odpowiedź na fotostymulację katecholaminergiczną. (A) EKG 6-odprowadzeniowe podczas optogenetycznej aktywacji TH-ChR2. Ciągłe niebieskie linie wskazują moment włączania/wyłączania mikro-LED. Czerwone przerywane ramki wskazują czas dla (B) fragmentów. (B) Półsekundowe fragmenty sygnału EKG przed (a), w trakcie (b) i po fotostymulacji (c). Dla każdej sekcji pokazano odstęp RR. (C) Częstotliwość akcji serca (góra) przedstawiona wraz z falami impulsowymi z generatora funkcji (dół). Częstotliwość akcji serca rozpoczyna się od 390 bpm i osiąga szczyt 525 bpm po 10 s fotostymulacji, a następnie powraca do 390 bpm 8 s po zakończeniu fotostymulacji. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
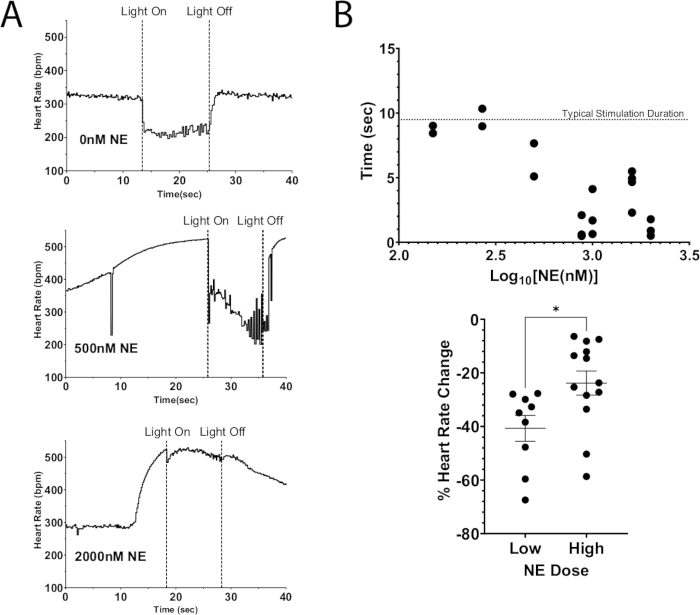
Rysunek 7: Fotostymulacja cholergiczna z egzogeniczną NE. (A) Odpowiedź częstości akcji serca podczas fotostymulacji ChAT-ChR2 z dodatkiem zwiększających się dawek NE do perfuzatu. Po osiągnięciu maksymalnego wzrostu częstości akcji serca wywołanego przez NE, mikro-LED został włączony na około 10 s. Tłumienie częstości akcji serca było nadal możliwe przy wysokich dawkach NE, jednak czas trwania stymulacji ulegał skróceniu wraz ze wzrostem dawki. (B) Czas, przez który częstość akcji serca pozostawała stłumiona. Wartości bliższe 10 s zazwyczaj oznaczały tłumienie przez cały czas trwania stymulacji. (C) Spadek częstości akcji serca podczas fotostymulacji był mniej gwałtowny przy wyższych dawkach NE niż przy dawkach niskich. Niskie dawki spowodowały średni spadek częstości akcji serca o 40%, podczas gdy wyższe dawki spowodowały spadek jedynie o 25%. W celu oceny istotności statystycznej przeprowadzono nieparzysty test t. Przedstawiono jako standardowy błąd średniej * p < 0.05. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Dyskusja
Stymulacja optogenetyczna wewnętrznych neuronów autonomicznych serca powodowała porównywalne poziomy reakcji serca jak stymulacja elektryczna nerwu błędnego lub zwojów gwiaździstych14,15. Stymulacja elektryczna wyciętych perfundowanych serc nie ma jednak tej zalety, że jest w stanie łatwo celować w określone populacje neuronów. Aktywacja farmakologiczna ma tę zaletę, że jest ukierunkowana na określone receptory, ale nie ma swoistości przestrzennej, a czas odpowiedzi zależy od szybkości przepływu wieńcowego. Aktywacja optogenetyczna zapewnia korzyści w postaci niemal natychmiastowej odpowiedzi, celowania w populacje neuronów i możliwości zmiany poziomu fotostymulacji16. W tym protokole wyjaśniliśmy również, jak skonstruować proste, tanie źródło światła do fotostymulacji wewnętrznych neuronów serca.
Pogłębienie wiedzy na temat wpływu wewnątrzsercowego układu nerwowego ułatwi lepszą diagnostykę i leczenie chorób sercowo-naczyniowych. Selektywna ekspresja ChR2 umożliwia testowanie nowych hipotez związanych z aktywnością określonych populacji nerwów podczas choroby. W ten sposób można badać populacje nerwów w całym sercu, takie jak wewnętrzne zwoje serca wokół żył płucnych lub w komorach. Na przykład w mysich modelach zawału mięśnia sercowego fotostymulacja wewnętrznych neuronów autonomicznych może być przydatna do badania zmian elektrofizjologicznych w tkance strefy granicznej w miarę ewolucji zawału i transdyferencjacji neuronów17. W tym protokole opisujemy kolejny przykład obejmujący kontrolowane eksperymenty z ostrymi reakcjami serca na jednoczesną aktywację szlaków cholinergicznych i katecholaminergicznych, w których połączenie czynników optogenetycznych i farmakologicznych pozwala na zbadanie unikalnych odpowiedzi na dawkę. Ta jednoczesna aktywacja jest zjawiskiem związanym z utonięciem, znanym jako konflikt autonomiczny, który nie został jeszcze wpełni wyjaśniony. Dodatkowo, przy odpowiednich kombinacjach światła, barwnika i filtrów, protokół ten można połączyć z mapowaniem optycznym serca w celu zbadania ostrego wpływu stymulacji neuronów autonomicznych na elektrofizjologię serca i mechanizmy arytmii neurosercowej 19,20,21.
Istnieje kilka ważnych pojęć, które należy wziąć pod uwagę podczas korzystania z tego protokołu do badania wewnętrznego układu nerwowego serca w wyciętych perfuzjach serc. Serca myszy są wrażliwe na niewielkie zmiany w środowisku perfuzji. Ścisłe monitorowanie częstości akcji serca jest przydatne do identyfikacji problemów z perfuzją wieńcową, które mogą powodować niskie natlenienie mięśnia sercowego, niedokrwienie i słabą czynność serca. Protokół zaleca natlenienie perfuzatu zarówno w głównym, jak i górnym zbiorniku, aby ograniczyć potencjalne problemy. Całkowite zanurzenie rurki natleniającej pomaga zagwarantować optymalny poziom tlenu w perfuzacie. Latarkę ultrafioletową można skierować na serce, aby ujawnić fluorescencję NADH wskazującą na niedotlenienie/niedokrwienie, a natlenienie można odpowiednio dostosować19,20. Temperatura perfuzjatu zależy od natężenia przepływu wieńcowego podczas perfuzji o stałym ciśnieniu. Jeśli natężenie przepływu wieńcowego spadnie, temperatura perfuzatu aorty może również spaść z powodu chłodzenia w rurce proksymalnie do kaniuli aortalnej, co skutkuje niższym tętnem. Zwiększenie temperatury kąpieli wodnej perfuzyjnej może pomóc w odwróceniu tego problemu. Protokół ten wykorzystuje również pętlę superfuzji w celu utrzymania temperatury kąpieli serca na poziomie 37 °C. Spadki temperatury kąpieli serca mogą wymagać zwiększenia szybkości przepływu w kąpieli przefuzyjnej. Mikrodioda LED jest kolejnym źródłem potencjalnych zmian temperatury serca, ponieważ temperatura RZS może wzrosnąć podczas fotostymulacji. Jeśli elastomer silikonowy, który otacza urządzenie, jest zbyt cienki, mikrodioda LED może się nagrzać i nagrzać węzeł SA, powodując nieoczekiwany wzrost tętna. Testowanie źródła światła micro-LED na sercu typu dzikiego może być przydatne do pomiaru poziomu ogrzewania. Dioda micro-LED nie powinna powodować wzrostu tętna o więcej niż 10% w ciągu 30 s. W takim przypadku elastomer silikonowy należy wymienić.
Celem eksperymentów ex vivo z perfuzją serca jest odtworzenie warunków zbliżonych do fizjologicznych z kontrolowanymi zmiennymi, ale mają one swoje ograniczenia22. Perfuzat krystaloidowy jest standardem w tych eksperymentach; Może jednak ograniczać dostarczanie tlenu do mitochondriów w warunkach dużego stresu23,24. Ponadto perfuzatowi brakuje krążących hormonów, które występowałyby naturalnie in vivo. Dodatkowym ograniczeniem jest to, że zmienne natężenie światła i rozmieszczenie mikro-diody LED może powodować lokalne różnice w stymulacji neuronalnej, dlatego przed rozpoczęciem protokołu eksperymentalnego zawsze wymagane są pewne korekty w umieszczeniu mikro-diody LED nad sercem.
Podsumowując, protokół ten ilustruje podejście ex vivo do specyficznej stymulacji optogenetycznej neuronów sercowych w perfundowanych sercach myszy. Skonstruowano źródło światła micro-LED, które stymuluje neurony prawego przedsionka. Zastosowanie tego podejścia łączyło wewnętrzne uwalnianie acetylocholiny podczas optogenetycznej aktywacji serca myszy ChAT-ChR2 jednocześnie ze wzrostem egzogennego NE. Przedstawiono wynikające z tego zmiany częstości akcji serca podczas jednoczesnej aktywacji katecholaminergicznej i cholinergicznej. Protokół ten opisuje cenne podejście eksperymentalne do badania kinetyki nagłej wewnętrznej aktywacji neuronów autonomicznych w perfundowanych sercach oraz interakcji między czynnością cholinergiczną serca i katecholaminergiczną.
Oświadczenia
Brak konfliktu interesów, który można by zadeklarować.
Podziękowania
Ta praca była wspierana przez NIH R01 HL144157 do MWK, NIH R01 HL144157 do EE i MWK, oraz NIH R01s HL147279 i HL146169 do MWK i DM, a także Collins Distinguished Doctoral Fellowship dla RR.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| #3c Kleszcze (x2) | Dumont | 11231-20 | |
| 0,2 μ m Filtr membranowy z azotanu celulozy | Whatman | 7182-004 | Do filtrowania KH |
| 0,5 ml, Rurka do mikrowirówki | Ultra Cruz | sc-200269 | |
| 10 μ m Filtr membranowy nukleporowy | Whatman | 111115 | Do filtra systemowego |
| Inkubator analogowy | Qunicy Labs | 12-140 | |
| Kaniula aorty | Aparat Harvard | 73-2798 | |
| Generator funkcji arbitralnych | Tektronix | AFG3021B | |
| Pleciony jedwabny szew 4-0 | Specjalizacje chirurgiczne Look | SP116 | |
| CaCl2 | Sigma-Aldrich | C1016 | |
| Zakrzywiony Hemostat | Ted Pella | 53065 | |
| Einthoven Goldberger Module | Hugo Sachs Elektronik | 73-1778 | |
| Elastyczny drut silikonowy 30AWG | BNTECHGO | 619317716902 | |
| Glucose | Sigma-Aldrich | G8270 | |
| Ciężkie zakrzywione kleszczyki do tęczówki | Aesculap | OC022R | |
| Heparyna Sól sodowa do wstrzykiwań | 400-30 | ||
| Nożyczki do tęczówki | Ted Pella | 13215 | |
| Roztwór izofluranu | Covetrus | 029405 | |
| KCl | Sigma-Aldrich | P3911 | |
| KH2PO4 | Sigma-Aldrich | P9791 | |
| LabChart 8 | ADInstruments | Oprogramowanie do akwizycji danych | |
| MgSO4 | Sigma-Aldrich | M7506 | |
| Nożyczki do mikropreparacji | WPI | 504520 | |
| Micro-LED | Dialight | 598-8091-107F | |
| NaCl | Sigma-Aldrich | S9625 | |
| NaHCO3 | Sigma-Aldrich | S6014 | |
| Miernik mocy optycznej | Thorlabs | PM100D | |
| PowerLab 8/35 | ADInstruments | PL3508 | |
| Samoczynne otwieranie Nożyczki precyzyjne | Excelta | 366 | |
| Maszyna do znieczulenia pojedynczych zwierząt | EZ Systems | EZ-108SA | |
| Stacja lutownicza | Weller | WES51 | |
| SureOne Filtr Końcówki do pipet | Fisherbrand | 02-707-478 | |
| SYLGARD 184 Zestaw elastomerów silikonowych | DOW | 04019862 | |
| Kleszczyki do tkanek | Ted Pella | 13220 | |
| System przepływu rur | Transonic | TS410 |
Bibliografia
- Deisseroth, K., et al. Next-generation optical technologies for illuminating genetically targeted brain circuits. J Neurosci. 26 (41), 10380-10386 (2006).
- Entcheva, E., Kay, M. W. Cardiac optogenetics: a decade of enlightenment. Nat Rev Cardiol. 18, 349-367 (2021).
- Ambrosi, C. M., Klimas, A., Yu, J., Entcheva, E. Cardiac applications of optogenetics. Prog Biophys Mol Biol. 115 (2-3), 294-304 (2014).
- Pinol, R. A., Bateman, R., Mendelowitz, D. Optogenetic approaches to characterize the long-range synaptic pathways from the hypothalamus to brain stem autonomic nuclei. J Neurosci Meth. 210 (2), 238-246 (2012).
- Zeng, H., Madisen, L. Mouse transgenic approaches in optogenetics. Prog Brain Res. 196, 193-213 (2012).
- Sauer, B. Inducible gene targeting in mice using the Cre/lox system. Methods. 14 (4), 381-392 (1998).
- Hedrick, T., et al. Characterization of channelrhodopsin and archaerhodopsin in cholinergic neurons of Cre-lox transgenic mice. PLoS One. 11 (5), 1-15 (2016).
- Moreno, A., et al. Sudden heart rate reduction upon optogenetic release of acetylcholine from cardiac parasympathetic neurons in perfused hearts. Front Physiol. 10, 1-11 (2019).
- Habecker, B. A., et al. Molecular and cellular neurocardiology in heart disease. J Physiol. , (2024).
- Wengrowski, A. M., et al. Optogenetic release of norepinephrine from cardiac sympathetic neurons alters mechanical and electrical function. Cardiovas Res. 105 (2), 143-150 (2015).
- Williams, J. C., et al. Computational optogenetics: empirically-derived voltage- and light-sensitive channelrhodopsin-2 model. PLoS Comput Biol. 9 (9), e1003220(2013).
- Moreno, A., Kowalik, G., Mendelowitz, D., Kay, M. W. Optogenetic control of cardiac autonomic neurons in transgenic mice. Meth Mol Biol. 2191, 309-321 (2021).
- Einthoven, W., Fahr, G., de Waart, A. On the direction and manifest size of the variations of potential in the human heart and on the influence of the position of the heart on the form of the electrocardiogram. Am Heart J. 40 (2), 163-211 (1950).
- Giles, A. V., et al. Paradoxical arteriole constriction compromises cytosolic and mitochondrial oxygen delivery in the isolated saline-perfused heart. Am J Physiol Heart Circ Physiol. 315 (6), H1791-H1804 (2018).
- Wallick, D. W., Martin, P. J., Masuda, Y., Levy, M. N. Effects of autonomic activity and changes in heart rate on atrioventricular conduction. Am J Physiol. 243 (4), H523-H527 (1982).
- Entcheva, E. Cardiac optogenetics. Am J Physiol Heart Circ Physiol. 304 (9), H1179-H1191 (2013).
- Wang, L., et al. Cardiac sympathetic nerve transdifferentiation reduces action potential heterogeneity after myocardial infarction. Am J Physiol Heart Circ Physiol. 318 (3), H558-H565 (2020).
- Shattock, M. J., Tipton, M. J. Autonomic conflict: a different way to die during cold water immersion. J Physiol. 590 (14), 3219-3230 (2012).
- Sacconi, L., et al. KHz-rate volumetric voltage imaging of the whole Zebrafish heart. Biophys Rep. 2 (1), 100046(2022).
- Asfour, H., Swift, L. M., Sarvazyan, N., Doroslovacki, M., Kay, M. W. Signal decomposition of transmembrane voltage-sensitive dye fluorescence using a multiresolution wavelet analysis. IEEE Trans Biomed Eng. 58 (7), 2083-2093 (2011).
- Nyns, E. C. A., et al. Optogenetic termination of ventricular arrhythmias in the whole heart: towards biological cardiac rhythm management. Eur Heart J. 38 (27), 2132-2136 (2017).
- Ripplinger, C. M., et al. Guidelines for assessment of cardiac electrophysiology and arrhythmias in small animals. Am J Physiol Heart Circ Physiol. 323 (6), H1137-H1166 (2022).
- Swift, L. M., Kay, M. W., Ripplinger, C. M., Posnack, N. G. Stop the beat to see the rhythm: excitation-contraction uncoupling in cardiac research. Am J Physiol Heart Circ Physiol. 321 (6), H1005-H1013 (2021).
- Asfour, H., et al. NADH fluorescence imaging of isolated biventricular working rabbit hearts. J Vis Exp. (65), e4115(2012).
Przedruki i uprawnienia
