Tutaj prezentujemy metodologię zwięzłej oceny poziomów markera autofagosomu LC3-II w pęcherzykach zewnątrzkomórkowych (EVs) za pomocą immunoblottingu. Analiza poziomów LC3-II w EV, tworzeniu autolizosomów i tworzeniu omegasomów sugeruje nową rolę STX6 w uwalnianiu LC3-II-dodatnich EV, gdy fuzja autofagosomu z lizosomem jest hamowana.
Artykuł metodologiczny
Ocena uwalniania LC3-II przez pęcherzyki zewnątrzkomórkowe w odniesieniu do akumulacji wewnątrzkomórkowych pęcherzyków LC3-dodatnich
W tym artykule
Podsumowanie
Streszczenie
(Makro)autofagia reprezentuje fundamentalny szlak degradacji komórkowej. W tym procesie pęcherzyki o podwójnej błonie, znane jako autofagosomy, pochłaniają zawartość cytoplazmatyczną, a następnie łączą się z lizosomami w celu degradacji. Poza rolą kanoniczną, geny związane z autofagią modulują również szlak wydzielniczy obejmujący uwalnianie cząsteczek zapalnych, czynników naprawy tkanek i pęcherzyków zewnątrzkomórkowych (EV). Warto zauważyć, że proces rozprzestrzeniania się patologicznych białek między komórkami, szczególnie w chorobach neurodegeneracyjnych wpływających na mózg i rdzeń kręgowy, podkreśla znaczenie zrozumienia tego zjawiska. Ostatnie badania sugerują, że białko wiążące DNA 43 kDa (TDP-43), odgrywające kluczową rolę w stwardnieniu zanikowym bocznym i zwyrodnieniu płata czołowo-skroniowego, jest uwalniane w sposób zależny od autofagii za pośrednictwem EV wzbogaconych o marker autofagosomów mikrotubul białka 1A/1B łańcuch lekki 3B-II (LC3-II), zwłaszcza gdy fuzja autofagosomu z lizosomem jest zahamowana.
Aby wyjaśnić mechanizm leżący u podstaw powstawania i uwalniania LC3-II-dodatnich EV, konieczne jest ustanowienie dostępnej i powtarzalnej metody oceny zarówno wewnątrzkomórkowych, jak i zewnątrzkomórkowych pęcherzyków LC3-II-dodatnich. W pracy przedstawiono szczegółowy protokół oceny poziomów LC3-II poprzez immunoblotting we frakcjach komórkowych i EV uzyskanych w wyniku wirowania różnicowego. Bafilomycyna A1 (Baf), inhibitor fuzji autofagosomu z lizosomem, służy jako kontrola pozytywna w celu zwiększenia poziomu wewnątrzkomórkowych i zewnątrzkomórkowych pęcherzyków LC3-II-dodatnich. Gen podatności guza 101 (TSG101) jest używany jako marker ciał wielopęcherzykowych. Stosując ten protokół, wykazano, że knockdown syntaksyny-6 (STX6) za pośrednictwem siRNA, genetycznego czynnika ryzyka sporadycznej choroby Creutzfeldta-Jakoba, zwiększa poziomy LC3-II we frakcji EV komórek leczonych Baf, nie wykazując znaczącego wpływu na poziomy TSG101. Odkrycia te sugerują, że STX6 może negatywnie regulować zewnątrzkomórkowe uwalnianie LC3-II przez EV, szczególnie w warunkach, w których fuzja autofagosomu z lizosomem jest upośledzona. W połączeniu z uznanymi metodami oceny autofagii, protokół ten dostarcza cennych informacji na temat roli określonych cząsteczek w tworzeniu i uwalnianiu LC3-II-dodatnich EV.
Wprowadzenie
Białko wiążące DNA odpowiedzi transaktywacyjnej 43 (TDP-43) jest szeroko wyrażaną heterogeniczną rybonukleoproteiną jądrową zaangażowaną w regulację splicingu egzonów, transkrypcji genów i stabilności mRNA, wszystko niezbędne dla przetrwania komórki1,2. W stanach neurodegeneracyjnych, takich jak stwardnienie zanikowe boczne (ALS) i zwyrodnienie płata czołowo-skroniowego (FTLD), białko jądrowe TDP-43 nieprawidłowo gromadzi się w cytoplazmie. Ta zmiana powoduje utratę funkcji TDP-43 w jądrze i toksyczne wzmocnienie funkcji w cytoplazmie. Patologiczna akumulacja TDP-43 rozpoczyna się w określonych obszarach mózgu i rdzenia kręgowego, rozprzestrzeniając się przez te obszary w sposób podobny do prionów, proces ściśle związany z postępem choroby3. Jednak dokładny mechanizm, za pomocą którego patologia TDP-43 rozprzestrzenia się w mózgu i rdzeniu kręgowym, pozostaje nieznany.
TDP-43 jest wydzielany przez pęcherzyki zewnątrzkomórkowe (EV), a podwyższone poziomy TDP-43 są wykrywane w osoczu i płynie mózgowo-rdzeniowym (CSF) pacjentów z ALS i FTLD-TDP4,5,6. Płyn mózgowo-rdzeniowy od pacjentów, u których zdiagnozowano ALS i FTLD, indukuje wewnątrzkomórkową błędną lokalizację i agregację endogennego TDP-43 w ludzkich komórkach glejaka7. W ten sposób TDP-43 uwalniany poza komórką przez EV może pośredniczyć w rozprzestrzenianiu się patologii TDP-43 z komórki między komórkami.
Autofagia to dobrze zachowany mechanizm degradacji komórkowej, który polega na zamknięciu niechcianych substancji w pęcherzykach o podwójnej błonie, znanych jako autofagosomy, które są oznaczone przez LC3. Te autofagosomy łączą się z lizosomami dodatnimi związanymi z lizosomem białka błonowego 1 (LAMP1), tworząc autolizosomy (LC3+/LAMP1+), co prowadzi do degradacji ich zawartości8. Analizy histologiczne wskazują, że autofagosomy pochłaniające inkluzje gromadzą się w neuronach sporadycznych pacjentów z ALS9. Niektóre geny powodujące rodzinne ALS i FTLD-TDP są związane z regulacją autofagii10,11,12. Wyniki te sugerują, że autofagia jest tłumiona u pacjentów z ALS i FTLD-TDP.
Poprzednie badanie wykazało, że TDP-43 jest wydzielany przez EVs dodatnie dla markera autofagosomu LC3-II, gdy fuzja autofagosomu z lizosomem jest hamowana13. Rozregulowanie szlaku autofagia-lizosom może powodować nie tylko wewnątrzkomórkową akumulację TDP-43, ale także zewnątrzkomórkowe uwalnianie TDP-43 przez EVs14. Nie wiadomo jednak, w jaki sposób uwalniane są dodatnie EV LC3-II i jak ważne jest to w rozprzestrzenianiu się patologii TDP-43.
EVs dzielą się na duże EV (o średnicy od 100 do 1000 nm), które powstają z pączkowania na powierzchni komórki, oraz małe EV (o średnicy od 50 do 150 nm), które powstają w wyniku pączkowania błon endosomalnych w kierunku wnętrza endosomu (znanych jako egzosomy) i aparatu Golgiego. Aby oddzielnie zbierać duże i małe pojazdy elektryczne, przeprowadzamy wirowanie sekwencyjne i zbieramy granulki przez odwirowanie odpowiednio przy 20 000 × g i 110 000 × g. Frakcja P1 EV (granulki 20 000 × g) jest przygotowana do zbierania dużych EV, a frakcja P2 EV (110 000 × g granulek) jest przygotowana do zbierania małych EVs15. Metodologia oceny poziomów LC3-II w dużych i małych EV pochodzących z sekwencyjnego wirowania za pomocą immunoblottingu jest stabilna i odtwarzalna16. Oprócz analizy poziomów LC3-II w EV, analiza tworzenia autolizosomów i omegasomów zwiększa zrozumienie, w jaki sposób dysregulacja autofagii prowadzi do uwalniania LC3-II dodatnich EV. W tym przypadku niniejsze badanie pokazuje supresyjną rolę syntaksyny 6 (STX6), białka SNARE, które promuje ruch pęcherzyków transportowych do błon docelowych17, w uwalnianiu dodatnich EV LC3-II, gdy fuzja autofagosomu z lizosomem jest zahamowana.
Protokół
1. Przygotowanie frakcji EV komórki, P1 i P2 z pożywki hodowlanej komórek HeLa
- Przygotowanie frakcji P1 i P2 EV z pożywki hodowlanej komórek HeLa
- Dzień 1
- Policz komórki za pomocą licznika komórek i zasiewu 1 ×10 6 komórek na 6 cm płytce zawierającej pożywkę hodowlaną złożoną z DMEM o wysokiej zawartości glukozy, 10% FBS i 1% penicyliny/streptomycyny. Inkubować komórki w temperaturze 37 °C z 5% CO2 i kontrolowaną wilgotnością przez 24 godziny.
- Dzień 2 (opcjonalnie)
- Przygotować 20 μM roztwór siRNA.
- Zmieszać 100 μl zredukowanej pożywki surowicy i 3 μl siRNA w probówce o niskiej retencji, aby przygotować roztwór A.
- Zmieszać 100 μl zredukowanej pożywki surowicy i 5 μl odczynnika do transfekcji w probówce o niskiej retencji, aby przygotować roztwór B.
- Wymieszać roztwór A i roztwór B, a następnie inkubować mieszaninę w temperaturze pokojowej (RT) przez 5 minut.
- Dodać mieszaninę roztworów A i B do pożywki używanej do hodowli komórek HeLa. Inkubować komórki w temperaturze 37 °C z 5% CO2 i kontrolowaną wilgotnością przez 24 godziny.
- Dzień 3
- Umyj komórki PBS i wystawij je na działanie 500 μl 0,25% trypsyny i 1 mM roztworu EDTA w temperaturze 37 °C z 5% CO2 i kontrolowanej wilgotności przez 5 minut.
- Dodać 2,5 ml pożywki hodowlanej do komórek i użyć pipety transferowej Pasteura z dołączoną końcówką do pipety o pojemności 200 μl, aby przygotować zawiesinę jednokomórkową.
- Policz komórki za pomocą licznika komórek i wysiej 1 ×10 6 komórek na 10 cm płytce. Inkubować komórki w temperaturze 37 °C z 5% CO2 i kontrolowaną wilgotnością przez 24 godziny
UWAGA: Konieczne jest przygotowanie co najmniej 1 × 10⁶ komórek w celu pobrania EV z pożywki hodowlanej wymaganej do analizy immunoblottingu.
- Dzień 4
- Przygotować pożywkę hodowlaną (patrz etap 1.1.1.1) zawierającą nośnik (DMSO) lub 100 nM bafilomycyny A1 (Baf).
- Wystawić komórki na działanie pożywki zawierającej nośnik lub 100 nM Baf i inkubować je w temperaturze 37 °C z 5% CO2 i kontrolowaną wilgotnością przez 24 godziny.
- Dzień 5
- Zebrać całą pożywkę hodowlaną z płytki o średnicy 10 cm, przenieść ją do probówki o pojemności 15 ml i odwirować w temperaturze 3 000 × g przez 10 minut w temperaturze 4 °C w celu usunięcia resztek komórek.
UWAGA: Pozostałe komórki na płytce o średnicy 10 cm zostaną wykorzystane w sekcji 1.2.1. - W celu wyizolowania frakcji P1 EV supernatant po odwirowaniu w ilości 3 000 × g przenieść do probówki wirówkowej, a następnie odwirować go w temperaturze 20 000 × g w temperaturze 4 °C przez 1 godzinę.
- W celu wyizolowania frakcji P2 EV supernatant po odwirowaniu w stężeniu 20 000 × g należy przenieść do probówki ultrawirówkowej, a następnie odwirować go w temperaturze 110 000 × g w temperaturze 4 °C przez 1 godzinę.
- Po zetarciu nadmiaru wilgoci z wnętrza probówki chusteczką laboratoryjną, pozostałe granulki należy ponownie zawiesić w probówce wirówkowej w 50 μl 2x buforu do próbek [2,5% SDS, 125mM bufor Tris-HCl (pH 6,8), 30% glicerol, 10% 2-merkaptoetanol, 0,4% błękit bromofenolowy] w celu przygotowania frakcji P1 EV.
- Usunąć supernatant przez dekantację, zetrzeć nadmiar wilgoci z wnętrza probówki chusteczką laboratoryjną, a następnie ponownie zawiesić pozostałe granulki w probówce ultrawirówki w 50 μl 2x buforu do próbek w celu przygotowania frakcji P2 EV.
- Inkubować frakcje P1 i P2 EV w temperaturze 100 °C na bloku grzewczym przez 10 min.
UWAGA: Nie potrząsaj probówkami po odwirowaniu przy 20 000 × g i 110 000 × g, aby uniknąć przypadkowego wyrzucenia pozostałych granulek. Po przechyleniu probówki w celu przeniesienia supernatantu, należy utrzymać pozycję probówki, aby zapobiec ponownemu zanurzeniu osadu w pozostałym supernatantze.
- Zebrać całą pożywkę hodowlaną z płytki o średnicy 10 cm, przenieść ją do probówki o pojemności 15 ml i odwirować w temperaturze 3 000 × g przez 10 minut w temperaturze 4 °C w celu usunięcia resztek komórek.
- Dzień 1
- Przygotowanie frakcji komórkowej z hodowanych komórek HeLa
- Dzień 5
- Po przeniesieniu pożywki hodowlanej z płytki o średnicy 10 cm do probówki o pojemności 15 ml, umyć komórki w naczyniu o średnicy 10 cm PBS i wystawić je na działanie 2 ml 0,25% trypsyny i 1 mM roztworu EDTA w temperaturze 37 °C z 5% CO2 i kontrolowanej wilgotności przez 5 minut.
- Dodać 8 ml pożywki wzrostowej do komórek, a następnie użyć pipety transferowej Pasteura z końcówką do pipety o pojemności 200 μl, aby pipetować komórki i przygotować zawiesinę jednokomórkową.
- Przenieść zawiesinę komórkową do probówki o pojemności 15 ml i odwirować ją w temperaturze 1 000 × g przez 10 minut w temperaturze 4 °C.
- Usunąć supernatant za pomocą aspiratora, dodać PBS do osadu komórkowego, a następnie odwirować w stężeniu 1 000 × g przez 5 minut w temperaturze 4 °C.
- Usunąć PBS za pomocą aspiratora i poddać sonikacji osad komórkowy w 1 ml buforu A68 [10 mM bufor Tris-HCl, pH 7,5, 0,8 M NaCl, 1 mM glikol etylenowy bis(β-aminoetylowy eter)-N,N,N,N-tetraoctowy (EGTA)] zawierający 1% sarkozylu.
- Zmierz stężenie białka w lizacie komórkowym za pomocą zestawu do oznaczania białek BCA.
- Zmieszać 300 μl lizatu komórkowego ze 100 μl 4x buforu do próbki i inkubować mieszaninę w temperaturze 100 °C na bloku grzewczym przez 10 minut w celu przygotowania frakcji komórkowej.
- Dzień 5
2. Analiza immunoblottingu
- Oddziel równoważne ilości białek w próbkach według SDS-PAGE18.
- Przenieść oddzielone białka na membrany z polifluorku winylidenu (PVDF).
- Po przeniesieniu zablokować membrany środkiem blokującym na 20 minut.
- Inkubować zablokowaną błonę przez noc ze wskazanym pierwszorzędowym przeciwciałem w buforze Tris zawierającym 10% (v/v) surowicy cielęcej w temperaturze pokojowej.
- Przemyć błonę buforem Tris przez 5 s, a następnie inkubować ją z przeciwciałem drugorzędowym sprzężonym z biotyną w RT przez 2 godziny.
- Przemyć membranę buforem Tris przez 5 s, a następnie inkubować ją z buforem Tris zawierającym 0,4% (v/v) roztwory A i roztwór B z zestawu w temperaturze pokojowej przez 1 godzinę.
- Przemyć membranę PBS, a następnie inkubować ją z PBS zawierającym 0,04% (m/v) diaminobenzydyny, 0,8% (w/v) NiCl2·6H2O, i 0,3% (v/v)H2O2 w celu kolorymetrycznego wykrywania pasm.
UWAGA: Do wykrywania sygnałów dopuszczalna jest również metoda chemiluminescencyjna. - Zdigitalizuj obraz membrany za pomocą skanera i poddaj go analizie densytometrycznej przy użyciu Fidżi.
- Otwórz zdigitalizowany obraz za pomocą Fidżi i przekonwertuj obraz w kolorze RGB na obraz 8-bitowy, klikając Obraz | Rodzaj | 8-bitowy.
- Kliknij narzędzie prostokąta i dostosuj rozmiar prostokąta, przeciągając go, aby otoczyć paski. Zidentyfikuj pasmo do analizy, klikając przycisk Analizuj | Żele | Wybierz opcję Pierwszy pas.
- Umieść prostokąt na drugim i kolejnych pasmach i zidentyfikuj pasma do analizy, klikając przycisk Analizuj | Żele | Wybierz pozycję Następny pas.
- Po rozpoznaniu ostatniego pasma zmierz densytometrię w poprzek prostokąta, klikając Analizuj | Żele | Działka: Pasy ruchu.
- Otocz obszar sygnału pasma linią prostą, kliknij narzędzie różdżki, a następnie kliknij obszar, aby obliczyć intensywność sygnału pasma.
3. Analiza liczby autofagosomów i autolizosomów
- Dzień 1
- Policz liczbę komórek HeLa za pomocą licznika komórek i zasiewaj 1 × 10⁵ komórek HeLa eksprymujących LAMP1-GFP i mCherry-LC3 na 3,5 cm szalce. Inkubować komórki w temperaturze 37 °C z 5% CO2 i kontrolowaną wilgotnością przez 24 godziny.
- Dzień 2 (opcjonalnie)
- Czynności opisane w sekcji 1.1.2 należy wykonać w szalkach o średnicy 3,5 cm.
- Dzień 3
- Wyrzuć pożywkę hodowlaną z szalek o średnicy 3,5 cm.
- Umyj komórki PBS, wystawij je na działanie 400 μl 0,25% trypsyny i 1 mM roztworu EDTA i inkubuj w temperaturze 37 °C z 5% CO2 i kontrolowaną wilgotnością przez 5 minut.
- Dodać 1,6 ml pożywki wzrostowej do komórek i odpipetować je pipetą transferową Pasteura, aby przygotować zawiesinę jednokomórkową.
- Policz liczbę komórek za pomocą licznika komórek i zasiej 1 ×10 4 komórki na 8-komorowym szkiełku nakrywkowym. Inkubować komórki w temperaturze 37 °C z 5% CO2 i kontrolowaną wilgotnością przez 24 godziny
UWAGA: Dwie studzienki komorowego szkiełka nakrywkowego są przygotowywane odpowiednio dla komórek kontrolnych i STX6 knockdown, po obróbce DMSO lub Baf, jak opisano w sekcji 3.4.2.
- Dzień 4
- Przygotować pożywkę wzrostową bez czerwieni fenolowej (DMEM bez czerwieni fenolowej, 10% FBS, 1% penicyliny/streptomycyny), zawierającą nośnik (DMSO) lub 100 nM Baf rozpuszczony w DMSO.
- Zastąp pożywkę pożywką bez czerwieni fenolowej, zawierającą nośnik lub 100 nM Baf, i inkubuj przez 4 godziny
UWAGA: Aby ocenić wpływ Baf na liczbę autofagosomów i autolizosomów, przygotuj komórki traktowane nośnikiem jako kontrole. - Wybarwić jądra 0,33 μg/ml Hoechst 33342 przez 30 minut przed obserwacją.
- Przeprowadź obrazowanie żywych komórek za pomocą soczewki obiektywowej 60x w konfokalnym mikroskopie laserowym i uchwyć dziesięć różnych klatek.
- Otwórz scalony obraz RGB na Fidżi i podziel go na odpowiednie czerwone, zielone i niebieskie komponenty obrazu, klikając Obraz | Kolor | Podziel kanały.
- Ustaw stały próg dla sygnałów czerwonego i zielonego na każdym obrazie, klikając Obraz | Dostosuj | Próg dla każdego eksperymentu.
- Policz liczbę obszarów, w których sygnały są dodatnie dla sygnałów czerwonych lub zielonych, klikając przycisk Analizuj | Analizuj cząstki. Zaznacz pole Podsumuj, a następnie kliknij przycisk OK. Zapisz wartości z liczby, aby zidentyfikować pęcherzyki związane z autofagosomami i lizosomami.
- Aby nałożyć zielony obraz na czerwony obraz, ustaw tryb przesyłania na AND, klikając Edytuj | Kontrolka wklejania. Skopiuj zielony obraz, a następnie wklej go do czerwonego obrazu, aby je scalić, podświetlając obszary, które są pozytywne zarówno dla czerwonych, jak i zielonych sygnałów.
- Aby zidentyfikować liczby autolizosomów, policz liczbę obszarów dodatnich zarówno dla sygnałów czerwonych, jak i zielonych, klikając Analizuj | Analizuj cząstki. Zaznacz pole Podsumuj, kliknij przycisk OK i zapisz wartości w sekcji Liczba, aby zidentyfikować pęcherzyki związane z autofagosomami i lizosomami.
- Podziel całkowitą liczbę autolizosomów i autofagosomów przez całkowitą liczbę komórek, aby obliczyć liczbę autolizosomów i autofagosomów na komórkę.
UWAGA: Policz co najmniej 35 komórek w każdym z trzech niezależnych eksperymentów.
4. Analiza pod kątem powstawania omegasomów
- Dzień 1
- Policz liczbę komórek HeLa za pomocą licznika komórek i zasiej 1 × 10⁵ komórek na szalce o średnicy 3,5 cm. Inkubować komórki w temperaturze 37 °C z 5% CO2 i kontrolowaną wilgotnością przez 24 godziny.
- Dzień 2 (opcjonalnie)
- Wykonaj czynności opisane w sekcji 1.1.2.
- Dzień 3
- Przygotować zawiesinę jednokomórkową zgodnie z opisem w krokach 3.3.1-3.3.2.
- Policz komórki za pomocą licznika komórek i zasiej 1 ×10 5 komórek na 3,5 cm szalce. Inkubować komórki w temperaturze 37 °C z 5% CO2 i kontrolowaną wilgotnością przez 24 godziny.
- Dzień 4
- Zmieszać 1 μg pEGFP-C1-hAtg13, 3 μl odczynnika do transfekcji DNA i 100 μl zredukowanej pożywki surowicy w probówce o niskiej retencji. Inkubować mieszaninę przez 20 minut, a następnie dodać ją do pożywki.
- Inkubować komórki w temperaturze 37 °C z 5% CO2 i kontrolowaną wilgotnością przez 24 godziny.
- Dzień 5
- Trypsynizuj komórki zgodnie z opisem w krokach 3.3.1-3.3.2.
- Dodaj 2,5 ml pożywki wzrostowej do komórek. Odpipetować mieszaninę za pomocą pipety transferowej Pasteura w celu przygotowania zawiesiny jednokomórkowej.
- Policz komórki za pomocą licznika komórek i zasiej 1 ×10 4 komórki na 8-komorowym szkiełku nakrywkowym. Inkubować komórki w temperaturze 37 °C z 5% CO2 i kontrolowaną wilgotnością przez 24 godziny.
- Dzień 6
- Wykonaj kroki 3.4.1-3.4.4, aby przeprowadzić obrazowanie żywych komórek z kroku 4.5.3 za pomocą konfokalnego mikroskopu laserowego. Uchwyć dziesięć różnych klatek obrazów.
- Wykonaj kroki 3.4.4.1-3.4.4.3, aby podzielić scalone obrazy RGB na odpowiednie czerwone, zielone i niebieskie komponenty obrazu, ustawić stały próg dla zielonych sygnałów na każdym obrazie i określić intensywność sygnału GFP. Zapisz wartości z sekcji Całkowita powierzchnia, aby określić intensywność sygnału GFP-ATG13.
- Podziel całkowitą intensywność sygnału przez liczbę badanych komórek, aby obliczyć intensywność sygnału na komórkę.
UWAGA: Policz co najmniej 34 komórki w każdym z trzech niezależnych eksperymentów.
- Wykonaj kroki 3.4.1-3.4.4, aby przeprowadzić obrazowanie żywych komórek z kroku 4.5.3 za pomocą konfokalnego mikroskopu laserowego. Uchwyć dziesięć różnych klatek obrazów.
Wyniki
Jak wykazano w poprzednich badaniach, traktowanie Baf zwiększyło poziomy TSG101 (P1: P < 0.01, P2: P = 0.012, określone za pomocą dwukierunkowej analizy ANOVA w programie EZR19) oraz LC3-II (P1: P < 0.01, P2: P < 0.01, określone za pomocą dwukierunkowej analizy ANOVA w programie EZR19) w frakcji bogatej w EV. Co istotne, traktowanie Baf zwiększyło również poziomy STX6 (P1: P < 0.01, P2: P < 0.01, określone za pomocą dwukierunkowej analizy ANOVA w programie EZR19) we frakcji EV (Rycina 1A), co sugeruje, że STX6 może być składnikiem EV. Nie zaobserwowano obecności jądrowego antygenu proliferujących komórek (PCNA) we frakcji EV. Immunoblotting STX6 we frakcji komórkowej wykazał, że poziomy STX6 zmniejszyły się o połowę po jego wyciszeniu za pomocą siRNA (Rycina 1B). Wyciszenie STX6 nie wpłynęło na poziomy TSG101 we frakcjach komórkowych i EV zarówno w warunkach kontrolnych (vehicle), jak i po traktowaniu Baf (Rycina 1C). Jednakże wyciszenie STX6 zwiększyło poziomy LC3-II we frakcji komórkowej w warunkach kontrolnych, ale nie po traktowaniu Baf. Wyciszenie STX6 zwiększyło również poziomy LC3-II we frakcji EV po traktowaniu Baf (Rycina 1D). Wyniki te sugerują, że metody wykrywania LC3-II w EV za pomocą immunoblottingu są wystarczająco czułe, nawet jeśli wydajność wyciszenia nie jest znaczna. Ponadto wyniki te wskazują, że wyciszenie STX6 zwiększa liczbę wewnątrzkomórkowych autofagosomów i nasila uwalnianie do środowiska zewnątrzkomórkowego pęcherzyków związanych z autofagosomami po traktowaniu Baf.
Aby dokładniej zbadać, czy wyciszenie STX6 wpływa na liczbę wewnątrzkomórkowych autofagosomów i autolizosomów, autofagosomy i lizosomy zobrazowano przy użyciu markera autofagosomów mCherry-LC3 oraz markera lizosomów LAMP1-GFP. Konfokalna analiza obrazu żywych komórek wykazała obecność pęcherzyków pozytywnych dla GFP i mCherry w komórkach HeLa wykazujących ekspresję LAMP1-GFP i mCherry-LC3 (Rycyna 2A). Autolizosomy zidentyfikowano jako pęcherzyki pozytywne dla GFP i mCherry, natomiast autofagosomy jako pęcherzyki negatywne dla GFP i pozytywne dla mCherry. Wyciszenie STX6 zwiększyło liczbę autofagosomów i autolizosomów w warunkach kontrolnych (podano nośnik) (Rycyna 2B,C). Jednakże wyciszenie STX6 nie wpłynęło na liczbę autofagosomów i autolizosomów w warunkach po zastosowaniu Baf (Rycyna 2B,C).
Aby ustalić, czy wzrost liczby wewnątrzkomórkowych autofagosomów wynikający z wyciszenia STX6 był spowodowany nasilonym tworzeniem autofagosomów, zbadano tworzenie omegasomów – procesu niezbędnego do powstawania autofagosomów – wykorzystując intensywność sygnału markera omegasomów GFP-ATG13. Konfokalne obrazowanie żywych komórek dostarczyło złożonego obrazu GFP-ATG13, wskazującego na tworzenie omegasomów (Rycyna 3A). Wyciszenie STX6 zmniejszyło intensywność sygnału GFP-ATG13 (P = 0,023, określone za pomocą dwuczynnikowej analizy wariancji ANOVA w programie EZR19). Chociaż wyciszenie STX6 nie wpłynęło znacząco na intensywność sygnału GFP-ATG13 w warunkach traktowania nośnikiem, znacząco zmniejszyło ono sygnał w warunkach traktowania Baf (Rycina 3B). Wspólnie wyniki te wskazują, że wyciszenie STX6 zwiększa uwalnianie pęcherzyków pozytywnych pod kątem LC3-II, co wiąże się z akumulacją pęcherzyków związanych z autofagosomami.

Rycina 1: Wyniki immunoblottingu frakcji komórkowej, P1 i P2 z komórek HeLa transfekowanych kontrolnym siRNA lub siRNA przeciwko STX6, poddanych działaniu nośnika lub Baf. Komórki HeLa traktowano nośnikiem (DMSO) lub 100 nM Baf przez 24 h po transfekcji kontrolnym siRNA lub siRNA przeciwko STX6. Wyizolowano frakcję komórkową oraz frakcje P1 (osad 20 000 × g) i P2 (osad 110 000 × g). (A) Reprezentatywne obrazy immunoblottingu dla każdej frakcji, wykazujące obecność STX6, TSG101, LC3 i PCNA. (B-D) Na podstawie obrazów immunoblottingu przeprowadzono analizę densytometryczną dla (B) STX6, (C) TSG101 oraz (D) LC3-II. Intensywności sygnałów znormalizowano względem komórek transfekowanych kontrolnym siRNA lub siRNA przeciwko STX6 traktowanych nośnikiem lub Baf. Wykresy słupkowe przedstawiają wartości średnie ± S.E.M. (N = 3). * oznacza P < 0,05 w dwustronnym nieparzystym teście t w programie Excel. Skróty: STX6 = syntaksyna 6; Baf = bafilomycyna A1; DMSO = dimetylosulfoksyd; TSG101 = tumor susceptibility gene 101; LC3 = mikrotubulowe białko towarzyszące 1A/1B lekki łańcuch 3B; PCNA = proliferujący jądrowy antygen komórkowy; S.E.M. = standardowy błąd średniej. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.

Rysunek 2: Analiza obrazowania konfokalnego komórek HeLa koekspresujących Lamp1-GFP i mCherry-LC3, przetransfekowanych siRNA kontrolnym lub siRNA przeciwko STX6, w warunkach traktowania nośnikiem lub Baf.(A) Obrazy konfokalne komórek HeLa stabilnie ekspresujących LAMP1-GFP i mCherry-LC3 po transfekcji siRNA kontrolnym lub siRNA przeciwko STX6 przez 48 h, a następnie ekspozycji na DMSO lub 400 nM Baf przez 4 h. Pasek skali = 20 µm. (B,C) Ilościowe oznaczenie (B) autofagosomów (kropki LAMP1-GFP ujemne i mCherry-LC3 dodatnie) oraz (C) autolizosomów (kropki podwójnie dodatnie dla LAMP1-GFP i mCherry-LC3) wykonano przy użyciu oprogramowania Fiji. Dane na wykresach słupkowych przedstawiono jako wartości średnie ± S.E.M. (N = 3). * oznacza P < 0,05 na podstawie dwustronnego nieparzystego testu t w programie Excel. Skróty: Lamp1 = białko błonowe związane z lizosomem 1; LC3 = lekki łańcuch 3B białek 1A/1B związanych z mikrotubulami; STX6 = syntaksyna 6; Baf = bafilomycyna A1; GFP = zielone białko fluorescencyjne; S.E.M. = standardowy błąd średniej. Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
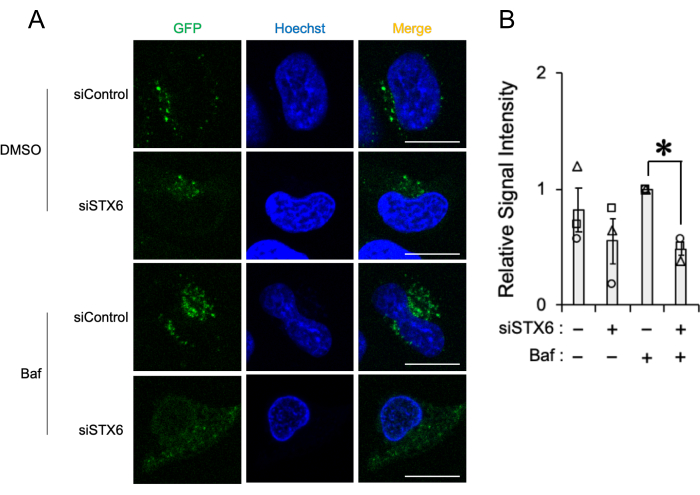
Rysunek 3: Obrazowanie konfokalne komórek HeLa wykazujących ekspresję GFP-ATG13, transfekowanych siRNA kontrolnym lub siRNA przeciwko STX6 i poddanych działaniu nośnika lub bafilomycyny. (A) Komórki HeLa zostały transfekowane siRNA kontrolnym lub siRNA przeciwko STX6, a następnie transfekowane pEGFP-C1-hAtg13 i traktowane DMSO lub 400 nM Baf przez 4 h. Pasek skali = 20 µm. (B) Względne intensywności sygnału określono poprzez normalizację sygnału w każdym wariancie do sygnału w komórkach transfekowanych siRNA kontrolnym i traktowanych Baf. Wykres słupkowy przedstawia dane jako średnie ± S.E.M. (N = 3). * oznacza P < 0,05 w dwustronnym nieparzystym teście t w programie Excel. Skróty: hAtg13 = ludzki gen 13 związany z autofagią; STX6 = syntaxyna 6; Baf = bafilomycyna A1; DMSO = dimetylosulfoksyd; S.E.M. = standardowy błąd średniej. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Rycina uzupełniająca S1: Analiza immunoblotowa frakcji komórkowej, P1 i P2 z komórek HeLa transfekowanych kontrolnym siRNA i traktowanych Baf.Komórki HeLa transfekowano kontrolnym siRNA i eksponowano na 100 nM Baf przez 24 h. Następnie przygotowano frakcje: komórkową, P1 (osad po wirowaniu 20 000 × g) oraz P2 (osad po wirowaniu 110 000 × g). Reprezentatywne obrazy z immunoblotu dla ULK1 i PCNA, pokazujące ich poziomy w każdej frakcji w celu porównania. Skróty: Baf = bafilomycyna A1; ULK1 = unc-51 like autophagy activating kinase 1; PCNA = proliferating cell nuclear antigen. Kliknij tutaj, aby pobrać ten plik.
Dyskusja
Badanie immunoblottingu wykazało poziomy LC3-II i TSG101 we frakcji komórkowej, frakcji P1 EV bogatej w mikropęcherzyki i frakcji P2 EV bogatej w egzosomy. Obrazowanie żywych komórek wykorzystano do zbadania autofagosomów, autolizosomów i omegasomów, dostarczając informacji na temat tego, czy knockdown STX6 wpływa na autofagię. Te połączone wyniki sugerują, że knockdown STX6 wpływa na uwalnianie LC3-II dodatnich EV, potencjalnie związanych z rozregulowaniem szlaku autofagii. Kluczową zaletą tej metody jest możliwość rozróżnienia dużych i małych pojazdów elektrycznych pochodzących z różnych źródeł. Analiza cytometrii przepływowej przy użyciu specyficznych markerów dla mikropęcherzyków, egzosomów lub aparatu Golgiego może dodatkowo wyjaśnić, w jaki sposób knockdown STX6 wpływa na uwalnianie pęcherzyków LC3-II dodatnich.
Jednak ograniczeniem badania immunoblottingu jest to, że nie jest jasne, czy obserwowany wzrost poziomów LC3-II we frakcji EV po knockdown STX6 pod wpływem leczenia Baf jest spowodowany zwiększoną liczbą uwalnianych pęcherzyków LC3-II, czy wzrostem poziomów LC3-II na EV. Aby rozróżnić te możliwości, liczenie pęcherzyków za pomocą analizy śledzenia nanocząstek lub analizy cytometrii przepływowej może pomóc w ustaleniu, czy liczba pęcherzyków LC3-II dodatnich jest zwiększona lub czy poziomy LC3-II na pęcherzyk są podwyższone.
Krytycznym krokiem w protokole jest frakcjonowanie pożywki hodowlanej w celu przygotowania frakcji EV. EV są obserwowane jako maleńkie granulki w probówce wirówkowej. Aby przygotować porównywalną frakcję EV, ważne jest, aby ostrożnie przenieść lub wyrzucić supernatant po odwirowaniu, aby uniknąć rozcieńczenia stężenia białka w granulkach EV. Aby zbadać zanieczyszczenie z frakcji komórkowej do frakcji EV, poziomy białka cytoplazmatycznego, kinazy aktywującej autofagię podobną do unc-51 (ULK1) i białka jądrowego, PCNA porównano między frakcjami w tym badaniu (rysunek uzupełniający S1). Stężenie białka we frakcji komórkowej na ogół odzwierciedla liczbę komórek, ale na stężenie białka komórkowego mają wpływ etapy cyklu komórkowego20 lub zaburzenia proteostazy21. Autofagia ma kluczowe znaczenie dla utrzymania proteostazy22. Rozregulowanie autofagii przez knockdown STX6 lub leczenie Baf może zmienić stężenie białka niezależnie od liczby komórek.
Nokaut STX6 osiąga się poprzez transfekcję siRNA, a nadekspresję GFP-ATG13 osiąga się poprzez transfekcję DNA. Na wydajność transfekcji ma wpływ typ, gęstość i liczba komórek. Skuteczne wyrównanie sekwencji siRNA może również wpływać na skuteczność knockdownu. Regulacje są konieczne, gdy wydajność transfekcji jest niska.
Obecne wyniki wskazują, że knockdown STX6 zwiększył poziom markera autofagosomu LC3-II we frakcji EV w warunkach traktowanych Baf, ale nie wpłynął na poziomy TSG101. Sugeruje to, że STX6 hamuje uwalnianie pęcherzyków pochodzących z autofagosomów, ale nie z MVB, gdy fuzja autofagosomu z lizosomem jest hamowana.
Nokaut STX6 zwiększył również poziomy komórkowe LC3-II w warunkach wzrostu, co sugeruje, że STX6 reguluje autofagię. Rzeczywiście, knockdown STX6 zwiększył liczbę autofagosomów i autolizosomów, podczas gdy nie zwiększył tworzenia omegasomów. Dojrzewanie autolizosomów powoduje autofagiczną reformację lizosomów23. Możliwe, że STX6 pośredniczy w procesie dojrzewania autolizosomów, a jego utrata funkcji może zwiększać liczbę niedojrzałych autolizosomów, prowadząc do rozregulowania fuzji autofagosomu z lizosomem z powodu zahamowania autofagicznej reformacji lizosomów.
Leczenie Baf zwiększyło poziom STX6 we frakcji EV, nawet gdy jego ekspresja była obniżona. Wcześniejsze badania sugerowały, że pęcherzyki związane z autofagosomami są uwalniane jako EV, gdy funkcja lizosomów jest zahamowana13,14. Wiadomo, że STX6 lokalizuje się w pęcherzykach związanych z autofagosomami, takich jak wakuole podobne do autofagosomów zawierające Streptococcus grupy A (GAS)24. Dlatego STX6 może być zlokalizowany w pęcherzykach związanych z autofagosomami, które są uwalniane jako EV, gdy fuzja autofagosomu z lizosomem jest hamowana.
Rozprzestrzenianie się patologii TDP-43 jest ściśle związane z progresją ALS i FTLD-TDP3. Chociaż nie jest jasne, w jaki sposób patologia TDP-43 rozprzestrzenia się w mózgu i rdzeniu kręgowym, szlak EV może pośredniczyć w jej rozprzestrzenianiu się. Wcześniejsze badania wykazały, że rozregulowanie szlaku autofagia-lizosom powoduje uwalnianie LC3-II dodatnich EV zawierających TDP-4313. Niniejsze badanie sugeruje rolę STX6 w regulacji uwalniania EV, gdy fuzja autofagosomu z lizosomem jest hamowana. Metodologia oceny poziomów LC3-II w komórkach i frakcji EV za pomocą immunoblottingu powinna okazać się pomocna w przyszłych badaniach.
Oświadczenia
Autorzy oświadczają, że nie pozostają w konflikcie interesów z treścią niniejszego artykułu.
Podziękowania
Ta praca została wsparta funduszami dla Y.T. od Japan Society for the Promotion of Science KAKENHI [Numer grantu 23K06837] (Tokio, Japonia) i Takeda Science Foundation (Osaka, Japonia). Autorzy doceniają dr Davida C. Rubinszteina (Cambridge Institute for Medical Research, Cambridge, Wielka Brytania) za dostarczenie komórek HeLa.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 0,25 % Trypsyna EDTA | Fujifilm Wako | 201-16945 | |
| 10 cm Naczynie | Thermo Fisher Scientific | 150464 | |
| 15 mL | Rurka Thermo Fisher Scientific | 339650 | |
| 200 μ L Końcówka do pipet | Nippon Genetics | FG-301 | pipetowanie |
| 2-merkaptoetanolu | Nacalai Tesque | 21417-52 | materiał do próbki roztwór buforowy |
| 3,3'-diaminobenzydyny Tetrachlorowodorek | Nacalai Tesque | 11009-41 | materiał do roztworu DAB |
| 3,5 cm Naczynie | Naczynie Thermo Fisher Scientific | 150460 | |
| 6 cm | TrueLine | TR4001 | |
| Wanny termostatyczne z blokiem aluminiowym (suche kąpiele termiczne) | EYELA | 273860 | |
| Aspirator | SANSYO | SAP-102 | roztwór do inhalacji |
| Avanti JXN-30 | Beckman Coulter | B34193 | |
| Bafilomycyna A1 | Adipogen | BVT-0252 | |
| anty-króliczej IgG koniugugowane biotyną | Laboratoria | BA-1000 | 2nd przeciwciało do immunoblottingu |
| Laboratoria wektorów | przeciwciał przeciwko mysim przeciwciałom IgG sprzężonym z biotyną | BA-2000 | 2. przeciwciało do immunoblottingu |
| Blocking One | Nacalai Tesque | 03953-95 | materiał do immunoblottingu |
| Bromophenol Blue | Nacalai Tesque | 05808-61 | materiał do roztworu buforowego próbki |
| Surowica cielęca | cytiva | SH30073.03 | |
| CanoScan LiDE 220 | Canon | CSLIDE220 | Scanner |
| Wirówka 5702 R | eppendolf | 5703000039 | |
| Szkiełka zliczające Dwukomorowe | zliczanie komórek | Bio-Rad | 1450015J |
| Cyfrowy sonifier 450 | BRANSON | ||
| Dimetylosulfotlenek | Nacalai Tasque | 09659-14 | nośnik |
| DMEM Wysoka zawartość glukozy | Nacalai Tesque | 08458-45 | pożywka hodowlana |
| DMEM bez czerwieni fenolowej | Nacalai Tesque | 08489-45 | pożywka hodowlana |
| EGTA | Dojindo | 348-01311 | materiał do rozwiązania A68 |
| Excel | Microsoft | wersja 16.16.27 | analiza satystyczna |
| EZR | Nr referencyjny 24 | wersja 1.68 | analiza zadowalająca |
| FBS | Sigma | 173012 | Pożywka hodowlana |
| Fidżi | NIH | Narzędzie do analizy obrazu | |
| Glycerol | Nacalai Tesque | 09886-05 | materiał na roztwór buforowy do próbek |
| Hoehst33342 | Dojindo | H342 | |
| Nadtlenek wodoru | Fujifilm Wako | 080-0186 | materiał do roztworu DAB |
| Kimwipe S-200 | NIPPON PAPER CRECIA | 62011 | chusteczka czyszcząca |
| Rurka o niskiej retencji | Nippon Genetics | FG-MCT015CLB | transfekcja siRNA i DNA |
| LSM780 Konfokalny mikroskop laserowy | Carl Zeiss | ||
| Anti-LC3 Przeciwciało | MBL | M186-3 | 1. przeciwciało do immunoblottingu |
| Chlorek niklu(II) sześciowodny | Fujifilm Wako | 149-01041 | materiał do roztworu DAB |
| N-lauroilsarkozyna sól sodowa | Nacalai Tesque | 20117-12 | |
| Optima XE-90 Ultrawirówka | Beckman Coulter | A94471 | |
| Opti-MEM I Zredukowana surowica Medium | Thermo Fisher Scientific | 31985-070 | transfekcja siRNA i DNA |
| pEGFP-C1-hAtg13 | Addgene | 22875 | |
| Penicylina/Streptomycyna | Nacalai Tesque | 26253-84 | Pożywka |
| hodowlana Zestawy do oznaczania białek Pierce BCA | Thermo Fisher Scientific | 23225 | |
| Poliklonalne przeciwciało anty-PCNA królika | BioAcademia | 70-080 | 1. przeciwciało dla immunoblotting |
| Poliklonalne przeciwciało antysyntaksyny królika 6 | ProteinTech | 10841-1-AP | 1. przeciwciało do immunoblottingu |
| Poliklonalne królicze przeciwciało anty-TSG101 | ProteinTech | 28283-1-AP | 1. przeciwciało do immunoblottingu |
| Poliklonalne królicze przeciwciało anty-ULK1 | ProteinTech | 20986-1-AP | 1. przeciwciało do immunoblottingu |
| Polifluorek winylidenu Membrana | Milliore | IPVH00010 | materiał do immunoblottingu |
| R | Rozwój R Core Team | wersja 4.4.1 | analiza satystyczna |
| RNAiMAX | Thermo Fisher Scientific | 13778 | odczynnik do transfekcji siRNA |
| STX6 | Thermo Fisher Scientific | HSS115604 | siRNA do transfekcji |
| Chlorek sodu | Nacalai Tesque | 31320-05 | materiał do buforu Tris i roztworu A68 |
| Dodecyl siarczan sodu | Fujifilm Wako | 192-13981 | materiał do roztworu buforowego próbki |
| SPARK Czytnik mikropłytek | TECAN | ||
| Stealth RNAi Negative Control Duplexes, Med GC | Thermo Fisher Scientific | 12935300 | transfekcja siRNA |
| Sacharoza | Fujifilm Wako | 193-00025 | materiał do roztworu A68 |
| Automatyczny licznik komórek TC20 z drukarką termiczną | Bio-Rad | 1450109J1 | zliczanie komórek |
| Kąpiel termiczna | TOKYO RIKAKIKAI | MG-3100 | inkubacja |
| TransIT-293 | Odczynnik do transfekcji DNA | Mirus Bio | MIR 2700 |
| TransIT-LT1 | Odczynnik | ||
| do transfekcji DNA Mirus Bio MIR2300Tris(hydroksymetylo)aminometan | Nacalai Tesque | 35406-75 | materiał na bufor Tris, bufor próbki i roztwór A68 |
| Trypan Blue Dye 0,40% | Bio-Rad | 1450021 | zliczanie komórek |
| Ultra-Clear Open-Top Tube, 16 x 96mm | Zbieranie 361706 Beckman Coulter | do frakcji P1 EV | |
| Ultra-Clear Tube, 14 x 89 mm | Beckman Coulter | 344059 | zbieranie do frakcji P2 EV |
| Vectastain ABC Standard Kit | Vector Laboratories | PK-4000 | butelka do |
| mycia | As One | 1-4640-02 | membrana myjąca |
| μ-Slide 8 Well High | ibidi | 80806 |
Bibliografia
- Tanaka, Y., Hasegawa, M. Profilin 1 mutants form aggregates that induce accumulation of prion-like tdp-43. Prion. 10 (4), 283-289 (2016).
- Mehta, P. R., Brown, A. L., Ward, M. E., Fratta, P. The era of cryptic exons: Implications for als-ftd. Mol Neurodegener. 18 (1), 16(2023).
- Kawakami, I., Arai, T., Hasegawa, M. The basis of clinicopathological heterogeneity in tdp-43 proteinopathy. Acta Neuropathol. 138 (5), 751-770 (2019).
- Chatterjee, M., et al. Plasma extracellular vesicle tau and tdp-43 as diagnostic biomarkers in ftd and als. Nat Med. 30 (6), 1771-1783 (2024).
- Kasai, T., et al. Combined use of csf nfl and csf tdp-43 improves diagnostic performance in als. Ann Clin Transl Neurol. 6 (12), 2489-2502 (2019).
- Iguchi, Y., et al. Exosome secretion is a key pathway for clearance of pathological tdp-43. Brain. 139 (Pt 12), 3187-3201 (2016).
- Ding, X., et al. Exposure to als-ftd-csf generates tdp-43 aggregates in glioblastoma cells through exosomes and tnts-like structure. Oncotarget. 6 (27), 24178-24191 (2015).
- Mizushima, N., Levine, B. Autophagy in human diseases. N Engl J Med. 383 (16), 1564-1576 (2020).
- Sasaki, S. Autophagy in spinal cord motor neurons in sporadic amyotrophic lateral sclerosis. J Neuropathol Exp Neurol. 70 (5), 349-359 (2011).
- Ling, S. C., Polymenidou, M., Cleveland, D. W. Converging mechanisms in als and ftd: Disrupted rna and protein homeostasis. Neuron. 79 (3), 416-438 (2013).
- Nguyen, D. K. H., Thombre, R., Wang, J. Autophagy as a common pathway in amyotrophic lateral sclerosis. Neurosci Lett. 697, 34-48 (2019).
- Tanaka, Y., et al. Possible involvement of lysosomal dysfunction in pathological changes of the brain in aged progranulin-deficient mice. Acta Neuropathol Commun. 2, 78(2014).
- Tanaka, Y., et al. Dysregulation of the progranulin-driven autophagy-lysosomal pathway mediates secretion of the nuclear protein tdp-43. J Biol Chem. 299 (11), 105272(2023).
- Tanaka, Y., Ito, S., Suzuki, G. TDP-43 secretion via extracellular vesicles is regulated by macroautophagy. Autophagy Rep. 3 (1), (2024).
- Ratajczak, M., Ratajczak, J. Extracellular microvesicles/exosomes: discovery, disbelief, acceptance, and the future. Leukemia. 34 (12), 3126-3135 (2020).
- Tanaka, Y., Kozuma, L., Hino, H., Takeya, K., Eto, M. Abemaciclib and vacuolin-1 decrease aggregate-prone tdp-43 accumulation by accelerating autophagic flux. Biochem Biophys Rep. 38, 101705(2024).
- Dingjan, I., et al. Endosomal and phagosomal snares. Physiol Rev. 98 (3), 1465-1492 (2018).
- Tanaka, Y., et al. Progranulin regulates lysosomal function and biogenesis through acidification of lysosomes. Hum Mol Genet. 26 (5), 969-988 (2017).
- Kanda, Y. Investigation of the freely available easy-to-use software 'EZR' for medical statistics. Bone Marrow Transpl. 48 (3), 452-458 (2013).
- Cookson, N. A., Cookson, S. W., Tsimring, L. S., Hasty, J. Cell cycle-dependent variations in protein concentration. Nucleic Acids Res. 38 (8), 2676-2681 (2010).
- Plate, L., et al. Small molecule proteostasis regulators that reprogram the ER to reduce extracellular protein aggregation. eLife. 5, e15550(2016).
- Mizushima, N. The role of mammalian autophagy in protein metabolism. Proc Jpn Acad Ser B Phys Biol Sci. 83 (2), 39-46 (2007).
- Nanayakkara, R., et al. Autophagic lysosome reformation in health and disease. Autophagy. 19 (5), 1378-1395 (2023).
- Nozawa, T., Minowa-Nozawa, A., Aikawa, C., Nakagawa, I. The STX6-VTI1B-VAMP3 complex facilitates xenophagy by regulating the fusion between recycling endosomes and autophagosomes. Autophagy. 13 (1), 57-69 (2017).
Przedruki i uprawnienia
