Ten protokół opisuje skuteczny system protoplastów mezofilu kapusty. Przetestowano różne metody leczenia niedoboru tlenu, a system wykazał wysoką aktywację genów reagujących na niedotlenienie, co ułatwiło badania genetycznych i molekularnych mechanizmów tolerancji na zalanie warzyw z rodziny Brassicaceae.
Artykuł metodologiczny
Opracowanie systemu protoplastu kapusty do badania tolerancji niedotlenienia u kapustnych
W tym artykule
Podsumowanie
Streszczenie
Ponieważ zmiany klimatyczne powodują coraz większe obfite opady, kapusta, kluczowe warzywo z rodziny Brassicaceae, stoi w obliczu znacznych strat plonów z powodu stresu hipoksji wywołanego powodzią. Aby zidentyfikować mechanizmy tolerancji kapusty na powodzie, potrzebna jest wszechstronna platforma do genetycznych badań funkcjonalnych, aby przezwyciężyć oporny na transformację charakter kapusty. W tym badaniu opracowano system przejściowej ekspresji protoplastów kapusty i odpowiadający mu protokół indukcji hipoksji protoplastów. Protokół ten pozwolił osiągnąć wysoką wydajność i integralność izolacji protoplastów z liści kapusty, przy wydajności transfekcji przekraczającej 40% przy użyciu zoptymalizowanych warunków enzymatycznych. Aby złagodzić potencjalny wpływ niedotlenienia przed zabiegami, roztwór W5 został bąbelkowany tlenem gazowym w celu zwiększenia poziomu tlenu rozpuszczonego. Przetestowano kilka substancji chemicznych do regulacji poziomu tlenu i fizjologicznych zabiegów usuwania tlenu, w tym EC-Oxyrase, OxyFluor, siarczyn sodu i pakiet pochłaniaczy tlenu. Testy podwójnej lucyferazy wykazały, że promotory genów odpowiedzi na oddychanie beztlenowe BoADH1 i BoSUS1L były aktywowane w protoplastach kapusty po leczeniu hipoksją, przy czym najwyższy poziom indukcji zaobserwowano po leczeniu pakietem absorbera tlenu. Podsumowując, system przejściowej ekspresji protoplastów kapusty w połączeniu z leczeniem hipoksji stanowi wydajną i wygodną platformę. Platforma ta może ułatwić badania funkcji genów i mechanizmów molekularnych związanych z reakcjami na niedotlenienie u kapusty.
Wprowadzenie
Globalna zmiana klimatu nasiliła powodzie, które stały się coraz bardziej krytycznym problemem na całym świecie. W ostatnich dziesięcioleciach obserwuje się tendencję wzrostową częstotliwości powodzi, co skutkuje znacznymi stratami w uprawach1,2. Kapusta (Brassica oleracea var. capitata L.), warzywo o znaczącym znaczeniu światowym, jest podatna na niekorzystne skutki intensywnych opadów deszczu, co powoduje konieczność opracowania odmian kapusty odpornych na powodzie, aby zapewnić zrównoważoną produkcję w obliczu ekstremalnych zjawisk pogodowych. Dlatego zrozumienie mechanizmów molekularnych związanych ze stresem powodziowym w kapuście jest niezbędne, aby sprostać temu wyzwaniu.
Aby zrozumieć mechanizmy regulacji genów u roślin w warunkach zanurzenia, linie transgeniczne są szeroko stosowane do genetycznych badań funkcjonalnych. Podejście to jest jednak ograniczone wysokimi kosztami, czasochłonnymi procesami przekształcania i subkultur, a także niską wydajnością przetwarzania w wielu gatunkach roślin uprawnych, co wymaga opracowania alternatywnych metodologii. Systemy ekspresji przejściowej oparte na protoplastach są szeroko stosowane w badaniach molekularnych roślin jako wszechstronna i skuteczna alternatywa. Systemy te ułatwiają badania nad aktywnością promotora, szlakami sygnałowymi w odpowiedzi na sygnały środowiskowe, interakcjami białko-białko lub białko-DNA oraz lokalizacją subkomórkową3. Powstawanie przejściowych systemów ekspresji protoplastów zostało odnotowane nie tylko w modelowych roślinach4,5, ale także w uprawach o znaczeniu gospodarczym, takich jak trzcina cukrowa6, goździk7, storczyki Phalaenopsis8 i bakłażan9. Co więcej, systemy te zostały z powodzeniem wdrożone w roślinach drzewiastych, w tym Camellia oleifera10i Populus trichocarpa11. Jednak protokoły stosowania systemów protoplastów do badania warzyw liściastych pod wpływem stresu hipoksyjnego wywołanego zanurzeniem są ograniczone. W związku z tym w niniejszej pracy opracowano zintegrowany protokół dla osób zainteresowanych badaniem reakcji na niedotlenienie w warzywach liściastych przy użyciu systemu przejściowej ekspresji protoplastu kapusty.
Aby przeprowadzić reakcję hipoksji wywołanej zanurzeniem na poziomie komórkowym, w poprzednich badaniach zastosowano kilka metodologii oczyszczania tlenu, aby symulować środowiska niedotlenienia. Należą do nich stosowanie EC-Oxyrase, OxyFluor, siarczynu sodu i worków zużywających tlen. EC-Oxyrase jest zwykle stosowana do leczenia beztlenowego w ludzkich liniach komórkowych12 i Arabidopsis protoplasts13. Stwierdzono, że OxyFluor jest skuteczny w łagodzeniu fotowybielania spowodowanego przez reaktywne formy tlenu podczas obrazowania fluorescencyjnego żywych komórek14,15. Siarczyn sodu został zastosowany w beztlenowym leczeniu nicieni 16, a ostatnio w protoplastach ryżowych, w połączeniu z technikami takimi jak testy immunoprecypitacji chromatyny (ChIP)17. Pakiety absorberów tlenu, używane głównie do beztlenowych hodowli bakterii18, wykazały również skuteczność w indukowaniu aktywacji promotorów ZmPORB1 w protoplastach kukurydzy w warunkach beztlenowych19.
Obecna praca ma na celu stworzenie solidnego systemu do izolacji protoplastów kapusty i przejściowej ekspresji. Następnie oceniono skuteczność różnych terapii dostosowujących tlen, oceniając aktywność promotora genów odpowiedzi beztlenowej za pomocą testów podwójnej lucyferazy. Oczekuje się, że protokół opracowany w tym badaniu będzie cenny dla przyszłych badań związanych ze stresem zanurzeniowym lub hipoksyjnym w systemach Brassica.
Protokół
W tym badaniu wykorzystano dwie komercyjne odmiany kapusty (B. oleracea var. capitata): 'Fuyudori' i '228'. Graficzna reprezentacja przepływu pracy protokołu jest pokazana w Rysunek 1. Szczegółowe informacje na temat odczynników i sprzętu używanego w tym badaniu są wymienione w Tabeli Materiałów.
1. Przygotowanie sadzonek kapusty
- Nasiona kapusty 'Fuyudori' i '228' wysiewa się na komercyjnym podłożu roślinnym do okrągłych kwadratowych otworów (gł. 4,5 cm x wys. 4,5 cm) w 48-dołkowych tacach z korkami (dł. 49 cm x szer. 28 cm x wys. 5 cm). Osadź nasiona na głębokości około 1 cm w podłożu uprawowym.
- Sadzonki kapusty uprawiać w pomieszczeniu do uprawy w temperaturze 22 °C w cyklu 16/8 godzin światło-ciemność. Utrzymuj natężenie światła 100 μmol m-2·s-1 (biała świetlówka) podczas fazy świetlnej.
- Po 2-3 tygodniach wzrostu należy użyć sadzonek kapusty w fazie 2 liści do dalszej izolacji protoplastów mezofilu.
UWAGA: Sugerowana wielkość siewek kapusty to faza 2-listkowa, w której drugi prawdziwy liść jest w pełni rozwinięty, ale trzeci prawdziwy liść nie jest rozszerzony, a jego długość jest krótsza niż 1 cm (Rysunek 2A). Aby zsynchronizować etapy rozwojowe sadzonek kapusty, nasiona 'Fuyudori' należy wysiewać około 2 dni wcześniej niż nasiona '228' ze względu na ich różne tempo wzrostu. Taka regulacja zapewnia równomierny wzrost i dojrzałość roślin kapusty na pożądanym etapie.
2. Izolacja protoplastów kapusty
- Przygotować 12,5 ml roztworu enzymu (Tabela 1) przed każdą izolacją protoplastów.
- Wstępnie podgrzać roztwór z 10 mM MES (pH 5,7) i 0,6 M mannitolu w temperaturze 55 °C. Kontynuować podgrzewanie roztworu w temperaturze 55 °C przez 10 minut po dodaniu 1,5% celulazy R10 i 0,75% macerozymu R10.
- Po ostygnięciu roztworu enzymu do temperatury pokojowej (25 °C) dodać 10 mM CaCl2 i 0,1% albuminy surowicy bydlęcej (BSA). Filtr Wysterylizuj przygotowany roztwór enzymatyczny na szalce Petriego o średnicy 9 cm za pomocą filtra strzykawkowego 0,22 μm.
UWAGA: Wstępne podgrzanie roztworu zwiększa rozpuszczalność enzymu i dezaktywuje proteazę. Efekty trawienia różnią się w zależności od różnych rodzajów enzymów celulazy. Połączenie celulazy R10 i macerozymu R10 nadaje się do izolacji protoplastów kapusty.
- Zbierz drugie, nowo rozwinięte prawdziwe liście z pięciu do ośmiu sadzonek kapusty i pokrój je w paski o grubości 0,5-1,0 mm za pomocą ostrej żyletki. Natychmiast przenieś paski liści do świeżo przygotowanego roztworu enzymu.
UWAGA: Kluczowe jest wybranie zdrowych i oznaczonych liści kapusty na odpowiednim etapie. Drugie, nowo rozwinięte prawdziwe liście z siewek kapusty w fazie 2 liści zapewniają najwyższą skuteczność izolacji protoplastów. Nadmiernie dojrzałe rośliny, liścienie lub dojrzałe liście nie są zalecane do izolacji protoplastów. Pięć do dwunastu dobrze rozwiniętych prawdziwych liści może z powodzeniem dać protoplasty kapusty w 12,5 ml roztworu enzymatycznego. Liczba liści potrzebnych do izolacji protoplastów zależy od pożądanej ilości potrzebnych protoplastów. Zazwyczaj protoplasty uzyskane z pięciu do ośmiu liści są wystarczające do kolejnych procedur eksperymentalnych. - Po infiltracji próżniowej w ciemności przez 30 minut (Rysunek 2B), paski liści kapusty zanurzone w roztworze enzymu (Rysunek 2C) należy przechowywać w ciemności w temperaturze pokojowej przez kolejne 4-16 godzin
UWAGA: Czas trawienia enzymatycznego może się różnić w zależności od odmiany kapusty i powinien być zoptymalizowany w zależności od konkretnego genotypu. Na przykład odmiana 'Fuyudori' wymaga dłuższego czasu trawienia (16 godzin) w porównaniu z odmianą 'Fuyudori' (228 godzin) (4 godziny) ze względu na grubsze liście odmiany 'Fuyudori'. - Rozcieńczyć roztwór zawierający protoplasty równą objętością roztworu W5, który składa się z 2 mM MES (pH 5,7), 154 mM NaCl, 125 mM CaCl2, 5 mM KCl i 5 mM glukozy (patrz Tabela 1 dla przygotowania), w celu zatrzymania trawienia enzymatycznego.
- Uwolnić zawiesinę protoplastów przez delikatne wirowanie lub za pomocą wytrząsarki orbitalnej. Przefiltrować zawiesinę komórek przez sitko o pojemności 70 μm do stożkowej probówki o pojemności 50 ml.
UWAGA: Wyizolowane protoplasty są zdolne do przechodzenia przez sitko komórkowe o wielkości 70 μm, podczas gdy niestrawione resztki roślinne są zatrzymywane przez sitko, a następnie usuwane z zawiesiny. Sitka do komórek mogą być ponownie użyte i przechowywane w 75% etanolu po umyciu, ale przed użyciem konieczne jest pełne przepłukanie sitek komórkowych roztworem W5 w celu usunięcia resztek etanolu. - Odwirować roztwór protoplastów o stężeniu 150 x g przez 2 minuty w temperaturze 4 °C, a następnie ostrożnie usunąć supernatant. Delikatnie przemyć granulowane protoplasty, dodając 10 ml roztworu W5 wzdłuż ścianki stożkowej rurki przy przybliżonym natężeniu przepływu 1 ml·s-1. Odwirować probówkę o sile 150 x g przez 2 minuty w temperaturze 4 °C i powtórzyć tę procedurę płukania ponownie, aby zapewnić całkowite usunięcie roztworu enzymu.
- Zawiesić protoplasty w roztworze W5 i umieścić je na lodzie na 30 minut. Po inkubacji lodu usuwać supernatant za pomocą pipety po 1 ml na raz, aż cały supernatant zostanie usunięty.
- Zawiesić protoplasty w schłodzonym lodem roztworze MMG składającym się z 4 mM MES (pH 5,7), 0,4 M mannitolu i 15 mM MgCl2 (patrz tabela 1 w celu przygotowania).
- Zmierzyć stężenie protoplastów za pomocą hemocytometru i dostosować końcowe stężenie do 4 x 10⁵ protoplastów·mL-1 za pomocą roztworu MMG.
3. Transfekcja protoplastów
- Wymieszać całkowitą objętość 10 μl plazmidu (5-10 μg) (plik uzupełniający 1) ze 100 μl protoplastów (4 x 10⁴ protoplastów) i umieścić na lodzie na 10 min.
UWAGA: Do oczyszczania plazmidu metodą transfekcji stosuje się dostępny w handlu zestaw plazmidów zgodnie z instrukcjami producenta. Około 4 x 10⁴ protoplasty są zwykle stosowane w teście reporterowym z podwójną lucyferazy. W przypadku eksperymentów na większą skalę dostępna jest większa ilość protoplastów do transfekcji. W szczególności około 2 x 10⁵ protoplastów transfekowanych 10 μg plazmidu wykazuje udowodnioną skuteczność transfekcji w zakresie od 30% do 40%. - Dodać równą objętość (110 μl) świeżo przygotowanego roztworu PEG (patrz tabela 1 w celu przygotowania) zawierającego 40% glikolu polietylenowego 4000 (PEG4000), 0,1 M CaCl2 i 0,2 M mannitolu do roztworu protoplastu i delikatnie wymieszać.
- Mieszaninę protoplastów inkubować w temperaturze pokojowej w ciemności przez 10 minut, a następnie dodać 440 μl roztworu W5, aby zakończyć reakcję.
- Odwirować transfekowane protoplasty przy 150 x g przez 2 minuty w temperaturze 4 °C i ponownie zawiesić osad w 750 μl wzbogaconego tlenem roztworu W5. Przenieść zawieszone protoplasty na 6-dołkową płytkę do hodowli tkankowej wstępnie pokrytą 1% BSA.
UWAGA: Roztwór W5 używany do inkubacji komórek musi być bąbelkowany tlenem za pomocą koncentratora tlenu (~90% tlenu) podłączonego do kamienia napowietrzającego przez 5 minut (Rysunek 2D). Po tym procesie natleniania końcowe stężenie tlenu rozpuszczonego w roztworze W5 wzrosło z 7,84 mg·L-1 ± 0,05 mg·L-1 do 29,18 mg·L-1 ± 0,43 mg·L-1, mierzone za pomocą miernika tlenu rozpuszczonego. Objętość roztworu W5 do ponownego zawieszenia transfekowanego protoplastu zależy od rodzaju użytej płytki do hodowli komórek tkankowych. W przypadku 12-dołkowych lub 24-dołkowych płytek do hodowli komórkowych zaleca się zmniejszenie objętości roztworu W5 w celu złagodzenia stresu hipoksji podczas inkubacji ze względu na większą głębokość w studzienkach. W przypadku powlekania BSA, każdy studzienek na płytce hodowlanej otrzymał 1 ml 1% roztworu BSA, który pozostawiono do pokrycia studzienek przez 10 s. Roztwór BSA został następnie wyrzucony z każdej studzienki, a studzienki zostały następnie ponownie napełnione roztworem W5. Procedura ta miała na celu stworzenie tymczasowej, nieprzylegającej powierzchni za pomocą BSA, skutecznie zapobiegającej przywieraniu protoplastów do plastikowej powierzchni płytki hodowlanej podczas kolejnych etapów eksperymentalnych.
4. Leczenie hipoksji na protoplastach kapusty
- Zabiegi hipoksji indukowanej chemicznie lub fizycznie należy przeprowadzić natychmiast po transfekcji protoplastów.
UWAGA: Zaleca się stosowanie leczenia hipoksji natychmiast po transfekcji protoplastów. Długotrwała inkubacja protoplastów może zmniejszyć późniejszą odpowiedź na niedotlenienie.- W przypadku chemicznie indukowanej hipoksji na protoplastach kapusty dodaj OxyFluor, EC-Oxyrase i siarczyn sodu do roztworu protoplastu W5.
UWAGA: Użycie 0,6 jednostki · mL-1 EC oksyrazy, 0,6 jednostki · mL-1 OxyFluor i 1 g·mL-1 siarczynu sodu w W5 były testowanymi warunkami zdolnymi do indukowania BoADH1 i promotora BoSUS1L (Figura 3A) z niskim uszkodzeniem integralności protoplastów w dwóch badanych odmianach kapusty. - W przypadku niedotlenienia wywołanego workiem zużywającym tlen umieść dwa pakiety pochłaniaczy tlenu w słoiku beztlenowym o pojemności 3,5 l, aby stworzyć środowisko hipoksji.
- W przypadku chemicznie indukowanej hipoksji na protoplastach kapusty dodaj OxyFluor, EC-Oxyrase i siarczyn sodu do roztworu protoplastu W5.
- Zebrać protoplasty poddane działaniu hipoksji przez odwirowanie w temperaturze 150 x g przez 2 minuty w temperaturze 4 °C. Zebrane protoplasty należy zamrozić za pomocą ciekłego azotu i przechowywać w zamrażarce o temperaturze -80 °C do kolejnych testów.
5. Test podwójnej lucyferazy
- Wykonaj test reporterowy podwójnej lucyferazy zgodnie z instrukcjami producenta z niewielkimi modyfikacjami.
- Zawiesić protoplasty kapusty w 50 μl 1x pasywnego buforu do lizy i wirować przez 10 s.
- Zawiesić rozerwane protoplasty na lodzie przez 10 minut i zebrać supernatant po odwirowaniu w temperaturze 10 000 x g przez 10 minut w temperaturze 4 °C.
- Dodać 20 μl lizatu komórkowego do każdego dołka mikropłytki. Dozować 100 μl odczynnika II do oznaczania lucyferazy do studzienek i zmierzyć aktywność lucyferazy świetlików za pomocą czytnika mikropłytek.
- Dodać 100 μl dostępnego w handlu odczynnika do oznaczania do każdego dołka i zmierzyć aktywność lucyferazy Renilla za pomocą czytnika mikropłytek.
Wyniki
W ramach niniejszej pracy opracowano system ekspresji przejściowej z wykorzystaniem protoplastów kapusty (schemat procedury przedstawiono na Rysunku 1). Protoplasty wyizolowano z liści właściwych 2-3-tygodniowej kapusty o odpowiedniej wielkości (Rysunek 2A) z komercyjnych odmian 'Fuyudori' i '228', stosując trawienie celulazą/macerozymem oraz ciemną infiltrację próżniową (Rysunek 2B,C). Aby ograniczyć warunki hipoksyjne, w których znajdowały się zanurzone protoplasty podczas inkubacji, roztwór W5 napowietrzano za pomocą kamienia napowietrzającego podłączonego do generatora tlenu (Rysunek 2D). Proces ten znacząco zwiększył stężenie rozpuszczonego tlenu w roztworze W5 z 7,84 mg·L-1 ± 0,05 mg·L-1 do 29,18 mg·L-1 ± 0,43 mg·L-1 po 5 min napowietrzania tlenem. Po procesie izolacji wydajność protoplastów po nocnym trawieniu wyniosła 1,04 x 10⁷ dla odmiany 'Fuyudori' oraz 4,00 x 10⁶ protoplastów·g−1 masy świeżej dla odmiany '228' (Rysunek 2E). Następnie GFP wykorzystano jako gen reporterowy do oceny wydajności transfekcji metodą pośrednią z użyciem PEG, co wykazało, że wydajność transfekcji protoplastów kapusty przekroczyła 40% w obu odmianach (Rysunek 2F), potwierdzając tym samym użyteczność tego systemu.
Ponadto, konstrukty promotorowe genów odpowiedzi na oddychanie beztlenowe kapusty, wektory BoADH1p::Luc i BoSUS1Lp::Luc (Rysunek 3A), wprowadzono do protoplastów kapusty jako reportery w celu oceny efektów indukcji hipoksji przez kilka zabiegów. W tym modelu przejściowej ekspresji zastosowano również różne zabiegi regulujące poziom tlenu. Wyniki wykazały, że wszystkie zabiegi usuwające tlen, z wyjątkiem siarczynu sodu, skutecznie wywołały odpowiedź na hipoksję w protoplastach kapusty (Rysunek 3B). Konkretnie, aktywność promotora BoADH1 wzrosła około 2,6- i 3,2-krotnie w porównaniu z kontrolą po zastosowaniu odpowiednio EC-Oxyrase i OxyFluor, a co szczególnie istotne, ponad 7,0-krotnie po zastosowaniu pochłaniacza tlenu (Rysunek 3B). Podobnie aktywność promotora BoSUS1L wzrosła około 1,7- i 1,8-krotnie po zastosowaniu odpowiednio EC-Oxyrase i OxyFluor, podczas gdy zastosowanie pochłaniacza tlenu wywołało znaczny wzrost o ponad 5,6-krotność (Rysunek 3B). Wyniki te sugerują, że pochłaniacz tlenu wykazuje najwyższą skuteczność w tworzeniu środowiska hipoksycznego w tym eksperymentalnym systemie protoplastów kapusty.

Rycina 1: Graficzna reprezentacja schematu izolacji protoplastów. Na tej rycinie przedstawiono krok po kroku proces izolacji protoplastów z tkanki liścia kapusty. Schemat został opracowany wizualnie, aby zapewnić jasne zrozumienie procedury. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.

Rysunek 2: Izolacja protoplastów z tkanki liściowej kapusty. (A) Przedstawiono wygląd komercyjnych odmian kapusty 'Fuyudori' i '228' w zalecanym stadium wzrostu. Do izolacji protoplastów wybrano drugie, nowo w pełni rozwinięte liście prawdziwe (wskazane grotem strzałki) kapusty w stadium dwuliściennym. Pasek skali: 2 cm. (B) Do procesu infiltracji próżniowej pasków liści kapusty wykorzystano pompę próżniową i deskryptor, przy czym infiltrację przeprowadzono przez 30 min przed trawieniem enzymatycznym. (C) Przedstawiono stan pasków liści kapusty podczas trawienia enzymatycznego. Całkowite trawienie tkanki liściowej wymaga łącznie od 4 do 16 h. Pasek skali: 3 cm. (D) Zdjęcia demonstrują użycie koncentratora tlenu podłączonego do kamienia napowietrzającego w celu zwiększenia stężenia tlenu rozpuszczonego w roztworze W5. Pasek skali: 5 cm. (E) Z obu odmian kapusty 'Fuyudori' i '228' uzyskano ponad 4,00 x 10⁶ protoplastów mezofila na gram masy świeżej (FW), które zaobserwowano pod mikroskopem. Pasek skali: 200 µm. (F) Wykazano, że wydajność transfekcji protoplastów z obu genotypów kapusty, przy użyciu konstytutywnie wyrażonego reportera GFP, wynosi powyżej 40%. Pasek skali: 200 µm. Aby zobaczyć powiększoną wersję tego rysunku, kliknij tutaj.
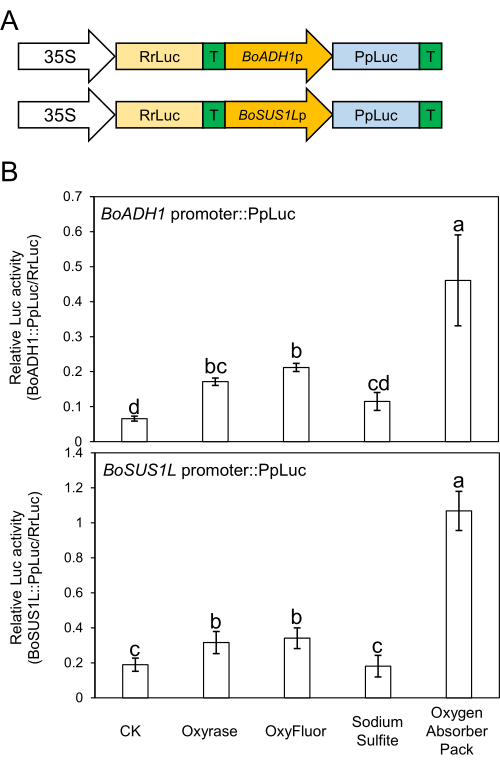
Rycina 3: Odpowiedź na hipoksję protoplastów kapusty w warunkach niedoboru tlenu. (A) Konstrukcje genów odpowiedzi na hipoksję, promotory BoADH1 i BoSUS1L, są wykorzystywane jako reportery do oceny odpowiedzi na hipoksję w protoplastach kapusty odmiany 'Fuyudori'. (B) Łącznie 5 µg plazmidów reporterowych jest transfekowanych do protoplastów kapusty 'Fuyudori', które inkubuje się w roztworze W5 napowietrzanym tlenem przed poddaniem działaniu hipoksji przez 4 h. Poziom tlenu podczas inkubacji jest obniżany poprzez dodanie do roztworu W5 EC-oxyrase (0,6 units·mL-1), OxyFluor (0,6 units·mL-1) oraz siarczynu sodu (1 g·mL-1). Zabieg z wykorzystaniem pakietów pochłaniających tlen polega na umieszczeniu dwóch worków pochłaniających tlen w 3,5 L słoiku anaerobowym. Grupa „CK” reprezentuje grupę kontrolną bez żadnej obróbki hipoksyjnej. Po obróbce protoplasty są zbierane do analizy dualnej lucyferazy. Każda wartość reprezentuje średnią ± SD, przy n = 4. Różne litery wskazują istotne różnice (P < 0,05) na podstawie jednoczynnikowej analizy ANOVA z testem post-hoc LSD. Aby wyświetlić powiększoną wersję tej ryciny, kliknij tutaj.
Tabela 1: Przygotowanie roztworu enzymu, roztworu W5 i roztworu MMG. Kliknij tutaj, aby pobrać tę tabelę.
Plik uzupełniający 1: Szczegóły dotyczące plazmidów do transfekcji protoplastów. Kliknij tutaj, aby pobrać ten plik.
Dyskusja
Protokół ten przedstawia uproszczoną metodę izolacji protoplastów z dwóch komercyjnych odmian kapusty. Skuteczność tej metody ocenia się przede wszystkim na podstawie dwóch krytycznych parametrów kontroli jakości: wydajności żywotnych protoplastów i efektywności transfekcji protoplastów. Wdrożenie tego protokołu zaowocowało uzyskaniem plonu przekraczającego 4,00 x 10⁶ protoplastów·g−1·FW tkanki mezofilu z obu odmian kapusty (ryc. 2E,F). Plon ten jest porównywalny z plonem odnotowanym u innych gatunków, w tym bakłażana, goździka, trzciny cukrowej i Camellia oleifera, gdzie plony protoplastów wahały się od 2,5 x 10⁶ do 1,4 x 10⁷ protoplastów·g−1·FW 6,7,9,17. Wyniki te sugerują potencjalną przydatność protokołu w różnych tłach genetycznych z B. oleracea.
Sukces protokołu zależy od kilku krytycznych czynników. Przede wszystkim należy wykorzystać określone liście ze zdrowych siewek kapusty w odpowiednim etapie wzrostu (ryc. 2A). Używanie starszych lub niezdrowych roślin może skutkować niską jakością protoplastów. Bardzo ważne jest również, aby ostrożnie pokroić tkankę liścia na paski o grubości 0,5-1,0 mm i unikać zgniatania jej ostrzem. Proces trawienia enzymatycznego, trwający od 4 do 16 godzin, jest kolejnym krytycznym krokiem. Okresy trawienia krótsze niż 4 godziny mogą prowadzić do niepełnego trawienia, natomiast te przekraczające 16 godzin trawienia grożą stresem komórkowym. Warto zauważyć, że genotypy o grubszych liściach, takie jak 'Fuyudori', mogą skorzystać z wydłużonego czasu trawienia, aby zmaksymalizować wydajność protoplastów. Natomiast '228' potrzebował tylko 4 godzin do całkowitego roztrawienia. Ponadto szeroki zakres czasów trawienia może zapewnić większą elastyczność w planowaniu eksperymentów. Na przykład 4-godzinne trawienie pozwala na izolację protoplastów i zakończenie kolejnych testów przejściowych w ciągu jednego dnia. I odwrotnie, 16-godzinne trawienie pozwala na zainicjowanie trawienia enzymatycznego wieczorem i umożliwia zakończenie kolejnych kroków następnego dnia, co może zwiększyć wygodę przy stosowaniu tego protokołu. Ponadto bardzo ważne jest, aby obchodzić się z protoplastami delikatnie przez cały proces izolacji protoplastów ze względu na ich kruchość i podatność na naprężenia mechaniczne.
Aby zasymulować warunki beztlenowe reprezentatywne dla stresu powodziowego, w protokole wykorzystano powszechne środki pochłaniające tlen i worki zużywające tlen w celu stworzenia środowiska niedotlenienia. Aby zwiększyć skuteczność systemu, do natleniania roztworu W5 stosuje się maszynę tlenową (ryc. 2D), mającą na celu zmniejszenie sygnałów odpowiedzi hipoksyjnej tła w protoplastach kapusty podczas ich inkubacji przed zabiegiem. 5-minutowy proces natleniania znacznie podnosi poziom rozpuszczonego tlenu z 7,84 mg·L-1 ± 0,05 mg·L-1 do 29,18 mg·L-1 ± 0,43 mg·L-1, co wskazuje na wyraźny efekt w łagodzeniu stanów niedotlenienia. Wśród metod oczyszczania tlenu zastosowanych w tym badaniu, pakiety absorberów tlenu wykazały lepszą wydajność, indukując najwyższą aktywność promotora w dwóch genach rdzeniowych odpowiedzi beztlenowej (ryc. 3). Co więcej, metoda ta oferuje dodatkową zaletę w postaci skalowalności, umożliwiając jednoczesną obróbkę wielu próbek poprzez użycie worków zużywających tlen w jednym słoiku beztlenowym, w przeciwieństwie do indywidualnego stosowania środków pochłaniających tlen na każdej płytce do hodowli komórkowej. Podsumowując, pakiety absorberów tlenu stanowią wygodną i skuteczną platformę odpowiednią do oceny reakcji protoplastów kapusty w warunkach niedotlenienia.
Chociaż protokół ten ma kilka zalet, ważne jest, aby uznać jego ograniczenia, w szczególności stosunkowo skromną skuteczność transfekcji protoplastów kapusty. Chociaż skuteczność ta nie osiąga 90% zgłaszanych dla Arabidopsis5, to jednak nadal okazuje się wystarczająca do udanych kolejnych badań nad aktywnością promotora (ryc. 3), wskazując na znaczny potencjał analizy funkcjonalnej w tym systemie.
Biorąc pod uwagę globalne znaczenie kapusty jako głównej rośliny warzywnej, integracja tego protokołu z leczeniem hipoksji i technikami analizy genetycznej daje nadzieję na uzyskanie dalszych informacji na temat mechanizmów regulacyjnych w kapuście w warunkach powodziowych. Takie spostrzeżenia mogą potencjalnie przyspieszyć rozwój odmian kapusty odpornych na powodzie, odpowiadając na krytyczną potrzebę w obliczu ekstremalnych warunków pogodowych i nasilających się powodzi.
Oświadczenia
Autorzy deklarują brak konkurencyjnych interesów.
Podziękowania
Ta praca była wspierana przez Narodową Radę Nauki i Technologii (MOST 111-2313-B-002-029- i NSTC 112-2313-B-002-050-MY3). Na rysunku 1 ikony eksperymentalne pochodzą z BioRender.com.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Kwas 2-(N-morfolino)etanosulfonowy (MES) | PhytoTech Labs | M825 | Do przygotowania roztworu enzymatycznego |
| 228 nasion kapusty | Takii & Co., Ltd. (Kioto, Japonia) | ||
| 50 ml Probówka stożkowa | SPL Life Sciences | 50050 | Do przygotowania roztworu enzymatycznego |
| 6-dołkowa płytka do hodowli tkankowej | Alpha Plus | 16106 | Do inkubacji protoplastów |
| 70 μ m Sitko do komórek | Sorfa | SCS701 | Do filtracji protoplastów |
| 9-centymetrowa szalka Petriego | Alpha Plus | 16001 | Do trawienia enzymatycznego |
| Słoik beztlenowy | HIMEDIA | Słoik anaerobowy 3,5 l | Do leczenia niedotlenienia |
| Albumina surowicy bydlęcej | Sigma-Aldrich | A7906 | Do przygotowania roztworu W5 i powlekania płytki hodowlanej |
| Chlorek wapnia | J.T.Baker | 131301 | Do przygotowania roztworu W5 i roztworu PEG |
| Celulaza R10 | Yakult | Do przygotowania roztworu enzymatycznego | |
| Eksykator | Tarsons | 402030 | Do infiltracji próżniowej |
| D-Glucose | Bioshop | GLU501 | Do przygotowania roztworu W5 |
| Miernik tlenu rozpuszczonego | Thermo Scientific | Orion Star A223 | Do pomiaru tlenu |
| D-Mannitol | Sigma-Aldrich | M1902 | Do przygotowania roztworu enzymu, roztworu PEG i roztworu MMG |
| System testowy Dual-Lucyferazy Reporterowej Promega | E1960 | Do testu reporterowego podwójnej lucyferazy | |
| EC-Oxyrase | Oxyrase Inc. | EC-0005 | Do leczenia niedotlenienia |
| Nasiona kapusty Fuyudori | Kobayashi Seed Co., Ltd. (Kakogawashi, Japonia) | ||
| Wirówka z chłodzeniem o dużej prędkości | Hitachi | CR21GIII | Do zbioru protoplastów |
| Macerozyme R10 | Yakult | Do przygotowania roztworu enzymatycznego | |
| Chlorek | magnezu Alfa Aesar | 12315 | Do przygotowania roztworu MMG |
| Mikrowirówka | Hitachi | CT15RE | Do zbioru protoplastów |
| Mikropłytka | Greiner | 655075 | Do testu reporterowego z podwójną lucyferazy |
| Czytnik mikropłytek | Urządzenia molekularne | SpectraMax Mini | Do Test reporterowy podwójnej lucyferazy |
| Millex 0,22 i mu; m filtr strzykawkowy | Merck | SLGP033RS | Do przygotowania roztworu enzymatycznego |
| Bezolejowa pompa próżniowa Rocker | Rocker 300 | Do infiltracji próżniowej | |
| OxyFluor | Oxyrase Inc. | OF-0005 | Do leczenia niedotlenienia |
| Pakiet absorbera tlenu | Mitsubishi Gas Chemical Company | AnaeroPack, MGCC1 | Do leczenia niedotlenienia |
| Koncentrator tlenu | UTMOST PERFECT | AII-X | Do bąbelkowania tlenu w roztworze W5 |
| Podłoże roślinne | Klasmann-Deilmann | Potgrond H | Do przygotowania sadzonek kapusty |
| Plasmid Midi Kit | QIAGEN | 12145 | Do oczyszczania plazmidowego DNA o stopniu transfekcji |
| Glikol polietylenowy 4000 | Fluka | 81240 | Do transfekcji protoplastów |
| Chlorek potasu | J.T.Baker | 304001 | Do przygotowania roztworu W5 |
| Żyletka | Gillette | Do przygotowania pasków liści kapusty | |
| Chlorek sodu | Bioshop | SOD002 | Do przygotowania roztworu W5 |
| Siarczyn sodu | Sigma-Aldrich | S0505 | Do leczenia niedotlenienia |
| Łaźnia wodna | Yihder | BU-240D | Do przygotowania roztworu enzymatycznego |
Bibliografia
- Tanoue, M., Hirabayashi, Y., Ikeuchi, H. Global-scale river flood in the last 50 years. Sci Rep. 6 (1), 36021(2016).
- Voesenek, L. aC. J., Bailey-Serres, J. Flood adaptive traits and processes: An overview. New Phytol. 206 (1), 57-73 (2015).
- Sheen, J. Signal transduction in maize and Arabidopsis mesophyll protoplasts. Plant Physiol. 127 (4), 1466-1475 (2001).
- Chen, S., et al. A highly efficient transient protoplast system for analyzing defense gene expression and protein-protein interactions in rice. Mol Plant Pathol. 7 (5), 417-427 (2006).
- Yoo, S. -D., Cho, Y. -H., Sheen, J. Arabidopsis mesophyll protoplasts: A versatile cell system for transient gene expression analysis. Nat Protoc. 2 (7), 1565-1572 (2007).
- Wang, Q., et al. Optimization of protoplast isolation, transformation, and its application in sugarcane (Saccharum spontaneum L). Crop J. 9 (1), 133-142 (2021).
- Adedeji, O. S., et al. Optimization of protocol for efficient protoplast isolation and transient gene expression in carnation. Sci Hortic. 299, 111057(2022).
- Lin, H. -Y., Chen, J. -C., Fang, S. -C. A protoplast transient expression system to enable molecular, cellular, and functional studies in Phalaenopsis orchids. Front Plant Sci. 9, (2018).
- Wang, Y., et al. A highly efficient mesophyll protoplast isolation and PEG-mediated transient expression system in eggplant. Sci Hortic. 304, 111303(2022).
- Lin, Z., et al. Development of a protoplast isolation system for functional gene expression and characterization using petals of Camellia oleifera. Plant Physiol Biochem. 201, 107885(2023).
- Guo, J., et al. Highly efficient isolation of Populus mesophyll protoplasts and its application in transient expression assays. PLOS One. 7 (9), e44908(2012).
- Gottschald, O. R., et al. TIAR and TIA-1 mRNA-binding proteins co-aggregate under conditions of rapid oxygen decline and extreme hypoxia and suppress the HIF-1α pathway. J Mol Cell Biol. 2 (6), 345-356 (2010).
- Cho, H. -Y., Chou, M. -Y., Ho, H. -Y., Chen, W. -C., Shih, M. -C. Ethylene modulates translation dynamics in Arabidopsis under submergence via GCN2 and EIN2. Sci Adv. 8 (22), eadm7863(2022).
- Boudreau, C., et al. Excitation light dose engineering to reduce photo-bleaching and photo-toxicity. Sci Rep. 6 (1), 30892(2016).
- Shcherbakova, D. M., Cox Cammer, N., Huisman, T. M., Verkhusha, V. V., Hodgson, L. Direct multiplex imaging and optogenetics of Rho GTPases enabled by near-infrared FRET. Nat Chem Biol. 14 (6), 591-600 (2018).
- Jiang, B., et al. Sodium sulfite is a potential hypoxia inducer that mimics hypoxic stress in Caenorhabditis elegans. J Biol Inorg Chem. 16 (2), 267-274 (2011).
- Lin, C. -C., et al. SUB1A-1 anchors a regulatory cascade for epigenetic and transcriptional controls of submergence tolerance in rice. PNAS Nexus. 2 (7), pgad229(2023).
- Zhang, X., et al. Bis-molybdopterin guanine dinucleotide modulates hemolysin expression under anaerobiosis and contributes to fitness in vivo in uropathogenic Escherichia coli. Mol Microbiol. 116 (4), 1216-1231 (2021).
- Liu, N., et al. The light and hypoxia-induced gene zmPORB1 determines tocopherol content in the maize kernel. Sci China Life Sci. 67 (3), 435-448 (2024).
Przedruki i uprawnienia
