Tutaj prezentujemy badanie przeprowadzone w iDiv Ecotron, naziemnych komorach mezokosmicznych z kontrolowanymi warunkami środowiskowymi nad i pod ziemią, w celu zbadania niezależnego i interaktywnego wpływu historii roślin i historii gleby na funkcjonowanie ekosystemu zbiorowisk trawiastych wzdłuż gradientu różnorodności roślin.
Artykuł metodologiczny
JenaTron - eksperymentalne podejście do badania wpływu historii roślin i historii gleby na funkcjonowanie ekosystemów użytków zielonych
W tym artykule
Podsumowanie
Streszczenie
Globalna utrata różnorodności biologicznej zmotywowała wiele badań, które eksperymentalnie różnicują bogactwo gatunków roślin i badają konsekwencje dla funkcjonowania ekosystemu. Takie eksperymenty na ogół wykazują pozytywny związek między bioróżnorodnością na powierzchni i pod ziemią a funkcjonowaniem ekosystemów lądowych. Co więcej, zależność ta ma tendencję do wzmacniania się w miarę upływu czasu, co jest postrzegane jako poprawa funkcjonowania zróżnicowanych zbiorowisk roślinnych i ograniczenie funkcjonowania zbiorowisk roślinnych o niskiej różnorodności. Przypuszcza się, że różnice w gromadzeniu się zbiorowisk multitroficznych i interakcjach biotycznych w zbiorowiskach roślinnych o wysokiej i niskiej różnorodności wpływają na wydajność roślin poprzez zmianę struktury i funkcji społeczności konsumentów oraz napędzanie plastikowych lub mikroewolucyjnych reakcji gatunków roślin w zbiorowiskach roślinnych. Aby rozwiązać tę złożoną zależność od historii społeczności, rozdzieliliśmy te efekty na historię roślin i gleby. Historia roślin odnosi się do wszystkich reakcji na poziomie roślin na przeszłe abiotyczne i biotyczne naciski selekcyjne doświadczane w ich społecznościach, podczas gdy historia gleby odnosi się do wszystkich abiotycznych i biotycznych właściwości gleby opracowanych jako dziedzictwo interakcji roślina-gleba w warunkach zmiennej różnorodności roślin. Przeprowadziliśmy eksperyment z bioróżnorodnością w Ecotronie, lądowym obiekcie mezokosmicznym, który pozwala kontrolować warunki środowiskowe na powierzchni i pod ziemią, aby sprawdzić, czy wzmacniająca się zależność między różnorodnością biologiczną a funkcjonowaniem ekosystemu wynika z historii gleby, historii roślin, czy też z kombinacji obu. Ustaliliśmy gradient różnorodności roślin składający się z 1, 2, 3 i 6 gatunków roślin łąkowych i factorialnie zagnieżdżony z historią gleby i zabiegami historii roślin dla każdego poziomu bogactwa gatunków roślin. Reprezentatywne wyniki wskazują na pomyślne opracowanie docelowych zabiegów w eksperymencie Ecotron, w ramach którego obserwuje się wpływ historii roślin i gleby na początkowy rozwój roślin i końcowy wzrost roślin. Dodatkowo udostępniamy studium przypadku do analizy danych poszczególnych zmiennych odpowiedzi. Przedstawiamy cele badawcze i metody kompleksowej oceny wielofunkcyjnych odpowiedzi na eksperymentalne terapie niezbędne do ostatecznego rozwiązania nadrzędnej hipotezy.
Wprowadzenie
W ciągu ostatnich trzech dekad, rosnące obawy o utratę różnorodności biologicznej doprowadziły do szeroko zakrojonych badań skoncentrowanych na eksperymentalnym manipulowaniu bogactwem gatunków roślin w celu zbadania jego wpływu na funkcjonowanie ekosystemu1,2. Badania eksperymentalne wykazały pozytywny związek między różnorodnością roślin a funkcjonowaniem ekosystemu1, który ma tendencję do zwiększania się z czasem3,4,5,6,7,8,9. Jest to znaczące odkrycie, ponieważ sugeruje, że wyniki eksperymentalne uzyskane z młodych, niedawno założonych społeczności prawdopodobnie nie doceniają konsekwencji utraty różnorodności biologicznej, jednocześnie podkreślając znaczenie ochrony starszych, bogatych w gatunki ekosystemów10.
Zmiany w procesach biotycznych i abiotycznych w czasie, które można zaobserwować tylko w długoterminowych eksperymentach, są jednym z możliwych wyjaśnień dla wzmacniającego wpływu różnorodności biologicznej na funkcjonowanie ekosystemu. Wysoka różnorodność roślin wiąże się ze wzrostem stężenia węgla i składników odżywczych w glebie3,9,11,12,13, zoptymalizowana komplementarność zasobów3,8,14, zwiększone zróżnicowanie nisz wśród roślin15, akumulacja mutualistów na wszystkich poziomach troficznych10,16, oraz zmniejszone zagrożenia ze strony patogenów i roślinożerców dzięki silniejszym odgórnym mechanizmom regulacyjnym17,18,19. Z drugiej strony, niska różnorodność roślin wiąże się z presją selekcyjną na zwiększenie inwestycji w obronę roślin i mniej efektywne wykorzystanie zasobów10,20,21,22. Podsumowując, przypuszcza się, że różnice w gromadzeniu się zbiorowisk multitroficznych i interakcjach biotycznych w zbiorowiskach roślinnych o wysokiej i niskiej różnorodności wpływają na wydajność roślin poprzez zmianę struktury i funkcji społeczności konsumentów, a także napędzanie plastikowych lub mikroewolucyjnych zmian gatunków roślin na poziomie zbiorowisk roślinnych23,24,25,26. Aby rozwiązać złożone zależności między historią społeczności, efekty te zostały podzielone na dwa ważne komponenty: historię roślin i historię gleby. Historia roślin odnosi się do wszystkich reakcji roślin na przeszłe abiotyczne i biotyczne presje selekcyjne doświadczone w ich odpowiednich społecznościach, podczas gdy historia gleby odnosi się do wszystkich abiotycznych i biotycznych właściwości gleby powstałych w wyniku interakcji roślina-gleba23,24,27,28. Oba komponenty są coraz częściej uznawane za kluczowe czynniki wpływające na długoterminowy wpływ na różnorodność biologiczną29,30,31.
Eksperymentalne badania terenowe dostarczają cennych informacji na temat długoterminowych skutków historii gleby i roślin w realistycznych warunkach środowiskowych i na dużą skalę przestrzenną32,33. Eksperymenty terenowe podlegają jednak różnym niekontrolowanym czynnikom zewnętrznym, takim jak wahania pogody, zakłócenia naturalne i interakcje z innymi organizmami. W przeciwieństwie do tego, eksperymenty mikrokosmosowe na małą skalę, choć ograniczone w uchwyceniu złożoności i dynamiki naturalnych ekosystemów, oferują precyzyjną kontrolę nad czynnikami abiotycznymi, takimi jak temperatura, światło i woda34. Aby połączyć zalety obu podejść, w latach dziewięćdziesiątych XX wieku pojawiły się nowe obiekty eksperymentalne zwane "Ecotronami" (np. Ecotron w Silkwood, Wielka Brytania34; Ecotron w Montpellier, Francja35; Ecotron w Hasselt, Belgia36). Roy i in. (2021)37 definiują Ecotron jako obiekt eksperymentalny składający się z replikowanych obudów zaprojektowanych do przechowywania próbek ekosystemu, umożliwiając realistyczną symulację warunków środowiskowych na powierzchni i pod ziemią, ułatwiając jednocześnie jednoczesny i zautomatyzowany pomiar procesów ekosystemowych. W ten sposób Ecotrony umożliwiają zintegrowane badanie złożonych procesów ekosystemowych, interakcji multitroficznych i funkcji ekosystemów. Mogą one być siedliskiem różnych organizmów naziemnych i podziemnych z wielu poziomów troficznych w dużej serii niezależnych komór mezokosmicznych, umożliwiając precyzyjną kontrolę i monitorowanie warunków środowiskowych zarówno w systemach naziemnych, jak i podziemnych37,38.
W tym badaniu przeprowadziliśmy eksperyment w iDiv Ecotron38,39, określany jako "JenaTron Experiment" (Rysunek 1 i Rysunek 2), aby sprawdzić, czy relacje między różnorodnością biologiczną a funkcjonowaniem ekosystemu (BEF) w społecznościach o różnym poziomie bogactwa gatunków roślin są modulowane przez historię gleby, wspólną historię roślin, czy też łączny efekt obu. iDiv Ecotron został specjalnie zaprojektowany do wielotroficznych eksperymentów z bioróżnorodnością, koncentrując się na wspólnym badaniu interakcji naziemnych i podziemnych w ekosystemach lądowych38,39,40. Składa się z 24 identycznych jednostek eksperymentalnych, określanych jako "EcoUnits" (Rysunek 2F,G), z których każda jest w stanie pomieścić do czterech indywidualnych ekosystemów w izolowanych przedziałach (Rysunek 2K), umożliwiając budowę złożonych, bliskich naturalnemu ekosystemom przy jednoczesnym zminimalizowaniu wpływu zmienności środowiska. Jedną z kluczowych zalet jest zdolność do tworzenia wielu powtórzeń nienaruszonych monolitów glebowych (Rysunek 2A-C) w kontrolowanych warunkach środowiskowych, co umożliwia pomiar skomplikowanych procesów ekosystemowych, w tym efektów sprzężenia zwrotnego roślina-roślina i roślina-gleba, które często są trudne do uchwycenia w eksperymentach mikrokosmosu na małą skalę38,39.
W Europie półnaturalne łąki są jednymi z najbardziej różnorodnych biologicznie i kompleksowych ekosystemów lądowych, dostarczając niezbędnych usług ekosystemowych. Jednak od początkuXX wieku te ekstensywnie zarządzane użytki zielone stają w obliczu coraz większych zagrożeń związanych ze zmianą użytkowania gruntów, co czyni je kluczowym celem ochrony różnorodności biologicznej i badań nad nią. Jednym z najdłużej trwających na świecie eksperymentów z bioróżnorodnością na ekstensywnie zarządzanych użytkach zielonych jest Jena Experiment32,33, zlokalizowany w Jenie, Niemcy (50.951°N, 11.621°E, 139 m n.p.m.; strona internetowa: https://the-jena-experiment.de). Zapoczątkowany w 2002 roku eksperyment bada związki między różnorodnością roślin użytków zielonych a funkcjonowaniem ekosystemu, koncentrując się w szczególności na obiegu składników odżywczych i interakcjach troficznych32,33. Do instalacji Eksperymentu JenaTron w iDiv Ecotron wykorzystaliśmy Eksperyment Oparty na Cechach41 (TBE), komponent Eksperymentu Jena rozpoczętego w 2010 roku i zakończonego w 2021 roku. W 2022 r. wybrano 23 powierzchnie TBE w celu ustalenia gradientu różnorodności roślin od jednego do sześciu gatunków, obejmującego ponad 24 zbiorowiska roślinne w obrębie iDiv Ecotron. Zbiorowiska te składały się z sześciu gatunków roślin trawiastych, które pokrywały się z głównym eksperymentem doświadczenia w Jenie i reprezentowały trzy gatunki traw (Anthoxanthum odoratum L., Dactylis glomerata L., Holcus lanatus L.) i trzy gatunki trawiaste (Leucanthemum vulgare agg., Plantago lanceolata L. i Ranunculus acris L.; patrz tabela 1 w celu uzyskania szczegółowych informacji na temat składu gatunkowego roślin i powtórzeń dla każdego poziomu różnorodności roślin). Gatunki te, szeroko rozpowszechnione i często współistniejące na półnaturalnych europejskich użytkach zielonych, dodatkowo różnią się cechami czasowego pozyskiwania zasobów, co czyni je idealnymi do kompleksowych badań czasowego wykorzystania zasobów, takich jak fenologia roślin41. 24 kompozycje roślinne zostały losowo przydzielone do wszystkich EcoUnits (Rysunek 1C), przy czym każda EcoUnit została dalej podzielona na cztery przedziały, aby pomieścić silne kombinacje historii gleby i zabiegów związanych z historią roślin.
Historia gleby (Rysunek 1A) została ustalona poprzez wykopaliska łącznie 96 monolitów glebowych z Eksperymentu Jena. Gleba w tym miejscu jest bogatą w składniki odżywcze glebą zalewową sklasyfikowaną jako Eutric Fluvisol, rozwiniętą z gliniastych osadów rzecznych32,33. Szczegółowe informacje na temat pH gleby, zmian w strukturze gleby i materii organicznej w profilu glebowym Jena Experiment można znaleźć w Lange et al. (2023)9. Spośród 96 monolitów, 48 zostało pozyskanych poprzez wydobycie dwóch monolitów z każdego z 22 działek TBE, obejmujących monokultury, mieszanki dwu- i trzygatunkowe. Dodatkowo, cztery monolity zostały pobrane z poletka ośmiu gatunków, które posłużą jako mieszanka sześciu gatunków w eksperymencie JenaTron. Każdy z tych 48 monolitów glebowych (głębokość: 0,8 m; średnica: 0,5 m) od 2010 r. był siedliskiem społeczności mieszkaniowej specyficznej dla danej działki, reprezentując tym samym specyficzną dla zbiorowiska roślinnego historię gleby (+SH). Pozostałe 48 monolitów zostało wydobytych z czterech gołych działek, które były wolne od roślinności od czasu rozpoczęcia eksperymentu w Jenie w 2002 roku, a zatem nie miały żadnej historii glebowej specyficznej dla zbiorowisk roślinnych (-SH). Z każdej z czterech działek z gołą ziemią wydobyto 12 monolitów. Dwa zabiegi badania historii gleby (+SH; -SH) połączono czynnikowo z dwoma zabiegami dotyczącymi historii roślin poprzez sadzenie wcześniej wyhodowanych roślin, które odzwierciedlały specyficzny dla danego zbiorowiska skład KZM przy jednakowej gęstości, przy czym poszczególne rośliny były oddalone od siebie o 6 cm.
Historia roślin (Rysunek 1B) została ustalona przy użyciu dwóch różnych źródeł nasion dla każdego z wybranych gatunków roślin z puli gatunków Jena Experiment: Pierwsze źródło składało się z nasion zebranych z roślin, które doświadczyły historii specyficznej dla społeczności od 2010 roku, odpowiadającej dokładnym działkom Eksperymentu Opartego na Cechach (TBE), z których wydobyto monolity glebowe (+PH). Nasiona te zbierano od maja do września 2019 r. w zależności od fenologii kwitnienia gatunku, zapewniając pobranie próbek z co najmniej pięciu osobników z każdego gatunku i działki. Po zebraniu nasiona zostały oczyszczone i przechowywane w temperaturze -20°C do czasu rozpoczęcia eksperymentu JenaTron. Drugim źródłem materiału siewnego były nasiona uzyskane od komercyjnego dostawcy materiału siewnego produkującego nasiona o regionalnym pochodzeniu. Nasiona te wykorzystano do założenia poletek TBE w 2010 r., reprezentując tym samym rośliny bez historii selekcji specyficznej dla danej społeczności w ramach eksperymentu Jena (-PH) i były przechowywane w temperaturze -20°C od 2010 r. do rozpoczęcia eksperymentu JenaTron. Obie historie sześciu gatunków roślin wieloletnich były wstępnie uprawiane od lutego do maja 2022 r. w czterech komorach szklarni badawczej iDiv zlokalizowanej w Lipsku w Niemczech (51.330°N, 12.393°E, 120 m n.p.m.).
Czynnikowa kombinacja historii gleby (SH) i historii roślin (PH) na każdym poziomie bogactwa gatunków roślin zaowocowała czterema zabiegami w każdej z 24 EcoUnits: (1) z historią gleby, z historią roślin (+SH/+PH), (2) z historią gleby, bez historii roślin (+SH/-PH), (3) bez historii gleby, z historią roślin (-SH/+PH), oraz (4) bez historii gleby, bez historii rośliny (-SH/-PH; Rysunek 1C). Głównym celem eksperymentu JenaTron jest zbadanie, czy wzmacniający się związek między różnorodnością biologiczną a funkcjonowaniem ekosystemu wynika z historii gleby, historii roślin, czy też z połączenia obu. Stawiamy hipotezę, że zbiorowiska roślinne o wspólnej historii specyficznej dla społeczności roślinnej i glebowej będą wykazywać najsilniejszy związek BEF, podczas gdy eksperymentalne wykluczenie historii gleby, historii roślin lub obu tych czynników może mieć szkodliwy wpływ na pozytywne relacje różnorodności roślin i funkcjonowania ekosystemu. Ostatecznie, gdyby historia gleby lub roślin zmieniła związek między bogactwem gatunkowym roślin a funkcjonowaniem ekosystemu, posłużyłoby to jako ważny czynnik dla ochrony i monitorowania lokalnie zachowanych i nowych odtworzonych zbiorowisk.
Protokół
UWAGA: Upewnij się, że odpowiednie środki ochrony osobistej (np. kaski, rękawice, kamizelki, obuwie ochronne itp.) są zapewnione na wszystkich etapach protokołu.
1. Gleby: Przygotowanie, wykopy, instalacja
- Źródła gleby, wybór działki i przygotowanie (luty 2022)
- Wybierz dwa źródła gleby z terenu Jena Experiment:
- Wybierz 23 poletka TBE, na których przez 12 lat utrzymywała się społeczność specyficzna dla danej działki, aby pokryć gradient różnorodności roślin wynoszący 1, 2, 3 i 6 gatunków. Oznacz te poletka jako zabieg JenaTron Experiment "z historią gleby specyficzną dla społeczności roślinnej" (+SH).
- Wybierz 4 działki z gołym gruntem o takich samych właściwościach gleby jak poletka z KZM (pH, zawartość piasku itp.), ale od 2002 r. utrzymywane bez pokrywy roślinnej. Oznacz te poletka jako zabiegi eksperymentalne JenaTron "bez historii specyficznej dla społeczności roślinnej" (-SH).
- Delikatnie usuń górne 5 cm gleby ze wszystkich wybranych działek za pomocą minikoparki, aby wyrównać warunki podczas zabiegów historii gleby.
- Wybierz dwa źródła gleby z terenu Jena Experiment:
- Wykopaliska monolitu glebowego (marzec 2022)
- Ustaw urządzenie do ekstrakcji monolitu na każdej działce, zamontuj system tnący na pustym stalowym cylindrze i włóż go do urządzenia odciągowego ( Rysunek 2A).
- Włącz urządzenie, a system tnący obróci się wokół zewnętrznej ścianki cylindra. System wycina w glebie wgłębienie, w które urządzenie odciągowe jednocześnie wciska stalowy cylinder. Równolegle użyj mini-koparki, aby wykopać dół z boku stalowego cylindra (Rysunek 2B).
- Gdy stalowy cylinder zostanie całkowicie osadzony w glebie, wejdź do bocznego dołu i przypnij monolit do dolnej krawędzi stalowego cylindra, montując tymczasową płytę dolną i użyj urządzenia do ekstrakcji monolitu, aby podnieść go z wykopu ( Rysunek 2C).
- Zdemontuj układ tnący ze stalowego cylindra, zamontuj tymczasową płytę górną do stalowego cylindra, podnieś monolit za pomocą zawieszenia przymocowanego do minikoparki i odwróć go do góry nogami.
- Montaż systemu zasysania wody (marzec 2022)
- Zdemontuj dolną płytę, usuń około 5 cm warstwy gleby za pomocą kielni i przechowuj ją do późniejszego użycia.
- Osadź pierścień sond ssących wodę (8 świec połączonych wężami z polichlorku winylu [PVC]) w proszku kwarcowym, zwilż go wodą demineralizowaną (VE) i napełnij stalowe dno cylindra wcześniej usuniętą ziemią.
- Podłącz końcówkę z PVC pierścienia sondy ssącej wodę do dolnej płyty, a następnie przykręć ją.
- Ponownie obróć stalowy cylinder z zawieszeniem na minikoparce do pionu, oznacz go indywidualnie, uszczelnij otwory w ściankach cylindra taśmą klejącą i owiń cylinder folią plastikową w celu ochrony podczas transportu.
- Monolity glebowe można przetransportować samochodem ciężarowym do iDiv Ecotron, znajdującego się w eksperymentalnej stacji terenowej Centrum Badań Środowiskowych im. Helmholtza (UFZ) w Bad Lauchstädt w Niemczech (51.392°N, 11.876°E, 116 m n.p.m.).
- Instalacja czujników gleby (kwiecień 2022)
- Po rozpakowaniu wytnij precyzyjnie dopasowane otwory na czujniki poziomo w monolicie glebowym za pomocą niestandardowego stalowego ostrza, korzystając z otworów w ściance cylindra na trzech różnych głębokościach (9,5 cm, 21,5 cm i 43,5 cm).
- Umieść czujniki gleby w otworach, użyj drewnianej kłody, aby ustawić je we właściwej pozycji i przykręć otwory za pomocą specjalnie wykonanych zaślepek uszczelniających.
- Montaż monolitów gruntowych w EcoUnits (kwiecień 2022)
- Ostrożnie podnieś techniczną i górną część każdej jednostki EcoUnit z dolnej części (Rysunek 2G). Przetransportuj dolną część do stalowych cylindrów, w których znajdują się nienaruszone monolity glebowe wyposażone w czujniki gleby.
- Przymocuj każdy stalowy cylinder do zawieszenia, podnieś go wózkiem widłowym i zamontuj łącznik do pierścienia świecy ssącej połączonego z dolną płytą.
- Podnieś cztery monolity glebowe do dolnego pojemnika każdej z 24 jednostek EcoUnit (Rysunek 2F), z których dwie mają tę samą historię gleby specyficzną dla zbiorowiska roślinnego (+SH) i dwie bez historii gleby specyficznej dla społeczności roślinnej (-SH). Przeprowadź czujników gleby przez otwory pojemnika gruntowego.
- Przymocuj stalowe cylindry do dolnej części za pomocą, a następnie podłącz pierścienie świecowe ssące wodę każdego cylindra do systemu zasysania wody EcoUnit za pomocą wcześniej zainstalowanego złącza.
- Za pomocą wózka widłowego przetransportujesz kontener wyposażony w monolity gruntowe do hali (24 m x 24 m).
- Ostrożnie umieść techniczne i górne części (z wewnętrznymi ściankami między podjednostkami [Rysunek 2K]) każdej EcoUnit z powrotem na dolnej części.
- Ułóż wszystkie 24 EcoUnits w trzech rzędach, z których każdy składa się z dwóch grup po cztery EcoUnits, tworząc w sumie sześć bloków. Zapewnij odległość od środka do środka 6 m między blokami w każdym rzędzie i 8,2 m między rzędami. W każdym bloku losowo przypisz cztery poziomy różnorodności roślin (1, 2, 3 i 6) do czterech ekojednostek, zapewniając równomierny rozkład gatunków we wszystkich ekojednostkach, gdy tylko jest to możliwe.
2. Rośliny: Przygotowanie i instalacja do uprawy
- Wybór gatunków i materiału siewnego
- Wybierz następujące sześć gatunków roślin z puli gatunków Jena Experiment: Anthoxanthum odoratum L. (Poaceae), Dactylis glomerata L. (Poaceae), Holcus lanatus L. (Poaceae), Leucanthemum vulgare agg. (Asteraceae), Plantago lanceolata L. (Plantaginaceae) i Ranunculus acris L. (Jaskierkowate).
- Dla każdego gatunku należy wybrać materiał siewny pochodzący z dwóch różnych źródeł nasion:
- Używaj nasion roślin, które rosły na poletkach KZM w Jenie od 2010 roku (z historią roślin, +PH).
- Należy użyć oryginalnego materiału siewnego, który został użyty do zainicjowania KZMiS w 2010 r., pochodzącego od regionalnego producenta nasion (bez historii roślin, -PH).
- Przygotowanie podłoża (luty 2022)
- Zbierz glebę specyficzną dla danej działki z każdej z wybranych działek na terenie terenu Jena Experiment. Glebę należy rozlać do plastikowych pojemników o pojemności 20 litrów i przechowywać w temperaturze 4 °C do momentu wykorzystania do uprawy roślin.
- Przesiać każdą glebę specyficzną dla danej działki przez oczka o oczkach 4 mm. Wymieszaj ziemię z czterech działek z gołym gruntem przed przesianiem.
- Aby usunąć niechcianą faunę i florę, przenieś piasek kwarcowy do pojemników ze stali nierdzewnej i podgrzewaj w piecu suszącym przez 4 godziny w temperaturze 200 °C.
- Wymieszaj objętościowo glebę i piasek kwarcowy specyficzny dla działki w stosunku 3:1 i napełnij mieszanką gleby i piasku do talerzy wielodoniczkowych za pomocą plastikowej łopaty (łącznie n = 152).
- Oznacz każdą płytkę wielodoniczkową indywidualnie i umieść ją w szklarni w cyklu dzień-noc 16 h/18 °C i 8 h/12 °C, utrzymując umiarkowaną wilgotność 60%-70% wilgotności względnej (RH).
- Podlewaj talerze na żądanie i trzymaj je odsłonięte przez dwa tygodnie, aby umożliwić kiełkowanie nasion w glebie. Odchwaszczaj wszystkie talerze dwukrotnie, aby usunąć niechciane sadzonki.
- Kampania siewna (marzec-kwiecień 2022)
- Określ kolejność siewu na podstawie czasu kiełkowania specyficznego dla gatunku w następujący sposób:
- Wysiewać R. acris 2 tygodnie przed innymi ziołami
- Wysiewaj P. lanceolata i L. vulgare 1 tydzień przed trawami A. odoratum, D. glomerata i H. lanatus.
- Wszystkie gatunki, z wyjątkiem R. acris, wysiewać bezpośrednio na specyficzne dla działki podłoże glebowo-piaskowe (3:1) na talerzach wielodoniczkowych z dwoma lub trzema nasionami w doniczce. Po udanym wykiełkowaniu przerzedź wszystkie gatunki do pojedynczych sadzonek za pomocą pęsety ze stali sprężynowej.
- Nasiona R. acris należy zaprawić na szalkach Petriego na bibule filtracyjnej zwilżonej roztworem kwasu giberelinowego (1000 mg. L−1), aby przerwać spoczynek (Rysunek 2D). Inkubuj nasiona przez 24 godziny.
- Przenieś nasiona R. acris na bibułę filtracyjną zwilżoną wodą demineralizowaną (VE) aż do kiełkowania. Gdy nasiona osiągną stadium korzonków, nakłuj sadzonki na specyficznym dla działki podłożu glebowo-piaskowym (3:1) na przygotowanych płytkach wielodoniczkowych za pomocą pęsety ze stali sprężynowej.
- Na żądanie podlewaj wszystkie rośliny wodą dejonizowaną i trzymaj je w szklarni do czasu transportu do iDiv Ecotron (Rysunek 2E-H)
- Określ kolejność siewu na podstawie czasu kiełkowania specyficznego dla gatunku w następujący sposób:
- Kampania sadzenia (maj 2022)
- Zaprojektuj indywidualne schematy sadzenia dla wszystkich monolitów glebowych o następujących cechach:
- Zapewnienie zrównoważonej liczby osobników przypadających na gatunek w zbiorowiskach roślinnych.
- Zachowaj odległość 6 cm między każdą rośliną a jej sąsiadem.
- Losowo dobieraj wzorzec sadzenia w różnych ekojednostkach, ale utrzymuj go na stałym poziomie w podjednostkach.
- Użyj specjalnie przygotowanego szablonu do sadzenia, aby zaznaczyć dokładną pozycję każdej rośliny indywidualnie na monolitach gleby. Do znakowania używaj różnokolorowych plastikowych wykałaczek, przypisując każdemu gatunkowi określony kolor. Po zaznaczeniu usuń szablon (Rysunek 2I).
- Posadź wstępnie wyhodowane rośliny na wszystkich monolitach glebowych w ciągu jednego tygodnia za pomocą sadzarek cebulowych o średnicy 4 cm (łącznie 5280 osobników roślin; Rysunek 2J).
- Zaprojektuj indywidualne schematy sadzenia dla wszystkich monolitów glebowych o następujących cechach:
3. Przebieg eksperymentu
- Trzytygodniowa faza ustanawiania (maj 2022 r.):
- Wymień wszystkie osobniki, które nie przeżyły kampanii sadzenia, w ciągu 2 tygodni od pierwszego sadzenia (n = 124 [2,35%]).
- Włącz światła i ustaw reżim oświetlenia na 16/8 godzinny cykl dnia i nocy. Aby odtworzyć regionalną długość dnia późną wiosną i latem na początku eksperymentu, symuluj zmierzch, przyciemniając światła od 100% do 75% intensywności w ciągu jednej godziny, a następnie do 0% w ciągu następnej godziny (intensywność 100%: ~370 μmol/(m²·s)). Symuluj świt, odwracając ten wzorzec ściemniania.
- Wyrównaj wilgotność górnej warstwy gleby do 20% (± 3%) objętościowo za pomocą zestawu do pomiaru wilgotności gleby.
- Ustaw początkowe nawadnianie na 450 ml co 12 godzin dla każdej podjednostki.
- Podłącz czujniki powietrza i gleby, aby monitorować temperaturę i wilgotność podczas całego eksperymentu.
- Faza eksperymentalna (czerwiec-październik 2022)
- Podążając za naturalną sezonowością, skracaj długość dnia o pełną godzinę co 2 tygodnie od sierpnia do października, aby uwzględnić regionalną długość dni od późnego lata do jesieni.
- Zwiększ początkowe nawadnianie do 650 ml co 12 godzin w lipcu i 750 ml co 12 godzin w sierpniu, dostosowując się do zapotrzebowania roślin na wodę.
- Stale usuwaj niechciane sadzonki na etapie liścienia za pomocą pęsety, aby utrzymać gęstość roślin, jednocześnie minimalizując zakłócenia struktury gleby.
- Zgodnie ze standardem gospodarowania dla łąk ekstensywnie użytkowanych należy wykonać dwa zbiory biomasy nadziemnej, przycinając rośliny nożyczkami na wysokość 3 cm nad powierzchnią gleby.
Wyniki
Aby uzyskać wstępne informacje na temat skuteczności tego podejścia w badaniu niezależnych i interaktywnych efektów historii roślin i gleby na relacje między różnorodnością biologiczną a funkcjonowaniem ekosystemu, najpierw oceniliśmy zdjęcia dwóch reprezentatywnych jednostek EcoUnits po 3-tygodniowej fazie ustanawiania eksperymentu JenaTron, podczas której efekty zabiegów szybko stały się widoczne (Rysunek 3). Oprócz różnic specyficznych dla zabiegu w wysokości i kolorze społeczności roślinnej (Rysunek 3A), zauważyliśmy dodatkowo różnice specyficzne dla zabiegu w czasie kwitnienia R. acris. Konkretnie, rośliny wyhodowane z nasion bez historii roślinnej wydawały się mieć wcześniejszy początek kwitnienia niż rośliny wyhodowane z nasion z historią roślinną specyficzną dla społeczności eksperymentu Jena (Rysunek 3B).
Aby ocenić, czy nowo utworzone zbiorowiska w iDiv Ecotron wiernie odzwierciedlają pierwotne zbiorowiska polowe, przeprowadzono analizę porównawczą wysokości wegetatywnej poszczególnych gatunków roślin jako wskaźnika końcowego rozwoju roślin pomiędzy eksperymentem JenaTron a działkami TBE. W eksperymencie JenaTron wysokość roślin określono jako średnią wartość najwyższego liścia wegetatywnego trzech osobników każdego gatunku roślin w każdej z 24 zbiorowisk i kombinacji zabiegów bezpośrednio przed pierwszą kampanią zbiorów pod koniec lipca 2022 roku. W TBE wysokość wegetatywna roślin została określona jako średnia wartość najwyższego liścia wegetatywnego trzech osobników każdego gatunku roślin na działce w lipcu 2012 roku. Pomiary wysokości roślin z iDiv Ecotron wykazują silną korelację z pomiarami z polowych działek eksperymentu Jena (Rycina uzupełniająca 1).
Aby zapewnić dodatkowe studium przypadku dla analizy danych, szczegółowo zbadano wegetacyjną wysokość roślin w iDiv Ecotron. Skupiono się na analizach na poziomie gatunków i społeczności oraz przetestowano, czy historia roślin, historia gleby i różnorodność roślin wpływają na wegetacyjny wzrost roślin. W tym celu zastosowano liniowe modele mieszane (LMM), a wyniki podsumowano za pomocą analizy ANOVA (suma kwadratów typu I; szczegółowe wyniki ANOVA znajdują się w Tabeli uzupełniającej 1). Na poziomie działek zmiennymi odpowiedzi były średnia wegetacyjna wysokość roślin oraz współczynnik zmienności wysokości roślin (CV = sd/mean 100). Efekty stałe obejmowały różnorodność roślin (ilościową), warianty historii roślin i gleby oraz ich interakcje. Efekty losowe obejmowały EcoUnit zagnieżdżone w bloku hali Ecotron. Na poziomie gatunków dodatkowo włączono do efektów stałych gatunki oraz ich interakcję z różnorodnością roślin i wariantami historii. Transformacje danych (logarytmiczna dla wysokości roślin i pierwiastkowa dla współczynnika zmienności CV) zapewniły spełnienie założeń modelu. Analizy przeprowadzono przy użyciu programu R (Wersja 4.3.1)42 oraz pakietu nlme dla modeli LMM43. Wyniki wykazały istotne różnice międzygatunkowe w wysokości roślin, przy czym trawy były wyższe od roślin zielnych (Rysunek 4, Rysunek uzupełniający 2). We wszystkich gatunkach historia gleby miała pozytywny wpływ na wysokość roślin (F(1,66) = 11.11, P = 0.001), podczas gdy historia roślin i różnorodność nie miały istotnego wpływu (odpowiednio F(1,66) = 0.22, P = 0.64 oraz F(1,17) = 1.52, P = 0.23; Rysunek 4). Na poziomie społeczności różnorodność roślin nie miała wpływu na wysokość (F(1,17) = 0.01, P = 0.91; Rysunek 5A), ale istotnie zwiększyła CV wysokości roślin w obrębie społeczności (F(1,17) = 14.29, P = 0.002; Rysunek 5B). Nie stwierdzono istotnego wpływu historii roślin ani gleby na CV wysokości roślin (F(1,68) = 0.55; P = 0.46; F(1,68) = 0.09, P = 0.76; Rysunek 5). Dane oraz skrypt R zostały przesłane do bazy danych Jena Experiment (https://doi.org/10.25829/QN9R-J839).

Rycina 1: Konfiguracja eksperymentu JenaTron. (A) Historię gleby (SH) ustalono poprzez wydobycie 96 nienaruszonych monolitów glebowych z eksperymentu w Jenie (JE), z czego połowa (n = 48) pochodziła z 23 poletek, w których przez 12 lat utrzymywała się specyficzna dla danego poletka społeczność roślinna (+SH), natomiast druga połowa (n = 48) pochodziła z czterech poletek z gołą ziemią, które pozostawały wolne od roślinności od początku eksperymentu w Jenie w 2002 roku (-SH). (B) Historię roślin (PH) ustalono, wykorzystując dwa źródła nasion dla każdego z sześciu gatunków roślin: nasiona zebrane z roślin rosnących od 2010 roku na tych samych poletkach, z których wydobyto monolity w eksperymencie w Jenie (+PH), oraz oryginalne nasiona, których użyto do wysiewu tych społeczności w terenie w 2010 roku (-PH). (C) Historię roślin i historię gleby krzyżowano niezależnie dla każdego składu na różnych poziomach różnorodności roślin (1, 2, 3 i 6), co doprowadziło do zastosowania czterech wariantów w każdej jednostce EcoUnit w iDiv Ecotron: (1) +SH/+PH, (2) +SH/-PH, (3) -SH/+PH oraz (4) -SH/-PH. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.

Rycina 2: iDiv Ecotron w Stacji Badawczej Centrum Badań nad Środowiskiem Helmholtz (UFZ) w Bad Lauchstädt w Niemczech. (A) Sprzęt do wydobywania monolitów glebowych w terenie, (B) Wydobywanie monolitów glebowych w terenie, (C) Wykop w terenie, (D) Przygotowanie materiału nasiennego Ranunculus acris w płytkach Petri na papierze filtracyjnym zwilżonym roztworem kwasu gibberelowego w szklarni, (E) Uprawa wstępna roślin w podłożu glebowym specyficznym dla danej działki w płytkach wielokomorowych w szklarni, (F) Jednostki EcoUnits w hali iDiv Ecotron, (G) Schematyczne przedstawienie jednej jednostki eksperymentalnej („EcoUnit”) z wyposażeniem technicznym (zaadaptowane z Eisenhauer et al. (2019)23 i Schmidt et al. (2021)38), (H) Płytki ze wszystkimi osobnikami do zasadzenia w eksperymencie JenaTron po transporcie do iDiv Ecotron, (I) Specyficzne dla gatunku oznakowanie pozycji sadzenia dla wszystkich osobników roślin na monolicie glebowym z wykorzystaniem szablonu do sadzenia, (J) Sadzenie osobników roślin na monolicie glebowym przy użyciu sadzarek do cebul, (K) Cztery lizymetry w jednostce EcoUnit ze ścianami wewnętrznymi. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.

Rycina 3: Dwa reprezentatywne EcoUnity z 24 jednostek, z których każda zawiera jedną społeczność dla wszystkich kombinacji zabiegów dotyczących roślin i historii gleby. (A) EcoUnit z mieszanką 3 gatunków (A. odoratum, H. lanatus oraz P. lanceolata) z różnicami w wysokości i kolorze wegetacji społeczności, zależnymi od zastosowanego zabiegu. (B) EcoUnit z monokulturą R. acris, wykazująca różnice w czasie kwitnienia, zależne od historii roślin. Kliknij tutaj, aby zobaczyć powiększoną wersję tej ryciny.
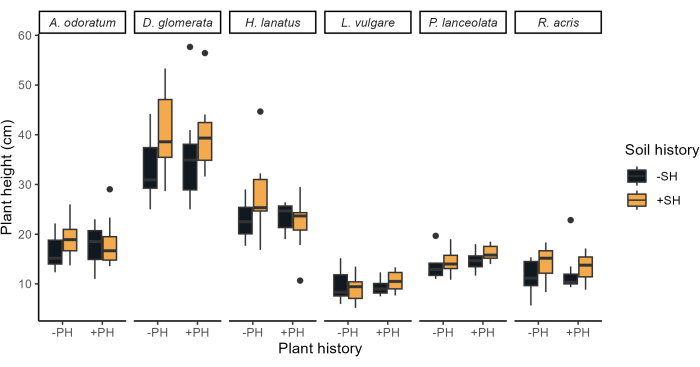
Rysunek 4: Wpływ historii roślin i gleby na wysokość wegetatywną (cm) sześciu gatunków roślin trawiastych przed pierwszym zbiorem w lipcu 2022 r. Gatunki wymieniono alfabetycznie w obrębie grup funkcjonalnych (trawy, a następnie rośliny zielne). Warianty historii roślin (+PH/-PH) znajdują się na osi x, a historia gleby (+SH/-SH) jest oznaczona kolorami (żółty/czarny) na wykresach pudełkowych. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
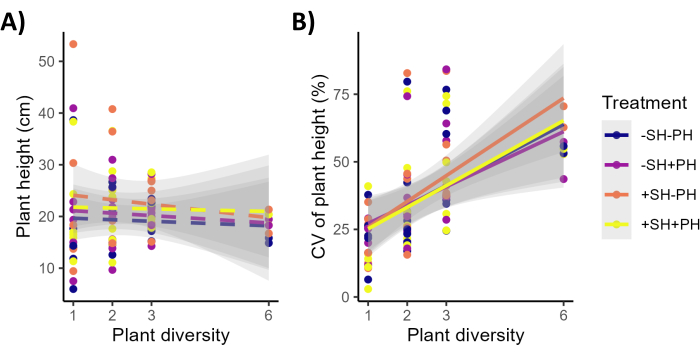
Rysunek 5: Wpływ bogactwa gatunkowego na średnią i zmienność wysokości roślin wegetacyjnych w obrębie zbiorowości. (A) Średnia dla zbiorowości. (B) Zmienność wysokości roślin wegetacyjnych. (+PH/-PH) dla historii roślin, (+SH/-SH) dla historii gleby. Zmienność wysokości roślin (CV) przedstawiono dla każdej podjednostki. Linie przerywane reprezentują efekty nieistotne, a linie ciągłe reprezentują istotne efekty różnorodności roślin. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Tabela 1. Społeczności roślinne w eksperymencie JenaTron. Monokultury wszystkich wybranych gatunków roślin (n = 6); mieszanki 2-gatunkowe (n = 9); mieszanki 3-gatunkowe (n = 7), wszystkie o różnym składzie; oraz dwie identyczne powtórki mieszanki 6-gatunkowej (n = 2). Kliknij tutaj, aby pobrać tę tabelę.
Rycina uzupełniająca 1: Średnia wysokość roślin poszczególnych gatunków. Średnia wysokość roślin poszczególnych gatunków w działkach eksperymentu (A) JenaTron (lipiec 2022) oraz w polowych działkach (B) TBE (lipiec 2012). W panelu A uwzględniono wyłącznie dane z wariantów z historią roślin i historią gleby. Istnieje istotna korelacja między wysokością roślin w eksperymencie JenaTron a w działkach polowych (korelacja Pearsona r(49) = 0,45, p = 0,0008). Kliknij tutaj, aby pobrać ten plik.
Rycina uzupełniająca 2: Wpływ zabiegów historii roślin i gleby na wysokość wegetatywną (cm) sześciu gatunków roślin przy różnych poziomach różnorodności roślin (SR). Symbole w legendzie +PH i -PH reprezentują zabiegi z historią roślin i bez historii roślin, natomiast +SH i -SH oznaczają odpowiednio zabiegi z historią gleby i bez historii gleby. Kliknij tutaj, aby pobrać ten plik.
Tabela uzupełniająca 1: Wyniki analizy ANOVA z liniowych modeli mieszanych oceniających wpływ różnorodności roślin (bogactwo gatunkowe, SR), historii gleby (SH) oraz historii roślin (PH) na wysokość roślin zarówno na poziomie gatunkowym, jak i poziomie działek. Dla każdego czynnika podano wartości F i wartości p. Uwaga: numDF i denDF oznaczają odpowiednio stopnie swobody licznika i mianownika dla każdego członu modelu. Wartości p < 0,05 wskazują na statystycznie istotny wpływ na wysokość roślin. Prosimy kliknąć tutaj, aby pobrać ten plik.
Tabela uzupełniająca 2: Pomiary nadziemne i podziemne, zmienne odpowiedzi oraz metody. Zakres pomiarów nadziemnych i podziemnych, zmiennych odpowiedzi oraz metod przeprowadzonych w ramach eksperymentu JenaTron w celu zbadania niezależnych i interaktywnych efektów historii roślin oraz historii gleby na relacje BEF dla ekosystemów jako całości. Kliknij tutaj, aby pobrać ten plik.
Dyskusja
Dzięki eksperymentowi JenaTron zapewniamy komplementarne podejście eksperymentalne do stanowiska terenowego32,33 w Jena Experiment, aby poszerzyć nasze mechanistyczne zrozumienie zależności BEF. Eksperyment polowy pozwala na badanie długoterminowego wpływu historii gleby i historii roślin na funkcjonowanie ekosystemu w realistycznych warunkach środowiskowych, z dużymi, niezakłóconymi powierzchniami pozwalającymi na wielokrotne pomiary przez wiele lat. Losowo wybrane kombinacje gatunków roślin z dużej puli gatunków wzdłuż dobrze ustalonego gradientu różnorodności roślin z monokultur do 60 gatunków pomagają zidentyfikować wpływ na różnorodność poprzez wykluczenie skutków specyficznych dla gatunku w jak największym stopniu32,33. Doświadczenie polowe, odnoszące się tutaj wyraźnie do "doświadczenia ΔBEF" jako części doświadczenia z Jeny (więcej szczegółów można znaleźć w Vogel i in. (2019)29), jest jednak ograniczone w badaniu historii gleby i historii roślin całkowicie niezależnych od siebie i od potencjalnych wpływów różnych czynników zewnętrznych, takich jak wahania pogody, zakłócenia naturalne, i interakcje z innymi organizmami29. W tym momencie komplementarne podejście polegające na wykorzystaniu eksperymentów Ecotron staje się przedmiotem badań BEF. Eksperymenty Ecotron stanowią ważne ogniwo między małymi, krótkoterminowymi eksperymentami mikrokosmicznymi, w których bada się tylko kilka lub nawet tylko jeden gatunek, a tym samym zmniejsza się wysoka złożoność eksperymentów terenowych, a nawet w świecie rzeczywistym34,38. W związku z tym głównym celem eksperymentów Ecotron nie jest naśladowanie pełnej złożoności natury, ale raczej stworzenie uproszczonych, ale biologicznie znaczących ekosystemów. Pozwala to lepiej zrozumieć wiele, ale oczywiście nie wszystkie, procesów biologicznych i interakcji, które zachodzą w świecie rzeczywistym34,37. Co więcej, zamknięte systemy Ecotrona pozwalają na badanie strumieni i procesów, które często nie mogą być łatwo zbadane w terenie35.
W poprzednich badaniach wykorzystano różne modyfikacje techniki eksperymentalnej, co podkreśla znaczące zdolności adaptacyjne obiektu iDiv Ecotron. Na przykład eksperyment 44 "Insect Armageddon"44, przeprowadzony w 2018 r., obejmował rekonfigurację EcoUnits poprzez usunięcie nadziemnych ścian wewnętrznych i rozwarstwienie pod ziemią za pomocą stalowych cylindrów. Zamiast tego podziemne pojemniki zostały w całości wypełnione mieszanką gleby i piasku, co ułatwiło tworzenie zbiorowisk trawiastych obejmujących 12 europejskich gatunków roślin na powierzchni gleby wynoszącej 1,5m2 na ekojednostkę. Ten eksperymentalny projekt pozwolił na wprowadzenie dwóch odrębnych poziomów liczebności bezkręgowców nadziemnych, co umożliwiło naukowcom zbadanie wpływu spadku biomasy bezkręgowców na funkcje i usługi ekosystemowe w ekosystemach trawiastych Europy Środkowej. Innym obrazowym przykładem jest eksperyment "EcoLux" przeprowadzony w 2020 r., w którym zademonstrowano modyfikację reżimu świetlnego w celu zbadania wpływu zanieczyszczenia światłem w nocy na różnorodność i wydajność roślin45 , a także jego wpływu na zbiorowiska i funkcje glebowe46 . Patrząc w przyszłość, potencjał dalszych modyfikacji pozostaje znaczny. Nadchodzący eksperyment "ResCUE", zaplanowany na 2026 rok, ma na celu zbadanie relacji między różnorodnością roślin a stabilnością ekosystemu w warunkach ekstremalnych warunków klimatycznych26. W tym eksperymencie zostanie wdrożona standaryzowana gorąca susza, stan środowiskowy trudny do odtworzenia w warunkach naturalnych, poprzez symulację zmniejszonej ilości opadów wraz ze wzrostem temperatury w gradiencie różnorodności roślin trawiastych ustalonym w iDiv Ecotron. Badania skupią się na ocenie odporności i odbudowie wielu funkcji ekosystemu w odpowiedzi na kontrolowane ekstremalne zdarzenie klimatyczne26.
Wykorzystanie obiektów Ecotronu do łączenia eksperymentów terenowych z eksperymentami mikrokosmicznymi na małą skalę wiąże się jednak również z ograniczeniami, takimi jak w większości wciąż stosunkowo niewielka skala przestrzenna, niewielka liczba powtórzeń, mniejsza złożoność biologiczna i brak reprezentacji naturalnej zmienności klimatycznej37. Co więcej, instalacja iDiv Ecotron nie jest w stanie symulować wszystkich rodzajów scenariuszy klimatycznych, takich jak zimy, co ogranicza jej zdolność do badania pojedynczych roślin w realistycznym cyklu rocznym przez kilka pokoleń. Stąd, jak wspomniano wcześniej, bardzo ważne jest, aby traktować badania Ecotron jako uzupełniające podejścia badawcze, które ostatecznie muszą być rozpatrywane w połączeniu z wynikami innych podejść eksperymentalnych37. Niemniej jednak obiekt iDiv Ecotron oferuje nam wyjątkową możliwość badania nienaruszonych monolitów glebowych w kontrolowanych warunkach środowiskowych, ortogonalnego krzyżowania roślin o różnych historiach specyficznych dla zbiorowisk roślinnych z glebami o różnych historiach specyficznych dla zbiorowisk roślinnych oraz badania ich wpływu na funkcjonowanie ekosystemu wzdłuż gradientu różnorodności roślin, co jest trudne do osiągnięcia w warunkach polowych23. Lokal mieszkalny 35. Dodatkowo technika ta pozwala na badanie roślin jako całości, zarówno naziemnych, jak i podziemnych, w kontrolowanych warunkach środowiskowych, co nie jest łatwo osiągalne w terenie. Wreszcie, w eksperymencie JenaTron, zasadzone (a nie zasiane) zbiorowiska roślinne zostały ustanowione, aby zapewnić równe całkowite zagęszczenie roślin, przy czym każdy gatunek był reprezentowany w równych proporcjach. Natomiast w zbiorowiskach zasiewanych gatunki często osiedlają się w różnym tempie, a niektóre gatunki docelowe mogą całkowicie nie zadomowić się lub mogą pozostać w bardzo niskiej liczebności.
Aby zapewnić odtwarzalność przedstawionego protokołu, podczas jego realizacji należy skrupulatnie rozważyć kilka krytycznych etapów: (1) Wykopaliska monolitu glebowego: Jedną z kluczowych zalet obiektu iDiv Ecotron jest jego zdolność do ustanowienia znacznej liczby powtórzeń nienaruszonych monolitów glebowych w kontrolowanych warunkach środowiskowych. Aby zapewnić integralność monolitów glebowych, konieczne jest utrzymanie optymalnych warunków polowych do ekstrakcji monolitu glebowego. W szczególności nadmierna wilgotność gleby może prowadzić do zagęszczenia słupa gleby, podczas gdy gleby, które są zbyt suche lub zamarznięte, mogą powodować powstawanie pęknięć. W przypadkach, gdy monolit jest zagrożony z powodu tych czynników, należy go wyrzucić, co wymaga powtórzenia procesu wykopalisk. (2) Dobór gatunków: W opisanym protokole wykorzystano sześć gatunków roślin trawiastych z KZM, które zostały wybrane na podstawie pokrywania się z głównym eksperymentem, zrównoważonej reprezentacji traw i traw trawiastych oraz możliwości zbadania różnych strategii wykorzystania zasobów (np. fenologii roślin)41. W przypadku eksperymentu dotyczącego różnorodności biologicznej sześć gatunków to niska liczba gatunków, a wybór innych gatunków posiadających inne kombinacje cech może prowadzić do różnych wyników eksperymentalnych i musi być dokładnie rozważony. (3) Zagęszczenie roślin i równe proporcje wszystkich gatunków: Godną uwagi zaletą zestawu JenaTron Experiment jest to, że zbiorowiska roślinne są tworzone z równym całkowitym zagęszczeniem roślin i że każdy gatunek jest reprezentowany przez tę samą liczbę osobników. Zapewnienie stałego zagęszczenia roślin i równych proporcji sadzenia ma kluczowe znaczenie dla odtwarzalności doświadczalnej, ponieważ zapobiega efektom zakłócającym związanym z różnicowym zadomowieniem się poszczególnych gatunków. W związku z tym precyzyjna kontrola zagęszczenia roślin jest niezbędna do zachowania projektu eksperymentalnego i zapewnienia wiarygodnych wyników.
Po rozpoczęciu eksperymentu JenaTron zgodnie z protokołem, ze szczególnym naciskiem na rozważenie wymienionych najbardziej krytycznych kroków, szybko pojawiły się dostrzegalne efekty leczenia na wysokość, kolor i czas kwitnienia zbiorowisk roślinnych. Późniejsze analizy porównawcze wysokości roślin wegetatywnych dla poszczególnych gatunków między JenaTron i TBE wyraźnie potwierdziły, że zbiorowiska założone w iDiv Ecotron rzeczywiście przypominają pierwotne zbiorowiska na polu. Aby dodatkowo zapewnić studium przypadku do analizy danych, przeanalizowaliśmy bardziej szczegółowo wysokość roślin wegetatywnych w eksperymencie JenaTron. Analizy wysokości roślin wegetatywnych w JenaTron dla poszczególnych gatunków potwierdziły pomyślne zadomowienie się wszystkich gatunków docelowych i ujawniły znaczące różnice między gatunkami i grupami funkcjonalnymi. Wynik ten jest oczekiwany, ponieważ wiadomo, że trawy rosną wyższe niż inne grupy funkcjonalne w eksperymencieJena 47. Wykryto znaczący pozytywny wpływ historii gleby na wszystkie gatunki, co wskazuje, że wcześniejsze warunki glebowe kształtują wzrost roślin w Ecotronie, potencjalnie napędzany przez dodatnie efekty sprzężenia zwrotnego z gleb, które wcześniej były siedliskiem zbiorowisk roślinnych (niezależnie od poziomu różnorodności) oraz negatywne sprzężenie zwrotne z gleb pozbawionych roślinności. Wydaje się, że właściwości biotyczne i abiotyczne historii gleb różnią się, co daje roślinom w glebach o historii specyficznej dla społeczności roślinnej przewagę nad roślinami w glebach bez takiej historii, ponieważ wysokość roślin odgrywa ważną rolę w ich zdolności do konkurowania o światło, a zatem jest istotną cechą dla przyrostu węgla48. Nie stwierdzono natomiast istotnego wpływu historii roślin specyficznej dla zbiorowiska roślinnego na średnią wysokość wegetatywną, co sugeruje, że właściwości gleby mogą mieć silniejszy wpływ niż źródła nasion w warunkach środowiskowych Ecotronu. Hipoteza ta musi jednak zostać przetestowana w sposób holistyczny, badając mnogość funkcji ekosystemu, które zostały zmierzone w eksperymencie JenaTron.
Ani analizy dotyczące poszczególnych gatunków, ani społeczności nie dostarczyły dowodów na to, że bogactwo gatunkowe wpływa na średnią wysokość roślin wegetatywnych, co kontrastuje z wcześniejszymi wynikami eksperymentu polowego, w którym wysokość roślin wzrastała wraz z wyższymi gatunkami 49, prawdopodobnie z powodu silniejszej konkurencji światła47,50. Większa komplementarność między gatunkami w bardziej zróżnicowanych zbiorowiskach może prowadzić do większego zagęszczenia roślin51, potencjalnie dodatkowo zwiększając wzrost wysokości roślin52. Brak wpływu różnorodności roślin na wysokość roślin w eksperymencie JenaTron może zatem wynikać z braku zależnej od różnorodności biologicznej zmienności gęstości roślin, co wskazuje na potencjalne znaczenie tego mechanizmu dla zależnej od różnorodności wydajności poszczególnych roślin w świecie rzeczywistym52. Niemniej jednak bogactwo gatunkowe miało znaczący wpływ na wysokość roślin CV, co sugeruje, że różnorodność roślin zwiększa złożoność strukturalną roślinności, zgodnie z badaniami łączącymi różnorodność z bardziej złożonymi koronami nadziemnymi 49,50,52,53,54.
Podsumowując, wyniki potwierdzają pomyślne ustanowienie docelowych metod leczenia w ramach eksperymentu JenaTron, dostarczając pierwszych informacji na temat skuteczności naszego podejścia poprzez szybką manifestację znaczących efektów leczenia (Ryc. 3, Ryc. 4 i Ryc. 5). Dodatkowo, analiza porównawcza wysokości roślin wegetatywnych specyficznych dla danego gatunku wskazuje, że nowo powstałe zbiorowiska w iDiv Ecotron rzeczywiście przypominają pierwotne obserwacje terenowe. Szczegółowa analiza wysokości roślin wegetatywnych służy jako studium przypadku do analizy danych i wizualizacji zmiennych pojedynczej odpowiedzi. Jednak to studium przypadku podkreśla ograniczenia związane ze skupieniem się na pojedynczej zmiennej odpowiedzi w holistycznym podejściu do nadrzędnej hipotezy, niezależnie od tego, czy wzmacniający się związek między różnorodnością biologiczną a funkcjonowaniem ekosystemu w czasie wynika z historii gleby, historii roślin, czy też z połączenia obu. Podkreśla to znaczenie naszego podejścia opartego na współpracy do badania niezależnego i interaktywnego wpływu historii roślin i historii gleby na relacje między BEF23. Jedenaście podprojektów Jena Experimental Research Unit (FOR 5000) ściśle współpracowało ze sobą w eksperymencie JenaTron, mierząc szeroki zakres zmiennych odpowiedzi w różnych obszarach badawczych, takich jak mikrobiologia, ekologia chemiczna, fenologia, wykrywanie proksymalne, genetyka, epigenetyka, ekologia gleby i modelowanie sieci pokarmowej. Ten integracyjny wysiłek ma na celu (1) oddzielenie wpływu historii roślin od wpływu historii gleby na wielu poziomach troficznych i funkcji ekosystemu, (2) zbadanie specyficznych dla gatunków roślin i specyficznych dla interakcji skutków na wszystkich poziomach bogactwa gatunkowego roślin oraz (3) zbadanie mechanizmów leżących u podstaw relacji BEF23 (Tabela uzupełniająca 249, 50,55,56,57, 58,59,60,61,62,63,64,65,66,67,68,69,70,71,72,
73,74,75,76,77,78,79,80,81,82,83,84).
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Wyjątkowe podziękowania dla L. Boockmanna, T. Meiera, N. Naderi i L.-M. Walterowi za ich wsparcie jako asystentów badawczych przez cały czas trwania eksperymentu JenaTron. Serdeczne podziękowania dla wszystkich pracowników firmy Umwelt-Geräte-Technik GmbH (UGT) za profesjonalną i serdeczną współpracę podczas wykopalisk monolitu glebowego w Jena Experiment. Chcielibyśmy również podziękować C. Lauterwasserowi, H.-C. Schulz i R. Widuwils za wsparcie UGT w wykopach monolitów gruntowych. Serdeczne podziękowania kierujemy do personelu technicznego Jena Experiment S. Eismann, F. Freter, G. Kratzsch, U. Köber, K. Kunze i H. Scheffler za ich wsparcie w terenie i sumienną pomoc podczas akcji sadzenia w iDiv Ecotron. Jesteśmy wdzięczni I. Merbachowi i personelowi technicznemu Stacji Badawczej Centrum Badań Środowiskowych im. Helmholtza (UFZ) w Bad Lauchstädt, a w szczególności O. Bednorzowi i K. Kirschowi za ich niezbędne wsparcie. Pragniemy podziękować A.Q. Barthowi i R. Altmannowi za ich doskonałą współpracę w szklarni iDiv. Serdeczne podziękowania dla S. Haenzela, A. Lochnera i A. Zeunera za ich nieodzowną pomoc w pracach administracyjnych, organizacyjnych i laboratoryjnych. Dziękujemy stypendystom Mercatora: J. Cavenderowi-Baresowi, F. Isbellowi, L. Mommerowi i K. Muellerowi, a także bliskiemu współpracownikowi B. Schmidowi i głównym badaczom: U. Brose'owi, H. Schielzethowi, N. van Damowi, W.W. Weisserowi, C. Wirthowi i J. Wolfowi za ich ważny wkład w koncepcję, projekt i realizację eksperymentu JenaTron. Na koniec dziękujemy Niemieckiej Fundacji Badawczej (DFG) za wsparcie finansowe (FOR 5000), a także Niemieckiemu Centrum Integracyjnych Badań nad Bioróżnorodnością (iDiv, finansowane przez Niemiecką Fundację Badawczą [DFG-FZT 118, 202548816]), Uniwersytetowi w Lipsku, Uniwersytetowi Friedricha Schillera w Jenie oraz Instytutowi Biogeochemii Maxa Plancka w Jenie za wsparcie finansowe i logistyczne.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Sadzarka do cebulek ( Średnica 4 cm) | Kent & Sklep z narzędziami Stowe | https://www.bauhaus.info/gartenhandgeraete/kent-stowe-hand-blumenzwiebelpflanzer/p/27516825?cid=SSAGoo 8995092923_90652787883& _ źródło=1& gclid=CjwKCAiAqNSs BhAvEiwAn_tmxcMcdbxDo72K6g O6FX7hNePwWoc_8JIcgwA4qrY sbv-diJjHf_osDhoCXxEQAvD_BwE | |
| Łącznik świecy ssącej | Umwelt Gerä te Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| Taca uprawowa ( bez drenażu) | Bonsai-shopping | 59000/5-m.D._1 | https://www.bonsai-shopping.eu/Anzuchtschale-59000-5er.html |
| Woda demineralizowana (VE) | Alfiltra | VEWA1000B | https://www.alfiltra.de/zubehoer/1000-liter-ve-wasser-im-ibc-behaelter |
| Taśma klejąca | T-Rex | sklep z narzędziami | https://www.bauhaus.info/panzertape/t-rex-gewebeband/p/25421491?cid=SSAGoo8843016955_1500 14388930& _source=1& gclid= CjwKCAiAqNSsBhAvEiwAn_tmxX 5KDl2CRPyAgi7nx2ILVTSy7dUfNY 2DvvCi0ZvtnU8opjA-stwmvRoCflwQAvD_BwE |
| iDiv Ecotron | iDiv | n.a.https://www.idiv.de/en/research/platforms-and-networks/idiv-ecotron.html | |
| Pojemniki plastikowe (20 L) | Auer Packaging | EG 43/22 HG | https://www.auer-packaging.com/de/de/Eurobeh%C3%A4lter-geschlossen/EG-4322-HG.html?customer_type=private&_source =1& gclid=Cj0KCQjw4Oe4BhCc ARIsADQ0csk38dwQfgiSU63e KE-xapuDT3f2f6EpzwKCJdjknbGP NbEwv4iOg0YaApUKEALw_wcB |
| Bibuła filtracyjna (średnica 150 mm) | Labsolute | 7697996 https://www.thgeyer.com/lab/shop/qualitativ-rundfilter-sorte-2005/labsolute-/7697990_de?variant=7697996 | |
| Wózek widłowy | hirsch | NEW-10084 | https://www.hirsch.expert/elektro-gabelstapler-2-tonnen_1794_13098/?_source=1&gclid=Cj0KCQjw4O e4BhCcARIsADQ0csmqfjWn 46WlTGVGnZDoDv4WkqUh WT0eYrsGnvIWcjemrOYCp 3c3QC4aAn3WEALw_wcB |
| Kwas giberelinowy ( 90%) | Rotichrom | 7697996 | https://www.carlroth.com/de/de/weitere-vergleichssubstanzen/gibberellinsaeure/p/7464.2 |
| Dzbanki miarowe ( 3000 mL) | Hü Nersdorff | Sklep z narzędziami | https://www.hornbach.de/p/messkanne-3000-ml-huenersdorff/6481831/ |
| Dzbanki miarowe ( 5000 mL) | Hü Nersdorff | Sklep z narzędziami | https://www.hornbach.de/p/messkanne-5000-ml-huenersdorff/6481832/ |
| Sita metalowe (rozmiar oczek 4 mm) | Blau-Metall | 711082 | https://analysensiebe.de/shop/produkt/analysensieb-400-maschenweite-2000/ |
| Minikoparka | Zeppelin Cat | ZCS196577 | https://www.zeppelin-cat.de/shop/produkte/minibagger-kaufen/cat-301-8-minibagger-inkl-loeffel-und-schnellwechsler/?srsltid=AfmBOoqOG9_VONO0EmP K0GAYEr1onMxM-v3YyM 14hZFK0i9YHXJ_0ddggcs |
| Wanny z zaprawą ( 90 L) | Sklep z narzędziami | Gripline | https://www.hornbach.de/p/moertelkuebel-pe-eckig-78-5-x-46-3-x-31-0-cm-90-l/274293/ |
| Talerze wielogarnkowe (QuickPotPlates - QP 96T) | Herkuplast | 741238 | https://www.meyer-shop.com/product/view/37052?variantProductId=29253 |
| szalki Petriego (średnica 150 mm) | 7696412 https://www.thgeyer.com/lab/shop/petrischalen-ps-mit-nocken--aseptis/labsolute-/7696390_de?variant=7696412 | ||
| Szablon do sadzenia (na zamówienie) | UFZ | n.d. | Szablon do sadzenia wyprodukowany przez warsztat Centrum Badań Środowiskowych im. Helmholtza (UFZ), Lipsk, Niemcy, specjalnie do sadzenia metalowych cylindrów iDiv Ecotron. |
| Folia plastikowa | Punkt ładunkowy sklep z narzędziami | https://www.hornbach.de/p/cargo-point-stretchfolie-0-50-x-300-m-20/7152950/ | |
| Łopaty plastikowe | Hü Nersdorff | Sklep z narzędziami | https://www.hornbach.de/p/abfuellschaufel-huenersdorff-1390-ml/6481824/ |
| Opryskiwacz ciśnieniowy (1500 mL) | Bü rkle | 9223162 | https://shop.thgeyer-lab.com/erp/catalog/search/search.action?model.query=9223162 |
| Proszek kwarcowy | Quarzsande | n.a.https://quarzsand-shop.de/p/quarzmehl-25-kg-papier-sack-feinpulverig?srsltid=AfmBOoptmSFCMO-9KTIKo< | br/> StSkd6aV2OobmBa2__ UUcpYHXJisHGdq0JG |
| Piasek kwarcowy HQS (rozmiar 0,3 - 0,8 mm) | Quanzsande | WMQ-10040 | https://quarzsand-shop.de/p/quarzsand-hqs?variant=1185 |
| Zaślepki | uszczelniające Umwelt Gerä te Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| Materiał siewny | Rieger-Hofmann GmbH | n.a.https://www.rieger-hofmann.de/startseite-rieger-hofmann.html | |
| Zestaw do pomiaru wilgotności gleby (ML3 ThetaKit) | Urządzenia Delta-T | ML3 ThetaKit | https://delta-t.co.uk/product/ml3/ |
| Ekstrakcja monolitu glebowego urządzenie | Umwelt Gerä te Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| Czujniki gleby ( SMT-100) | Truebner GmbH | SMT-100 | https://www.truebner.de/en/smt100.php#scroll-target |
| Pęseta ze stali sprężynowej (105 mm) | Roth | AL99.1 | https://www.carlroth.com/de/de/spezialpinzetten-wafer-hakenpinzetten/federstahlpinzette/p/al99.1 |
| Ostrze ze stali nierdzewnej (wykonane na zamówienie) | UFZ | n.a.Ostrze | stali nierdzewnej wyprodukowane w warsztacie Centrum Badań Środowiskowych Helmholtza (UFZ), Bad Lauchstä dt, Niemcy, specjalnie do wstawiania czujników gleby do metalowych cylindrów iDiv Ecotron. |
| Cylinder ze stali nierdzewnej | Umwelt Gerä te Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| Etykiety w szkle (12 cm x 2 cm) | Meyer | 160140 | https://www.meyer-shop.com/product/view/36273?variantProductId=31841 |
| Zawieszenie | Umwelt Gerä te Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| Tymczasowa płyta górna/dolna | Umwelt Gerä te Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| Wykałaczki | Bü roshop24 | 269946 | https://www.bueroshop24.de/500-papstar-party-picker-drop-kunststoff-269946?srpId=c8e0fcec04cb5e7e68a9bfe94 096a8aa& storeType=B2C& lkz= 1131602& obt=20& kwdid=54 40413105-16705681638-135 559674952-pla-32800987645 8& _source=1& gclid=CjwK CAiAqNSsBhAvEiwAn_tmxfR EZBIPohPHqFs2n6v_elmZTx L6QgkYdjBjMgZ2eYONmM05 Kielnia Iwo-CRoCfWsQAvD_BwE |
| Sklep z narzędziami | Kaufmann | https://www.hornbach.de/p/berner-edelstahl-putzkelle-kaufmann-mit-softgriff/7940328/?marketNo=566&wt_mc=de.paid.sea. google.alwayson_assortment.bod. pla.868482949.79838688391.& wt _cc1=868482949& wt_cc2=798386 88391& wt_cc3=377419910580& wt _cc4=& wt_cc6=7940328& wt_cc7= 566& _source=1& gclid=Cj0KCQ jw4Oe4BhCcARIsADQ0cslOTaWzp RLoaIVADaAOi5ZcHJEtFbKXvXJU ocTnzbhZTWgEUTlXr0waAp1q EALw_wcB | |
| Ciężarówka | Europcar | n.d.https://www.europcar.de/de-de/reservation/vehicles?utm_source=google&utm_medium | = cpc& utm_campaign& utm_term& _source=1& gclid=Cj0KCQjw4 Oe4BhCcARIsADQ0csn2Ph3mak wxbwrSHzKvJNJq9jaD-aiUvo8-4l RdCaUy8Gw_hgNW6KsaAiR2 EALw_wcB& gclsrc=aw.ds& pojazd Typ=TR& pickupLocation=ZJSC04 & dropoffLocation=ZJSC04& pickupYe ar=2024& pickupMonth=12& odbiór Dzień = 11& dropoffYear=2024& dropoff Miesiąc=12& dropoffDay=18& pickup Godzina=10& pickupMinute=00& dropoff Godzina=18& dropoffMinute=00& kierowca Wiek=26& countryOfResidence=DE |
| Pęseta | Bochem Instrumente | 9171013 | https://www.thgeyer.com/lab/shop/pinzette-105-mm-18/10-stahl/bochem-instrumente-1000/9171010_de?variant=9171013 |
| Sondy ssące do wody | Umwelt Gerä te Technik (UGT) | 1211000 | https://ugt-online.de/en/solutions/ugt-suction-probe-with-ceramic-cup/ |
| Drewno do dziennika czujnika | Konsta | sklep z narzędziami | https://www.hornbach.de/p/konsta-konstruktionsvollholz-40x60x3000-mm-fichte-nsi-nicht-sichtbarer-einbau/8465807/ |
Bibliografia
- Cardinale, B. J., et al. Biodiversity loss and its impact on humanity. Nature. 486 (7401), 59-67 (2012).
- Eisenhauer, N., et al. Chapter One - A multitrophic perspective on biodiversity-ecosystem functioning research. Adv Ecol Res. 61, 1-54 (2019).
- Reich, P. B., et al. Impacts of biodiversity loss escalate through time as redundancy fades. Science. 336 (6081), 589-592 (2012).
- Meyer, S. T., et al. Effects of biodiversity strengthen over time as ecosystem functioning declines at low and increases at high biodiversity. Ecosphere. 7 (12), e01619(2016).
- Guerrero-Ramírez, N. R., et al. Diversity-dependent temporal divergence of ecosystem functioning in experimental ecosystems. Nat Ecol Evol. 1 (11), 1639-1642 (2017).
- Huang, Y., et al. Impacts of species richness on productivity in a large-scale subtropical forest experiment. Science. 362 (6410), 80-83 (2018).
- Bongers, F. J., et al. Functional diversity effects on productivity increase with age in a forest biodiversity experiment. Nat Ecol Evol. 5 (12), 1594-1603 (2021).
- Wagg, C., et al. Biodiversity-stability relationships strengthen over time in a long-term grassland experiment. Nat Commun. 13 (1), 7752(2022).
- Lange, M., Eisenhauer, N., Chen, H., Gleixner, G. Increased soil carbon storage through plant diversity strengthens with time and extends into the subsoil. Glob Change Biol. 29 (9), 2627-2639 (2023).
- Eisenhauer, N., Reich, P. B., Scheu, S. Increasing plant diversity effects on productivity with time due to delayed soil biota effects on plants. Basic Appl Ecol. 13 (7), 571-578 (2012).
- Fornara, D. A., Tilman, D. Plant functional composition influences rates of soil carbon and nitrogen accumulation. J Ecol. 96 (2), 314-322 (2008).
- Leimer, S., et al. Mechanisms behind plant diversity effects on inorganic and organic N leaching from temperate grassland. Biogeochemistry. 131 (3), 339-353 (2016).
- Dietrich, P., Eisenhauer, N., Roscher, C. Linking plant diversity-productivity relationships to plant functional traits of dominant species and changes in soil properties in 15-year-old experimental grasslands. Ecol Evol. 13 (3), e9883(2023).
- Roscher, C., et al. A functional trait-based approach to understand community assembly and diversity-productivity relationships over 7 years in experimental grasslands. Perspect Pl Ecol Evol Syst. 15 (3), 139-149 (2013).
- Zuppinger-Dingley, D., Schmid, B., Petermann, J. S., Yadav, V., De Deyn, G. B., Flynn, D. F. B. Selection for niche differentiation in plant communities increases biodiversity effects. Nature. 515 (7525), 108-111 (2014).
- Latz, E., et al. Plant diversity improves protection against soil-borne pathogens by fostering antagonistic bacterial communities. J Ecol. 100 (3), 597-604 (2012).
- Barnes, A. D., et al. Biodiversity enhances the multitrophic control of arthropod herbivory. Sci. Adv. 6 (45), eabb6603(2020).
- Huang, Y., et al. Effects of enemy exclusion on biodiversity-productivity relationships in a subtropical forest experiment. J Ecol. 110 (9), 2167-2178 (2022).
- Wan, N. -F., et al. Species richness promotes plant productivity by suppressing plant antagonists. Research Square. , (2023).
- Schnitzer, S. A., et al. Soil microbes drive the classic plant diversity-productivity pattern. Ecology. 92 (2), 296-303 (2011).
- Kulmatiski, A., Beard, K. H., Heavilin, J. Plant-soil feedbacks provide an additional explanation for diversity-productivity relationships. Proc Biol Sci. 279 (1740), 3020-3026 (2012).
- Mommer, L., et al. Lost in diversity: the interactions between soil-borne fungi, biodiversity and plant productivity. New Phytol. 218 (2), 542-553 (2018).
- Eisenhauer, N., et al. Biotic interactions, community assembly, and eco-evolutionary dynamics as drivers of long-term biodiversity-ecosystem functioning relationships. Res Ideas Outcomes. 5, e47042(2019).
- Thakur, M. P., et al. Plant-soil feedbacks and temporal dynamics of plant diversity-productivity relationships. Trends Ecol Evol. 36 (7), 651-661 (2021).
- Eisenhauer, N. Aboveground-below-ground interactions as a source of complementarity effects in biodiversity experiments. Plant Soil. 351 (1), 1-22 (2012).
- Eisenhauer, N., et al. The multiple-mechanisms hypothesis of biodiversity-stability relationships. Basic Appl Ecol. 79, 153-166 (2024).
- Bever, J. D. Soil community feedback and the coexistence of competitors: conceptual frameworks and empirical tests. New Phytol. 157 (3), 465-473 (2003).
- Schmid, M. W., Hahl, T., van Moorsel, S. J., Wagg, C., De Deyn, G. B., Schmid, B. Feedbacks of plant identity and diversity on the diversity and community composition of rhizosphere microbiomes from a long-term biodiversity experiment. Mol Ecol. 28 (4), 863-878 (2019).
- Vogel, A., et al. A new experimental approach to test why biodiversity effects strengthen as ecosystems age. Adv Ecol Res. 61, 221-264 (2019).
- Dietrich, P., Eisenhauer, N., Otto, P., Roscher, C. Plant history and soil history jointly influence the selection environment for plant species in a long-term grassland biodiversity experiment. Ecol Evol. 11 (12), 8156-8169 (2021).
- van Moorsel, S. J., et al. Co-occurrence history increases ecosystem stability and resilience in experimental plant communities. Ecology. 102 (1), e03205(2021).
- Roscher, C., et al. The role of biodiversity for element cycling and trophic interactions: an experimental approach in a grassland community. Basic Appl Ecol. 5 (2), 107-121 (2004).
- Weisser, W. W., et al. Biodiversity effects on ecosystem functioning in a 15-year grassland experiment: Patterns, mechanisms, and open questions. Basic Appl Ecol. 23, 1-73 (2017).
- Lawton, J. H., et al. The Ecotron: a controlled environmental facility for the investigation of population and ecosystem processes. Philos Trans R Soc Lond B Biol Sci. 341 (1296), 181-194 (1993).
- Milcu, A., et al. Functional diversity of leaf nitrogen concentrations drives grassland carbon fluxes. Ecol Lett. 17 (4), 435-444 (2014).
- Rineau, F., et al. Towards more predictive and interdisciplinary climate change ecosystem experiments. Nat Clim Chang. 9 (11), 809-816 (2019).
- Roy, J., et al. Ecotrons: Powerful and versatile ecosystem analysers for ecology, agronomy and environmental science. Glob Change Biol. 27 (7), 1387-1407 (2021).
- Schmidt, A., et al. The iDiv Ecotron-A flexible research platform for multitrophic biodiversity research. Ecol Evol. 11 (21), 15174-15190 (2021).
- Eisenhauer, N., Türke, M. From climate chambers to biodiversity chambers. Front Ecol Environ. 16 (3), 136-137 (2018).
- Eisenhauer, N., et al. Ecosystem consequences of invertebrate decline. Curr Biol. 33 (20), 4538-4547.e5 (2023).
- Ebeling, A., et al. A trait-based experimental approach to understand the mechanisms underlying biodiversity-ecosystem functioning relationships. Basic Appl Ecol. 15 (3), 229-240 (2014).
- R: A Language and Environment for Statistical Computing. , R Core Team. Available from: https://www.R-project.org/ (2023).
- Theory and Computational Methods for Nonlinear Mixed-Effects Models. Mixed-Effects Models in S and S-PLUS. Statistics and Computing. , Springer. New York, NY. (2000).
- Ulrich, J., et al. Invertebrate decline leads to shifts in plant species abundance and phenology. Front Plant Sci. 11, 542125(2020).
- Bucher, S. F., et al. Artificial light at night decreases plant diversity and performance in experimental grassland communities. Philos Trans R Soc Lond B Biol Sci. 378 (1892), 20220358(2023).
- Cesarz, S., Eisenhauer, N., Bucher, S. F., Ciobanu, M., Hines, J. Artificial light at night (ALAN) causes shifts in soil communities and functions. Philos Trans R Soc Lond B Biol Sci. 378 (1892), 20220366(2023).
- Schmidtke, A., Rottstock, T., Gaedke, U., Fischer, M. Plant community diversity and composition affect individual plant performance. Oecologia. 164 (3), 665-677 (2010).
- Westoby, M., Falster, D. S., Moles, A. T., Vesk, P. A., Wright, I. J. Plant ecological strategies: Some leading dimensions of variation between species. Annu Rev Ecol Syst. 33 (1), 125-159 (2002).
- Guimarães-Steinicke, C., et al. Biodiversity facets affect community surface temperature via 3D canopy structure in grassland communities. J Ecol. 109 (5), 1969-1985 (2021).
- Roscher, C., et al. Interspecific trait differences rather than intraspecific trait variation increase the extent and filling of community trait space with increasing plant diversity in experimental grasslands. Perspect Pl Ecol Evol Syst. 33, 42-50 (2018).
- Marquard, E., Weigelt, A., Roscher, C., Gubsch, M., Lipowsky, A., Schmid, B. Positive biodiversity-productivity relationship due to increased plant density. J Ecol. 97 (4), 696-704 (2009).
- Lorentzen, S., Roscher, C., Schumacher, J., Schulze, E. -D., Schmid, B. Species richness and identity affect the use of aboveground space in experimental grasslands. Perspect Pl Ecol Evol Syst. 10 (2), 73-87 (2008).
- Williams, L. J., Paquette, A., Cavender-Bares, J., Messier, C., Reich, P. B. Spatial complementarity in tree crowns explains overyielding in species mixtures. Nat Ecol Evol. 1 (4), 1-7 (2017).
- Roscher, C., et al. Using plant functional traits to explain diversity-productivity relationships. PLoS One. 7 (5), e36760(2012).
- Abbas, M., et al. Biodiversity effects on plant stoichiometry. PLoS One. 8 (3), e58179(2013).
- Pérez-Harguindeguy, N., et al. New handbook for standardised measurement of plant functional traits worldwide. Aust J Bot. 61 (3), 167-234 (2013).
- Bassi, L., et al. Uncovering the secrets of monoculture yield decline: trade-offs between leaf and root chemical and physical defence traits in a grassland experiment. Oikos. 2023, e10061(2023).
- Medina-van Berkum, P., et al. Plant geographic distribution influences chemical defences in native and introduced Plantago lanceolata populations. Funct Ecol. 38 (4), 883-896 (2024).
- Motohka, T., Nasahara, K. N., Oguma, H., Tsuchida, S. Applicability of green-red vegetation index for remote sensing of vegetation phenology. Remote Sens. 2 (10), 2369-2387 (2010).
- Yin, G., Verger, A., Descals, A., Filella, I., Peñuelas, J. A Broadband green-red vegetation index for monitoring gross primary production phenology. J Remote Sens. 2022, 9764982(2022).
- Chen, B., Jin, Y., Brown, P. An enhanced bloom index for quantifying floral phenology using multi-scale remote sensing observations. ISPRS J Photogramm Remote Sens. 156, 108-120 (2019).
- Dean, J. M., Mescher, M. C., De Moraes, C. M. Plant dependence on rhizobia for nitrogen influences induced plant defenses and herbivore performance. Int J Mol Sci. 15 (1), 1466-1480 (2014).
- McCormick, A. C., Reinecke, A., Gershenzon, J., Unsicker, S. B. Feeding experience affects the behavioral response of polyphagous gypsy moth caterpillars to herbivore-induced poplar volatiles. J Chem Ecol. 42 (5), 382-393 (2016).
- Waldbauer, G. P. The consumption and utilization of food by insects. Adv In Insect Phys. 5, 229-288 (1968).
- Bachmann, D., Roscher, C., Buchmann, N. How do leaf trait values change spatially and temporally with light availability in a grassland diversity experiment. Oikos. 127 (7), 935-948 (2018).
- van Gurp, T. P., Wagemaker, N. C. A. M., Wouters, B., Vergeer, P., Ouborg, J. N. J., Verhoeven, K. J. F. epiGBS: reference-free reduced representation bisulfite sequencing. Nat Methods. 13 (4), 322-324 (2016).
- Eichenberg, D., Ristok, C., Kröber, W., Bruelheide, H. Plant polyphenols - implications of different sampling, storage and sample processing in biodiversity-ecosystem functioning experiments. J Chem Ecol. 30 (7), 676-692 (2014).
- Scheu, S. Automated measurement of the respiratory response of soil microcompartments: Active microbial biomass in earthworm faeces. Soil Biol Biochem. 24 (11), 1113-1118 (1992).
- Freschet, G. T., et al. A starting guide to root ecology: strengthening ecological concepts and standardising root classification, sampling, processing and trait measurements. New Phytol. 232 (3), 973-1122 (2021).
- Fiore-Donno, A. M., Richter-Heitmann, T., Bonkowski, M. Contrasting responses of Protistan plant parasites and phagotrophs to ecosystems, land management and soil properties. Front Microbiol. 11, 1823(2020).
- Fiore-Donno, A. M., Bonkowski, M. Different community compositions between obligate and facultative oomycete plant parasites in a landscape-scale metabarcoding survey. Biol Fertil Soils. 57 (2), 245-256 (2021).
- Albracht, C., et al. Common soil history is more important than plant history for arbuscular mycorrhizal community assembly in an experimental grassland diversity gradient. Biol Fertil Soils. 60 (4), 547-562 (2024).
- Breitkreuz, C., Herzig, L., Buscot, F., Reitz, T., Tarkka, M. Interactions between soil properties, agricultural management and cultivar type drive structural and functional adaptations of the wheat rhizosphere microbiome to drought. Environ Microbiol. 23 (10), 5866-5882 (2021).
- Barnes, A. D., et al. Energy flux: The link between multitrophic biodiversity and ecosystem functioning. Trends Ecol Evol. 33 (3), 186-197 (2018).
- Gauzens, B., et al. fluxweb: An R package to easily estimate energy fluxes in food webs. Methods Ecol Evol. 10 (2), 270-279 (2019).
- Anderson, J. P. E., Domsch, K. H. A physiological method for the quantitative measurement of microbial biomass in soils. Soil Biol Biochem. 10 (3), 215-221 (1978).
- Pausch, J., et al. Small but active - pool size does not matter for carbon incorporation in below-ground food webs. Funct Ecol. 30 (3), 479-489 (2016).
- Macfadyen, A. Improved funnel-type extractors for soil arthropods. J Anim Ecol. 30 (1), 171(1961).
- Kempson, D., Lloyd, M., Ghelardi, R. A new extractor for woodland litter. Pedobiologia. 3, 1-21 (1963).
- Cesarz, S., Eva Schulz, R., Beugnon, A., Eisenhauer, N. Testing soil nematode extraction efficiency using different variations of the Baermann-funnel method. Soil Org. 91 (2), 61-72 (2019).
- Ohno, T., Sleighter, R. L., Hatcher, P. G. Comparative study of organic matter chemical characterization using negative and positive mode electrospray ionization ultrahigh-resolution mass spectrometry. Anal Bioanal Chem. 408 (10), 2497-2504 (2016).
- Swenson, T. L., Jenkins, S., Bowen, B. P., Northen, T. R. Untargeted soil metabolomics methods for analysis of extractable organic matter. Soil Biol Biochem. 80, 189-198 (2015).
- Steinbeiss, S., Temperton, V. M., Gleixner, G. Mechanisms of short-term soil carbon storage in experimental grasslands. Soil Biol Biochem. 40 (10), 2634-2642 (2008).
- Roth, V. N., et al. Persistence of dissolved organic matter explained by molecular changes during its passage through soil. Nat Geosci. 12, 755-761 (2019).
Przedruki i uprawnienia
