Strongyloides ratti to pasożytniczy nicień, który powoduje przejściowe infekcje u myszy laboratoryjnych, wykazując migrację tkanek i etapy życia jelitowego. W tym miejscu przedstawiamy protokół utrzymania cyklu pasożytniczego u szczurów i eksperymentalnego zakażenia myszy, w tym kwantyfikację pasożytów w głowie, płucach i jelicie.
Artykuł metodologiczny
Eksperymentalne zakażenie myszy pasożytniczym nicieniem Strongyloides ratti
W tym artykule
Podsumowanie
Streszczenie
Strongyloides ratti to pasożytniczy nicień, który naturalnie zaraża dzikie szczury. Jednak większość laboratoryjnych szczepów szczurów i myszy jest w pełni podatna na infekcję. Immunokompetentne myszy BALB/c i C57BL/6 przerywają infekcje S. ratti w ciągu miesiąca w kontekście kanonicznej odpowiedzi immunologicznej typu 2 i pozostają półodporne na ponowne zakażenie. Przebieg zakażenia można podzielić na trzy fazy: a) fazę migracji tkanek zakaźnych larw trzeciego stadium w ciągu pierwszych dwóch dni; b) wczesna faza jelitowa, w tym linienie dorosłych pasożytów i zagnieżdżanie się w błonie śluzowej jelita w dniach 3–6 po zakażeniu z rozrodczością rozpoczynającą się w dniach 5–6 po zakażeniu; c) późniejsza faza jelitowa kończąca się całkowitym usunięciem pasożytów. Eksperymentalne zakażenia myszy S. ratti umożliwiają precyzyjne badanie interakcji między gospodarzem a pasożytem w całym cyklu życia w różnych miejscach infekcji, a także strategii unikania odpowiedzi immunologicznej stosowanych przez pasożyta. Przedstawiony tutaj protokół opisuje utrzymanie pasożyta u szczurów Wistar, zakażenie myszy laboratoryjnych oraz wykrywanie i oznaczanie ilościowe pasożytów S. ratti w fazie migracji tkanek i w fazie jelitowej.
Wprowadzenie
Przenoszony przez glebę robak Strongyloides stercoralis powoduje Strongyloidiozę, chorobę często określaną jako najbardziej zaniedbana wśród zaniedbanych chorób tropikalnych1. Szacunki z 2020 roku sugerują 600 milionów zakażeń S. stercoralis na całym świecie2. Badania laboratoryjne oparte na hipotezach dotyczące S. stercoralis są ograniczone, ponieważ robak nie jest w stanie rozwinąć się poza larwy trzeciego stadium (L3) u myszy3,4. W związku z tym nicień Strongyloides ratti specyficzny dla gryzoni jest powszechnie stosowany do badań zakażeń in vivo na myszach laboratoryjnych5,6. S. ratti jest naturalnym pasożytem dzikich szczurów, ale większość laboratoryjnych szczepów myszy jest w pełni podatna na infekcje7. Umożliwia to badanie interakcji gospodarz-patogen i odpowiedzi immunologicznej w różnych tkankach i żywych stadiach robaka.
Laboratoryjny cykl S. ratti u myszy można podzielić na trzy główne fazy. Po podskórnym wstrzyknięciu określonej liczby zakaźnych larw trzeciego stadium (iL3), zwykle od 1000 do 2000, większość (około 90%) ocalałych L3 migruje do głowy myszy w ciągu pierwszych dwóch dni infekcji, a tylko bardzo mała część (około 10%) jest pobierana w płucach8. S. ratti aktywnie przenika przez skórę swojego gryzonia. Możliwe jest naśladowanie tej naturalnej drogi infekcji w laboratorium poprzez umieszczenie kropli wody zawierającej iL3 na skórze myszy i umożliwienie aktywnej infekcji przezskórnej9. Jednak skuteczność infekcji jest znacznie niższa, a kontrola dokładnej dawki infekcji nie jest możliwa. Dokładna trasa migracji S. ratti iL3, zarówno po zakażeniu przezskórnym, jak i podskórnym (s.c.), pozostaje nieznana. Ponieważ jednak nie można wykryć DNA S. ratti we krwi lub narządach dobrze zaopatrzonych w krew, takich jak nerki zakażonych myszy8, pierwotna droga migracji może nie obejmować krwiobiegu. Mimo to S. ratti nie migruje losowo w tkankach. Przeciwnie, kilka badań wykorzystujących histologię na myszach3,10 i rats11 lub kwantyfikacja żywotnego DNA pochodzącego z L3 i S. ratti pobranego z różnych tkanek 8 dostarczają dowodów na to, że S. ratti L3 migruje z miejsca infekcji bezpośrednio przez skórę i tkankę mięśniową głównie do nosowo-czołowego obszaru głowy.
Około 10% wstrzykniętych larw przeżywa migrację tkanek i dociera do głowy u myszy C57BL/6 i BALB/c, które wykazują porównywalne liczby L3 w głowie tissue12. Uważa się, że larwy są połykane, aby dotrzeć do jelita do 3 dnia po zakażeniu (PI). Osadzają się w błonie śluzowej jelita cienkiego, linieją do dorosłych samic pasożytów i zaczynają rozmnażać się przez partenogenezę od 5 do 6 dnia p.i.13. Jaja, ale w większości już wyklute larwy pierwszego stadium (L1), są uwalniane do jelita i są wydzielane z kałem. Szczyt liczby dorosłych samic osiągany jest około 6 dnia p.i.14. Co ciekawe, myszy C57BL/6 wykazują od 2 do 5 razy większe obciążenie pasożytami jelitowymi niż myszy BALB/c, pomimo porównywalnej liczby migrujących do tkanek L3 w głowie w obu szczepach myszy 12. W pierwszym tygodniu obciążenie pasożytami jelitowymi u immunokompetentnych myszy C57BL/6 i myszy z nokautem RAG1 (KO), które nie mają limfocytów B i T, jest podobne, co sugeruje, że wczesna kontrola pasożytów odbywa się za pośrednictwem odporności wrodzonej12,15. W ostatniej fazie pasożyty są wydalane z jelita w ciągu 2 do 4 tygodni p.i. u myszy immunokompetentnych (recenzja w6). Myszy RAG1 KO nie są w stanie usunąć infekcji i zawierają małą liczbę zdolnych do życia i rozmnażających się dorosłych samic w jelicie cienkim przez okres do 1 roku12.
Po ustąpieniu pierwszej infekcji lub immunizacji napromieniowanym L3, immunokompetentne myszy C57BL/6 i BALB/c są częściowo odporne na ponowne zakażenie. Tylko 1% początkowo zaszczepionego iL3 dociera do głowy, a tylko około 1-5 dorosłych pasożytów może zostać pobranych z jelita podczas drugiej infekcji8. W związku z tym zastosowanie laboratoryjnego zakażenia myszy S. ratti stanowi narzędzie do badania wpływu wrodzonego, jak również adaptacyjnego układu odpornościowego podczas pełnego cyklu życia nicienia jelitowego z fazami migracji tkanek.
W tym manuskrypcie podajemy szczegółowy opis utrzymania cyklu życiowego S. ratti u szczurów Wistar, jak również eksperymentalne zakażenie myszy i ilościowe określenie obciążenia pasożytami w różnych miejscach infekcji. Dzięki dokładnemu określeniu ilościowemu obciążenia pasożytem S. ratti w tkance głowy i płuc, a także w jelicie myszy doświadczalnych, możliwe jest zbadanie roli niektórych efektorów immunologicznych w odniesieniu do migracji tkanek lub jelit etapu życia tego pasożytniczego nicienia. Odpowiedzi immunologiczne u myszy typu dzikiego i myszy pozbawionych specyficznych komórek efektorowych układu odpornościowego, receptorów lub mediatorów zainteresowania można porównać, jak wyjaśniono szczegółowo w dyskusji5,6.
Protokół
Doświadczenia na zwierzętach były prowadzone zgodnie z niemiecką ustawą o ochronie zwierząt, a protokoły eksperymentalne zostały zatwierdzone przez niemieckie władze (Behörde für Gesundheit und Verbraucherschutz) kraju związkowego Hamburg. Rysunek 1 przedstawia przegląd utrzymania cyklu życiowego S. ratti u szczurów Wistar oraz produkcji iL3 do infekcji myszy doświadczalnych lub szczurów.
1. Przygotowanie zakaźnych larw
- Przygotować aparat Baermanna, jak pokazano na rysunku 1. Zamknij spód węża zaciskiem pod kątem i umieść chusteczkę chusteczkę w sitku. Napełnij letnią wodą (około 35-37 °C), aż sito pokryje się wodą.
- Napełnij sito mieszanką kału i węgla drzewnego przygotowaną zgodnie z poniższym opisem (krok 6). Mieszanka musi być całkowicie pokryta wodą.
- Włączyć światło bezpośrednio za aparatem Baermanna. Viable iL3 będzie aktywnie migrować przez czyszczenie.
- Po 30 minutach larwy osiądą nad zaciskiem, zbierz je do probówki o pojemności 50 ml, otwierając na krótko zacisk. Zbierz cały granulek, ale upewnij się, że objętość jest jak najmniejsza.
- Napełnić probówkę o pojemności 50 ml PBS zawierającym 1% penicyliny-streptomycyny (PBS/Pen-Strep) i pozwolić larwom osiąść na dnie probówki grawitacyjnie w temperaturze 4 °C przez 30 minut. Ostrożnie usunąć supernatant pipetą i powtórzyć etap płukania 3 razy.
- Po trzecim etapie mycia ponownie zawiesić granulat w 30 do 50 ml PBS/Pen-Strep, w zależności od wielkości granulki. Przenieść 1 μl kropli roztworu na szkiełko mikroskopowe. Roztwór należy mieszać bezpośrednio przed pipetowaniem, ponieważ iL3 szybko się uspokaja.
- Sprawdź kropelki pod mikroskopem odwróconym przy 40-krotnym powiększeniu. iL3 powinien poruszać się żywo. Policz iL3 na 1 μl kropli w 5 do 10 powtórzeniach i oblicz średnią na μl.
2. Zakażenie myszy
UWAGA: Przygotowany iL3 może być przechowywany w PBS/Pen-Strep w temperaturze 4 °C w probówce o pojemności 50 ml, którą należy przechowywać poziomo, aby uniknąć uszkodzenia iL3. Żywotność in vitro wskazywana przez żywy ruch iL3 pozostaje niezmieniona do 1 tygodnia w naszych rękach. Ponieważ nie ma systematycznego porównania zakaźności L3 po różnych czasach przechowywania, jako wzorzec wewnętrzny stosujemy świeżo przygotowany iL3 i przechowywany iL3 przez maksymalnie 24 godziny po przygotowaniu. Możliwe są zakażenia starszymi partiami iL3. Obowiązkowe jest jednak użycie tej samej partii iL3 do zakażenia różnych grup w ramach jednego eksperymentu. Zaleca się, aby infekcje myszy były wykonywane przez dwie osoby, przy czym jedna osoba trzyma mysz, a druga wykonuje wstrzyknięcie.
- Przygotować jedną probówkę wirówkową o pojemności 1,5 ml na mysz zawierającą łącznie 1000 iL3 (C57BL/6) lub 2000 iL3 (BALB/c) liczonych w sposób opisany powyżej w kroku 1.7 w PBS/Pen-Strep, które zostały przygotowane przy użyciu aparatury Baermanna, jak wyjaśniono powyżej (krok 1). Dokładnie mieszaj między etapami pipetowania, ponieważ iL3 szybko się uspokaja.
- Pozwól iL3 osiąść grawitacyjnie przez 20-30 minut w temperaturze pokojowej (RT) i odessać supernatant strzykawką o pojemności 0,5 ml tak całkowicie, jak to możliwe, pozostawiając około 30 μl zawiesiny iL3 w probówce. Zawiesić iL3 za pomocą strzykawki o pojemności 0,5 ml (28 g) lub przesuwając rurkę i odessać pozostałą zawiesinę.
UWAGA: iL3 rzadziej przyklejają się do mokrego plastiku niż sucha strzykawka. Dlatego korzystne jest użycie tej samej strzykawki do usunięcia supernatantu. - Myszy nie muszą być znieczulone z powodu infekcji. Podnieś myszy karkiem i chwyć jedną tylną stopę myszy. Stosować kobiety i mężczyzn C57BL/6 w wieku powyżej 8 tygodni i wadze co najmniej 20 g. Wstrzyknąć cały roztwór zawierający iL3 podskórnie do opuszki stopy pod płaskim kątem. Powoli wycofać strzykawkę, aby uniknąć rozlania zawiesiny larw z miejsca wkłucia. Utworzy się bardzo mała kopuła zawierająca płyn. To zostanie wchłonięte przez siebie.
UWAGA: Zakażenie podskórne opuszki stopy, a nie boku lub karku szyi, naśladuje naturalne zakażenie iL3, które żyje w wilgotnej ziemi zapłodnionej kałem i aktywnie przenika przez nieuszkodzoną skórę. Również pierwszy drenujący węzeł chłonny (LN) jest zdefiniowany jako LN podkolanowy. Ten LN może być używany do analizy wczesnych (tj. 2 dzień p.i.) zmian immunologicznych, na przykład ekspansji limfocytów T regulatorowych Foxp3 + w odpowiedzi na infekcję, jak pokazano w16.
3. Liczenie iL3 w głowie i płucach zakażonych myszy
- W celu analizy obciążenia larw w tkance, należy złożyć myszy, w dniu 1-3 p.i., ponieważ szczyt obciążenia larw przypada na 2 dzień p.i.8,12. Przeprowadzić eutanazję przez przedawkowanie CO2 narkoza. Po braku rogówki i odruchów międzypalcowych należy wykonać zwichnięcie szyjki macicy.
- Spryskaj brzuch i szyję dostępnym w handlu środkiem dezynfekującym i przetnij skórę na brzuchu nożyczkami. Odciągnij skórę do tyłu, aby odsłonić przednią ścianę brzucha i przeciąć wzdłuż linii środkowej, aby otworzyć jamę otrzewnej. Przetnij przeponę i rozetnij żebra po obu stronach, aby odsłonić płuco w jamie opłucnej.
- Zebrać płaty płuc na 24-dołkowej płytce podzielonej liniami zawierającymi 1 ml wody z kranu. Narysuj lub wydrukuj linie na płycie w odległości około 4 mm. Odległość między liniami powinna umożliwiać zobaczenie obu linii jednocześnie przy 40-krotnym powiększeniu.
- Pokrój całe płuco na sześć kawałków o wymiarach około 0,75 cm x 0,75 cm.
- Odetnij głowę nożyczkami do kości. Usuń skórę i sierść palcami. Postaraj się usunąć jak najmniej tkanki mięśniowej.
- Rozczłonkuj całą głowę (w tym mózg i kości) na cztery ćwiartki za oczami i wzdłuż środka głowy (patrz Rysunek 2C). Umieść przednie i tylne ćwiartki w studzience z 6-dołkową płytką oznaczoną liniami zawierającymi 2 ml wody z kranu. Umieść chusteczkę z nacięciami skierowanymi w dół do wody.
UWAGA: Zazwyczaj takie podejście daje dokładny zapis liczby larw migrujących tkankami głowy. Jeśli potrzebna jest oddzielna analiza liczb L3 w mózgu, można dołączyć krok 3.7. - Jeśli pożądana jest oddzielna analiza mózgu, usuń skórę z głowy za pomocą palców. Następnie użyj nożyczek, aby przewiercić jarmułkę między oczami. Od tego nacięcia otwórz górną część strzałkową czaszki nieużywanymi lub dokładnie oczyszczonymi nożyczkami. Aby odsłonić mózg, otwórz prawą i lewą jarmułkę pęsetą. Użyj szpatułki, aby podnieść mózg od przedniej strony do góry, a sznury nerwowe przeciąć czystymi nożyczkami. Wyjmij mózg i przenieś go na 24-dołkową płytkę oznaczoną liniami zawierającymi wodę z kranu.
- Umieścić płytki w inkubatorze w temperaturze 37 °C. Inkubować przez 3 godziny, obracając płytki co godzinę (h) 10x. Po inkubacji zakręć po raz ostatni, usuń pozostałe części tkanki kleszczami z dołków i wyrzuć tkankę.
- Całkowicie policz każdą larwę w pozostałej wodzie w studniach pod odwróconym mikroskopem z 40-krotnym powiększeniem, poruszając się wzdłuż linii narysowanych na dnie studni. Policz larwy migrujące tkankowo tego samego dnia, aby zwiększyć wiarygodność wyników.
4. Liczenie pasożytów S. ratti w jelicie zakażonych myszy
- Do analizy obciążenia pasożytami w jelicie należy złożyć ofiary na myszach w dniu p.i. będącym przedmiotem zainteresowania, należy użyć p.i. dnia 3-21 p.i., aby uzyskać pełną kinetykę. Szczyt obciążenia pasożytami u myszy C57BL/6 i BALB/c w jelicie cienkim przypada na 6 dzień p.i.14. Przeprowadzić eutanazję przez przedawkowanie CO2 narkoza. Po braku rogówki i odruchów międzypalcowych wykonaj zwichnięcie szyjki macicy.
- Namocz okolice brzucha myszy w środku dezynfekującym i przetnij skórę na brzuchu. Odciągnij skórę do tyłu, aby odsłonić przednią ścianę brzucha i przeciąć wzdłuż linii środkowej, aby otworzyć jamę otrzewnej.
- Usuń całe jelito, przecinając między żołądkiem a proksymalną dwunastnicą, a także między okrężnicą a odbytem (patrz Ryc. 3B). Delikatnie wyciągnij jelito palcami i umieść je na szalce Petriego zawierającej wodę z kranu.
- Przeciąć jelito wzdłuż i wypłukać kał i śluz, energicznie wstrząsając w wodzie z kranu przez co najmniej 10 sekund. Niewielka frakcja dorosłych pasożytów i pewna ilość L1 zostanie wypłukana, ale żywotne pasożyty L4 i dorosłe S. ratti są osadzone w błonie śluzowej jelita u myszy typu dzikiego (WT) i nie zostaną usunięte na tym etapie mycia.
- Jeśli to jest interesujące, podziel jelito dalej, jak opisano poniżej.
- Odizoluj dwunastnicę przez nacięcie po drugim plastrze Peyera (około 2-3 cm). Odizoluj jelito kręte przez dwa nacięcia, jedno w pierwszym, a drugie w drugiej łatce Peyera (około 1-2 cm). Odizoluj jelito czcze po izolacji dwunastnicy i jelita krętego, ponieważ jest to pozostały odcinek.
- Podziel jelito czcze na trzy równe sekcje, aby umożliwić bardzo dokładne określenie lokalizacji pasożyta. Odizoluj kątnicę między jelitem krętym a okrężnicą. Odizoluj okrężnicę, przecinając ją za jelitem ślepym. Większość dorosłych pasożytów można znaleźć w pierwszej trzeciej części jelita cienkiego (patrz Rysunek 3B).
- Przenieś oczyszczone części jelit do probówek o pojemności 50 ml zawierających 20 ml wody z kranu. Umieścić poziomo w inkubatorze w temperaturze 37 °C na 3 godziny. Wstrząsaj bardzo energicznie przez 10 s co godzinę.
- Po 3 godzinach inkubacji wyjmij tkankę z wody. Umieść rurki pionowo w temperaturze pokojowej, a pasożyty osadzają się grawitacyjnie w ciągu 30 minut.
- Usunąć sklarowany osad do momentu, aż pozostanie około 5 ml wody. Napełnij do 25 ml wodą z kranu, aby powtórzyć krok prania. W celu analizy jelita cienkiego powtórz ten etap płukania jeszcze raz, aby uzyskać dobrą widoczność pod mikroskopem.
- Po osiągnięciu dobrej widoczności odessać supernatant do momentu, aż pozostanie około 5 ml wody i przenieść płyn do dwóch studzienek na jelito myszy na 6-dołkowej płytce oznaczonej liniami, jak wyjaśniono dla liczenia larw w głowie.
- Policz dorosłe samice pasożytów pod odwróconym mikroskopem z 40-krotnym powiększeniem, poruszając się wzdłuż linii narysowanych na dnie studzienki. Policz pasożyty w dniu poświęcenia. Policz pasożyty tak szybko, jak to możliwe, ponieważ długotrwała inkubacja w wodzie doprowadzi do ich śmierci i rozpadu.
UWAGA: Oprócz larw czwartego stadium i dorosłych pasożytów, L1 można tu również wykryć od około 5 dnia p.i. Są one znacznie mniejsze i znacznie liczniejsze niż L4 i dorosłe pasożyty i powinny być łatwe do odróżnienia.
5. Konserwacja S. ratti u szczurów Wistar
UWAGA: Infekcje szczurów powinny być przeprowadzane przez dwie osoby, z których jedna trzyma szczury, a druga wykonuje zastrzyk. Aby utrzymać cykl pasożytniczy, zaraża się 4-8-tygodniowe szczury Wistar.
- Przygotować jedną probówkę wirówkową o pojemności 1,5 ml na szczura zawierającą 2500 iL3 w PBS/Pen-Strep za pomocą aparatu Baermanna, jak wyjaśniono wcześniej. Dokładnie wymieszać między etapami pipetowania, ponieważ larwy szybko się uspokajają.
- Pozwól larwom osiąść grawitacyjnie przez 20-30 minut (RT) i odessać supernatant do strzykawki o pojemności 0,5 ml (28 G), aż pozostanie około 200 μl zawiesiny larw.
- W przypadku infekcji umieść szczury w zgięciu ramienia jednej osoby i delikatnie i ostrożnie przymocuj tam głowę. Druga osoba delikatnie chwyta bok szczura i wstrzykuje zawieszoną zawiesinę iL3 podskórnie do fałdu karkowego.
6. Kultura węgla drzewnego
- Zakażone szczury należy przetrzymywać w klatkach zawierających kilka warstw celulozy i mniej ściółki, począwszy od 5 i 12 dnia po zakażeniu. Ta wymiana ściółki na kilka warstw celulozy ma na celu ułatwienie zbierania kału w porównaniu z zbieraniem kału ze ściółki
- W dniach 6-8 i 13-15 p.i. przenieś szczury do świeżej klatki i zbierz wszystkie odchody ze starej klatki, zbierając granulki kału z klatek po przeniesieniu szczurów do świeżych klatek i zebraniu ich z jednej klatki do probówki o pojemności 50 ml. Zbieraj kał przez 2 tygodnie p.i. przed ustaleniem odpowiedzi immunologicznej, która zmniejsza obciążenie larw kałem. Po 2 tygodniach p.i. szczury są poddawane eutanazji za pomocą narkozy z przedawkowania CO2. Po braku rogówki i odruchów międzypalcowych należy wykonać zwichnięcie szyjki macicy.
UWAGA: Szczury z obniżoną odpornością i myszoskoczki mongolskie utrzymują infekcje S. ratti przez dłuższy czas17,18. Badając odpowiedź immunologiczną i immunomodulację podczas infekcji S. ratti, zdecydowaliśmy się utrzymać cykl u immunokompetentnych gospodarzy, aby utrzymać presję selekcyjną nienaruszonej odporności gospodarza. - Pobrane próbki kału wykorzystać do przygotowania kultur węgla drzewnego, które pozwolą na rozwój iL3 z L1 obecnego w kale.
- Namocz węgiel drzewny w wodzie z kranu. Przed użyciem węgla drzewnego do hodowli wlej go do sita i umyj pod bieżącą wodą z kranu, aż woda będzie czysta. Utrzymuj węgiel drzewny wilgotny przez cały czas. Namocz węgiel drzewny przez co najmniej 24 godziny przed użyciem.
- Wymieszaj kał z namoczonym węglem aktywnym w stosunku około 1:1. Ułóż mieszaninę gradientowo po przekątnej i przykryj ją kolejną warstwą węgla aktywnego w płaskiej szklanej zlewce, aby osiągnąć ostateczny stosunek 1:2,
UWAGA: Inkubacja kału z wstępnie namoczonym węglem aktywnym naśladuje wilgotną glebę, w której iL3 rozwija się w naturze, jednocześnie zapobiegając nadmiernemu zanieczyszczeniu grzybami. - Przykryj szklane naczynie przezroczystą folią. Upewnij się, że jest kilka otworów wentylacyjnych, aby umożliwić cyrkulację powietrza.
- Inkubować przez 6-7 dni w temperaturze 25 °C przy wilgotności około 90 % bez CO2 . Upewnij się, że inkubator zawiera naczynie na wodę, aby kultury były wilgotne. W razie potrzeby należy przechowywać kultury bakterii do 14 dni w temperaturze 25 °C. iL3 rozwinie się bezpośrednio lub pośrednio19 i pozostanie zatrzymany w fazie iL3 aż do infekcji.
Wyniki
S. ratti migruje z miejsca zakażenia przede wszystkim do głowy, a później do jelit drogą, która nie została dokładnie określona. Aby zbadać dokładną lokalizację w tkankach głowy i jelit, myszy C57BL/6 zakażono 1000 iL3 w lewą poduszkę tylnej łapy. Myszy uśpiono od 1. do 14. dnia p.i., a następnie określono liczbę pasożytów S. ratti w przedniej i tylnej części głowy, mózgu i płucach (Rysunek 2) oraz w dwunastnicy, jelicie czczym, jelicie krętym, kątnicy i jelicie grubym (Rysunek 3).
W 1. dniu p.i. pierwsze L3 dotarły do głowy, wykazując równomierny rozkład (Rysunek 2A). Dodatkowo, w 1. dniu p.i. w płucach odnotowano niewielką frakcję larw (Rysunek 2B). Liczba L3 znacznie wzrosła w 2. dniu p.i. do średnio 174 L3 ± 13 w głowie i średnio 17 ± 1,7 w płucach. Zatem większość L3 (około 90%) odzyskano z głowy, a jedynie około 10% z płuc. Większość L3 (średnio 93 ± 13,3) zlokalizowana była w przedniej części głowy, ale około 41 ± 4,7 larw L3 zlokalizowano w tylnej części głowy oraz około 39 ± 5,8 w mózgu. Zgodnie z tą obserwacją, obecność L3 w mózgu i płynie mózgowo-rdzeniowym zgłaszano w 24 h p.i., z maksimum w 48 h p.i. u myszy C57BL/6 po infekcji przezskórnej20. Wyraźny spadek całkowitej liczby L3 zaobserwowano w 3. dniu p.i. w porównaniu do obciążenia larwami w 2. dniu p.i., a w 4. dniu p.i. nie odzyskano żadnych L3 z tkanki głowy (Rysunek 2A). Odpowiednio, obecność pasożytów S. ratti wykryto w jelicie w 4. dniu p.i. (Rysunek 3A). Aby umożliwić precyzyjne określenie lokalizacji pasożytów, jelito podzielono na poszczególne segmenty, tj. dwunastnicę, jelito czcze, jelito cienkie, kątnicę i jelito grube (Rysunek 3B). W 4. dniu p.i. większość pasożytów S. ratti zlokalizowana była w dwunastnicy i pierwszych dwóch trzecich jelita czczego (Rysunek 3A). Lokalizacja ta utrzymywała się do 6. dnia p.i. Od 7. dnia p.i. większość dorosłych S. ratti zlokalizowana była w kątnicy, gdzie pozostawały do 9. dnia p.i. (Rysunek 3A). Liczba pasożytów w kątnicy spadła do 11. dnia p.i. do około 20 i do 0 w 14. dniu p.i. W żadnym z analizowanych punktów czasowych nie odzyskano znaczącej liczby pasożytów z pozostałej części jelita grubego, z wyjątkiem około 5–11 pasożytów w 11. dniu p.i. Chociaż lokalizacja pasożytów S. ratti zmieniała się od 4. do 9. dnia p.i., a większość dorosłych osobników została usunięta z jelita cienkiego po 7. dniu p.i., całkowita liczba odzyskana z całego jelita pozostawała stała do 9. dnia. Nie określono ilościowo żywych L1, ale są one wykrywalne od 4. do 11. dnia, z szczytem w 6. dniu (dane nie pokazano).

Rycina 1: Utrzymanie cyklu życiowego S. ratti u szczurów i myszy. Szczurom Wistar wstrzykuje się podskórnie do fałdu karkowego 2500 iL3. Po 6-15 dniach p.i. zbiera się ich kał, miesza z namoczonym w wodzie węglem aktywnym, układa z zachowaniem gradientu i przykrywa przezroczystą folią z otworami wentylacyjnymi. Hodowlę tę inkubuje się przez 6-7 dni w temperaturze 25 °C i wilgotności 90%. iL3 izoluje się za pomocą aparatu Baermanna i przemywa 3x w PBS/Pen-Strep. Myszom eksperymentalnym wstrzykuje się 1000 iL3 podskórnie w poduszkę tylnej łapy. Utworzono w BioRender.com. Rycina 1 została stworzona w BioRender. Linnemann, L. (2024) https://BioRender.com/g80l370. Kliknij tutaj, aby zobaczyć powiększoną wersję tej ryciny.

Rysunek 2: Ilościowe oznaczenie S. ratti w tkance płuc i głowy w czasie. Myszy C57BL/6 otrzymały wż. zastrzyk z 1000 iL3 w poduszkę stopy tylnej. Myszy uśmiercono w wskazanych punktach czasowych i policzono pasożyty S. ratti w (A) głowie i (B) płucach. Każdy symbol reprezentuje liczbę L3 u poszczególnych myszy; wykres słupkowy przedstawia wartość średnią, a słupki błędów oznaczają SEM. Wykresy przedstawiają połączone dane z poszczególnych eksperymentów. Dzień 1: dwa niezależne eksperymenty z n=4 na punkt czasowy i eksperyment; dzień 2: cztery niezależne eksperymenty z n=4, n=4, n=6 i n=3; dzień 3: dwa niezależne eksperymenty z n=4 i n=3; dzień 4: jeden eksperyment z n=5. (C) Schemat przedstawiający poszczególne regiony głowy wykorzystane do izolacji. Czerwona przerywana linia wskazuje przebieg nacięcia. Rysunek 2C został stworzony w BioRender. Linnemann, L. (2024) https://BioRender.com/t83e660. Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
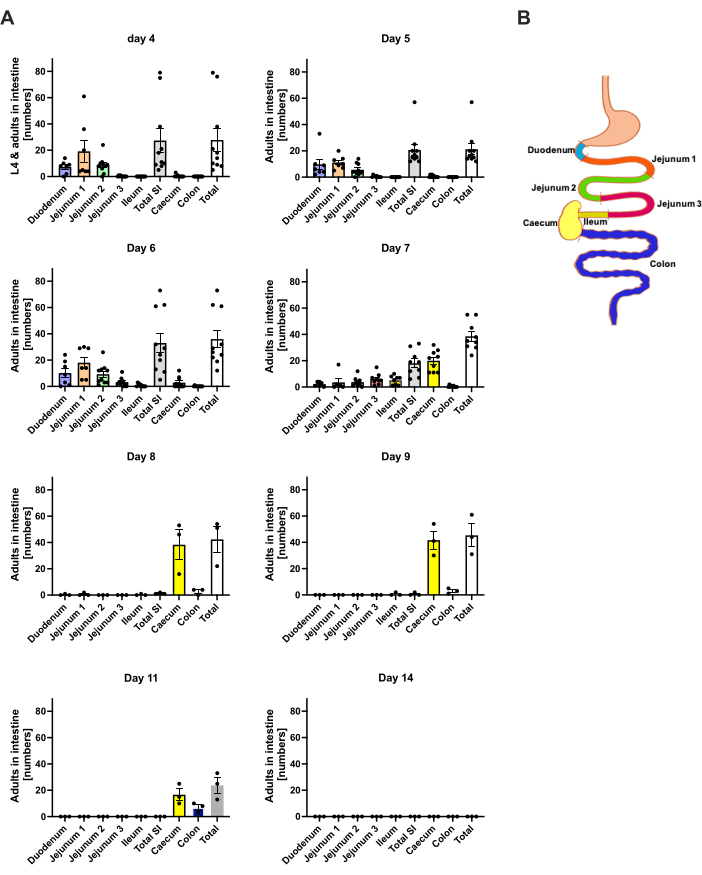
Rysunek 3: Ilościowe oznaczenie S. ratti w regionach jelit w czasie. Samcom myszom C57BL/6 wstrzyknięto podskórnie 1000 iL3 w poduszkę stopy tylnej. (A) Myszy uśpiono w wskazanych punktach czasowych, a następnie policzono pasożyty S. ratti (z wyjątkiem L1) w następujących regionach: dwunastnicy, części 1-3 jelita cienkiego (jejunum), jelicie końcowym, kątnicy i okrężnicy. (B) Schematyczny przegląd poszczególnych regionów jelit. Każdy symbol reprezentuje liczbę pasożytów u pojedynczej myszy; wykres słupkowy przedstawia średnią, a słupki błędów oznaczają SEM. Przedstawiono połączone dane z poszczególnych eksperymentów. Dzień 4: dwa niezależne eksperymenty z n=4 i n=6 myszy; Dzień 5: dwa niezależne eksperymenty z n=4 i n=6; Dzień 6: dwa niezależne eksperymenty z n=4 i n=6; Dzień 7: dwa niezależne eksperymenty z n=6 i n=3; Dni 8 do 14: jeden eksperyment z n=3. SI: jelito cienkie. Rysunek 3B został stworzony w BioRender. Linnemann, L. (2024) https://BioRender.com/h27y297. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Dyskusja
Zakażenie eksperymentalnych myszy S. ratti stanowi doskonały model do badania charakteru ochronnych odpowiedzi immunologicznych na infekcje robakami pasożytniczymi w wielu miejscach i stadiach odporności. Korzystając z różnych linii myszy KO i modeli wyczerpania komórek lub cytokin, można badać rolę określonych komórek odpornościowych, mediatorów lub receptorów w modelu ostrej infekcji robakami pasożytniczymi. Możliwość ilościowego określenia obciążenia pasożytem w głowie, jak również w jelicie, daje możliwość różnicowania roli komórek odpornościowych i efektorów w różnych tkankach i fazach cyklu życiowego pasożyta. Zubożenie określonych typów komórek poprzez wstrzyknięcia przeciwciał pozwala na zbadanie ich roli, szczególnie podczas jelitowej odpowiedzi immunologicznej, jeśli leczenie wyczerpujące rozpoczyna się po zakończeniu fazy migracji tkanek. W razie potrzeby jelito można dalej podzielić na dwunastnicę, jelito czcze, jelito kręte, kątnicę i okrężnicę, aby wykryć nawet niewielkie zmiany w lokalizacji pasożyta lub kinetyce klirensu. Należy zauważyć, że zmienność między- i wewnątrzdoświadczalna w tych eksperymentach infekcyjnych, nawet u myszy wsobnych, jest dość wysoka, odzwierciedlając zmienność wprowadzoną przez interakcję pasożyta i żywiciela, a także różne partie S. ratti L3 wykazujące różną skuteczność infekcji (patrz ryc. 2 i ryc. 3). Aby zmniejszyć zmienność, wiek i płeć myszy doświadczalnych powinny być podobne. Ponadto, jeśli myszy KO i WT są porównywane, zdecydowanie zaleca się stosowanie kontroli rodzeństwa z miotu zamiast myszy WT pochodzących z niezależnej rodziny hodowlanej. Niemniej jednak, jeśli stosuje się wystarczającą wielkość próby, możliwe jest uzyskanie wiarygodnych wyników porównujących obciążenie pasożytami u myszy z niedoborem lub kompetentnych dla niektórych efektorów, co prowadzi do jasnego obrazu efektorów immunologicznych zaangażowanych w ochronną odpowiedź immunologiczną na S. ratti (przegląd w 6).
Kluczową cechą odróżniającą S. ratti od innych modeli infekcji nicieniami, takich jak blisko spokrewniony S. venezuelensis lub N. brasiliensis, jest unikalna trasa migracji larw w obrębie żywiciela. W przeciwieństwie do N. brasiliensis i S. venezuelensis, których cykle życiowe zawierają fazę płucną 21,22,23, S. ratti omija przede wszystkim płuca i migruje przez tkankę mięśniową i skórną do głowy 8,12. Tylko około 10% pasożytów, które przeżyły w 2 dniu p.i., znajduje się w płucach. Tymczasem lokalizacja S. ratti w głowie skupia się na okolicy nosowo-czołowej, zgodnie z wcześniejszymi badaniami8. Te cechy sprawiają, że S. ratti jest cennym modelem do badania interakcji gospodarz-pasożyt, szczególnie w tkance skórnej i mięśniowej, a także w węzłach chłonnych drenujących tkanki, i umożliwia badania nad odpowiedziami immunologicznymi, które mogą być zasłonięte lub powikłane przez rozszerzone zajęcie płuc, jak w innych modelach infekcji nicieniami. Uderzające jest to, że S. ratti L3 jest również pobierany z płynu mózgowo-rdzeniowego20 i mózgu (ryc. 2A), chociaż objawy neurologiczne lub śmierć wywołane infekcją są stosunkowo rzadkie i nigdy nie zostały zaobserwowane w naszym ośrodku dla zwierząt. Przyszłe badania mogą wyjaśnić, czy te pasożyty zlokalizowane w mózgu są uwięzione, czy też istnieje ścieżka do jelita.
Rodzaj Strongyloides ma również wyjątkową zdolność do tworzenia wolno żyjących pokoleń między pokoleniami pasożytów24. Te wolno żyjące stadium S. ratti, jak również jego rozmnażanie przez patogenezę, dodatkowo ułatwiają wytwarzanie larw transgenicznych. Zastosowanie mikroiniekcji wolno żyjącym samicom umożliwiło wytworzenie larw wykazujących ekspresję antygenów modelowych, takich jak 2W1S, połączonych z białkiem zielonej fluorescencji. Podczas gdy ekspresja epitopu została utracona podczas linienia u dorosłych, umożliwiło to śledzenie i charakterystykę specyficznych dla S. ratti limfocytów T CD4 + w płucach i drenujących płuca węzłach chłonnych śródpiersia25. Takie podejście stanowi doskonałe narzędzie do badania biologii limfocytów T CD4+ w kontekście zakażeń robakami pasożytniczymi i opracowywania szczepionki przeciwko robakom pasożytniczym.
S. ratti jest wszechstronnym organizmem modelowym do badań immunologicznych pasożytów robaków pasożytniczych, które wykazują migrację tkanek i ogólnie etapy życia jelitowego. Ludzkie zakażenia S. stercoralis charakteryzują się ekstremalną przewlekłością ze względu na występującą autoinfekcję, która może również prowadzić do zespołu hiperinfekcji u gospodarzy z obniżoną odpornością, głównie pacjentów otrzymujących terapię glikokortykosteroidami po przeszczepie26. Należy zauważyć, że ten aspekt autoinfekcji i hiperinfekcji jest trudny do modelowania u myszy. Ani RAG1 KO zakażony S. ratti, ani nagie myszy 5,27 nie są podatne na hiperinfekcję. Warto zauważyć, że jeden mysi model hiperinfekcji S. stercoralis został ustalony przy użyciu myszy z poważnie obniżoną odpornością leczonych glikokortykosteroidami (NOD.Cg-PrkdcscidIl2rgtm1Wjl / SzJ), co może pozwolić na analizę przynajmniej aspektów zespołu hiperinfekcji u myszy ostatecznie28.
Niemniej jednak badania wykorzystujące zakażenie S. ratti u myszy wykazały, że eozynofile i neutrofile odgrywają niezbędną rolę w eliminowaniu larw migrujących do tkanek. Wyczerpanie lub brak u genetycznie zmodyfikowanych myszy skutkowało podwyższoną liczbą L3 w głowie8. Podczas gdy komórki tuczne i granulocyty zasadochłonne były zbędne w fazie migracji tkanek, zarówno komórki tuczne, jak i bazofile przyczyniły się do kontrolowania obciążenia pasożytami jelitowymi. Ich brak nie wpłynął na liczbę L3 w tkance, ale zwiększył liczbę dorosłych pasożytów S. ratti w jelicie w dniu 6 p.i.12,29. Dalsza analiza wykazała, że brak bazofili lub selektywnie łącznotkankowych komórek tucznych umożliwiał zakończenie infekcji kinetyką WT. Natomiast myszy pozbawione tkanki łącznej i komórek tucznych błony śluzowej pozostawały zakażone przez 20 tygodni12. Odkrycia te ujawniły kluczową rolę komórek tucznych błony śluzowej w ostatecznym zakończeniu infekcji, podkreślając wartość tego modelu infekcji w wyjaśnianiu funkcji komórek tucznych błony śluzowej podczas infekcji robakami pasożytniczymi. Dokładniejsze określenie potencjalnych zmian w lokalizacji jelitowej pasożytów S. ratti przy braku pewnych immunologicznych komórek efektorowych pomoże jeszcze dokładniej określić ich funkcję w odporności przeciw robakom.
Ponadto w tym systemie można badać mechanizmy unikania odporności stosowane przez robaki w celu ułatwienia im przetrwania. Wykazano, że wyczerpanie limfocytów T regulatorowych Foxp3 + lub delecja receptora regulatorowego na efektorowych limfocytach T, które zostały wywołane podczas infekcji S. ratti, zmniejszyło obciążenie pasożytem w dniu 6 p.i. i produkcję larw podczas infekcji 15,16,30,31 . Co więcej, możliwe było zdefiniowanie jelita jako tkanki, w której następuje unikanie odpowiedzi immunologicznej i aktywacja komórek tucznych za pośrednictwem IL-9, ponieważ szlak immunologiczny jest stłumiony. Wreszcie, mechanizm inicjacji odporności typu 2 za pośrednictwem ILC2 przez cytokiny alarminowe pochodzenia tkankowego, takie jak IL-33, można badać przy użyciu supresorów i wzmacniaczy endogennej IL-3332.
Wyizolowanie dużej liczby iL3 za pomocą Baermanna stwarza możliwość dalszych badań in vitro . Kohodowle L3 z komórkami odpornościowymi lub potencjalnymi kandydatami na leki umożliwiają bezpośrednie badanie wpływu na żywotność i ruchliwość L3. Restymulacja ex vivo komórek wyizolowanych od zakażonych myszy za pomocą lizatu antygenu S. ratti lub żywotnego L3 stanowi platformę do badania produkcji cytokin w różnych typach komórek. Wreszcie, frakcje białkowe i lipidowe L3 mogą być wykorzystane do identyfikacji wzorców molekularnych związanych z patogenem pochodzącym od S. ratti lub immunomodulujących cząsteczek efektorowych
Ponieważ infekcje robakami pasożytniczymi nadal stanowią poważne obciążenie zdrowotne na całym świecie, badania mające na celu dalsze wyjaśnienie odpowiedzi immunologicznej indukowanej przez robaki pasożytnicze i mechanizmu unikania stosowanego przez pasożyty pozostają kluczowe dla poprawy opcji leczenia i opracowania strategii zapobiegawczych, takich jak szczepienia. Zakażenie S. ratti u myszy stanowi wszechstronny model do badań nad interakcjami robak-gospodarz podczas modelu ostrej infekcji.
Oświadczenia
Autorzy nie pozostają w konflikcie interesów. Model językowy Perplexity AI 2024 został wykorzystany do poprawienia wersji roboczych tekstu i ulepszenia sformułowań.
Podziękowania
Ta praca była wspierana przez Fundację Jürgena Manchota i Niemieckie Stowarzyszenie Badawcze (Grant BRE 3754/6-1 i BRE 3754/10-1). Rysunki 1, 2C i 3B zostały stworzone w BioRender.com.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 50 ml probówki | Sarstedt, N mbrecht, DE | 6,25,47,254 | 50 ml https://www.sarstedt.com/produkte/labor/reagenz-zentrifugenroehren/roehren/produkt/62.547.254/ |
| BD Micro-Fine U100 Insulina 0,5 ml | BD Bioscience | 7468077 | 0,5 ml https://www.bestimed.de/bd-micro-fine-insulinspritze-05-ml-u100-8-mm-100x05ml-324825.html |
| probówki wirówkowe | Sarstedt, Nü mbrecht, DE | 72 706 | 1,5 ml https://www.sarstedt.com/produkte/labor/mikro-schraubroehren-reagiergefaesse/reagiergefaesse/produkt/72.706/ |
| Charcoal | Roth | 0998.3 | 5 kg https://www.carlroth.com/de/de/aktivkohle/aktivkohle/p/0998.3 |
| Falcon 6-dołkowa przezroczysta płaska płytka, bez traktowanych komórek, z pokrywką, sterylna | 351146 | Corning6-dołkowy https://www.corning.com/emea/de/search.html?_cookie=false & searchText=351146& search-initialcatalog =Firma+Komunikacja& initialResultType=produkty | |
| Zamrażarka & Lodówka | Liebherr-Hausgerä te, Rostock, DE | ||
| Greiner Bio-One 24-Well-Platten fü r Zellkulturen aus Polystyrol | Fisher Scientific | 10177380 | 24-dołkowe |
| chusteczki https://www.fishersci.de/shop/products/polystyrene-24-well-cell-culture-multiwell-plate/10177380#?keyword=24-well Incidin Premium | Ecolab Healthcare | 100 10 279 | |
| https://www.ecolabhealthcare.de/website/seiten/produkte/flaechendesinfektion/tuecher/incidin_premium_wipes.php Inkubator 25° C | Heraeus Instruments, Hanau, DE | ||
| Inkubator 37° C | Heraeus Instruments, Hanau, DE | ||
| Mikroskop | Helmut Hund, Wetzlar, DE | 4 x obiektywna soczewka, 10 x soczewka okularowa | |
| Parafilm M | Parafilm | 11772644 | 4 cale X 125 ft. https://www.fishersci.de/shop/products/parafilm-m-laboratory-wrapping-film-2/11772644 |
| Penicylina/Streptomycyna (Pen-Strep) | Koziorożec | PS-B | 100x https://www.capricorn-scientific.com/en/shop/penicillin-streptomycin-pen-strep-100x~p1205 |
| ROTI Fair 10x PBS 7.4 | Roth | 1105.1 | https://www.carlroth.com/de/de/fertigloesungen-tabletten-portionsbeutel/rotifair-10x-pbs-7-4/p/1105.1 |
Bibliografia
- Olsen, A., et al. Strongyloidiasis - the most neglected of the neglected tropical diseases. Trans Royal Soc Tropical Med Hygiene. 103 (10), 967-972 (2009).
- Buonfrate, D., et al. The global prevalence of Strongyloides stercoralis infection. Pathogens. 9 (6), 468(2020).
- Dawkins, H. J. S., Grove, D. I. Attempts to establish infections with Strongyloides stercoralis in mice and other laboratory animals. J Helminthol. 56 (1), 23-26 (1982).
- Abraham, D., et al. Strongyloides stercoralis: protective immunity to third-stage larvae inBALB/cByJ mice. Exp Parasitol. 80 (2), 297-307 (1995).
- Breloer, M., Abraham, D. Strongyloides infection in rodents: immune response and immune regulation. Parasitology. 144 (3), 295-315 (2017).
- Breloer, M., Linnemann, L. Strongyloides ratti infection in mice: immune response and immune modulation. Philosophical Trans Royal Society B. 379 (1894), 20220440(2024).
- Dawkins, H. J. S., Grove, D. I., Dunsmore, J. D., Mitchell, G. F. Strongyloides ratti: Susceptibility to infection and resistance to reinfection in inbred strains of mice as assessed by excretion of larvae. Int J Parasitol. 10 (2), 125-129 (1980).
- Ehrens, A., et al. Eosinophils and neutrophils eliminate migrating Strongyloides ratti larvae at the site of infection in the context of extracellular DNA trap formation. Front Immunol. 12, 715766(2021).
- Eschbach, M. L., et al. Strongyloides ratti infection induces transient nematode-specific Th2 response and reciprocal suppression of IFN-γ production in mice. Parasite Immunol. 32 (5), 370-383 (2010).
- Dawkins, H., Muir, G., Grove, D. Histopathological appearances in primary and secondary infections with Strongyloides ratti in mice. Int J Parasitol. 11 (1), 97-103 (1981).
- Tada, I., Mimori, T., Nakai, M. Migration route of Strongyloides ratti in albino rats. Jap J Parasit. 28 (4), 219-227 (1979).
- Reitz, M., et al. Mucosal mast cells are indispensable for the timely termination of Strongyloides ratti infection. Mucosal Immunol. 10 (2), 481-492 (2017).
- Viney, M. E., Lok, J. B. The biology of Strongyloides spp. WormBook. , 1-17 (2018).
- Reitz, M., et al. Interleukin-9 promotes early mast cell-mediated expulsion of Strongyloides ratti but is dispensable for generation of protective memory. Sci Rep. 8 (1), 8636(2018).
- Breloer, M., et al. Cutting edge: The BTLA-HVEM regulatory pathway interferes with protective immunity to intestinal Helminth infection. J Immunol. 194 (4), 1413-1416 (2015).
- Blankenhaus, B., et al. Foxp3+ regulatory T cells delay expulsion of intestinal nematodes by suppression of IL-9-driven mast cell activation in BALB/c but not in C57BL/6 mice. PLoS Pathogens. 10 (2), e1003913(2014).
- Niamatali, S., Nolan, T. J., Schad, G. A. Can Autoinfection be Provoked in the Strongyloides ratt/-infected Gerbil, Meriones unguiculatus. 59 (2), 149-152 (1992).
- Gardner, M. P., Gems, D., Viney, M. E. Extraordinary plasticity in aging in Strongyloides ratti implies a gene-regulatory mechanism of lifespan evolution. Aging Cell. 5 (4), 315-323 (2006).
- Viney, M. E. Developmental switching in the parasitic nematode Strongyloides ratti. Proc Biol Sci. 263 (1367), 201-208 (1996).
- Dawkins, H. J., Thomason, H. J., Grove, D. I. The occurrence of Strongyloides ratti in the tissues of mice after percutaneous infection. J Helminthol. 56 (1), 45-50 (1982).
- Takamure, A. Migration route of Strongyloides venezuelensis in rodents. Int J Parasitol. 25 (8), 907-911 (1995).
- Filbey, K., Bouchery, T., Le Gros, G. The role of ILC 2 in hookworm infection. Parasite Immunol. 40 (2), e12429(2018).
- Allen, J. E., Sutherland, T. E. Host protective roles of type 2 immunity: Parasite killing and tissue repair, flip sides of the same coin. Semin Immunol. 26 (4), 329-340 (2014).
- Dulovic, A., Puller, V., Streit, A. Optimizing culture conditions for free-living stages of the nematode parasite Strongyloides ratti. Exp Parasitol. 168, 25-30 (2016).
- Douglas, B., et al. Transgenic expression of a T cell epitope in Strongyloides ratti reveals that helminth-specific CD4+ T cells constitute both Th2 and Treg populations. PLOS Pathogens. 17 (7), e1009709(2021).
- Vadlamudi, R. S., Chi, D. S., Krishnaswamy, G. Intestinal strongyloidiasis and hyperinfection syndrome. Clin Mol Allergy. 4 (1), 8(2006).
- Viney, M., Kikuchi, T. Strongyloides ratti and S. venezuelensis- rodent models of Strongyloides infection. Parasitology. 144 (3), 285-294 (2017).
- Patton, J. B., et al. Methylprednisolone acetate induces, and Δ7-dafachronic acid suppresses, Strongyloides stercoralis hyperinfection in NSG mice. Proc Natl Acad Sci. 115 (1), 204-209 (2018).
- Reitz, M., Brunn, M. L., Voehringer, D., Breloer, M. Basophils are dispensable for the establishment of protective adaptive immunity against primary and challenge infection with the intestinal helminth parasite Strongyloides ratti. PLOS Neglected Trop Dis. 12 (11), e000699(2018).
- Blankenhaus, B., et al. Strongyloides ratti infection induces expansion of Foxp3+ regulatory T cells that interfere with immune response and parasite clearance in BALB/c Mice. J Immunol. 186 (7), 4295-4305 (2011).
- Hartmann, W., Blankenhaus, B., Brunn, M. L., Meiners, J., Breloer, M. Elucidating different pattern of immunoregulation in BALB/c and C57BL/6 mice and their F1 progeny. Sci Rep. 11 (1), 1536(2021).
- Meiners, J., et al. IL-33 facilitates rapid expulsion of the parasitic nematode Strongyloides ratti from the intestine via ILC2- and IL-9-driven mast cell activation. PLOS Pathogens. 16 (12), e1009121(2020).
Przedruki i uprawnienia
