Stabilna amplifikacja in vitro pierwotnych komórek rozrodczych (PGCLC), pluripotencjalnego modelu zastępczego pierwotnych komórek rozrodczych pochodzących z komórek macierzystych, stoi przed wyzwaniami technicznymi. Protokół ten wspiera długoterminową ekspansję PGCLC w warunkach in vitro bez surowicy lub komórek warstwy zasilającej.
Artykuł metodologiczny
Długotrwała hodowla ludzkich pierwotnych komórek rozrodczych
W tym artykule
Podsumowanie
Streszczenie
Pierwotne komórki rozrodcze (PGC) są powszechnymi prekursorami wszystkich męskich i żeńskich komórek rozrodczych. PGC powstają w zarodkach ssaków w okresie okołoimplantacyjnym i stają się prekursorami komórek rozrodczych specyficznych dla płci po różnicowaniu płciowym anlagi gonadalnej. Model in vitro , powszechnie znany jako komórki podobne do PGC (PGCLC), generowany z ludzkich pluripotencjalnych komórek macierzystych, jest użytecznym substytutem ludzkich embrionalnych komórek macierzystych, zapewniając wyjątkową okazję do zbadania ludzkiej gametogenezy in vitro. Przedstawiony tutaj protokół wspiera długoterminową ekspansję ludzkich PGCLC in vitro . Świeżo wyizolowane PGCLC są początkowo utrzymywane w warstwie zasilającej STO, a następnie namnażane w stanie wolnym od zasilania na ekstrakcie z błony podstawnej. Długoterminowe hodowle PGCLC (LTC-PGCLCs) mogą być wzbogacone o sortowanie komórek aktywowane fluorescencją (FACS) jako komórki CD38-dodatnie i są łatwo amplifikowane do dziesiątek milionów komórek jako czysta, monotonna hodowla bez karmunitetu i surowicy bez widocznych ograniczeń, takich jak starzenie się. Praktycznie możliwe jest uzyskanie czystej populacji ponad 1 miliona ludzkich PGCLC z kilku tysięcy świeżo wyizolowanych PGCLC. Ludzka hodowla komórkowa LTC-PGCLC jest użytecznym i wygodnym modelem in vitro do badania biologii ludzkich komórek rozrodczych i różnicowania się w dalszych komórkach linii rozrodczej.
Wprowadzenie
Pierwotne komórki rozrodcze (PGC) są najwcześniejszymi prekursorami wszystkich komórek rozrodczych. Ludzkie PGC wyłaniają się z tylnego epiblastu - przypuszczalnie niezaangażowanych komórek prekursorowych owodni - we wczesnym okresie po implantacji, gastrulując zarodki w 2-3 tygodniu ciąży 1,2,3,4,5,6,7. W specyfikacji PGC zarówno ludzkich, jak i mysich, szlaki sygnałowe aktywowane przez białka morfogenetyczne kości (BMP) i WNT3 odgrywają kluczową rolę 3,6. Podczas gdy indukcja trzech czynników transkrypcyjnych, BLIMP1, PRDM14 i TFAP2C, jest niezbędna do specyfikacji mysich PGC, w specyfikacji ludzkiego PGC rola PRDM14 jest zmniejszona. SOX17, który jest zbędny dla specyfikacji PGC dla myszy, ale niezbędny dla specyfikacji PGC dla ludzi, jest indukowany przez sygnalizację BMP w sposób zależny wyłącznie od EOMES lub zarówno EOMES, jak i TBXT 7,8,9. Ludzkie PGC migrują z tylnego epiblastu w kierunku gonad anlagen w grzbietach narządów płciowych przez krezkę grzbietową w 5-6 tygodniu ciąży 10,11,12,13,14,15,16. Ludzka migracja PGC może być napędzana przez chemotaksję, choć czeka na eksperymentalne potwierdzenie. Profile transkryptomiczne migrujących ludzkich PGC nie są identyczne z profilami myszy PGC na tym samym etapie17,18. Na przykład ludzkie PGC wyrażają DAZL jeszcze przed ich osiedleniem się w anlagenie gonadalnym, podczas gdy myszy PGC wyrażają DAZL dopiero po ich osiedleniu się w gonadach9. Po zainicjowaniu specyficznego dla płci różnicowania komórek somatycznych gonad, PGC ulegają również różnicowaniu do prospermatogonii (znanej również jako gonocyty) lub oogonii.
Ponieważ dostęp do ludzkich embrionalnych komórek macierzystych jest niezwykle trudny ze względu na bariery techniczne i etyczne, stosowanie komórek podobnych do PGC (PGCLC) pochodzących z pluripotencjalnych komórek macierzystych staje się coraz bardziejpopularne3. Mysie PGCLC przypominają stadium postmigracyjne PGC, charakteryzujące się zaawansowaną demetylacją globalnego genomowego DNA (gDNA) i są zdolne do generowania plemników i oocytów kompetentnych do zapłodnienia 19,20,21. W przeciwieństwie do tego, ludzkie PGCLC przypominają wcześniejsze stadia embrionalnych PGC z ograniczoną globalną demetylacją gDNA 7,22,23,24. Coraz więcej dowodów wskazuje na to, że ludzkie PGCLC, pomimo swojego stosunkowo niedojrzałego statusu, są zdolne do różnicowania in vitro do bardziej zaawansowanych stadiów komórek rozrodczych, przypominających oogonię25,26 lub prospermatogonię27.
Odkąd Irie i in. opublikowali pierwszą generację PGCLC z ludzkich pluripotencjalnych komórek macierzystych w 2015 r.7, wiele laboratoriów opublikowało różne protokoły produkcji PGCLC u ludzi. Wczesne, standardowe protokoły obejmują tworzenie pluripotencjalnych agregatów komórkowych, które są często określane jako ciała embrionoidalne 7,22,24,26,28,29. Ludzkie PGCLC mogą być wytwarzane przy użyciu różnych protokołów opartych na agregatach, które mają porównywalne profile transkryptomiczne, z których wszystkie silnie wyrażają kluczowe geny markerów PGC, takie jak PRDM1, SOX17, TFAP2C, POU5F1 i NANOS3, podczas gdy ekspresja markera pluripotencji SOX2 lub markera PGC w późnym stadium DDX4 jest zwykle tłumiona24. Odnotowano również udane próby wytworzenia ludzkich PGCLC z jednowarstwowych kultur komórkowych w celu poprawy skalowalności i wygody30. Chociaż wydajność PGCLC jest stosunkowo niewielka, pomyślne wytwarzanie ludzkich PGCLC z pluripotencjalnych modeli in vitro zarodków w stadium gastrulacji pochodzących z pluripotencjalnych komórek macierzystych znacząco przyczynia się do wyjaśnienia mechanizmów specyfikacji linii zarodkowej i rozwoju PGC we wczesnym stadium 31,32,33,34,35,36.
Chociaż wydajność i jakość ludzkich PGCLC wytwarzanych przy użyciu różnych metod hodowli komórkowych poprawia się, trudności techniczne w ekspansji hodowli komórkowych ludzkich PGCLC stanowią istotną przeszkodę w ich zastosowaniu w doświadczeniach wymagających dużych ilości jednorodnych populacji komórek, takich jak chemiczne lub genetyczne badania przesiewowe, a także w produkcji zaawansowanych stadiów komórek linii rozrodczej26. Gell i wsp. zgłosili utrzymanie ludzkich PGCLC przez okres do 21 dni na karmnikach STO w pożywce opartej na FR10 zawierającej czynnik komórek macierzystych (SCF) i 2,5% płodową surowicę cielęcą (FCS); jednak PGCLC miały tendencję do odbiegania od tożsamości podobnej do PGC do innych typów komórek, które mogą nie być istotne dla rozwoju komórek linii rozrodczej37. Murase i wsp. wielokrotnie eliminowali takie niechciane komórki z hodowli za pomocą FACS przy każdym pasażowaniu i wykazali, że ludzkie PGCLC są zdolne do utrzymania swojego potencjału proliferacji przez długi czas in vitro38. Później Murase i in. donieśli o udanej amplifikacji ludzkich PGCLC w pożywce zawierającej 2,5% FCS39, ale ich metoda wymaga komórek warstwy zasilającej m220-5, które są spontanicznie wyłaniającymi się, odpornymi na MMC subklonami mysich komórek embrionalnych m220, które wyrażają związaną z błoną formę mysiego SCF z egzogennego wektora40. Na dzień dzisiejszy komórki m220-5 nie zostały jeszcze zdeponowane w publicznie dostępnym repozytorium. W związku z tym dużym wyzwaniem pozostaje rozszerzenie ludzkiej hodowli PGCLC in vitro na dużą liczbę jednorodnych komórek, zachowując ich cechy podobne do PGC w prostych warunkach, które nie wymagają niestandardowych zasobów komórek zasilających i są wolne od odczynników pochodzenia zwierzęcego, których skuteczność może się różnić w zależności od partii.
Aby pokonać powyższą przeszkodę techniczną, opracowano metodę, która umożliwia długoterminową ekspansję in vitro ludzkich PGCLC jako jednorodnej populacji komórek, zachowującej cechy podobne do PGC w stanie wolnym od surowicy lub komórek warstwy zasilającej41. Ponieważ ludzkie PGCLC wyrażają telomerazę, komórki te amplifikują się w stałym tempie bez oznak starzenia lub odchylenia od innych typów komórek przez co najmniej 150 dni. Długoterminowe hodowle PGCLC (LTC-PGCLC) zachowują swoje cechy transkryptomiczne podobne do ludzkich PGC, chociaż ich globalne gDNA jest umiarkowanie demetylowane przy powtarzających się pasażach. LTC-PGCLS są łatwo przekształcane w pluripotencjalne embrionalne komórki rozrodcze (EGCLC), przywracając transkryptom podobny do iPSC i metylom gDNA, chociaż utracono wdrukowane alleliczne ograniczenie ekspresji RNA H19. LTC-PGCLC są również zdolne do różnicowania się w komórki wykazujące ekspresję DAZL, przypominające prospermatogonię w hodowli organoidów ksenobiotycznych xrTestis27. W związku z tym ludzki model LTC-PGCLC reprezentuje nowy rodzaj stabilnie utrzymywanego, istotnego dla pluripotencji zasobu hodowli komórkowej, który trwale zachowuje cechy biologiczne PGCLC i jest łatwo rozwijany in vitro jako stabilna linia komórkowa.
W artykule opisano metodę adaptacji świeżo wyizolowanej, wzbogaconej w FACS czystej populacji ludzkich PGCLC do pozbawionej surowicy, długotrwałej kultury podtrzymującej poprzez czasowe wsparcie przez standardowe komórki warstwy zasilającej STO, a następnie w stanie wolnym od karmienia na ekstrakcie z błony podstawnej (BME). Metoda ta wspiera ekspansję in vitro ludzkich PGCLC wytwarzanych przy użyciu protokołu zależnego od organizmu embrionalnego, jak opisano wcześniej 24,41,42 lub opisano przez Sasaki i wsp.22, oraz metody hodowli jednowarstwowej opisanej przez Overeema i wsp.30. Po zastosowaniu do ludzkich PGCLC przygotowanych zgodnie z opisem41, początkowa populacja 10 000 komórek może zostać rozszerzona do prawie 1 x 10⁹ komórek w ciągu 1,5 - 2 miesięcy z 4 - 4,5 dniowym czasem podwojenia populacji41. Oczekuje się również zastosowania tej metody do ludzkich PGCLC wytwarzanych innymi metodami.
Protokół
1. Przygotowanie pożywek do hodowli komórkowych
- Przygotuj pożywkę zgodnie z opisem w Tabeli 1, Tabeli 2, Tabeli 3 i Tabeli 4. Porcje tych pożywek należy przechowywać w stanie zamrożonym.
- Przygotować pożywkę podstawową PGCLC zgodnie z opisem w Tabeli 1. Przygotować 40 ml porcji i przechowywać w temperaturze -20 °C przez 6 miesięcy. Przygotować pożywkę STO 1 zgodnie z opisem w tabeli 2. Przechowywać 50 ml porcji w probówkach wirówkowych o pojemności 50 ml w temperaturze 4 °C przez 1 miesiąc.
- Przygotować pożywkę STO 2 zgodnie z opisem w tabeli 3. Zużyć natychmiast. Przygotować pożywkę do przechowywania komórek STO traktowaną mitomycyną-C (MMC-STO) zgodnie z opisem w Tabeli 4. Przechowywać 10 ml porcji w temperaturze -20 °C przez 6 miesięcy.
UWAGA: Ponieważ dimetylosulfotlenek jest uważany za niebezpieczny (ciecz palna), należy go trzymać z dala od źródeł ciepła, iskier, otwartego ognia lub gorących powierzchni. Postępuj zgodnie z lokalnym protokołem regulacyjnym w celu jego usunięcia.
2. Przygotowanie komórek STO poddanych działaniu MMC
UWAGA: Leczenie MMC komórek STO dezaktywuje ich aktywność proliferacyjną bez znaczącego uszczerbku dla ich żywotności. Komórki MMC-STO są używane jako komórki warstwy zasilającej podczas początkowej hodowli ludzkich PGCLC (krok 4), a także jako źródło pożywki kondycjonowanej bezkomórkowo (krok 3).
- Hoduj komórki STO w pożywce STO 1 w czterech szalkach P15, aż do zbliżenia się do konfluencji. Zmień pożywkę STO od 1 do 23 ml / naczynie. Dodać 23 μl/naczynie o stężeniu 10 mg/ml MMC bezpośrednio do pożywki do końcowego stężenia 10 μg/ml.
- Dobrze zawirować i inkubować w temperaturze 37 °C w inkubatorze CO2 przez 4 godziny.
UWAGA: MMC jest śmiertelne, jeśli zostanie połknięty duża ilość i podejrzewa się, że jest to czynnik rakotwórczy. Obchodzenie się z tym związkiem i jego utylizacja powinny być zgodne z lokalnymi protokołami regulacyjnymi. - Umyj komórki 20 ml / naczynie PBS Dulbecco (bez Ca/Mg) 2x w temperaturze pokojowej.
- Dysocjuj komórki za pomocą 4 ml / talerz TrypLE Express w inkubatorze CO2 przez 2 minuty. Zawiesić komórki w zawiesinie jednokomórkowej za pomocą delikatnego pipetowania.
- Przenieść dwie szalki z zawiesiną komórkową (8 ml) do probówki wirówkowej o pojemności 50 ml zawierającej 30 ml lodowatej pożywki STO-1. Powtórz dla pozostałych dwóch szalek, aby przygotować dwie probówki z 38 ml zawiesiny komórek.
- Policz komórki w obecności 0,2% błękitu trypanowego w celu oceny żywotności komórek za pomocą hemocytometru lub automatycznego licznika komórek.
- Odwirować komórki przy 300 x g przez 5 minut w temperaturze 4 °C. Odrzucić supernatant. Zawiesić granulki komórkowe w lodowato zamrożonym podłożu do przechowywania komórek do 5 x 10⁶ komórek/ml.
- Przygotować 1 ml porcji komórek STO poddanych działaniu MMC w fiolkach kriogenicznych. Komórki należy powoli zamrażać w styropianowym pudełku lub urządzeniu do powolnego zamrażania i przechowywać w temperaturze -80 °C przez okres do 12 miesięcy.
3. Przygotowanie podłoża kondycjonowanego przez STO (S-CM)
UWAGA: Kondycjonowana bezkomórkowo pożywka komórek MMC-STO (przygotowana w kroku 2) wspomaga przeżycie i proliferację ludzkich PGCLC, jednocześnie tłumiąc ich odchylenie do komórek tracących cechy podobne do PGC.
- Dzień 1: Rozmrozić komórki STO poddane działaniu MMC z zamrożonych zapasów i zaszczepić 5 x 10⁶ komórek w pokrytym żelatyną naczyniu P10 z 10 ml / naczynie STO-pożywka 2. Typowa wielkość wsadu składa się z 4 do 8 szalek P10. Inkubować komórki w temperaturze 37 °C w inkubatorze CO2 przez noc.
- Aby pokryć studzienki żelatyną, dodaj 1 ml/studzienkę 0,1% żelatyny i inkubuj w temperaturze pokojowej przez co najmniej 20 minut. Odessać nadmiar roztworu żelatyny i pozostawić otwarte studzienki w komorze bezpieczeństwa biologicznego do wyschnięcia. Wyroby z tworzywa sztucznego pokryte żelatyną należy przechowywać w temperaturze pokojowej przez 2 tygodnie lub w temperaturze 4 °C przez 3 miesiące.
- Rozmrozić podwielokrotności podłoża podstawowego PGCLC w temperaturze 4 °C przez noc.
UWAGA: Nie zaleca się szybszego rozmrażania tego podłoża w wyższej temperaturze. Nie przechowywać pożywki podstawowej PGCLC w temperaturze 4 °C dłużej niż 1 tydzień. - Dzień 2: Wyjmij i wyrzuć STO-medium 2. Umyj komórki ciepłym DPBS (~10 ml / naczynie), a następnie przepłucz ciepłym PGCLC Basal Medium (2 ml / naczynie). Dodać ciepłe podłoże podstawowe PGCLC (12 ml / naczynie) i inkubować komórki w temperaturze 37 °C w inkubatorze CO2 przez noc.
- Dzień 3: Zebrać całą kondycjonowaną pożywkę do probówki wirówkowej o pojemności 50 ml. Powtórzyć pożywkę podstawową PGCLC (12 ml / talerz) i inkubację w celu pobrania kondycjonowanej pożywki następnego dnia z tej samej hodowli komórek STO. Odwirować kondycjonowaną pożywkę zebraną o stężeniu 300 x g przez 5 minut w temperaturze 4 °C. Przygotować 10 ml porcji supernatantu (S-CM) w probówkach wirówkowych o pojemności 15 ml. Nie należy pobierać ostatnich 3 ml pożywki pozostałej na dnie probówek o pojemności 50 ml, aby uniknąć zanieczyszczenia komórek MMC-STO w S-CM. Podwielokrotności należy przechowywać w temperaturze -80 °C przez okres do 6 miesięcy.
- Dzień 4: Zbieraj S-CM, powtarzając krok 3.4 każdego dnia, aż monowarstwowa kultura MMC-STO ulegnie pogorszeniu po 5-6 dniach hodowli w pożywce PGCLC Basal Medium. Przerwij zbieranie, gdy 25% lub więcej komórek zostanie odłączonych od naczynia.
4. Adaptacja ludzkich PGCLC do długotrwałej hodowli
- Hodowla świeżo izolowanych ludzkich PGCLC na warstwie zasilającej MMC-STO. Przygotowanie ludzkich PGCLC przy użyciu wcześniej opublikowanej metody (Mitsunaga i wsp.24; Kobayashi i wsp.41). Opublikowano również szczegółowe protokoły indukcji PGCLC u ludzi 42,43.
- Po początkowej amplifikacji przez okres do 28 dni, utrzymuj PGCLC jako LTC-PGCLC na BME jako kulturę wolną od karmienia. Na tych dwóch etapach hodowli PGCLC należy używać pożywki kondycjonowanej przez STO (S-CM, przygotowanej w kroku 3) z suplementacją SCF, ale bez włączania FCS. Inhibitor ROCK jest konieczny tylko natychmiast po pasażowaniu.
UWAGA: Jako BME, w naszym laboratorium zastosowano Matrigel klasy ESC. Inne produkty komercyjne nie wspierały długoterminowej ekspansji LTC-hPGCLC. - Dzień 1: Zaszczepić komórki warstwy zasilającej STO poddane działaniu MMC na 6-dołkowych płytkach pokrytych żelatyną do 8 x 10⁴ komórek/cm2 za pomocą 3 ml / dołka STO-pożywki 2. Inkubować warstwę zasilającą w temperaturze 37 °C w inkubatorze CO2 przez noc.
- Dzień 2: Wyrzuć pożywkę STO z hodowli i umyj komórki ciepłym MEM Dulbecco (bez surowicy), 3 ml / dołek. Dodać 3 ml / studzienkę S-CM świeżo uzupełnionego 0,1 mM 2-merkaptoetanolu, 50 μg / ml kwasu askorbinowego, 100 ng / ml ludzkiego rekombinowanego SCF i 10 μM Y-27632. Zaszczepić 500 - 2,000 świeżo wyizolowanych ludzkich PGCLC na warstwie zasilającej STO w każdym dołku. Inkubować komórki w temperaturze 37 °C w inkubatorze CO2 przez noc.
UWAGA: Obecność surowicy, nawet w niskich stężeniach, ma tendencję do powstawania niepożądanych typów komórek z ludzkich PGCLC41. Wzrost ludzkich PGCLC jest ściśle zależny od SCF41. Y-27632 wspomaga przeżycie jednokomórkowych ludzkich PGCLC w momencie inokulacji, ale nie jest konieczny podczas hodowli podtrzymującej. Dodaj świeżo 2-merkaptoetanol, kwas askorbinowy, SCF i Y-27632 do podłoża. W typowym eksperymencie PGCLC są inokulowane do wszystkich studzienek 6-dołkowej płytki. Jeśli jako materiał wyjściowy dostępna jest większa liczba PGCLC, dopuszczalna jest wyższa gęstość do 10 000 PGCLC na studzienkę. - Dzień 3: Zastąp połowę pożywki (1,5 ml / dołek) ciepłym S-CM świeżo uzupełnionym 0,1 mM 2-merkaptoetanolu, 50 μg / ml kwasu askorbinowego, 100 ng / ml ludzkiego rekombinowanego SCF, ale bez Y-27632. Nie należy przeszkadzać PGCLC, które mogą zostać oderwane od warstwy zasilającej przez silny przepływ medium.
- Dni 5 - 28: Powtarzaj krok 4.5 co drugi dzień. Ponieważ PGCLC zwykle rozmnażają się w 4,5-dniowym czasie podwojenia populacji41, małe skupiska PGCLC pojawiają się w 6-7 dniu lub później (Figura 1A-D). Klastry staną się bardziej widoczne w dniach 14-15 (Rysunek 1E,F). Jeśli pojawią się niepożądane typy klastrów komórkowych o anomalnych cechach morfologicznych odbiegających od prawidłowych PGCLC, należy odrzucić studzienki zawierające takie skupiska lub spróbować wyeliminować nietypowe komórki przy użyciu techniki adhezji różnicowej opisanej w dalszej części kroku 4.9.
- Kiedy PGCLC rozszerzają się, tworząc klastry pokrywające ponad 20% powierzchni hodowli (~ Dzień 28), zdysocjuj komórki za pomocą roztworu do odrywania komórek (CDS). Usunąć S-CM z dołków kultury PGCLC i dodać wstępnie podgrzane CDS w ilości 1 ml / studzienkę bez mycia komórek. Inkubować komórki w temperaturze 37 °C w inkubatorze CO2 przez 5 minut, aż PGCLC odłączą się od studzienek.
UWAGA: Accutaza jest zalecana jako CDS w przypadku łagodnej dysocjacji. Nie podgrzewać CDS w temperaturze 37 °C dłużej niż 5 minut. Delikatne pipetowanie może ułatwić oddzielenie PGCLC, ale nie trzeba całkowicie dysocjować PGCLC do zawiesiny pojedynczej komórki. Małe agregaty PGCLC mogą zwiększyć żywotność. Jeśli niepożądane typy komórek pojawiają się i szybko rosną, dostosuj czas inkubacji w CDS podczas odłączania komórek w celu selektywnego zbierania PGCLC, które mają tendencję do odrywania się wcześniej niż komórki zasilające i większość typów niechcianych komórek. Jeśli uporczywe pojawianie się niepożądanych typów komórek zakłóca ekspansję PGCLC, należy spróbować usunąć niechciane komórki, wykorzystując ich szybszą adhezję do studzienek pokrytych żelatyną, jak opisano w kroku 4.9. Ponieważ wzbogacanie PGCLC przez FACS ma tendencję do utraty znacznej części żywych PGCLC, należy odpowiednio zmniejszyć rozmiar obszaru warstwy zasilającej. - Aby zatrzymać odrywanie komórek przez CDS, należy rozcieńczyć zawiesinę komórek 10-krotnie większą objętością ciepłego podłoża bazowego PGCLC i odwirować przy stężeniu 300 x g przez 5 minut w temperaturze 4 °C. Należy zauważyć, że aktywność enzymatyczna niektórych CDS, takich jak Accutase, nie jest hamowana przez inhibitory surowicy lub trypsyny. Wyrzuć supernatant i ponownie zawieś komórki w 3 ml ciepłego S-CM świeżo uzupełnionego 0,1 mM 2-merkaptoetanolu, 50 μg/ml kwasu askorbinowego, 100 ng/ml ludzkiego rekombinowanego SCF i 10 μM Y-27632.
- Zaszczepić zawiesinę komórkową w studzienkach z 6-dołkowymi płytkami pokrytymi 0,1% żelatyną i inkubować w temperaturze 37 °C w inkubatorze CO2 przez 30 minut w celu usunięcia komórek MMC-STO (i niepożądanych typów komórek), które szybko przylegają do studzienek pokrytych żelatyną.
UWAGA: Zaleca się badanie komórek za pomocą mikroskopii kontrastu fazowego po 20 minutach inkubacji, a także po 30 minutach w celu oceny adhezji komórek zasilających. Może być konieczne wydłużenie czasu inkubacji do 45 minut. Stosowanie FACS lub MACS w celu wyeliminowania komórek zasilających nie jest na ogół konieczne, ponieważ komórki STO traktowane MMC nie mogą się namnażać i pogarszać w S-CM. - Przenieś PGCLC pozbawione anomalnych typów komórek do studzienek pokrytych matrycą błony podstawnej, aby rozpocząć długoterminową hodowlę ludzkich PGCLC bez dopływu. W przypadku pojedynczego dołka w płytce 6-dołkowej zaleca się inokulację 1 x 10⁵ żywotnych PGCLC.
UWAGA: Zazwyczaj konieczne jest zebranie hPGCLC z maksymalnie 6 studzienek, aby zebrać 1 x 10⁵ żywotnych (trypan niebieski barwiący ujemny) PGCLC i zasiać je w jednym dołku w celu zwiększenia gęstości komórek inokulum. Jeśli liczba zebranych PGCLC nie osiąga 1 x 10⁵, należy użyć studzienki o mniejszym rozmiarze, takiej jak płytka 12- lub 24-dołkowa, aby uzyskać stosunkowo wysoką gęstość PGCLC. Do czasu pierwszej subkultury większość komórek warstwy zasilającej MMC-STO ulega zniszczeniu i nie przeżywa procedury pasażowania. Niewielka liczba żywotnych komórek MMC-STO jest skutecznie usuwana za pomocą techniki adhezji różnicowej. Nawet jeśli kilka komórek MMC-STO zostanie zanieczyszczonych w studzienkach pokrytych BME, znikną one z hodowli podczas wielokrotnego pasażowania. - Ludzkie PGCLC rosną jako wysoce rozproszona populacja komórek bez znaczących oznak bezpośredniego kontaktu fizycznego między poszczególnymi komórkami (ryc. 1). Jeśli pojawią się skupiska komórek wykazujące ścisłe interakcje międzykomórkowe (ryc. 2A), należy przejść przez kulturę, stosując technikę opisaną w kroku 4.7. Zazwyczaj wystarcza pasażowanie raz w tygodniu (1:4).
UWAGA: Wzbogacanie ludzkich PGCLC w FACS jest zazwyczaj niepotrzebne. Jednakże, jeśli niechciane anomalne komórki nie mogą być skutecznie usunięte po wielokrotnej technice adhezji różnicowej opisanej w kroku 4.11, kilka cykli wzbogacania FACS ludzkich PGCLC jako komórek CD38-dodatnich42,43 ułatwia ustanowienie czystej populacji LTC-hPGCLCs. Przykłady anomalnych komórek pochodzących z PGCLC rosnących na szalkach pokrytych BME przy braku warstwy zasilającej pokazano na rysunku 3. Ważne jest, aby utrzymać stosunkowo dużą gęstość hodowli komórek PGCLC, aby zmniejszyć ryzyko indukcji niepożądanych typów komórek.- Przygotuj potrawy pokryte BME zgodnie z wcześniejszym opisem42,43. Rozmrozić BME na lodzie w lodówce lub chłodni przez noc. Nie rozmrażaj zamrożonego BME w temperaturze pokojowej ani nie używaj ciepłej kąpieli wodnej.
- Podwielokrotność BME (~200 μl; objętość podwielokrotności jest określana przez producenta dla każdej partii i wskazana na etykiecie fiolki) do sterylnych i wstępnie schłodzonych probówek wirówkowych o niskiej wiązalności lub probówek do kriokonserwacji komórek na lodzie. Ważne jest, aby BME był lodowaty podczas dozowania, aby uniknąć zestalenia. Przechowywać podwielokrotności w temperaturze -80 °C.
- Rozcieńczyć jedną porcję BME 25 ml lodowatego DMEM/F12 i rozprowadzić na trzech 10-centymetrowych szalkach (~8 ml / talerz) lub czterech płytkach 6-dołkowych (łącznie 24 dołki, 1 ml na dołek). Inkubować naczynia w temperaturze pokojowej przez co najmniej 1 godzinę. Po pokryciu naczynia można uszczelnić przezroczystą folią i przechowywać w temperaturze pokojowej do 1 tygodnia.
- Odessać podłoże z szalek bezpośrednio przed użyciem. Nie ma potrzeby mycia powlekanych naczyń.
- Utrzymuj stosunkowo wysoką gęstość hodowli LTC-PGCLC na BME, aby zahamować pojawianie się niepożądanych typów komórek. Pasaż PGCLC jest zalecany, gdy komórki osiągają więcej niż 25% konfluencji. Połowę pożywki (1,5 ml / studzienkę) należy wymienić na ciepły S-CM świeżo uzupełniony 0,1 mM 2-merkaptoetanolu, 50 μg / ml kwasu askorbinowego i 100 ng / ml ludzkiego rekombinowanego SCF.
UWAGA: Inokulacja PGCLC o mniejszej gęstości zwiększa ryzyko wytworzenia niepożądanych komórek. Ponieważ czas podwojenia populacji ludzkich PGCLC wynosi około 4,5 dnia41, rutynowe cotygodniowe pasażowanie jest zazwyczaj wystarczające do utrzymania długotrwałej hodowli. Włączenie inhibitora ROCK (Y-27632) jest konieczne tylko po pasażowaniu, aby poprawić żywotność PGCLC. - Nie należy przeszkadzać PGCLC, które mogą zostać oderwane od warstwy zasilającej przez silny przepływ medium.
UWAGA: Ponieważ ludzkie PGCLC wyrażają telomerazę, proliferują bez widocznych oznak starzenia, takich jak skrócenie telomerów lub ekspresja związanej ze starzeniem się β-galaktozydazy41. - Gdy ludzkie PGCLC uzyskają stabilną proliferację bez generowania znacznych ilości niepożądanych typów komórek, należy zbadać ich cechy podobne do PGC poprzez profilowanie ekspresji genów markerowych.
UWAGA: Zachęca się do stosowania podejść analitycznych odpowiednich do charakterystyki każdej pojedynczej komórki (takich jak immunofluorescencja, FACS lub sekwencjonowanie RNA pojedynczej komórki) w celu oceny możliwego zanieczyszczenia niepożądanymi typami komórek. Jeśli wyniki takich analiz potwierdzą podobny do PGC charakter PGCLC, potwierdza się ustanowienie kultury LTC-hPGCLC. - Przechowywać LTC-PGCLC zamrożone w pożywce do zamrażania komórek (1 x 10⁶ komórek/ml na fiolkę kriogeniczną). Zaczynając od łącznej liczby 10 000 ludzkich PGCLC jako materiału wyjściowego, całkowita wydajność 1 x 10⁶ PGCLC jest osiągalna w ciągu 6 tygodni. Umieść papierowe lub plastikowe pudełko zawierające fiolki kriogeniczne w szczelnie zamykanym pudełku styropianowym. Umieść zamknięte pudełko w zamrażarce w temperaturze -80 °C na noc, aby powoli zamrażać. Następnie umieścić fiolki w zamrażarce o temperaturze -80 °C lub w zbiorniku z ciekłym azotem.
- Aby zainicjować hodowlę z fiolki z zamrożonymi komórkami, wykonaj czynności opisane poniżej.
- Szybko rozmrozić komórki w łaźni wodnej o temperaturze 37 °C z ręcznym potrząsaniem, trzymając dno fiolki w wodzie. Gdy >80% zawartości w fiolce zostanie rozmrożone, osusz fiolkę niestrzępiącymi się chusteczkami lub równoważnym papierem laboratoryjnym i przetrzyj okolice nakrętki wacikiem nasączonym alkoholem.
- Przenieść komórki do probówki wirówkowej o pojemności 15 ml zawierającej wstępnie podgrzane (37 °C) podłoże podstawowe PGCLC. Jeśli w fiolce pozostaną małe zamrożone komórki, należy je odzyskać za pomocą pożywki podstawowej PGCLC przez pipetowanie.
- Natychmiast odwirować komórki przy 300 x g przez 5 minut w temperaturze pokojowej i usunąć supernatant.
- Zawiesić osad komórkowy za pomocą 9 ml wstępnie podgrzanego S-CM świeżo uzupełnionego 0,1 mM 2-merkaptoetanolu, 50 μg/ml kwasu askorbinowego, 100 ng/ml ludzkiego rekombinowanego SCF i 10 μM Y-27632. Delikatnie zawiesić komórki za pomocą końcówek do pipet o pojemności 1 000 ml.
- Zaszczepić 3 ml / dołek w 3 dołkach płytki pokrytej BME, aby zainicjować hodowlę. Delikatnie potrząśnij płytkami w pionie i poziomie, aby równomiernie rozprowadzić komórki. Unikaj okrężnych ruchów potrząsania, ponieważ taki ruch przesunie komórki do środka studzienek. Żywotność komórek bezpośrednio po odzyskaniu z zamrożonego materiału wyjściowego jest zwykle większa niż 80%.
Wyniki
Reprezentatywne wyniki - PGCLC zazwyczaj tworzą widoczne skupiska na warstwie zasilającej MMC-STO w ciągu 2 tygodni po inokulacji (Rysunek 1A-D). Potrzeba około 3-4 tygodni, zanim PGCLC będą gotowe do hodowli bez karmnika. Ponieważ PGCLC wykazują silną aktywność cytokinetyczną ich interakcja międzykomórkowa jest słaba, gdy tworzą skupiska na warstwie zasilającej (ryc. 1E, F). Często obserwuje się PGCLC wychodzące z gromad (Rysunek 1F, czerwone groty strzałek). Bez warstwy zasilającej, LTC-PGCLC rosną jako rozproszone komórki z niewielkimi oznakami adhezji międzykomórkowej, nawet gdy gęstość komórek jest wysoka (ryc. 3). Każdy LTC-PGCLC zachowuje oryginalną morfologię świeżo wyizolowanego ludzkiego PGCLC, wykazując oznaki aktywnej cytokinezy. Gdy pojawiają się komórki odbiegające od cech morfologicznych podobnych do PGC (ryc. 2), wzbogacenie PGCLC za pomocą techniki wielokrotnej adhezji różnicowej często poprawia jakość hodowli. Jeśli anomalne komórki utrzymują się, okazjonalne wzbogacenie FACS PGCLC w komórki postywne CD38 może pomóc.
Poprzednia publikacja zidentyfikowała ludzkie komórki PGCLC jako PRDM1-dodatnie, TFAP2C-dodatnie, ale SOX2-ujemne komórki41. Również wyrażają POU5F1, ale ich prekursorowe iPSC również wyrażają ten marker pluripotencji41. Zdecydowanie zaleca się jak najszybsze potwierdzenie wydajności i profili ekspresji markerów na poziomie pojedynczej komórki rozszerzających się ludzkich PGCLC przy użyciu genetycznie indukowalnych markerów, immunofluorescencji, FAC lub sekwencji RNA pojedynczej komórki. Jednak bez takich analiz potwierdzających, wydajność i jakość ludzkich PGCLC w obecności lub bez komórek zasilających można wygodnie oszacować za pomocą standardowej mikroskopii kontrastowej fazowej, jak pokazano na rysunku 1, rysunku 2 i rysunku 3.
Podczas długotrwałej hodowli LTC-PGCLC utrzymują jednorodną populację komórek zawierającą aktywnie proliferującą subpopulację, jak wykazały wcześniejsze dane dotyczące sekwencji RNA pojedynczej komórki41. Profil transkryptomiczny oryginalnych PGCLC jest w dużej mierze zachowany, z wyjątkiem tego, że ekspresja markerów PGCLC we wczesnym stadium GATA2 i GATA3 jest szybko tracona41. Globalny poziom metylacji DNA w ludzkich iPSC wynosi około 73% i spada do około 64% w świeżo wyprodukowanych PGCLC41. Globalny poziom metylacji DNA ulega dalszemu spadkowi w LTC-PGCLC do około 54% po 12 tygodniach ekspansji in vitro 41. Większość cech transkryptomicznych i epigenetycznych ludzkich LTC-PGCLC jest całkowicie odwrócona do tych w oryginalnych iPSC po przekształceniu w pluripotencjalne embrionalne komórki rozrodcze, z wyjątkiem tego, że specyficzne dla alleli znaczniki epigenetyczne w kilku regionach kontrolnych imprintingu są usuwane w PGCLC i nigdy nie wracają41.
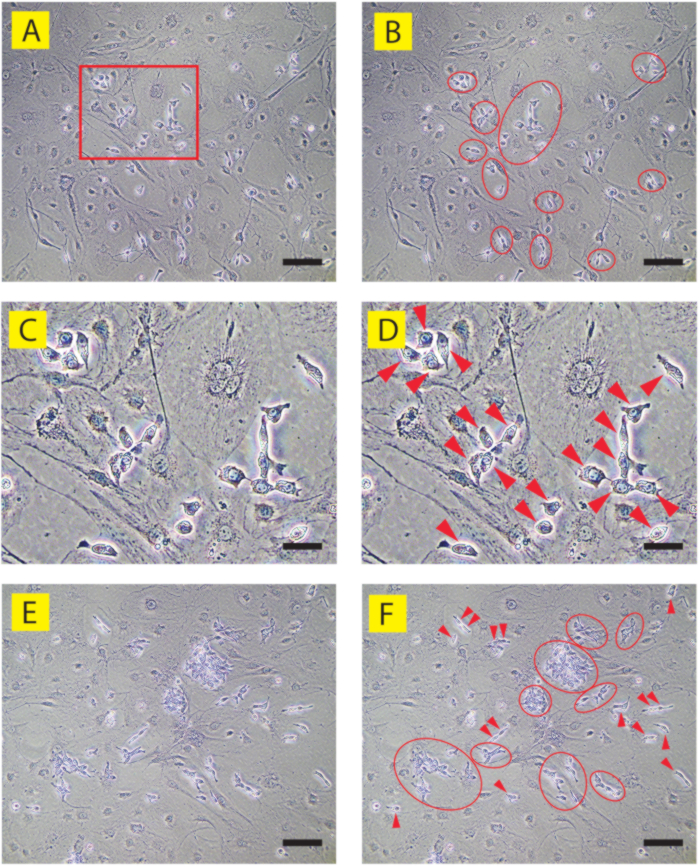
Rysunek 1: Obrazy kontrastu fazowego prawidłowych ludzkich PGCLC na warstwie zasilającej STO (ludzki klon iPSC 9A13). (A, C, E) są oznaczone odpowiednio w (B, D, F). (A-D) Dzień 6 kultura. Część (A) pokazana w czerwonym prostokącie jest powiększona w (C, D). Większość PGCLC obserwuje się jako rozproszone komórki, które często tworzą luźne skupiska (czerwone owale). Poszczególne PGCLC (czerwone groty strzałek) nie stykają się ze sobą w bliskim kontakcie i są łatwo identyfikowane pod mikroskopią kontrastu fazowego jako komórki wystające z pogarszających się, płaskich i szeroko rozprzestrzeniających się komórek zasilających STO. (E, F) Dzień 15 kultura. Wiele skupisk PGCLC jest łatwo identyfikowanych (czerwone owale), podczas gdy kontakt międzykomórkowy jest nadal luźny. Niektóre PGCLC znajdują się poza gromadami, często jako duplikaty (czerwone groty strzałek), co odzwierciedla ich aktywną proliferację podczas losowej migracji na i pomiędzy wysoce zniszczoną warstwą zasilającą. Podziałka = 50 μm (A, B, E, F) lub 15 μm (C, D). Kliknij tutaj, aby zobaczyć większą wersję tego rysunku.
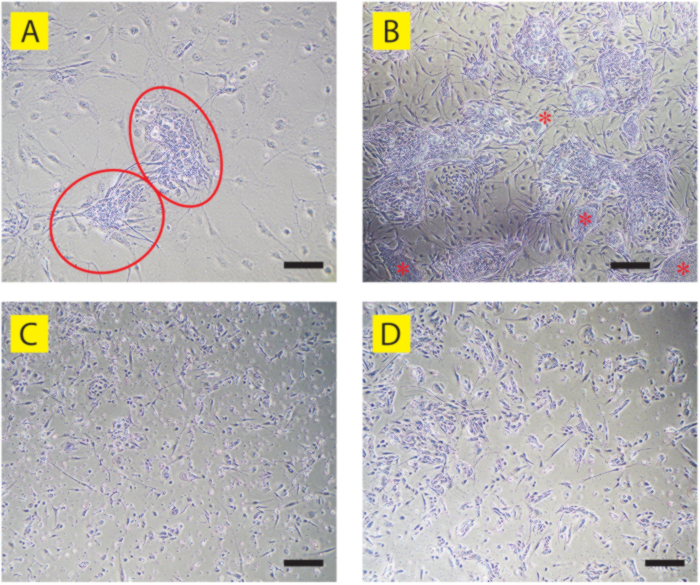
Rysunek 2: Obrazy z kontrastem fazowym ludzkich PGCLC, które są odchylone od cech podobnych do PGC. (A) Dwa anomalne skupiska PGCLC (czerwone owale) pojawiły się w kulturze PGCLC 9A13 w dniu 9 na warstwie zasilającej STO. W odróżnieniu od prawidłowych klastrów PGCLC (patrz rysunek 1A-D), komórki wykazują silny kontakt międzykomórkowy, który zasłania granice każdej pojedynczej komórki. (B) Dzień 18 kultura ludzkiej kultury PGCLC pokazana w (A). Obserwuje się wiele anomalnych klastrów PGCLC, z których niektóre wykazują gęste kolonie przypominające prekursory ludzkich iPSC (czerwone gwiazdki). Należy zauważyć, że większość wydłużonych komórek podobnych do fibroblastów znajdujących się między klastrami to również komórki anomalne pochodzące z PGCLC, podczas gdy większość komórek zasilających STO jest zniszczona i przemieszczona. (C) LTC-hPGCLC (ludzki klon iPSC B6) wykazujący masywną śmierć komórek i anomalne morfologie na pokrytych BME, wolnych od karmy szalkach. (D) LTC-hPGCLC, które są w dużej mierze odchylone do komórek o anomalnej morfologii na pokrytych BME, wolnych od karmnika naczyniach (ludzki klon iPSC T548). Porównaj te anomalne LTC-hPGCLC z prawidłowymi LTC-hPGCLC pokazanymi na rysunku 3B. Podziałka = 50 μm (A, B) lub 100 μm (C, D). Kliknij tutaj, aby zobaczyć większą wersję tego rysunku.
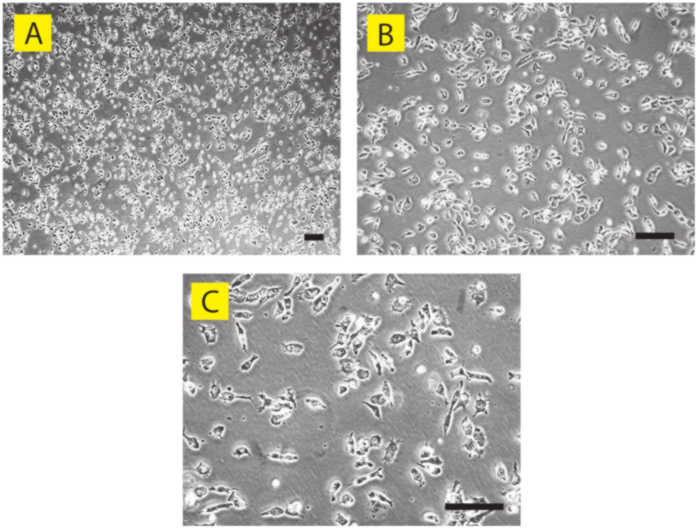
Rycina 3: Obrazy z kontrastem fazowym prawidłowych ludzkich PGCLC jako hodowli wolnej od karmnika (ludzki klon iPSC A4). Hodowla LTC-PGCLC w dniu 56 bez karmienia na szalkach pokrytych BME jest pokazana w (A) niskich, (B) średnich i (C) dużych powiększeniach. Mimo że gęstość komórek jest stosunkowo wysoka, każdy pojedynczy PGCLC nie tworzy bliskich kontaktów międzykomórkowych, z wyjątkiem komórek, które niedawno zakończyły podział komórkowy. Ze względu na aktywną cytokinezę niektóre PGCLC wykazują wydłużoną morfologię, podczas gdy inne są okrągłe. Podziałka = 50 μm. Kliknij tutaj, aby zobaczyć większą wersję tego rysunku.
| PGCLC Podłoże podstawowe | |
| Składniki | Głośność |
| MEM w Glasgow | 500 ml |
| Wymiana surowicy nokautującej (KSR) | 75 ml |
| MEM NEAA (100X) | 6 ml |
| Pirogronian sodu (100X) | 6 ml |
| Penicylina-Streptomycyna (100X) | 6 ml |
Tabela 1: Pożywka podstawowa PGCLC. Skład podłoża podstawowego PGCLC (593 ml).
| STO średni 1 | |
| Składniki | Objętośće |
| MEM firmy Dulbecco | 445 ml |
| Surowica cielęca płodu | 50 ml |
| Penicylina-Streptomycyna (100X) | 5 ml |
Tabela 2: STO medium 1. Skład pożywki STO 1 (500 ml).
| STO średni 2 | |
| Składniki | Głośność |
| MEM firmy Dulbecco | 47 ml |
| Surowica cielęca płodu | 2,5 ml |
| Penicylina-Streptomycyna (100X) | 0,5 ml |
| FGF2 (200 μg/ml) | 2,5 μl |
Tabela 3: STO medium 2. Skład pożywki STO 2, która jest uzupełniona o FGF2 w celu zwiększenia wzrostu komórek STO (50 ml).
| Nośnik pamięci MMC-STO | |
| Składniki | Głośność |
| MEM firmy Dulbecco | 42,5 ml |
| Surowica cielęca płodu | 5 ml |
| Dimetylosulfotlenek | 2,5 ml |
Tabela 4: Nośnik pamięci MMC-STO. Skład podłoża do przechowywania MMC-STO, które służy do przygotowania zamrożonych zapasów komórek zasilających STO poddanych działaniu MMC (50 ml).
Dyskusja
Opisana w tym artykule metoda utrzymania PGCLC u ludzi jest stosunkowo prosta, nie wymaga żadnych specjalnych urządzeń ani niestandardowych materiałów. Wcześniej opublikowane metody utrzymania PGCLC u ludzi wymagają częstego sortowania FACS ze względu na znaczne odchylenie komórek od stanu podobnego do PGCLC38. Metody te wymagają również niestandardowej linii komórkowej warstwy zasilającej (m220-5), która nie jest łatwo dostępna w publicznie i międzynarodowo dostępnych repozytoriach 39,40. Włączenie FCS do ich pożywek wprowadza niepewność wynikającą z zależności od działania określonej partii surowicy. Natomiast obecnie prezentowana metoda pozwala na łatwe uzyskanie wielu milionów ludzkich PGCLC, które mogą być przechowywane w stanie zamrożonym przy zachowaniu wysokiej (> 90%) żywotności, bez konieczności stosowania surowicy lub innych odczynników pochodzenia zwierzęcego. Protokół wymaga standardowej linii komórkowej warstwy zasilającej STO, która jest powszechnie dostępna w wielu publicznych repozytoriach. Metoda ta zapewnia bezprecedensowy poziom wygody w obchodzeniu się z ludzkimi PGCLC tak, jakby były to konwencjonalne linie komórkowe. Nieograniczona podaż ludzkich PGCLC uzyskana przy użyciu tej metody poszerzy zakres zastosowań PGCLC u ludzi w takich dziedzinach, jak doświadczalna produkcja ludzkich komórek rozrodczych i/lub gamet, ocena zaburzeń ludzkich komórek rozrodczych, takich jak niepłodność (w tym próby gametogenezy in vitro) lub nowotwory komórek rozrodczych, oraz oceny toksykologiczne potencjalnych substancji toksycznych dla komórek rozrodczych.
Metoda wyklucza FCS w S-CM w celu zminimalizowania pojawiania się niepożądanych typów komórek z ludzkich PGCLC41. Kilka klonów iPSC miało tendencję do wytwarzania niepożądanych typów komórek na etapie zależnym od zasilacza lub później, a niektóre z nich musiały przejść przez dwie lub trzy rundy oczyszczania PGCLC metodą FACS. Jednak po ustaleniu kultury LTC-PGCLC z ponad 50% konflufluacją, konieczność oczyszczania FACS jest zwykle zmniejszona. Wzrost ludzkich PGCLC in vitro jest ściśle zależny od obecności SCF41. Jeśli tempo wzrostu LTC-PGCLC zmniejsza się, zaleca się przetestowanie różnych partii lub odczynników SCF różnych producentów. Ponieważ ludzkie PGCLC eksprymują telomerazę, nie doświadczają starzenia się podczas długotrwałej ekspansji in vitro41. Został on z powodzeniem wykorzystany do ustanowienia LTC-PGCLC pochodzących z męskich i żeńskich ludzkich iPSC o różnym pochodzeniu etnicznym41. Przykładami udanego zastosowania obecnie prezentowanej metody są męskie klony iPSC A4 i A5 (noworodek rasy kaukaskiej), PGP1 (dorosły rasa kaukaska) i 9A13 (dorosły Japończyk) oraz klony żeńskie iPSC ATCC-BXS0116 (kaukaski) i ATCC-BXS0115/ACS-1029 (latynoski). Ogólna stosowalność tej metody i markerów predykcyjnych musi zostać ustalona w przyszłych badaniach.
Konieczność okazjonalnego oczyszczania ludzkich PGCLC metodą FACS zależy od prekursorowego klonu iPSC. Podczas gdy kilka klonów iPSC nigdy nie wymagało wzbogacenia FACS po początkowej izolacji PGCLC jako komórek CD38-dodatnich, niektóre PGCLC musiały zostać wzbogacone jako komórki CD38-dodatnie do trzech razy przez FACS podczas fazy zależnej od zasilacza. PGCLC wzbogacone w FACS inokulowano do świeżo przygotowanych karmników MMC-STO. Wzbogacenie FACS nie jest zwykle wymagane przy każdym przejściu, gdy PGCLC rozpoczynają stabilne wzmacnianie na BME bez zasilacza.
Szczegółowe dane dotyczące proporcji komórek zachowujących cechy podobne do PGC w porównaniu z komórkami odchylającymi się do niepożądanych typów komórek dla poszczególnych klonów iPSC przy każdym pasażowaniu nie są obecnie dostępne. Ogólnie rzecz biorąc, hodowla LTC-hPGCLC stabilizuje się po 2-4 tygodniach hodowli z wielokrotnym pasażowaniem. Gdy ludzkie PGCLC mają tendencję do generowania niepożądanych typów komórek, metoda adhezji różnicowej może skutecznie wzbogacić PGCLC, ponieważ większość niechcianych komórek ma tendencję do silniejszego przylegania do szalki hodowlanej niż PGCLC. Jeśli wielokrotne próby adhezji różnicowej nie pomagają we wzbogaceniu PGCLC, wzbogacanie FACS ludzkich PGCLC jako komórek CD38-dodatnich często eliminuje niechciane komórki, a następnie czysty LTC-hPGCLC można utrzymać tylko przy użyciu metody adhezji różnicowej. Ustanowienie długoterminowej hodowli ludzkich PGCLC wygenerowanych przy użyciu metody 2D opisanej przez Overeema i wsp. było czasami wyzwaniem. Jednak te same ludzkie PGCLC, które uzyskały odporność na apoptozę poprzez nokaut genów proapoptotycznych CRISPR, zostały łatwo rozszerzone na LTC-hPGCLC. Szczegóły dotyczące zgodności tej metody z każdym pojedynczym ludzkim iPSC i PGCLC muszą zostać zbadane w przyszłych badaniach.
Podczas gdy komórki warstwy zasilającej STO traktowane MMC początkowo wspierają przetrwanie i proliferację świeżo wyizolowanych ludzkich PGCLC, szybko proliferujące PGCLC rozszerzają się in vitro bez warstwy zasilającej, o ile są wspierane przez pożywkę kondycjonowaną przez STO i powłokę BME naczyń. Unikalną zaletą obecnie prezentowanej metody w porównaniu z innymi podejściami jest możliwość ustanowienia LTC-hPGCLC jako hodowli wolnej od karmienia. Komórki warstwy zasilającej MMC-STO wykazują początkowe oznaki pogorszenia stanu pożywki S-CM po 5-6 dniach hodowli. W dniach 6-7 (Rysunek 1A-D) warstwa zasilająca wykazuje niewielkie uszkodzenia, które stają się bardziej widoczne w dniach 14-15 (Rysunek 1E,F). W przypadku braku komórek zasilających, wskaźnik przeżywalności świeżo izolowanych ludzkich PGCLC jest zazwyczaj niski, najwyraźniej ze względu na ich słabą skuteczność w przyleganiu do dna szalek do hodowli komórkowych. Spekuluje się, że białka macierzy zewnątrzkomórkowej zdeponowane przez komórki MMC-STO ułatwiają adhezję i przetrwanie PGCLC nawet po pogorszeniu się stanu komórek MMC-STO. Gdy liczba ludzkich PGCLC stanie się wystarczająco duża, aby utworzyć widoczne skupiska do 14-15 dnia, macierz zewnątrzkomórkowa zdeponowana przez same PGCLC może być wystarczająca do wsparcia ich dalszego przetrwania i proliferacji. Potwierdzając to założenie, inokulacja świeżo wyizolowanych ludzkich PGCLC o dużej gęstości (np. 100 000 komórek w studzience 12-dołkowej) do niezasilających, pokrytych BME studzienek często inicjuje udaną ekspansję kultury LTC-hPGCLC. Z drugiej strony, stosowanie pożywki kondycjonowanej MMC-STO jest absolutnie wymagane w całej ludzkiej hodowli PGCLC, co podkreśla znaczenie ciągłego kondycjonowania przez komórki MMC-STO.
Ważne jest, aby utrzymać stosunkowo wysoką gęstość hodowli LTC-PGCLC na BME, aby zahamować pojawianie się niepożądanych typów komórek. Zaleca się przechodzenie PGCLC przy zbieganiu większym niż 25%. Zaszczepianie PGCLC o mniejszej gęstości zwiększa ryzyko wytworzenia niepożądanych komórek. Ponieważ czas podwojenia populacji ludzkich PGCLC wynosi około 4,5 dnia41, rutynowe cotygodniowe pasażowanie jest zazwyczaj wystarczające do utrzymania długotrwałej hodowli. Jeśli duża część PGCLC odbiega od swoich cech podobnych do PGC i jeśli technika adhezji różnicowej lub FACS jest niewystarczająca do usunięcia niechcianych komórek, należy rozważyć inokulację warstwy zasilającej MMC-STO do studzienek pokrytych BME zamiast powlekania żelatynowego i/lub wydłużyć hodowlę komórek MMC-STO do 3 lub 4 dni przed inokulacją PGCLC.
Charakterystyka morfologiczna i ekspresja markerów wśród niepożądanych typów komórek różni się znacznie, chociaż można je łatwo zidentyfikować pod standardową mikroskopią z kontrastem fazowym (ryc. 2). Komórki wykazujące zagregowane cechy wzrostu lub spłaszczony wygląd odbiegają od cech podobnych do PGC. Ekspresja standardowych markerów PGC, takich jak PRDM1 lub TFAP2C, jest zwykle zmniejszona w takich niechcianych komórkach, chociaż obecnie nie są dostępne jasne kryteria pozwalające odróżnić niechcianą populację komórek od przekonująco podobnej do PGC populacji komórek, co można potwierdzić za pomocą barwienia immunofluorescencyjnego, FACS lub sekwencji RNA pojedynczej komórki. Na dzień dzisiejszy tożsamość lub znaczenie typów komórek innych niż PGC, które pojawiają się podczas ekspansji LTC-hPGCLC, jest nieznana.
Chociaż metoda przedstawiona w tym artykule wykorzystuje ogniwa warstwy zasilającej STO, ogniwa SNL 76/7 mogą być również wykorzystywane do produkcji kondycjonowanej pożywki i warstwy zasilającej. Niektóre hodowle PGCLC były w stanie przystosować się do długotrwałej hodowli bez przechodzenia przez hodowlę zależną od karmnika, zwłaszcza podczas inicjowania hodowli z dużym rozmiarem inokulum (>100 000 komórek). Z drugiej strony, ustanowienie hodowli LTC-PGCLC może być trudne, gdy rozmiar inicjujący jest mniejszy niż 10 000 komórek. Chociaż kluczowe składniki pożywki kondycjonowanej STO zostały już wcześniej opisane, komponenty, które wspierają długoterminową ekspansję PGCLC, nie zostały jeszcze zidentyfikowane44.
Oświadczenia
Autorzy nie mają do ujawnienia żadnych konfliktów interesów.
Podziękowania
Praca ta była wspierana przez granty NIH R01ES035401, R21ES034468, R21HD110839, R21DA059789 i R21CA290650 dla TS. TS jest również laureatem grantu Fundacji Johna Templetona nr 63299 (kierownik projektu, John McCarrey, University of Texas, San Antonio). Część prezentowanego badania była również wspierana przez James Patrick Stowe Fund (PI, Philip Saylor, Massachusetts General Hospital).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 6-dołkowe płytki do hodowli komórkowych | Corning | 3506 | |
| Dokładności | Innowacyjne technologie komórkowe | Zobacz materiał AT104 | Przechowywać w temperaturze -20 stopni; C przez 6 miesięcy. |
| Plastikowe naczynia poddane hodowli komórkowej o średnicy 10 cm (szalki P10) | Corning | 353003 | |
| Plastikowe naczynia poddane hodowli komórkowej o średnicy 15 cm (szalki P15) | Corning | 353025 | |
| Fiolka kriogeniczna | Millipore-Sigma | CLS431417 | |
| CryoStor CS10 | Technologie STEMCELL | 7930 | Przechowywać w temperaturze 4 stopni Celsjusza. |
| Dimetylosulfotlenek | Fisher Naukowy | Zobacz materiał BP231-1 | Przechowywać w temperaturze pokojowej. Klasa hodowli komórkowej. |
| Dulbecco; s Sól fizjologiczna buforowana fosforanami (bez Ca/Mg) (DPBS) | Gibco (firma Gibco) | 14190144 | Przechowywać w temperaturze pokojowej. Klasa hodowli komórkowej. |
| Minimalna niezbędna pożywka Dulbecco (MEM firmy Dulbecco) | Corning | 10-013-CM | Przechowywać w temperaturze 4 stopni Celsjusza. Podłoże zawierające 4,5 g/l glukozy, 1X L-glutaminę i 1X pirogronian sodu. |
| Surowica cielęca płodu | CPS Serum | FBS-500 | Przechowywać w temperaturze -20 stopni; C na 12 miesięcy. |
| Żelatyna | Technologie STEMCELL | 7903 | 0,1% w wodzie. Sterylny. |
| Glasgow's Miminum Essential Medium (MEM z Glasgow) | Gibco (firma Gibco) | 11710-035 | Przechowywać w temperaturze 4 stopni Celsjusza. |
| Ludzki rekombinowany czynnik wzrostu fibroblastów 2 (FGF2) | PeproTech | 100-18 mld | Przechowywać w temperaturze -80 stopni; C na 3 miesiące. |
| Ludzki czynnik rekombinowanych komórek macierzystych (SCF) | PeproTech | 300-07 | Rozpuścić w wodzie zgodnie z instrukcją producenta. Przechowywać w temperaturze -80 stopni; C przez 3 miesiące. |
| Zamiennik Nokautującego Serum Q | Gibco (firma Gibco) | 10828-028 | Przechowywać w temperaturze -20 stopni; C przez 6 miesięcy. |
| Matrigel (kwalifikowany ludzki embrionalny komórka macierzysta) | Corning | 354277 | |
| Minimum Essential Medium Aminokwasy endogenne (MEM NEAA) | Gibco (firma Gibco) | 11140-050 | Przechowywać w temperaturze 4 stopni Celsjusza. |
| Mitomycyna-C (10 mM w wodzie) | Millipore-Sigma | Zobacz materiał M5353 | Rozpuść Mitomycynę-C (MMC) w wodzie i przefiltruj sterylnie (0,22 mM wielkość porów). Przechowywać 100 ml porcji w temperaturze -20 & deg; C przez 6 miesięcy. Aby rozmrozić zamrożony MMC, rozmrozić fioletowe kryształy w gorącej kąpieli wodnej (>60 ° C) do ciemnofioletowego roztworu. |
| Penicylina-Streptomycyna (100X) | Gibco (firma Gibco) | 15140-122 | Przechowywać w temperaturze 4 stopni Celsjusza. |
| Probówki wirówkowe z tworzywa sztucznego (15 ml) | Corning | 352196 | |
| Probówki wirówkowe z tworzywa sztucznego (50 ml) | Corning | 352070 | |
| Pirogronian sodu (100X) | Gibco (firma Gibco) | 11360-070 | Przechowywać w temperaturze 4 stopni Celsjusza. |
| Mysie fibroblasty zarodkowe STO | Kontroler ATCC (Kontroler T | CRL-1503 | |
| Błękit trypanowy (0,4%) | Fisher Naukowy | Zobacz materiał T10282 | Przechowywać w temperaturze pokojowej. |
| TrypLE Ekspresowy | Gibco (firma Gibco) | 12604-013 | Przechowywać w temperaturze pokojowej. |
| Y-27632 (10 mM w wodzie) | Tocris powiedział: | 1254 | Rozpuść Y-27362, który jest inhibitorem ROCK, w wodzie do 10 mM i przefiltruj sterylnie (0,22 mM wielkość porów). Przechowywać 100 ml porcji w temperaturze -20 & deg; C przez 6 miesięcy. |
Bibliografia
- Lee, S. M., Smela, M. P., Surani, M. A. The role of KLF4 in human primordial germ cell development. Open Biol. 15 (1), 240214(2025).
- Castillo-Venzor, A., et al. Origin and segregation of the human germline. Life Sci Alliance. 6 (8), e202201706(2023).
- Saitou, M. Mammalian germ cell development: From mechanism to in vitro reconstitution. Stem Cell Rep. 16 (4), 669-680 (2021).
- Boroviak, T., et al. Single cell transcriptome analysis of human, marmoset and mouse embryos reveals common and divergent features of preimplantation development. Development. 145 (21), dec167833(2018).
- Kobayashi, T., et al. Principles of early human development and germ cell program from conserved model systems. Nature. 546 (7658), 416-420 (2017).
- Tang, W. W., Kobayashi, T., Irie, N., Dietmann, S., Surani, M. A. Specification and epigenetic programming of the human germ line. Nat Rev Genet. 17 (10), 585-600 (2016).
- Irie, N., et al. Sox17 is a critical specifier of human primordial germ cell fate. Cell. 160 (1-2), 253-268 (2015).
- Kojima, Y., et al. Evolutionarily distinctive transcriptional and signaling programs drive human germ cell lineage specification from pluripotent stem cells. Cell Stem Cell. 21 (4), 517-532.e5 (2017).
- Alves-Lopes, J. P., et al. Specification of human germ cell fate with enhanced progression capability supported by hindgut organoids. Cell Rep. 42 (1), 111907(2023).
- Chitnis, M. S., Gao, X., Marlena, J., Holle, A. W. The mechanical journey of primordial germ cells. Am J Physiol Cell Physiol. 327 (6), C1532-C1545 (2024).
- Barton, L. J., Roa-De La Cruz, L., Lehmann, R., Lin, B. The journey of a generation: Advances and promises in the study of primordial germ cell migration. Development. 151 (7), dev201102(2024).
- Grimaldi, C., Raz, E. Germ cell migration-evolutionary issues and current understanding. Semin Cell Dev Biol. 100, 152-159 (2020).
- Hen, G., Sela-Donenfeld, D. "A narrow bridge home": The dorsal mesentery in primordial germ cell migration. Semin Cell Dev Biol. 92, 97-104 (2019).
- Cantu, A. V., Laird, D. J. A pilgrim's progress: Seeking meaning in primordial germ cell migration. Stem Cell Res. 24, 181-187 (2017).
- Molyneaux, K. A., et al. The chemokine SDF1/CXCL12 and its receptor CXCR4 regulate mouse germ cell migration and survival. Development. 130 (18), 4279-4286 (2003).
- Sasaki, K., et al. The germ cell fate of cynomolgus monkeys is specified in the nascent amnion. Dev Cell. 39 (2), 169-185 (2016).
- Li, L., et al. Single-cell RNA-seq analysis maps development of human germline cells and gonadal niche interactions. Cell Stem Cell. 20 (6), 891-892 (2017).
- Gomes Fernandes, M., Bialecka, M., Salvatori, D. C. F., Chuva De Sousa Lopes, S. M. Characterization of migratory primordial germ cells in the aorta-gonad-mesonephros of a 4.5-week-old human embryo: A toolbox to evaluate in vitro early gametogenesis. Mol Hum Reprod. 24 (5), 233-243 (2018).
- Hayashi, K., et al. Offspring from oocytes derived from in vitro primordial germ cell-like cells in mice. Science. 338 (6109), 971-975 (2012).
- Ishikura, Y., et al. In vitro reconstitution of the whole male germ-cell development from mouse pluripotent stem cells. Cell Stem Cell. 28 (12), 2167-2179.e9 (2021).
- Miyoshi, N., et al. Erasure of DNA methylation, genomic imprints, and epimutations in a primordial germ-cell model derived from mouse pluripotent stem cells. Proc Natl Acad Sci U S A. 113 (34), 9545-9550 (2016).
- Sasaki, K., et al. Robust in vitro induction of human germ cell fate from pluripotent stem cells. Cell Stem Cell. 17 (2), 178-194 (2015).
- Tang, W. W., et al. A unique gene regulatory network resets the human germline epigenome for development. Cell. 161 (6), 1453-1467 (2015).
- Mitsunaga, S., et al. Relevance of ipsc-derived human pgc-like cells at the surface of embryoid bodies to prechemotaxis migrating pgcs. Proc Natl Acad Sci U S A. 114 (46), E9913-E9922 (2017).
- Yamashiro, C., et al. Generation of human oogonia from induced pluripotent stem cells in vitro. Science. 362 (6412), 356-360 (2018).
- Pierson Smela, M., et al. Rapid human oogonia-like cell specification via transcription factor-directed differentiation. EMBO Rep. 26 (4), 1114-1143 (2025).
- Hwang, Y. S., et al. Reconstitution of prospermatogonial specification in vitro from human induced pluripotent stem cells. Nat Commun. 11 (1), 5656(2020).
- Von Meyenn, F., et al. Comparative principles of DNA methylation reprogramming during human and mouse in vitro primordial germ cell specification. Dev Cell. 39 (1), 104-115 (2016).
- Alves-Lopes, J. P., Wong, F. C. K., Surani, M. A. Human primordial germ cell-like cells specified from resetting precursors develop in human hindgut organoids. Nat Protoc. 19 (4), 1149-1182 (2024).
- Overeem, A. W., et al. Efficient and scalable generation of primordial germ cells in 2d culture using basement membrane extract overlay. Cell Rep Methods. 3 (6), 100488(2023).
- Esfahani, S. N., et al. Derivation of human primordial germ cell-like cells in an embryonic-like culture. Nat Commun. 15 (1), 167(2024).
- Neupane, J., et al. The emergence of human primordial germ cell-like cells in stem cell-derived gastruloids. Sci Adv. 11 (13), eado1350(2025).
- Rodriguez-Polo, I., Moris, N. Using embryo models to understand the development and progression of embryonic lineages: A focus on primordial germ cell development. Cells Tissues Organs. 213 (6), 503-522 (2024).
- Chen, D., et al. Human primordial germ cells are specified from lineage-primed progenitors. Cell Rep. 29 (13), 4568-4582.e5 (2019).
- Zheng, Y., et al. Controlled modelling of human epiblast and amnion development using stem cells. Nature. 573 (7774), 421-425 (2019).
- Zheng, Y., et al. Single-cell analysis of embryoids reveals lineage diversification roadmaps of early human development. Cell Stem Cell. 29 (9), 1402-1419.e8 (2022).
- Gell, J. J., et al. An extended culture system that supports human primordial germ cell-like cell survival and initiation of DNA methylation erasure. Stem Cell Reports. 14 (3), 433-446 (2020).
- Murase, Y., et al. Long-term expansion with germline potential of human primordial germ cell-like cells in vitro. EMBO J. 39 (21), e104929(2020).
- Murase, Y., et al. In vitro reconstitution of epigenetic reprogramming in the human germ line. Nature. 631 (8019), 170-178 (2024).
- Ishikura, Y., Ohta, H., Nagano, M., Saitou, M. Optimized protocol to derive germline stem-cell-like cells from mouse pluripotent stem cells. STAR Protoc. 3 (3), 101544(2022).
- Kobayashi, M., et al. Expanding homogeneous culture of human primordial germ cell-like cells maintaining germline features without serum or feeder layers. Stem Cell Rep. 17 (3), 507-521 (2022).
- Mitsunaga, S., Shioda, K., Isselbacher, K. J., Hanna, J. H., Shioda, T. Generation of human primordial germ cell-like cells at the surface of embryoid bodies from primed-pluripotency induced pluripotent stem cells. J Vis Exp. (143), e58297(2019).
- Mitsunaga, S., Shioda, K., Hanna, J. H., Isselbacher, K. J., Shioda, T. Production and analysis of human primordial germ cell-like cells. Methods Mol Biol. 2195, 125-145 (2021).
- Talbot, N. C., Sparks, W. O., Powell, A. M., Kahl, S., Caperna, T. J. Quantitative and semiquantitative immunoassay of growth factors and cytokines in the conditioned medium of STO and CF-1 mouse feeder cells. In Vitro Cell Dev Biol Anim. 48 (1), 1-11 (2012).
Przedruki i uprawnienia
Ten artykuł został opublikowany
Film wkrótce dostępny