Niniejszy protokół opisuje zastosowanie zminiaturyzowanego systemu płaskich dwuwarstw lipidowych Montala–Muellera z wbudowanym wzmacniaczem do przeprowadzania stabilnych pomiarów z pojedynczego kanału. Metoda została zademonstrowana poprzez rekonstytucję oczyszczonego syntetycznego kanału K2P w celu walidacji wydajności systemu.
Artykuł metodologiczny
Elektrofizjologia jednokanałowa z wykorzystaniem zminiaturyzowanego płaskiego systemu błon lipidowych Montala–Muellera do rejestracji syntetycznego kanału K2P
W tym artykule
Podsumowanie
Streszczenie
Funkcjonalna rekonstytucja kanałów jonowych w płaskich dwuwarstwach lipidowych stanowi strategię badania aktywności kanałów na poziomie pojedynczych cząsteczek. Jednak konwencjonalne systemy dwuwarstw Montala-Muellera zazwyczaj wymagają rozbudowanych układów eksperymentalnych, ręcznego montażu komór oraz stosunkowo dużych objętości rejestracyjnych, co zwiększa zużycie odczynników i może wprowadzać dodatkowe źródła szumów elektrycznych ze względu na rozległe okablowanie i zewnętrzne przedwzmacniacze. W niniejszej pracy przedstawiamy zminiaturyzowaną, gotową do użycia platformę dwuwarstwową (BLMchipMM) zintegrowaną z kompaktowym wzmacniaczem, która umożliwia stabilne pomiary pojedynczych kanałów przy zmniejszonym zużyciu odczynników i uproszczonej obsłudze. Niniejszy protokół opisuje zastosowanie tego systemu do przeprowadzania elektrofizjologicznych pomiarów pojedynczych kanałów. Wykorzystując ten system, dokonaliśmy rekonstytucji syntetycznego kanału K2P (ancTREK1), który posłużył jako białko testowe w celu walidacji rekonstytucji oraz rejestracji pojedynczych kanałów. Pomiary pojedynczych kanałów wykazują zależność prądowo-napięciową w symetrycznych roztworach K+ wolnych od Mg2+, z wartościami przewodnictwa zgodnymi z tymi raportowanymi dla kanałów TREK1. Pomyślna rekonstytucja tego kanału typu K2P demonstruje użyteczność tego systemu do analizy pojedynczych kanałów w membranach sztucznych.
Wprowadzenie
Rekonstytucja kanałów jonowych w sztucznych błonach lipidowych, znanych również jako czarne błony lipidowe (BLM), jest jedną z uznanych technik służących do elektrofizycznej charakterystyki kanałów jonowych na poziomie pojedynczych cząsteczek1. Zalety BLM wynikają z ich budowy. Płaska błona lipidowa (PLB) powstaje w porze w powierzchni niepolarnej, oddzielając dwa roztwory ciekłe. Dzięki temu, naśladując błonę biologiczną, umożliwia ona rejestrację aktywności kanałów jonowych w ściśle kontrolowanych warunkach, w tym przy określonym składzie lipidowym błony oraz stężeniach elektrolitów lub związków chemicznych, pozostając jednocześnie dostępną z obu stron. Taka dostępność pozwala również na bezpośrednie wprowadzanie kanałów jonowych, na przykład z roztworu micelarnego lub poprzez fuzję indukowaną liposomami2,3.
Pierwszy opisany system sztucznej błony został stworzony przy użyciu techniki malowania4, w której kropla lipidów rozpuszczonych w nietulnym organicznym rozpuszczalniku jest nanoszona pędzlem na niewielki otwór. Następnie dodanie roztworu wodnego po obu stronach otworu prowadzi do spontanicznego utworzenia się lipidowej dwuwarstwy. Istotną wadą tej metody jest jednak obecność śladów rozpuszczalnika, które mogą wpływać na właściwości błony. Aby zmniejszyć ilość pozostałego organicznego rozpuszczalnika w lipidowych dwuwarstwach, opracowano metodę składania5, umożliwiającą tworzenie BLM „wolnych od rozpuszczalnika”. W tym podejściu roztwór lipidów w lotnym rozpuszczalniku rozprowadza się na powierzchni wody w celu utworzenia dwóch monowarstw, a poprzez stopniowe podnoszenie poziomu fazy wodnej powyżej otworu, monowarstwy lipidowe składają się nad otworem, tworząc dwuwarstwę. Jednak mimo że otrzymana BLM jest definiowana jako wolna od rozpuszczalnika, pomyślne utworzenie dwuwarstwy wymaga wstępnego potraktowania otworu cienką warstwą nietulnego rozpuszczalnika. Podstawowym elementem wymaganym do tych eksperymentów jest komora pomiarowa z dwiema przegrodami wodnymi (zazwyczaj określanymi jako cis i trans), oddzielonymi lipofilną przegrodą z niewielkim otworem (średnicy 50–250 µm) (Rysunek 1). Do każdej przegrody wprowadza się elektrody srebro/chlorek srebra (Ag/AgCl). Po zanurzeniu w roztworze elektrolitu elektrody te ustanawiają połączenie elektrochemiczne między lipidową dwuwarstwą a aparaturą pomiarową. Ta ostatnia składa się z wzmacniacza clamp napięciowego, który umożliwia precyzyjną kontrolę potencjału przezbłonowego oraz jednoczesny pomiar prądów jonowych przepływających przez wbudowane białka tworzące pory.
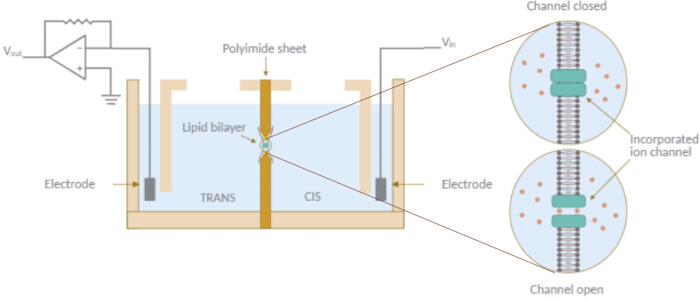
Rysunek 1: Schemat układu elektrofizjologicznego do badania płaskich dwuwarstw lipidowych (PLB). Schemat niezbędnych komponentów wymaganych do eksperymentów PLB. Komora pomiarowa składa się z dwóch przedziałów wodnych (cis i trans) oddzielonych lipofilową przegrodą zawierającą otwór, w którym tworzy się dwuwarstwa lipidowa. Elektrody srebrowe/chlork srebru (Ag/AgCl) są zanurzone w roztworze elektrolitu w każdym z przedziałów. Jedna elektroda przykłada bodźce napięciowe (np. przebiegi sinusoidalne, prostokątne lub trójkątne), podczas gdy druga, uziemiona, jest połączona z przetwornikiem prąd-napięcie, który przekształca prąd jonowy w proporcjonalny sygnał napięcia. Sygnał jest wzmacniany, opcjonalnie filtrowany, digitalizowany i rejestrowany w celu monitorowania i analizy w czasie rzeczywistym. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
Opracowano również inne metody tworzenia BLM. Jednym z powszechnych podejść jest tworzenie dwuwarstw lipidowych zawieszonych na końcówce pipety do patch-clampu. Odpowiednio, metoda „tip-dip”6 umożliwia utworzenie zawieszonej, wolnej od rozpuszczalnika dwuwarstwy lipidowej na otworem szklanej mikropipety o średnicy ~4 µm poprzez wielokrotne zanurzanie końcówki w monowarstwie lipidowej na granicy fazy powietrze-woda, co pozwala na przechwycenie pojedynczej warstwy podczas każdego przejścia. Technika patch-clamp była również stosowana do pomiarów pojedynczych kanałów w dwuwarstwach lipidowych. Na przykład w metodzie „punch-out”7 szklana pipeta o średnicy od 10 do 80 µm jest wykorzystywana do „załatania” dużej membrany, która została pierwotnie naniesiona na otwór w komorze rejestracyjnej. Alternatywnie, metoda liposomalnego patchu polega na wykorzystaniu wcześniej utworzonego pęcherzyka o rozmiarze od nano- do mikroskalowego jako BLM wolnego od rozpuszczalnika8,9. W szczególności gigantyczne pęcherzyki jednowarstwowe były szeroko stosowane do rejestracji pojedynczych kanałów w różnych konfiguracjach patch-clampu, w tym w trybach cell-attached oraz excised patch10,11.
Powstało również kilka platform umożliwiających równoległe i zautomatyzowane tworzenie wielu dwuwarstw. Jednym z takich podejść jest technika dwuwarstwy na styku kropel (DIB, droplet interface bilayer)12, w której krople wodne umieszcza się w mieszaninie lipidowo-rozpuszczalnikowej. W tej metodzie monowarstwy lipidowe samoistnie gromadzą się wokół kropel, a tworzenie dwuwarstwy następuje w momencie zetknięcia się dwóch kropel. W niektórych konfiguracjach DIB mogą być tworzone na hydrożelach w celu poprawy stabilności błony13. Alternatywnym podejściem opartym na tworzeniu DIB na końcówce szklanej pipety jest metoda dwuwarstwy bąbelkowej kontaktowej (CBB, contact bubble bilayer)14, w której bąbelki wodne są wprowadzane do fazy olejowej za pomocą dwóch mikropipet. Podobnie jak w podejściu DIB, dwuwarstwa lipidowa tworzy się samoistnie, gdy dwa pokryte lipidami bąbelki zostaną ze sobą zetknięte. Inną platformę reprezentują systemy BLM w układach macierzowych, które składają się z macierzy dobrze zdefiniowanych porów o rozmiarach od mikro- do nanometrycznych, rozmieszczonych w układzie siatki. W systemach tych zawieszone dwuwarstwy lipidowe mogą być tworzone albo ręcznie — stosując techniki malowania lub składania, albo poprzez pękanie pęcherzyków liposomalnych15,16,17 — albo automatycznie poprzez sekwencyjne wstrzykiwanie roztworów lipidów i buforów w połączeniu ze strukturami kanałów mikrofluidycznych18,19.
Choć opracowano wiele metod tworzenia bezrozpuszczalnikowych BLM, w niniejszej pracy skupiamy się na metodzie składania (folding method) zaimplementowanej w zminiaturyzowanej i zintegrowanej platformie w celu zbadania zachowania pojedynczych kanałów białek błonowych osadzonych w sztucznej dwuwarstwie lipidowej. Eksperymenty przeprowadzono przy użyciu zestawu Elements, który składa się z dwóch komponentów: czytnika nanoporów Elements (wzmacniacz eNPR) oraz BLMchipMM (Ryc. 2A i Ryc. 2B). Pierwszy z nich jest kompaktowym, niskoszumowym wzmacniaczem typu voltage-clamp, który upraszcza przestrzeń roboczą, stanowiąc kompletną i niezależną jednostkę, co eliminuje potrzebę stosowania dodatkowych urządzeń zewnętrznych. BLMchipMM to wstępnie zmontowany i zminiaturyzowany system zaprojektowany dla techniki Montala–Muellera, pełniący funkcję interfejsu eksperymentalnego. Składa się on z przezroczystej komory pomiarowej z polimetakrylanu metylu (PMMA) zintegrowanej z płytką drukowaną (PCB), która zawiera dwa gniazda przeznaczone na druty Ag/AgCl służące jako elektrody do bezpośredniego połączenia ze wzmacniaczem. Rdzeń struktury komory stanowi przegroda polimidowa uszczelniona między dwoma przezroczystymi komponentami PMMA. Przegroda ma grubość 50 µm, z wyjątkiem niewielkiego obszaru centralnego (3,78 mm2), gdzie grubość została zredukowana do 25 µm w celu ułatwienia formowania dwuwarstwy. W centrum tego cieńszego obszaru, za pomocą wiercenia laserowego, wykonano stożkową aperturę, co zwiększa stabilność mechaniczną dwuwarstwy lipidowej20,21. Dostępne są cztery średnice apertur (50, 75, 100 i 140 µm), co umożliwia dostrojenie pojemności błony (Tabela 1). Każdy komponent PMMA posiada jamę w kształcie litery C o objętości 110 µL, tworząc dwie komory fluidyczne po obu stronach przegrody polimidowej do przechowywania roztworu elektrolitu. W każdym bloku PMMA, po przeciwnych stronach, wywiercono dwa skośne kanały fluidyczne: jeden służy do wprowadzenia elektrody Ag/AgCl, a drugi umożliwia ręczną regulację poziomu buforu w zbiorniku za pomocą pipetowania.
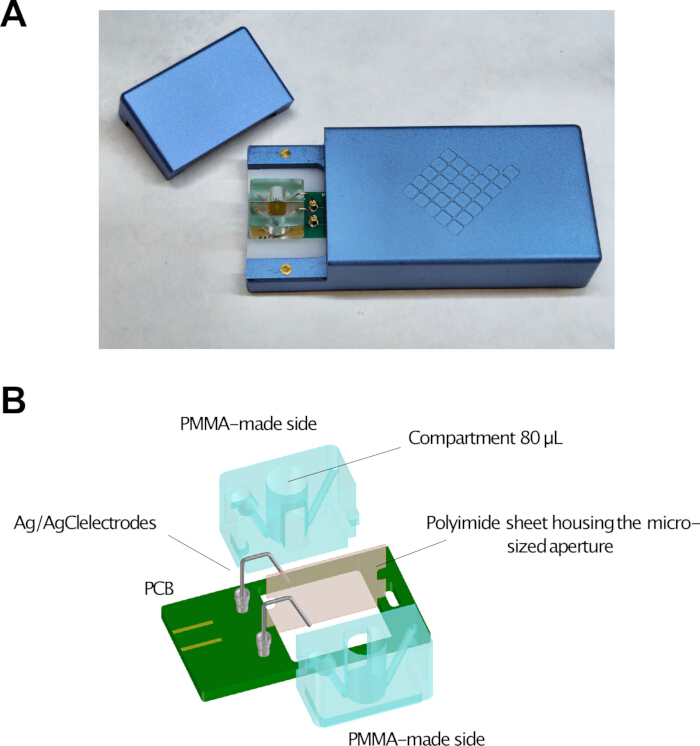
Rysunek 2: System Elements Nanopore Reader i BLMchipMM. (A) Fotografia przedstawiająca BLMchipMM włożony do dedykowanego gniazda wzmacniacza Elements Nanopore Reader (eNPR). (B) Schematyczne przedstawienie komponentów BLMchipMM, w tym komory pomiarowej z polimetakrylanu metylu (PMMA), przegrody polimidowej zawierającej mikroaperturę oraz płytki drukowanej (PCB) z gniazdami dla elektrod Ag/AgCl i szczeliną do wyrównania komory. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
| Średnica otworu (µm) | 50 | 75 | 100 | 140 |
| Grubość otworu (µm) | 25 | 25 | 25 | 25 |
| Typowa pojemność błony (pF) | 20–40 | 40–60 | 60–90 | 90–140 |
Tabela 1: Charakterystyka dostępnych formatów apertur BLMchipMM. Średnica otworu, grubość przegrody w obszarze apertury oraz typowe wartości pojemności błony dla urządzeń BLMchipMM z aperturami 50, 75, 100 i 140 µm. Wartości pojemności błony przedstawiono dla dwuwarstw utworzonych z lipidów 1,2-difitanoylo-sn-glycero-3-fosfocholinowych.
Komory pomiarowe stosowane zazwyczaj w laboratoriach są albo jednostkami wykonanymi samodzielnie, albo urządzeniami dostępnymi w sprzedaży. W pierwszym przypadku budowa systemu wiąże się z montażem różnych komponentów oraz opracowaniem niezawodnej metody tworzenia otworu w przegrodzie, co może ograniczać dostępność takiej metody dla wielu laboratoriów. Nawet w przypadku korzystania z urządzeń komercyjnych często wymagana jest ręczna integracja wielu elementów przed każdym eksperymentem. W przeciwieństwie do nich, BLMchipMM jest wstępnie zmontowany i nie wymaga demontażu pomiędzy eksperymentami w celu przeprowadzenia rutynowych procedur czyszczenia. Ta sama jednostka może być myta i wykorzystywana wielokrotnie w wielu eksperymentach bez pogorszenia jakości tworzenia błony, pod warunkiem, że stosowane rozpuszczalniki są kompatybilne z materiałami urządzenia. Zmniejsza to zmienność zależną od użytkownika i minimalizuje ryzyko wycieków związanych z ręcznymi elementami uszczelniającymi. Zastosowanie zewnętrznych, wymiennych i regenerowalnych elektrod z drutu srebrnego dodatkowo wydłuża czas użytkowania systemu, szczególnie w warunkach eksperymentalnych przyspieszających zużycie elektrod.
Co więcej, urządzenia wykonane domowymi sposobami często charakteryzują się dużymi objętościami komór, co zwiększa ilość komponentów biologicznych i chemicznych wymaganych do przeprowadzenia eksperymentów. W przeciwieństwie do nich, miniaturyzacja BLMchipMM pozwala na zminimalizowanie objętości doświadczalnych, co znacząco redukuje zużycie odczynników, białek i innych związków. Jest to szczególnie korzystne w przypadku pracy z białkami błonowymi, których ekspresja jest utrudniona lub które charakteryzują się niską wydajnością, a także gdy wysoki koszt syntezy związków testowych zwiększa całkowity koszt badań. Co istotne, BLMchipMM umożliwia tworzenie dwuwarstw z minimalną ilością rozpuszczalnika i wspiera asymetryczne konfiguracje błon, w których każda warstwa może składać się z innych gatunków lipidów5,22, co ułatwia badanie funkcji białek błonowych w kontrolowanych warunkach.
Tradycyjnie pomiary prądu wykonuje się przy użyciu wzmacniaczy przeznaczonych do eksperymentów patch-clamp, które często wymagają podłączenia do osobnego digitalizera w celu akwizycji danych i sterowania za pomocą interfejsów graficznych. Systemy te są nie tylko nieporęczne i kosztowne, ale często wiążą się również z nieintuicyjnymi procedurami konfiguracji dla użytkowników niebędących ekspertami. Ponadto, ze względu na rozmiar komory rejestracyjnej i konstrukcję standardowych wzmacniaczy — które zazwyczaj nie posiadają wbudowanego ekranowania chroniącego wejście stopnia przedwzmacniacza przed zakłóceniami elektrostatycznymi — często niezbędne jest zastosowanie zewnętrznej klatki Faradaya. Jakość i uziemienie takiej klatki mogą znacząco wpływać na poziom szumów systemu. BLMchipMM, stosowany z kompaktowym zintegrowanym wzmacniaczem, upraszcza tę konfigurację, ograniczając potrzebę stosowania zewnętrznych komponentów. Digitalizacja sygnału odbywa się wewnątrz urządzenia, a obudowa systemu zapewnia ekranowanie, które zmniejsza podatność na zakłócenia elektromagnetyczne z otoczenia.
Aby zademonstrować przydatność tej platformy, jako białko testowe do walidacji skutecznej rekonstytucji i rejestracji pojedynczych kanałów wykorzystano ancTREK1 — kanał typu K2P będący obliczeniowo wyznaczonym przodkiem podrodziny TREK (Supplementary Figure 1). Kanały K2P tworzą dimeryczne kanały przeciekowe dla potasu, które regulują spoczynkowy potencjał błonowy oraz pobudliwość komórkową, przy czym kanały TREK stanowią dobrze scharakteryzowaną podrodzinę.
Protokół
Badanie to nie obejmowało uczestników będących ludźmi, materiałów pochodzenia ludzkiego ani zwierząt doświadczalnych. W związku z tym, zgodnie z wytycznymi instytucjonalnymi i krajowymi, nie wymagano zgody komisji etycznej.
1. Przygotowanie układu do elektrofizjologii
- Kalibracja instrumentu
Choć formalna kalibracja nie jest wymagana, ponieważ system jest skonfigurowany fabrycznie, należy zweryfikować prawidłowe działanie systemu przed formowaniem błony.- Zmierz rezystancję wejściową w warunkach otwartego obwodu (tzn. bez włożonego BLMchipMM). Zmierzona rezystancja powinna wynosić ≥1 TΩ, co potwierdza spójność wejścia wzmacniacza.
- Zweryfikuj odpowiedź systemu, używając komórki modelowej zawierającej rezystor 1 GΩ. Zmierzona rezystancja powinna wynosić 1 GΩ z dokładnością do ±30%, co jest zgodne z tolerancją zintegrowanego rezystora.
- Zmierz szum bazowy w warunkach otwartego obwodu przy stałym napięciu (0 mV). Szum RMS powinien wynosić ≤300 fA przy częstotliwości próbkowania 10 kHz i szerokości pasma 5 kHz, co potwierdza niskoszumową pracę systemu.
- Przygotowanie elektrod Ag/AgCl
- Przy pierwszym użyciu przepłucz srebrne druty etanolem i wodą dwukrotnie destylowaną.
- W przypadku drutów używanych wcześniej, użyj papieru ściernego o bardzo drobnej ziarnistości, aby usunąć starą warstwę Ag/AgCl z powierzchni drutu, aż powierzchnia stanie się jednorodnie jasnosrebrna z czystym metalicznym połyskiem i bez widocznych osadów. Następnie przepłucz etanolem i wodą dwukrotnie destylowaną.
- Chloruj końcową część srebrnych drutów, mocząc je w 1%–5% podchlorynie sodu (NaOCl) (Rycina 3A), aż staną się jasnoszare, zazwyczaj przez 15–30 min. Monitoruj chlorowane druty w czasie pod kątem degradacji podczas użytkowania, która objawia się zmianą koloru, dryftem prądu bazowego lub obiema tymi zmianami.
UWAGA: Chlorowanie można przeprowadzić za pomocą zwykłego wybielacza domowego (1%–5% NaOCl).
OSTROŻNIE: Nie chloruj drutów na całej ich długości. Pozostaw niechlorowaną część końcową, która wchodzi w gniazdo PCB, aby zapewnić prawidłowe połączenie elektryczne.
OSTROŻNIE: Gniazda na PCB są zaprojektowane dla srebrnych drutów o średnicy 0,5 mm. Inne średnice mogą nie pasować prawidłowo lub mogą prowadzić do niestabilnych połączeń.
- Montaż BLMchipMM
- Włóż niechlorowaną część końcową dwóch srebrnych drutów do gniazd PCB. W razie potrzeby użyj pęsety, aby ustawić je prawidłowo (Rycina 3B).
- Umieść chlorowane końce drutów w kanałach płynowych wywierconych w komponencie PMMA (Rycina 3C).
- Delikatnie obróć BLMchipMM i zamontuj go na PCB, dopasowując dolny ząb komory rejestracyjnej PMMA do dedykowanego otworu (Rycina 3D).
- Sprawdź położenie drutów i upewnij się, że sięgają one końca kanałów płynowych. W razie potrzeby delikatnie dopychaj druty, aż ich końce pojawią się na dnie komór (Rycina 3E).
OSTROŻNIE: Ustaw druty jak najbliżej komponentu PMMA. Nadmierne wygięcie może spowodować kontakt z pokrywą wzmacniacza, co doprowadzi do zwarcia i saturacji sygnału.
- Przygotowanie lipidów i roztworu do rejestracji
- Przygotuj 100 µL 1% (v/v) roztworu heksadekanu w 100% n-heksanie do wstępnej obróbki otworu przegrody. Przechowuj ten roztwór w temperaturze −20°C do jednego tygodnia.
- Resuspenduj lipidy 1,2-diphytanoyl-sn-glycero-3-phosphocholine (DPhPC) w 100% n-pentanie do końcowego stężenia 15 mg/mL. Przechowuj ten roztwór w temperaturze −20°C do 24 h.
- Przygotuj elektrolityczny roztwór do rejestracji w temperaturze pokojowej (RT; 20°C–25°C), mieszając 3 mL 1 M roztworu stokowego KCl z 150 µL 1 M roztworu stokowego kwasu 4-(2-hydroksyetylo)-1-piperazynoetanosulfonowego (pH 7,4 skorygowane za pomocą KOH przy użyciu pH-metru). Dodaj wodę dwukrotnie destylowaną, aby uzyskać końcową objętość 15 mL. Przechowuj roztwór w temperaturze 4°C do jednego tygodnia (Tabela 2).
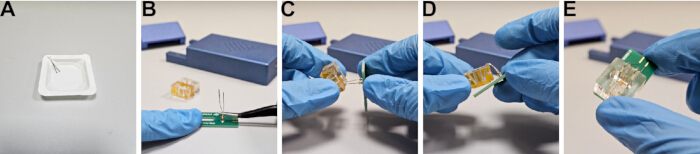
Rysunek 3: Montaż urządzenia BLMchipMM. (A) Chlorowanie drutów Ag poprzez moczenie w wybielaczu. (B) Wkładanie drutów Ag do gniazd PCB. (C) Pozycjonowanie drutów Ag w kanałach mikroprzepływowych. (D) Umieszczenie komory rejestracyjnej na PCB. (E) Weryfikacja prawidłowego rozmieszczenia elektrod w kanałach płynowych. Kliknij tutaj, aby zobaczyć większą wersję tego rysunku.
| Odczynnik | Stężenie końcowe | Objętość |
| Woda dwukrotnie destylowana | — | Dodać do 15 ml |
| Chlorek potasu (KCl) (1 M) | 200 mM | 3 ml |
| HEPES pH 7,4 (KOH) (1 M) | 10 mM | 150 µL |
Tabela 2: Roztwór elektrolitu do rejestracji. Skład roztworu elektrolitu stosowanego do rejestracji PLB, zawierający stężenia odczynników i objętości przygotowania. Objętość końcową doprowadza się do 15 mL za pomocą wody dwukrotnie destylowanej. Przed użyciem roztwór do rejestracji należy przefiltrować przez filtr strzykawkowy o rozmiarze 0,2 µm.
UWAGA: Przed użyciem przefiltruj roztwór do rejestracji za pomocą filtra strzykawkowego 0,2 µm. Lipidy DPhPC mogą być dostarczone w formie suchego proszku lub rozpuszczone w chloroformie. Obie formy należy przechowywać w temperaturze −20°C w szczelnych szklanych fiolkach w atmosferze gazu obojętnego, aby zapobiec utlenianiu. Przed otwarciem należy pozwolić, aby suchy proszek osiągnął temperaturę pokojową (RT). Świeże roztwory z suchego proszku należy przygotować i zużyć w ciągu 24 h. W przypadku stosowania zapasów w chloroformie, przed resuspensją należy całkowicie odparować rozpuszczalnik w strumieniu azotu, ponieważ pozostałości chloroformu mogą destabilizować błonę.
2. Formowanie PLB metodą Montala-Muellera
Następujące kroki opisują tworzenie sztucznej membrany przy użyciu metody składania, nazywanej również techniką Montala-Muellera5 (Rysunek 4). Podejście to polega na wstępnym potraktowaniu otworu przegrody cienką warstwą 1% (v/v) heksadekanu w n-heksanie, naniesieniu roztworu lipidów w celu utworzenia monowarstw na granicy powietrze–woda oraz składaniu monowarstw nad otworem w miarę sukcesywnego podnoszenia poziomu roztworu elektrolitu w komorach.
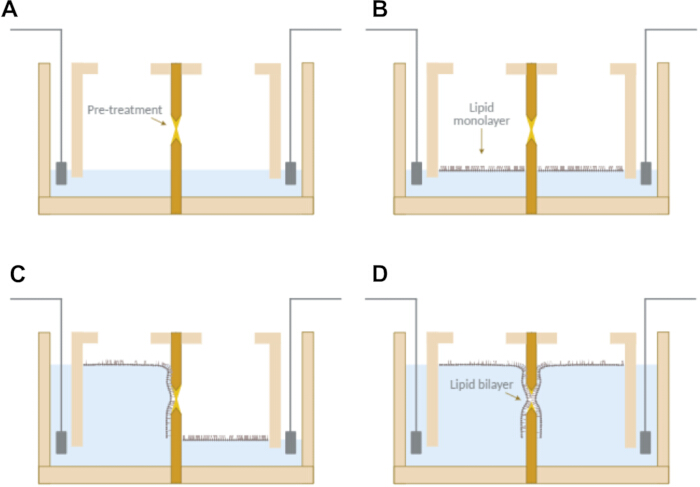
Rysunek 4: Tworzenie PLB metodą Montala–Muellera. (A) Obróbka wstępna otworu 1% heksadekanem w n-heksanie i napełnienie komór do poziomu otworu. (B) Tworzenie monowarstw lipidowych na granicy powietrze-woda. (C i D) Sekwencyjne podnoszenie poziomu buforu w każdej komorze, prowadzące do zwinięcia monowarstw i utworzenia wolnej od rozpuszczalnika dwuwarstwy lipidowej w obrębie otworu. Proszę kliknąć tutaj, aby zobaczyć powiększoną wersję tego rysunku.
- Tworzenie błony
- Obróbkę wstępną otworu przegrody przeprowadź za pomocą końcówki pipety, używając 1% (v/v) roztworu heksadekanu w n-heksanie. Nanieś około 2 µL na każdą stronę (Rycina 4A).
- Pozostaw rozpuszczalnik do odparowania przez 5 min w temperaturze 23°C–25°C i wilgotności względnej 45%–50%.
- Włóż zmontowany chip BLMchipMM do wzmacniacza.
- Podłącz wzmacniacz do komputera za pomocą kabla USB i otwórz oprogramowanie do akwizycji danych.
- Ustaw zakres prądu na 2 nA i aktywuj narzędzie do szacowania RC, aby monitorować pojemność i oporność błony.
UWAGA: Ustawienia szacowania RC są skonfigurowane domyślnie, ale można je dostosować w razie potrzeby. - Wypełnij każdą komorę 30 ± 2 µL roztworu pomiarowego, aż do dolnej krawędzi otworu (Rycina 4A).
OSTRZEŻENIE: Nie dopuść do zwilżenia roztworem pomiarowym obszaru wokół otworu. - Nanieś kroplowo 2,5 ± 0,1 µL roztworu lipidów na powierzchnię fazy wodnej w każdej komorze (Rycina 4B).
- Pozostaw rozpuszczalnik do odparowania przez 2 min.
- Umieść końcówkę pipety na dnie jednej z komór pod kątem około 90° i dodaj 80 ± 2 µL roztworu pomiarowego. Powtórz czynność dla drugiej komory (Rycina 4C oraz Rycina 4D).
UWAGA: Czasy odparowania rozpuszczalnika odnoszą się do warunków 23°C–25°C, nieruchomego powietrza i wilgotności względnej 45%–50%. - Zamknij pokrywę klatki Faradaya i monitoruj sygnał prądowy. Wartości oporności błony powyżej 200 GΩ wskazują na pomyślne utworzenie dwuwarstwy i dobrą integralność błony.
UWAGA: Pomyślne utworzenie błony sygnalizuje prąd w postaci przebiegu prostokątnego fluktuującego wokół zera, z amplitudą proporcjonalną do pojemności błony (Rycina 5A).
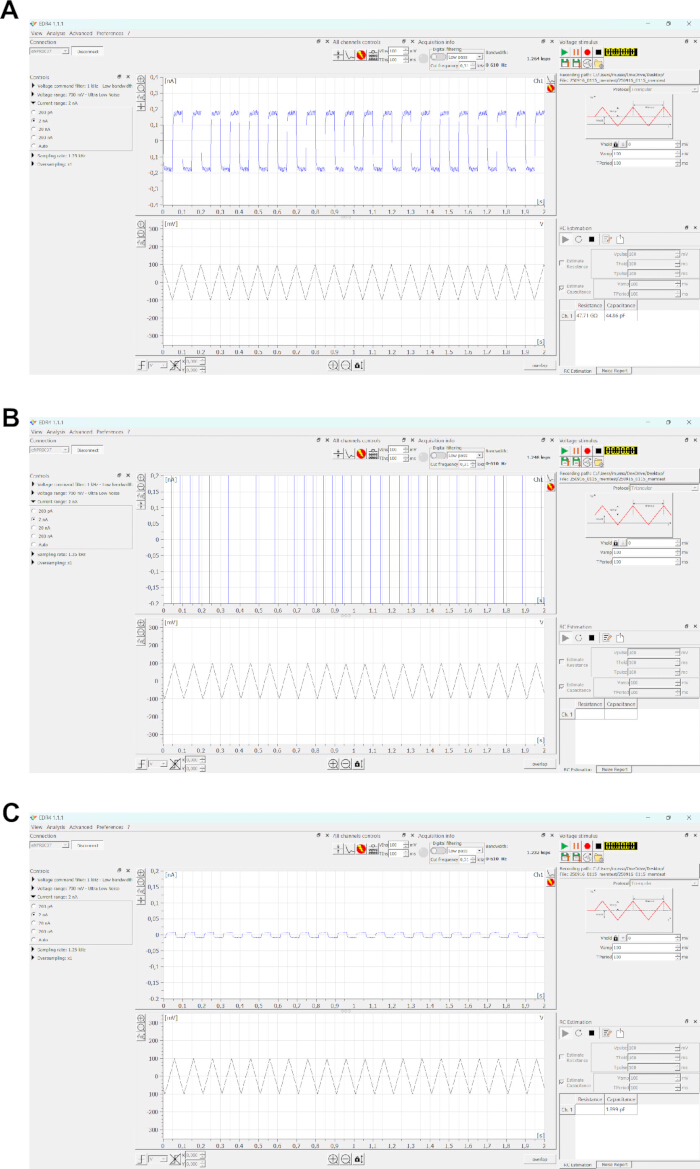
Rycina 5: Monitorowanie tworzenia błony za pomocą interfejsu oprogramowania akwizycyjnego. (A) Reprezentatywny zapis pokazujący pomyślne utworzenie błony. Trójkątny przebieg napięcia (100 mV peak-to-peak, 10 Hz) generuje prostokątny prąd pojemnościowy proporcjonalny do pojemności błony (~45 pF). (B) Reprezentatywny zapis wskazujący na brak utworzenia błony, charakteryzujący się nasyceniem sygnału prądowego. (C) Sygnał pojemnościowy odpowiadający pojemności pasożytniczej w przypadku braku utworzenia dwuwarstwy, np. gdy otwór jest odsłonięty. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
UWAGA: Sygnał przełączający się między granicami zakresu prądowego wskazuje na uszkodzenie membrany (Rysunek 5B).
UWAGA: Szum RMS rośnie wraz z pojemnością błony, a tym samym wraz z rozmiarem otworu. Typowe zakresy szumów mierzone w warunkach stałego napięcia (0 mV), przy częstotliwości próbkowania 5 kHz i szerokości pasma 2,5 kHz, wynoszą: 0,48–2,00 pA (50 µm); 0,74–2,62 pA (75 µm); 1,00–3,52 pA (100 µm) oraz 1,59–5,27 pA (140 µm).
UWAGA: Obniżanie i podwyższanie poziomu buforu w jednej z komór może wspomóc tworzenie błony, jeśli pierwsze próby okażą się niepowodzeniem.
UWAGA: W razie potrzeby, aby ułatwić formowanie się dwuwarstwy, należy za pomocą końcówki pipety przyłożyć pęcherzyk powietrza nad otworem przez ok. 5 s.
UWAGA: Obniżenie poziomu buforu poniżej apertury lub wprowadzenie pęcherzyka powietrza może spowodować powstanie sygnału odpowiadającego pojemności pasożytniczej (Rycina 5C). Jeśli sygnał wyjściowy przypomina Rycynę 5B, obróbka wstępna mogła być nieskuteczna. Należy ponownie zastosować roztwór do obróbki wstępnej i lipidy lub wyczyścić urządzenie i powtórzyć procedurę.
UWAGA: Kompensację przesunięcia napięcia należy przeprowadzać wyłącznie w przypadku braku membrany. Jeśli membrana jest obecna, należy ją przerwać za pomocą funkcji ZAP przed dokonaniem kompensacji.
UWAGA: Eksperymenty można przeprowadzić na standardowym stole laboratoryjnym; w razie potrzeby można jednak zastosować stół antywibracyjny.
3. Czyszczenie BLMchipMM
- Zdejmij komorę pomiarową z płytki PCB.
- Umyj obie sekcje oraz kanały płynowe 100% alkoholem izopropylowym (IPA).
OSTRZEŻENIE: Czas kontaktu z IPA nie może przekroczyć 1 min.
OSTRZEŻENIE: Nie należy używać acetonu ani 100% etanolu, ponieważ rozpuszczalniki te mogą uszkodzić materiał uszczelniający komorę.
UWAGA: Przed użyciem należy sprawdzić kompatybilność wszelkich dodatkowych rozpuszczalników z PMMA. - Dokładnie wypłucz wodą dwukrotnie destylowaną.
- Całkowicie osusz komorę pomiarową, używając delikatnego strumienia sprężonego powietrza, aż do całkowitego usunięcia widocznych kropel wody.
UWAGA: Obejrzyj komorę pod powiększającą lupą z oświetleniem, aby upewnić się, że nie pozostały na niej tłuste filmy. W razie potrzeby powtórz procedurę czyszczenia i suszenia.
UWAGA: Przed rozpoczęciem nowego eksperymentu upewnij się, że komora jest całkowicie czysta i sucha.
4. Ekspresja i oczyszczanie syntetycznego kanału jonowego (ancTREK1)
- Przygotowanie konstruktu ekspresyjnego
Poniższe kroki opisują strategie klonowania, ekspresję heterologiczną w komórkach Freestyle-293F oraz oczyszczanie białka ancTREK1.
Skonstruować wektor ekspresyjny za pomocą amplifikacji PCR, trawienia enzymami restrykcyjnymi, ligacji i transformacji do chemicznie kompetentnych komórek Escherichia coli23,24. Sekwencję ancTREK1 (Supplementary Figure 1) należy wyeksponować przy użyciu wektora ssaczego zawierającego znacznik GFP na C-końcu oraz znacznik His₈, co umożliwia detekcję opartą na fluorescencji25,26 oraz dwuetapowe oczyszczanie powinowactwa z użyciem żywicy nikiel–nitrilotriacetic acid (Ni2⁺-NTA resin)27,28,29, a następnie żywicy z nanociałami anty-GFP30,31,32. - Amplifikacja DNA ancTREK1 metodą PCR
- Rozcieńczyć startery PCR i matrycę DNA do stężeń końcowych 10 µM i ~20 ng/µL, używając sterylnej wody dwukrotnie destylowanej.
- Odmrozić wszystkie odczynniki na lodzie.
- Przygotować 50 µL reakcji PCR zawierającej 10 µL buforu 5×, po 2,5 µL każdego startera 10 µM, 2 µL matrycy DNA, 1 µL dNTPs 10 mM, 0,5 µL polimerazy DNA o wysokiej wierności oraz sterylną wodę dwukrotnie destylowaną do uzyskania odpowiedniej objętości (Table 3). Wymieszać delikatnie i krótko odwirować.
- Przeprowadzić PCR zgodnie z następującymi warunkami: denaturacja wstępna przy 98°C przez 3 min; 30 cykli: 98°C przez 30 s, 68°C przez 30 s i 72°C przez 30 s; końcowa elongacja przy 72°C przez 3 min (Table 4).
- Rozdzielić produkt PCR na żelu agarozowym 1% (w/v) w buforze 1× TAE przy 60 V przez 90 min i wyciąć prawidłowy prążek.
UWAGA: Produkty PCR oczyścić metodą ekstrakcji z żelu, zmierzyć stężenie DNA przy 260 nm i w razie potrzeby przechowywać oczyszczone produkty PCR w temperaturze −20°C.
- Przeprowadzenie trawienia restrykcyjnego
- Przygotować reakcje trawienia zawierające 2 µg produktu PCR i 2 µg DNA plazmidowego w osobnych probówkach. Dodać 5 µL buforu 10×, 0,5 µL enzymu restrykcyjnego EcoRI i 0,5 µL enzymu NotI, a następnie uzupełnić do 50 µL wodą dwukrotnie destylowaną (Table 5).
- Wymieszać delikatnie i inkubować w 37°C przez 3 h.
- Inaktywować enzymy termicznie w 65°C przez 20 min.
- Do trawienia wektora dodać 1 µL fosfatazy alkalicznej i inkubować w 37°C przez 1 h.
- Rozdzielić strawione produkty na żelu agarozowym 1% i wyekstrahować pożądane prążki.
UWAGA: Fragmenty DNA oczyścić odpowiednimi metodami oczyszczania i w razie potrzeby przechowywać oczyszczone DNA w temperaturze −20°C.
- Przeprowadzenie ligacji i transformacji
- Przygotować 20 µL reakcji ligacji zawierającej wektor i insert (stosunek molowy 3:1), 2 µL buforu do ligazy 10× oraz 1 µL enzymu ligazy (Table 6).
- Inkubować w temperaturze pokojowej (RT) przez 1 h.
- Odmrozić chemicznie kompetentne komórki E. coli na lodzie.
- Dodać 5 µL mieszaniny ligacyjnej do 50 µL komórek i inkubować na lodzie przez 20 min.
- Przeprowadzić szok termiczny w 42°C przez 1 min, a następnie przenieść na lód na 2 min.
- Dodać 450 µL pożywki LB i inkubować w 37°C z wytrząsaniem przez 1 h.
- Odwirować przy 3,000 × g przez 1 min i resuspender osad w 50 µL.
- Wysiać na selektywny agar i inkubować przez noc w 37°C.
UWAGA: Prawidłowość klonowania potwierdzić sekwencjonowaniem.
- Transfekcja komórek HEK293F
- Wysiać 250 mL komórek 293F w zagęszczeniu 0,5 × 10⁶ komórek/mL w bezserwatkowym pożywce suspensyjnej i inkubować w 37°C przy 6% CO₂.
- Przygotować 250 µg DNA w końcowej objętości 3 mL pożywki z obniżoną zawartością surowicy.
- Przygotować 750 µg polietyleniminy (PEI) w wodzie w stężeniu 1 mg/mL, dostosować pH do 6,9–7,1 za pomocą NaOH, przefiltrować roztwór sterylnie i uzupełnić końcową objętość do 3 mL pożywką z obniżoną zawartością surowicy.
- Połączyć roztwory DNA i PEI, wymieszać delikatnie i inkubować przez 10 min w RT.
- Dodawać mieszaninę kroplowo do komórek.
- Po 4 h dodać maślan sodu do stężenia końcowego 10 mM.
- Zebrać komórki po 48 h poprzez wirowanie przy 500 × g przez 15 min.
- Przechowywać osady komórkowe w −80°C.
- Solubilizacja białek błonowych
- Odmrozić osady komórkowe z 100 mL hodowli HEK293 na lodzie.
- Resuspender osad komórkowy w buforze lizującym w stosunku 1:10 (w/v) (Table 7).
Dodać detergent do stężeń końcowych 1% n-dodecyl-β-D-maltosidu (DDM) oraz 0,1% hemisukcynianu cholesterylu (CHS). - Inkubować przy rotacji w 4°C przez 2 h.
- Odwirować przy 100,000 × g przez 1 h w 4°C.
- Zebrać nadsącz.
OSTROŻNIE: Wszystkie kroki należy wykonywać w 4°C przy użyciu schłodzonych buforów.
- Oczyszczanie metodą IMAC
- Napełnić kolumnę grawitacyjną 500 µL żywicy Ni2⁺-NTA.
- Eqwilibrować żywicę dwiema objętościami kolumny (CV) buforu eqwilibrującego (Table 8).
- Nałożyć próbkę i inkubować przy delikatnym mieszaniu z prędkością 10 rpm w 4°C przez 3 h.
- Ustawić kolumnę pionowo i zebrać prześwit metodą przepływu grawitacyjnego.
- Przemyć żywicę 10 CV buforu do przemywania zawierającego 30 mM imidazolu.
- Eluować białko 10 CV buforu elucyjnego zawierającego 300 mM imidazolu.
UWAGA: Frakcje analizować metodą SDS-PAGE (Figure 6). Zachować prześwit i frakcje z przemywania do analizy. W razie potrzeby przechowywać białko w 4°C przez noc.
- Oczyszczanie anty-GFP
- Napełnić kolumnę grawitacyjną 1 mL żywicy anty-GFP.
- Eqwilibrować żywicę 2 CV Buforu 1 (Table 9). Nałożyć eluat z IMAC i inkubować przy delikatnym mieszaniu z prędkością 10 rpm w 4°C przez 3 h.
- Ustawić kolumnę pionowo i zebrać prześwit metodą przepływu grawitacyjnego.
- Przemyć żywicę sekwencyjnie 10 CV Buforu 1, 10 CV Buforu 2 i 10 CV Buforu 1.
- Rozcieńczyć proteazę HRV-3C w 2 mL Buforu 1 w stosunku proteaza:białko 1:50.
- Dodać Bufor 1 uzupełniony proteazą HRV-3C do żywicy, wymieszać delikatnie i inkubować przez noc w 4°C w pionowej pozycji statycznej.
- Zebrać odcięte białko w frakcji elucyjnej.
- Skoncentrować próbkę za pomocą koncentratora wirówkowego z odcięciem 50 kDa przy 3,000 × g i 4°C, aż do uzyskania końcowej objętości około 500 µL.
UWAGA: Frakcje analizować metodą SDS-PAGE (Figure 7). Okresowo resuspender białko podczas koncentracji, aby zapobiec agregacji. Oczyszczone białko przechowywać w −80°C po szybkim zamrażaniu. Z 100 mL hodowli można uzyskać około 60 µg białka.
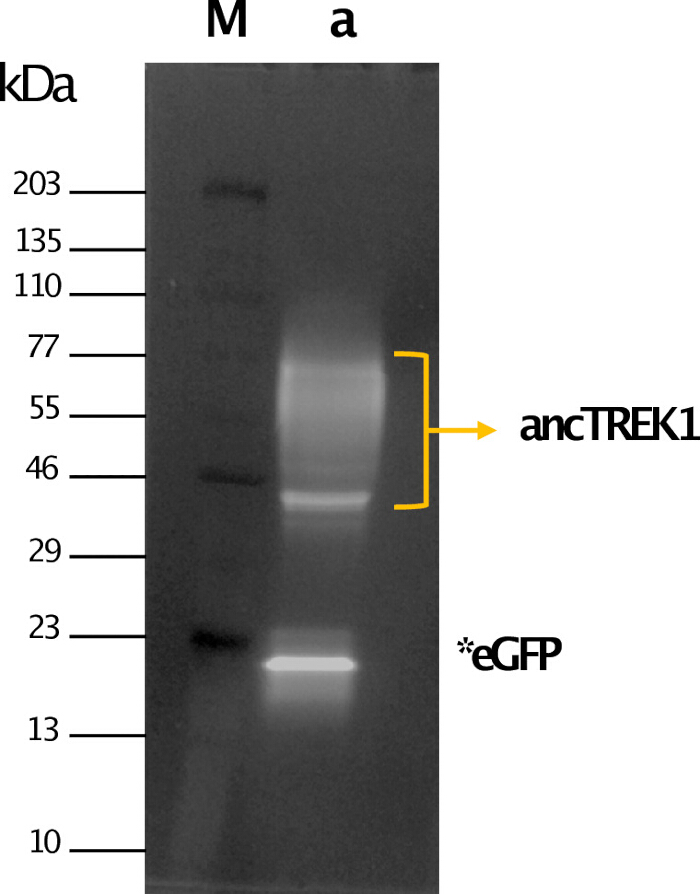
Rycina 6: Oczyszczanie ancTREK1 za pomocą chromatografii powinowactwa do zimmobilizowanych jonów metali (IMAC). Analiza elektroforetyczna w żelu poliakrylamidowym z dodecylosiarczanem sodu (SDS-PAGE) frakcji elucji IMAC z detekcją fluorescencyjną. Ścieżka M: marker masy cząsteczkowej. Ścieżka a: frakcja elucji IMAC wykazująca ancTREK1 z oznakowaniem zielonym białkiem fluorescencyjnym (GFP) (żółta strzałka). Wolne GFP powstałe w wyniku autokatalitycznego cięcia zaznaczono jako (*eGFP). Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
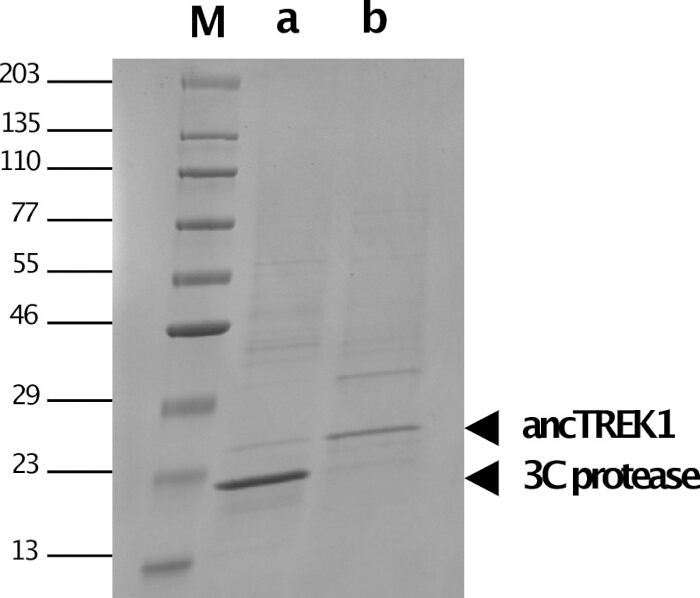
Rycina 7: Oczyszczanie ancTREK1 za pomocą chromatografii powinowactwa z użyciem nanociała anty-GFP. Analiza SDS-PAGE frakcji elucianych barwionych błękitem Coomassie. Ścieżka M: marker masy cząsteczkowej. Ścieżka a: frakcja elucji anty-GFP wykazująca obecność proteazy 3C. Ścieżka b: oczyszczony ancTREK1 po zagęszczeniu. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
| Odczynnik | Objętość dla reakcji 50 µL | Stężenie końcowe |
| Woda dwukrotnie destylowana | Dopełnić do 50 µL | — |
| 5× PhusionTM GC buffer | 10 µL | 1× |
| dNTPs (10 mM każdy) | 1 µL | 200 µM każdy |
| Starter forward (10 µM) | 2,5 µL | 0,5 µM |
| Starter reverse (10 µM) | 2,5 µL | 0,5 µM |
| Matryca DNA (20 ng/µL) | 2 µL | 0,8 ng/µL |
| PhusionTM High-Fidelity DNA polymerase | 0,5 µL | 0,02 U/µL |
Tabela 3: Przygotowanie reakcji polimerazy łańcuchowej (PCR) do amplifikacji ancTREK1. Skład odczynników, objętości i stężenia końcowe zastosowane podczas amplifikacji PCR sekwencji DNA ancTREK1 z wykorzystaniem systemu polimerazy DNA o wysokiej wierności.
| Krok | Temperatura | Czas | Cykle |
| Wstępna denaturacja | 98°C | 3 min | 1 |
| Denaturacja | 98°C | 30 s | 30 |
| Wyżarzanie | 68°C | 30 s | 30 |
| Rozszerzenie | 72°C | 30 s | 30 |
| Ostateczne przedłużenie | 72°C | 3 min | 1 |
| Przytrzymać | 12°C | Przytrzymać | — |
Tabela 4: Warunki cykli PCR dla amplifikacji ancTREK1.Parametry cyklu termicznego zastosowane do amplifikacji sekwencji DNA ancTREK1, obejmujące etapy denaturacji, przyłączania starterów, elongacji oraz końcowej elongacji.
| Komponent | trawienie insertu (50 µL) | Trawienie i defosforylacja wektora (50 µL) |
| ddH₂O | Do 50 µL | Do 50 µL |
| 10× bufor ANZA Red | 5 µL | 5 µL |
| DNA | produkt PCR ancTREK1 (2 µg) | DNA wektora pEG BacMam C-term 3C eGFP His8 (2 µg) |
| Anza™ EcoRI | 0.5 µL | 0.5 µL |
| Anza™ NotI | 0.5 µL | 0.5 µL |
| Anza™ fosfataza alkaliczna | — | 1 µL |
Tabela 5: Trawienie enzymami restrykcyjnymi wstawki i wektora dla klonowania ancTREK1.Warunki reakcji dla trawienia enzymatycznego produktu PCR ancTREK1 oraz wektora ekspresyjnego przy użyciu enzymów EcoRI i NotI. Trawienie wektora obejmuje dodatkowy etap defosforylacji z użyciem fosfatazy alkalicznej w celu zapobiegania samozamykaniu.
| Składnik | Ilość (reakcja 20 µL) |
| ddH₂O | do 20 µL |
| 10× T4 DNA Ligase Buffer | 2 µL |
| DNA wkładki ancTREK1 (843 bp) | 10 ng |
| DNA wektora pEG BacMam C-term 3C eGFP His8 (7673 bp) | 30 ng |
| T4 DNA Ligase | 1 µL |
Tabela 6: Warunki ligacji wektora z insertem dla klonowania ancTREK1. Mieszanina reakcyjna do ligacji insertu ancTREK1 do wektora ekspresyjnego pEG BacMam w stosunku molowym 1:3 przy użyciu ligazy T4 DNA.
| Komponent | Stężenie końcowe | Ilość (do 5 ml) |
| ddH₂O | — | do 5 ml |
| KCl (1 M) | 200 mM | 1 ml |
| Tris-HCl pH 8 (1 M) | 20 mM | 100 µL |
| MgCl₂ (100 mM) | 1 mM | 50 µL |
| inhibitor proteaz PMSF (100 mM) | 1 mM | 50 µL |
| Inhibitor proteaz leupeptyna (1 mg/ml) | 1 µg/mL | 5 µL |
| Inhibitor proteaz aprotynina (1 mg/ml) | 1 µg/mL | 5 µL |
| Inhibitor proteazy pepstatyna A (1 mg/ml) | 1 µg/mL | 5 µL |
| DNaza I (50 mg/ml) | 25 µg/mL | 2.5 µL |
| n-Dodecyl-β-D-maltozyd (DDM, 10%) | 1% | 500 µL |
| hemisukcynian cholesterylu (CHS, 2%) | 0.10% | 250 µL |
Tabela 7: Skład buforu do lizy dla ekstrakcji białek błonowych. Skład buforu do lizy stosowanego do solubilizacji białek błonowych, obejmujący sole, substancje buforujące, inhibitory proteaz, nukleazę i detergenty. Uwaga: bufory powinny być świeżo przygotowane przed użyciem.
| Bufor równoważący (objętość całkowita 10 mL) | ||
| Składnik | Stężenie końcowe | Ilość |
| ddH₂O | — | do 10 mL |
| KCl (1 M) | 200 mM | 2 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-Dodecyl-β-D-maltoside (DDM, 10%) | 0.05% | 50 µL |
| Cholesteryl hemisuccinate (CHS, 2%) | 0.01% | 50 µL |
| Bufor do płukania (objętość całkowita 10 mL) | ||
| Składnik | Stężenie końcowe | Ilość |
| ddH₂O | — | do 10 mL |
| KCl (1 M) | 200 mM | 2 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-Dodecyl-β-D-maltoside (DDM, 10%) | 0.05% | 50 µL |
| Cholesteryl hemisuccinate (CHS, 2%) | 0.01% | 50 µL |
| Imidazole pH 8 (5 M) | 30 mM | 60 µL |
| Bufor do elucji (objętość całkowita 10 mL) | ||
| Składnik | Stężenie końcowe | Ilość |
| ddH₂O | — | do 10 mL |
| KCl (1 M) | 200 mM | 2 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-Dodecyl-β-D-maltoside (DDM, 10%) | 0.05% | 50 µL |
| Cholesteryl hemisuccinate (CHS, 2%) | 0.01% | 50 µL |
| Imidazole pH 8 (5 M) | 300 mM | 600 µL |
Tabela 8: Składy buforów IMAC do oczyszczania ancTREK1. Składy buforów do równoważenia, płukania i elucji stosowanych w chromatografii powinowactwa do zimmobilizowanych jonów metali podczas oczyszczania ancTREK1. Uwaga: roztwory można przechowywać w temperaturze 4°C do sześciu miesięcy.
| Bufor 1 (objętość całkowita 10 mL) | ||
| Komponent | Stężenie końcowe | Ilość |
| ddH₂O | — | do 10 ml |
| KCl (1 M) | 200 mM | 2 ml |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-Dodecylo-β-D-maltozyd (DDM, 10%) | 0.05% | 50 µL |
| hemisukcynian cholesterylu (CHS, 2%) | 0.01% | 50 µL |
| Bufor 2 (objętość całkowita 10 ml) | ||
| Komponent | Stężenie końcowe | Ilość |
| ddH₂O | — | Do 10 ml |
| KCl (1 M) | 500 mM | 5 ml |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-Dodecyl-β-D-maltozyd (DDM, 10%) | 0.05% | 50 µL |
| hemisukcynian cholesterylu (CHS, 2%) | 0.01% | 50 µL |
Tabela 9: Składy buforów do chromatografii powinowactwa z wykorzystaniem nanoprzeciwciał anty-GFP. Składy buforów stosowanych do oczyszczania ancTREK1 za pomocą chromatografii powinowactwa z wykorzystaniem nanoprzeciwciał anty-GFP. Uwaga: roztwory można przechowywać w temperaturze 4°C do sześciu miesięcy.
5. Rejestracja aktywności kanałów jonowych
- Ocena jakości membrany
- Zamknij pokrywę klatki Faradaya.
- Zastosuj trójkątną falę napięcia (100 mV, 10 Hz), aby ocenić pojemność membrany.
- Zastosuj skoki napięcia (przyrosty ±20 mV aż do ±200 mV), aby ocenić oporność membrany.
- Monitoruj wartości prądu i szumu.
UWAGA: Stosuj częstotliwość próbkowania 5 kHz i filtrowanie dolnoprzepustowe 2,5 kHz, chyba że wymagane jest inaczej.
- Rejestracja aktywności ancTREK1
- Rozcieńcz białko ancTREK1 w roztworze rejestrującym do stężenia ~2 µg/mL.
UWAGA: Podczas rozcieńczania wykonaj w razie potrzeby rozcieńczenia pośrednie w Buforze 1, aby utrzymać stężenie detergentu powyżej jego krytycznego stężenia micelarnego (CMC) przed końcowym rozcieńczeniem w roztworze rejestrującym. - Dodaj 1 µL rozcieńczonego roztworu białka do komory cis w pobliżu otworu przegrody.
UWAGA: Potencjał błonowy definiuje się jako Vcis − Vtrans. Orientacja kanału nie została bezpośrednio określona w niniejszym badaniu; dlatego rejestracje są opisywane w odniesieniu do polaryzacji przyłożonego napięcia, a nie przypisanej stronności błony. - Zastosuj skoki napięcia w przyrostach ±20 mV aż do ±120 mV.
- Monitoruj zdarzenia wbudowania kanałów.
UWAGA: Wbudowanie kanału sygnalizowane jest przez dyskretne przejścia prądowe między stanem zamkniętym a otwartym. Jeśli nie nastąpi wbudowanie, dodaj więcej białka lub ponownie utwórz membranę. Jeśli wbuduje się wiele kanałów, przerwij ciągłość membrany i zmniejsz stężenie białka.
- Rozcieńcz białko ancTREK1 w roztworze rejestrującym do stężenia ~2 µg/mL.
Wyniki
Charakterystyka prądowo-napięciowa (I–V) błon PLB
Wewnętrzna hydrofobowa natura błon dwuwarstwowych sprawia, że są one nieprzepuszczalne dla gatunków naładowanych. Jednakże przyłożenie zewnętrznego pola elektrycznego może indukować tworzenie się przejściowych porów o rozmiarach nanometrycznych, wpływając tym samym na przepuszczalność i przewodnictwo błony33. Aby ocenić jakość sztucznych dwuwarstw utworzonych z lipidów 1,2-difitanoylo-sn-glicero-3-fosfocholiny, wyznaczono pojemność, opór oraz charakterystyki I-V błony wykluczając obecność wbudowanych białek. Zastosowano serię skoków napięcia w zakresie od ±20 do ±200 mV (w przyrostach ±20 mV) i zarejestrowano wynikające z nich prądy transbłonowe. Próbkowanie danych odbywało się z częstotliwością 5 kHz, a następnie zastosowano filtr dolnoprzepustowy o odcięciu 2,5 kHz.
Pojemność błony (Cm) oraz oporność błony (Rm) stanowią kluczowe parametry służące do oceny jakości dwuwarstwy. PLB można opisać za pomocą równoważnego obwodu rezystorowo-kondensatorowego (RC), w którym błona zachowuje się jak kondensator połączony równolegle z rezystorem34. Komponent pojemnościowy odzwierciedla zdolność błony do magazynowania ładunku, natomiast komponent rezystywny odzwierciedla przepuszczalność jonową. Przyłożenie trójkątnego przebiegu napięcia generuje prostokątny prąd pojemnościowy, który jest proporcjonalny do pojemności błony zgodnie z zależnością:
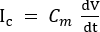 (1)
Tutaj Cm oznacza pojemność błony, V jest przyłożonym napięciem, a t to czas. Po sformowaniu błony wartości pojemności mogą zwiększać się w czasie z powodu stopniowego cieńczenia dwuwarstwy35. Przyjmując, że błona stanowi kondensator płytkowy, pojemność jest powiązana z powierzchnią i grubością błony zgodnie z zależnością:
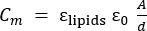 (2)
Tutaj εlipids to stała dielektryczna rdzenia lipidowego (~2), ε0 to przenikalność elektryczna próżni, A to powierzchnia błony, a d to grubość błony36,37.
Oporność membrany wyznaczono zgodnie z prawem Ohma33:
 (3)
Tutaj V oznacza przyłożone napięcie, a Rm oporność błony. W przypadku braku kanałów jonowych prąd błonowy pozostaje bliski 0 pA, co odpowiada wartościom oporności z zakresu gigaomów (GΩ)33.
Zależność I–V wykazywała liniową charakterystykę (ohmiczną) w zakresie od 0 do ±200 mV dla urządzeń BLMchipMM z aperturami o średnicach 75 i 100 µm. Liniowe dopasowanie danych pozwoliło uzyskać wartości oporu błony wynoszące 847 ± 16 GΩ (n = 6) dla apertury 75 µm (Ryc. 8A, koła) oraz 980 ± 32 GΩ (n = 7) dla apertury 100 µm (Ryc. 8A, kwadraty). Wartości szumów RMS, mierzone w 3 s segmentach zapisu prądu, wynosiły 3,1 ± 2 pA (n = 7) dla apertury 100 µm oraz 2,6 ± 0,1 pA (n = 6) dla apertury 75 µm. Stabilność błony oceniano poprzez pomiar oporu w odstępach około 2 min przez całkowity czas 1 h (Ryc. 8B). Prawidłowo uformowane błony pozostawały stabilne konsekwentnie przez ponad 1 h, co jest wystarczające dla większości eksperymentów elektrofizjologicznych. Błony zazwyczaj tolerowały przyłożone potencjały do ±200 mV bez oznak niestabilności, podczas gdy przebicie następowało między ±220 a ±300 mV, w zależności od poszczególnej dwuwarstwy. Błony uznawano za odpowiednie do insercji białek, gdy wartości pojemności mieściły się w zakresie od 40 do 60 pF dla apertur 75 µm oraz od 60 do 90 pF dla apertur 100 µm, przy wartościach prądu ≤0,5 pA przy 100 mV.
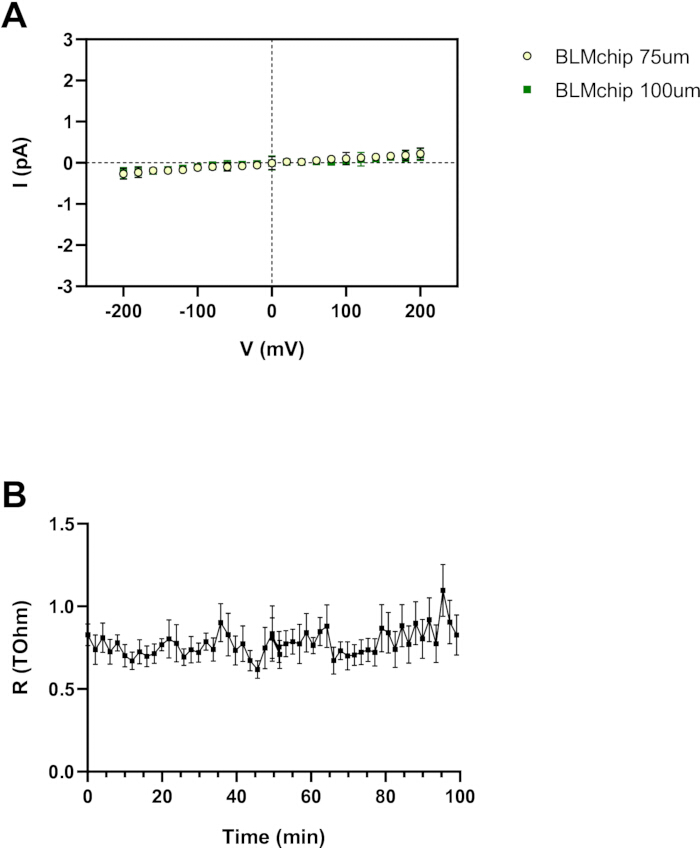
Rysunek 8: Charakterystyka elektryczna PLB. (A) Zależności prąd–napięcie (I–V) dla dwuwarstw utworzonych na otworach o średnicy 75 µm i 100 µm, wykazujące liniowe (ohmiczne) zachowanie w zakresie ±200 mV. Regresja liniowa pozwala wyznaczyć wartości oporności membrany odpowiednio 847 ± 16 GΩ (n = 6) i 980 ± 32 GΩ (n = 7). (B) Stabilność membrany oceniona poprzez monitorowanie oporności przez 1 h w odstępach 2 min. Membrany pozostają stabilne do ±200 mV i ulegają przerwaniu przy napięciach między ±220 a ±300 mV. Dane przedstawiono jako średnią ± błąd standardowy średniej (SEM). Aby zobaczyć powiększoną wersję tego rysunku, kliknij tutaj.
Wstępna charakterystyka zachowania pojedynczego kanału ancTREK1
Syntetyczny ancTREK1 został oczyszczony i wbudowany w PLB, a aktywność pojedynczego kanału monitorowano przy użyciu protokołów skoków napięcia w zakresie od −120 do 120 mV w przyrostach 20 mV. Rejestracje pojedynczych kanałów (Rycina 9A i Rycina 9B) ujawniły charakterystyczne zachowanie typu „flickering” kanałów K2P38. Przy 80 mV średnia amplituda prądu wynosiła 13,02 ± 0,78 pA (n = 5), podczas gdy przy −80 mV amplituda prądu wzrosła do −18,72 ± 0,25 pA (n = 5) (Rycina 9C). Wynikowa relacja I–V wykazała mierzalne prądy pojedynczego kanału zarówno przy potencjałach dodatnich, jak i ujemnych w symetrycznych warunkach 200 mM potasu bez Mg2+ (Rycina 9D). Ponieważ amplitudy prądu szacowano na podstawie histogramów wszystkich punktów z rejestracji nabytych przy 5 kHz i przefiltrowanych filtrem dolnoprzepustowym przy 2,5 kHz, powyższa relacja I–V jest przedstawiona jako opisowy dowód koncepcji, a nie jako wyczerpująca charakterystyka biofizyczna.
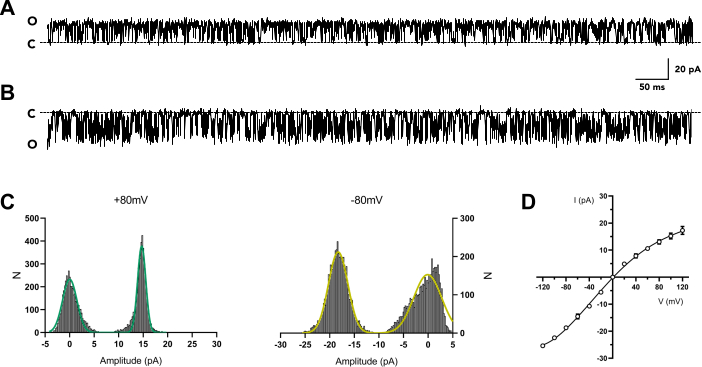
Rysunek 9: Aktywność pojedynczego kanału syntetycznego ancTREK1. (A i B) Reprezentatywne zapisy prądów pojedynczego kanału zarejestrowane odpowiednio przy 80 mV i −80 mV. Linie przerywane wskazują poziom zamknięcia kanału. (C) Histogramy amplitud wszystkich punktów dla potencjałów dodatnich (lewo) i ujemnych (prawo). (D) Zależność I–V dla ancTREK1 w symetrycznych warunkach 200 mM potasu (K+) bez kationów dwuwartościowych. Krzywą dopasowano za pomocą wielomianu czwartego stopnia, a wartości przewodności wyliczono z nachylenia przy ±80 mV. Aby wyświetlić większą wersję tego rysunku, kliknij tutaj.
Mimo że ancTREK1 nie posiada rozbudowanych regionów N- i C-terminalnych w porównaniu do ssaczych kanałów TREK1, pozostał on funkcjonalnie aktywny po rekonstytucji. W przeciwieństwie do ssaczego TREK1, który wykazuje tryby wysokiej i niskiej przewodności (odpowiednio 132 ± 5 pS i 41 ± 5 pS przy potencjałach dodatnich)39, ancTREK1 wykazywał jedynie tryb dużej przewodności. Przewodność pojedynczego kanału przy potencjałach dodatnich wynosiła 112,8 ± 10,8 pS (80 mV, n = 5), co jest zgodne z raportowanymi wartościami dla kanałów TREK (85–130 pS w symetrycznych warunkach potasowych)38,39,40,41. Przy potencjałach ujemnych przewodność wzrosła do 205,6 ± 2,05 pS (−80 mV, n = 5), co zgadza się z wcześniej opisanym zachowaniem TREK139. Co istotne, ancTREK1 wykazywał wyższe znormalizowane prawdopodobieństwo otwarcia (NPo) w porównaniu do pomiarów TREK1 uzyskanych przy użyciu konfiguracji wyciętego patcha (excised patch)42. Zależność NPo od napięcia wykazała zwiększoną aktywność kanałów przy potencjałach dodatnich, osiągając wartość 0,78 ± 0,02 (n = 5) przy 80 mV. W przeciwieństwie do tego, NPo spadało przy potencjałach ujemnych, osiągając wartości 0,53 ± 0,04 przy −80 mV oraz 0,28 ± 0,03 przy −120 mV (Rycina 10).
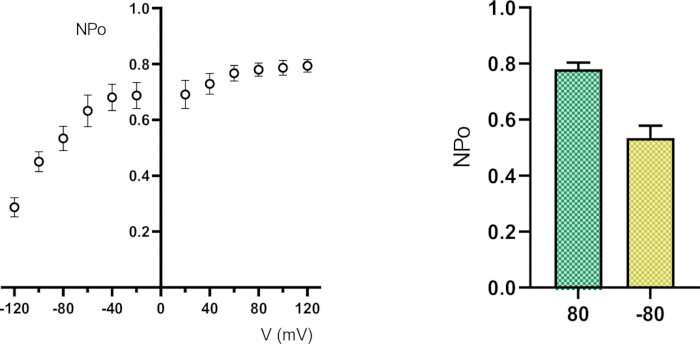
Rysunek 10: Analiza zależności napięciowej aktywności pojedynczych kanałów ancTREK1. Znormalizowane prawdopodobieństwo otwarcia (NPo) jako funkcja potencjału błonowego (lewo) oraz porównanie NPo przy 80 mV i −80 mV (prawo), wykazujące zwiększone otwieranie kanałów przy potencjałach dodatnich. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Rysunek uzupełniający 1. Sekwencja aminokwasowa syntetycznego przodka kanału potasowego z dwiema domenami porów (K2P) (ancTREK1). Pełna sekwencja aminokwasowa ancTREK1 wykorzystana do pomiarów elektrofizjologicznych. Sekwencja została zrekonstruowana poprzez wnioskowanie o sekwencji przodka z wyselekcjonowanego zbioru danych członków rodziny TREK/TRAAK, obejmującego sekwencje ortologiczne pobrane z baz danych UniProt i NCBI, przefiltrowane pod kątem konserwowanych motywów porów, dopasowane i przeanalizowane przy użyciu filogenetyki metodą największej wiarygodności.Prosimy kliknąć tutaj, aby pobrać ten plik.
Dyskusja
W niniejszym badaniu wykorzystaliśmy technikę PLB do oceny właściwości elektrofizjologicznych syntetycznego kanału K2P na poziomie pojedynczej cząsteczki. Spośród różnych płaskich modeli lipidowych opisanych w literaturze naukowej, skoncentrowaliśmy się na tworzeniu BLMs, które są nanoszone na otwór o średnicy od 50 do 140 µm, wykonany w pionowej powierzchni niepolarnej oddzielającej dwa przedziały wodne. Konfiguracja ta pozwala na symulację środowiska błony komórkowej przy jednoczesnym zachowaniu kontroli nad parametrami eksperymentalnymi, w tym nad przygotowaniem błony lipidowej i składem elektrolitu (np. siłą jonową i pH)3. Odtworzyliśmy BLMs, stosując metodę Montala–Muellera (składania)5, w której błona formuje się spontanicznie, gdy dwie monowarstwy lipidowe, wcześniej rozprzestrzenione na granicy powietrze–woda dwóch roztworów wodnych, łączą się nad otworem po podniesieniu poziomu wody.
Przedstawiony tutaj protokół tworzenia membrany jest bardzo intuicyjny, jednak kilka krytycznych kroków ma silny wpływ na sukces eksperymentu. Aby zapewnić prawidłowe połączenie elektryczne między BLMchipMM a wzmacniaczem, niezbędne jest unikanie chlorowania końcówek drutów Ag/AgCl wkładanych do gniazd PCB. Podczas montażu BLMchipMM niewłaściwe rozmieszczenie drutów może doprowadzić do kontaktu z obudową wzmacniacza, co skutkuje zwarciami i nasyceniem sygnału. Innym krytycznym czynnikiem jest procedura wstępnego przygotowania otworu: nadmierna siła podczas nakładania roztworu do wstępnego przygotowania może uszkodzić przegrodę poliimidową, natomiast niewłaściwa obsługa roztworu elektrolitu – w szczególności namoczenie obszaru otworu – może utrudnić tworzenie membrany. Ponadto, dla zapewnienia powtarzalności niezbędne jest dokładne czyszczenie komory pomiarowej BLMchipMM. Zastosowanie 100% alkoholu izopropylowego, a następnie dokładne płukanie i całkowite osuszenie gwarantuje, że pozostałości nie będą zakłócać kolejnych eksperymentów.
Możliwe są liczne modyfikacje protokołu. Choć chlorowanie poprzez moczenie w wybielaczu stanowi praktyczne i powszechnie stosowane podejście, można również zastosować alternatywne metody, takie jak galwanizacja43. Podobnie możliwe są modyfikacje w zakresie wstępnego przygotowania i preparacji lipidów. Standardowe roztwory do wstępnego przygotowania zazwyczaj składają się z długołańcuchowych alkanów rozpuszczonych w lotnych rozpuszczalnikach węglowodorowych36; mimo że powszechnie stosuje się 1% roztwór heksadekanu w n-heksanie, odpowiednie mogą być również inne rozpuszczalniki. Skład lipidów można również dostosować w zależności od wymagań eksperymentalnych. Podczas gdy lipidy DPhPC zapewniają optymalną stabilność błony, można stosować alternatywne mieszaniny lipidów, w tym składniki naturalne lub syntetyczne36. Kluczową zaletą pionowych dwuwarstw lipidowych formowanych metodą składania jest możliwość tworzenia błon asymetrycznych, w których każda warstwa składa się z innych gatunków lipidów5,22, co jest cechą znaną z wpływania na funkcję białek błonowych.
Rozwiązywanie problemów z formowaniem się błony zazwyczaj polega na regulacji poziomów fazy wodnej. Jeśli błona nie utworzy się początkowo, wielokrotne obniżanie i podnoszenie poziomu buforu w jednej komorze może ułatwić montaż dwuwarstwy. W przypadku niepowodzenia, wprowadzenie pęcherzyka powietrza nad otworem może wspomóc redystrybucję lipidów i formowanie błony. Utrzymujące się problemy zazwyczaj wskazują na kwestie związane z przygotowaniem wstępnym lub zanieczyszczeniem, w takim przypadku zaleca się oczyszczenie komory pomiarowej i ponowne rozpoczęcie eksperymentu.
Podstawowe elementy tej konfiguracji obejmują kompaktowy wzmacniacz eNPR 100 kHz oraz BLMchipMM. Wzmacniacz jest kompaktowym, niskoszumowym systemem do zaciskania napięcia (voltage-clamp), który eliminuje potrzebę stosowania dodatkowych urządzeń zewnętrznych, w tym zewnętrznych klatek Faradaya, ponieważ obudowa wzmacniacza zapewnia skuteczne ekranowanie elektromagnetyczne. BLMchipMM to wstępnie zmontowana, zminiaturyzowana komora rejestracyjna zintegrowana z płytką PCB w celu bezpośredniego połączenia ze wzmacniaczem. Składa się ona z dwóch przedziałów w kształcie litery C, oddzielonych polimidową przegrodą z lejkowatym otworem wykonanym laserowo, w którym tworzona jest sztuczna membrana. Zredukowane wymiary systemu, z objętością przedziałów wynoszącą około 110 µL, znacząco zmniejszają zużycie odczynników i redukują pojemność wewnętrzną, co poprawia jakość sygnału. Ponadto urządzenie można wielokrotnie wykorzystywać bez konieczności demontażu, pod warunkiem przestrzegania odpowiednich procedur czyszczenia, co zmniejsza zmienność i zwiększa powtarzalność eksperymentów.
Mimo tych zalet należy wziąć pod uwagę pewne ograniczenia. Obecna konfiguracja nie zawiera zintegrowanych modułów kontroli temperatury, ciśnienia ani perfuzji. Wykazano, że wewnętrzne napięcie błony wpływa na kanały mechanosensytywne, takie jak TREK144,45,46; jednakże obecny układ nie obejmuje kontrolowanej manipulacji napięciem błony, w związku z czym nie wyciągnięto tutaj wniosków mechanistycznych. Ogólnie rzecz biorąc, platforma ta stanowi niezawodny i dostępny system do rejestracji aktywności kanałów jonowych w błonach sztucznych. W niniejszym badaniu zbadaliśmy syntetyczny kanał K2P ancTREK1, będący obliczeniowo zrekonstruowanym kanałem przodkiem podrodziny TREK. Dane z rejestracji wykazują, że oczyszczone białko ancTREK1 zrekonstytuowane w PLB wykazuje zachowanie pojedynczego kanału zgodne z raportowanymi właściwościami przewodnictwa typu TREK1. W symetrycznych warunkach 200 mM potasu, bez Mg2+, kanał wykazuje mierzalną zależność I–V, z wartościami amplitudy wynoszącymi około 13 pA przy 80 mV i −19 pA przy −80 mV. Dodatkowo ancTREK1 wykazuje charakterystyczny tryb wysokiego przewodnictwa obserwowany w kanałach TREK1, z wyższym przewodnictwem przy potencjałach ujemnych (~205,6 pS) w porównaniu do potencjałów dodatnich (~112,8 pS). Co istotne, ancTREK1 wykazuje zwiększone NPo przy potencjałach dodatnich (0,78 przy 80 mV) i zmniejszone NPo przy potencjałach ujemnych (0,53 przy −80 mV i 0,28 przy −120 mV), co różni się od obserwacji w konfiguracjach wyciętego patcha42. Wyniki te potwierdzają przydatność tego systemu do dowodowej rejestracji pojedynczych kanałów zrekonstytuowanych białek błonowych.
Oświadczenia
F.T. oraz A.P. są odpowiednio dyrektorem generalnym i pracownikiem firmy Elements S.r.l. Pozostali autorzy nie deklarują żadnych konfliktów interesów.
Podziękowania
Dziękujemy Sofii Diletta Guzzeloni za pomoc w procedurze transfekcji komórek. Jesteśmy wdzięczni pracownikom firmy Elements, dr Leonowi Juarezi i dr Michelangelo Paciemu. Praca ta była wspierana przez Departament Medycyny Molekularnej Uniwersytetu w Pawii we Włoszech w ramach inicjatywy Dipartimenti di Eccellenza (2023–2027), przez Fundację Cariplo (#2019-1809) oraz przez program badawczy PNRR CN00000013 „National Centre for HPC, Big Data and Quantum Computing” dla M.L.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 1,2-diphytanoyl-sn-glycero-3-phosphocholina (DPhPC) | Avanti Polar Lipids | 850356P | Tworzenie sztucznych dwuwarstw lipidowych |
| 2-Propanol (≥99,5%) | Honeywell | 24137-5L | Czyszczenie urządzenia BLMchipMM |
| Agaroza | Fisher BioReagents | BP160-500 | Przygotowanie żeli agarozowych |
| System poziomej elektroforezy w żelu agarozowym | BTLabSystems | BT102 | Rozdział fragmentów DNA |
| Ampicylina | Fisher BioReagents | BP1760-25 | Selekcja bakterii transformowanych |
| Żywica Sepharose z nanociałem przeciw-GFP (własna produkcja) | — | — | Oczyszczanie powinowactwa białek z etykietą GFP |
| Anza Alkaline Phosphatase | Invitrogen | IVGN2208 | Defosforylacja wektora |
| Anza EcoRI | Invitrogen | IVGN0116 | Trawienie restrykcyjne |
| Anza NotI | Invitrogen | IVGN0014 | Trawienie restrykcyjne |
| Anza Red Buffer (10×) | Invitrogen | IVGN2008 | Bufor do trawienia restrykcyjnego |
| Aprotynina (inhibitor proteaz) | Fisher Scientific | 15996008 | Zapobieganie degradacji białek |
| Wirówka laboratoryjna | Eppendorf | EP5420000164 | Wirowanie komórek i przygotowanie próbek |
| BLMchipMM | Elements s.r.l. | — | Tworzenie płaskich dwuwarstw lipidowych |
| Hemisukcynian cholesterolu (CHS) | Anatrace | CH210 | Stabilizacja białek błonowych |
| Błękit Coomassie (Coomassie Brilliant Blue) | Sigma-Aldrich | 1125530025 | Barwienie białek |
| Zwykły domowy wybielacz | — | — | Chlorowanie drutów Ag |
| DNaza I | Sigma-Aldrich | 11284932001 | Zmniejszenie lepkości lizatu |
| Woda dwukrotnie destylowana | — | — | Przygotowanie buforów i roztworów |
| Etanol (czysty, 99,9%) | Girelli Alcool s.r.l. | — | Czyszczenie drutów Ag/AgCl |
| Bromek etydyny | Sigma-Aldrich | 1116080030 | Barwienie DNA |
| Papier ścierny o bardzo drobnej ziarnistości | — | — | Usuwanie powłoki Ag/AgCl z drutów |
| Wzmacniacz eNPR 100 kHz | Elements s.r.l. | — | Rejestracje elektrofizjologiczne |
| Zestaw Gel-Out do ekstrakcji DNA z agarozy | A&A Biotechnology | 023-250 | Oczyszczanie DNA |
| Marker wielkości DNA GeneRuler 1 kb | Thermo Fisher Scientific | SM0311 | Referencja wielkości DNA |
| FreeStyle™ 293-F | Thermo Fisher Scientific | R79007 | Ekspresja białka ancTREK1 |
| HEPES (≥99,5%) | Sigma-Aldrich | H3375-500G | substancja buforująca |
| Heksadekan (≥99%) | Sigma-Aldrich | H6703-100ML | Obróbka wstępna otworu |
| Heksan (≥99%) | Sigma-Aldrich | 139386-100ML | Rozpuszczalnik lipidowy |
| Własny barwnik do ładowania DNA 5× | — | — | Przygotowanie próbek DNA |
| Własny bufor SDS Laemmli 6× (redukujący) | — | — | Przygotowanie próbek białek |
| Własny roztwór do odbarwiania | — | — | Odbarwianie żeli SDS-PAGE |
| Własna proteaza HRV-3C | — | — | Odcinanie białek fuzyjnych |
| Własny bufor do prowadzenia SDS-PAGE (10×) | — | — | Bufor do elektroforezy SDS-PAGE |
| Imidazol | Alfa Aesar | A10221 | Elucja białek z etykietą His |
| Kolumny do oczyszczania in-batch | — | — | Procedury oczyszczania białek |
| Inkubator wytrząsowy Innova44 | New Brunswick Innova | M1282 | Wzrost kultur komórkowych |
| KCl | Honeywell | 31248-1KG | Przygotowanie elektrolitów i buforów |
| Pożywka LB (Lennox) | Condalab | 1231 | Kultura bakteryjna |
| Leupeptyna (inhibitor proteaz) | Thermo Scientific | 78435 | Zapobieganie degradacji białek |
| Chlorek magnezu sześciowodny | Acros Organics | 447700010 | Składnik buforu |
| Spektrofotometr Nanodrop | DeNovix | DS-11 | Ilościowe oznaczanie DNA i białek |
| n-Dodecyl-β-D-maltosyd (DDM) | NeoBiotech | NB-19-0056-25G | Solubilizacja białek błonowych |
| Żywica Ni Sepharose High Performance | Cytiva | 17526801 | Oczyszczanie IMAC |
| Notebook (komputer) | — | — | Sterowanie instrumentami i akwizycja danych |
| Ultrawirówka Optima LE-80K | Beckman | 365668 | Izolacja frakcji błonowej |
| Pentan (≥99%) | Sigma-Aldrich | 236705-100ML | Rozpuszczalnik lipidowy |
| Pepstatyna A (inhibitor proteaz) | Thermo Scientific | 78436 | Zapobieganie degradacji białek |
| Bufor Phusion GC (5×) | Thermo Fisher Scientific | F519 | Bufor do PCR |
| Polimeraza DNA Phusion High-Fidelity | Thermo Fisher Scientific | F530S | Amplifikacja PCR |
| PMSF (inhibitor proteaz) | Thermo Scientific | 36978 | Ochrona białek podczas lizy |
| Polyethylenimine (PEI) | Clinisciences | 24765-100 | Odczynnik do transfekcji |
| Gotowy żel ProteinEle Tris-Glicyna (4–20%) | TransGen Biotech | DG101-01-V2 | Rozdział białek |
| System elektroforezy żelowej SDS-PAGE | Bio-Rad | 1658002FC | Elektroforeza białek |
| Maślan sodu | Fisher Scientific | A11079 | Wzmacniacz ekspresji białek |
| Ligaza T4 DNA | Thermo Fisher Scientific | EL0011 | Ligacja DNA |
| Bufor do ligazy T4 DNA (10×) | Thermo Fisher Scientific | B69 | Bufor do ligacji |
| Termocykler (Mastercycler Nexus) | Eppendorf | 6331000025 | Amplifikacja PCR |
| Tris (zasada) | Sigma-Aldrich | T1503-1KG | Przygotowanie buforów |
| Agar sojowy Tryptone SOYA z lecytyną i polisorbatem 80 | HiMedia | M449-5KG | Wysiew bakterii |
| Dwa druty Ag | Elements s.r.l. | — | Elektrody do elektrofizjologii |
| Koncentrator Ultra-spin (cutoff 50 kDa) | Merck Amicon | UFC8050 | Koncentracja białek |
| Wektor ekspresyjny pEG BacMam | Addgene | 160687 | Ekspresja białek |
| Kabel USB | — | — | Połączenie między wzmacniaczem a komputerem |
Bibliografia
- Wickenden, A. D. Overview of electrophysiological techniques. Curr Protoc Pharmacol. 11 (1), (2000).
- Polak, A., Mulej, B., Kramar, P. System for measuring planar lipid bilayer properties. J Membr Biol. 245 (10), 625-632 (2012).
- Zakharian, E. Recording of ion channel activity in planar lipid bilayer experiments. Methods Mol Biol. 998, 109-118 (2013).
- Mueller, P., Rudin, D., Tien, H. T., Wescott, W. C. Reconstitution of cell membrane structure in vitro and its transformation into an excitable system. Nature. 194, 979-980 (1962).
- Montal, M., Mueller, P. Formation of bimolecular membranes from lipid monolayers and a study of their electrical properties. Proc Natl Acad Sci U S A. 69 (12), 3561-3566 (1972).
- Coronado, R., Latorre, R. Phospholipid bilayers made from monolayers on patch-clamp pipettes. Biophys J. 43 (2), 231-236 (1983).
- Andersen, O. S. Ion movement through gramicidin A channels. Single-channel measurements at very high potentials. Biophys J. 41 (2), 119-133 (1983).
- Tank, D. W., Miller, C., Webb, W. W. Isolated-patch recording from liposomes containing functionally reconstituted chloride channels from Torpedo electroplax. Proc Natl Acad Sci U S A. 79 (24), 7749-7753 (1982).
- Criado, M., Keller, B. U. A membrane fusion strategy for single-channel recordings of membranes usually non-accessible to patch-clamp pipette electrodes. FEBS Lett. 224 (1), 172-176 (1987).
- Varnier, A., et al. A simple method for the reconstitution of membrane proteins into giant unilamellar vesicles. J Membr Biol. 233, 85-92 (2010).
- Garten, M., et al. Reconstitution of a transmembrane protein, the voltage-gated ion channel KvAP, into giant unilamellar vesicles for microscopy and patch clamp studies. J Vis Exp. (95), e52281 (2015).
- Funakoshi, K., Suzuki, H., Takeuchi, S. Lipid bilayer formation by contacting monolayers in a microfluidic device for membrane protein analysis. Anal Chem. 78 (24), 8169-8174 (2006).
- Heron, A. J., Thompson, J. R., Mason, A. E., Wallace, M. I. Direct detection of membrane channels from gels using water-in-oil droplet bilayers. J Am Chem Soc. 129 (51), 16042-16047 (2007).
- Iwamoto, M., Oiki, S. Contact bubble bilayers with flush drainage. Sci Rep. 5, 9110 (2015).
- Han, X., et al. Nanopore arrays for stable and functional free-standing lipid bilayers. Adv Mater. 19 (24), 4466-4470 (2007).
- Miyata, R., et al. Parallel recordings of transmembrane hERG channel currents based on solvent-free lipid bilayer microarray. Micromachines. 12 (1), 98 (2021).
- Kresak, S., Hianik, T., Naumann, R. L. C. Giga-seal solvent-free bilayer lipid membranes: from single nanopores to nanopore arrays. Soft Matter. 5 (20), 4021 (2009).
- Suzuki, H., Pioufle, B. L., Takeuchi, S. Ninety-six-well planar lipid bilayer chip for ion channel recording fabricated by hybrid stereolithography. Biomed Microdevices. 11, 17-22 (2009).
- Zagnoni, M., Sandison, M. E., Morgan, H. Microfluidic array platform for simultaneous lipid bilayer membrane formation. Biosens Bioelectron. 24 (5), 1235-1240 (2009).
- Baker, C. A., Bright, L. K., Aspinwall, C. A. Photolithographic fabrication of microapertures with well-defined, three-dimensional geometries for suspended lipid membrane studies. Anal Chem. 85 (19), 9078-9086 (2013).
- Tadaki, D., et al. Mechanically stable solvent-free lipid bilayers in nano- and micro-tapered apertures for reconstitution of cell-free synthesized hERG channels. Sci Rep. 7 (1), 17736 (2017).
- Collins, M. D., Keller, S. L. Tuning lipid mixtures to induce or suppress domain formation across leaflets of unsupported asymmetric bilayers. Proc Natl Acad Sci U S A. 105 (1), 124-128 (2008).
- Cohen, S. N., Chang, A. C. Y., Boyer, H. W., Helling, R. B. Construction of biologically functional bacterial plasmids in vitro. Proc Natl Acad Sci U S A. 70 (11), 3240-3244 (1973).
- Hoseini, S., Sauer, M. G. Molecular cloning using polymerase chain reaction, an educational guide for cellular engineering. J Biol Eng. 9 (1), 2 (2015).
- Goehring, A., et al. Screening and large-scale expression of membrane proteins in mammalian cells for structural studies. Nat Protoc. 9 (11), 2574-2585 (2014).
- Kawate, T., Gouaux, E. Fluorescence-detection size-exclusion chromatography for precrystallization screening of integral membrane proteins. Structure. 14 (4), 673-681 (2006).
- Porath, J., Carlsson, J., Olsson, I., Belfrage, G. Metal chelate affinity chromatography, a new approach to protein fractionation. Nature. 258 (5536), 598-599 (1975).
- Hochuli, E., Dobeli, H., Schacher, A. New metal chelate adsorbent selective for proteins and peptides containing neighbouring histidine residues. J Chromatogr A. 411, 177-184 (1987).
- Hochuli, E., et al. Genetic approach to facilitate purification of recombinant proteins with a novel metal chelate adsorbent. Biotechnology (N Y). 6 (11), 1321-1325 (1988).
- Kirchhofer, A., et al. Modulation of protein properties in living cells using nanobodies. Nat Struct Mol Biol. 17 (1), 133-138 (2010).
- Kubala, M. H., Kovtun, O., Alexandrov, K., Collins, B. M. Structural and thermodynamic analysis of the GFP:GFP-nanobody complex. Protein Sci. 19 (12), 2389-2401 (2010).
- Lee, H., Lolicato, M., Arrigoni, C., Minor, D. L. Production of K2P2.1 (TREK-1) for structural studies. Methods Enzymol. 653, 151-188 (2021).
- Kramar, P., Miklavcic, D., Kotulska, M., Lebar, A. M. Voltage- and current-clamp methods for determination of planar lipid bilayer properties. Adv Planar Lipid Bilayers Liposomes. 11, 29-69 (2010).
- Golowasch, J., Nadim, F. Capacitance, membrane. Encyclopedia of Computational Neuroscience. , (2014).
- Niles, W. D., Levis, R. A., Cohen, F. S. Planar bilayer membranes made from phospholipid monolayers form by a thinning process. Biophys J. 53 (3), 327-335 (1988).
- Gutsmann, T., et al. Protein reconstitution into freestanding planar lipid membranes for electrophysiological characterization. Nat Protoc. 10 (1), 188-198 (2015).
- White, S. H. A study of lipid bilayer membrane stability using precise measurements of specific capacitance. Biophys J. 10 (12), 1127-1148 (1970).
- Bockenhauer, D., Zilberberg, N., Goldstein, S. A. N. KCNK2: reversible conversion of a hippocampal potassium leak into a voltage-dependent channel. Nat Neurosci. 4 (5), 486-491 (2001).
- Li, X. T., et al. The stretch-activated potassium channel TREK-1 in rat cardiac ventricular muscle. Cardiovasc Res. 69 (1), 86-97 (2006).
- Honoré, E., Maingret, F., Lazdunski, M., Patel, A. J. An intracellular proton sensor commands lipid- and mechano-gating of the K+ channel TREK-1. EMBO J. 21 (12), 2968-2976 (2002).
- Patel, A. J., et al. A mammalian two pore domain mechano-gated S-like K+ channel. EMBO J. 17 (15), 4283-4290 (1998).
- Maingret, F., Honore, E., Lazdunski, M., Patel, A. J. Molecular basis of the voltage-dependent gating of TREK-1, a mechano-sensitive K+ channel. Biochem Biophys Res Commun. 292 (2), 339-346 (2002).
- Lemtiri-Chlieh, F., Ali, R. Characterization of heterologously expressed transporter genes by patch- and voltage-clamp methods: application to cyclic nucleotide-dependent responses. Methods Mol Biol. 1016, 67-93 (2013).
- Opsahl, L. R., Webb, W. W. Lipid-glass adhesion in giga-sealed patch-clamped membranes. Biophys J. 66 (1), 75-79 (1994).
- Perez-Mitta, G., MacKinnon, R. Freestanding lipid bilayer tensiometer for the study of mechanosensitive ion channels. Proc Natl Acad Sci U S A. 120 (12), e2221541120 (2023).
- Sorum, B., et al. Tension activation of mechanosensitive two-pore domain K+ channels TRAAK, TREK-1, and TREK-2. Nat Commun. 15 (1), 3142 (2024).
Przedruki i uprawnienia
