Przedstawiamy tutaj protokół umożliwiający ustanowienie modelu komórkowego choroby Alzheimera wywołanego kwasem okadainowym w komórkach SH-SY5Y oraz ocenę neuroprotekcyjnych efektów gastrodinu za pomocą stresu oksydacyjnego i analizy szlaku AKT/GSK-3β.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł badawczy
Gastrodin łagodzi hiperfosforylację Tau związaną ze zmianami sygnalizacji AKT/GSK-3β w modelu komórkowym choroby Alzheimera
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Choroba Alzheimera (AD) to powszechna choroba neurodegeneracyjna, na którą obecnie dostępnych jest ograniczona skuteczność leków. Jako główny bioaktywny składnik pochodzący z Gastrodia elata, Gastrodin (GAS) wykazał wyraźny potencjał terapeutyczny w leczeniu AD; jednak molekularny mechanizm jego działania pozostaje do wyjaśnienia. W tym badaniu chcemy zbadać mechanizm działania GAS na komórki modelowe z AD. Farmakologia sieciowa jest wykorzystywana do analizy celów i szlaków sygnalizacyjnych dotkniętych przez GAS w AD. Model komórek AD powstaje poprzez indukcję ludzkich komórek neuroblastoma SH-SY5Y za pomocą kwasu okadainowego (OA). Żywotność komórek oceniano za pomocą testu CCK-8, a poziomy SOD, MDA i T-AOC były mierzone. Szybkość apoptozy zmierzono za pomocą podwójnego barwienia Annexin V-FITC/PI, a ekspresję czynników związanych z apoptozą, a także AKT, GSK-3β, p-Tau (Ser396) i p-Tau (Thr181), analizowano przy użyciu technik RT-qPCR i Western blotting. Analiza farmakologii sieciowej sugeruje, że GAS ma potencjał do regulacji apoptozy komórkowej i powiązanych szlaków sygnalizacyjnych, w tym PI3K/AKT. Nasze eksperymenty pokazują, że GAS może hamować poziom MDA, zwiększać T-AOC i SOD w modelowych komórkach AD oraz zmniejszać apoptozę komórek. Wyniki Western blottingu wskazują, że GAS łagodzi hamujące działanie OA na ekspresję p-AKT (Ser473) i p-GSK-3β (Ser9). Dodatkowo tłumi nadekspresję p-Tau (Ser396) i p-Tau (Thr181), tłumi ekspresję Bax i wzmacnia ekspresję Bcl-2. GAS wykazuje zdolność łagodzenia uszkodzeń stresu oksydacyjnego wywołanych przez OA oraz łagodzenia apoptozy. GAS może hamować hiperfosforylację Tau, która wiąże się ze zmianami w szlaku sygnalizacyjnym AKT/GSK-3β, wywierając tym samym potencjalne efekty neuroprotekcyjne.
Wprowadzenie
Choroba Alzheimera (AD) to postępująca choroba neurodegeneracyjna, charakteryzująca się głównie utratą pamięci i zaburzeniami poznawczymi, stanowiąca najczęstszą formę demencji na świecie, stanowiącą około 60% do 80% przypadków1. Podstawowa patogeneza AD pozostaje złożona i jeszcze nie w pełni wyjaśniona2. Kluczowe cechy patologiczne obserwowane w klinicznych przypadkach AD to nagromadzenie się blaszek wodnych (SP) oraz neurofibrylarnych splątań (NFT) w mózgu 3,4. Powszechnie wiadomo, że dwa główne zdarzenia patologiczne w AD to osadzanie się białka β-amyloidowego (Aβ) poza komórkowymi w celu utworzenia blaszek stróżniałych oraz agregacja wewnątrzkomórkowa hiperfosforylowanego białka Tau, tworząc splątania neurofibrylarne 5,6,7. Dodatkowo, stres oksydacyjny i neurozapalenie są czynnikami uzupełniającymi, które mogą przyczyniać się do zaostrzenia AD 8,9,10,11.
W miarę jak globalny trend starzenia się populacji nasila się na skalę, liczba pacjentów z demencją znacząco wzrosłao 12,13. Jednak opcje leczenia AD pozostają ograniczone, głównie obejmując leki jednocelowe, takie jak memantyna, donepezil i galantamina14. Jednak ich działanie terapeutyczne ma przede wszystkim charakter paliatywny, a nie modyfikujący przebieg choroby, a niektóre niepożądane skutki, takie jak zaburzenia przewodu pokarmowego, zawroty głowy i bradykardia, zostały zgłoszone. Dlatego rozwój bezpieczniejszych i skuteczniejszych strategii terapeutycznych pozostaje ważnym priorytetem badawczym15,16. Niedawno wprowadzone leki monoklonalne, takie jak Lecanemab, przyniosły nową nadzieję pacjentom z łagodnym AD. Jednak ich wysokie koszty i ograniczenia nie spełniają znacznego zapotrzebowania na terapię. Zapobieganie i leczenie AD nadal stanowią poważne wyzwanie17,18. Wyniki różnych badań wykazały, że rośliny lecznicze, szczególnie tradycyjne medycyny chińskie, wykazują wieloskładnikowe efekty, które celują w wiele szlaków związanych z chorobami neurodegeneracyjnymi, takimi jak AD. Badania wykazały, że aktywne związki z Ganoderma lucidum mogą łagodzić uszkodzenia oksydacyjne tkanki mózgowej myszy z AD, hamować apoptozę, zmniejszać martwicę neuronów hipokampa oraz poprawiać zaburzenia poznawcze19. W badaniach nad AD Bao i in. wykorzystali farmakologię sieciową do identyfikacji kluczowych celów Astragalosydu IV w zapaleniu związanym z AD. Ich ustalenia wykazały, że receptor czynnika wzrostu naskórka (EGFR) oraz interleukina-1β (IL-1β) są kluczowymi celami, dostarczając potencjalnych kandydatów terapeutycznych i celów chorób chorobowych do leczenia klinicznego chorób neurodegeneracyjnych20. Dartigues i in.21 przeanalizowali ekstrakt z miłorzębu miłorzębnego i wykazali, że ma on korzystny wpływ na zmniejszenie ryzyka demencji i śmiertelności u osób starszych. Pacjenci leczeni ekstraktem z miłorzęba miłorzęba wykazywali niższy wskaźnik śmiertelności22.
Gastrodia elata, należąca do rodziny storczykowatych, to tradycyjne chińskie zioło, jadalne i lecznicze. Kłącze Gastrodia elata jest obfite w Gastrodin (GAS), polisacharydy gastrodia oraz alkaloidy. Najnowsze badania farmakologiczne wykazały, że te aktywne związki mają działanie poprawiające pamięć i funkcje poznawcze oraz właściwości neuroprotekcyjne oraz skuteczność w leczeniu bezsenności i zawrotówgłowy 23. Głównym bioaktywnym związkiem Gastrodia elata jest GAS, który jest pozyskiwany z bulwy i posiada właściwości lecznicze. GAS, znany również jako 4-hydroksybenzylalkohol 4-O-β-d-glukozyd, należy do klasy glikozydów fenolowych24. Struktura chemiczna GAZ została zilustrowana na Rysunku 1, wykazując masę cząsteczkową 286,278. Stosunkowo niska masa cząsteczkowa glikozydów i monoglikozydów ułatwia ich efektywne przenikanie przez barierę krew-mózg, stanowiąc tym samym fundamentalną podstawę neuroprotekcyjnej roli GAS25. Ponadto ich wysoka wchłanialność dodatkowo zwiększa ich skuteczność26. W ostatnich latach liczne badania wykazały potencjał GAS w leczeniu różnych zaburzeń mózgu, w tym AD 27,28,29,30, choroby Parkinsona (PD)31 oraz niedokrwienia mózgu32. GAS wykazuje szeroki zakres właściwości farmakologicznych, w tym działanie antyoksydacyjne, hipolipidemiczne, przeciwzapalne oraz przeciwstarzeniowe33,34. Mechanizm działania obejmuje wiele szlaków sygnalizacji, takich jak Nrf2, NF-κB i AMPK35. GAS wywiera działanie neuroprotekcyjne w myszim modelu uszkodzenia neurologicznego wywołanego Pb poprzez modulację szlaku Wnt/Nrf236, a także wykazuje działanie antyapoptotyczne w leczeniu zaburzeń neurodegeneracyjnych poprzez regulację szlaku sygnalizacyjnego Nrf237. GAS wywierał również korzystny wpływ na AD, tłumiąc ekspresję BACE1 w hipokampie poprzez szlak sygnalizacyjny38 kinazy białkowej/eukariotycznego czynnika inicjacyjnego-2α (PKR/eIF2α). Ponadto GAS wykazywał działanie hamujące na aktywację sygnalizacji NF-κB indukowaną przez TCDD, co hamowało apoptozę neuronów PC12 oraz aktywację astrocytów39.
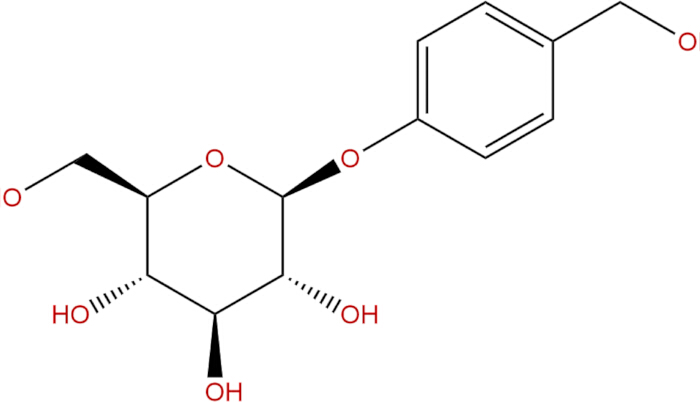
Rysunek 1: Chemiczny wzór strukturalny GAS. Proszę kliknąć tutaj, aby zobaczyć większą wersję tego rysunku.
OA, pochodzący z czarnej gąbki z rodzaju Halichondria, należy do klasy długołańcuchowych kwasów tłuszczowych i stanowi główny składnik trucizny na skorupiaki diarretycznej (DSP). Skutecznie hamuje aktywność białkowych fosfataz, szczególnie PP1A i PP2A, prowadząc do hiperfosforylacji komórkowej i zaburzenia homeostazy komórkowej40,41. Ta cecha czyni go cennym narzędziem do badania chorób związanych z fosforylacją białek. Dlatego wykorzystanie OA umożliwia budowę modeli komórek AD wykazujących zmiany w fosforylacji białek Tau. Celem niniejszego badania jest zbadanie wpływu i mechanizmu GAS, głównego aktywnego składnika Gastrodia elata, na model komórek AD indukowany przez OA oraz wyjaśnienie jego neuroprotekcyjnego wpływu na komórki modelowe AD poprzez ukierunkowanie na szlak sygnalizacyjny AKT/GSK-3β.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
Wszystkie operacje farmakologiczne sieci prowadzono zgodnie z Wytycznymi dotyczącymi metod oceny farmakologii sieci. Wszystkie procedury eksperymentalne były wykonywane zgodnie z przepisami zarządzania laboratorium Uniwersytetu Sci-Tech Zhejiang.
Farmakologia sieciowa
Prognoza potencjalnych celów GAS: Kanoniczny SMILES of GAS (PubChem CID: 1150) został pobrany z bazy danych PubChem42. Struktura SMILES została przesłana do bazy danych SwissTargetPrediction (http://www.swisstargetprediction.ch/)43. Parametr gatunkowy został ustawiony na Homo sapiens. Przewidywane cele o wartości prawdopodobieństwa > 0,1 zostały zachowane, aby zmniejszyć liczbę fałszywie pozytywnych prognoz. Wszystkie przewidywane cele białkowe zostały standaryzowane do oficjalnych symboli genów przy użyciu bazy danych UniProt43 (gatunki ograniczone do Homo sapiens), a zduplikowane wpisy zostały usunięte.
Geny związane z AD zostały zebrane z bazy danych GeneCards (https://www.genecards.org/)44,45 oraz bazy OMIM (https://www.omim.org/)46, używając hasła "Alzheimer's disease" jako hasła wyszukiwania. W GeneCards wybierano geny o Wskaźniku Trafności > 10. Cele uzyskane z GeneCards i OMIM zostały połączone, duplikaty usunięte, a nazwy genów standaryzowane za pomocą UniProt.
Przewidywane cele GAS oraz geny związane z AD zostały zaimportowane do platformy online Venny 2.1, aby uzyskać nakładające się cele. Łącznie 52 przecinające się geny (patrz Tabela Uzupełniająca 1) zostały zidentyfikowane jako potencjalne terapeutyczne cele GAS w AD.
52 przecięte cele zostały przesłane do bazy danych STRING (https://string-db.org/)47 do analizy PPI. Gatunek został ustawiony na Homo sapiens, a minimalny wymagany wynik interakcji na 0,4 (średnia pewność). Rozłączone węzły były ukryte. Uzyskane dane interakcji zostały wyeksportowane i zwizualizowane za pomocą oprogramowania Cytoscape (wersja 3.9.1).
Analiza wzbogacenia GO i KEGG: 52 przecinające się cele zostały przesłane do bazy danych Metascape (https://metascape.org/)48 do analiz wzbogacania Gene Ontology (GO) oraz Kyoto Encyclopedia of Genes and Genomes (KEGG). Gatunek został przypisany do Homo sapiens. Kryteria wzbogacania zostały zdefiniowane jako wartość p < 0,01, minimalne nakładanie się ≥ 3 oraz współczynnik wzbogacenia > 1,5. Szlaki KEGG zostały sklasyfikowane według wartości p, a 20 najlepiej wzbogaconych szlaków zostało wybranych do wizualizacji. Wyniki wzbogacania zostały zwizualizowane za pomocą internetowej platformy bioinformatycznej.
Plik struktury białek GSK-3β został pozyskany z bazy danych RCSB PDB. Plik struktury GAS w formacie SDF został pobrany z bazy danych PubChem i następnie przekonwertowany do formatu Mol2 za pomocą oprogramowania GUI Open Babel. Wspomniane powyżej pliki zostały przetworzone za pomocą oprogramowania AutoDock, aby dodać atomy wodoru, usunąć cząsteczki wody i przypisać ładunki. Przetworzone pliki zostały następnie zapisane w formacie PDBQT. Po wykryciu i przetworzeniu wiązań skrętnych w cząsteczkach ligandów, pliki były przechowywane w formacie PDBQT. Najniższą energię wiązania między dwiema cząsteczkami uzyskano poprzez dokowywanie molekularne za pomocą oprogramowania AutoDock Vina. Następnie wyniki dokowania zostały zwizualizowane i przeanalizowane za pomocą PyMOL.
Przygotowanie roztworu bulwarowego
Proszek OA (25 μg) został całkowicie rozpuszczony w 1200 μL 10% dimetylosulfoxidu (DMSO) przygotowanym z solą fizjologiczną z buforem fosforanowym (PBS), aby uzyskać roztwór 25 μM. Roztwór bulwarowy był alicytatowany i przechowywany w temperaturze -80 °C. Przed każdym eksperymentem OA był świeżo rozcieńczany kompletnym Zmodyfikowanym Medium Orła (DMEM) Dulbecco (patrz Tabela materiałów) do pożądanych stężeń roboczych. Proszek gazowy (20 mg) rozpuszczano w 1,4 mL jałowego PBS, filtrowano przez membranę o pojemności 0,22 μm do sterylizacji i przygotowuje się jako roztwór bulwarowy o pojemności 50 mM, przechowywany w temperaturze -20 °C. Przed użyciem roztwór zapasowy rozcieńczono całkowitym DMEM do wskazanych stężeń roboczych.
Konstrukcja modelu komórki AD
Pozyskano i wykorzystano komórki ludzkiego neuroblastoma SH-SY5Y w tym badaniu (patrz Tabela materiałów). Komórki SH-SY5Y zostały indukowane z gradientowymi stężeniami OA (0, 10, 20, 40, 80, 160 nM) odpowiednio przez okresy 12, 24 i 36 godzin, aby ustalić model komórek AD.
Badanie żywotności komórki
Aby określić optymalne stężenie i czas indukcji OA dla modelu komórek AD, komórki SH-SY5Y zostały poddane stężeniom gradientowym OA (0, 10, 20, 40, 80 i 160 nM) przez różne okresy czasowe (12, 24 i 36 godzin), a żywotność komórek oceniono za pomocą testu CCK-849. Komórki SH-SY5Y zostały zasiewane na płytkach 96-dołkowych o gęstości 7,5 × 10³ komórek na dołek w 100 μL kompletnego DMEM. Płytki inkubowano w temperaturze 37 °C w nawilżonym inkubatorze z 5% CO₂ przez 24 godziny, aby umożliwić przyczepienie komórek. Po 24 godzinach przywiązywania do każdego odwiertu dodano 100 μL roztworu roboczego OA, aby uzyskać końcowe stężenia 0, 10, 20, 40, 80 i 160 nM, w łącznej objętości 200 μL na odwiert. Grupa kontrolna (CON) otrzymała równą ilość kompletnego DMEM bez OA, natomiast grupa OA otrzymała OA w wskazanych stężeniach. Komórki inkubowano przez 12 h, 24 h, czyli 36 h w standardowych warunkach hodowli. Każde stężenie i punkt czasowy były ustalane za pomocą sześciu odwiertów replikacyjnych. Do korekcji tła zastosowano trzy puste otwory (tylko średnie).
Określenie komórkowego indeksu stresu oksydacyjnego
Komórki SH-SY5Y w fazie wzrostu logarytmicznego zostały zasiadzone do płytki z 6 dołkami. Po zabiegu komórkowym poprzednie medium zostało wyrzucone z odwiertów. Następnie studnie były trzykrotnie myte wstępnie schłodzonym PBS w temperaturze 4 °C. Następnie dodano bufor do lizy komórek, a komórki były lizowane na lodzie według odpowiednich instrukcji zestawu. Zawartość białka w próbkach została ilościowo określona za pomocą zestawu do analizy białek BCA (patrz Tabela materiałów). Działalność T-AOC, SOD, i MDA została określona zgodnie z instrukcjami dołączonymi do odpowiednich zestawów testowych (patrz Tabela materiałów).
Wykrywanie apoptozy komórkowej
Apoptoza komórek została oceniona za pomocą zestawu do podwójnego barwienia Annexin V-FITC/PI (patrz Tabela materiałów) zgodnie z instrukcjami producenta. Krótko zebrano zarówno komórki unoszące, jak i przylegające. Komórki przylegające zostały trawione za pomocą trypsyny bez EDTA, aby uniknąć sztucznego uszkodzenia błon, oraz połączone z komórkami pływającymi. Komórki były myte dwukrotnie zimnym PBS i ponownie zawieszane w 500 μL buforu wiążącego 1× o gęstości 0,5–1 × 10⁶ komórek .
Następnie do każdej próbki dodano 5 μL Annexin V-FITC oraz 5 μL jodku propidium (PI), delikatnie wymieszano i inkubowano w temperaturze pokojowej w ciemności przez 10–20 minut. Próbki umieszczano na lodzie i analizowano w ciągu 1 godziny za pomocą cytometru przepływowego.
Do analizy cytometrycznej przepływu stosowano sterowanie bez barwienia oraz sterowanie pojedynczo barwione (tylko Annexin V-FITC i tylko PI) do ustalania parametrów kompensacyjnych i bramek kwadrantowych. Początkowo zastosowano bramkowanie rozpraszania przód i boczny (FSC/SSC), aby wykluczyć zanieczyszczenia i agregaty komórek. Uzyskano minimum 10 000 zdarzeń na próbkę. Dane zostały przeanalizowane za pomocą oprogramowania FlowJo.
Ilościowa analiza PCR w czasie rzeczywistym (RT-qPCR)
Zgodnie z instrukcjami zawartymi w zestawie do transkrypcji odwrotnej AG, wyekstrahowane RNA poddawano transkrypcji odwrotnej, aby uzyskać komplementarne DNA (cDNA), które następnie zostało rozcieńczone dziesięciokrotnie sterylną wodą, aby służyć jako szablon. System reakcji RT-qPCR został przygotowany zgodnie z protokołem zestawu Green Master Mix (No Rox), a analizę przeprowadzono za pomocą fluorescencyjnego ilościowego instrumentu PCR (patrz Tabela materiałów). Uzyskane wartości Ct zostały przetworzone i przeanalizowane, a poziomy ekspresji genów docelowych obliczono metodą 2-ΔΔCt, gdzie ΔCt oznacza różnicę między wartościami Ct w grupie leczonej a GAPDH, a ΔΔCt to różnicę między wartościami ΔCt w grupie leczonej i kontrolnej. Listę podkładów można znaleźć w Tabeli Uzupełniającej 2.
Analiza Western blottingu
Bufor do lizy komórkowej wraz z inhibitorem proteazy i inhibitorem fosfatazy został połączony w stosunku 100:1:1. Komórki były lizowane, aby wyodrębnić białka komórkowe. Stężenie białka zostało określone za pomocą zestawu do analizy BCA. Białka (20–30 μg na tor) były rozdzielane na żelach 10% SDS-PAGE przy napięciu 80 V dla żelu układającego i 120 V dla żelu rozdzielającego. Białka były przenoszone do membran PVDF (0,45 μm) przy 300 mA przez 90 minut za pomocą transferu mokrego. Błona była zablokowana 5% mlekiem odtłuszczonym w temperaturze pokojowej przez 2 godziny, po czym nastąpiła nocna inkubacja z pierwotnym przeciwciałem (patrz Tabela Materiałów) w temperaturze 4 °C. Po wykubowaniu z przeciwciałem wtórnym w temperaturze pokojowej przez 1 godzinę, błona była myta czterokrotnie TBST przez 5 minut każdy. Pasma były wizualizowane za pomocą odczynników wykrywających zwiększoną chemiluminescencję (ECL) (patrz Tabela materiałów), a detekcję przeprowadzono za pomocą systemu obrazowania żelowego. Wartości w skali szarości zostały przeanalizowane za pomocą oprogramowania ImageJ w celu uzyskania informacji o danych.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Celowe badania przesiewowe związane z GAS w leczeniu AD
Identyfikacja celów GAS do leczenia AD obejmowała przeszukiwanie baz danych oraz analizę oprogramowania. Szwajcarska baza danych Target Prediction dała 100 potencjalnych celów, natomiast OMIM i GeneCards (z oceną Relevance > 10) zostały zapytane o cele związane z AD, co dało łącznie 2376 potencjalnych celów. Następnie wykorzystanie platformy online Venny 2.1 umożliwiło identyfikację 52 potencjalnych celów terapeutycznych dla GAS w AD (
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
W ostatnich latach na świecie nastąpił wzrost rozpowszechnienia choroby AD. Choroba ta charakteryzuje się przewlekłym, nieodwracalnym charakterem, niepełnosprawnością oraz podwyższoną śmiertelnością, co czyni ją poważnym wyzwaniem w kontekście starzejącej się populacji światowej. Pomimo swojej dominacji, etiologia AD jest złożona, a jego patogeneza pozostaje niedo do końca poznana51.
Tradycyjna medycyna chińska oferuje znaczące zalety w zapobieganiu i leczeniu chorób, w...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Badania te zostały wsparte przez Fundusz Otwarty Uniwersytetu Sci-Tech Zhejiang, Akademii Biomedycyny Shaoxing (SXAB202007).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| System PCR w czasie rzeczywistym 7500 | APExBIO | S0080 | Wykorzystywane do wykrywania komórek apoptotycznych |
| Urządzenie do oznaczania enzymów A450 | Proteintech | 50599-2-Ig | WB, rozcieńczenie 1:1000 |
| Zestaw do wykrywania apoptozy Annexin V-FITC | Proteintech | 60178-1-Ig | WB, rozcieńczenie 1:1000 |
| Przeciwciało przeciw Baxowi | Proteintech | 10494-1-AP | WB, rozcieńczenie 1:1000 |
| Przeciwciało przeciw Bcl-2 | Abcam | ab32057 | WB, rozcieńczenie 1:1000 |
| Przeciwciało anty-GAPDH | Proteintech | 28866-1-AP | WB, rozcieńczenie 1:1000 |
| Przeciwciało anty-p-Tau (Ser396) | Biofroxx | 1172 | Bufor blokujący dla WB |
| Przeciwciało anty-p-Tau (Thr181) | Vazyme Biotech | A311-01/02 | Stosowane do testu żywotności komórek |
| Biofroxx odtłuszczone mleko w proszku | Solarbio Science & Technologia | D8371 | Rozpuszczalnik dla związków |
| Zestaw CCK-8 | Wisent Biotechnology | 319-105-CL | Do hodowli komórkowych |
| Dimetylsulfotlenek (DMSO) | APExBIO (USA) | K1231 | Reagent wykrywający WB |
| Medium wysokoglukozowe DMEM | Technologia Biochemiczna Aladyna | G111309 | Aktywny związek |
| Chemiluminescencyjny odczynnik ECL | Promega | A6101 | Dla wzmocnienia qPCR |
| Cytometr przepływowy | Solarbio Science & Technologia | BC6410 | Badanie peroksydacji lipidów |
| Proszek gastrodin (gazowy), czystość ≥ 98% | MedChemExpress | HY-N6785 | Induktor hiperfosforylacji tau |
| System obrazowania żelowego | Beyotime Biotechnology | C0221A | Przemyj komórki |
| GoTaq qPCR Master Mix | Proteintech | SA00001-1 | WB, rozcieńczenie 1:5000 |
| Zestaw do testowania MDA (malondialdehyd) | Proteintech | SA00001-2 | WB, rozcieńczenie 1:5000 |
| Kwas okadainowy (OA) | ATCC | CRL-2266 | Komórka |
| PBS | Beyotime Biotechnology | S0101M | Do testu stresu oksydacyjnego |
| Przeciwciało wtórne (IgG antymysie dla koz, sprzężone z HRP) | Solarbio Science & Technologia | BC1315 | Wykrywanie zdolności antyoksydacyjnej |
| Przeciwciało wtórne (IgG, antykrólikowe IgG, sprzężone z HRP) | Beyotime Biotechnology | R0016 | Ekstrakcja RNA |
| SH-SY5Y | Sigma-Aldrich | 9002-07-7 | Trawienie komórek |
| Zestaw do testów SOD (całkowita dismutaza nadtlenku) | Thermo Fisher Scientific | A45072 | Wielofunkcyjny czytnik mikropłyt do wykrywania absorpcji |
| Zestaw do całkowitej pojemności antyoksydacyjnej (T-AOC) | Becton, Dickinson and Company | 661310 | Do wieloparametrowej analizy pojedynczych komórek i sortowania komórek. |
| Odczynnik Trizol | Thermo Fisher Scientific | 4351104 | Analiza ekspresji genów |
| Trypsyna | Bio Rad | 1708195 | Obrazowanie DNA/RNA/żelu białkowego |
Bibliografia
- Hu, X., Wang, T., Jin, F. Alzheimer's disease and gut microbiota. Sci China Life Sci. 59 (10), 1006-1023 (2016).
- Qiu, C., Du, Y. A call for action to strengthen research on population interventions against Alzheimer's disease and senile dementia. J Shandong Univ Health Sci. 55 (10), 1-6 (2017).
- Livingston, G., et al. Dementia prevention, intervention,and care: 2020 report of the Lancet Commission. Lancet. 396 (10248), 413-446 (2020).
- Li, T. F., Guo, Z. Q., Wang, Y. Abnormal ß-amyloid metabolism and Alzheimer disease. J Neurosci Ment Health. 22 (12), 904-908 (2022).
- Zheng, J., et al. Oral administration of a fusion protein between the cholera toxin B subunit and the 42-amino acid isoform of amyloid-β peptide produced in silkworm pupae protects against Alzheimer's disease in mice. PLoS One. 9 (12), e113585(2014).
- La Spada, A. R., et al. A Becn1 mutation mediates hyperactive autophagic sequestration of amyloid oligomers and improved cognition in Alzheimer's disease. PLoS Genet. 13 (8), e1006962(2017).
- Aboelwafa, H. R., El-Kott, A. F., Abd-Ella, E. M., Yousef, H. N. The possible neuroprotective effect of silymarin against aluminum chloride-prompted Alzheimer's-like disease in rats. Brain Sci. 10 (9), 628(2020).
- Tobore, T. O. On the central role of mitochondria dysfunction and oxidative stress in Alzheimer's disease. Neurol Sci. 40 (8), 1527-1540 (2019).
- Kawamoto, E. M., et al. Oxidative state in platelets and erythrocytes in aging and Alzheimer's disease. Neurobiol Aging. 26 (6), 857-864 (2005).
- Stancu, I. C., et al. Aggregated Tau activates NLRP3–ASC inflammasome exacerbating exogenously seeded and non-exogenously seeded Tau pathology in vivo. Acta Neuropathol. 137 (4), 599-617 (2019).
- Connolly, K., et al. Potential role of chitinase-3-like protein 1 (CHI3L1/YKL-40) in neurodegeneration and Alzheimer's disease. Alzheimers Dement. 19 (1), 9-24 (2022).
- Yingquan, W., Jing-Hong, L., Ruixia, J. Alzheimer disease in China (2015-2050) estimated using the 1% population sampling survey in 2015. China J Alzheimers Dis Relat Disord. 2 (1), 289-298 (2019).
- Amat-Ur-Rasool, H., Ahmed, M., Hasnain, S., Carter, W. G. Anti-cholinesterase combination drug therapy as a potential treatment for Alzheimer's disease. Brain Sci. 11 (2), 184(2021).
- Cummings, J., Lee, G., Mortsdorf, T., Ritter, A., Zhong, K. Alzheimer's disease drug development pipeline: 2017. Alzheimers Dement (N Y). 3 (3), 367-384 (2017).
- Birks, J. S., Harvey, R. J. Donepezil for dementia due to Alzheimer's disease. Cochrane Database Syst Rev. 6 (6), CD001190(2018).
- Knopman, D. S., et al. Alzheimer's disease. Nat Rev Dis Primers. 7 (1), 33(2021).
- Silva, T., Reis, J., Teixeira, J., Borges, F. Alzheimer's disease, enzyme targets and drug discovery struggles: from natural products to drug prototypes. Ageing Res Rev. 15, 116-145 (2014).
- Liu, X., Yi, W., Xi, B., Dai, Q., Lu, L. Identification of drug-disease associations using a random walk with restart method and supervised learning. Comput Math Methods Med. 2022 (1), 7035634(2022).
- Yu, N., et al. Ganoderma lucidum triterpenoids (GLTs) reduce neuronal apoptosis via inhibition of ROCK signal pathway in APP/PS1 transgenic Alzheimer's disease mice. Oxid Med Cell Longev. 2020 (1), 1-11 (2020).
- Bao, M., et al. Astragaloside IV against Alzheimer's disease via microglia-mediated neuroinflammation using network pharmacology and experimental validation. Eur J Pharmacol. 957, 175992(2023).
- Dartigues, J. F., et al. Ginkgo biloba extract consumption and long-term occurrence of death and dementia. J Prev Alzheimers Dis. 4 (1), 16-20 (2017).
- Savaskan, E., Mueller, H., Hoerr, R., von Gunten, A., Gauthier, S. Treatment effects of Ginkgo biloba extract EGb 761® on the spectrum of behavioral and psychological symptoms of dementia: meta-analysis of randomized controlled trials. Int Psychogeriatr. 30 (3), 285-293 (2017).
- Wang, D., Liu, W., Lu, M., Xu, Q. Neuropharmacological effects of Gastrodia elata Blume and its active ingredients. Front Neurol. 16, 1574277(2025).
- El Menyiy, N., et al. Chemistry, biological activities,and pharmacological properties of gastrodin: mechanism insights. Chem Biodivers. 21 (6), e202400402(2024).
- Yu, H., et al. Research progress on classification of chemical constituents from Gastrodia elata and their pharmacological effects. Chin Tradit Herbal Drugs. 53, 5553-5562 (2022).
- Tang, C., et al. Comparative pharmacokinetics of gastrodin in rats after intragastric administration of free gastrodin, parishin and Gastrodia elata extract. J Ethnopharmacol. 176, 49-54 (2015).
- Fu, X., et al. Antioxidation effects and mechanism of gastrodin in AD rat models. Acta Anat Sin. 41 (4), 485-490 (2010).
- Shi, R., et al. Gastrodin alleviates vascular dementia in a 2-VO vascular dementia rat model by altering amyloid and Tau levels. Pharmacology. 105 (7-8), 386-396 (2020).
- Fasina, O. B., et al. Gastrodin from Gastrodia elata enhances cognitive function and neuroprotection of AD mice via the regulation of gut microbiota composition and inhibition of neuron inflammation. Front Pharmacol. 13, 814271(2022).
- Zheng, Q., et al. MicroRNA-452 promotes tumorigenesis in hepatocellular carcinoma by targeting cyclin-dependent kinase inhibitor 1B. Mol Cell Biochem. 389 (1-2), 187-195 (2014).
- Yan, J., Yang, Z., Zhao, N., Li, Z., Cao, X. Gastrodin protects dopaminergic neurons via insulin-like pathway in a Parkinson's disease model. BMC Neurosci. 20 (1), 31(2019).
- Xiao, H., et al. Gastrodin promotes hippocampal neurogenesis via PDE9-cGMP-PKG pathway in mice following cerebral ischemia. Neurochem Int. 150, 105171(2021).
- Liu, Y., et al. A review on central nervous system effects of gastrodin. Front Pharmacol. 9, 24(2018).
- Fu, J., et al. Gastrodia elata specific miRNA attenuates neuroinflammation via modulating NF-κB signaling pathway. Int J Neurosci. 134 (12), 1652-1662 (2023).
- Wang, Y., et al. Gastrodin: a comprehensive pharmacological review. Naunyn Schmiedebergs Arch Pharmacol. 397 (6), 3781-3802 (2024).
- Liu, C. M., et al. Effects of gastrodin against lead-induced brain injury in mice associated with the Wnt/Nrf2 pathway. Nutrients. 12 (6), 1805(2020).
- De Oliveira, M. R., Brasil, F. B., Fürstenau, C. R. Nrf2 mediates the anti-apoptotic and anti-inflammatory effects induced by gastrodin in hydrogen peroxide-treated SH-SY5Y cells. J Mol Neurosci. 69 (1), 115-122 (2019).
- Zhang, J. S., et al. Gastrodin suppresses BACE1 expression under oxidative stress condition via inhibition of the PKR/eIF2α pathway in Alzheimer's disease. Neuroscience. 325, 1-9 (2016).
- Jiao, M., et al. Effect of the SSeCKS–TRAF6 interaction on gastrodin-mediated protection against 2,3,7,8-tetrachlorodibenzo-p-dioxin-induced astrocyte activation and neuronal death. Chemosphere. 226, 678-686 (2019).
- Cohen, P., Holmes, C. F., Tsukitani, Y. Okadaic acid: a new probe for the study of cellular regulation. Trends Biochem Sci. 15 (3), 98-102 (1990).
- Qin, Y., et al. Okadaic acid detection through a rapid and sensitive amplified luminescent proximity homogeneous assay. Toxins (Basel). 15 (8), 501(2023).
- Kim, S., et al. PubChem 2023 update. Nucleic Acids Res. 51 (D1), D1373-D1380 (2022).
- Daina, A., Michielin, O., Zoete, V. SwissTargetPrediction: updated data and new features for efficient prediction of protein targets of small molecules. Nucleic Acids Res. 47 (W1), W357-W364 (2019).
- Stelzer, G., et al. The GeneCards suite: from gene data mining to disease genome sequence analyses. Curr Protoc Bioinformatics. 54 (1), 1.30.31-1.30.33 (2016).
- Safran, M., et al. Practical guide to life science databases. , Springer Nature. Singapore. (2021).
- Amberger, J. S., Bocchini, C. A., Schiettecatte, F., Scott, A. F., Hamosh, A. OMIM.org: Online Mendelian Inheritance in Man (OMIM®), an online catalog of human genes and genetic disorders. Nucleic Acids Res. 43 (D1), D789-D798 (2014).
- Szklarczyk, D., et al. The STRING database in 2021: customizable protein–protein networks,and functional characterization of user-uploaded gene/measurement sets. Nucleic Acids Res. 49 (D1), D605-D612 (2020).
- Zhou, Y., et al. Metascape provides a biologist-oriented resource for the analysis of systems-level datasets. Nat Commun. 10 (1), 1523(2019).
- Tominaga, H., et al. A water-soluble tetrazolium salt useful for colorimetric cell viability assay. Anal Commun. 36 (2), 47-50 (1999).
- Ton, A. M. M., et al. Oxidative stress and dementia in Alzheimer's patients: effects of synbiotic supplementation. Oxid Med Cell Longev. 2020 (1), 2638703(2020).
- Roth, K. A. Caspases, apoptosis,and Alzheimer disease: causation,correlation,and confusion. J Neuropathol Exp Neurol. 60 (9), 829-838 (2001).
- Cheng, M., et al. The effects of Porphyromonas gingivalis on the apoptosis of hippocampal cells in Sprague-Dawley rats and its underlying mechanisms. Int J Clin Exp Med. 13 (1), 300-309 (2020).
- Liu, H., et al. Development of chemical fingerprints for quality control of Xiong Ma Tang and its related preparations by high-performance liquid chromatography. J Chromatogr Sci. 54 (2), 206-215 (2016).
- Liu, S. J., et al. Gastrodin attenuates microglia activation through renin-angiotensin system and Sirtuin3 pathway. Neurochem Int. 120, 49-63 (2018).
- Hu, Y., Li, C., Shen, W. Gastrodin alleviates memory deficits and reduces neuropathology in a mouse model of Alzheimer's disease. Neuropathology. 34 (4), 370-377 (2014).
- Liu, J., et al. Systems pharmacology uncovers the multiple mechanisms of Xijiao Dihuang decoction for the treatment of viral hemorrhagic fever. Evid Based Complement Alternat Med. 2016 (1), 9025036(2016).
- Ran, B., et al. Drug-drug interactions prediction using fingerprint only. Comput Math Methods Med. 2022 (1), 7818480(2022).
- Sharma, V. K., Singh, T. G., Singh, S., Garg, N., Dhiman, S. Apoptotic pathways and Alzheimer's disease: probing therapeutic potential. Neurochem Res. 46 (12), 3103-3122 (2021).
- Zhou, W., Gao, Y., Xu, S., Yang, Z., Xu, T. Purification of a mannose-binding lectin Pinellia ternata agglutinin and its induction of apoptosis in Bel-7404 cells. Protein Expr Purif. 93, 11-17 (2014).
- Goedert, M., Spillantini, M. G., Jakes, R., Rutherford, D., Crowther, R. Multiple isoforms of human microtubule-associated protein tau: sequences and localization in neurofibrillary tangles of Alzheimer's disease. Neuron. 3 (4), 519-526 (1989).
- Hernández, F., Gómez De Barreda, E., Fuster-Matanzo, A., Lucas, J. J., Avila, J. GSK3: a possible link between beta amyloid peptide and tau protein. Exp Neurol. 223 (2), 322-325 (2010).
- Lu, Z., et al. Neuroprotection and mechanism of Gas-miR36-5p from Gastrodia elata in an Alzheimer's disease model by regulating glycogen synthase kinase-3β. Int J Mol Sci. 24 (24), 17295(2023).
- Vossel, K. A., et al. Tau reduction prevents Aβ-induced axonal transport deficits by blocking activation of GSK3β. J Cell Biol. 209 (3), 419-433 (2015).
- Singh, A. K., et al. Berberine: a plant-derived alkaloid with therapeutic potential to combat Alzheimer's disease. CNS Agents Med Chem. 19 (3), 154-170 (2019).
- Belsare, K. D., et al. Soluble TREM2 inhibits secondary nucleation of Aβ fibrillization and enhances cellular uptake of fibrillar Aβ. Proc Natl Acad Sci U S A. 119 (5), e2114486119(2022).
- Matsuda, S., et al. Roles of PI3K/AKT/GSK3 pathway involved in psychiatric illnesses. Diseases. 7 (1), 22(2019).
- Pan, S., et al. Oleanolic acid derivatives induce apoptosis in human leukemia K562 cell involved in inhibition of both Akt1 translocation and pAkt1 expression. Cytotechnology. 67 (5), 821-829 (2014).
- Zhou, F., et al. Network pharmacology-based strategy to investigate pharmacological mechanisms of Tinospora sinensis for treatment of Alzheimer's disease. J Ethnopharmacol. 259, 112940(2020).
- Liu, Z., Wang, Z. Protein tyrosine kinase 2 regulates tau phosphorylation through PI3K/AKT/Gsk3β signaling pathway. Labeled Immunoassays Clin Med. 29 (3), 464-470 (2022).
- Cope, P. J., Ourradi, K., Li, Y., Sharif, M. Models of osteoarthritis: the good, the bad and the promising. Osteoarthritis Cartilage. 27 (2), 230-239 (2019).
- Wang, X., Blanchard, J., Tung, Y. C., Grundke-Iqbal, I., Iqbal, K. Inhibition of protein phosphatase-2A (PP2A) by I1PP2A leads to hyperphosphorylation of tau, neurodegeneration,and cognitive impairment in rats. J Alzheimers Dis. 45 (2), 423-435 (2015).
- Liu, T. T., et al. Gastrodin alleviates Aβ25-35-induced glycolytic dysfunction via activating PI3K/AKT/BACH1 signaling in Alzheimer's disease models. Exp Neurol. 389, 115225(2025).
- Zuo, H. J., et al. Gastrodin regulates PI3K/AKT-Sirt3 signaling pathway and proinflammatory mediators in activated microglia. Mol Neurobiol. 61 (5), 2728-2744 (2024).
- Wang, Y. P., Mandelkow, E. Tau in physiology and pathology. Nat Rev Neurosci. 17, 22-35 (2015).
- Pardridge, W. M. Drug transport across the blood–brain barrier. J Cereb Blood Flow Metab. 32 (11), 1959-1972 (2012).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.