Badanie przedstawia metodę badania in vitro infekcji bakteryjnej z wykorzystaniem organoidów pochodzenia tkankowego z komórek macierzystych. Protokół opisuje, jak hodować i różnicować organoidy w dwóch wymiarach, zakażać je adherentno-inwazyjnymi Escherichia coli oraz oceniać kluczowe odczyty, w tym przełamanie bariery nabłonkowej, obrazowanie infekcji oraz odpowiedź RNA nabłonkowego.
Artykuł metodologiczny
Dwuwymiarowa hodowla organoidów na inwazynie lub wyciągu z błony podstawowej do badania interakcji gospodarz-bakteria
W tym artykule
Podsumowanie
Streszczenie
Technologia organoidów stanowi eksperymentalną platformę in vitro do badania fizjologii człowieka w zdrowiu i chorobach. W porównaniu z innymi systemami in vitro , takimi jak linie komórkowe pochodzenia nowotworowego czy eksplanty, organoidy pochodzące z tkanek macierzystych (TSC) oferują kluczowe zalety: mogą być rozszerzane w nieskończoność, zachowując stabilność genomową i są podatne na modyfikację CRISPR. Ponieważ te organoidy powstają z normalnych TSC, zawierają typy komórek tkanek pochodzenia. To sprawia, że organoidy są szczególnie cenne do badania interakcji między bakteriami a zróżnicowanymi, nienowotworowymi komórkami ludzkimi. Organoidy jelitowe hodowane są jako dwuwymiarowe, spolaryzowane monowarstwy na wkładkach posiewkowych pokrytych ekstraktem z błony podstawnej (BME) lub inwazyną, wolną od zwierząt, opłacalną alternatywą, i można je różnicować do głównych typów komórek nabłonkowych jelita w celu zakażenia patogennymi adherentno-inwazyjnymi E. coli. Kluczowe odczyty infekcji obejmują monitorowanie ekspresji genów nabłonkowych za pomocą ilościowego PCR (RT-qPCR), wizualizację interakcji bakteria-nabłonek za pomocą mikroskopii konfokalnej oraz ilościowe określenie przebicia bariery nabłonkowej. Protokół można łatwo dostosować do badania innych narządów i gatunków bakterii, zapewniając wszechstronną platformę do badania interakcji gospodarz-mikrob w organoidach.
Wprowadzenie
Nabłonek jelit stanowi pierwszą linię obrony przed patogennymi bakteriami obecnymi w błonie jelit. Modele in vitro nabłonka jelit są szeroko wykorzystywane do badania, jak bakterie oddziałują z komórkami nabłonkowymi, jak te komórki reagują na infekcję oraz jak bakterie przebijają barierę nabłonkową1. Modele te są szczególnie cenne w badaniu patogenów specyficznych dla człowieka w kontrolowanym, redukcjonistycznym środowisku. Historycznie biologia zakażeń in vitro opierała się na liniach komórkowych pochodzących od nowotworów, np. komórkach Caco-2, lub na implantach pochodzących od pacjentów, utrzymywanych ex vivo 2,3. Niedawno organoidy jelitowe powstałe z komórek macierzystych tkanek ludzkich stały się potężnym narzędziem łączącym zalety obu podejść: podobnie jak linie komórkowe, organoidy mogą być przepuszczane, rozszerzane, kriopkonserwowane, rozmrażane i genetycznie modyfikowane; i podobnie jak eksplanty, pochodzą z nienowotworowych komórek macierzystych zdolnych do różnicowania się we wszystkie główne typy komórek nabłonkowych 4,5.
Gdy są osadzone w matrycy, takiej jak Matrigel lub ekstrakt z błony podstawowej (BME), ludzkie organoidy jelitowe zazwyczaj samoorganizują się w sferyczne, spolaryzowane struktury z wierzchołkiem skierowanym do środka, a podstawą na zewnątrz. Ponieważ większość patogenów jelitowych dostaje się do komórek nabłonkowych od strony wierzchołkowej, opracowano kilka strategii narażających tę powierzchnię na bakterie w organoidach4. Jednym z podejść jest mikrowstrzykiwanie bakterii bezpośrednio do organoidulumen 6. Innym jest odwrócenie polaryzacji organoidów poprzez uwolnienie ich z macierzy zewnątrzkomórkowej, co powoduje powstanie organoidów "apikalnych na zewnątrz" w zawiesie7. Trzecią strategią jest rozdzielenie organoidów na pojedyncze komórki i zasiewanie ich na wkładkach do hodowli komórkowych, tworząc spolaryzowane, dwuwymiarowe monowarstwy (arkusze organoidów 2D) z wierzchołkową stroną zwrócenią się do górnej komory8. Pierwsze dwie metody mają istotne ograniczenia: mikroiniekcja jest czasochłonna i pracochłonna, ogranicza przepustowość, a organoidy apikalne na zewnątrz przeżywają tylko kilka dni bez wsparcia macierzowego i nie można ich rozróżnić1. Natomiast arkusze organoidów 2D umożliwiają eksperymenty o wysokiej przepustowości (bakterie można po prostu dodać do górnej komory) i mogą być utrzymywane przez kilka tygodni, jednocześnie różnicując sięw główne typy komórek nabłonkowych jelit.
W przeciwieństwie do uwiecznionych linii komórkowych, które łatwo przyczepiają się do powierzchni plastikowych, komórki pochodzące z organoidów wymagają powłoki płytowej dla efektywnej przyczepności. Powłokę można wykonać przy użyciu rozcieńczonego BME10 lub alternatywnie inwazyny, białka bakteryjnego wiążącego integriny na komórkach organoidalnych11. Invasin jest łatwy do produkcji w laboratorium, znacznie bardziej opłacalny niż BME czy Matrigel i całkowicie wolny od zwierząt.
Protokół ten opisuje ustanowienie i różnicowanie organoidów jelitowych jako dwuwymiarowe spolaryzowane monowarstwy na wkładkach do hodowli komórkowych pokrytych inwazyną lub ekstraktem błony podstawowej (BME). Zróżnicowane arkusze organoidalne są następnie zakażone Adherentno-inwazyjnym szczepem Escherichia coli (AIEC), patogennym szczepem związanym z zapalną chorobą jelit12. Przedstawiono wiele dalszych odczytów infekcji, aby ocenić odpowiedzi nabłonkowe i translokację bakteryjną. Ponieważ AIEC atakuje komórki nabłonkowe i narusza nabłonek jelit — mechanizm uznawany za przyczyniający się do jego patogenności — przebicie nabłonka jest ilościowo oceniane przez pomiar bakterii, które docierają do komory bazolateralnej wkładki hodowli komórkowej po potwierdzeniu integralności bariery za pomocą pomiaru oporu elektrycznego transepitelowego/transendothelialnego (TEER)13. Przewidziano również procedury stabilizacji i obrazowania zakażonych monowarstw w celu wizualizacji AIEC wewnątrzkomórkowej i zewnątrzkomórkowej, a także ekstrakcji RNA w celu oceny odpowiedzi transkrypcyjnej nabłonka na infekcję. Cały protokół można wykonać w mniej niż dwa tygodnie i wymaga jedynie powszechnie dostępnego sprzętu laboratoryjnego, w tym szafki BSL-2, mikroskopu konfokalnego oraz ilościowego instrumentu PCR.
Ogólnie rzecz biorąc, protokół ten zapewnia opłacalną, wszechstronną i dostępną metodę badania bakteryjnego zakażenia zróżnicowanym nabłonkiem jelitowym in vitro. Może być łatwo adaptowany do innych układów organoidalnych oraz innych gatunków drobnoustrojów, co czyni go użytecznym wzorcem do badań biologii zakażeń in vitro .
Protokół
Ludzkie organoidy jelitowe powstały z odpadów pacjentów poddawanych operacjom raka jelita grubego w Uniwersyteckim Centrum Medycznym w Utrechcie (UMCU). Pacjenci wyrazili świadomą zgodę na generowanie swoich organoidów, zgodnie z protokołem UPORT Cancer Biobank 21-042, zatwierdzonym przez lokalny komitet etyki biobankowania. Rysunek 1A ilustruje 8 sekcji protokołu . Informacje o odczynnikach i sprzęcie są wymienione w Tabeli Materiałów.
1. Powłoka wkładu do hodowli komórkowej
- Powłoka inwazyną
- Wszystkie zabiegi wykonuj w okapu do hodowli tkankowej w warunkach sterylnych.
- Przygotuj roztwór inwazyny o stężeniu 5 μg/mL w bezpłodnej soli fosforanowej (PBS).
- Dodaj 100 μL tego roztworu do górnej komory każdego wkładu poliestrowego z porami o pojemności 3 μm, umieszczonego w płytkach z 24 dołkami.
- Upewnij się, że membrana jest całkowicie przykryta.
- Inkubować przez noc w temperaturze 4 °C.
UWAGA: Unikaj powstawania bąbelków podczas dozowania, ponieważ one uniemożliwiają jednolite powlekanie.
- Powłoka ekstraktem z błony podstawowej (alternatywa)
- Ekstrakt z błony podstawowej rozmrażać na lodzie.
- Przygotuj 10% roztwór w lodowatym DMEM.
UWAGA: Utrzymuj roztwór w zimnie, aby zapobiec przedwczesnej polimeryzacji. - Dodaj 100 μL rozcieńczonego roztworu do górnej komory każdego wkładu hodowli komórkowej o pojemności 3 μm.
- Zapewnij pełne pokrycie powierzchni błony.
- Inkubuj przez 1 godzinę w temperaturze pokojowej.
2. Rozsiewanie komórek organoidalnych
- Przygotowanie organoidów
- Usuń pożywkę hodowlową z płytek organoidalnych utrzymywanych w warunkach ekspansji (3-5 dni po rozszczepieniu).
- Ponownie zawiesić organoidy w 1 mL lodowatego DMEM14.
- Przełóż zawieszenie do stożkowej rurki o pojemności 15 mL zawierającej 4 mL lodowatego DMEM.
UWAGA: Użyj około 1 pełnego dołka z płytki 12-dołkowej do zasiewania wkładów 4 hodowli komórkowych.
- Organoidy peletujące
- Wirówka przez 5 minut w temperaturze 500 × g w 4 °C.
- Całkowicie usuń supernatant.
- Organoidy dysocjacyjne
- Ponownie zawiesij pellet w 3 mL rekombinowanego substytutu trypsyny.
- Pipetuj w górę i w dół, używając pipety P1000, aby mechanicznie zakłócać organoidy.
- Inkubuj w temperaturze 37 °C przez 15-20 minut, aż uzyska się pojedyncze komórki lub małe skupiska (3-4 komórki).
UWAGA: Nie przekraczaj 20 minut inkubacji. Pipetę co 5 minut, aby ułatwić dysocjację. Jeśli potrzebna jest dodatkowa siła mechaniczna, włóż końcówkę P10 do końcówki P1000.
- Komórki płuczące
- Dodaj 5 ml lodowatego DMEM.
- Wirówka przez 5 minut w temperaturze 500 × g w 4 °C.
- Usuń supernatant.
- Przygotuj zawiesinę ogniwa
- Ponownie zawiesz komórki w ośrodku ekspansyjnym (100 μL na wkładkę hodowlę; patrz Tabela 1 dotycząca składu ośrodka ekspansyjnego).
UWAGA: Nie podawaj antybiotyków. Dodaj inhibitor kinazy Rho, aby zapobiec anoikis. - Licz komórki za pomocą licznika komórek lub hemocytometru.
- Dostosuj do około 2 × 10⁶ komórek /mL.
- Ponownie zawiesz komórki w ośrodku ekspansyjnym (100 μL na wkładkę hodowlę; patrz Tabela 1 dotycząca składu ośrodka ekspansyjnego).
- Siewowanie wkładek do hodowli komórkowych
- Usuń roztwór powłokowy z wkładek.
- Dodaj 100 μL zawiesiny ogniwowej (2 × 10⁵ ogniw) do górnej komory.
- Dodaj 500 μL medium rozprężnego do dolnej komory.
3. Hodowla i różnicowanie hodowli komórkowej
- Inkubować w temperaturze 37 °C z 5% CO2 aż do osiągnięcia konfluencji (około 3 dni).
UWAGA: Odświeżaj medium w obu przedziałach co 4-5 dni, jeśli to konieczne. - Po połączeniu przemyj oba przedziały podgrzanym DMEM.
- Dodaj do dolnej komory 500 μL nośnika różnicującego (Tabela 2).
- Dodaj 100 μL Advanced DMEM/F12 uzupełniony HEPES i Glutamax (AdvDMEM++) (Tabela 3) do górnej komory.
- Inkubuj przez 5 dni w temperaturze 37 °C z 5%CO2.
- Wymieniaj media w obu komorach co 2 dni.
4. Pomiar oporu elektrycznego przezepitelowego/transendothelowego (TEER)
- Sterylizuj elektrody TEER w 70% etanolu przez 15 minut.
- Elektrody płuczki w sterylnym PBS.
- Włóż krótką elektrodę do górnej komory, a długą elektrodę do dolnej komory.
UWAGA: Nie dotykaj monowarstwy końcówką elektrody. - Rejestruj wartości oporu.
- Zmierz opór pustego za pomocą wkładki bezkomórkowej zawierającej PBS (górna warstwa 100 μL, niższa o 500 μL).
- Oblicz TEER: TEER = (wkładka hodowla R_cell R_blank�) × powierzchni (cm²)
UWAGA: Dla wkładów z 24 otworami powierzchnia = 0,33 cm².
5. Zakażenie AIEC
- Przygotuj hodowlę bakteryjną
- Inokuluj fluorescencyjną AIEC w 3 mL LB medium15.
- Inkubuj przez noc w temperaturze 37 °C z potrząsaniem.
UWAGA: Wszystkie zabiegi bakteryjne wykonuj w masku BSL-2.
- Przygotuj inokulum
- Wirówka 500 μL hodowla przez 5 minut przy 1500 × g.
- Zawiesić ponownie za 1 ml AdvDMEM++.
- Mierz gęstość optyczną (OD).
- Rozcieńcz do około 1 × 10⁸ CFU/mL w AdvDMEM++.
UWAGA: OD = 1 odpowiada około 1 × 10⁹ CFU/mL.
- Zakażanie monowarstw
- Wymień media w obu przegródkach.
- Dodaj 500 μL medium różniczkowego do dolnej komory.
- Dodaj 100 μL zawiesiny bakteryjnej do górnej komory dla zakażonego stanu.
- Dla stanu niezakażonego należy dodać 100 μL AdvDMEM++ do górnej komory.
- Inkubować w temperaturze 37 °C, 5% CO₂.
6. Ocena przebicia nabłonka
- Po 2,5 godzinie po zakażeniu pobierz 100 μL z dolnej części przedziału.
- Rozcieńcz w PBS i nałóż na agar LB.
- Dodaj 100 μL świeżego medium różnicującego do dolnej komory.
- Inkubuj płytki przez noc w temperaturze 37 °C.
- Powtórz pobieranie po 5 godzinach od zakażenia.
- Liczyć Jednostkę Formującą Kolonie (CFU) następnego dnia.
- Oblicz CFU na wkładkę hodowlową komórek: CFU/wkładka do hodowli komórek = kolonie × 5 × współczynnik rozcieńczenia
7. Zakażenie obrazem
- Po 5 godzinach od infekcji usuń podłoże i wykryj 4% paraformaldehydem.
UWAGA: Paraformaldehyd jest toksyczny i lotny. Trzymaj się w okapie wyparowym, mając na sobie rękawiczki. - Poprawka przez 30 minut.
- Umyj trzy razy PBS.
- Wyciąć wkład błonowy i umieścić komórki skierowane do góry w płytkach dołków.
- Barwię fluorescencyjną falloidyną przez 1-2 godziny.
- Umyj trzy razy PBS.
- Barw jądra DAPI przez 10 minut.
- Umyj trzy razy PBS.
- Zamontuj na szklanym ślizgu z medium montażowym i nałóż pokrywkę.
- Zabezpiecz lakierem do paznokci.
- Zrób zdjęcia konfokalne kanałów DAPI, aktyny i bakterii.
- Uzyskaj stos z-obejmujący powierzchnie od podstawy do wierzchołka z odstępami 1 μm.
- Otwarte zdjęcia na Fidżi.
- Wybierz obraz → Z Project → średnią intensywność.
- Wybierz Obraz → stosy → widokach ortogonalnych, aby zwizualizować przekroje poprzeczne.
8. Analiza odpowiedzi nabłonka
- Po 5 godzinach od infekcji usuń podłoże.
- Dodaj 350 μL bufora lizyzowego do górnej komory.
- Pipeta do komórek lizujących i przeniesiona do rurki wolnej od RNazy na lodzie.
- Ekstrakcji RNA wykonuj zgodnie z instrukcjami zestawu.
- Zmierz stężenie RNA i normalizuj próbki.
- Wykonaj transkrypcję wsteczną.
- Wykonaj ilościowe PCR zgodnie z instrukcjami producenta (sekwencje primerów dla TNFα oraz gen referencyjny β-aktyny podano w Tabeli 4).
Wyniki
Po osiągnięciu połączenia komórek jelitowych na wkładce do hodowli komórkowej miały mozaikowy wzór (Rysunek 1B) bez widocznych szczelin w monowarstwie. Po różnicowaniu szczelność nabłonka oceniono poprzez pomiar oporu elektrycznego nabłonka (TEER) (Rysunek 1C). Wartości TEER powyżej 500 Ω·cm² były zgodne z powstawaniem zwartej monowarstwy nabłonkowej¹⁶.
Ilość AIEC wykrywana w przedziale podstawowo-bocznym rosła z czasem, co odzwierciedla przebicie bariery nabłonkowej przez bakterie (rysunek 2A,B). Brak AIEC w dolnej części oznaczałby niepowodzenie translokacji bakteryjnej.
Workflow wizualizacji infekcji jest podsumowany na Rysunku 3A. Obrazowanie konfokalne wykazało powstanie spolaryzowanej monowarstwy, z jądrami zlokalizowanymi u podstawy oraz szczytowym wzbogaceniem sieci aktynowej (Rysunek 3B). Większe powiększenie ujawniło zarówno wewnątrzkomórkowy AIEC, jak i bakterie zewnątrzkomórkowe przyczepione do błony wierzchołkowej (rysunek 3C).
Analiza RT-qPCR wykazała wzrost ekspresji TNFα w odpowiedzi na infekcję AIEC (Rysunek 4A,B), potwierdzając aktywację zapalnej odpowiedzi nabłonkowej.
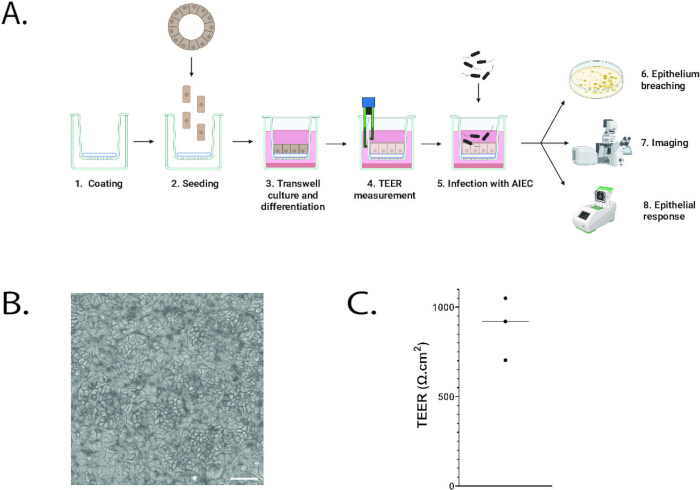
Rysunek 1: Przegląd protokołu. (A) Schematy protokołu. (B) Obraz jasnego pola komórek organoidalnych jelit, hodowany i zróżnicowany na inwazyjnie powlekanej hodowli komórkowej. Skala: 50 μm. (C) Opor elektryczny przezepitelowy/przezendotelowy (TEER) organoidów jelitowych hodowanych i zróżnicowanych na wkładkach powlekanych w hodowlach komórkowych pokrytych inwazyńami. Każda kropka pokazuje niezależny eksperyment. Proszę kliknąć tutaj, aby zobaczyć większą wersję tej figurki.
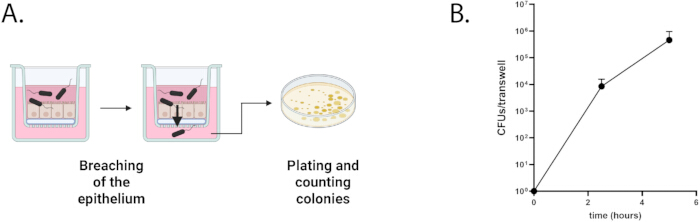
Rysunek 2: Ocena naruszenia nabłonka (A) Schematy protokołu. (B) Ilościowa liczba jednostek tworzących kolonie (CFU) AIEC w czasie w dolnej części wkładu do hodowli komórkowej. Proszę kliknąć tutaj, aby zobaczyć większą wersję tej figurki.
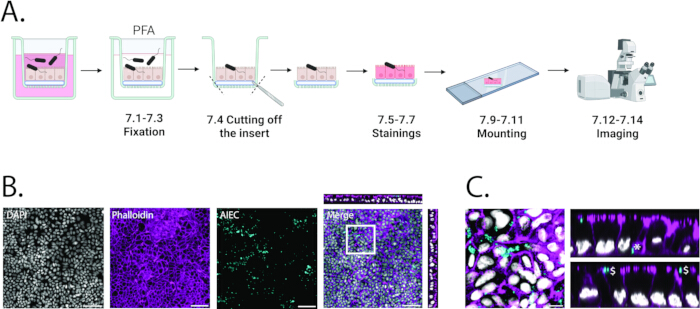
Rysunek 3: Zakażenie obrazowe. (A) Schematy protokołu. (B) Konfokalne obrazowanie organoidów jelit zakażonych fluorescencyjnym AIEC przez 5 godzin. Grey: DAPI. Magenta: falloidyna. Cyan: AIEC. Pasek skali: 50 μm. Ortogonalne widoki scalonego obrazu są wyświetlane u góry i po prawej stronie. (C) Duże powiększenie białego kwadratu w B. Grey: DAPI. Magenta: falloidyna. Cyan: AIEC. Pasek skali: 10 μm. Widoki ortogonalne są pokazane po prawej stronie. Wyróżnione są AIEC wewnątrzkomórkowe (*) oraz zewnętrzne AIEC przyczepione do błony wierzchołkowej komórek nabłonkowych ($). Proszę kliknąć tutaj, aby zobaczyć większą wersję tej figurki.
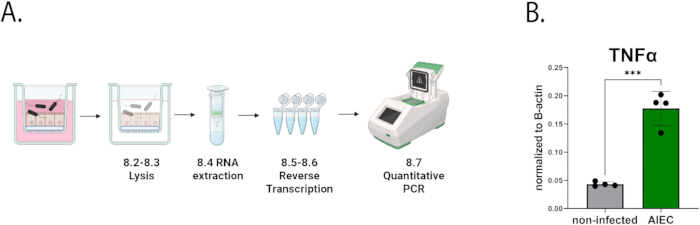
Rysunek 4: Analiza odpowiedzi nabłonkowej. (A) Schematy protokołu. (B) Ekspresja TNFα przez organoidy jelitowe po 5 godzinach zakażenia AIEC (zielony) w porównaniu do niezakażonej grupy kontrolnej (szary). Ekspresja TNFα została znormalizowana do ekspresji B-aktyny według wzoru 2-(Cq(TNFα)-Cq(β-aktyna)). n=4 replikuje się. Analiza statystyczna została przeprowadzona za pomocą testu t niesparowanego ucznia. P < 0,001. Proszę kliknąć tutaj, aby zobaczyć większą wersję tej figurki.
| Składnik | Koncentracja |
| Zaawansowany DMEM | 1X finał |
| HEPES | 1% v/v |
| Glutamax | 1% v/v |
| Wnt surrogate | 0,5 nM |
| R-spo1 UPE | 2% v/v |
| Noggin UPE | 1% v/v |
| B27 bez witaminy A | 2% v/v |
| N-acetylocysteina | 1,25 mM |
| Nikotynamid | 10 μM |
| hEGF | 50 ng/mL |
| A83-01 (inhibitor TGF-β) | 0,5 μM |
| SB202190 (inhibitor p38) | 3 μM |
| Prostaglandyna E2 | 1 μM |
| Inhibitor kinazy Rho | 10 μM |
Tabela 1: Medium ekspansji dla ludzkich organoidów jelitowych. Skład ośrodka ekspansyjnego używanego do utrzymania i proliferacji ludzkich organoidów jelitowych.
| Składnik | Koncentracja |
| Zaawansowany DMEM | 1X finał |
| HEPES | 1% v/v |
| Glutamax | 1% v/v |
| R-spo1 UPE | 2% v/v |
| Noggin UPE | 1% v/v |
| B27 bez witaminy A | 2% v/v |
| NAC | 1,25 mM |
| hEGF | 50 ng/mL |
Tabela 2: Ośrodek różnicujący dla ludzkich organoidów jelitowych. Skład ośrodka różnicującego używanego do wspierania dojrzewania nabłonka monowarstw ludzkich organoidów jelitowych.
| Składnik | Koncentracja |
| Zaawansowany DMEM | 1X finał |
| HEPES | 1% v/v |
| Glutamax | 1% v/v |
Tabela 3: Zaawansowane DMEM++ na zakażenie. Skład zaawansowanego medium DMEM/F12 uzupełnionego HEPES i Glutamaxem (Adv DMEM++) stosowanego podczas testów infekcji bakteryjnych.
| Nazwa | Sekwencja |
| TNFα F | CTCTTCTGCCTGCTGCACTTTG |
| TNFα R | ATGGGCTACAGGCTTGTCACTC |
| β-aktyna F | TGACGTTGACATCCGTAAAG |
| β-aktyna R | GAGGAGCAATGATCTCTCT |
Tabela 4: Startery do qPCR TNFα. Pokazuje sekwencje primerowe używane do ilościowej analizy PCR TNFα z wykorzystaniem β-aktyny jako genu referencyjnego.
Dyskusja
Badanie to ustanowiło protokół badania bakteryjnego zakażenia ludzkich komórek nabłonka jelita z wykorzystaniem organoidów pochodzących z TSC hodowanych na wkładkach do hodowli komórkowych. Wkładki z porami o średnicy 3 μm umożliwiały efektywne przyczepanie komórek i translokację bakteryjną, podczas gdy pory o średnicy 0,4 μm nie pozwalają na przejście AIEC, co odpowiada przybliżonemu rozmiarowi 1 μm E. coli. Nie zaobserwowano translokacji komórek organoidalnych przez pory o powierzchni 3 μm, prawdopodobnie ze względu na ich fenotyp nabłonkowy i nieinwazyjny.
Dla powtarzalności było kluczowych kilka zmiennych eksperymentalnych, w tym efektywne przyczepienie komórek, odpowiednia gęstość zasiewów oraz całkowita konfluencja przed infekcją. Komórki nabłonkowe pochodzące z organoidów nie przylegają do niepowlekanego plastiku, co czyni powłokę niezbędną. BME zapewniało konsekwentnie wysoką efektywność mocowania. Powłoka Invasin dała porównywalne rezultaty i stanowi opłacalną alternatywę11, choć musi być produkowana we własnym zakresie. Powłoka kolagenowa została również proponowana jako alternatywa17.
Warunki wzrostu bakterii silnie wpływają na skuteczność infekcji. Szczepy E. coli dobrze rosną w DMEM; Jednak pozostałe antybiotyki mogą hamować proliferację. W optymalnych warunkach zakażone hodowle zwykle wykazują zwiększone mętności w porównaniu z kontrolami, a wzrost bakterii można potwierdzić poprzez pokrycie zawartości przedziałów wierzchołkowych.
Strategia obrazowania umożliwiała wizualizację zarówno bakterii wewnątrzkomórkowych, jak i zewnętrznych, poprzez ukierunkowanie AIEC na ekspresję fluoroforu pod konstytutywnym promotorem (np. z wykorzystaniem plazmidu pMB1-spect-PthrC-eGFP). Alternatywne metody umożliwiają selektywne wykrywanie bakterii wewnątrzkomórkowych, w tym różnicowego barwienia immunofluorescencyjnego18 lub reporterów wyrażanych na określonych etapach inwazji19. Testy ochrony gentamicyny zapewniają dodatkowe podejście ilościowe20.
Model ten jest celowo redukcjonistyczny i koncentruje się na bezpośrednich interakcjach między bakteriami a nabłonkiem jelitowym. Umożliwia badanie infekcji w zróżnicowanej monowarstwie nabłonkowej bez konieczności posiadania dodatkowych typów komórek in vivo. Ośrodek różnicujący w przeważającej mierze indukował różnicowanie komórek enterocytów i pucharów21, ale można je zmodyfikować, aby zmienić skład nabłonka 22,23. Złożoność systemu może być zwiększona przez współhodowlę komórek odpornościowych lub stromalnych w przedziale podstawowym24.
System ten nie odtwarza trójwymiarowej architektury błony śluzowej jelit. Platformy organ-on-chip pokonują pewne ograniczenia strukturalne25 , ale wymagają większej złożoności technicznej i zasobów. Ponadto model najlepiej sprawdza się w przypadku ostrych infekcji, ponieważ przerost bakterii ogranicza eksperymenty do około 8 godzin. Do badania przewlekłych infekcji in vitro26 potrzebne są bardziej złożone systemy, takie jak platformy mikrofluidyczne umożliwiające ciągłą wymianę ośrodków.
Podobne systemy zakażeń organoidów oparte na hodowlach komórkowych były stosowane w wielu tkankach i patogenach, w tym w organoidach żołądkowych zakażonych Helicobacter pylori27,28, organoidach jelitowych zakażonych Shigella29, organoidach dróg oddechowych zakażonych Pseudomonas aeruginosa10 oraz organoidach urotelialnych zakażonych Enterococcus faecalis30. Protokół ten zapewnia zatem wszechstronne ramy do badania interakcji nabłonkowych z bakteriami między układami narządowymi, pod warunkiem uwzględnienia specyficznych dla patogenu wymagań wzrostowych.
Technologia organoidów dostarcza fizjologicznie istotnych modeli ludzkich do badania interakcji gospodarz-patogen w komórkach nabłonka nieprzekształconego 4,5. Biorąc pod uwagę rosnące obciążenie infekcjami opornymi na antybiotyki oraz ich związek z przewlekłymi chorobami zapalnymi i nowotworami, takie systemy in vitro stanowią cenne narzędzia dla badań mechanistycznych i translacyjnych.
Oświadczenia
H.C. jest wynalazcą kilku patentów związanych z technologią organoidów. Pełne ujawnienie H.C. zostało przekazane na https://www.uu.nl/staff/JCClevers/.
Podziękowania
Autorzy dziękują Utrecht Portal for Organoid Technology (UPORT), w szczególności Annecie Brousali, Jorieke Salij i Arnoldowi Bindzie, a także pacjentom i chirurgom z University Medical Center Utrecht za udostępnienie tkanek jelita grubego. Autorzy dziękują także Nicolasowi Barnichowi za udostępnienie szczepu AIEC LF82. Prace te były wspierane grantem CRUK OPTIMISTIC (C10674/A27140). TG była finansowana przez program badawczo-innowacyjny Unii Europejskiej Horizon 2020 w ramach umowy grantowej Marie Sklodowska-Curie 101107988. Schematy były tworzone za pomocą BioRender (https://www.biorender.com/).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| A83-01 (inhibitor TGF i beta) | Tocris | 2939 | |
| Adherentno-inwazyjna Escherichia coli LF82 | łaskawy dar od Nicolasa Barnicha | ||
| Zaawansowane DMEM/F12 | Invitrogen | 12634-010 | |
| B27 bez witaminy A | Invitrogen | 12587010 | |
| zestaw cDNA | Biosystemy stosowane | 4387406 | Instrukcja jest dostępna tutaj: https://documents.thermofisher.com/TFS-Assets/LSG/manuals/MAN 0017977_highcap_cDNA_RT_UG.pdf |
| Licznik komórek | DeNovix | H2796 | |
| Licznik komórek | Leica | Stellaris | |
| Pokrywki 24 mm x 50 mm | Menzel-Glä zer | BB024050S1 | |
| Ekstrakt z bazalnej błony Cultrex (BME) | R& D Systems, Bio-Techne | 3533-001-02 | |
| DAPI | Sigma-Aldrich | 10236276001 | |
| Jednorazowy skalpel sterylny N&DE; 10 | Swann Morton | 3033838 | |
| DMEM | Gibco | 11965092 | |
| Fidżi | Fidżi | Fidżi jest dostępne w otwartym dostępie i można je pobrać tutaj: https://imagej.net/software/fiji/downloads | |
| Glutamax | Gibco | 35050-061 | |
| hEGF | Peprotech | AF-100-15 | |
| HEPES | Gibco | 15630-080 | |
| Invasin | wykonano na zamówienie według Wijnakker i in. PNAS 2024 | ||
| LB | Thermofisher | CM0996 | |
| LB Agar | Thermofisher | CM1116 | |
| Izba Malasseza | KOVA | 87144E | |
| Szkiełka mikroskopowe | Skycraft | 18901 | |
| Milli komórkowy Voltohmmetr (pomiar TEER) | Merck | MERS00002 | |
| Medium montażowe | Laboratoria Vectors | Vectashield H-1000-10 | |
| N-acetyl cysteina | Sigma-Aldrich | A9165 | |
| Nikotynamid | Sigma-Aldrich | N0636 | |
| Noggin UPE | IPA Therapeutics | N002 | |
| Roztwór paraFormaldehydu 4% | Sigma-Aldrich | 1.00496 | |
| Phalloidin 647 | Sigma-Aldrich | 65906-10NMOL | |
| plazmid pMB1-spect-PthrC-eGFP | Addgene | 107408 | |
| Prostaglandyna E2 | Tocris | 2296 | |
| Maszyna qPCR | Biorad | C1000-Touch | |
| Inhibitor kinazy Rho | AbMole | M1817 | |
| Zestaw do ekstrakcji RNA | Qiagen | 74534 | Instrukcja jest dostępna tutaj: https://www.qiagen.com/us/resources/resourcedetail?id=bf60203 F-291D-48AE-8206-86B0696B28C0& lang=en |
| R-spo3 UPE | IPA Therapeutics | R001 | |
| SB202190 (inhibitor p38) | Sigma-Aldrich | S7076 | |
| Spektromycyna | Sigma-Aldrich | S9007 | |
| Płytka zawiesna do hodowli organoidów | Greiner | 665102 | |
| SYBR green | Biorad | 170-8887 | Instrukcja jest dostępna tutaj: https://www.bio-rad.com/webroot/web/pdf/lsr/literature/4106212.pdf |
| Thermocycler | Biorad | T100 | |
| Wkład do hodowli komórkowej | Przetworniki 24W 3 & mikro; Pory, Greiner | 662631 | |
| Triton X-100 | Sigma-Aldrich | T8787 | |
| TrypLE | Gibco, Thermo Fisher Scientific | 12605-010 | |
| Wnt surrogate | U-Protein Express | Zamówienie niestandardowe | https://www.life-sciences-europe.com/organisation/protein-express-immunoprecise-group-utrecht-netherlands-west-europe-2001-30404.html |
Bibliografia
- McCoy, R., et al. In vitro Models for Investigating Intestinal Host-Pathogen Interactions. Adv Sci. 11 (8), 2306727(2023).
- Sambuy, Y., De Angelis, I., Ranaldi, G., Scarino, M. L., Stammati, A., Zucco, F. The Caco-2 cell line as a model of the intestinal barrier: influence of cell and culture-related factors on Caco-2 cell functional characteristics. Cell Biol Toxicol. 21 (1), 1-26 (2005).
- Gustafsson, J. K., Ermund, A., Johansson, M. E. V., Schütte, A., Hansson, G. C., Sjövall, H. An ex vivo method for studying mucus formation, properties, and thickness in human colonic biopsies and mouse small and large intestinal explants. Am J Physiol Gastrointest Liver Physiol. 302 (4), G430-G438 (2012).
- Puschhof, J., Pleguezuelos-Manzano, C., Clevers, H. Organoids and organs-on-chips: Insights into human gut-microbe interactions. Cell Host Microbe. 29 (6), 867-878 (2021).
- Clevers, H. Modeling Development and Disease with Organoids. Cell. 165 (7), 1586-1597 (2016).
- Kim, M., Fèvre, C., Lavina, M., Disson, O., Lecuit, M. Protocol for live imaging of bacteria-cell interactions in genetically modified mouse small intestinal organoids. STAR Protoc. 5 (1), 102773(2024).
- Co, J. Y., Margalef-Català, M., Monack, D. M., Amieva, M. R. Controlling the polarity of human gastrointestinal organoids to investigate epithelial biology and infectious diseases. Nat Protoc. 16 (11), 5171-5192 (2021).
- Moon, C., VanDussen, K. L., Miyoshi, H., Stappenbeck, T. S. Development of a primary mouse intestinal epithelial cell monolayer culture system to evaluate factors that modulate IgA transcytosis. Mucosal Immunol. 7 (4), 818-828 (2014).
- VanDussen, K. L., et al. Development of an enhanced human gastrointestinal epithelial culture system to facilitate patient-based assays. Gut. 64 (6), 911-920 (2015).
- Pleguezuelos-Manzano, C., et al. Dual RNA sequencing of a co-culture model of Pseudomonas aeruginosa and human 2D upper airway organoids. Sci Rep. 15 (1), 2222(2025).
- Wijnakker, J. J. A. P. M., et al. Integrin-activating Yersinia protein Invasin sustains long-term expansion of primary epithelial cells as 2D organoid sheets. Proc Natl Acad Sci U S A. 122 (1), e2420595121(2025).
- Darfeuille-Michaud, A., et al. Presence of adherent Escherichia coli strains in ileal mucosa of patients with Crohn's disease. Gastroenterology. 115 (6), 1405-1413 (1998).
- Darfeuille-Michaud, A., et al. High prevalence of adherent-invasive Escherichia coli associated with ileal mucosa in Crohn's disease. Gastroenterology. 127 (2), 412-421 (2004).
- Pleguezuelos-Manzano, C., Puschhof, J., van den Brink, S., Geurts, V., Beumer, J., Clevers, H. Establishment and culture of human intestinal organoids derived from adult stem cells. Curr Protoc Immunol. 130 (1), e106(2020).
- Anilionyte, O., Liang, H., Ma, X., Yang, L., Zhou, K. Short, auto-inducible promoters for well-controlled protein expression in Escherichia coli. Appl Microbiol Biotechnol. 102 (16), 7007-7015 (2018).
- Chen, S., Einspanier, R., Schoen, J. Transepithelial electrical resistance (TEER): a functional parameter to monitor the quality of oviduct epithelial cells cultured on filter supports. Histochem Cell Biol. 144 (5), 509-515 (2015).
- In, J. G., Foulke-Abel, J., Clarke, E., Kovbasnjuk, O. Human colonoid monolayers to study interactions between pathogens, commensals, and host intestinal epithelium. J Vis Exp. (146), e59357(2019).
- Quereda, J. J., et al. A dual microscopy-based assay to assess Listeria monocytogenes cellular entry and vacuolar escape. Appl Environ Microbiol. 82 (1), 211-217 (2016).
- Schulte, M., Grotheer, L., Hensel, M. Bright individuals: Applications of fluorescent protein-based reporter systems in single-cell cellular microbiology. Mol Microbiol. 121 (3), 605-617 (2024).
- Sharma, A., Puhar, A. Gentamicin protection assay to determine the number of intracellular bacteria during infection of human TC7 intestinal epithelial cells by Shigella flexneri. Bio-protocol. 9 (13), e3292(2019).
- Sato, T., et al. Long-term expansion of epithelial organoids from human colon, adenoma, adenocarcinoma, and Barrett's epithelium. Gastroenterology. 141 (5), 1762-1772 (2011).
- Fujii, M., et al. Human intestinal organoids maintain self-renewal capacity and cellular diversity in niche-inspired culture conditions. Cell Stem Cell. 23 (6), 787-793 (2018).
- He, G. -W., et al. Optimized human intestinal organoid model reveals interleukin-22-dependency of paneth cell formation. Cell Stem Cell. 29 (9), 1333-1345 (2022).
- Ding, L., et al. Toll-like receptor 9 pathway mediates Schlafen⁺-MDSC polarization during Helicobacter-induced gastric metaplasias. Gastroenterology. 163 (2), 411-425 (2022).
- Alonso-Roman, R., et al. Organ-on-chip models for infectious disease research. Nature Microbiol. 9 (4), 891-904 (2024).
- Jalili-Firoozinezhad, S., et al. A complex human gut microbiome cultured in an anaerobic intestine-on-a-chip. Nature Biomed Eng. 3 (7), 520-531 (2019).
- Vllahu, M., et al. Inflammation promotes stomach epithelial defense by stimulating the secretion of antimicrobial peptides in the mucus. Gut Microbes. 16 (1), 2390680(2024).
- Aguilar, C., et al. et al.Helicobacter pylori shows tropism to gastric differentiated pit cells dependent on urea chemotaxis. Nature Commun. 13 (1), 1-14 (2022).
- Llanos-Chea, A., et al. Bacteriophage therapy testing against Shigella flexneri in a novel human intestinal organoid-derived infection model. J Ped Gastroenterol Nutr. 68 (4), 509-516 (2019).
- Horsley, H., Dharmasena, D., Malone-Lee, J., Rohn, J. L. A urine-dependent human urothelial organoid offers a potential alternative to rodent models of infection. Sci Rep. 8 (1), 1238(2018).
Przedruki i uprawnienia
