Drosophila melanogaster służy jako potężny organizm modelowy w badaniach nad starzeniem. Niniejszy protokół szczegółowo opisuje kroki niezbędne do uzyskania powtarzalnego, populacyjnego pomiaru zarówno długości życia, jak i funkcjonalnego okresu zdrowia.
Artykuł metodologiczny
Półautomatyczna integracja analizy okresu zdrowia motorycznego i długości życia z wykorzystaniem potoku FlyTrDT u Drosophila melanogaster
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Starzenie się charakteryzuje się postępującym spadkiem sprawności funkcjonalnej oraz skróceniem długości życia; te dwa parametry są często oceniane niezależnie w badaniach eksperymentalnych. U Drosophila melanogaster do badania starzenia się i neurodegeneracji powszechnie stosuje się testy długości życia oraz pomiary motoryczne oparte na negatywnej geotaksji. Brakuje jednak ustandaryzowanych ram, które ilościowo integrowałyby wczesną sprawność motoryczną z długoterminowym przeżyciem. W niniejszej pracy opisujemy odtwarzalny, półautomatyczny proces, który łączy analizę długości życia z obiektywną kwantyfikacją okresu zdrowia motorycznego (motor healthspan) u starzejących się much.
Protokół integruje kontrolowane warunki hodowli muszek, ewidencję śmiertelności oraz analizy negatywnej geotaksji w oparciu o wideo przy użyciu zestandaryzowanych nagrań MP4 (minimalna rozdzielczość 1280 × 720, 30 klatek/s). Wydajność lokomocyjna jest kwantyfikowana przy użyciu autorskiego potoku przetwarzania opartego na języku Python, zaimplementowanego w wersji Python 3.12.1 z bibliotekami OpenCV 4.9.0, NumPy 1.26.4, Pandas 2.2.0 oraz Matplotlib 3.5.2. Przepływ pracy obejmuje klatka po klatce detekcję centroidu i wyodrębnianie aktywnego nachylenia wspinania (piksele/s) jako ciągłego wskaźnika funkcji motorycznych. Trajektorie przeżywalności są analizowane poprzez obliczanie frakcji przeżycia i przeprowadzanie trapezowej integracji numerycznej w celu uzyskania powierzchni pod krzywą (AUC) przeżywalności. Normalizacja wczesnej wydajności motorycznej umożliwia bezpośrednie porównanie między spadkiem funkcji a ogólną długością życia.
Przebieg pracy został oceniony poprzez porównanie półautomatycznych pomiarów nachylenia stoku wspinaczkowego z konwencjonalną manualną oceną punktową w grupie kontrolnej oraz u much wykazujących ekspresję amyloid-β; obie metody wykazały zależny od wieku spadek sprawności motorycznej. Reprezentatywne zestawy danych wykazały powtarzalne trajektorie długości życia w grupie kontrolnej Canton S oraz mierzalne wczesne upośledzenie motoryczne w modelu neurodegeneracyjnym. Metoda ta minimalizuje błąd obserwatora, zwiększa powtarzalność i pozostaje kompatybilna z niskokosztowymi systemami akwizycji wideo. Przebieg pracy można łatwo dostosować do modeli genetycznych, interwencji farmakologicznych i paradygmatów neurodegeneracyjnych, co zapewnia skalowalną platformę zintegrowanego fenotypowania procesów starzenia u Drosophila.
Wprowadzenie
Starzenie się charakteryzuje nie tylko skróceniem długości życia, ale także postępującym spadkiem funkcji fizjologicznych i behawioralnych1. W stanach neurodegeneracyjnych wczesne zaburzenia koordynacji ruchowej często występują przed znacznym wzrostem śmiertelności i odzwierciedlają podstawową dysfunkcję neuronalną2,3. Muszka owocówka Drosophila melanogaster stała się potężnym systemem modelowym do badania starzenia się i neurodegeneracji ze względu na krótki cykl życia, podatność na manipulacje genetyczne oraz dobrze opracowane testy behawioralne4. Analiza długości życia u Drosophila dostarcza rzetelnej miary przeżywalności organizmu, podczas gdy testy negatywnej geotaksji są powszechnie stosowane do oceny funkcji lokomocyjnych i zależnego od wieku spadku sprawności ruchowej5,6. Jednakże te dwa parametry są często analizowane niezależnie, co ogranicza możliwość ilościowego powiązania wczesnych upośledzeń funkcjonalnych z długoterminowymi trajektoriami przeżywalności. Zintegrowana analiza okresu zdrowia ruchowego (motor healthspan) oraz długości życia może dostarczyć wglądu w mechanizmy określające, czy interwencje wpływają na tempo starzenia się, progresję choroby czy konkretne układy fizjologiczne. Takie podejście jest szczególnie odpowiednie dla modeli genetycznych, farmakologicznych i neurodegeneracyjnych, w których wczesne deficyty lokomocyjne poprzedzają znaczną śmiertelność, co umożliwia czułe wykrywanie spadku sprawności funkcjonalnej przed pojawieniem się obserwowalnych różnic w przeżywalności.
Tradycyjne testy negatywnego geotaksji opierają się na ocenie punktów końcowych, takich jak proporcja much osiągających określoną wysokość w ustalonym przedziale czasowym. Choć jest to metoda prosta i niedroga, ręczna ocena może wprowadzać błąd obserwatora i pomijać subtelne różnice w kinetyce ruchu. Ciągłe pomiary oparte na analizie trajektorii mogą zwiększyć czułość wykrywania niewielkich zaburzeń lokomocyjnych w porównaniu do konwencjonalnych podejść opartych na punktach końcowych. Podobnie, testy długości życia wymagają rygorystycznego ewidencjonowania śmiertelności oraz standaryzacji środowiskowej w celu zapewnienia powtarzalności7. Istnieje zatem potrzeba opracowania dostępnych i powtarzalnych metod, które integrują wskaźniki funkcjonalnego okresu zdrowia z danymi o przeżywalności w obrębie tej samej kohorty.
Opisujemy tutaj półautomatyczny schemat pracy, który łączy standaryzowaną analizę długości życia z ilościową oceną sprawności motorycznej starzejących się muszek *Drosophila* w oparciu o analizę wideo. Wykorzystując otwartoźródłowe narzędzia obliczeniowe, przeprowadzono klatka po klatce detekcję centroidu w celu wyznaczenia nachylenia wspinaczki (piksele/s) jako ciągłego parametru funkcji motorycznej. Dane dotyczące przeżywalności przetworzono poprzez obliczenie ułamka przeżywalności oraz wykonanie trapezowej całkowania numerycznego w celu uzyskania powierzchni pod krzywą (AUC) przeżywalności. Dzięki normalizacji wczesnej sprawności motorycznej i zintegrowaniu jej z AUC przeżywalności, protokół ten umożliwia bezpośrednie porównanie między spadkiem sprawności funkcjonalnej a całkowitą długością życia. Podejście to zapewnia obiektywny i kosztowo efektywny model wiązania okresu zdrowia motorycznego z wynikami długości życia oraz umożliwia kompleksowe fenotypowanie trajektorii starzenia się u *Drosophila*.Rysunek 1).
Protokół
Wszystkie eksperymenty przeprowadzono z użyciem Drosophila melanogaster zgodnie z instytucjonalnymi wytycznymi laboratoryjnymi wytyczne. Zatwierdzenie etyczne nie było wymagane, ponieważ badanie objęło organizmy bezkręgowe. Wszystkie procedury przeprowadzono zgodnie z instytucjonalnymi wytycznymi dotyczącymi opieki nad zwierzętami w badaniach nad bezkręgowcami.
UWAGA: Pożywki eksperymentalne przechowywać w temperaturze 4 °C i zużyć w ciągu 1 tygodnia, pod warunkiem, że pozostaną suche. Standardowe warunki środowiskowe utrzymywać poprzez inkubację much w temperaturze 25 °C w cyklu światło–ciemność 12:12 h i przy względnej wilgotności powietrza około 60%.
1. Przygotowanie standardowej pożywki dla much
- Podstawowe przygotowanie pożywki
- Wymieszać 6 g mąki kukurydzianej, 5 g drożdży, 4 g D-glukozy, 3 g sacharozy, 1 g ekstraktu drożdżowego, 1 g agaru oraz 0,25 g ekstraktu słodowego w naczyniu zawierającym 100 mL wody destylowanej.
- Dokładnie wymieszać zawartość za pomocą szpatułki, aż do powstania jednorodnej zawiesiny.
- Podgrzewać mieszaninę do temperatury około 85–100 °C na kuchence indukcyjnej przez 12–15 min w przypadku przygotowywania objętości ≥500 mL lub przez 5–10 min w przypadku objętości od 100 do 400 mL. Podczas podgrzewania cały czas mieszać.
- Poddać podgrzaną mieszaninę autoklawowaniu zgodnie ze standardowymi procedurami sterylizacji laboratoryjnej.
- Pozostawić autoklawowaną pożywkę do ochłonięcia. Monitorować temperaturę za pomocą termometru, aż osiągnie ona 50–55 °C.
- Do schłodzonej pożywki dodać 600 µL kwasu propionowego oraz 100 mg kwasu benzoesowego w 1 mL 100% etanolu i dokładnie wymieszać.
- OSTRZEŻENIE: Kwas propionowy i etanol należy obsługiwać w dobrze wentylowanym pomieszczeniu, nosząc rękawice i okulary ochronne, ponieważ obie substancje chemiczne są lotne i mogą powodować podrażnienie w przypadku wdychania lub kontaktu ze skórą.
- Rozlać 5 mL pożywki do każdej sterylnej fiolki o długości 10 cm i średnicy 20 mm.
- Pozostawić fiolki niezakryte przez co najmniej 5–6 h w temperaturze pokojowej. Przykryć je ręcznikiem papierowym, aby zapobiec dostaniu się przypadkowych much. Ten etap służy zminimalizowaniu zmienności pomiarów długości życia wynikającej z różnic w przygotowaniu pożywki i warunkach przechowywania.
- Przygotowanie pożywki z lekiem
- Przygotować małą partię pożywki dla dorosłych osobników zgodnie z opisem w krokach 1.1.1–1.1.5.
- Pozostawić pożywkę do ochłonięcia do temperatury 50–55 °C.
- Przygotować roztwór zapasowy badanego związku o pożądanym stężeniu, używając odpowiedniego rozpuszczalnika, takiego jak woda destylowana lub dimetylosulfotlenek (DMSO). Rozpuścić badany związek w wybranym rozpuszczalniku w celu uzyskania stężonego roztworu zapasowego, a następnie dodać go do schłodzonej pożywki (50–55 °C), aby osiągnąć pożądane stężenie końcowe, zachowując identyczne stężenia rozpuszczalnika w grupach badawczych i kontrolnych.
- Dokładnie wymieszać, aby zapewnić jednorodne rozłożenie.
- Rozlać 2 mL pożywki zawierającej lek do każdej fiolki eksperymentalnej, nakładając ją warstwą na powierzchnię wcześniej zastygłej pożywki podstawowej.
- Przygotować fiolki kontrolne, dodając równą objętość samego rozpuszczalnika (np. wody destylowanej lub DMSO w tym samym stężeniu końcowym, co w grupach badawczych) do pożywki nakładanej na pożywkę podstawową.
- Pozostawić nałożoną warstwę pożywki do całkowitego zastygnięcia w temperaturze pokojowej przed wprowadzeniem much.
UWAGA: Obsługa i przechowywanie pożywki: Jeśli pożywka jest przygotowywana wieczorem, pozostawić fiolki przykryte ręcznikiem papierowym przez noc w temperaturze pokojowej i włożyć korki watiane następnego ranka. Zawsze myć, dekontaminować i autoklawować fiolki przed użyciem. Watę w rolkach autoklawować osobno przed formowaniem korków. Korki watiane wkładać dopiero po całkowitym zastygnięciu pożywki przez co najmniej 5–6 h.
2. Generowanie D. melanogaster wykazujących ekspresję amyloidu-β
- Kolekcjonowanie i walidacja dziewiczych samic linii driver
- Przed kolekcjonowaniem dziewic utrzymuj linię much driver w temperaturze 25 °C w cyklu światło-ciemność 12 h:12 h.
- Zbieraj nowo wyklute samice z linii driver dwa razy dziennie, raz rano i raz późnym popołudniem, stosując krótkotrwałą anestezję dwutlenkiem węgla.
- Bezpośrednio po zebraniu przenieś samice do świeżych fiolek dla jednej płci, aby zapobiec kopulacji.
- Inkubuj fiolki w temperaturze 25 °C przez kolejne 48 h w celu walidacji statusu dziewic.
- Codziennie sprawdzaj fiolki pod kątem obecności larw.
- Potwierdź status dziewic poprzez weryfikację braku jaj lub potomstwa larwalnego.
- Do krzyżówek genetycznych wykorzystuj wyłącznie samice, które nie wykazują oznak produkcji larw.
- Przygotowanie krzyżówek genetycznych
- W dniu przygotowania krzyżówek zbierz nowo wyklute dorosłe samce UAS-APPE693G, stosując krótkotrwałą anestezję dwutlenkiem węgla.
- Przygotuj krzyżówki, umieszczając 20 dziewiczych samic elav-GAL4 oraz 10 samców UAS-APPE693G w świeżej fiolce z pożywką.
- Inkubuj fiolki z krzyżówkami w temperaturze 25 °C przy kontrolowanej wilgotności i cyklu światło-ciemność 12 h:12 h.
- Pozostaw muchy na 48 h w celu kopulacji i zniesienia jaj.
- Jeśli wymagane jest uzyskanie dodatkowego potomstwa, przenieś dorosłe osobniki do świeżych fiolek.
- Po zniesieniu jaj usuń muchy rodzicielskie, aby zapobiec przeludnieniu i nakładaniu się pokoleń.
- Pozostaw potomstwo do rozwoju w stadium dorosłym w standardowych warunkach aż do wyklucia.
- Do późniejszych eksperymentów nad długością życia i okresem zdrowia wykorzystaj dorosłe muchy F1 wykazujące ekspresję amyloid-β w neuronach.
UWAGA: Driver elav-GAL4 umożliwia pan-neuronalną ekspresję ludzkiego białka prekursorowego amyloidu z mutacją Arctic E693G. Ekspresja zachodzi przez cały okres rozwoju i w stadium dorosłym w standardowych warunkach hodowli. W eksperymentach nad starzeniem stosuj jednolitytne tła genetyczne i odpowiednie kontrole. Utrzymuj stałe warunki temperatury w obrębie każdego
eksperymentu. W trakcie rozwoju można stosować niższe temperatury inkubacji, takie jak 18 °C, aby
opóźnić patologię związaną z transgenem przed osiągnięciem stadium dorosłego.
3. Zbiór much
- Zbiór much do testu negatywnej geotaksji
- Przed rozpoczęciem eksperymentu wszystkie linie much należy utrzymywać na standardowej pożywce w temperaturze 25 °C, przy wilgotności względnej około 60% i cyklu światło-ciemność 12 h:12 h.
- W ciągu 2–3 dni zebrać nowo wyklute dorosłe muchy samce, stosując krótkotrwałą anestezyję dwutlenkiem węgla.
- Przenieść samce do fiolek z pożywką zawierającą lek lub do fiolek z pożywką kontrolną, zależnie od warunków eksperymentalnych.
- Wymieniać pożywkę co 3 dni lub wcześniej, jeśli jej jakość ulegnie pogorszeniu.
- Utrzymywać muchy w tych warunkach do osiągnięcia wieku wyznaczonego do oceny negatywnej geotaksji.
UWAGA: Do testu negatywnej geotaksji wykorzystuje się wyłącznie muchy samce, aby uniknąć zmienności wynikającej z różnic płciowych w sprawności lokomocyjnej i procesach starzenia.
- Zbiór much do testu długości życia
- Krótkotrwale znieczulić małe grupy much na podkładce do anestezyjnej.
- Wyodrębnić samce za pomocą miękkiego pędzla.
- Zminimalizować ekspozycję na dwutlenek węgla podczas sortowania, aby zapobiec długotrwałym efektom fizjologicznym, które mogłyby zakłócić pomiary długości życia.
- Zależnie od planu eksperymentalnego, do każdej nowej fiolki z pożywką umieścić 10 samców i 10 samic w stosunku płci 1:1.
- Sortowanie i rozdzielanie partii zakończyć w ciągu 3–4 min na każdą grupę.
- Upewnić się, że całkowity czas anestezyjnej ekspozycji nie przekracza 9–10 min.
- OSTRZEŻENIE: Anestezyję dwutlenkiem węgla należy przeprowadzać przy użyciu odpowiednich regulatorów i zapewnić właściwą wentylację laboratorium, aby zminimalizować ekspozycję operatora i zapobiec przedłużonemu stresowi fizjologicznemu indukowanemu anestezyją u much.
- Powtarzać kroki 3.2.1–3.2.6 do momentu przygotowania 4–6 fiolek powtórzeń dla każdego warunku eksperymentalnego.
4. Eksperyment dotyczący długowieczności
- Transfer i utrzymanie much
- Utrzymywać muchy w standardowych warunkach.
- Przenosić muchy do fiolek ze świeżą pożywką w regularnych odstępach czasu, aby zapobiec przeludnieniu, kontaminacji larwami oraz degradacji pożywki.
- Przenosić muchy na świeżą pożywkę co 3 dni.
- Stosować taką częstotliwość transferów, aby zminimalizować zakłócenia warunków żywieniowych poprzez zapobieganie wzrostowi larw w fiolce.
- Wszystkie transfery przeprowadzać bez znieczulenia.
UWAGA: Unikać znieczulenia podczas eksperymentów nad długością życia, ponieważ może ono indukować gwałtowną śmiertelność, szczególnie u starych much.
- Ocena śmiertelności podczas transferów
- Podczas każdego transferu odnotować wiek kohorty w dniach.
- Dokładnie obejrzeć starą fiolkę.
- Policzyć i zapisać liczbę martwych much pozostałych w starej fiolce.
- Policzyć i zapisać liczbę martwych much przeniesionych do nowej fiolki.
- Wartości te zapisywać osobno, aby uniknąć wielokrotnego liczenia.
- Obliczyć całkowitą liczbę zgonów dla każdego transferu, korzystając z następującego równania:
Całkowita liczba zgonów = martwe muchy w starej fiolce + martwe muchy przeniesione do nowej fiolki. - Wyznaczyć liczbę nowych zgonów od poprzedniego transferu, odejmując liczbę much odnotowanych jako „przeniesione” w poprzednim transferze od całkowitej liczby zgonów w bieżącym transferze.
- Stosować to obliczenie, aby upewnić się, że muchy przenoszone między fiolkami nie są liczone wielokrotnie.
- Identyfikacja much żywych, lecz nieaktywnych
- Gdy stare muchy wydają się nieruchome lub leżą na grzbietach, delikatnie opukać ściankę fiolki przed uznaniem muchy za martwą.
- Obserwować, czy występuje jakikolwiek ruch.
- Muchy wykazujące ruch po stymulacji uznać za żywe.
- Nie zapisywać much wykazujących ruch po stymulacji jako martwe.
- Delikatnie opukać fiolkę, aby odkleić żywe muchy przylegające do powierzchni pożywki w starej fiolce.
- Przenieść odklejone żywe muchy do nowej fiolki.
- Nie uznawać odklejonych żywych much za martwe.
UWAGA: Dokładne rozróżnienie między muchami martwymi a nieaktywnymi jest krytyczne w późnych stadiach życia. Przed przypisaniem statusu zgonu należy zawsze stosować delikatną stymulację mechaniczną.
- Kryteria cenzurowania
- Muchę uznać za cenzurowaną prawostronnie, jeśli opuści ona eksperyment przed śmiercią naturalną z powodu ucieczki z fiolki, przypadkowego urazu lub problemów podczas manipulacji.
- Zapisywać cenzurowane muchy w oddzielnej kolumnie w dniu opuszczenia eksperymentu przez muchę.
- Nie zapisywać cenzurowanych much jako martwe.
- Wykluczyć cenzurowane muchy z obliczeń śmiertelności w analizie przeżywalności.
- Stosować cenzurowanie ostrożnie, ponieważ nadmierne cenzurowanie może wprowadzić błąd eksperymentalny.
UWAGA: Rozdzielenie much „martwych” i „przeniesionych” podczas wprowadzania danych zapobiega zawyżeniu liczby zgonów i zapewnia poprawną rekonstrukcję krzywej przeżywalności.
- Kontynuacja badania
- Powtarzać kroki 4.1–4.4 przez cały czas trwania eksperymentu.
- Kontynuować badanie aż do śmierci ostatniej przeżywającej muchy.
5. Eksperyment z geotaksją ujemną
- Przygotowanie much
- Zebrać muchy z eksperymentalnych fiolek z pożywką bez użycia anestezji CO₂.
- Ostrożnie przenieść muchy do czystej probówki do wspinania, czyli probówki do testów negatywnej geotaksji, używając małego lejka, aby zapobiec ich ucieczce.
- Pozostawić muchy w komorze testowej na 5 min w celu aklimatyzacji przed rozpoczęciem testu.
- Wszystkie testy wspinania przeprowadzać o tej samej porze dnia, np. po południu, aby zminimalizować zmienność okołodobową.
UWAGA: Należy unikać bezpośredniego światła słonecznego podczas testów, ponieważ natężenie światła może zmienić zachowanie lokomotoryczne.
- Przygotowanie probówki do wspinania
- Użyć przezroczystej cylindrycznej probówki do wspinania o wysokości 12 cm i średnicy 2 cm.
- Zaznaczyć poziomą linię 10 cm od podstawy probówki.
- Ustawić probówkę pionowo na jednolitym białym tle, aby ułatwić śledzenie wideo.
- Zamocować smartfon lub aparat cyfrowy na stabilnym statywie.
- Upewnić się, że cała probówka znajduje się w kadrze.
- Procedura testu
- Trzy razy mocno uderzyć probówką o podkładkę z pianki lub podkładkę pod mysz umieszczoną na twardej powierzchni, tak aby wszystkie muchy jednocześnie opadły na dno.
- Natychmiast rozpocząć nagrywanie wideo przez 10–12 s przy prędkości około 30 klatek/s.
- Pozwolić muchom swobodnie wspinać się przez 10 s.
- Przeprowadzić co najmniej trzy niezależne próby dla każdej fiolki.
- Zachować 10 min przerwy między próbami.
- Przeprowadzić test dla każdego stanu eksperymentalnego, np. dla grupy kontrolnej, grupy leczonej lekiem i grupy kontrolnej z rozpuszczalnikiem.
- Policzyć liczbę much, które dotarły do linii 10 cm lub ją przekroczyły w ciągu 10 s.
- Zapisać E jako liczbę much, które dotarły do 10 cm.
- Zapisać T jako całkowitą liczbę przetestowanych żywych much.
- Obliczyć procent aktywności wspinania jako (E/T) × 100.
- Wyciągnąć średnią z wartości z trzech prób.
- Przedstawić wyniki jako średnia ± SD.
- Półautomatyczna analiza wspinania przy użyciu skryptu Python
- Pozyskiwanie obrazu wideo
- Nagrywać testy negatywnej geotaksji za pomocą kamery smartfona ustawionej prostopadle do przezroczystej probówki do wspinania o wysokości 12 cm i średnicy 2 cm. Nagrywać filmy za pomocą smartfona lub aparatu cyfrowego przy prędkości około 30 klatek/s i minimalnej rozdzielczości 1280 × 720 pikseli. Ustawić kamerę w stałej odległości około 15–20 cm od probówki i zachować tę samą geometrię pozyskiwania danych we wszystkich nagraniach. Wykorzystać znaną wysokość probówki (12 cm) jako wewnętrzny punkt odniesienia kalibracji przestrzennej dla pomiarów opartych na pikselach.
- Umieścić probówkę na jednolitym białym tle.
- Nagrywać filmy przez 10–12 s.
- Zachować stałe warunki oświetlenia we wszystkich nagraniach.
- Zachować stałą odległość kamery we wszystkich nagraniach.
- Zachować stałe ustawienie probówki we wszystkich nagraniach.
- Zminimalizować zmienność w detekcji centroidu.
- Zapisywać nagrane filmy w formacie .mp4.
- Przenieść nagrane filmy na komputer stacjonarny w celu analizy.
- Przetwarzanie wideo w języku Python
- Analizować filmy za pomocą niestandardowego wewnętrznego skryptu Python dostarczonego jako Supplementary File 1. Przeprowadzać wszystkie analizy przy użyciu Pythona 3.12.1 z OpenCV (cv2) wersja 4.9.0, NumPy wersja 1.26.4, Pandas wersja 2.2.0, Matplotlib wersja 3.5.2 i Scikit-learn wersja 1.4.2.
- Określić ścieżkę wejściową wideo i katalog wyjściowy w Supplementary File 1 przed uruchomieniem skryptu z poziomu środowiska Python lub interfejsu wiersza poleceń.
- Uruchomić skrypt poleceniem python climbing_analysis.py po zedytowaniu zmiennych VIDEO_PATH i OUTPUT_CSV.
- Użyć OpenCV, lub cv2, do przetwarzania klatek i detekcji obiektów.
- Użyć NumPy do obliczeń numerycznych.
- Użyć Pandas do eksportu danych.
- Użyć Matplotlib do wizualizacji.
- Przetwarzać każdą klatkę wideo sekwencyjnie.
- Odczytać wideo za pomocą funkcji VideoCapture z biblioteki OpenCV.
- Przetwarzać poszczególne klatki jedna po drugiej.
- Konwertować klatki na skalę szarości.
- Zastosować rozmycie gaussowskie w celu redukcji szumów tła.
- Zastosować progowanie metodą Otsu w trybie odwrotnego binarnego, aby odseparować muchy od tła.
- Wykonać operacje morfologicznego otwarcia i zamknięcia w celu usunięcia małych artefaktów i wypełnienia luk w konturach.
- Zidentyfikować kontury przekraczające minimalny próg powierzchni konturu wynoszący 60 pikseli2, aby wykluczyć artefakty tła i małe cząsteczki szumu.
- Obliczyć momenty przestrzenne dla każdego prawidłowego konturu.
- Wyznaczyć współrzędne centroidu, x i y, dla każdego prawidłowego konturu.
- Wyciągnąć średnią z współrzędnych centroidu, gdy w jednej klatce wykryto wiele much.
- Uzyskać jedną średnią pozycję kohorty na klatkę.
- Analizować filmy za pomocą niestandardowego wewnętrznego skryptu Python dostarczonego jako Supplementary File 1. Przeprowadzać wszystkie analizy przy użyciu Pythona 3.12.1 z OpenCV (cv2) wersja 4.9.0, NumPy wersja 1.26.4, Pandas wersja 2.2.0, Matplotlib wersja 3.5.2 i Scikit-learn wersja 1.4.2.
- Ocena kontroli jakości
- Zweryfikować poprawność segmentacji much, potwierdzając, że wykryte kontury odpowiadają widocznym muchom przez cały czas trwania nagrania.
- Zapewnić odpowiedni kontrast między muchami a tłem, stosując jednolity biały kolor tła i stabilne warunki oświetlenia.
- Wykluczyć filmy zawierające nadmierne odblaski, cienie, ruch probówki, silne nakładanie się much lub niepełną widoczność probówki.
- Uznać filmy za nieprzydatne do analizy, jeśli śledzenie centroidu zawodzi przez znaczną część nagrania lub gdy progowanie powoduje trwałe artefakty tła.
- Ekstrakcja wskaźników wspinania
- Obliczyć wynik wspinania ręcznie, zgodnie z opisem w kroku 5.3.7.
- Obliczyć wysokość wspinania w pikselach jako różnicę między początkową a końcową pionową pozycją centroidu.
- Obliczyć średnią prędkość w pikselach/s jako całkowitą długość trajektorii podzieloną przez czas trwania nagrania.
- Obliczyć prędkość szczytową w pikselach/s jako maksymalne chwilowe przemieszczenie między kolejnymi klatkami.
- Obliczyć długość trajektorii w pikselach jako skumulowaną odległość przebytą pomiędzy klatkami.
- Obliczyć pole trajektorii w pikselach2 jako pole wypukłej otoczki obejmującej wszystkie pozycje centroidu.
- Obliczyć liczbę skrętów jako liczbę zmian kierunku poziomego.
- Obliczyć liczbę zatrzymań jako liczbę klatek, w których przemieszczenie centroidu pozostaje poniżej progu odległości zatrzymania wynoszącego 3 piksele między kolejnymi klatkami.
- Wykreślić pozycję pionową jako funkcję czasu, aby uzyskać obiektywną miarę aktywnego wspinania.
- Obliczyć nachylenie wspinania w pikselach na sekundę, stosując ruchome okno regresji liniowej o długości 1 sekundy podczas fazy aktywnego wspinania w nagraniu.
- Użyć wartości nachylenia jako głównego wskaźnika sprawności motorycznej do integracji z analizą przeżywalności.
- Wyeksportować ilościowe wskaźniki lokomotoryczne, w tym wysokość wspinania, średnią prędkość, prędkość szczytową, długość trajektorii, pole trajektorii, liczbę skrętów, liczbę zatrzymań i nachylenie wspinania, do plików .csv. Zapisywać wykresy wizualizacji nachylenia jako pliki obrazów .png w celu weryfikacji jakości i dalszej analizy.
- Pozyskiwanie obrazu wideo
6. Integracja wczesnej analizy zdrowia motorycznego i przeżywalności
- Wyeksportuj dane dotyczące przeżywalności do pliku .csv zawierającego kolumny dla grupy, dnia oraz liczby żywych much.
- Oblicz ułamek przeżywalności dla każdej grupy w każdym punkcie czasowym, dzieląc liczbę żywych much przez początkową wielkość kohorty.
- Oblicz pole pod krzywą przeżywalności, czyli AUC, stosując trapezową integrację numeryczną ułamka przeżywalności w funkcji czasu.
- Wyeksportuj dane dotyczące sprawności motorycznej do pliku .csv zawierającego nachylenie krzywej wspinania (climbing slope) w 7. dniu dla każdej grupy.
- Znormalizuj sprawność motoryczną w 7. dniu względem grupy kontrolnej, Canton S, dzieląc wartość nachylenia w 7. dniu dla każdej grupy przez odpowiadające jej nachylenie grupy kontrolnej.
- Połącz znormalizowane wartości motoryczne z 7. dnia z odpowiadającymi im wartościami AUC przeżywalności dla każdego genotypu.
- Przeprowadź porównanie opisowe znormalizowanej sprawności motorycznej w 7. dniu oraz AUC przeżywalności w celu oceny związku między wczesnym spadkiem sprawności motorycznej a wynikami przeżywalności.
- Wygeneruj wizualizację graficzną znormalizowanych wartości sprawności motorycznej z 7. dnia oraz wartości AUC przeżywalności (Supplementary File 2).
UWAGA: Wszystkie analizy integracji przeżywalności i motoryki wykonaj za pomocą dostarczonego skryptu Python w Supplementary File 2. Wykorzystaj bibliotekę Pandas do obsługi danych i łączenia zbiorów danych, NumPy do trapezowej integracji numerycznej oraz Matplotlib do wizualizacji graficznej.
7. Analiza statystyczna
- Przedstaw pomiary aktywności lokomotorycznej i przeżywalności jako reprezentatywne zestawy danych uzyskane z probówek będących replikami biologicznymi.
- Raportuj pomiary aktywności lokomotorycznej jako wartości średnie obliczone z niezależnych prób wspinania.
- Wykorzystaj wizualizację graficzną nachylenia wspinania (pixels/s) oraz wartości AUC dla przeżywalności, aby wykazać reprezentatywne zależności pomiędzy sprawnością motoryczną a wynikami przeżywalności.
Wyniki
Powtarzalne profile długości życia w ustandaryzowanych warunkach hodowli
Gdy muchy utrzymywano w kontrolowanych warunkach środowiskowych (25 °C, 60% wilgotności, 12 h:12 h cykl światło–ciemność) przy użyciu świeżo przygotowanej ustandaryzowanej pożywki, kohorty kontrolne wykazywały spójne trajektorie przeżywalności w niezależnych eksperymentach. Muchy kontrolne szczepu Canton S wykazały medianę długości życia wynoszącą około 65–72 dni, przy czym maksymalna przeżywalność sięgała 75 dni (Rycina 2). Eksperymenty dotyczące długości życia przeprowadzono z 2 powtórzeniami biologicznymi na warunek, z których każde zawierało 20 much. Reprezentatywne trajektorie przeżywalności uzyskane w ustandaryzowanych warunkach środowiskowych i żywieniowych wykazały powtarzalne profile długości życia w kohortach kontrolnych.
Z kolei muchy z panneuronalną ekspresją amyloidu-β wykazywały obniżoną przeżywalność w porównaniu z kontrolą Canton S, co jest zgodne z wcześniej opisanymi fenotypami neurodegeneracyjnymi w modelach choroby Alzheimera u Drosophila4,5,6.
Nieoptymalne wyniki dotyczące długości życia mogą wystąpić w przypadku pogorszenia jakości pożywki lub niespójnych warunków hodowli. W takich warunkach odnotowano gwałtowny wzrost śmiertelności w ciągu pierwszych 7–10 dni oraz zwiększoną zmienność między fiolkami (>25%), co wskazuje na zaburzoną powtarzalność eksperymentu i zmniejszoną spójność między powtórzeniami biologicznymi.
Wiekowo zależny spadek sprawności motorycznej wykryty za pomocą półautomatycznej analizy wspinania
Konwencjonalna ręczna ocena negatywnego geotaksji wykazała wiekowo zależny spadek sprawności lokomocyjnej u much wykazujących ekspresję amyloid-β w porównaniu z grupą kontrolną Canton S (Rycina 3). W 7. dniu wydajność wspinania pozostała w dużej mierze porównywalna między grupami, natomiast w 28. dniu muchy wykazujące ekspresję amyloid-β wykazywały obniżoną aktywność wspinania w stosunku do much kontrolnych. Kohorty kontrolne utrzymywały stosunkowo stabilną wydajność wspinania w różnych punktach czasowych procesu starzenia. Te oceniane ręcznie trendy behawioralne odpowiadały spadkom wartości nachylenia krzywej wspinania w półautomatycznym potoku FlyTrDT, wykazując trendy wiekowo zależne podobne do tych uzyskanych w konwencjonalnej ocenie punktu końcowego oraz w obliczeniowym procesie śledzenia (Rycina 4). Zaobserwowany spadek sprawności lokomocyjnej u much wykazujących ekspresję amyloid-β jest zgodny z uznanymi, wiekowo zależnymi zaburzeniami behawioralnymi zgłaszanymi w modelach neurodegeneracji Drosophila z zastosowaniem konwencjonalnych testów negatywnej geotaksji6,7.
Półautomatyczna analiza zdolności wspinania z wykorzystaniem FlyTrDT wykazała zachowane wczesne funkcje motoryczne u much kontrolnych. W 7. dniu muchy kontrolne wykazywały średni nachylenie wspinania wynoszące 86,64 pixels/s, co odzwierciedlało utrzymane przemieszczanie się w górę podczas aktywnej fazy wspinania (Rysunek 4). Do 28. dnia nachylenie to zbliżyło się do zera (−1,50 pixels/s), co jest zgodne ze spowolnieniem związanym z wiekiem.
W przeciwieństwie do nich, muchy wykazujące ekspresję amyloid-β wykazywały wczesne zaburzenia motoryczne. W 7. dniu nachylenie wspinania zmniejszyło się do 34,25 pixels/s, co po normalizacji stanowiło około 39% wyników grupy kontrolnej. Do 28. dnia nachylenie wspinania znacznie spadło do −72,25 pixels/s, co wskazuje na upośledzenie sprawności lokomocyjnej w kierunku wznoszącym.
Metryka oparta na nachyleniu linii rejestruje aktywny odcinek wspinania i ogranicza wpływ początkowej latencji reakcji przestrachu, faz plateau oraz stochastycznych artefaktów ruchowych. Dodatnie nachylenia wskazują na wypadkową lokomocję w górę, nachylenia bliskie zeru oznaczają ograniczone przemieszczenie pionowe, a nachylenia ujemne wskazują na wypadkowe przemieszczenie w dół. Te reprezentatywne trajektorie ilustrują postępujący spadek sprawności motorycznej u much wykazujących ekspresję amyloid-β w porównaniu z grupą kontrolną w tym samym wieku.
W optymalnych warunkach rejestracji potok przetwarzania FlyTrDT generował ciągłe trajektorie centroidów ze stabilną segmentacją konturów i spójnymi profilami przemieszczenia w pionie (Rysunek 4A). Obniżona sprawność lokomocyjna u much wykazujących ekspresję amyloidu-β przejawiała się mniej trwałymi trajektoriami wznoszącymi i niższymi wartościami nachylenia (Rysunek 4B–D). Nagrania wideo z nadmiernymi odblaskami, niestabilnym ustawieniem probówki, niespójnym oświetleniem lub niewystarczającym kontrastem tła powodowały przerywane trajektorie centroidów oraz sporadyczne artefakty śledzenia i zostały wykluczone podczas oceny kontroli jakości.
Związek między wczesną sprawnością ruchową a przeżywalnością
Aby zbadać związki między wczesną sprawnością ruchową a przeżywalnością, znormalizowane wartości nachylenia krzywej wspinania w dniu 7. porównano z AUC (polem pod krzywą) przeżywalności dla różnych genotypów (Rycina 5). Muchy kontrolne z zachowaną wczesną sprawnością ruchową (znormalizowany indeks ruchowy = 1,0) wykazywały wyższe wartości AUC przeżywalności (48,2), natomiast muchy eksprimujące amyloid-β o obniżonej wczesnej sprawności ruchowej (znormalizowany indeks ruchowy = 0,395) wykazywały niższe wartości AUC przeżywalności (24,65). Reprezentatywne zestawy danych lokomocyjnych wygenerowano z 2 fiolek będących powtórzeniami biologicznymi dla każdego stanu. Te reprezentatywne zestawy danych sugerują istnienie związku między obniżoną wczesną sprawnością ruchową a skróconym czasem przeżycia w modelu choroby amyloid-β. Ponieważ przeanalizowano tylko dwa reprezentatywne genotypy, wyniki te przedstawiono opisowo, a nie jako korelację prognostyczną o mocy statystycznej.
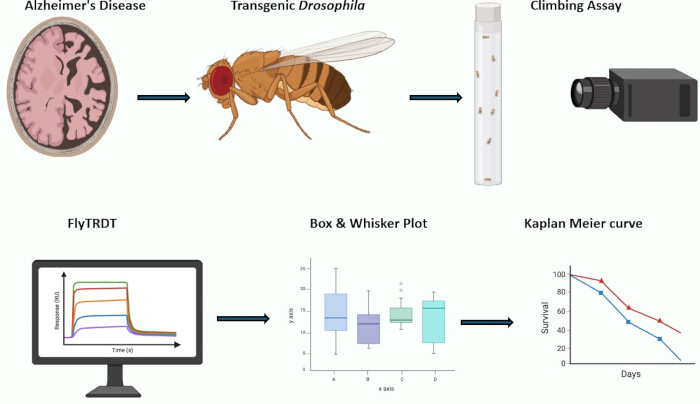
Rycina 1: Przegląd schematu działania półautomatycznego potoku FlyTrDT integrującego wskaźniki zdrowia lokomotorycznego z analizą przeżywalności. Schemat obejmuje standaryzowany chów much i analizę długości życia, manualną i półautomatyczną ocenę negatywnej geotaksji, klatkową ekstrakcję centroidów z filmów z wspinania, obliczanie nachylenia wspinania (pixels/s), analizę pola pod krzywą (AUC) przeżywalności oraz integrację sprawności motorycznej z wynikami przeżywalności. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
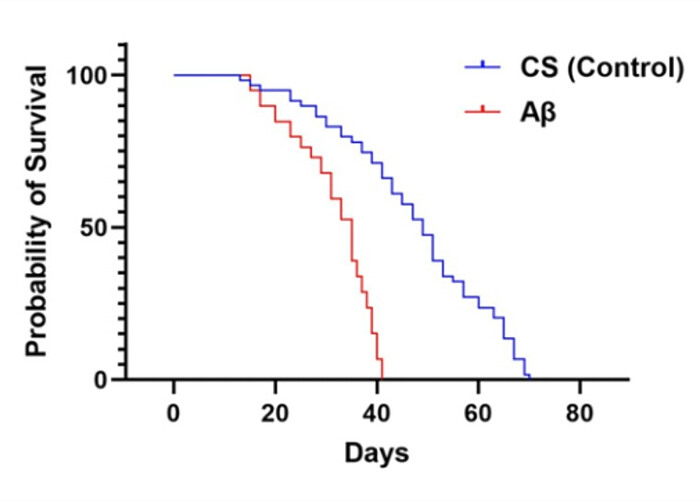
Rysunek 2: Analiza przeżywalności metodą Kaplana–Meiera dla grupy kontrolnej Canton S oraz much wykazujących ekspresję amyloid-β. Krzywe przeżywalności przedstawiają trajektorie długości życia w ustandaryzowanych warunkach środowiskowych i dietetycznych. Muchy kontrolne Canton S wykazywały przedłużoną przeżywalność w porównaniu z muchami wykazującymi pan-neuronalną ekspresję amyloid-β, u których odnotowano skrócenie długości życia w punktach czasowych starzenia. Dane reprezentują reprezentatywne trajektorie przeżywalności uzyskane z 2 biologicznych powtórzeń (probówek) na warunek. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
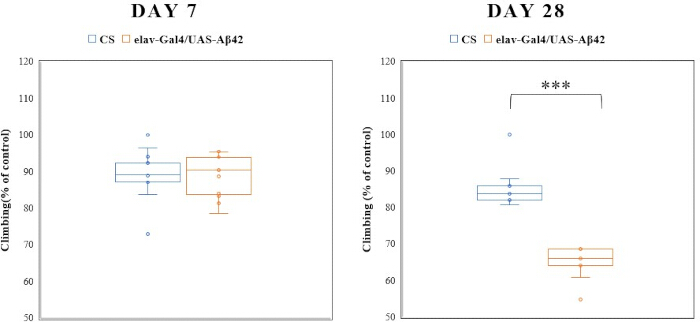
Rycina 3: Wydajność manualnej negatywnej geotaksji u much kontrolnych oraz much wykazujących ekspresję amyloid-β w 7. i 28. dniu. Wykresy pudełkowe przedstawiają reprezentatywne pomiary aktywności wspinania wyrażone jako procent much przekraczających próg 10 cm w ciągu 10 s. Muchy kontrolne Canton S (CS) utrzymywały stosunkowo stabilną aktywność wspinania w różnych punktach czasowych starzenia, podczas gdy muchy wykazujące ekspresję amyloid-β wykazały obniżoną wydajność wspinania do 28. dnia. Każdy punkt reprezentuje pomiar z pojedynczej fiolki. Reprezentatywne zestawy danych zostały wygenerowane z 2 biologicznych powtórzeń (fiolek) na warunek. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
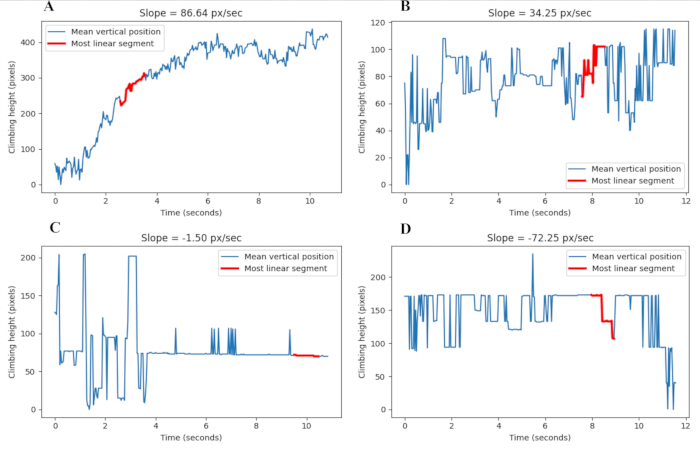
Rysunek 4: Półautomatyczna ekstrakcja trajektorii wspinania i aktywnego nachylenia wspinania u much kontrolnych oraz much wykazujących ekspresję amyloid-β. Reprezentatywne średnie trajektorie pozycji pionowej zostały wyekstrahowane z filmów z testu negatywnej geotaksji przy użyciu potoku śledzenia FlyTrDT. Niebieskie linie reprezentują średnią klatka po klatce pozycję pionowego centroidu wykrytych much w czasie, a czerwone segmenty wskazują reprezentatywny aktywny segment wspinania zidentyfikowany za pomocą przesuwnego okna regresji liniowej. Wartości nachylenia wyrażono w pixels/s. (A) Muchy kontrolne Canton S w 7. dniu. (B) Muchy wykazujące ekspresję amyloid-β w 7. dniu. (C) Muchy kontrolne Canton S w 28. dniu. (D) Muchy wykazujące ekspresję amyloid-β w 28. dniu. Reprezentatywne trajektorie zostały wygenerowane z 2 biologicznych powtórzeń w fiolkach dla każdego stanu. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
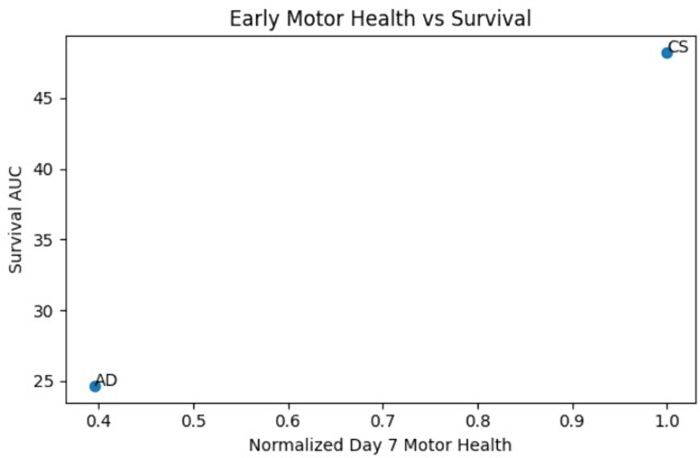
Rysunek 5: Związek między wczesną sprawnością ruchową a przeżywalnością w modelu toksyczności amyloid-β u Drosophila. Znormalizowane wartości nachylenia krzywej wspinania w 7. dniu naniesiono na wykres w zależności od pola pod krzywą (AUC) przeżywalności dla much kontrolnych Canton S (CS) oraz much wykazujących ekspresję amyloid-β (AD) (n = 2). Muchy kontrolne wykazały wyższą wczesną sprawność ruchową oraz zwiększone wartości AUC przeżywalności w porównaniu do much wykazujących ekspresję amyloid-β. Te reprezentatywne zestawy danych ilustrują związek między wczesną sprawnością lokomocyjną a przeżywalnością. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Plik uzupełniający 1: Skrypt do analizy wspinania FlyTrDT oparty na języku Python, wykorzystywany do półautomatycznej kwantyfikacji lokomocji z filmów przedstawiających negatywną geotaksję. Skrypt wykonuje klatka po klatce przetwarzanie obrazu, detekcję centroidu, ekstrakcję trajektorii oraz obliczanie wskaźników wspinania, w tym nachylenia wspinania, prędkości, długości trajektorii, powierzchni trajektorii, liczby zatrzymań i liczby zwrotów.Kliknij tutaj, aby pobrać ten plik.
Plik uzupełniający 2: Skrypt Python do integracji danych dotyczących okresu sprawności motorycznej i długości życia. Skrypt wykonuje obliczenia frakcji przeżywalności, analizę pola pod krzywą (AUC) metodą trapezów, normalizację wartości nachylenia wspinania w 7. dniu, łączenie zbiorów danych oraz wizualizację graficzną wydajności motorycznej i wyników przeżywalności.Kliknij tutaj, aby pobrać ten plik.
Dyskusja
Przedstawiamy protokół integrujący analizę długości życia z półautomatyczną kwantyfikacją sprawności motorycznej (healthspan) u Drosophila melanogaster. Niezawodna integracja pomiarów długości życia i aktywności lokomocyjnej zależy w znacznym stopniu od spójności warunków środowiskowych, jakości pożywki oraz ustandaryzowanych procedur obchodzenia się z powtórzeniami biologicznymi7. Zmienność w stopniu wysuszenia pożywki, opóźnienia w przenoszeniu osobników lub niespójna ewidencja śmiertelności mogą powodować wystąpienie wczesnych pików śmiertelności oraz zwiększoną zmienność między fiolkami, co wpływa na rekonstrukcję krzywych przeżycia i późniejszą interpretację fenotypów starzenia.
Podczas testu negatywnej geotaksji wymagane jest zapewnienie spójnych warunków oświetlenia, odpowiedniego ustawienia kamery oraz wyrównania probówek, aby zagwarantować niezawodną detekcję centroidu podczas przetwarzania wideo. Należy zminimalizować nadmierną ekspozycję na CO₂ podczas sortowania, ponieważ znieczulenie może wpływać zarówno na długość życia, jak i sprawność lokomocyjną. W przypadku przeprowadzania powtarzalnych pomiarów behawioralnych w tej samej kohorcie, testy powinny być wykonywane o tej samej porze dnia, aby zredukować zmienność okołodobową. Niedostateczny kontrast tła lub niespójne oświetlenie mogą upośledzić proces progowania i detekcji konturów podczas analizy automatycznej. Jeśli podczas przetwarzania wideo zaobserwowane zostanie fragmentowanie konturów lub niestabilne trajektorie centroidu, należy poprawić kontrast tła, zredukować odblaski, ustabilizować położenie kamery oraz zapewnić jednolite oświetlenie we wszystkich nagraniach. Trwałe artefakty progowania można zminimalizować poprzez zmianę kąta nagrywania, redukcję cieni lub zapewnienie, aby cała probówka do wspinaczki pozostawała stale widoczna w kadrze. Nadmierne gromadzenie się much w probówce może utrudniać dokładną estymację centroidu i powinno być ograniczane poprzez utrzymywanie spójnej liczebności kohort we wszystkich eksperymentach.
Tradycyjne testy negatywnej geotaksji zazwyczaj kwantyfikują odsetek much osiągających zdefiniowaną wysokość w określonym odstępie czasu i są powszechnie stosowane do oceny pogorszenia funkcji lokomocyjnych podczas starzenia się oraz neurodegeneracji5,6. W przeciwieństwie do nich, niniejszy półautomatyczny schemat pracy wyodrębnia aktywną fazę wspinania się w górę i oblicza aktywny nachylenie wspinania (pixels/s) na podstawie trajektorii centroidów w poszczególnych klatkach. Ponieważ pozycje centroidów są uśredniane dla wszystkich wykrytych much w każdej klatce, poszczególne trajektorie lokomocyjne oraz heterogeniczność behawioralna między osobnikami nie są rozróżniane. Podejście to ogranicza wpływ latencji reakcji na bodziec, przejściowych pauz oraz zachowań stadnych, które wpływają na manualne punktowanie oparte na punktach końcowych. W przeciwieństwie do konwencjonalnego punktowania opartego na punktach końcowych, niniejszy schemat pracy zapewnia również ciągłe pomiary rosnącego nachylenia (pixels/s), co umożliwia ilościowe porównanie regresu motorycznego w zależności od wieku i genotypu. Podobne komputerowe metody śledzenia są coraz częściej stosowane w celu zwiększenia obiektywizmu i spójności w analizie behawioralnej Drosophila z wykorzystaniem zautomatyzowanych platform kwantyfikacji lokomocji8,9,10,11,12.
Należy wziąć pod uwagę kilka dodatkowych ograniczeń. Pomiary nachylenia wspinania oparte na pikselach (pixels/s) zależą od spójnej kalibracji kamery i geometrii nagrywania we wszystkich eksperymentach. Różnice w odległości kamery lub rozdzielczości mogą wpływać na bezwzględne wartości nachylenia, co wymaga normalizacji względem kontroli wewnętrznych. Ponadto, choć w zaprezentowanym tutaj modelu amyloid-β wczesny spadek sprawności motorycznej był jakościowo powiązany z obniżonym przeżyciem, szersza walidacja w odniesieniu do dodatkowych genotypów, interwencji lub metod leczenia farmakologicznego wzmocniłaby interpretację związku między sprawnością motoryczną a przeżywalnością. Przedstawione tutaj reprezentatywne zestawy danych mają na celu zademonstrowanie wdrożenia i interpretacji schematu postępowania, a nie ustanowienie uogólnionego modelu predykcyjnego dla różnych kontekstów chorobowych.
Pomimo tych ograniczeń, niniejszy protokół zapewnia powtarzalne i kosztowo efektywne ramy dla powiązania funkcjonalnych wskaźników długości okresu zdrowia z wynikami przeżywalności w badaniach nad starzeniem. Metoda ta jest łatwo adaptowalna do manipulacji genetycznych, paradygmatów przesiewowych leków oraz modeli neurodegeneracji, w których spadek sprawności funkcjonalnej poprzedza śmierć. Dzięki zintegrowaniu obiektywnej kwantyfikacji nachylenia wspinaczki (pixels/s) ze standaryzowaną analizą przeżywalności, podejście to ułatwia kompleksowe fenotypowanie trajektorii starzenia u Drosophila. Przyszłe badania obejmujące dodatkowe genotypy neurodegeneracyjne, interwencje farmakologiczne oraz podłużne zbiory danych behawioralnych mogą dodatkowo wzmocnić użyteczność tego schematu pracy dla zintegrowanej analizy długości okresu zdrowia13,14.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Praca ta była finansowana ze środków Amrita School of Biotechnology, Amrita Vishwa Vidyapeetham, Amritapuri.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Agar | Himedia | GRM666 | Środek utwardzający |
| Kwas benzoesowy | Himedia | GRM488 | Konserwant przeciwdrobniczy |
| Canton-S | Bloomington Drosophila Stock Center | BDSC #1 | Referencyjny szczep typu dzikiego |
| Rurka wspinaczkowa | Wykonany na zamówienie | Brak danych | Przezroczysta rurka cylindryczna, wysokość 12 cm × średnica 2 cm, przezroczysty plastik lub szkło |
| Mąka kukurydziana | Lokalny dostawca | Nie dotyczy | Przygotowanie pożywki dla muszek |
| Komputer stacjonarny/laptop | Dowolny producent | Zdefiniowany przez użytkownika | Minimalnie procesor dwurdzeniowy, ≥8 GB pamięci RAM, system operacyjny kompatybilny z Python 3.x |
| D-glukoza | Himedia | MB037 | Składnik pożywki dla muszek |
| elav-GAL4 | Bloomington Drosophila Stock Center | BDSC #458 | Panneuronalny driver GAL4 |
| Matplotlib | Biblioteka otwartoźródłowa | Wersja 3.5.2 | Wykresy i wizualizacja |
| NumPy | Biblioteka otwarta (open-source) | Wersja 1.26.4 | Obliczenia numeryczne |
| OpenCV | Biblioteka open-source | Wersja 4.9.0 | Przetwarzanie wideo |
| Pandas | Biblioteka otwarta (open-source) | Wersja 2.2.0 | Przetwarzanie danych |
| Kwas propionowy | Himedia | GRM3658 | Konserwant przeciwgrzybiczy |
| Python | Python Software Foundation | Wersja 3.12.1 | Środowisko analizy |
| Scikit-learn | Biblioteka otwartoźródłowa | Wersja 1.4.2 | Analiza regresji liniowej |
| Aparat w smartfonie / Aparat cyfrowy | Dowolny producent | Zdefiniowany przez użytkownika | Nagrywanie w minimum 30 klatkach/s, stabilna ostrość, ustawienie prostopadłe, minimum 1280 × rozdzielczość 720p |
| Sacharoza | Himedia | GRM601 | Składnik pożywki dla muszek |
| UAS-APP.Aβ.E693G | Bloomington Drosophila Stock Center | BDSC #33774 | Model ludzkiej mutacji Arctic białka APP |
| Drożdże | Himedia | RM027 | Suplement diety |
Bibliografia
- López-Otín C, et al. The hallmarks of aging. Cell. 2013;153(6):1194-217.
- Caligiore D, Giocondo F, Silvetti M. The Neurodegenerative Elderly Syndrome (NES) hypothesis: Alzheimer and Parkinson are two faces of the same disease. IBRO Neurosci Rep. 2022;13:330-43.
- Buchman AS, Bennett DA. Loss of motor function in preclinical Alzheimer’s disease. Expert Rev Neurother. 2011;11(5):665-76.
- Sivanantharajah L, Mudher A, Shepherd D. An evaluation of Drosophila as a model system for studying tauopathies such as Alzheimer’s disease. J Neurosci Methods. 2019;319:77-88.
- Jones MA, Grotewiel M. Drosophila as a model for age-related impairment in locomotor and other behaviors. Exp Gerontol. 2011;46(5):320-5.
- Gargano JW, Martin I, Bhandari P, Grotewiel MS. Rapid iterative negative geotaxis (RING): a new method for assessing age-related locomotor decline in Drosophila. Exp Gerontol. 2005;40(5):386-95.
- Linford NJ, Bilgir C, Ro J, Pletcher SD. Measurement of lifespan in Drosophila melanogaster. J Vis Exp. 2013;(71):50068.
- Spierer AN, Yoon D, Zhu CT, Rand DM. FreeClimber: automated quantification of climbing performance in Drosophila. J Exp Biol. 2021;224(2).
- Taylor MJ, Tuxworth RI. Continuous tracking of startled Drosophila as an alternative to the negative geotaxis climbing assay. J Neurogenet. 2019;33(3):190-8.
- Cao W, et al. An automated rapid iterative negative geotaxis assay for analyzing adult climbing behavior in a Drosophila model of neurodegeneration. J Vis Exp. 2017;(127):56507.
- Liu H, et al. Automated rapid iterative negative geotaxis assay and its use in a genetic screen for modifiers of Aβ42-induced locomotor decline in Drosophila. Neurosci Bull. 2015;31(5):541-9.
- Rhodenizer D, et al. Genetic and environmental factors impact age-related impairment of negative geotaxis in Drosophila by altering age-dependent climbing speed. Exp Gerontol. 2008;43(8):739-48.
- Tsintzas E, Niccoli T. Using Drosophila amyloid toxicity models to study Alzheimer’s disease. Ann Hum Genet. 2024;88(5):149-65.
- O’Keefe L, Denton D. Using Drosophila models of amyloid toxicity to study autophagy in the pathogenesis of Alzheimer’s disease. Biomed Res Int. 2018;2018:5195416.
Przedruki i uprawnienia
Ten artykuł został opublikowany
Film wkrótce dostępny