Niniejszy protokół opisuje kroki procedur służących do oceny odporności całego organizmu na stres cieplny, stres oksydacyjny, stres retikulum endoplazmatycznego (ER) oraz stres mitochondrialny. Zawiera on również metody pozwalające ocenić, czy neurony odgrywają rolę w odporności na stres.
Artykuł metodologiczny
Metody pomiaru odporności na wiele stresorów u Caenorhabditis elegans
W tym artykule
Podsumowanie
Streszczenie
Organizmy w ciągu swojego życia są narażone na różnorodne stresory środowiskowe i komórkowe. Zdolność do przeciwstawiania się różnym stresorom ściśle koreluje z długością życia w zdrowiu oraz całkowitą długością życia organizmów. Caenorhabditis elegans (C. elegans) jest idealnym organizmem modelowym do pomiaru odporności na stres, co ułatwia badanie konserwowanych mechanizmów molekularnych leżących u podstaw tej odporności. C. elegans posiada również uproszczony układ nerwowy, który jest kluczowy dla zrozumienia neuronalnych podstaw odporności na stres. W niniejszej pracy przedstawiamy metody pomiaru odporności na stres u C. elegans w czterech różnych warunkach stresowych: stresie cieplnym, stresie retikulum endoplazmatycznego (ER), stresie mitochondrialnym oraz stresie oksydacyjnym. Kohorty nicieni są umieszczane na stałych płytkach agarowych i narażone na ekstremalne temperatury w przypadku stresu cieplnego lub na agar zawierający różne dawki związków indukujących stres ER, mitochondrialny lub oksydacyjny. Jako przykład ustaliliśmy rosnące dawki każdego stresora i przeprowadziliśmy miareczkowanie w celu wyznaczenia optymalnej dawki, aby określić różnice w odporności na stres w szczepie z ablacją neuronów RIC w porównaniu ze szczepem typu dzikiego. W warunkach stresowych przeżywalność C. elegans jest monitorowana co godzinę lub codziennie, a następnie wykreśla się i porównuje krzywe przeżywalności, aby zidentyfikować różnice w zdolnościach do odporności na stres u różnych szczepów C. elegans. Metody te zapewniają powtarzalne podejście do oceny odporności na wiele stresorów w zakresie różnych dawek i skal czasowych u C. elegans typu dzikiego, mutantów lub szczepów z manipulacjami neuronalnymi, a także pomagają w odkrywaniu molekularnych i neuronalnych mechanizmów leżących u podstaw odpowiedzi na wiele stresorów.
Wprowadzenie
Organizmy w ciągu swojego życia doświadczają różnych stresów środowiskowych. Większość stresorów, w tym ciepło, hipoksja, promieniowanie, stres oksydacyjny, stres osmotyczny oraz stres patogenny, powoduje dysfunkcje komórkowe i zaburzenia homeostazy, które wywołują wewnątrzkomórkowe odpowiedzi stresowe. Organizmy wykształciły wysoce konserwatywne szlaki odpowiedzi stresowej, aby radzić sobie z dynamicznymi wyzwaniami i stresorami środowiskowymi. Do tych konserwatywnych szlaków odpowiedzi stresowej należą odpowiedzi na szok termiczny (HSR)1, odpowiedzi na nieprawidłowo sfałdowane białka (UPR) w retikulum endoplazmatycznym (ER) i mitochondriach2 oraz odpowiedź na stres oksydacyjny3. Główni regulatorzy różnych szlaków odpowiedzi stresowej, zazwyczaj czynniki transkrypcyjne, indukują ekspresję genów responsywnych w celu przywrócenia proteostazy i promowania przeżycia komórek4. Odpowiedzi te obejmują syntezę chaperonów, które ponownie fałdują nieprawidłowo sfałdowane białka, oraz usuwanie uszkodzonych białek poprzez ich degradację4. Brak aktywacji odpowiedzi stresowych prowadzi do gromadzenia się uszkodzonych białek w cytoplazmie lub organellach, co skutkuje dysfunkcją komórek i tkanek. Zaburzona odpowiedź komórkowa na stres była wiązana z różnymi chorobami przewlekłymi, od neurodegeneracji po zespół metaboliczny5,6. Z kolei odpowiednia aktywacja szlaków odpowiedzi stresowej prowadzi do poprawy okresu zdrowia (healthspan) i znacznego wydłużenia długości życia7. Dlatego ważne jest badanie molekularnych mechanizmów odporności na stres, aby wykorzystać ochronną odpowiedź stresową do poprawy stanu zdrowia. W związku z tym konieczne jest opracowanie powtarzalnych metod i technik w celu precyzyjnego ilościowego określenia odporności na stres u żywych zwierząt.
Odkrycia z ostatnich 15 lat wykazały rolę sygnalizacji neuronalnej w zwiększaniu odporności na stres u wielu gatunków8. Wstępne wyniki wykazały, że HSR oraz ER UPR w neuronach są wystarczające do aktywacji odpowiedzi stresowej w tkankach nieneuronalnych, co ustanowiło koncepcję nieniezależnej komórkowo (cell non-autonomous) regulacji odporności na stres8,9,10. Od tego pierwotnego odkrycia narastające dowody wskazują, że wiele szlaków odporności na stres reaguje na sygnały środowiskowe i promuje odporność na stres poprzez sygnalizację neuronalną. W szczególności HSR10,11, ER UPR12,13, mitochondrialna odpowiedź na rozfałdowanie białek (UPRmt) 14,15 oraz odpowiedź na stres oksydacyjny3 promują w sposób nieniezależny komórkowo odporność na stres poprzez neurony. Mechanizm nieniezależnej komórkowo regulacji odporności na stres jest konserwowany u różnych organizmów, w tym u muszki owocówki D. melanogaster16,17,18,19 oraz u myszy20,21.
Aby ułatwić badania nad rolą neuronów w odporności na stres w warunkach oddziaływania wielu czynników stresogennych, przedstawiamy tutaj systematyczny protokół testowania odporności na cztery stresory regulowane neuronalnie: stres termiczny, stres retikulum endoplazmatycznego (ER), stres mitochondrialny oraz stres oksydacyjny. Jako łatwy w obsłudze organizm modelowy do pomiaru odporności na te cztery stresory wykorzystano C. elegans. Zastosowanie C. elegans w testach odporności na stres pozwala na badanie aktywacji odpowiedzi stresowej nie tylko na poziomie komórkowym, ale również na poziomie całego organizmu.
Szlaki odpowiedzi na stres aktywowane przez stres cieplny, stres retikulum endoplazmatycznego (ER), stres mitochondrialny oraz stres oksydacyjny są konserwatywne i funkcjonalnie istotne u wielu organizmów, w tym u ludzi22,23,24,25. Stres cieplny prowadzi do błędnego zwijania i agregacji białek oraz aktywuje odpowiedź na szok cieplny, która jest niezbędna do utrzymania homeostazy białek26. Fizjologiczna temperatura środowiskowa dla C. elegans wynosi 20 °C, a wyższa temperatura powyżej 25 °C indukuje stres cieplny u C. elegans27. Indukujemy stres cieplny w trzech podwyższonych temperaturach testowych: 30 °C, 35 °C i 37 °C.
ER jest głównym miejscem syntezy i fałdowania białek28. Gromadzenie się niefałdowanych lub błędnie sfałdowanych białek w świetle ER aktywuje odpowiedzi na niefałdowane białka w celu przywrócenia proteostazy29. Stres ER może być indukowany przez związek chemiczny, tunikamycynę, która blokuje glikozylację typu N i powoduje gromadzenie się błędnie sfałdowanych białek w świetle ER30. Zwiększona odporność na stres związany z błędnym fałdowaniem białek w świetle ER przekłada się na zwiększoną przeżywalność12. Poddajemy nicienie działaniu różnych dawek tunikamycyny (25–200 µg/mL) i oceniamy ich wrażliwość poprzez pomiar przeżywalności.
Mitochondria są komórkowym centrum metabolicznym i „elektrowniami” komórki. Reaktywne formy tlenu (ROS) oraz niepofałdowane białka w mitochondriach wywołują odpowiedź na niepofałdowane białka mitochondrialne i indukują stres mitochondrialny31. Stres mitochondrialny może być indukowany przez antymycynę A, inhibitor kompleksu III mitochondriów, który blokuje transport elektronów i powoduje produkcję ROS32. Stosujemy różne dawki antymycyny A (5–80 µg/mL), aby zidentyfikować optymalną dawkę dla testu oporności na stres mitochondrialny.
Stres oksydacyjny jest zazwyczaj indukowany przez toksyny środowiskowe oraz wolne rodniki komórkowe powstające w wyniku metabolizmu. Stres oksydacyjny powoduje uszkodzenia białek, lipidów i DNA u wszystkich organizmów33. Paraquat, związek herbicydowy przenoszący elektrony na tlen i generujący nadmierną ilość rodników ponadtlenkowych, jest silnym induktorem stresu oksydacyjnego34. Zastosowaliśmy cztery zwiększające się dawki paraquatu (2.5–20 mM) i wykazaliśmy zakres maksymalnego przeżycia obejmujący od 3 do 12 dni u C. elegans.
Te cztery warunki stresowe pozwalają w prosty sposób uzyskać wysoce powtarzalne wyniki odporności na stres u C. elegans. Metody badania odporności na stres były raportowane wcześniej35,36,37,38,39,40. W porównaniu z opublikowanym wcześniej przeglądem podsumowującym różne stresory i analizy przeżywalności35, niniejszy artykuł ustanawia szczegółowe, wykonalne protokoły krok po kroku w celu przeprowadzenia powtarzalnych i spójnych testów stresowych. Kilka wcześniej opublikowanych protokołów koncentrowało się na jednym konkretnym teście stresowym, takim jak szok termiczny36 lub stres oksydacyjny38; natomiast niniejszy protokół demonstruje cztery różne testy stresowe: stres termiczny, stres retikulum endoplazmatycznego (ER), stres mitochondrialny oraz stres oksydacyjny. Wcześniej raportowane protokoły testów stresowych przedstawiały również inne punkty końcowe w postaci reporterów fluorescencyjnych, takich jak specyficzne dla danej ścieżki fluorescencyjne reportery transkrypcyjne dla stresu ER, mitochondrialnego i oksydacyjnego40 lub odpowiedzi na szok termiczny39; natomiast niniejszy protokół wykorzystuje testy przeżywalności do skutecznego pomiaru ogólnego stanu zdrowia C. elegans. Co ważne, w niniejszym protokole przedstawiono miareczkowanie dawek dla wszystkich czterech testów, aby dostarczyć referencje zakresu dawek skutecznych, które można wybrać do testów stresowych; protokół ten zoptymalizował skalę czasową (od godzin do dni) w różnych testach stresowych; dodatkowo przedstawiliśmy nową rolę neuronu regulującego wiele odpowiedzi stresowych jako przykład do sprawdzenia, czy neurony regulują odporność na stres.
Opracowanie testu oporności na stres wymaga wyboru odpowiedniego stresora oraz wiarygodnego wskaźnika oceny. Testy przeżywalności C. elegans stanowią potężne narzędzia do pomiaru procesów fizjologicznych, w tym długości życia, oporności na stres oraz infekcji patogennych. Jedną z kluczowych zalet wykorzystania C. elegans w testach przeżywalności jest łatwość przygotowania i badania zsynchronizowanych nicieni w tym samym wieku, co wynika z ich samopłodności, dużej liczby potomstwa oraz krótkiego, trzydniowego cyklu rozwojowego od jaj do młodych osobników dorosłych. Samce w naturalnej populacji hodowlanej C. elegans występują rzadko, dlatego zazwyczaj nie są wykorzystywane w testach przeżywalności, w tym w niniejszym protokole, a służą głównie do krzyżówek genetycznych35. W porównaniu z innymi metodami oceny punktów końcowych (np. reporterami fluorescencyjnymi, akumulacją białek i lipidów), testy przeżywalności skutecznie mierzą ogólny stan zdrowia C. elegans i wymagają stosunkowo krótkiego czasu realizacji, zazwyczaj od kilku godzin do kilku tygodni, w zależności od dawki stresorów. Wskaźniki przeżywalności wykorzystujemy jako główny wskaźnik oporności na stres w różnych szczepach C. elegans. Przeżywalność określa się na podstawie ruchliwości oraz reakcji na delikatną stymulację mechaniczną; brak reakcji na stymulację służy do zdefiniowania śmiertelności w testach stresu u C. elegans. Testy przeżywalności u C. elegans można przeprowadzać zarówno w pożywkach stałych, jak i ciekłych z dodatkiem bakterii jako pożywki35. Jednakże pożywki ciekłe nie są naturalnym środowiskiem nicieni, a zwierzęta te są zmuszone do ciągłego miotania się w kulturze ciekłej, co prowadzi do skrócenia krzywej przeżywalności41. W niniejszej pracy stosujemy pożywki stałe, aby ocenić wpływ różnych stężeń stresorów na przeżywalność nicieni typu dzikiego oraz mutantów z ablacją neuronów. Te dane z miareczkowania stężeń mogą stanowić wytyczne dla innych badaczy przeprowadzających porównywalne testy oporności na stres.
Protokół
Eksperymenty z wykorzystaniem C. elegans zostały przeprowadzone na Kansas State University w Manhattan, KS, USA, zgodnie z instytucjonalnymi wytycznymi dotyczącymi bezpieczeństwa biologicznego i pracy laboratoryjnej. Ponieważ C. elegans jest bezkręgowym organizmem modelowym, do niniejszego badania nie była wymagana zgoda komisji etyki ds. zwierząt kręgowców. Szczegóły dotyczące wszystkich użytych odczynników, sprzętu, oprogramowania i szczepów wymieniono w Tabeli materiałów.
1. Przygotowanie płytek NGM (Nematode Growth Medium) i namnożenie Escherichia coli OP50
- Przygotowanie płytek NGM
- Odważyć 3 g NaCl, 17 g agaru (sproszkowanego) oraz 2,5 g peptonu, dodać 900 mL ultraczystej wody dejonizowanej (ddH2O), uzupełnić objętość do 1 L i wysterylizować w autoklawie. Schłodzić pożywkę do temperatury około 60 °C w łaźni wodnej o temperaturze 60 °C.
- Dodać 1 mL 1 M CaCl2 (przygotowanego w ddH2O i wysterylizowanego przez filtrację), 1 mL cholesterolu w stężeniu 5 mg/mL (przygotowanego w etanolu i wysterylizowanego przez filtrację), 1 mL 1 M MgSO4 (przygotowanego w ddH2O i wysterylizowanego przez filtrację) oraz 25 mL 1 M buforu KP.
Aby przygotować bufor KP, zmieszać 130 mL 1 M K2HPO4 z 870 mL 1 M KH2PO4 przygotowanego w ddH2O. Po dokładnym wymieszaniu dostosować pH do wartości 6,0. Po przygotowaniu zmierzone pH jest zazwyczaj bliskie 6,0 i nie jest wymagana dodatkowa korekta. Akceptowalny zakres pH dla buforu KP wynosi 5,8–6,2, przy wartości docelowej 6,0. Przed użyciem należy zweryfikować, czy końcowe pH wynosi około 6,0. W razie potrzeby dostosować pH do 6,0 za pomocą 1 M K2HPO4 lub 1 M KH2PO4. - Dokładnie wymieszać i przelać pożywkę (NGM) do płytek (szalek Petriego). Dla płytek 60 mm wlać 10 mL pożywki NGM na płytkę; dla płytek 35 mm wlać 3 mL pożywki NGM na płytkę. Pozostawić płytki z agarem NGM w temperaturze pokojowej (22–25 °C) na płaskim blacie przez co najmniej 24 h przed zaszczepieniem bakterii służących jako pokarm.
OSTROŻNIE: Podczas przygotowywania i wlewania stopionego agaru NGM należy używać rękawic odpornych na wysoką temperaturę i odpowiednich środków ochrony indywidualnej (PPE), aby zapobiec oparzeniom i kontaktowi z gorącym płynem.
- Przygotowanie bakterii Escherichia coli OP50 jako pokarmu dla Caenorhabditis elegans
- Wysiać bakterie Escherichia coli OP50 na płytkę z agarem Luria-Bertani (LB) i inkubować przez noc w temperaturze 37 °C (płytki z agarem LB: dodać 1 g NaCl, 1 g tryptonu, 0,5 g ekstraktu drożdżowego i 1,5-2,0 g sproszkowanego agaru do 100 mL ddH2O, wysterylizować w autoklawie przez 20 min, schłodzić do 50-60 °C i przelać pożywkę do płytek. Umieścić na czystym, płaskim blacie i pozostawić do wyschnięcia).
- Zaszczepić pojedynczą kolonię do 100 mL płynnej pożywki LB (pożywka LB: dodać 1 g NaCl, 1 g tryptonu i 0,5 g ekstraktu drożdżowego do 100 mL ddH2O, wysterylizować w autoklawie przez 20 min. Schłodzić do temperatury poniżej 37 °C przed zaszczepieniem).
- Hodować bakterie w inkubatorze z wytrząsaniem w temperaturze 37 °C, aż zawiesina bakteryjna osiągnie gęstość optyczną przy 600 nm (OD600) około 0,3 w 10-krotnym rozcieńczeniu zawiesiny bakteryjnej (wymieszać 100 µL zawiesiny bakterii z 900 µL pożywki LB). Zebrać i przechowywać zawiesinę bakterii w temperaturze 4 °C. Pokarm bakteryjny można przechowywać do jednego tygodnia przed zaszczepieniem na płytkę NGM40.
- Użyć pipety wielokrotnej (repeat pipettor) do zaszczepienia bakterii OP50 na płytkach NGM. Nanieść 200 µL na płytki z agarem 60 mm oraz 100 µL na płytki z agarem 35 mm. Pozostawić zaszczepione płytki NGM w temperaturze pokojowej (~22–25 °C) na płaskim blacie przez co najmniej 24 h przed użyciem. Nie pozostawiać płytek w temperaturze pokojowej dłużej niż przez 48 h. Umieścić zaszczepione płytki w czystym plastikowym pudełku i przechowywać w temperaturze 4 °C.
UWAGA: W przypadku stosowania płytek bez otworów wentylacyjnych, zaszczepione bakterie OP50 mogą wymagać dłuższego czasu schnięcia.
OSTROŻNIE: Prace z kulturami E. coli OP50 należy prowadzić zgodnie z odpowiednimi zasadami mikrobiologicznymi, nosząc fartuch laboratoryjny, rękawice i ochronę oczu. Powierzchnie robocze należy dezynfekować, a odpady bakteryjne utylizować zgodnie z instytucjonalnymi procedurami bezpieczeństwa biologicznego.
2. Utrzymanie i synchronizacja C. elegans
Przebieg pracy w tej sekcji przedstawiono podsumowująco na Rysunku 1A.
- Utrzymywać nicienie w temperaturze 20 °C na płytkach NGM z zasiańcem OP50, przenosząc osobniki dorosłe na nowe płytki NGM z zasiańcem OP50 dwa razy w tygodniu, aby zapobiec głodzeniu nicieni. Za pomocą zapinkacza z drutu platynowego przenieś 20–40 zapłodnionych dorosłych nicieni na świeżą płytkę NGM z zasiańcem OP50, a następnie usuń wszelkie larwy i jaja, które zostały przeniesione wraz z dorosłymi osobnikami z płytki wyjściowej. Użycie znanej liczby zapłodnionych nicieni ułatwia prowadzenie dokładnej dokumentacji i zapewnia ich całkowite usunięcie w późniejszym etapie (rozdział 1.2).
UWAGA: W zależności od kondycji szczepu typu dzikiego (N2), do uzyskania 80–120 jaj w ciągu 2 h wystarczy łącznie 20–40 zapłodnionych osobników. Optymalny okres składania jaj przypada na pierwszy dzień (dzień 1) dorosłości zapłodnionych osobników. W przypadku szczepów o niższej lub wyższej płodności należy odpowiednio dostosować liczbę zapłodnionych osobników. Celem tego etapu jest uzyskanie wystarczającej liczby jaj, z których rozwiną się zsynchronizowane nicienie do późniejszych testów stresowych. - Po około 2 h należy usunąć zapłodnione nicienie z płytki. Należy policzyć liczbę usuniętych na tym etapie zapłodnionych nicieni i potwierdzić, że usunięto wszystkie 20–40 zapłodnionych nicieni umieszczonych na płytce.
- Inkubować płytki zawierające jaja w temperaturze 20 °C do momentu osiągnięcia przez nicienie późnego stadium L4 w celu przeprowadzenia testów stresowych. Zsynchronizuj nicienie do stadium L4, aby zminimalizować zmienność wynikającą z różnic w wieku osobników dorosłych oraz ich stanie rozrodczym12,35,37,38,40,42,43W 20 °Cnicienie osiągają jednorodnie zsynchronizowane późne stadium L4 około 54–58 h po złożeniu jaj na płytkach z twardym agarem w szczepie typu dzikiego (Nasze obserwacje i 36,40).
UWAGA: W przypadku szczepów o opóźnionym rozwoju należy dostosować czas synchronizacji do późnego stadium L4, zgodnie z ich specyficznym tempem rozwoju.
UWAGA: Należy obchodzić się z ostrożnością C. elegans stosując odpowiednie praktyki mikrobiologiczne oraz nosząc fartuch laboratoryjny i rękawiczki, aby zminimalizować ekspozycję na materiał biologiczny i zapobiec kontaminacji.
3. Warunki stresowe i zbieranie danych
- Test stresu cieplnego
Przebieg prac w tej sekcji został podsumowany w Rycina 1B.- Zsynchronizuj nicienie do późnego stadium L4 (sekcja 2) i utrzymuj je w 20 °CPrzenieś zsynchronizowane nicienie w stadium L4 na 35-milimetrowe płytki NGM z posiewem OP50 (rozdział 1), stosując 4 płytki na grupę jako powtórzenia techniczne, z liczbą 30–35 nicieni na płytkę. W kwestii przygotowania powtórzeń biologicznych należy odnieść się do rozdziału 4.
- Umieść płytki z nicieniami w późnym stadium L4 w temperaturze 30, 35 lub 37 °C inkubator. Należy upewnić się, że inkubator osiągnął ustawioną temperaturę przed umieszczeniem w nim płytek z badanymi nicieniami. Średnie przeżycie nicieni typu dzikiego w temperaturze 30, 35 lub 37 °C wynosi od około 4 h do 3 dni (Rycina 2B–D) w porównaniu do średniego czasu przeżycia w warunkach braku stresu fizjologicznego, wynoszącego około 20 dni (Rysunek 2A).
KROK KRYTYCZNY: Umieść wszystkie płytki testowe stroną z agarem do dołu w jednej warstwie w 35 °C inkubator w celu zapewnienia szybkiego i jednorodnego wyrównania temperatury.
UWAGA: Podczas testów stresu cieplnego w temperaturach 30, 35 lub 37 °Cwiększość nicieni nie składa jaj. W rzadkich przypadkach, gdy dochodzi do złożenia jaj, nie zaobserwowano ich wyklucia. W związku z tym przenoszenie nicieni na świeże płytki nie jest konieczne. - Policz liczbę martwych nicieni w każdym punkcie czasowym dla każdej płytki z replikatem technicznym i zapisz tę liczbę na arkuszu danych. Przeżywalność nicieni jest oceniana co godzinę w warunkach 35 °C lub 37 °C stres cieplny i raz dziennie w warunkach 30 °C stres cieplny. Ocenę przeprowadza się pod mikroskopem stereoskopowym w temperaturze pokojowej. Podczas oceny z inkubatora wyjmuje się wyłącznie analizowaną płytkę; wszystkie pozostałe płytki powinny pozostać w temperaturze wyznaczonego stresu cieplnego, aby zminimalizować przerwy w ekspozycji na stres cieplny. Praktyka ta pozwala na utrzymanie spójnych warunków eksperymentalnych dla wszystkich próbek.
KROK KRYTYCZNY: Aby zminimalizować przerwy w ekspozycji na stres cieplny, należy wyjmować każdą płytkę z inkubatora na czas nie dłuższy niż 3 min podczas każdej sesji oceny. W zależności od przeżywalności nicieni w różnych punktach czasowych podczas testu stresowego, ocena płytki w temperaturze pokojowej trwa zazwyczaj od 30 s do 3 min. Kolejność oceny ma znaczenie ze względu na czas poświęcony na manualną analizę. Zalecamy ocenianie jednej powtórki technicznej z każdego wariantu, aż do momentu zakończenia oceny wszystkich powtórek technicznych we wszystkich wariantach. Na przykład w przypadku trzech wariantów/grup (A, B i C) z 4 powtórkami technicznymi na płytkach, kolejność oceny powinna wyglądać następująco: A1, B1, C1. → A2, B2, C2 → A3, B3, C3 → A4, B4, C4. - Oceń przeżywalność nicieni na podstawie czy można zaobserwować jakąkolwiek reakcję ruchową na delikatną stymulację fizyczną. Nicienie poruszające się aktywnie uznaje się za żywe i nie wymagają one stymulacji fizycznej. W przypadku nicieni niewykazujących spontanicznego ruchu należy je delikatnie stymulować, dotykając dwukrotnie tylnego odcinka ciała za pomocą platynowej igły. Brak reakcji ruchowej odnotowuje się jako śmierć, a martwego nicienia usuwa się z płytki po dokonaniu zapisu. Około 2 s obserwacji po każdym dotknięciu jest wystarczające, aby określić, czy występuje reakcja ruchowa. Do rejestrowania liczby żywych i martwych nicieni podczas liczenia oraz w celu ograniczenia błędów zaleca się stosowanie ręcznego licznika mechanicznego. Aby upewnić się, że wszystkie nicienie zostały policzone tylko raz, należy umieścić pod płytką przezroczystą plastikową kartkę z siatką lub narysować siatkę na spodzie płytki, aby podzielić ją na sekcje do liczenia.
UWAGA: Płytki należy niezwłocznie umieścić w inkubatorze w warunkach cieplnych po dokonaniu oceny. - Monitoruj przeżywalność nicieni w regularnych odstępach czasu, aż wszystkie zwierzęta padną lub zostaną ocenzurowane zgodnie z przyjętymi kryteriami. Zestaw zapisane dane dotyczące przeżywalności i wykorzystaj je do wygenerowania krzywych przeżycia do późniejszej analizy.
- Analiza stresu retikulum endoplazmatycznego
Przebieg pracy w tej sekcji został podsumowany w Rycina 1C.- Przygotuj płytki z pożywką do testu stresu retikulum endoplazmatycznego (ER). Dodaj roztwór zapasowy tunikamycyny (10 mg/ml w dimetylosulfotlenku (DMSO), przechowywany w temperaturze –20 °C) do płynnego podłoża NGM (z sekcji 1.1.2) do stężenia końcowego 25, 50, 100 lub 200 µg/mLNa przykład, aby przygotować 1 l pożywki do testu stresu retikulum endoplazmatycznego (ER), należy dodać 2,5, 5, 10 lub 20 ml roztworu stokowego tunikamycyny (10 mg/ml w DMSO), aby uzyskać stężenie końcowe 25, 50, 100 lub 200 µg/mL tunicamycyny do pożywek na szalkach. Jeśli w teście uwzględniono kontrolę niepoddaną działaniu leku, do odpowiadającej jej pożywki kontrolnej należy dodać taką samą ilość DMSO (2,5, 5, 10 lub 20 μL).
KROK KRYTYCZNY: Schłodzić autoklawowaną pożywkę NGM do temperatury około 55 °C podczas mieszania dodać tunicamycynę do pożądanego stężenia końcowego. Wymieszać dokładnie, a następnie nalać 3 ml podłoża NGM z tunicamycyną do każdej płytki o średnicy 35 mm. Na każdą agarową płytkę o średnicy 35 mm zaszczepić 100 µL bakterie OP50 (rozdział 1.2). Płytki NGM z wysianymi bakteriami OP50 i tunikamycyną mogą być przechowywane w 4 °C do jednego tygodnia przed użyciem.
UWAGA: Tunicamycyna jest substancją niebezpieczną i musi być użytkowana w dygestorium przy jednoczesnym stosowaniu fartucha laboratoryjnego, rękawiczek oraz środków ochrony oczu. Należy unikać wdychania oraz kontaktu ze skórą lub oczami. - Zsynchronizuj nicienie do późnego stadium L4 (sekcja 2) i utrzymuj je w 20 °CPrzenieś zsynchronizowane nicienie w stadium L4 na 35-milimetrowe płytki NGM z wysianym szczepem OP50 zawierające tunicamycynę, wykorzystując 4 płytki na grupę jako powtórzenia techniczne, z liczbą 30–35 nicieni na płytkę. W kwestii przygotowania powtórzeń biologicznych należy odnieść się do sekcji 4.
- Inkubować wszystkie płytki w temperaturze 20 °CCodziennie odnotowuj liczbę martwych nicieni. Średnie przeżycie nicieni typu dzikiego przy stężeniach 25, 50, 100 lub 200 µg/mL zakres czasu dla tunicamycyny wynosi od około 8 do 11 dni (Rycina 2E,F) w porównaniu do średniego czasu przeżycia wynoszącego około 20 dni w warunkach braku stresu fizjologicznego (Rycina 2A).
UWAGA: W teście stresu retikulum endoplazmatycznego indukowanego tunicamicyną następuje składanie jaj, jednak nie wykluwają się one na płytkach agarowych zawierających tunicamicynę. W związku z tym przenoszenie nicieni na świeże płytki nie jest konieczne. - Codziennie należy zliczyć liczbę martwych nicieni na każdej płytce powtórzeń technicznych i zapisać tę liczbę w arkuszu danych. Ocena jest przeprowadzana ręcznie przy użyciu mikroskopu stereoskopowego na stole laboratoryjnym w temperaturze pokojowej. Nicienie wykazujące aktywny ruch są uznawane za żywe i nie wymagają stymulacji fizycznej. W przypadku nicieni, które nie wykazują spontanicznego ruchu, należy je delikatnie stymulować, dotykając dwa razy tylnego odcinka ciała za pomocą platynowej igły. Brak reakcji zapisuje się jako śmierć, a martwego nicienia usuwa się z płytki po odnotowaniu wyniku. W celu zapewnienia dokładnego liczenia zaleca się stosowanie ręcznego licznika impulsowego. Aby upewnić się, że wszystkie nicienie zostały policzone tylko raz, należy umieścić pod płytką przezroczystą plastikową folię w kratkę lub narysować siatkę na dnie płytki, aby podzielić ją na sekcje ułatwiające liczenie.
UWAGA: Płytki należy niezwłocznie zwrócić do inkubatora po dokonaniu oceny. Nicienie należy przechowywać w inkubatorze przez około 24 h przed kolejną oceną. - Codziennie monitoruj przeżywalność nicieni, aż do momentu śmierci wszystkich zwierząt lub ich ocenzurowania zgodnie z przyjętymi kryteriami. Zbierz zarejestrowane dane dotyczące przeżywalności i wykorzystaj je do wygenerowania krzywych przeżycia do dalszej analizy.
- Przygotuj płytki z pożywką do testu stresu retikulum endoplazmatycznego (ER). Dodaj roztwór zapasowy tunikamycyny (10 mg/ml w dimetylosulfotlenku (DMSO), przechowywany w temperaturze –20 °C) do płynnego podłoża NGM (z sekcji 1.1.2) do stężenia końcowego 25, 50, 100 lub 200 µg/mLNa przykład, aby przygotować 1 l pożywki do testu stresu retikulum endoplazmatycznego (ER), należy dodać 2,5, 5, 10 lub 20 ml roztworu stokowego tunikamycyny (10 mg/ml w DMSO), aby uzyskać stężenie końcowe 25, 50, 100 lub 200 µg/mL tunicamycyny do pożywek na szalkach. Jeśli w teście uwzględniono kontrolę niepoddaną działaniu leku, do odpowiadającej jej pożywki kontrolnej należy dodać taką samą ilość DMSO (2,5, 5, 10 lub 20 μL).
- Analiza stresu mitochondrialnego
Przebieg pracy w tej sekcji został podsumowany w Rysunek 1D.- Przygotuj płytki z pożywką do testu stresu mitochondrialnego. Dodaj roztwór zapasowy antymycyny A (5 mg/ml w DMSO, przechowywany w temperaturze –20 °C) do płynnego medium NGM (z sekcji 1.1.2) do stężenia końcowego 5, 10, 20, 40 lub 80 µg/mLNa przykład, aby przygotować 1 L pożywki do testu stresu mitochondrialnego, należy dodać 1, 2, 4, 8 lub 16 mL roztworu zapasowego antymycyny A (5 mg/mL w DMSO). do uzyskania stężenia końcowego 5, 10, 20, 40 lub 80 µg/mL antymycynę A do płytek z pożywką. Jeśli w badaniu uwzględniono kontrolę niepoddaną działaniu preparatu, należy dodać taką samą ilość DMSO (1, 2, 4, 8 lub 16 µL) do odpowiadającej jej pożywki kontrolnej.
KROK KRYTYCZNY: Schłodzić autoklawowane podłoże NGM do około 55 °C podczas mieszania dodać antymycynę A do pożądanego stężenia końcowego. Dokładnie wymieszać przed wlaniem 3 ml pożywki NGM z antymycyną A na każdą płytkę 35 mm. Każdą płytkę agarową 35 mm zasiać za pomocą 100 µL bakterie OP50 (rozdział 1.2). Płytki NGM z wysianymi bakteriami OP50 i antymycyną A można przechowywać w 4 °C do jednego tygodnia przed użyciem.
OSTRZEŻENIE: Antymycyna A jest substancją niebezpieczną i musi być obsługiwana w dygestorium chemicznym przy założonym fartuchu laboratoryjnym, odpowiednich rękawiczkach oraz ochronnych okularach. Należy unikać wdychania oraz kontaktu z skórą i oczami. - Zsynchronizuj nicienie do późnego stadium L4 (sekcja 2) i utrzymuj je w 20 °CPrzenieś zsynchronizowane nicienie w stadium L4 na 35-milimetrowe płytki NGM z wysianym szczepem OP50 zawierające antymycynę A, stosując 4 płytki na grupę jako powtórzenia techniczne, po 30–35 nicieni na płytkę. Sposób przygotowania powtórzeń biologicznych opisano w sekcji 4.
- Inkubować wszystkie płytki w temperaturze 20 °CCodziennie odnotowuj liczbę martwych nicieni.
KROK KRYTYCZNY: Ze względu na problemy z wykluwaniem jaj i rozwojem larw, należy przenosić nicienie na świeże płytki co dwa dni przez pierwsze 10 dni. Przenoszenie należy przerwać, gdy na płytce nie będą już obserwowane nowe larwy ani jaja. Wszystkie powtórzenia techniczne powinny zostać poddane tej samej liczbie przeniesień. Na przykład, gdy tylko jedna płytka wymaga przeniesienia, wszystkie płytki w tym powtórzeniu biologicznym muszą zostać przeniesione w tym samym czasie. Średnia przeżywalność nicieni typu dzikiego przy 5, 10, 20, 40 lub 80 µg/mL zakres czasu dla antymycyny A wynosi od około 1,5 do 5 dni (Rycina 2G,H) w porównaniu do średniego czasu przeżycia w warunkach braku stresu fizjologicznego wynoszącego około 20 dni (Rysunek 2A).
UWAGA: Test stresu mitochondrialnego indukowanego antymycyną A wymaga przenoszenia nicieni na świeże płytki co dwa dni przez pierwsze 10 dni. Przenoszenie jest wykonywane w celu zapobiegania przeludnieniu i głodowaniu oraz aby odróżnić nicienie doświadczalne od ich potomstwa. - Codziennie należy ocenić liczbę martwych nicieni na każdej płytce z powtórzeniami technicznymi i zapisać tę liczbę w arkuszu danych. Ocenę przeprowadza się ręcznie pod mikroskopem stereoskopowym na blacie w temperaturze pokojowej. Nicienie wykazujące aktywny ruch ocenia się jako żywe i nie wymagają one stymulacji fizycznej. W przypadku nicieni, które nie wykazują spontanicznego ruchu, należy je delikatnie stymulować, dotykając dwukrotnie tylnego regionu ciała za pomocą platynowej igły. Brak reakcji odnotowuje się jako śmierć, a martwy nicień usuwa się z płytki po dokonaniu zapisu. W celu zapewnienia dokładnego liczenia zaleca się stosowanie ręcznego licznika impulsowego. Aby upewnić się, że wszystkie nicienie zostały policzone tylko raz, należy umieścić pod płytką przezroczystą plastikową folię z siatką lub narysować siatkę. na spodzie płytki, aby podzielić ją na sekcje siatki w celu przeprowadzenia zliczeń.
UWAGA: Po dokonaniu oceny należy niezwłocznie przenieść nicienie z powrotem do inkubatora. Nicienie powinny pozostawać w inkubatorze przez około 24 h przed kolejną oceną. - Codziennie monitoruj przeżywalność nicieni, aż wszystkie zwierzęta padną lub zostaną ocenzurowane zgodnie z predefiniowanymi kryteriami. Zbierz zapisane dane dotyczące przeżywalności i wykorzystaj je do wygenerowania krzywych przeżycia do dalszej analizy.
- Przygotuj płytki z pożywką do testu stresu mitochondrialnego. Dodaj roztwór zapasowy antymycyny A (5 mg/ml w DMSO, przechowywany w temperaturze –20 °C) do płynnego medium NGM (z sekcji 1.1.2) do stężenia końcowego 5, 10, 20, 40 lub 80 µg/mLNa przykład, aby przygotować 1 L pożywki do testu stresu mitochondrialnego, należy dodać 1, 2, 4, 8 lub 16 mL roztworu zapasowego antymycyny A (5 mg/mL w DMSO). do uzyskania stężenia końcowego 5, 10, 20, 40 lub 80 µg/mL antymycynę A do płytek z pożywką. Jeśli w badaniu uwzględniono kontrolę niepoddaną działaniu preparatu, należy dodać taką samą ilość DMSO (1, 2, 4, 8 lub 16 µL) do odpowiadającej jej pożywki kontrolnej.
- Test stresu oksydacyjnego
Przebieg prac w tej sekcji został podsumowany w Rycina 1E.- Przygotuj płytki z pożywką do testu stresu oksydacyjnego. Dodaj roztwór zapasowy parakwatu (0,5 M w ddH2O)2O, przechowywany w temperaturze –20 °C) do płynnego medium NGM (z sekcji 1.1.2) do stężenia końcowego 2,5, 5, 10 lub 20 mM.
KROK KRYTYCZNY: Schłodzić wysterylizowane w autoklawie podłoże NGM do temperatury około 55 °C podczas mieszania i dodać paraquat do pożądanego stężenia końcowego. Wymieszać dokładnie przed przelaniem 3 ml pożywki NGM z parakwatem na płytki 35 mm. Na każdą płytkę agarową 35 mm zasiać 100 µL bakterie OP50 (sekcja 1.2). Bakterie OP50 można wysiać na 2–3 dni przed czasem przeprowadzenia analizy. Płytki NGM z wysianymi bakteriami OP50 i parakwatem można przechowywać w 4 °C do jednego tygodnia przed użyciem.
UWAGA: Paraquat jest silnie toksyczny i musi być traktowany w dygestorium z użyciem odpowiednich rękawic, fartucha laboratoryjnego oraz ochrony oczu. Należy unikać wdychania, połknięcia oraz kontaktu ze skórą lub oczami. - Zsynchronizuj nicienie do późnego stadium L4 (sekcja 2) i utrzymuj je w 20 °CPrzenieś zsynchronizowane nicienie w stadium L4 na 35-milimetrowe płytki NGM z wysianym szczepem OP50 i dodatkiem parakwatu, wykorzystując 4 płytki na grupę jako powtórzenia techniczne, przy 30–35 nicieni na płytkę. W celu przygotowania powtórzeń biologicznych zapoznaj się z sekcją 4.
- Inkubować wszystkie płytki w temperaturze 20 °CCodziennie odnotowuj liczbę martwych nicieni. Średni czas przeżycia nicieni typu dzikiego w stężeniach parakwatu 2,5, 5, 10 lub 20 mM wynosi od około 2,5 do 5 dni (Rycina 2I,J), w porównaniu do średniego czasu przeżycia w warunkach braku stresu fizjologicznego wynoszącego około 20 dni (Rysunek 2A).
UWAGA: W teście stresu oksydacyjnego indukowanego parakwatem przenoszenie nicieni na świeże płytki nie jest konieczne. Na płytkach z parakwatem obecna jest ograniczona liczba larw, których rozwój zostaje zatrzymany na etapie L2 lub wcześniej przez cały czas trwania testu. Nie utrudniają one identyfikacji zsynchronizowanych kohort ani nie powodują głodowania. Biorąc pod uwagę stres fizyczny, który może wystąpić podczas przenoszenia nicieni, nie zaleca się ich przenoszenia w trakcie przeprowadzania testu. - Codziennie należy ocenić liczbę martwych nicieni na każdej płytce z repliką techniczną i zapisać tę wartość w arkuszu danych. Ocenę przeprowadza się ręcznie pod mikroskopem stereoskopowym na blacie w temperaturze pokojowej. Nicienie wykazujące aktywny ruch uznaje się za żywe i nie wymagają one stymulacji fizycznej. W przypadku nicieni, które nie wykazują spontanicznego ruchu, należy je delikatnie pobudzić, dotykając dwa razy tylnego regionu ciała za pomocą platynowej igły. Brak reakcji odnotowuje się jako śmierć, a martwego nicienia usuwa się z płytki po dokonaniu zapisu. W celu zapewnienia dokładności liczenia zaleca się stosowanie ręcznego licznika impulsowego. Aby upewnić się, że wszystkie nicienie zostały policzone tylko raz, należy umieścić pod płytką przezroczystą plastikową folię w kratkę lub narysować siatkę na spodzie płytki, aby podzielić ją na sekcje ułatwiające liczenie.
UWAGA: Po dokonaniu oceny należy niezwłocznie przenieść nicienie z powrotem do inkubatora. Pozostawić nicienie w inkubatorze przez około 24 h przed kolejną oceną. - Monitoruj codziennie przeżywalność nicieni, aż wszystkie zwierzęta zginą lub zostaną ocenzurowane zgodnie z predefiniowanymi kryteriami. Zbierz zarejestrowane dane o przeżywalności i wykorzystaj je do wygenerowania krzywych przeżywalności do późniejszej analizy.
- Przygotuj płytki z pożywką do testu stresu oksydacyjnego. Dodaj roztwór zapasowy parakwatu (0,5 M w ddH2O)2O, przechowywany w temperaturze –20 °C) do płynnego medium NGM (z sekcji 1.1.2) do stężenia końcowego 2,5, 5, 10 lub 20 mM.
4. Analiza danych
- Zapisz liczbę martwych nicieni na każdej płytce z powtórzeniem technicznym w każdym punkcie czasowym. Dane dotyczące śmiertelności zapisuje się w arkuszu ocen zorganizowanym według punktów czasowych (godziny lub dni po rozpoczęciu warunków stresowych), grup eksperymentalnych (różne szczepy lub różne warunki traktowania) oraz powtórzeń technicznych (płytka 1, 2, 3 lub 4). W każdym przedziale czasowym oceny (godzinowym lub dziennym, w zależności od analizy) liczba martwych nicieni jest zapisywana oddzielnie dla każdej płytki, a skumulowana śmiertelność jest monitorowana aż do zakończenia analizy.
- Wprowadź dane dotyczące śmiertelności z każdego punktu czasowego oceny do programu OASIS 2 (online application for survival analysis 2).44 do generowania krzywych przeżywalności Kaplana–Meiera oraz statystycznej analizy log-rank. Alternatywnie śmiertelność można obliczyć jako procent martwych nicieni w poszczególnych punktach czasowych i porównać pomiędzy grupami za pomocą nieparzystego dwustronnego testu t Studenta test t-Studenta (dla dwóch grup) lub jednoczynnikową analizę wariancji (ANOVA) z następującym testem wielokrotnych porównań Tukeya (dla trzech lub więcej grup).
UWAGA: Nicienie wykazujące pęknięcie lub wykluwanie matrycyjne (tzw. bagging) są klasyfikowane jako martwe w momencie zaobserwowania tego zjawiska, aby odzwierciedlić ogólną przeżywalność. Nicienie z pęknięciem oraz nicienie z wykluwaniem matrycyjnym zostały uwzględnione w przedstawionych poniżej reprezentatywnych krzywych przeżywalności. Liczbę nicieni ocenzurowanych w różnych warunkach odnotowano w Tabela uzupełniająca 1. Robaki, które uciekną z płytki testowej, wyschną na ściance płytki lub będą nieobecne podczas oceny, są traktowane jako obserwacje cenzurowane i wykluczane z późniejszej analizy przeżywalności. Zwierzęta z upośledzoną ruchomością, ale wykazujące reakcję na delikatny dotyk, są oceniane jako żywe. Robaki wykazujące wady składania jaj przed rozpoczęciem testu są wykluczane z analizy przeżywalności. - Wszystkie testy stresu należy przeprowadzić w co najmniej trzech niezależnych powtórzeniach biologicznych w różne dni. Każde powtórzenie biologiczne składa się z czterech technicznych powtórzeń na płytkach z nicieniami. Dane z powtórzeń technicznych w obrębie jednego powtórzenia biologicznego są łączone w celu wygenerowania jednej krzywej przeżywalności. Niezależne powtórzenia biologiczne są analizowane osobno i przedstawiane jako indywidualne zbiory danych, a nie dane połączone. Każde powtórzenie biologiczne jest wykonywane przy użyciu niezależnie przygotowanych podłoży i świeżych partii związków indukujących stres. Protokoły opisane powyżej stanowią etapy generowania jednego powtórzenia biologicznego dla każdego testu stresu. Samce są wykluczane; w niniejszym protokole uwzględnia się i analizuje wyłącznie obojnak i hermafrodyty.
UWAGA: Wilgotność w inkubatorach w niniejszym protokole nie jest kontrolowana, natomiast temperatura inkubacji jest ściśle utrzymywana na poziomie temperatury eksperymentalnej. Opisane tutaj doświadczenia nie były przeprowadzane w warunkach zaślepienia, a osoba przeprowadzająca eksperyment miała wiedzę na temat genotypu i warunków traktowania podczas oceny wyników. W celu zminimalizowania potencjalnego błędu oceny zaleca się stosowanie metody zaślepienia w odniesieniu do genotypu i warunków traktowania, jeśli jest to wykonalne.
Wyniki
Korzystając z opisanych powyżej protokołów, w pierwszej kolejności wykorzystaliśmy nicienie szczepu dzikiego (WT) N2, aby zbadać przeżywalność organizmów przy zastosowaniu szeregu rosnących dawek czterech stresorów: stresu cieplnego, stresu retikulum endoplazmatycznego (ER), stresu mitochondrialnego oraz stresu oksydacyjnego. Następnie wykorzystaliśmy szczep z ablacją neuronów, aby przetestować rolę interneuronu RIC w odporności na stres w porównaniu z nicieniami WT.
Miareczkowanie dawki stresu cieplnego i porównanie odporności na stres cieplny w szczepie z ablacją RIC
W temperaturze fizjologicznej wynoszącej 20 °C, nicienie typu WT żyją średnio 20,67 dni (Rysunek 2A). Zgodnie z etapami testu stresu termicznego przedstawionymi w sekcji 3.1, zmierzyliśmy przeżywalność WT w podwyższonych temperaturach 30, 35 i 37 °C wraz ze wzrostem dawek stresu cieplnego. Dane wykazały, że nicienie typu WT żyją średnio 3,11 dnia przy 30 °C (Rycina 2B); natomiast nicienie WT przeżyły średnio 5,36 h przy 35 °C oraz 4,89 h przy 37 °C (Rysunek 2C). Wyniki te wskazały na istotnie zmniejszoną przeżywalność w wyższych temperaturach. Analizy statystyczne i P wartości przedstawiono szczegółowo w Tabela uzupełniająca 2 oraz legendy do rycin. Dane te dostarczają badaczom wiarygodnych informacji pozwalających na wybór optymalnej temperatury stresu oraz skali czasowej podczas projektowania testu stresu cieplnego. Badacze mogą wykorzystać 30 °C w celu zbadania przeżywalności nicieni w ciągu kilku dni podczas stosowania 35 °C lub 37 °C w celu szybszej oceny przeżywalności nicieni w ciągu kilku godzin.
Następnie zastosowaliśmy temperaturę 35 °C jako warunek stresu cieplnego, aby ocenić wpływ ablacji neuronów RIC na przeżywalność w porównaniu z zwierzętami WT. Temperatura ta zapewnia umiarkowany poziom stresu cieplnego, unikając ekstremalnego nasilenia występującego przy 37 °C, a jednocześnie wywołuje silniejszą odpowiedź niż 30 °C, co pozwala na przeprowadzenie pełnego testu przeżywalności w ciągu około 12 h.
Neurony RIC stanowią parę oktopaminergicznych interneuronów zlokalizowanych w regionie głowy C. elegans9,10. Szczep z ablacją neuronów RIC został wygenerowany poprzez ekspresję genu kaspazy-3 sterowaną przez promotor genu tbh-1 i był wykorzystywany wcześniej45. W skrócie, promotor tbh-1 został wprowadzony do plazmidów donorowych mec-18p::caspase-3 (p12)::nz oraz mec-18p cz::caspase-3 (p17) w celu zastąpienia promotora mec-18. Trzy konstrukty: tbh-1p::caspase-3(p12)::nz (20 ng/µL), tbh-1p::cz::caspase-3(p17) (20 ng/µL) oraz tbh-1p::GFP (20 ng/µL, jako marker neuronów RIC wskazujący, czy neurony RIC zostały usunięte) zostały współwstrzyknięte wraz z fluorescencyjnym markerem współwstrzykiwania myo-3p::GFP (5 ng/µL) do szczepu dzikiego typu N2 w celu wygenerowania szczepów z genetyczną ablacją RIC. Trzy niezależnie wstrzyknięte linie były utrzymywane jako szczepy z ablacją neuronów RIC. Linie transgeniczne utrzymywano poprzez selekcję nicieni z fluorescencyjnym markerem myo-3p::GFP. Wyniki z każdego testu stresowego zostały zwalidowane na dwóch lub trzech niezależnych liniach. Prawidłową ablację neuronów RIC potwierdzono brakiem fluorescencji tbh-1p::GFP w szczepie z ablacją neuronów RIC, podczas gdy ekspresję GFP zaobserwowano w neuronach RIC kontrolnego szczepu reporterowego tbh-1p::GFP (Supplementary Figure 1).
Wykorzystując kroki testu stresu cieplnego przedstawione w sekcji 3.1, zbadaliśmy przeżywalność szczepów WT oraz szczepów z ablacją neuronów RIC w warunkach stresu cieplnego w temperaturze 35 °C (Rysunek 2D). Stosując kroki analizy danych przedstawione w sekcjach 4.1–4.3, wyniki wykazały, że nie stwierdzono istotnej różnicy między szczepem z ablacją neuronów RIC a grupą kontrolną typu dzikiego N2 w warunkach stresu cieplnego w temperaturze 35 °C (Rysunek 2D).
Wszystkie reprezentatywne wyniki testów stresu cieplnego zostały uzyskane z trzech niezależnych powtórzeń biologicznych przeprowadzonych w różne dni (Rysunek uzupełniający 2). Liczba zwierząt (wartość n podana w legendach do rysunków) wnosząca wkład w krzywą przeżywalności przedstawioną w wynikach reprezentatywnych i na rysunkach uzupełniających stanowi sumaryczną liczbę z czterech powtórzeń technicznych w obrębie jednego powtórzenia biologicznego.
Miareczkowanie dawki stresu retikulum endoplazmatycznego i porównanie odporności na stres retikulum endoplazmatycznego w szczepie z ablacją RIC
Korzystając z etapów analizy stresu retikulum endoplazmatycznego przedstawionych w sekcji 3.2, zmierzono przeżywalność typu WT przy stężeniach 25, 50, 100 lub 200 µg/mL tunicamycyna jako czynnik zwiększający poziom stresu retikulum endoplazmatycznego (Rycina 2E). W porównaniu do średniego czasu przeżycia bez stresu fizjologicznego, wynoszącego około 20 dni (Rycina 2A), średni czas przeżycia nicieni typu dzikiego wynosi 10,74 dnia przy 25 µg/mL, 9,13 dnia przy 50 µg/mL, 9,3 dni przy 100 µg/mL, oraz 8,93 dnia przy 200 µg/mL tunicamycyna (Rycina 2E). Zwiększenie dawki tunikamycyny nie spowodowało istotnej zmiany przeżywalności przy tych dawkach. Analizy statystyczne i P wartości przedstawiono szczegółowo w Tabela uzupełniająca 2 or legendy do rycin. Dane te dostarczają badaczom wiarygodnych informacji niezbędnych do wyboru optymalnej dawki tunicamycyny w teście stresu retikulum endoplazmatycznego.
Następnie zastosowaliśmy tunicamycynę w stężeniu 50 µg/mL, będącym dawką pośrednią spośród testowanych dawek, jako warunek stresu retikulum endoplazmatycznego (ER), aby ocenić wpływ ablacji neuronów RIC na przeżywalność w porównaniu z zwierzętami typu WT. Wykorzystując etapy testu stresu ER przedstawione w sekcji 3.2, zbadaliśmy przeżywalność szczepów WT oraz szczepów z ablacją neuronów RIC w warunkach stresu ER indukowanego tunicamycyną w stężeniu 50 µg/mL (Rysunek 2F). Zgodnie z etapami analizy danych przedstawionymi w sekcjach 4.1–4.3, krzywa przeżywalności szczepu z ablacją neuronów RIC wykazała istotne przesunięcie w prawo względem kontroli WT N2, co wskazuje na wydłużenie przeżywalności w warunkach stresu ER. Wynik ten sugeruje, że ablacja neuronów RIC zwiększa odporność na stres ER (Rysunek 2F).
Wszystkie reprezentatywne wyniki analiz stresu retikulum endoplazmatycznego uzyskano w trzech niezależnych powtórzeniach biologicznych przeprowadzonych w różne dni (Rycina uzupełniająca 3)Liczba zwierząt (wartość n podana w legendach do rysunków) uczestniczących Krzywa przeżycia przedstawiona w reprezentatywnych wynikach oraz na rysunkach uzupełniających odzwierciedla zagregowaną liczbę z czterech powtórzeń technicznych w obrębie jednego powtórzenia biologicznego.
Miareczkowanie dawki stresu mitochondrialnego i porównanie odporności na stres mitochondrialny w szczepie z ablacją RIC
Stosując etapy analizy stresu mitochondrialnego przedstawione w sekcji 3.3, zmierzyliśmy przeżywalność WT przy 5, 10, 20, 40 lub 80 µg/mL antymycyny A jako rosnące dawki stresu mitochondrialnego (Rycina 2G). Krzywe przeżywalności nicieni WT wykazały istotne zmiany w sposób zależny od dawki. W porównaniu do fizjologicznej średniej przeżywalności bez stresu wynoszącej około 20 dni (Rycina 2A), średnia przeżywalność nicieni typu dzikiego wynosi 4,96 dnia przy 5 µg/mL, 3,77 dnia przy 10 µg/mL, 2,68 dnia przy 20 µg/mL, 1,65 dnia przy 40 µg/mL i 1,4 dnia przy 80 µg/mL antymycyny A (Rycina 2G). Analizy statystyczne i wartości P są szczegółowo przedstawione w Tabeli uzupełniającej 2 oraz w legendach do rycin. Dane te dostarczają badaczom wiarygodnych informacji niezbędnych do wyboru optymalnej dawki antymycyny A oraz ram czasowych przy projektowaniu analizy stresu mitochondrialnego. Badacze mogą wybrać stężenie 5 µg/mL, aby ocenić przeżywalność nicieni w ciągu około 10 dni, lub zastosować wyższe stężenia antymycyny A, aby uzyskać wyniki przeżywalności w ciągu kilku dni. Należy zauważyć, że wyższe stężenia przyspieszają śmiertelność, a niższe stężenia powodują bardziej stopniowy spadek przeżywalności, co pozwala na łatwiejsze rozróżnienie subtelnych różnic między szczepami.
Następnie wykorzystaliśmy 5 µg/mL antymycynę A, która wywołała silniejszy stopniowy spadek przeżywalności w badanych dawkach, przy czym warunki stresu mitochondrialnego posłużyły do oceny wpływu ablacji neuronów RIC na przeżywalność w porównaniu z zwierzętami WT. Wykorzystując etapy testu stresu mitochondrialnego przedstawione w sekcji 3.3, zbadaliśmy przeżywalność szczepów WT oraz szczepów z ablacją RIC w warunkach 5 µg/mL stres mitochondrialny indukowany antymycyną A (Rysunek 2H). Stosując kroki analizy danych przedstawione w sekcjach 4.1–4.3, wykazano, że krzywa przeżycia szczepu z ablacją neuronów RIC uległa znacznemu przesunięciu w prawo w stosunku do kontroli WT N2, co wskazuje na wydłużone przeżycie w warunkach stresu mitochondrialnego. Wynik ten sugeruje, że ablacja neuronów RIC zwiększa odporność na stres mitochondrialny (Rysunek 2H).
Wszystkie reprezentatywne wyniki testów stresu mitochondrialnego zostały uzyskane z trzech niezależnych powtórzeń biologicznych przeprowadzonych w różne dni (Rycina uzupełniająca 4). Liczba zwierząt (wartość n podana w opisach ryciny) wnosząca do krzywej przeżywalności przedstawionej w wynikach reprezentatywnych i rycinach uzupełniających stanowi sumaryczną liczbę z czterech powtórzeń technicznych w ramach jednego powtórzenia biologicznego.
Miareczkowanie dawki stresu oksydacyjnego i porównanie odporności na stres oksydacyjny w szczepie z ablacją RIC
Korzystając z etapów analizy stresu oksydacyjnego przedstawionych w sekcji 3.4, zmierzono przeżywalność szczepu WT przy stężeniach parakwatu wynoszących 2,5, 5, 10 lub 20 mM jako rosnące dawki stresu oksydacyjnego (Rycina 2I). Krzywe przeżywalności nicieni typu WT wykazały istotne zmiany w sposób zależny od dawki. W porównaniu do średniego czasu przeżycia wynoszącego około 20 dni w warunkach braku stresu fizjologicznego (Rysunek 2A), średni czas przeżycia nicieni typu dzikiego wynosi 4,92 dnia przy stężeniu parakwatu 2,5 mM, 3,81 dnia przy 5 mM, 2,93 dnia przy 10 mM i 2,81 dnia przy 20 mM (Rysunek 2I). Analizy statystyczne i P wartości zostały szczegółowo przedstawione w Tabela uzupełniająca 2 or legendy do rycin. Dane te dostarczają badaczom wiarygodnych informacji niezbędnych do wyboru optymalnej dawki parakwatu oraz ram czasowych przy projektowaniu testu stresu oksydacyjnego. Badacze mogą zastosować stężenie 2,5 mM w celu oceny przeżywalności nicieni w okresie około 10 dni lub użyć wyższych stężeń parakwatu, aby uzyskać wyniki przeżywalności w ciągu kilku dni. Należy zauważyć, że wyższe stężenia (10 mM i 20 mM) przyspieszają śmiertelność, natomiast stężenia pośrednie i niższe (2,5 mM i 5 mM) powodują bardziej stopniowy spadek przeżywalności, co pozwala na łatwiejsze rozróżnienie subtelnych różnic między szczepami.
Następnie wykorzystaliśmy 5 mM parakwatu, dawkę pośrednią spośród testowanych stężeń, jako warunek stresu oksydacyjnego, aby ocenić wpływ ablacji neuronów RIC na przeżywalność w porównaniu z zwierzętami typu WT. Wykorzystując etapy analizy stresu oksydacyjnego przedstawione w sekcji 3.4, zbadaliśmy przeżywalność zarówno szczepów WT, jak i szczepów z ablacją neuronów RIC w warunkach stresu oksydacyjnego indukowanego 5 mM parakwatem (Rycina 2J). Stosując etapy analizy danych przedstawione w sekcjach 4.1–4.3, wyniki wykazały, że nie stwierdzono istotnej różnicy między szczepem z ablacją neuronów RIC a kontrolną grupą typu dzikiego N2 w warunkach stresu oksydacyjnego indukowanego 5 mM parakwatem (Rycina 2J).
Wszystkie reprezentatywne wyniki testów stresu oksydacyjnego zostały uzyskane z trzech niezależnych powtórzeń biologicznych przeprowadzonych w różne dni (Rycina uzupełniająca 5). Liczba zwierząt (wartość n podana w opisach rycin) wnosząca do krzywej przeżywalności przedstawionej w wynikach reprezentatywnych i rycinach uzupełniających stanowi sumaryczną liczbę z czterech powtórzeń technicznych w obrębie jednego powtórzenia biologicznego.
Rozwiązywanie problemów
Powtarzającym się problemem w testach stresu oksydacyjnego indukowanego parakwatem jest ucieczka nicieni z płytek agarowych, co prowadzi do utraty zwierząt i zmniejszenia liczby osobników dostępnych do analizy. Aby częściowo ograniczyć to zachowanie46,47, na płytkach testowych można utworzyć barierę z kwasu palmitynowego lub inny „płot”, choć poprawa jest niewielka i nie eliminuje problemu całkowicie. Po zastosowaniu kwasu palmitynowego nie zaobserwowano istotnych różnic w stanie zdrowia i długości życia C. elegans48. Bariera z kwasu palmitynowego działa jako awersyjny „płot” na płytkach NGM, zapobiegając ucieczce C. elegans wywołanej stresem, głodzeniem lub patogenami. Aby zminimalizować ucieczkę nicieni, należy nanieść 30 µL kwasu palmitynowego o stężeniu 10 mg/mL w etanolu (należy dodać 0,5 g kwasu palmitynowego do 50 mL 100% EtOH) na krawędź 35 mm płytki testowej, a następnie delikatnie zakręcić płytką, aby utworzyć ciągły pierścień. Po odparowaniu etanolu pierścień z kwasu palmitynowego działa jako bariera fizyczna i chemiczna ograniczająca ucieczkę nicieni. Nicienie, które giną w kontakcie z pierścieniem z kwasu palmitynowego, są cenzurowane i wykluczane z analizy przeżywalności.
OSTRZEŻENIE: Kwas palmitynowy oraz jego roztwór należy obsługiwać przy użyciu odpowiednich środków ochrony indywidualnej (PPE), w tym rękawic, fartucha laboratoryjnego i ochrony oczu; należy zachować ostrożność, aby uniknąć kontaktu ze skórą i oczami.
DOSTĘPNOŚĆ DANYCH
Dane dotyczące przeżywalności, na których oparto Ryc. 2 oraz ryciny uzupełniające, w tym dane dla wszystkich powtórzeń biologicznych i wyniki statystyczne, znajdują się w Rycina uzupełniająca 1–5, Tabela uzupełniająca 1–2 oraz Plik uzupełniający 1.
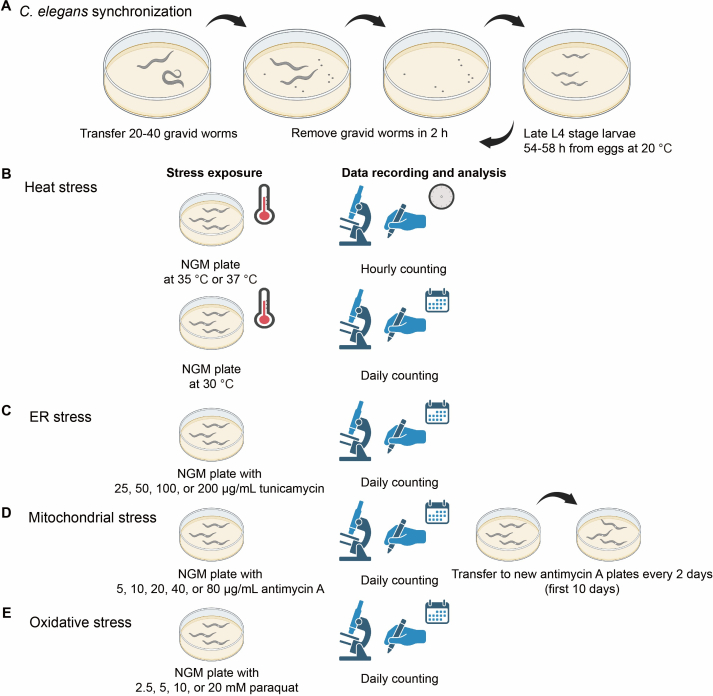
Rycina 1: Schemat przepływu testów stresowych. (A) Zsynchronizowane nicienie otrzymuje się poprzez zbieranie jaj zniesionych w ciągu 2 h przez nicienie ciążne. Zsynchronizowane nicienie są wykorzystywane we wszystkich testach stresowych i przenoszone na płytki stresowe lub do warunków stresowych w późnej fazie L4 po 54-58 h rozwoju od stadium jaj w 20 °C. (B) W teście stresu termicznego zsynchronizowane nicienie przenosi się na płytki NGM w inkubatorze w temperaturze 35 °C lub 37 °C, a liczbę martwych nicieni ocenia się co godzinę. W przypadku testu stresu termicznego w inkubatorze 30 °C martwe nicienie ocenia się codziennie. (C) W teście stresu retikulum endoplazmatycznego (ER) zsynchronizowane nicienie przenosi się na płytki NGM zawierające 25, 50, 100 lub 200 µg/mL tunikamycyny. Martwe nicienie ocenia się codziennie. (D) W teście stresu mitochondrialnego zsynchronizowane nicienie przenosi się na płytki NGM zawierające 5, 10, 20, 40 lub 80 µg/mL antymycyny A, a przeżywalność ocenia się poprzez codzienną analizę. Aby zapobiec zakłóceniom spowodowanym przez potomstwo, nicienie przenosi się na świeże płytki z antymycyną A co dwa dni przez pierwsze 10 dni testu. (E) W teście stresu oksydacyjnego zsynchronizowane nicienie są przenoszone na płytki NGM zawierające 2,5, 5, 10 lub 20 mM parakwatu, a przeżywalność ocenia się poprzez codzienną analizę. Odporność na stres ocenia się poprzez porównanie krzywych przeżywalności Kaplana-Meiera wygenerowanych dla każdego testu. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
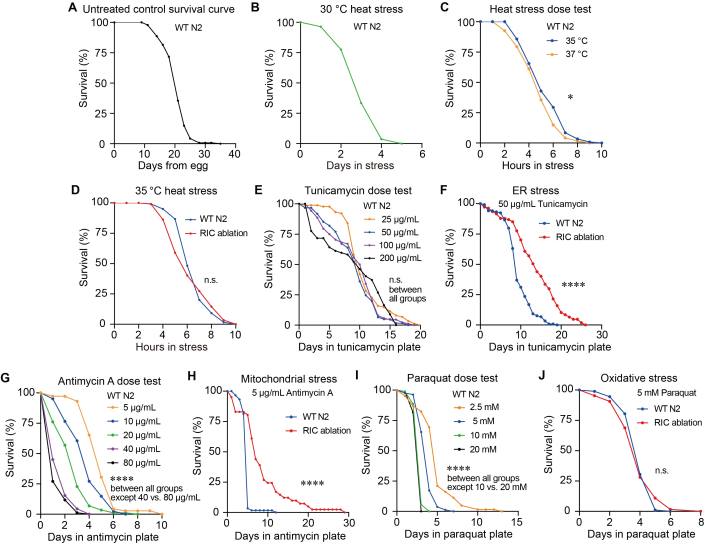
Rycina 2Miareczkowanie dawki stresu cieplnego, retikulum endoplazmatycznego, mitochondrialnego i oksydacyjnego oraz porównanie odporności na stres u osobników z ablacją neuronów RIC szczep (A) Reprezentatywna krzywa przeżycia Kaplana–Meiera dla szczepu WT N2 w warunkach braku stresu (n = 141, średni czas przeżycia = 20,67 dnia). (B) Reprezentatywny Krzywa przeżycia Kaplana-Meiera szczepu WT N2 w warunkach 30 °C stres cieplny (n = 111, średni czas przeżycia = 3,11 dnia). (C) Reprezentatywna krzywa przeżycia Kaplana–Meiera szczepu WT N2 w warunkach 35 °C i 37 °C stres cieplny (n = 119, 121); test log-rank, P = 0,0244, * oznacza P < 0.05. (D) Reprezentatywna krzywa przeżycia Kaplana–Meiera dla szczepu WT N2 oraz szczepu z ablacją neuronów RIC w warunkach 35 °C stres cieplny (n = 117, 120); test log-rank, P = 0,4972, n.s. oznacza brak istotnej różnicy. Jako kontrolę wykorzystano WT N2. (E) Krzywe przeżywalności w zależności od dawki dla szczepu WT N2 przy zwiększających się stężeniach tunicamycyny (n = 88, 61, 88, 67); test log-rank, P = 0.6472 (25 µg/mL kontra 100 µg/mL), P = 0.1473 (25 µg/mL kontra 50 µg/mL), P = 0.6581 (50 µg/mL kontra 200 µg/mL), P = 1 (25 µg/mL kontra 200 µg/mL; 50 µg/mL kontra 100 µg/mL; 100 µg/mL wobec 200 µg/mL), n.s. oznacza brak istotnej różnicy. (F) Reprezentatywna krzywa przeżycia Kaplana–Meiera dla WT N2 i RIC szczep z ablacją neuronów w warunkach 50 µg/mL stres ER indukowany tunikamycyną (n = 119, 107); test log-rank, **** oznacza P < 0.0001. (G) Reprezentatywne krzywe przeżycia Kaplana-Meiera dla szczepu WT N2 traktowanego rosnącymi stężeniami antymycyny A (n = 72, 81, 88, 91, 85); test log-rank, P = 0.000038 (5 µg/mL kontra 10 µg/mL), P = 0.00002 (10 µg/mL kontra 20 µg/mL), P = 1.60 × 10⁻8 (20 µg/mL kontra 40 µg/mL), P < 0.0001 (5 µg/mL kontra 20 µg/mL; 5 µg/mL kontra 40 µg/mL; 5 µg/mL kontra 80 µg/mL; 10 µg/mL kontra 40 µg/mL; 10 µg/mL kontra 80 µg/mL; lub 20 µg/mL kontra 80 µg/mL), P = 0.189 (40 µg/mL kontra 80 µg/mL), **** oznacza P < 0.0001. (H) Reprezentatywna krzywa przeżycia Kaplana–Meiera dla szczepu WT N2 oraz szczepu z ablacją neuronów RIC w warunkach 5 µg/mL stres mitochondrialny indukowany antymycyną A (n = 59, 41); test log-rank, P = 3,2 × 10⁻9, **** oznacza P < 0.0001. (I) Reprezentatywne krzywe przeżycia Kaplana–Meiera dla szczepu WT N2 przy różnych dawkach parakwatu (n = 62, 81, 88, 93); test log-rank, P = 1.80 × 10⁻7 (2,5 mM w porównaniu z 5 mM), P < 0,0001 (2,5 mM v.s. 10 mM; 2,5 mM v.s. 20 mM; 5 mM v.s. 10 mM; 5 mM v.s. 20 mM), P = 0,1445 (10 mM w stosunku do 20 mM), **** oznacza P < 0.0001. (J) Reprezentatywne krzywe przeżycia Kaplana-Meiera dla szczepu WT N2 oraz szczepu z ablacją neuronów RIC w warunkach stresu oksydacyjnego wywołanego przez 5 mM parakwatu (n = 92, 64); test log-rank, P = 0,9817, n.s. oznacza brak istotnej różnicy. Wszystkie eksperymenty przeprowadzono w trzech niezależnych powtórzeniach biologicznych. Na rysunku przedstawiono reprezentatywne wyniki z jednego powtórzenia biologicznego. Każda replika biologiczna składa się z czterech płytek z nicieniami stanowiących repliki techniczne. Liczba zwierząt (n) biorących udział w Krzywa przeżycia na tym rysunku reprezentuje zagregowaną liczbę z czterech powtórzeń technicznych w ramach jednej próby biologicznej. Niezależne powtórzenia biologiczne analizowano osobno, a nie w sposób zagregowany, i przedstawiono jako indywidualne zestawy danych na Rysunkach Uzupełniających 2–5. Istotność oceniono za pomocą testu log-rank, porównując rozkłady przeżywalności. Szczegółowe dane statystyczne P wartości, średni czas przeżycia oraz błąd standardowy (S. E.) dla powtórzeń technicznych zostały zamieszczone w Tabeli uzupełniającej 2. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
Rycina uzupełniająca 1: Brak fluorescencji tbh-1p::GFP w szczepie z ablacją neuronów RIC, podczas gdy ekspresja GFP była obserwowana w neuronach RIC kontrolnego szczepu reporterowego tbh-1p::GFP. (A) Obrazy fluorescencyjne szczepu z ablacją neuronów RIC tbh-1p::caspase-3(p12)::nz; tbh-1p::cz::caspase-3(p17); tbh-1p::GFP; myo-3p::GFP oraz kontrolnego szczepu reporterowego tbh-1p::GFP OH16150 tbh-1p::GFP; tdc-1p::mCherry. Robaki w późnym stadium L4 obrazowano przy użyciu wzbudzenia 488 nm z czasem ekspozycji 800 ms dla kanału GFP i czasem ekspozycji 176 ms dla kanału pola jasnego. Żółte groty strzałek wskazują lokalizację neuronów RIC w kontrolnym szczepie reporterowym tbh-1p::GFP lub oczekiwaną lokalizację neuronów RIC, która jest nieobecna w szczepie z ablacją neuronów RIC. Sygnał tbh-1p::GFP nie został wykryty w lokalizacji neuronów RIC w szczepie z ablacją neuronów RIC, natomiast sygnał tbh-1p::GFP był obserwowany w neuronach RIC kontrolnego szczepu reporterowego tbh-1p::GFP OH16150. Fluorescencja mięśni ściany ciała w szczepie z ablacją neuronów RIC pochodzi z myo-3p::GFP, będącego markerem współwstrzyknięcia. (A) n = 14 dla OH16150; n = 20 dla szczepu z ablacją neuronów RIC. (B, C) Reprezentatywne wyniki z dwóch innych powtórzeń biologicznych. Robaki w późnym stadium L4 obrazowano przy użyciu wzbudzenia 488 nm z czasem ekspozycji 1007 ms (B) lub 1998 ms (C) dla kanału GFP i czasem ekspozycji 176 ms (B oraz C) dla kanału pola jasnego. (B) n = 8 dla OH16150; n = 17 dla szczepu z ablacją neuronów RIC. (C) n = 14 dla OH16150; n = 13 dla szczepu z ablacją neuronów RIC . Kliknij tutaj, aby pobrać ten plik.
Rysunek uzupełniający 2: Powtórzenia biologiczne krzywych przeżywalności w warunkach braku stresu lub stresu cieplnego. (A, B) Krzywe przeżywalności Kaplana-Meiera z dwóch niezależnych powtórzeń biologicznych w warunkach braku stresu. (A) n = 123, średnia przeżywalność = 20.52 dni; (B) n = 130, średnia przeżywalność = 22.74 dni. (C, D) Krzywe przeżywalności Kaplana-Meiera szczepu WT N2 w warunkach stresu cieplnego 30 °C. Dane pochodzą z dwóch niezależnych powtórzeń biologicznych. (C) n = 130, średnia przeżywalność = 3.72 dni. (D) n = 98, średnia przeżywalność = 3.77 dni. (E, F) Krzywe przeżywalności Kaplana-Meiera w warunkach stresu cieplnego 35 °C lub 37 °C. Dane pochodzą z dwóch niezależnych powtórzeń biologicznych. (E) n = 118, 121; test log-rank, P = 0.0409, * oznacza P < 0.05, (F) n = 122, 120; test log-rank, P = 0.0251, * oznacza P < 0.05. (G, H) Krzywe przeżywalności Kaplana-Meiera dla szczepów WT N2 oraz szczepów z ablacją neuronów RIC w warunkach stresu cieplnego 35 °C. Dane pochodzą z dwóch niezależnych powtórzeń biologicznych. (G) n = 79, 76; test log-rank, P = 0.2217, n.s. oznacza brak istotnej różnicy. (H) n = 77, 81; test log-rank, P = 0.1881, n.s. oznacza brak istotnej różnicy. Istotność oceniano za pomocą testu log-rank poprzez porównanie rozkładów przeżywalności. Szczegółowe statystyczne wartości P, średnia przeżywalność oraz S. E. dla powtórzeń technicznych zostały zamieszczone w Tabeli uzupełniającej 2. Kliknij tutaj, aby pobrać ten plik.
Rycina uzupełniająca 3: Powtórzenia biologiczne krzywych przeżywalności w warunkach stresu ER. (A, B) Krzywe przeżywalności Kaplana-Meiera dla szczepu WT N2 przy różnych stężeniach tunikamycyny. Dane pochodzą z dwóch niezależnych powtórzeń biologicznych. (A) n = 110, 102, 100, 96; (B) n = 88, 77, 75, 69. Statystyczne P wartości pomiędzy różnymi grupami (A i B) są podane w Tabeli uzupełniającej 2. (C, D) Krzywe przeżywalności Kaplana-Meiera dla szczepu WT N2 oraz szczepu z ablacją neuronów RIC w warunkach stresu ER indukowanego 50 µg/mL tunikamycyny. Dane pochodzą z dwóch niezależnych powtórzeń biologicznych. (C) n = 104, 55; test log-rank, P = 0.012, * oznacza P < 0.05, (D) n = 85, 109; test log-rank, P = 0.0001, *** oznacza P < 0.001. Istotność oceniono za pomocą testu log-rank, porównując rozkłady przeżywalności. Szczegółowe statystyczne P wartości, średnia przeżywalność oraz S. E. pomiędzy powtórzeniami technicznymi są zawarte w Tabeli uzupełniającej 2. Kliknij tutaj, aby pobrać ten plik.
Rycina uzupełniająca 4: Powtórzenia biologiczne krzywych przeżywalności w warunkach stresu mitochondrialnego. (A, B) Krzywe przeżywalności Kaplana-Meiera szczepu WT N2 przy różnych stężeniach antymycyny A. Dane pochodzą z dwóch niezależnych powtórzeń biologicznych. (A) n = 71, 80, 81, 88, 90. (B) n = 71, 85, 83, 88, 87. Statystyczne wartości P dla różnych grup (A i B) są podane w Tabeli uzupełniającej 2. (C, D) Krzywe przeżywalności Kaplana-Meiera szczepu WT N2 oraz szczepu z ablacją neuronów RIC w warunkach stresu mitochondrialnego indukowanego antymycyną A. Dane pochodzą z dwóch niezależnych powtórzeń biologicznych. (C) n = 105, 78; test log-rank, P = 0,000004, **** oznacza P < 0,0001. (D) n = 89, 73; test log-rank, **** oznacza P < 0,0001. Istotność oceniono za pomocą testu log-rank poprzez porównanie rozkładów przeżywalności. Szczegółowe statystyczne wartości P, średnia przeżywalność oraz błąd standardowy (S. E.) dla powtórzeń technicznych są zawarte w Tabeli uzupełniającej 2. Kliknij tutaj, aby pobrać ten plik.
Rysunek uzupełniający 5: Powtórzenia biologiczne krzywych przeżywalności w warunkach stresu oksydacyjnego. (A, B) Krzywe przeżywalności Kaplana-Meiera szczepu WT N2 przy różnych stężeniach parakwatu. Dane pochodzą z dwóch niezależnych powtórzeń biologicznych. (A) n = 38, 63, 60, 31. (B) n = 55, 77, 86, 107. Statystyczne P wartości pomiędzy różnymi grupami (A i B) są podane w Tabeli uzupełniającej 2. (C, D) Krzywe przeżywalności Kaplana-Meiera szczepu WT N2 oraz szczepu z ablacją neuronów RIC w warunkach stresu oksydacyjnego indukowanego przez 5 mM parakwatu. Dane pochodzą z dwóch niezależnych powtórzeń biologicznych. (C) n = 87, 82; test log-rank, P = 0.2629, n.s. oznacza brak istotnej różnicy. (D) n = 116, 118; test log-rank, P = 0.1184, n.s. oznacza brak istotnej różnicy. Istotność oceniono za pomocą testu log-rank poprzez porównanie rozkładów przeżywalności. Szczegółowe statystyczne P wartości, średnia przeżywalność oraz S. E. pomiędzy powtórzeniami technicznymi są zawarte w Tabeli uzupełniającej 2. Kliknij tutaj, aby pobrać ten plik.
Tabela uzupełniająca 1: Podsumowanie liczby nicieni uwzględnionych we wszystkich krzywych przeżywalności. Tabela zawiera podsumowanie początkowej liczby nicieni oraz liczby osobników z pękniętą osłoną, zapakowanych w woreczki oraz ocenzurowanych. Kliknij tutaj, aby pobrać ten plik.
Tabela uzupełniająca 2: Szczegółowe analizy statystyczne wszystkich krzywych przeżycia, w tym wartości P, średniego przeżycia oraz błędu standardowego (S. E.). Kliknij tutaj, aby pobrać ten plik.
Plik uzupełniający 1: Dane wspierające wyniki niniejszego badania.
Obejmuje weryfikację pomyślnej ablacji neuronów RIC oraz wyniki wszystkich powtórzeń biologicznych stanowiące podstawę danych przedstawionych na głównych rysunkach. Prosimy kliknąć tutaj, aby pobrać ten plik.
Dyskusja
W niniejszym opracowaniu opisano zestandaryzowane kroki pozwalające na odtwarzalne przeprowadzanie testów stresu cieplnego, stresu retikulum endoplazmatycznego, stresu mitochondrialnego oraz stresu oksydacyjnego u C. elegans (Rysunek 1). Zbadano wpływ rosnących dawek wszystkich czterech czynników stresogennych na przeżywalność nicieni typu dzikiego WT (Rysunek 2). Przedstawiono również przykład badania roli interneuronu w odporności na wszystkie cztery rodzaje stresu z wykorzystaniem szczepu z ablacją neuronów (Rysunek 2).
Aby pomyślnie zastosować przedstawiony tutaj protokół testu stresowego, w procesie należy uwzględnić kilka kluczowych kwestii. Ze względu na zmienność między laboratoriami wynikającą z różnic w m.in. proszku agarowym, podłożu, temperaturze otoczenia i wilgotności, zaleca się miareczkowanie każdego stresora lub stężenia związku indukującego stres zgodnie z naszymi krokami miareczkowania opisanymi w sekcjach Protokół i Wyniki. Odpowiednie warunki stresowe powinny wywołać powtarzalną, pośrednią odpowiedź przeżywalności u nicieni kontrolnych typu dzikiego, zapewniając wystarczający zakres dynamiczny do wykrycia zarówno zwiększonej, jak i zmniejszonej odporności na stres. Należy unikać warunków skutkujących niemal całkowitym przeżyciem lub niemal całkowitą śmiertelnością. Następnie niezbędne jest zapewnienie, aby nicienie były zsynchronizowane do tego samego stadium rozwojowego we wszystkich powtórzeniach biologicznych i technicznych. Synchronizację nicieni można przeprowadzić, stosując procedurę opisaną w sekcjach 2.1–2.3. Zaleca się synchronizację do późnego stadium L4. Rozpoczynanie testów stresowych w stadium L4 jest ugruntowaną praktyką w dziedzinie badań nad odpowiedzią stresową C. elegans, a liczne badania wykorzystywały zsynchronizowane zwierzęta w stadium L4 w testach odporności na stres oksydacyjny42, cieplny 40,43 oraz inne testy odporności na stres35. Rozpoczęcie w stadium L4 zapewnia synchronizację rozwojową przy jednoczesnym minimalizowaniu zmienności wprowadzonej przez różnice w wieku dorosłym i statusie rozrodczym, w tym początek produkcji jaj i retencję embrionów, co może wpływać na pomiary odporności na stres12,37,38,40. Ponieważ wszystkie grupy eksperymentalne w naszym badaniu były zsynchronizowane i traktowane w ten sam sposób, podejście to zapewnia spójną i odpowiednią podstawę do porównywania odporności na stres. Na koniec, jeśli nicienie były głodzone lub poddawane stresowi przed rozpoczęciem testu, ich potomstwo powinno być regenerowane przez kilka pokoleń w warunkach żywienia bez stresu, zanim zostaną one użyte jako nicienie grawidne do wytworzenia zsynchronizowanego potomstwa do testów stresowych.
Zmienność międzyeksperymentalna między niezależnymi powtórzeniami biologicznymi może wynikać z różnic w przygotowaniu i przechowywaniu płytek, w tym z czasu przechowywania płytek zawierających związki indukujące stres w temperaturze 4 °C oraz terminu wysiewu bakterii OP50. Aby poprawić powtarzalność eksperymentów przeprowadzanych w różne dni, krytyczne etapy przygotowania płytek powinny zostać zestandaryzowane zgodnie z opisanym protokołem sporządzania płytek NGM w sekcji 1.1, płytek do indukcji stresu ER tunicamycyną w sekcji 3.2.1, płytek do indukcji stresu mitochondrialnego antymycyną A w sekcji 3.3.1 oraz płytek do indukcji stresu oksydacyjnego parakwatem w sekcji 3.4.1. W szczególności płytki agarowe powinny być suszone w temperaturze pokojowej przez około 24 h po zalaniu, a następnie obsiane szczepem OP50 po całkowitym stężeniu agaru. Wysiane szczepem OP50 płytki NGM powinny schnąć w temperaturze pokojowej przez kolejne 24 h przed przechowywaniem w temperaturze 4 °C. Optymalny czas suszenia może się różnić w zależności od zastosowania płytek wentylowanych lub niewentylowanych oraz lokalnych warunków środowiskowych, takich jak temperatura i wilgotność. W związku z tym każde laboratorium powinno zoptymalizować ten etap dla własnych warunków i zachować jednolity czas suszenia we wszystkich niezależnych powtórzeniach biologicznych, aby zapewnić powtarzalność. Płytki do testów stresu powinny zostać wykorzystane w ciągu jednego tygodnia od przygotowania, aby zminimalizować degradację związków indukujących stres oraz nadmierny wzrost bakterii, co w obu przypadkach może wpływać na spójność wyników testów.
Niniejszy protokół przedstawił również przykład badania roli interneuronu w odpowiedzi na stres wywołany przez wszystkie cztery stresory z wykorzystaniem szczepu z ablacją neuronów (Rycina 2). Promotor genu specyficznie eksprymowanego w neuronie może zostać wykorzystany do sterowania ekspresją kaspazy-3 i ablacji docelowego neuronu. W tym przypadku w celu ablacji neuronów RIC zastosowano promotor tbh-1, który steruje ekspresją genów specyficznie w neuronach RIC. Promotor tbh-1 został szeroko zwalidowany w kontekście genetycznych manipulacji skierowanych do RIC i jest rutynowo stosowany do specyficznej dla komórek ekspresji, reskuowania, obrazowania wapnia oraz wyciszania neuronalnego45,49,50. Zgodnie z opisaną charakterystyką tbh-1, zaobserwowano ekspresję tbh-1p::GFP ograniczoną do neuronów RIC i nie wykryto fluorescencji w innych tkankach (Rycina uzupełniająca 1). Nie badano specyficznie wielkości lęgu ani morfologii linii zarodkowej w szczepie z ablacją neuronów RIC; jednak nie zaobserwowano oczywistych defektów fizjologicznych w szczepie z ablacją neuronów RIC. W doniesieniach wskazano, że reporter tbh-1 wykazuje dodatkową ekspresję w komórkach osłonki gonadalnej, które są komórkami somatycznymi układu rozrodczego51,52. Choć nie możemy całkowicie wykluczyć możliwości niskopoziomowej ekspresji poza neuronami RIC, uważamy za mało prawdopodobne, aby ekspresja tbh-1 poza RIC odpowiadała za zwiększoną odporność na stres zaobserwowaną u zwierząt z ablacją neuronów RIC. Mimo że metoda ta jest dobrze ugruntowana49,50, jest ona ograniczona przez możliwą ekspresję w komórkach poza docelowym neuronem. Niezbędne są inne metodologie potwierdzające rolę neuronu, na przykład monitorowanie aktywności neuronów w odpowiedzi na stresory lub ocena roli neuroprzekaźników uwalnianych z tego neuronu w testach stresu.
C. elegans testy przeżywalności są potężnymi narzędziami do pomiaru odporności na stres ze względu na stosunkowo krótką długość życia nicieni (około 20 do 30 dni, Rycina 2) oraz szybką śmiertelność indukowaną przez wiele stresorów, która zazwyczaj następuje w ciągu godzin lub dni (Rycina 2). Jednak ograniczeniem testów przeżywalności jest to, że wykorzystują one binarny punkt końcowy żywy/martwy, a zatem nie rejestrują postępującego pogorszenia fizjologicznego, które zachodzi podczas ekspozycji na stres. Uzupełniające testy, takie jak testy miotania (thrashing assays) lub zautomatyzowane pomiary lokomocji (prędkości) wykonywane w wielu punktach czasowych, mogą dostarczyć dodatkowych informacji o stopniowej utracie funkcji nerwowo-mięśniowych podczas stresu. Kolejnym ograniczeniem jest to, że śmierć określa się na podstawie braku reakcji na delikatną stymulację fizyczną, co może prowadzić do niedoszacowania żywotności u zwierząt z poważnie upośledzoną lokomocją. Ponadto ocena manualna wprowadza zmienność zależną od obserwatora oraz potencjalną stronniczość. Aby zminimalizować te efekty, cała ocena w ramach niezależnego powtórzenia biologicznego powinna być przeprowadzona przez tego samego badacza, który nie powinien znać genotypu ani warunków eksperymentalnych (ślepa próba). Spójne warunki oceny, w tym stosowanie tego samego powiększenia mikroskopu i ustawień oświetlenia w każdym punkcie czasowym, są również ważne dla zmniejszenia zmienności między płytkami i w różnych eksperymentach. W reprezentatywnych wynikach przedstawiliśmy przykład, w którym szczep z ablacją neuronów RIC wykazał zwiększoną odporność na stres retikulum endoplazmatycznego i stres mitochondrialny, ale nie na stres cieplny i stres oksydacyjny, w porównaniu z nicieniami typu dzikiego (Rycina 2). Różnica w przeżywalności pod wpływem dwóch z czterech stresorów sama w sobie nie ustanawia specyficznej dla szlaku roli neuronu; wniosek biologiczny w niniejszym manuskrypcie jest przedstawiony jako demonstracja metody i obserwacja, a nie jako twierdzenie mechanistyczne.
Poza opisanymi tutaj testami przeżywalności w warunkach stresu, opracowano kilka platform zautomatyzowanych do pomiaru przeżywalności C. elegans. Zautomatyzowana ocena znacznie zwiększa przepustowość, umożliwia ciągłe lub wysokoczęstotliwościowe monitorowanie oraz redukuje błędy zależne od obserwatora i nakład pracy związany z ręcznym liczeniem53,54,55. Systemy te są szczególnie korzystne w przypadku wielkoskalowych przesiewów genetycznych lub chemicznych. Jednak większość metod zautomatyzowanych wnioskuje o śmierci na podstawie zaprzestania ruchu, co w zależności od algorytmu obrazowania i progu detekcji może prowadzić do błędnej klasyfikacji nicieni, które są w stanie spoczynku lub wykazują znacznie upośledzoną lokomocję pod wpływem stresu. Na automatyczną detekcję mogą wpływać również czynniki środowiskowe, w tym temperatura, kondensacja, zanieczyszczenia grzybicze lub bakteryjne oraz zmienność warunków hodowli, co może zakłócać detekcję nicieni i wpływać na pomiary przeżywalności. W przeciwieństwie do tego, ocena ręczna pozwala eksperymentatorowi na zidentyfikowanie nieprawidłowych fenotypów, takich jak bagging, wykluwanie wewnętrzne lub pęknięcia organizmów, które mogą wymagać specyficznych kryteriów oceny lub cenzurowania danych. Chociaż ocena ręczna jest bardziej pracochłonna i podatna na zmienność związaną z obserwatorem, ograniczenia te można zminimalizować poprzez ślepą ocenę, ustandaryzowane kryteria punktacji oraz konsekwentne prowadzenie pomiarów przez tego samego badacza. W konsekwencji, ręczne i zautomatyzowane testy przeżywalności mają odrębne zalety i ograniczenia, a wybór metody powinien być podyktowany celami eksperymentalnymi, wymaganą przepustowością oraz rodzajem zastosowanego modelu stresu.
Podsumowując, opisane tutaj metody stanowią zestandaryzowane i powtarzalne ramy do oceny odpowiedzi C. elegans na wiele stresorów środowiskowych, w tym stres cieplny, mitochondrialny, stres retikulum endoplazmatycznego (ER) oraz stres oksydacyjny. Ocena odporności na różnorodne stresory jest niezbędna, ponieważ zaburzenia genetyczne lub fizjologiczne mogą zwiększać odporność na jeden rodzaj stresu, jednocześnie zwiększając podatność na inny, co pozwala na ujawnienie zarówno specyficznych dla danego stresora, jak i wspólnych mechanizmów adaptacji do stresu. Testy te umożliwiają ilościowe porównania odporności na stres pomiędzy różnymi genotypami i warunkami doświadczalnymi i mogą być łatwo zastosowane do badania roli genów, neuronów i szlaków metabolicznych w utrzymywaniu odporności na stres oraz homeostazy fizjologicznej. W szerszym kontekście metody te stanowią solidną platformę do identyfikacji mechanizmów sprzyjających zdrowiu i przetrwaniu organizmu w niekorzystnych warunkach środowiskowych.
Oświadczenia
Autorzy nie deklarują żadnych konfliktów interesów.
Podziękowania
Badania opisane w niniejszej publikacji były wspierane finansowo przez Kansas Idea Network of Biomedical Research Excellence (K-INBRE, P20 GM103418), Center of Biomedical Research Excellence (COBRE, P20 GM113109) oraz Johnson Cancer Research Center na Kansas State University (Cancer Research Expansion Award) dla S.H.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Tunicamycyna | Sigma-Aldrich | T7765 | Induktor stresu retikulum endoplazmatycznego |
| Antymycyna A | Sigma-Aldrich | A8674 | Induktor stresu mitochondrialnego |
| Hydrat dichlorku metylowiologenu (paraquat) | Sigma-Aldrich | 856177 | Induktor stresu oksydacyjnego |
| Kwas palmitynowy | MP Biomedicals, LLC | 100905 | Hamować C. elegans ucieczka zachowanie |
| Cholesterol | MP Biomedicals, LLC | 101382 | Dla NGM |
| Chlorek wapnia | Thermo Fisher Scientific Inc. | C79-500 | Dla NGM |
| Siarczan magnezu bezwodny | Mallinckrodt Pharmaceuticals plc | 6070 | Dla NGM |
| Agar | Apex Chemicals Co., Ltd | 20-273 | Dla NGM |
| Pepton | Apex Chemicals Co., Ltd | 20-260 | Dla NGM |
| Fosforan potasu jednodstawny | Thermo Fisher Scientific Inc. | P285-3 | Dla NGM |
| Chlorek sodu | Thermo Fisher Scientific Inc. | S640-3 | Dla NGM |
| Fosforan potasu dwuzasadowy | Allied Chemical, General Chemical Division | Kod 2131 | Dla NGM |
| Szalki Petriego (35 mm) | Genesee Scientific, LLC | 32-103 | Płytki do testów stresowych |
| szalki Petriego (60 mm) | Genesee Scientific, LLC | 32-105 | Utrzymać C. elegans |
| mec-18p cz::caspase-3 (p17) | Addgene | TU#814 | |
| mec-18p::caspase-3 (p12)::nz | Addgene | TU#813 | |
| Inkubator z wytrząsarką z chłodzeniem New Brunswick Scientific (Eppendorf) C24KC | Eppendorf / New Brunswick Scientific | C24KC | 37 °C inkubator |
| DigiTherm® Inkubator grzejąco-chłodzący o pojemności 38 litrów | Tritech Research Inc. | DT2-MP-47L | 35 °C inkubator |
| Inkubator niskotemperaturowy Fisher Scientific Isotemp | Fisher Scientific | 146E | 30 °C inkubator |
| Inkubator chłodniczy SHELab SRI20P | Sheldon Manufacturing Inc. | SRI20P | 20 °C inkubator |
| Stereomikroskop badawczy Leica M165 FC | Leica Microsystems | M165 FC | Mikroskop do obrazowania |
| Stereomikroskop z zoomem ACCU-SCOPE 3075-DIA | ACCU-SCOPE Inc. | 3075-DIA | Mikroskop do manipulowania i oceny robaków |
| Microsoft Excel 2019 | Microsoft Corporation | Wykresy danych surowych | |
| GraphPad Prism 8.0.2 | GraphPad Software Inc. | Wizualizacja danych | |
| OASIS 2 | POSTECH, PMID: 27528229 | Analiza statystyczna | |
| BioRender | Science Suite Inc. | Schemat ilustracyjny | |
| ImageJ | National Institutes of Health (NIH) | Przetwarzanie obrazów | |
| Adobe Illustrator 2021 | Adobe Inc. | Składanie rycin układ | |
| typ dziki | Caenorhabditis Genetics Center, CGC | N2 | |
| tbh-1p::caspase-3(p12)::nz; tbh-1p::cz::caspase-3(p17); tbh-1p::GFP; myo-3p::GFP | domowej roboty | Ablacja RIC | |
| nIs107 [tbh-1::GFP] III. zfIs10 [tdc-1::mCherry] IV. Neurony RIC są oznakowane zarówno GFP, jak i mCherry | Caenorhabditis Genetics Center, CGC | OH16150 |
Bibliografia
- Morimoto RI, Santoro MG. Stress-inducible responses and heat shock proteins: new pharmacologic targets for cytoprotection. Nat Biotechnol. 1998;16(9):833-838.
- Hetz C, Chevet E, Oakes SA. Proteostasis control by the unfolded protein response. Nat Cell Biol. 2015;17(7):829-838.
- Blackwell TK, et al. SKN-1/Nrf, stress responses, and aging in Caenorhabditis elegans. Free Radic Biol Med. 2015;88(Pt B):290-301.
- Lamech LT, Haynes CM. The unpredictability of prolonged activation of stress response pathways. J Cell Biol. 2015;209(6):781-787.
- Balch WE, Morimoto RI, Dillin A, Kelly JW. Adapting proteostasis for disease intervention. Science. 2008;319(5865):916-919.
- Powers ET, et al. Biological and chemical approaches to diseases of proteostasis deficiency. Annu Rev Biochem. 2009;78:959-991.
- Soo SK, et al. Biological resilience and aging: activation of stress response pathways contributes to lifespan extension. Ageing Res Rev. 2023;88:101941.
- Ma Z, et al. The integrated stress response protects against ER stress but is not required for altered translation and lifespan from dietary restriction in Caenorhabditis elegans. Front Cell Dev Biol. 2023;11:1263344.
- Horikawa M, Sakamoto K. Fatty-acid metabolism is involved in stress-resistance mechanisms of Caenorhabditis elegans. Biochem Biophys Res Commun. 2009;390(4):1402-1407.
- Prahlad V, Cornelius T, Morimoto RI. Regulation of the cellular heat shock response in Caenorhabditis elegans by thermosensory neurons. Science. 2008;320(5877):811-814.
- Prahlad V, Morimoto RI. Neuronal circuitry regulates the response of Caenorhabditis elegans to misfolded proteins. Proc Natl Acad Sci U S A. 2011;108(34):14204-14209.
- Taylor RC, Dillin A. XBP-1 is a cell-nonautonomous regulator of stress resistance and longevity. Cell. 2013;153(7):1435-1447.
- Ozbey NP, et al. Tyramine acts downstream of neuronal XBP-1s to coordinate inter-tissue UPR(ER) activation and behavior in C. elegans. Dev Cell. 2020;55(6):754-770.e6.
- Durieux J, Wolff S, Dillin A. The cell-non-autonomous nature of electron transport chain-mediated longevity. Cell. 2011;144(1):79-91.
- Berendzen KM, et al. Neuroendocrine coordination of mitochondrial stress signaling and proteostasis. Cell. 2016;166(6):1553-1563.e10.
- Shaposhnikov M, et al. Lifespan and stress resistance in Drosophila with overexpressed DNA repair genes. Sci Rep. 2015;5:15299.
- Jia J, et al. A pair of dopamine neurons mediate chronic stress signals to induce learning deficit in Drosophila melanogaster. Proc Natl Acad Sci U S A. 2021;118(42):e2023674118.
- Solovev I, et al. Neuron-specific overexpression of core clock genes improves stress-resistance and extends lifespan of Drosophila melanogaster. Exp Gerontol. 2019;117:61-71.
- Shuai Y, Zhang Y, Gao L, Zhong Y. Stress resistance conferred by neuronal expression of dominant-negative Rac in adult Drosophila melanogaster. J Neurogenet. 2011;25(1-2):35-39.
- Williams KW, et al. Xbp1s in Pomc neurons connects ER stress with energy balance and glucose homeostasis. Cell Metab. 2014;20(3):471-482.
- Kim JG, Ea JY, Yoon BJ. Orexinergic neurons modulate stress coping responses in mice. Front Mol Neurosci. 2023;16:1140672.
- Jovaisaite V, Mouchiroud L, Auwerx J. The mitochondrial unfolded protein response, a conserved stress response pathway with implications in health and disease. J Exp Biol. 2014;217(Pt 1):137-143.
- Richter K, Haslbeck M, Buchner J. The heat shock response: life on the verge of death. Mol Cell. 2010;40(2):253-266.
- Hetz C, Zhang K, Kaufman RJ. Mechanisms, regulation and functions of the unfolded protein response. Nat Rev Mol Cell Biol. 2020;21(8):421-438.
- Finkel T. Signal transduction by reactive oxygen species. J Cell Biol. 2011;194(1):7-15.
- Hu C, et al. Heat shock proteins: biological functions, pathological roles, and therapeutic opportunities. MedComm (2020). 2022;3(3):e161.
- Lithgow GJ, White TM, Hinerfeld DA, Johnson TE. Thermotolerance of a long-lived mutant of Caenorhabditis elegans. J Gerontol. 1994;49(6):B270-6.
- Krshnan L, van de Weijer ML, Carvalho P. Endoplasmic reticulum-associated protein degradation. Cold Spring Harb Perspect Biol. 2022;14(12):a041247.
- Naidoo N. ER and aging-protein folding and the ER stress response. Ageing Res Rev. 2009;8(3):150-159.
- Heifetz A, Keenan RW, Elbein AD. Mechanism of action of tunicamycin on the UDP-GlcNAc:dolichyl-phosphate Glc-NAc-1-phosphate transferase. Biochemistry. 1979;18(11):2186-2192.
- Guo Y, et al. Mitochondrial dysfunction in aging. Ageing Res Rev. 2023;88:101955.
- Murphy MP. How mitochondria produce reactive oxygen species. Biochem J. 2009;417(1):1-13.
- Xu X, Pang Y, Fan X. Mitochondria in oxidative stress, inflammation and aging: from mechanisms to therapeutic advances. Signal Transduct Target Ther. 2025;10(1):190.
- Bus JS, Gibson JE. Paraquat: model for oxidant-initiated toxicity. Environ Health Perspect. 1984;55:37-46.
- Park HH, Jung Y, Lee SV. Survival assays using Caenorhabditis elegans. Mol Cells. 2017;40(2):90-99.
- Zevian SC, Yanowitz JL. Methodological considerations for heat shock of the nematode Caenorhabditis elegans. . 2014;68(3):450-457.
- Keith SA, Amrit FR, Ratnappan R, Ghazi A. The C. elegans healthspan and stress-resistance assay toolkit. . 2014;68(3):476-486.
- Senchuk MM, Dues DJ, Van Raamsdonk JM. Measuring oxidative stress in Caenorhabditis elegans: paraquat and juglone sensitivity assays. Bio Protoc. 2017;7(1):e2086.
- Golden NL, Plagens RN, Kim Guisbert KS, Guisbert E. Standardized for measuring induction of the heat shock response in Caenorhabditis elegans. J Vis Exp. 2020;(161):e61030.
- Bar-Ziv R, et al. Measurements of physiological stress responses in C. elegans. J Vis Exp. 2020;(159):e61001.
- Rahman M, et al. NemaLife chip: a micropillar-based microfluidic culture device optimized for aging studies in crawling C. elegans. Sci Rep. 2020;10(1):16190.
- Rafikova A, Hu Q, Kubiseski TJ. The SEM-4 transcription factor is required for regulation of the oxidative stress response in Caenorhabditis elegans. G3 (Bethesda). 2020;10(9):3379-3385.
- Liang J, et al. Chloride intracellular channel proteins respond to heat stress in Caenorhabditis elegans. PLoS One. 2017;12(9):e0184308.
- Han SK, et al. OASIS 2: online application for survival analysis 2 with features for the analysis of maximal lifespan and healthspan in aging research. Oncotarget. 2016;7(35):56147-56152.
- Kitto ES, et al. The hypoxic response extends lifespan through a bioaminergic and peptidergic neural circuit. eLife. 2025;14:RP107651.
- Miller DL, Roth MB. C. elegans are protected from lethal hypoxia by an embryonic diapause. Curr Biol. 2009;19(14):1233-1237.
- Miller HA, et al. Serotonin and dopamine modulate aging in response to food odor and availability. Nat Commun. 2022;13(1):3271.
- Beydoun S, Sridhar A, Bhandari M, Kitto ES, Leiser SF. Polyethylene glycol as an improved barrier to prevent fleeing in C. elegans. MicroPubl Biol. 2024.
- Sellegounder D, et al. Octopaminergic signaling mediates neural regulation of innate immunity in Caenorhabditis elegans. mBio. 2018;9(5):e01645-18.
- Wang X, et al. Dimorphic neural network architecture prioritizes sexual-related behaviors in male Caenorhabditis elegans. eLife. 2026;14:RP102309.
- Alkema MJ, Hunter-Ensor M, Ringstad N, Horvitz HR. Tyramine functions independently of octopamine in the Caenorhabditis elegans nervous system. Neuron. 2005;46(2):247-260.
- Wang C, et al. A neurotransmitter atlas of C. elegans males and hermaphrodites. eLife. 2024;13:RP95402.
- Stroustrup N, et al. The Caenorhabditis elegans lifespan machine. Nat. 2013;10(7):665-670.
- Felker DP, Robbins CE, McCormick MA. Automation of C. elegans lifespan measurement. Transl Med Aging. 2020;4:1-10.
- Banse SA, et al. Automated lifespan determination across Caenorhabditis strains and species reveals assay-specific effects of chemical interventions. Geroscience. 2019;41(6):945-960.
Przedruki i uprawnienia
Ten artykuł został opublikowany
Film wkrótce dostępny