Niniejsze badanie ocenia ekspresję miR-21-5p, jej powiązanie z cząsteczką adhezyjną komórek 1 oraz zależności między miR-21-5p a migracją, proliferacją, ekspresją markerów stanu zapalnego i przeżywalnością w tkankach i liniach komórkowych niedrobnokomórkowego raka płuca.
Artykuł badawczy
Oś miR-21-5p-cząsteczka adhezyjna komórek 1 w progresji i rokowaniu niedrobnokomórkowego raka płuca
28 wyświetleń
⸱
11 września 2026
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Dowody wskazują, że miR-21-5p jest istotnym regulatorem molekularnym w niedrobnokomórkowym raku płuca (NSCLC). Cząsteczka adhezyjna komórek 1 (CADM1) jest potencjalnym supresorem nowotworowym, jednak relacja regulacyjna między miR-21-5p a CADM1 w progresji NSCLC pozostaje niejasna. Do wykrywania ekspresji miR-21-5p oraz CADM1 w tkankach i komórkach NSCLC wykorzystano ilościową reakcję PCR z odwrotną transkrypcją (qRT-PCR); wiązanie celu przez miR-21-5p i CADM1 zweryfikowano za pomocą testu reporterowego z dwoistą lucyferazą; zdolność komórek do migracji określono za pomocą testu Transwell; dane kliniczno-patologiczne oraz analiza przeżywalności zostały połączone w celu zbadania znaczenia klinicznego miR-21-5p; wzbogacenie funkcjonalne genów docelowych miR-21-5p przeanalizowano metodami bioinformatycznymi. Ekspresja miR-21-5p w tkankach NSCLC była znacząco wyższa niż w przyległych tkankach prawidłowych, a pacjenci z wysoką ekspresją miR-21-5p charakteryzowali się krótszą przeżywalnością całkowitą. Wysoka ekspresja miR-21-5p jest niezależnym czynnikiem ryzyka dla przeżywalności pacjentów z NSCLC; nadekspresja miR-21-5p stymulowała migrację komórek w liniach komórkowych NSCLC i zwiększała ekspresję czynników zapalnych; test reporterowy z dwoistą lucyferazą potwierdził, że miR-21-5p bezpośrednio celuje w CADM1; nadekspresja CADM1 hamowała migrację komórek w liniach NSCLC i zmniejszała ekspresję czynników zapalnych; analiza bioinformatyczna wykazała, że geny docelowe miR-21-5p są wzbogacone w wielu szlakach sygnalizacyjnych związanych z powstawaniem i rozwojem nowotworu. miR-21-5p promuje progresję NSCLC poprzez celowanie w CADM1 i jego hamowanie, co sprawia, że może służyć jako biomarker prognostyczny oraz cel terapeutyczny.
Wprowadzenie
W skali globalnej rak płuca zajmuje miejsce wśród głównych przyczyn śmiertelności związanej z nowotworami na całym świecie, a jego zapadalność stale rośnie1,2. W populacjach Azji Wschodniej zapadalność i śmiertelność z powodu raka płuca wynoszą odpowiednio 2,1 i 155,5 na 10 0 mężczyzn oraz 158,1 i 87,3 na 10 0 kobiet. Niedrobnokomórkowy rak płuca (NSCLC) stanowi ok. 80% wszystkich nowotworów złośliwych płuc i obejmuje trzy główne podtypy histologiczne3. W porównaniu z wysoce agresywnym drobnokomórkowym rakiem płuca (SCLC), NSCLC postępuje i przerzuca się wolniej; jednak nieswoiste wczesne objawy kliniczne sprawiają, że ponad 75% pacjentów otrzymuje diagnozę w stadiach pośrednich lub zaawansowanych, co przyczynia się do utrzymującej się niskiej 5-letniej przeżywalności całkowitej4. Turorygeneza płuc jest napędzana przez aktywację onkogeniczną i wyciszanie genów supresorowych5, co podkreśla pilną potrzebę zbadania podstaw molekularnych NSCLC w celu opracowania nowych terapii6.
MikroRNA (miRNA, o długości 18–25 nukleotydów) pośredniczą w posttranskrypcyjnej represji genów poprzez wiązanie się z 3′ niekodującym regionem (3′-UTR) docelowych mRNA, co wywołuje supresję translacji lub degradację mRNA7. Biogeneza miRNA rozpoczyna się od transkrypcji przez polimerazę RNA II w celu wytworzenia pierwotnych transkryptów miRNA, które są następnie cięte przez enzymy RNazy III, tworząc prekursorowe miRNA w kształcie spinki do włosów (pre-miRNA)8. Podczas gdy większość miRNA represuje ekspresję genów poprzez częściową lub pełną komplementarność sekwencji do 3′-UTR mRNA, niektóre miRNA mogą zwiększać translację mRNA w określonych kontekstach cyklu komórkowego9. Do tej pory zidentyfikowano setki ludzkich miRNA, które regulują kluczowe procesy biologiczne, w tym proliferację, różnicowanie i apoptozę komórek10. Wcześniej detekcja miRNA o zaburzonej ekspresji pozostawała wyzwaniem technicznym; pojawienie się sekwencjonowania wysokoprzepustowego umożliwiło szybkie i obiektywne profilowanie rozregulowanych miRNA w tkankach chorobowych1. W niniejszej pracy skupiamy się na miR-21-5p, jednym z najwcześniej scharakteryzowanych miRNA transkrybowanych przez polimerazę RNA II, którego onkogenne funkcje regulacyjne są przedmiotem intensywnych badań12.
miR-21-5p jest kodowany w obrębie intronu genu TMEM49 i jest konsekwentnie nadmiernie ekspresowany w wielu nowotworach złośliwych u ludzi, w tym w rakach przełyku, jelita grubego i płuc13. Istniejące dane przedkliniczne dotyczące NSCLC potwierdzają jego aktywność onkogenną: podwyższony poziom miR-21-5p przyspiesza proliferację guza, przejście nabłonkowo-mezenchymalne (EMT) oraz przerzuty odległe poprzez wyciszanie celów antyonkogennych, takich jak PTEN i PDCD414. Niemniej jednak, wcześniejsze prace koncentrowały się głównie na sygnałowaniu apoptycznym i proliferacyjnym sterowanym przez miR-21, a niewiele raportów systematycznie bada oś regulacyjną miR-21-5p/CADM1 w NSCLC15. Cząsteczka adhezji komórkowej 1 (CADM1) jest dobrze udokumentowanym supresorem nowotworowym w rakach nabłonkowych16; zachowuje ona adhezję międzykomórkową, aby zablokować odrywanie się komórek nowotworowych i rozsiew przerzutowy, a jej obniżona ekspresja koreluje z zaawansowanym stadium guza i gorszym przeżyciem w kohortach pacjentów z NSCLC. Mechanistycznie, CADM1 hamuje również pronowotworowe sygnałowanie zapalne czynnika jądrowego kappa B (NF-κB), które napędza przerzutowanie poprzez indukcję wydzielania cytokin prozapalnych i przebudowę mikrośrodowiska guza17. Pomimo odrębnej dokumentacji onkogenności miR-21-5p i efektów supresyjnych CADM1, w odniesieniu do osi miR-21-5p/CADM1 w NSCLC pozostają trzy krytyczne luki w wiedzy: po pierwsze, bezpośrednie wiązanie i represja CADM1 przez miR-21-5p nie zostały zweryfikowane eksperymentalnie w komórkach raka płuca; po drugie, nie określono, czy oś ta napędza fenotypy złośliwe poprzez downstreamowe szlaki zapalne; po trzecie, nie oceniono potencjału prognostycznego połączonych sygnatur ekspresji miR-21-5p/CADM1 w klinicznych próbkach NSCLC.
W oparciu o te nierozwiązane kwestie proponujemy centralną hipotezę mechanistyczną: zwiększona ekspresja miR-21-5p w NSCLC bezpośrednio wiąże się z 3′-UTR CADM1, aby zahamować ekspresję CADM1, co prowadzi do odblokowania hamowanego przez CADM1 zapalnego sygnalizowania przerzutowego, przyspieszając tym samym migrację w NSCLC i prowadząc do gorszego rokowania klinicznego. Niniejsze badanie realizuje trzy zdefiniowane cele badawcze: (1) weryfikacja bezpośredniego celowania molekularnego CADM1 przez miR-21-5p oraz ocena migracji w liniach komórkowych NSCLC A549 i H129; (2) wyjaśnienie, czy kaskada miR-21-5p/CADM1 moduluje potencjał przerzutowy poprzez zapalną transdukcję sygnału; (3) ocena klinicznej wartości prognostycznej sygnatury ekspresji miR-21-5p/CADM1 w celu zidentyfikowania nowych biomarkerów diagnostycznych i kandydatów terapeutycznych dla przerzutowego NSCLC.
Protokół
Niniejsze badanie retrospektywne zostało przeanalizowane i zatwierdzone przez Komisję Etyczną Szpitala Medycyny Tradycyjnej Chińskiej w Quzhou (numer zatwierdzenia 20240208). Przed pobraniem próbek od każdego włączonego do badania pacjenta lub jego opiekuna prawnego uzyskano pisemną zgodę na udział w badaniu.
Pobieranie próbek
Tkanki pierwotnych guzów NSCLC pobrano chirurgicznie od zakwalifikowanych pacjentów, natomiast odpowiadające im sąsiednie prawidłowe tkanki płuca zebrano retrospektywnie z National Engineering Research Center for Clinical Biopsy (miasto Quzhou, prowincja Zhejiang, Chiny). W to badanie kohortowe włączono łącznie 157 próbek od pacjentów z NSCLC, zakwalifikowanych sekwencyjnie między styczniem 2019 a grudniem 2024 roku. Wielkość próby obejmująca 157 par preparatów została uzasadniona statystycznie na podstawie wcześniej opublikowanych badań nad prognostyką miRNA w NSCLC: przy założeniu umiarkowanej wielkości efektu 0,5, α = 0,05 i mocy statystycznej 80%, minimalna wymagana wielkość próby została obliczona na 122 przypadki. Uwzględniając potencjalną utratę preparatów, rozległą martwicę tkanek oraz pacjentów utraconych z obserwacji, sekwencyjnie zakwalifikowano 157 spełniających kryteria pacjentów w okresie od stycznia 2019 do grudnia 2024 roku, aby zagwarantować wystarczającą moc statystyczną. Wszystkie tkanki nowotworowe oraz odpowiadające im sąsiednie prawidłowe tkanki płuc pobrano od tego samego pacjenta podczas resekcji chirurgicznej, tworząc pary próbek do późniejszych analiz porównawczych.
Kryteria włączenia obejmowały: (1) pacjentów z patologicznie potwierdzonym pierwotnym NSCLC na podstawie biopsji pooperacyjnej; (2) kompletne dane kliniczne wyjściowe, stopień zaawansowania histopatologicznego oraz dane dotyczące przeżywalności w długoterminowej obserwacji; (3) brak wcześniejszej radioterapii, chemioterapii lub terapii celowanej przed pobraniem tkanek; (4) dostępność kompletnych, sparowanych próbek tkanki nowotworowej i tkanki okołonowotworowej.
Kryteria wykluczenia obejmowały: (1) połączone wtórne guzy złośliwe innych narządów; (2) pacjentów utraconych z obserwacji w ciągu 3 miesięcy po operacji; (3) preparaty z ciężką martwicą lub niewystarczającą objętością tkanki do późniejszej detekcji molekularnej.
Wszystkie świeże próbki tkanek umieszczono w ciekłym azocie w ciągu 15 min po resekcji chirurgicznej, a następnie przeniesiono do zamrażarki niskotemperaturowej i przechowywano w −80 °C w celu ekstrakcji RNA i białek. Regularnie przeprowadzano obserwację kliniczną, a całkowity przeżywalność mierzono w miesiącach od momentu postawienia diagnozy patomorfologicznej do śmierci lub ostatniej wizyty kontrolnej.
Stratyfikacja poziomu ekspresji miR-21-5p
Wartości względnej ekspresji miR-21-5p u wszystkich 157 pacjentów zostały posortowane w kolejności rosnącej, a kohorta została podzielona na grupy na podstawie mediany ekspresji. Ze względu na liczne wartości identyczne z medianą, pacjenci z ekspresją poniżej mediany zostali przypisani do grupy niskiej ekspresji (n = 61); pacjenci z ekspresją równą lub wyższą od mediany, w tym wszystkie obserwacje o wartości równej medianie, zostali zakwalifikowani do grupy wysokiej ekspresji (n = 96). Ta zasada przydziału wartości identycznych została określona przed podziałem na grupy w celu rozstrzygnięcia powtarzających się odczytów mediany, a wynik grupowania został zweryfikowany na podstawie surowych danych ilościowych z qRT-PCR.
Hodowla komórkowa
Ludzkie linie komórkowe NSCLC A549 i H129 otrzymano od dostawcy komercyjnego (patrz Tabela materiałów). Komórki A549 utrzymywano w medium RPMI-1640, a komórki H129 hodowano w medium DMEM. Oba media hodowlane wzbogacono o 10% inaktywowanej ciepłem płodowej surowicy bydlęcej (FBS), penicylinę (10 U/mL) i streptomycynę (10 µg/mL). Komórki hodowano w standardowych warunkach w temperaturze 37 °C w inkubatorze z nawilżaniem i dostarczonym 5% CO₂.
W celu potwierdzenia tożsamości linii komórkowych A549 i H129 przed wszystkimi eksperymentami funkcjonalnymi przeprowadzono profilowanie krótkich powtórzeń tandemowych (STR). Testy na obecność zanieczyszczeń mycoplasma wykonywano co miesiąc przy użyciu komercyjnego zestawu do detekcji mycoplasma opartego na metodzie PCR; do kolejnych analiz wykorzystywano wyłącznie komórki wolne od mycoplasma.
Komórki w fazie wzrostu logarytmicznego z zachowaną morfologią zostały zebrane do transfekcji przejściowej. Odczynnika do transfekcji opartego na lipidach (patrz Tabela materiałów) użyto zgodnie z instrukcjami producenta. Dalsze analizy komórkowe przeprowadzono 50 h po transfekcji.
Transfekcja komórek
Do transfekcji wykorzystano komórki w logarytmicznej fazie wzrostu o prawidłowej morfologii, które wysiano na płytki hodowlane z 24-godzinnym wyprzedzeniem, aby osiągnęły 60%–70% konfluencji. Transfekcję przeprowadzono z użyciem odczynnika do transfekcji opartego na lipidach (patrz Tabela materiałów) zgodnie z instrukcjami producenta. Wykorzystano cztery grupy eksperymentalne: negatywną kontrolę dla mimiku (mimic-NC), mimik miR-21-5p, negatywną kontrolę dla inhibitora (inhibitor-NC) oraz inhibitor miR-21-5p. Sekwencje nukleotydowe podano w Pliku uzupełniającym 1.
Całkowite RNA wyekstrahowano 50 h po transfekcji, a następnie przeprowadzono ilościową reakcję PCR z odwrotną transkrypcją (qRT-PCR), aby zmierzyć względną ekspresję miR-21-5p i zweryfikować wydajność transfekcji. Testy migracji komórkowej przeprowadzono 50 h po transfekcji. W przypadku transfekcji przejściowej komórki poddano działaniu mimiku miR-21-5p lub negatywnej kontroli mimiku (mimic-NC) w końcowym stężeniu 50 nM, natomiast inhibitor miR-21-5p oraz negatywna kontrola inhibitora (inhibitor-NC) zostały wprowadzone w stężeniu 10 nM. Aby uniknąć efektów zakłócających wynikających z różnic w ilości wprowadzonego kwasu nukleionowego, całkowitą ilość transfektowanego kwasu nukleinowego utrzymano na identycznym poziomie we wszystkich czterech grupach badawczych.
Proliferację komórek oceniono za pomocą testu Cell Counting Kit-8 (CCK-8). Stabilnie transfektowane komórki wysiano do płytek 96-dołkowych w zagęszczeniu 3 × 10³ komórek/dołek, z sześcioma powtórzeniami technicznymi dla każdej grupy. Po 24, 48 i 72 h od wysiania do każdego dołka dodano 10 µL odczynnika CCK-8, a następnie inkubowano w temperaturze 37 °C przez 2 h. Proliferację komórek określono poprzez pomiar absorbancji przy 450 nm za pomocą czytnika płytek mikrodołkowych.
Wszystkie eksperymenty dotyczące transfekcji przejściowej, testu CCK-8 oraz migracji przeprowadzono z co najmniej trzema niezależnymi powtórzeniami biologicznymi, a każde powtórzenie biologiczne obejmowało 3–6 powtórzeń technicznych, zgodnie z powyższym opisem.
Ilościowa reakcja PCR z odwrotną transkrypcją
Całkowite RNA z komórek NSCLC oraz parowanych klinicznych próbek guza i sąsiadujących tkanek prawidłowych wyizolowano przy użyciu odczynnika do ekstrakcji RNA opartego na fenolu/guanidynie (patrz Tabela materiałów). Czystość i stężenie RNA określono za pomocą spektrofotometrii ultrafioletowej; do odwrotnej transkrypcji poddano jedynie próbki o stosunkach gęstości optycznej (OD) 260/280 oraz OD 260/230 w zakresie 1,8–2,1. Sekwencje starterów podano w Pliku uzupełniającym 1. Układ do odwrotnej transkrypcji zawierał 50 ng całkowitego RNA, 2 µL buforu do odwrotnej transkrypcji, 1 µL mieszaniny dNTP, 0,5 µL odwrotnej transkryptazy, 1 µL specyficznego startera stem-loop dla miRNA lub startera oligo(dT) dla mRNA oraz wodę wolną od RNaz do całkowitej objętości 20 µL. Układ amplifikacji qRT-PCR (całkowita objętość 20 µL) składał się z 10 µL mieszaniny SYBR Green qPCR master mix, 0,4 µL startera forward (10 µM), 0,4 µL startera reverse (10 µM), 2 µL rozcieńczonej matrycy cDNA oraz 7,2 µL wody wolnej od RNaz.
mRNA dla CADM1 i GAPDH poddano odwrotnej transkrypcji przy użyciu zestawu do odwrotnej transkrypcji, natomiast miR-21-5p poddano odwrotnej transkrypcji z wykorzystaniem starterów typu stem-loop oraz egzogennego cel-miR-39 jako kontroli wewnętrznej (spike-in). Egzogenny cel-miR-39 dodano do każdej próbki RNA bezpośrednio po izolacji całkowitego RNA i przed odwrotną transkrypcją. Jako syntetyczny C. elegans cel-miR-39, microRNA nieposiadające sekwencji homologicznej w transkryptach ludzkich, może korygować odchylenia spowodowane zróżnicowaną wydajnością ekstrakcji RNA, stratami wynikającymi z degradacji RNA oraz zmiennością wydajności odwrotnej transkrypcji w różnych klinicznych próbkach tkanek, służąc jako egzogenna, uniwersalna kontrola normalizacyjna do kwantyfikacji miRNA. Analizę qRT-PCR przeprowadzono z użyciem master mixu opartego na fluorescencyjnym barwniku wiążącym DNA w systemie PCR w czasie rzeczywistym (patrz Tabela materiałów): 95 °C przez 3 min, a następnie 40 cykli w 95 °C przez 10 s, 60 °C przez 30 s, a następnie 72 °C przez 20 s, wraz z analizą krzywych topnienia w celu potwierdzenia specyficzności amplifikacji. Dla każdej próbki wykonano trzy powtórzenia biologiczne, z których każde obejmowało trzy powtórzenia techniczne, a względną ekspresję obliczono przy użyciu metody 2-⁻ΔΔCt metoda. Pełne sekwencje starterów dla CRP, TNF-αi IL-6 amplifikacja mRNA została przedstawiona w Plik uzupełniający 1 obok CADM1, GAPDHoraz sekwencje starterów dla miR-21-5p.
Ustanowienie stabilnej ekspresji miR-21-5p za pośrednictwem lentiwirusa
Komercyjne wektory lentiwirusowe LV-miR-21-5p oraz pusty kontrolny wektor LV-NC zostały zapakowane w komórkach 293T. Sekwencja prekursora miR-21-5p została wstawiona do lentiwirusowego szkieletu zawierającego geny oporności na puromycynę oraz reporterowe geny GFP. Nadnadstąwia lentiwirusowe zebrano po 48 h i 72 h od transfekcji, a następnie skoncentrowano i oczyszczono w celu infekcji komórek.
Komórki A549 i H129 wysiano 24 h przed infekcją, aby osiągnęły 50–60% konfluencji. Komórki zainfekowano przy MOI = 10 (A549) i MOI = 15 (H129) z dodatkiem 5 µg/mL polybrene w celu zwiększenia wydajności transfekcji. Po 24 h od infekcji wymieniono medium, a komórki hodowano przez kolejne 48 h przed selekcją puromycyną.
Selekcję stabilnych linii komórkowych prowadzono przy użyciu puromycyny w stężeniu 5 µg/mL przez 10 kolejnych dni; w celu weryfikacji całkowitej eliminacji komórek nietransdukowanych w ciągu 7 dni wykorzystano niezakażone komórki kontrolne. Wyizolowano pojedyncze klony dodatnie pod względem GFP, które następnie namnożono w celu wytworzenia stabilnych monoklonalnych linii komórkowych LV-21 oraz LV-NC.
Do testów ratunkowych CADM1 przygotowano komercyjne lentiwirusy do nadekspresji LV-CADM1 oraz do wyciszenia sh-CADM1. Utworzono cztery grupy eksperymentalne: LV-NC, LV-miR-21-5p, LV-CADM1 oraz grupę ratunkową LV-miR-21-5p + LV-CADM1. Infekcję lentiwirusami CADM1 przeprowadzono przy tym samym MOI i w tych samych warunkach selekcji puromycyną, co w przypadku wektorów miR-21-5p. Wszystkie eksperymenty dotyczące ratowania proliferacji i migracji powtórzono w trzech niezależnych powtórzeniach biologicznych.
Walidacja stabilnej nadekspresji miR-21-5p
Z zebranych stabilnych klonów komórkowych LV-21 i LV-NC wyekstrahowano całkowite RNA. Przeprowadzono analizę qRT-PCR w celu oznaczenia względnego poziomu ekspresji hsa-miR-21-5p, wykorzystując cel-miR-39 jako egzogenny odnośnik. Do wszystkich kolejnych testów funkcjonalnych wybrano klony komórkowe z ponad 8-krotnym wzrostem ekspresji miR-21-5p w stosunku do grupy LV-NC, co potwierdziło pomyślne wytworzenie linii komórkowych ze stabilną nadekspresją miR-21-5p.
Test reporterowy z podwójną lucyferazą
skonstruowano plazmid reporterowy 3'-UTR CADM1 typu dzikiego (WT-CADM1) zawierający przewidywaną sekwencję wiążącą miR-21-5p oraz mutant plazmidu reporterowego 3'-UTR CADM1 (MUT-CADM1) zmutowanym regionem seed. Komórki A549 wysiano do płytek 24-dołkowych na 24 h przed transfekcją, aby osiągnęły 60%–70% konfluencji. Każdy dołek poddano kotransfekcji 50 ng plazmidu reporterowego WT/MUT, 50 nM mimiku miR-21-5p lub mimiku-NC oraz plazmidu referencyjnego wewnętrznego lucyferazy Renilla w stałym stosunku masowym. Po 48 h inkubacji po transfekcji komórki całkowicie zlizowano, a następnie sekwencyjnie oznaczono sygnały luminescencji lucyferazy świetlikowej i Renilla przy użyciu zestawu do detekcji podwójnej lucyferazy. Względną aktywność lucyferazy obliczono jako stosunek wartości luminescencji świetlikowej do wartości luminescencji Renilla. Każda grupa eksperymentalna obejmowała trzy niezależne powtórzenia biologiczne, z trzema powtórzeniami technicznymi na każde powtórzenie biologiczne; do statystycznego porównania względnej aktywności lucyferazy między grupami mimiku-NC i mimiku miR-21-5p zastosowano test t dla dwóch niezależnych grup.
Test migracji Transwell
W teście migracji Transwell stabilnie transfektowane komórki zawieszono w medium bezsurowiczym i wysiano do górnych wkładów w zagęszczeniu 4 × 10⁴ komórek na dołek. Dolne komory wypełniono kompletną pożywką hodowlaną uzupełnioną o 10% FBS w celu utworzenia gradientu chemotaktycznego. Po inkubacji przez 48 h w temperaturze 37 °C w atmosferze nawilżonej zawierającej 5% CO₂, komórki pozostające na górnej powierzchni membrany zostały ostrożnie usunięte. Komórki, które migrowały na dolną stronę membrany, utrwalono w metanolu i zabarwiono fioletem krystalicznym. Migrację ilościowo określono poprzez zliczenie komórek w pięciu losowo wybranych polach mikroskopowych na wkład. Każdy eksperyment przeprowadzono w trzech niezależnych powtórzeniach biologicznych, przy czym dla każdego powtórzenia biologicznego wykonano trzy powtórzenia techniczne.
Analizy statystyczne
Wszystkie eksperymenty in vitro przeprowadzono z minimum trzema niezależnymi powtórzeniami biologicznymi, z których każde posiadało odpowiednie powtórzenia techniczne. W celu doboru odpowiedniej analizy statystycznej w pierwszej kolejności oceniono rozkład danych za pomocą testu normalności Shapiro-Wilka. Dla porównań parowanych między tkanką nowotworową a sąsiednią tkanką prawidłową zastosowano test t-Studenta dla prób parowanych lub testy znaków Wilcoxona, w zależności od rozkładu danych. Porównania między dwiema niezależnymi grupami analizowano za pomocą niezależnego testu t-Studenta lub testu U Manna-Whitneya. Różnice między wieloma grupami, w tym w eksperymentach typu rescue, oceniano za pomocą jednoczynnikowej analizy wariancji (ANOVA) z następczą korektą post hoc Bonferroniego, natomiast ANOVA z powtarzanymi pomiarami została wykorzystana do analizy zestawów danych podłużnych, takich jak testy proliferacji CCK-8 i testy gojenia ran. Związki między kategoriami zmiennych klinicznych badano za pomocą testu χ2, a relację między ekspresją miR-21-5p a CADM1 oceniono za pomocą analizy korelacji Pearsona. Przeżywalność pacjentów analizowano przy użyciu krzywych Kaplana-Meiera, a porównania przeprowadzono za pomocą testu log-rank. Niezależne czynniki prognostyczne zidentyfikowano za pomocą jednowymiarowej i wielowymiarowej analizy regresji proporcjonalnych hazardów Coxa. Istotność statystyczną zdefiniowano jako P < 0.05. Wielowymiarowa regresja Coxa została skorygowana o wiek, płeć, typ histologiczny, poziom miR-21-5p oraz stan węzłów chłonnych (referencja: wiek ≤ 60, kobieta, rak płaskonabłonkowy, niski poziom miR-21-5p, brak przerzutów do węzłów); założenie o proporcjonalności hazardów sprawdzono za pomocą reszt Schoenfelda, a zmienne z jednowymiarową wartością P < 0.10 włączono do modelu za pomocą metody enter selection.
Wyniki
Korelacja między ekspresją miR-21-5p a charakterystyką kliniczno-patologiczną pacjentów z NSCLC
Łącznie 157 próbek guzów NSCLC podzielono na grupy o niskiej ekspresji miR-21-5p (n = 61) i wysokiej ekspresji (n = 96) na podstawie mediany poziomów miR-21-5p. Analizy chi-kwadrat nie wykazały istotnych korelacji ekspresji miR-21-5p z wiekiem pacjentów (χ2 = 1.36, P = 0.2435), płcią (χ2 = 1.06, P = 0.3032), typem histologicznym (χ2 = 1.09, P = 0.2965) ani wielkością guza (χ2 = 5.623, P = 0.0601), podczas gdy wysoka ekspresja miR-21-5p była istotnie powiązana z zaawansowanym stopniem złośliwości guza (χ2 = 16.25, P = 0.06), obecnością przerzutów do węzłów chłonnych (χ2 = 12.17, P = 0.049) oraz wyższym stopniem T (χ2 = 4.30, P = 0.17), co sugeruje, że miR-21-5p wykazuje działanie onkogenne ułatwiające progresję NSCLC (Tabela 1).
Wieloczynnikowa analiza regresji proporcjonalnych hazardów Coxa dla niezależnych czynników prognostycznych NSCLC
Wieloczynnikowa analiza regresji Coxa uwzględniająca wiek, płeć, typ histologiczny, ekspresję miR-21-5p oraz przerzuty do węzłów chłonnych wykazała, że wysoka ekspresja miR-21-5p (hazard ratio [HR] = 3,06; 95% przedział ufności [CI]: 1,412–6,659; P = 0,05) oraz obecność przerzutów do węzłów chłonnych (HR = 2,295; 95% CI: 3,039–163,588; P = 0,02) były niezależnymi niekorzystnymi czynnikami ryzyka prognostycznego dla przeżycia całkowitego pacjentów z NSCLC, podczas gdy wiek, płeć i podtyp histologiczny pacjentów nie miały istotnego niezależnego wpływu prognostycznego (wszystkie P > 0,05) (Tabela 2).
Charakterystyka ekspresji klinicznej miR-21-5p oraz jej korelacja z CADM1 i czynnikami zapalnymi
Wykrywanie za pomocą qRT-PCR w parach tkanek nowotworowych NSCLC i przyległych tkanek prawidłowych wykazało znacznie podwyższone względne poziomy miR-21-5p w tkankach nowotworowych w porównaniu z prawidłowymi kontrolami (Rycyna 1A, P < 0.01). Krzywe przeżycia Kaplana-Meiera wykazały, że pacjenci z wysoką ekspresją miR-21-5p mieli znacznie gorsze przeżycie całkowite niż pacjenci z niską ekspresją miR-21-5p (Rycyna 1B, P = 0.027). Poziomy mRNA mediatorów zapalnych: białka C-reaktywnego (CRP), czynnika martwicy nowotworów alfa (TNF-α) oraz interleukiny-6 (IL-6) były wszystkie wyraźnie podwyższone w preparatach NSCLC (Rycyna 1C, P < 0.01, P < 0.01). Analiza korelacji Pearsona wykazała silnie istotną ujemną korelację między ekspresją miR-21-5p a mRNA CADM1 w próbkach klinicznych (r = -0.73, 95% CI: -0.8325 do -0.7076, P < 0.01, Rycyna 1D).
Komórkowa walidacja funkcjonalna miR-21-5p w komórkach NSCLC
Metodą qRT-PCR potwierdzono wysoką wydajność transfekcji mimiku miR-21-5p w komórkach A549 i H129 (Rysunek 2A). Testy w układzie Transwell wykazały, że nadekspresja miR-21-5p znacząco zwiększyła względną zdolność do migracji oraz liczbę migrujących komórek w obu liniach komórkowych (Rysunek 2B,C). Detekcja cytokin zapalnych za pomocą qRT-PCR ujawniła wyraźny wzrost poziomów mRNA CRP, TNF-α oraz IL-6 po transfekcji mimikiem miR-21-5p, natomiast zastosowanie inhibitora miR-21-5p odwróciło tę nadekspresję (Rysunek 2D). Eksperymenty typu rescue potwierdziły, że mimik miR-21-5p drastycznie hamował transkrypcję CADM1, a kotransfekcja LV-CADM1 w pełni przywróciła ekspresję mRNA CADM1 w komórkach A549 i H129 (Rysunek 2E,F). Zbiorczo dane komórkowe te wykazały, że miR-21-5p promuje migrację komórek NSCLC oraz odpowiedź zapalną poprzez represję CADM1.
Wpływ miR-21-5p na proliferację komórek NSCLC
Krzywe proliferacji CCK-8 w czasie 24 h, 48 h i 72 h wykazały, że transfekcja mimetykiem miR-21-5p wyraźnie zwiększyła wartości OD przy 450 nm w komórkach A549 oraz H129, podczas gdy inhibitor miR-21-5p istotnie ograniczył żywotność komórek, przy czym statystycznie znaczące różnice zaobserwowano w 72 h (Rycina 3A,B; P < 0.01). Dane te wykazały, że miR-21-5p wykazuje działanie proproliferacyjne w komórkach NSCLC.
Walidacja CADM1 jako bezpośredniego celu miR-21-5p za pomocą predykcji bioinformatycznej i testu reporterowego z podwójną lucyferazą
W celu przesiewowego wyłonienia potencjalnych genów downstream dla miR-21-5p wykorzystano przecięcie danych z trzech internetowych baz predykcji celów miRNA (miRWalk, StarBase, TargetScan), co pozwoliło na uzyskanie 95 wspólnych genów docelowych (Ryc. 4A). Analiza wzbogacenia Gene Ontology (GO) wykazała, że geny kandydackie były głównie wzbogacone w procesy biologiczne, komponenty komórkowe i funkcje molekularne związane z metabolizmem komórkowym, odpowiedzią na stres oraz regulacją transkrypcji (Ryc. 4B). Analiza wzbogacenia szlaków Kyoto Encyclopedia of Genes and Genomes (KEGG) ujawniła ponadto wyraźne wzbogacenie w kaskadach sygnalizacyjnych związanych z nowotworami, w tym szlaki kinazy białkowej aktywowanej mitogenem (MAPK) oraz szlaki Ras (Ryc. 4C). Test reporterowy z podwójną lucyferazą wykazał, że mimik miR-21-5p znacząco hamował względną aktywność lucyferazy reportera 3'-UTR CADM1 typu dzikiego, podczas gdy w grupie z mutantem 3'-UTR CADM1 nie zaobserwowano efektu hamującego (Ryc. 4D, P < 0.01, ns: brak istotności), co potwierdziło bezpośrednie wiązanie miR-21-5p z CADM1.
Promowanie fenotypów złośliwych NSCLC poprzez supresję CADM1 w eksperymentach ratunkowych
Metodą qRT-PCR zweryfikowano wydajność transfekcji mimiku i inhibitora miR-21-5p w komórkach A549 i H129 (Rysunek 5A). Nadekspresja CADM1 (LV-CADM1) obniżyła poziomy mRNA czynników prozapalnych CRP, TNF-α oraz IL-6, podczas gdy wyciszenie CADM1 za pomocą małych interferujących RNA (si-CADM1) wyraźnie zwiększyło ich ekspresję (Rysunek 5B). Testy migracji w komorach Transwell wykazały, że transfekcja LV-CADM1 znacząco zahamowała zdolność migracyjną obu linii komórkowych NSCLC (Rysunek 5C,D). Detekcja proliferacji metodą CCK-8 dodatkowo wykazała, że efekt proproliferacyjny indukowany przez LV-21 został w pełni zniesiony przez kotransfekcję LV-CADM1, natomiast przyspieszenie wzrostu komórek wywołane przez si-CADM1 mogło zostać odwrócone za pomocą inhibitora miR-21-5p (Rysunek 5E,F). Wspólnie te dane z eksperymentów ratunkowych potwierdziły, że CADM1 działa jako funkcjonalny mediator downstream odpowiedzialny za wywołaną przez miR-21-5p proliferację, migrację i aktywację zapalną w NSCLC.
Dostępność danych:
Dane źródłowe wspierające wyniki niniejszego badania zostały przedstawione w Pliku uzupełniającym 2 i są dostępne wraz z opublikowanym artykułem.
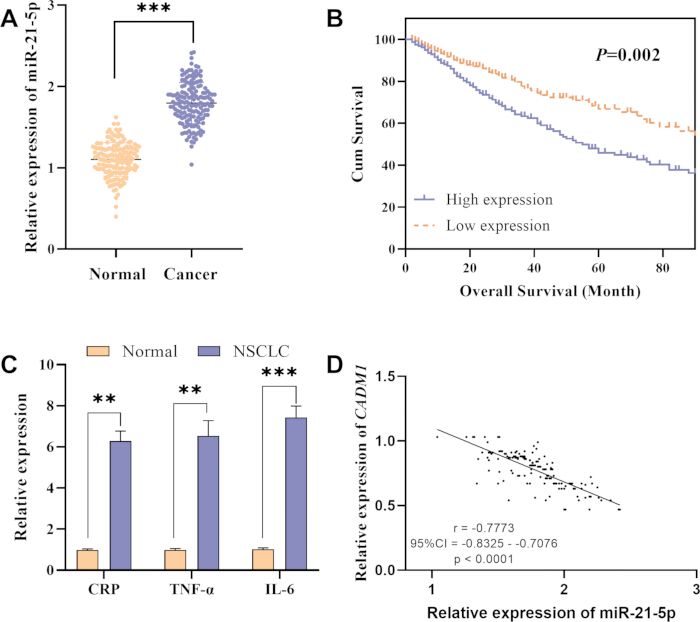
Rysunek 1Profile ekspresji miR-21-5p, czynników zapalnych oraz ich korelacja z CADM1 w klinicznych próbkach niedrobnokomórkowego raka płuca (NSCLC). (A) Względna ekspresja miR-21-5p w prawidłowych tkankach płuc i tkankach nowotworowych NSCLC. (B) Krzywe przeżycia całkowitego Kaplana-Meiera dla pacjentów z NSCLC w rozwarstwieniu ze względu na poziom ekspresji miR-21-5p. (C) Względna ekspresja mRNA czynników zapalnych CRP, TNF-αi IL-6 w tkankach prawidłowych i z niedrobnokomórkowym rakiem płuca (NSCLC). (D) Wykres rozrzutu korelacji Persona przedstawiający ujemną korelację liniową między miR-21-5p a CADM1 ekspresja mRNA. **P < 0,01, ***P < 0.01. Dla panelu Cwykonano porównania statystyczne między parami tkanek nowotworowych a przyległymi tkankami prawidłowymi odpowiednio dla CRP, TNF-α i IL-6; **P < 0,01, ***P < 0,01 oznacza istotne różnice w porównaniu z dopasowanymi prawidłowymi tkankami płuc. Wszystkie panele obejmują ≥3 niezależne powtórzenia biologiczne; dane qRT-PCR przedstawiają średnią ± odchylenie standardowe; sparowane t– test zastosowano do porównań międzygrupowych; w analizie korelacji na wykresie rozrzutu wykorzystano test Pearsona. Skróty: CADM1 CAM-1 = cząsteczka adhezji komórkowej 1; CI = przedział ufności; CRP = białko C-reaktywne; IL-6 = interleukina-6; NSCLC = niedrobnokomórkowy rak płuca; TNF-α = czynnik martwicy nowotworu alfa. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
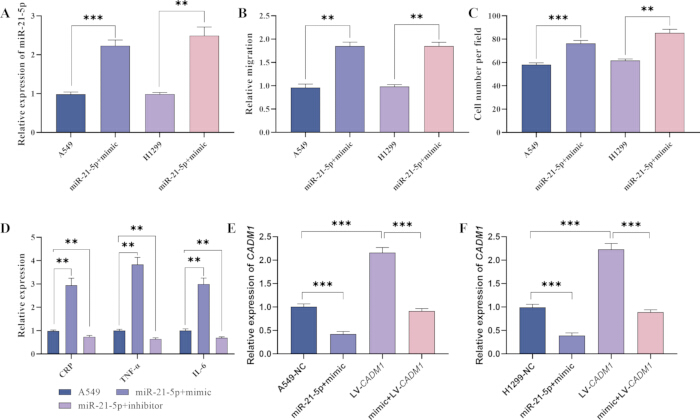
Rycina 2Fenotypy komórkowe i CADM1 ekspresja regulowana przez miR-21-5p w komórkach NSCLC linii A549 i H129. (A) Wykrywanie ekspresji miR-21-5p metodą qRT-PCR po transfekcji mimikiem. (B) Statystyczna kwantyfikacja względnej migracji komórek w testach Transwell. (C) Ilościowe oznaczenie liczby migrowanych komórek na pole widzenia mikroskopu. (D) Względna ekspresja mRNA dla CRP (białko C-reaktywne), TNF-α, i IL-6 przy nadekspresji lub inhibicji miR-21-5p. (E) Względne CADM1 ekspresja mRNA w grupach ratunkowych A549 (NC, mimik miR-21-5p, LV-CADM1, mimic+LV-CADM1). (F) Względne CADM1 ekspresja mRNA w grupach ratunkowych H129. **P < 0,01, ***P < 0,01. Wszystkie testy komórkowe powtórzono w trzech niezależnych powtórzeniach biologicznych, z trzema powtórzeniami technicznymi dla każdego z nich; słupki błędów przedstawiają średnią ± SD; do porównań międzygrupowych zastosowano jednoczynnikową analizę wariancji (ANOVA) z korektą Bonferroniego; etykiety grup ściśle odpowiadają grupom transfekcji opisanym w sekcji Metody. Skróty: CADM1 CAM-1 = cząsteczka adhezyjna komórek 1; CRP = białko C-reaktywne; IL-6 = interleukina-6; LV = wektor lentiwirusowy; NC = kontrola negatywna; NSCLC = niedrobnokomórkowy rak płuca; qRT-PCR = ilościowa reakcja polimerazy w łańcuchu z odwrotną transkrypcją; TNF-α = czynnik martwicy nowotworu alfa. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
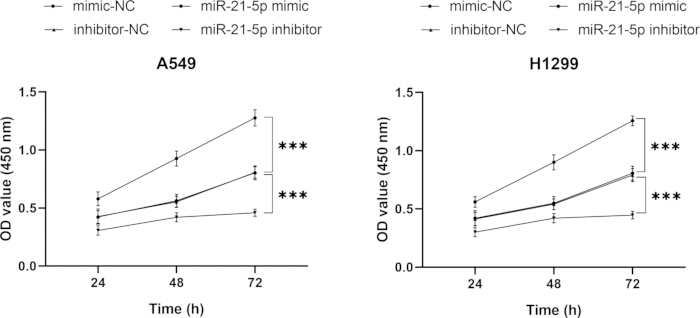
Rycina 3Krzywe proliferacji CCK-8 odzwierciedlające żywotność komórek po nadekspresji lub wyciszeniu miR-21-5p. (A) Krzywe absorbancji OD₄₅₀ w funkcji czasu dla komórek A549 transfekowanych mimic-NC, mimikiem miR-21-5p, inhibitor-NC lub inhibitorem miR-21-5p. (B) Krzywe absorbancji OD₄₅₀ zależne od czasu dla komórek H129 w czterech grupach transfekcji. ***P < 0.01. Testy CCK-8 obejmowały sześć powtórzeń technicznych na grupę w obrębie 3 powtórzeń biologicznych; dane przedstawiono jako średnią ± SD; do porównań punktów czasowych zastosowano analizę wariancji (ANOVA) z powtarzanymi pomiarami. Skróty: CCK-8 = Cell Counting Kit-8; NC = kontrola negatywna; OD = gęstość optyczna. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
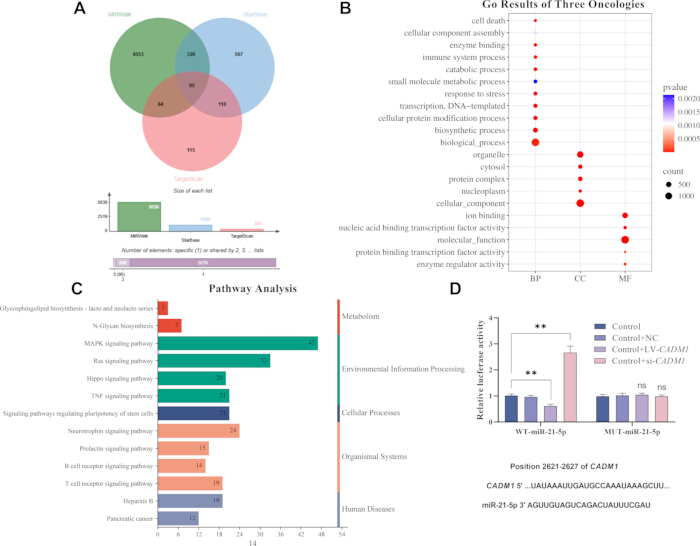
Rycina 4Przesiew bioinformatyczny i test podwójnej lucyferazy dla genu docelowego miR-21-5p CADM1. (A) Diagram Venna ilustrujący wspólne geny docelowe miR-21-5p zidentyfikowane przez bazy danych predykcyjnych miRWalk, StarBase i TargetScan. (B) Wykres pęcherzykowy analizy wzbogacenia funkcjonalnego GO dla wspólnych genów docelowych. (C) Wykres słupkowy najlepiej wzbogaconych szlaków sygnalizacyjnych KEGG. (D) Aktywność reporterowa dualnej lucyferazy typu dzikiego i mutantów CADM1 3'-UTR po nadekspresji miR-21-5p. **P < 0,01; ns, brak istotności. Panel D przyjmuje wyłącznie WT-CADM1 3'-UTR i MUT-CADM1 3'-UTR współtransfekowany z mimikiem miR-21-5p/mimikiem-NC do detekcji dual-lucyferazowej; etykiety Kontrola/nadekspresja/interferencja widoczne w roboczych projektach wykresów zostały zmienione na standardowy podział WT/MUT na końcowych rysunkach. Analiza przewidywania celów wykorzystywała trzy bazy danych online; wartości P dla wzbogacenia zostały skorygowane za pomocą korekcji FDR Benjamini-Hochberga; w eksperymentach dual-lucyferazowych wykonano trzy powtórzenia biologiczne (po trzy powtórzenia techniczne dla każdego); słupki błędu reprezentują średnią ± SD; dwie grupy t-test do porównań statystycznych. Skróty: CADM1 = cząsteczka adhezji komórkowej 1; GO = Gene Ontology; KEGG = Kyoto Encyclopedia of Genes and Genomes; MUT = mutant; NC = kontrola negatywna; ns = brak istotności statystycznej; UTR = nietransladowany region; WT = typ dziki. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
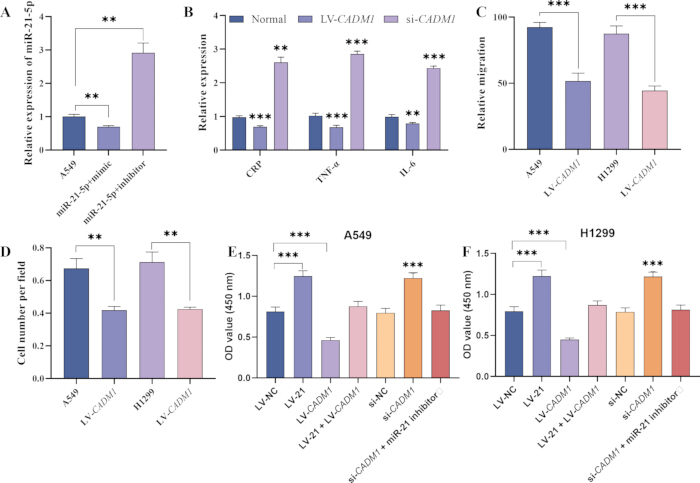
Rysunek 5: Eksperymenty z funkcjonalnym przywróceniem funkcji w celu weryfikacji osi miR-21-5p/CADM1 oś regulacyjna w komórkach A549 i H129. (A) Względna ekspresja miR-21-5p po transfekcji mimiku lub inhibitora. (B) Względna ekspresja mRNA CRP, TNF-αi IL-6 w LV-CADM1 or krzemowo-CADM1 grupy. (CStatystyczna kwantyfikacja względnej zdolności do migracji w warunkach CADM1 nadekspresja. (D) Ilościowe oznaczenie liczby migrowanych komórek na pole widzenia mikroskopu w LV-CADM1 grupy. (E) Wartości OD₄₅₀ w teście CCK-8 dla grup ratunkowych A549 (LV-NC, LV-21, LV-CADM1, LV-21+LV-CADM1, si-NC, si-CADM1, si-CADM1+inhibitor miR-21). (F) wartości OD₄₅₀ w teście CCK-8 dla grup ratunkowych H129 poddanych identycznym zabiegom transfekcji. **P < 0,01, ***P < 0.01. Wszystkie testy ratunkowe obejmowały trzy niezależne powtórzenia biologiczne; słupki błędów wskazują średnią ± SD, a do porównań wielogrupowych zastosowano jednoczynnikową analizę wariancji (ANOVA) z testem post-hoc Bonferroniego. Skróty: CADM1 CAM-1 = cząsteczka adhezyjna komórek 1; CRP = białko C-reaktywne; IL-6 = interleukina-6; LV = wektor lentiwirusowy; NC = kontrola negatywna; OD = gęstość optyczna; qRT-PCR = ilościowa reakcja łańcuchowa polimerazy z odwrotną transkrypcją; si = małe interferujące RNA; TNF-α = czynnik martwicy nowotworu alfa. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
| ekspresja miR-21-5p | Suma | Proszę o podanie tekstu źródłowego do tłumaczenia.2 | wartość p | |||
| Niski | Wysoki | |||||
| Wiek (lata) | ≤60 | 24 | 29 | 53 | 1.357 | 0.244 |
| ˃60 | 37 | 67 | 104 | |||
| Suma | 61 | 96 | 157 | |||
| Płeć | Samiec | 42 | 73 | 115 | 1.06 | 0.3032 |
| Kobieta | 19 | 23 | 42 | |||
| Suma | 61 | 96 | 157 | |||
| Typ histologiczny | Rak płaskonabłonkowy | 31 | 41 | 72 | 1.09 | 0.2965 |
| Gruczolakorak | 30 | 55 | 85 | |||
| Suma | 61 | 96 | 157 | |||
| Stopień złośliwości nowotworu | Ⅰ-Ⅱ | 55 | 58 | 113 | 16.25 | 0.00006 |
| Ⅲ | 6 | 38 | 44 | |||
| Suma | 61 | 96 | 157 | |||
| Przerzuty do węzłów chłonnych | Ujemny | 41 | 37 | 78 | 12.17 | 0.00049 |
| Dodatni | 20 | 59 | 79 | |||
| Suma | 61 | 96 | 157 | |||
| Wielkość guza (cm) | ≤3 | 20 | 23 | 43 | 5.623 | 0.0601 |
| 3-7 | 40 | 62 | 102 | |||
| ˃7 | 1 | 11 | 12 | |||
| Suma | 61 | 96 | 157 | |||
| stopień T | T1 | 15 | 17 | 32 | 4.295 | 0.117 |
| T2 | 36 | 52 | 88 | |||
| T3 | 10 | 27 | 37 | |||
| Suma | 61 | 96 | 157 | |||
Tabela 1: Związek między ekspresją miR-21-5p a charakterystyką kliniczno-patologiczną u pacjentów z niedrobnokomórkowym rakiem płuca.Wartości przedstawiają liczbę pacjentów. Związki oceniano za pomocą testu χ2. Skrót: NSCLC = niedrobnokomórkowy rak płuca. Każdy test χ2 został przeprowadzony dla kategorycznych zmiennych kliniczno-patologicznych; we wszystkich analizach wykorzystano pełny zbiór 157 próbek pacjentów.
| n | P wartość | Ryzyko względne | 95% przedział ufności | |||
| Obniżony | Górny | |||||
| Wiek (lata) | ≤60 | 53 | 0.503 | 1.282 | 0.62 | 2.652 |
| ˃60 | 104 | |||||
| Płeć | Samiec | 115 | 0.339 | 1.418 | 0.693 | 2.901 |
| Kobieta | 42 | |||||
| Typ histologiczny | Rak плоскоściwniastkowaty | 72 | 0.515 | 1.261 | 0.627 | 2.537 |
| Gruczolakrak | 85 | |||||
| ekspresja miR-21-5p | Wysoki | 96 | 0.005 | 3.066 | 1.412 | 6.659 |
| Niski | 61 | |||||
| Przerzuty do węzłów chłonnych | Negatywny | 78 | 0.002 | 22.295 | 3.039 | 163.588 |
| Dodatni | 79 | |||||
Tabela 2: Wieloczynnikowa analiza proporcjonalnych hazardów Coxa dla przeżycia całkowitego u pacjentów z niedrobnokomórkowym rakiem płuca. Wartości przedstawiają współczynniki hazardu z 95% przedziałami ufności. Skróty: CI = przedział ufności; NSCLC = niedrobnokomórkowy rak płuca. Wieloczynnikowa regresja Coxa została przeprowadzona na pełnych danych kohorty klinicznej; HR oraz 95% CI obliczono w celu niezależnego przesiewu prognostycznego.
Plik uzupełniający 1: Sekwencje oligonukleotydów i starterów wykorzystanych do transfekcji oraz ilościowej reakcji polimerazy w łańcuchu z odwrotną transkrypcją (qRT-PCR). Plik zawiera sekwencje mimiku i inhibitora miR-21-5p, ich odpowiednie kontrole negatywne oraz startery dla CADM1, GAPDH, hsa-miR-21-5p oraz cel-miR-39. Wszystkie sekwencje przedstawiono w kierunku 5′–3′. Skróty: CADM1 = cząsteczka adhezyjna komórek 1; cel = Caenorhabditis elegans; GAPDH = gliceraldehyd-3-fosforan dehydrogenaza; hsa = Homo sapiens; miR = microRNA; PCR = reakcja polimerazy w łańcuchu. Kliknij tutaj, aby pobrać ten plik.
Plik uzupełniający 2. Dane źródłowe wspierające rysunki. Plik ten zawiera podstawowe zestawy danych i analizy statystyczne wykorzystane do wygenerowania rysunków przedstawionych w manuskrypcie, w tym charakterystykę kliniczną, analizy ekspresji, dane dotyczące przeżywalności oraz powiązane wyniki statystyczne. Dane źródłowe te wspierają wnioski przedstawione w tekście głównym. Kliknij tutaj, aby pobrać ten plik.
Dyskusja
W niniejszym badaniu systematycznie potwierdzono podwyższoną ekspresję miR-21-5p w tkankach klinicznych NSCLC, co korelowało ze zwiększoną transkrypcją czynników zapalnych oraz silniejszą zdolnością komórek do migracji i proliferacji; jednocześnie eksperymenty z wykorzystaniem podwójnego lucyferazy, qRT-PCR oraz badania rescue zidentyfikowały CADM1 jako bezpośredni cel funkcjonalny, a analiza bioinformatyczna wykazała ponadto, że cele downstream miR-21-5p są wzbogacone w onkogenne kaskady MAPK i Ras, co dostarcza wstępnych dowodów na to, że oś miR-21-5p/CADM1 może być zaangażowana w szlaki sygnalizacyjne związane z progresją złośliwą guza.
Analiza kohorty klinicznej wykazała, że wysoka ekspresja miR-21-5p była ściśle powiązana z zaawansowanym stopniem złośliwości nowotworu, przerzutami do węzłów chłonnych oraz krótszym przeżyciem całkowitym. Wieloczynnikowa regresja Coxa potwierdziła, że miR-21-5p jest niezależnym niekorzystnym czynnikiem prognostycznym, co sugeruje, że miR-21-5p może służyć jako potencjalny biomarker do oceny ryzyka progresji i przeżycia pacjentów z NSCLC.
In vitro testy funkcjonalne wykazały, że nadekspresja miR-21-5p sprzyja proliferacji, migracji i odpowiedzi zapalnej komórek NSCLC, podczas gdy zwiększenie ekspresji CADM1 odwracało wszystkie te fenotypy onkogenne; ujemna korelacja ekspresji między miR-21-5p a CADM1 w próbkach pacjentów, wraz z danymi z badań nad ratowaniem funkcji komórkowych, w pełni wyjaśniła mechanizm regulacyjny, w którym miR-21-5p napędza złośliwe zachowania NSCLC poprzez bezpośrednie hamowanie CADM1.
Zgodnie z wcześniejszymi badaniami wskazującymi na onkogenną rolę miR-21-5p w raku płuca, niniejsza praca uzupełnia dane o korelacji klinicznej oraz pełną walidację poprzez eksperymenty z odzyskiwaniem funkcji (rescue), aby potwierdzić jego funkcję pronowotworową; w odróżnieniu od istniejących badań, które koncentrują się jedynie na pojedynczym fenotypie przerzutowym, niniejsze badanie jednocześnie wiąże miR-21-5p z proliferacją komórek i zapalnym mikrośrodowiskiem guza poprzez cel CADM1, rozszerzając sieć regulacyjną miR-21-5p w NSCLC.
W oparciu o powyższe wstępne dowody, wykrywanie ekspresji miR-21-5p w tkankach może mieć pomocniczą wartość w stratyfikacji ryzyka oraz ocenie prognostycznej NSCLC, a oś miR-21-5p/CADM1 może dostarczyć nowych potencjalnych molekularnych celów do opracowania strategii interwencyjnych hamujących progresję NSCLC, choć jej kliniczna skuteczność terapeutyczna wymaga jeszcze weryfikacji.
Niniejsze badanie posiada kilka ograniczeń. Wykorzystano w nim testy komórkowe in vitro oraz pojedynczą retrospektywną kohortę kliniczną, bez walidacji na ksenoprzeszczepach in vivo lub na niezależnej kohorcie zewnętrznej. Nie przeprowadzono dodatkowych testów proliferacji (np. testów z EdU i testów tworzenia kolonii), testów inwazji, apoptozy ani analiz cyklu komórkowego. Niedostępne były również badania krwi obwodowej pod kątem potencjału diagnostyki nieinwazyjnej, walidacja poziomu białka CADM1, pełna lista nakładających się genów docelowych oraz systematyczna analiza sieci oddziaływań białko-białko (PPI). Przyszłe prace powinny odnieść się do tych ograniczeń i dokładniej zbadać regulatory powyżej miR-21-5p oraz sygnalizację CADM1 poniżej tego regulatora.
Łącznie praca ta dostarcza wstępnych dowodów na to, że miR-21-5p działa jako onkogenne mikroRNA, przyspieszając proliferację, migrację i stan zapalny w NSCLC poprzez bezpośrednie celowanie w CADM1a jego wysoka ekspresja zwiastuje niekorzystne rokowanie przeżycia pacjentów.
Oświadczenia
Autorzy nie mają żadnych istotnych interesów finansowych ani niefinansowych do ujawnienia.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 10% neutralny buforowany formalin | Fisher Scientific (Fisherbrand™) | SF10-4 (typowy) | Fiksatyw do tkanek; tkanki pocięte na &grubość < 5 mm, utrwalone w temperaturze pokojowej przez 14–26 godzin |
| 24-dołkowa płytka do hodowli komórkowych | Corning | 3526 | Płytka do wysiewu transfektowanych komórek i przeprowadzenia testu gojenia ran (testu zarysowania) |
| Linia komórkowa A549 | ATCC (lub Shanghai Resource Center) | CCL-185 | Ludzka linia komórkowa raka niedrobnokomórkowego płuca (NSCLC) (gruczolakorak) |
| zestaw do testu CCK-8 | Dojindo | CK04 | Wykrywanie proliferacji |
| Pożywka do hodowli komórkowej (nieokreślona) | Gibco (Thermo Fisher Scientific) | Różne (np. RPMI-1640: 11875093, F-12K: 212702) | Pożywka podstawowa dla linii komórkowych NSCLC; dokładny skład zależy od użytej linii komórkowej |
| cel-miR-39 (egzogenna kontrola wewnętrzna typu spike-in) | GenePharma (Szanghaj, Chiny) | Niestandardowy (np. B010302) | Zewnętrzny wzorzec do normalizacji ekspresji miRNA, dodawany podczas izolacji RNA |
| CO2 Inkubator (z nawilżaniem) | Thermo Fisher Scientific (Heracell) | Heracell 150i (50116047) | Zapewnia 37°C, 5% CO22or nasycona wilgotność dla hodowli komórkowych |
| CRP/TNF-αpary starterów do IL-6 | Sangon Biotech | synteza na zamówienie | Pełne sekwencje w pliku uzupełniającym 1 |
| Roztwór barwiący fioletem krystalicznym | Solarbio | G1062 | Barwienie komórek migrowanych |
| pożywka DMEM | Gibco | 11965092 | Do hodowli H129/293T |
| Zestaw do badania reporterowego z podwójną lucyferazą | Promega | E1910 | Wykrywanie WT/MUT CADM1 3'UTR |
| Egzogenny cel-miR-39 | Qiagen | niestandardowy dodatek wewnętrzny | Dodano etap po izolacji RNA w celu normalizacji |
| płodowa surowica bydlęca (FBS) | Gibco (Thermo Fisher Scientific) | 10437028 | Suplement dodawany do pożywki hodowlanej w stężeniu końcowym 10% w celu wspierania wzrostu komórek |
| precyzyjna końcówka do pipety (np. 10 µL wskazówka) | Axygen (Corning) | T-300 | Służy do ręcznego zeskrobania monowarstwy komórek w celu przygotowania "rana" przerwa |
| GAPDH (kontrola endogenna) | Wielu dostawców (np. Sangon Biotech, RiboBio; startery niestandardowe) | Niestandardowy | gen referencyjny do normalizacji mRNA stosowany w qRT-PCR |
| GO/KEGG (adnotacja clusterProfiler) | Bioconductor | wersja z 2026 r. | |
| GraphPad Prism | Oprogramowanie GraphPad | v9.5.1 | Wykresy & statystyka in vitro |
| Linia komórkowa H129 | ATCC (lub Shanghai Resource Center) | CRL-5803 | Ludzka linia komórkowa niedrobnokomórkowego raka płuca (NSCLC) pochodząca z przerzutu do węzła chłonnego |
| Inaktywowana termicznie FBS | Gibco | 10099141 | 10% stężenie robocze |
| linia komórkowa HEK-293T | ATCC | CRL-3216 | RRID:CVCL_063; miesięczne testy STR, wynik ujemny w kierunku obecności mycoplasma |
| Mieszanina do pakowania lentiwirusów | Genecopoeia (lub Takara Bio) | HPK-LvT-100 (Genecopoeia) | Zapewnia plazmidy pakujące (gag/pol, rev, vsv-g) do produkcji lentiwirusów |
| Wektor lentiwirusowy-21 (LV-21) | GeneChem (Szanghaj, Chiny) lub Genecopoeia | Niestandardowy | Wektor lentiwiralny zawierający miR-21-5p do konstruowania stabilnych linii komórkowych ekspresyjnych |
| Wektor kontrolny lentiwirusem (LV-NC) | GeneChem (Szanghaj, Chiny) lub Genecopoeia | Niestandardowy | Negatywny wektor kontrolny lentiwirusem bez wkładki miR-21-5p |
| Odczynnik do transfekcji lipidowej | Thermo Fisher | L30015 | Do transfekcji przejściowej |
| Odczyn do transfekcji Lipofectamine 30 | Invitrogen (Thermo Fisher Scientific) | L30015 lub L3008 | Odczynnik do transfekcji oparty na lipidach; 50 godzin po transfekcji w celu przeprowadzenia kolejnych eksperymentów |
| Metanol | Sinopharm | 67-56-1 | Fiksacja komórek |
| Metanol (utrwalacz/rozcieńczalnik do barwienia) | Sigma-Aldrich | 34860 | Stosowany jako utrwalacz lub rozcieńczalnik do barwienia fioletem krystalicznym |
| inhibitor miR-21-5p/inhibitor-NC | GenePharma | synteza na zamówienie | Sekwencje w pliku uzupełniającym 1 |
| mimik miR-21-5p/mimik-NC | GenePharma | synteza na zamówienie | Sekwencje w pliku uzupełniającym 1 |
| miRDB | Washington University | v6.0 | |
| miRWalk | Uniwersytet w Heidelbergu | v3.0 | |
| Krajowe Centrum Inżynierii Biopsji | Krajowe Centrum Inżynierii Biopsji (Chiny) | Nie dotyczy | Instytucjonalny dostawca próbek tkanek raka płuca z zapisanymi danymi klinicznymi i diagnozą histopatologiczną |
| Tkanka NSCLC (do hodowli pierwotnej) | Shanghai Rui Bao He Biotechnology Co. | Zamówienie indywidualne | Źródło tkanki; hodowane w pożywce z 10% FBS w temperaturze 37°C; do transfekcji wybrano komórki o prawidłowej morfologii w logarytmicznej fazie wzrostu |
| Termocykler | Applied Biosystems (Thermo Fisher Scientific) | 750 Fast (406984) | Pozyskiwanie produktów amplifikacji do qRT-PCR |
| penicylina-streptomycyna | Solarbio | P1400 | 10 j./ml penicyliny, 100 μg/mL streptomycyna |
| Pipety (pojedyncze & Wielokanałowy) | Eppendorf | Seria Research Plus | W celu precyzyjnego dozowania cieczy we wszystkich eksperymentach |
| Polybrene | Sigma-Aldrich | H9268 | Końcowy 5 μg/mL do infekcji lentiwirusowej |
| Puromycyna | InvivoGen | ant-pr-1 | 5 μg/mL do przesiewania linii komórkowych stabilnie zakodowanych |
| dihydrochlorowodorek puromycyny | Thermo Fisher Scientific (InvivoGen) | ant-pr-1 (InvivoGen); P725 (Sigma-Aldrich) | Antybiotyk selekcyjny, stosowany w stężeniu 5 μg/mL w celu utworzenia stabilnie transfektowanych linii komórkowych |
| R | R Foundation | v4.2.1 | Pakiet: clusterProfiler, ggplot2 |
| Zestaw do odwrotnej transkrypcji | Takara | RR047 | RT z pętlą stem-loop dla miRNA, oligo(dT) dla mRNA |
| Probówki EP wolne od RNaz | Axygen (Corning) | MCT-150-C | Probówki 1,5 ml wolne od RNaz do przechowywania i przetwarzania RNA |
| pożywka RPMI-1640 | Gibco | 11875093 | Do hodowli komórek A549 |
| si-CADM1 | GenePharma | synteza na zamówienie | Sekwencje w Pliku uzupełniającym 1 |
| si-NC | GenePharma | synteza na zamówienie | Sekwencje w pliku uzupełniającym 1 |
| SPSS | IBM | v26.0 | Kliniczna analiza regresji Coxa |
| Gotowa mieszanina do qPCR z SYBR Green | Roche | 4913914001 | Amplifikacja qRT-PCR |
| TargetScan | MIT | v8.2 | |
| Odczynnik do ekstrakcji całkowitego RNA | Takara | 9109 | Liza oparta na fenolu i guanidynie |
| Komora Transwell | Corning (Costar) | 342 (24-dołkowa, 8.0 µm) | Do transfekcji komórek w pożywce w temperaturze pokojowej; dodano primery chemiczne i inkubowano przez 48 h |
| Komory migracyjne Transwell | Corning | 3422 | 8 μm wielkość porów |
| Odczynnik TRIzol | Invitrogen (Thermo Fisher Scientific) | 15596026 | Ekstrakcja całkowitego RNA z próbek tkanek; ocena jakości RNA na podstawie stosunków OD260/280 i OD260/230 |
| Trypsyna-EDTA (0,25%) | Gibco (Thermo Fisher Scientific) | 25200072 | Do odrywania komórek od naczyń hodowlanych przed wysianiem ich na płytki 24-dołkowe |
Bibliografia
- Bautista-Sánchez D, et al. The promising role of miR-21 as a cancer biomarker and its importance in RNA-based therapeutics. Mol Ther Nucleic Acids. 2020;20:409-20.
- Zhou J, et al. Global burden of lung cancer in 2022 and projections to 2050: incidence and mortality estimates from GLOBOCAN. Cancer Epidemiol. 2024;93:102693.
- Nicholson AG, et al. The 2021 WHO classification of lung tumors: impact of advances since 2015. J Thorac Oncol. 2022;17(3):362-87.
- The Lancet Regional Health – Europe. NSCLC: bridging the gap between clinical progress and real-world application. Lancet Reg Health Eur. 2024;38:100878.
- Reyes J, et al. Oncogenic and tumor-suppressive forces converge on a progenitor niche at the benign-to-malignant transition. Cell. 2026;189(10):2875-97.e53.
- Yu L, Yang R, Long Z, Tao Q, Liu B. Targeted therapy of non-small cell lung cancer: mechanisms and clinical trials. Front Oncol. 2024;14:1451230.
- O'Brien J, Hayder H, Zayed Y, Peng C. Overview of microRNA biogenesis, mechanisms of actions, and circulation. Front Endocrinol (Lausanne). 2018;9:402.
- Treiber T, Treiber N, Meister G. Regulation of microRNA biogenesis and its crosstalk with other cellular pathways. Nat Rev Mol Cell Biol. 2019;20(1):5-20.
- Ohno S, Kuroda M. Exosome-mediated targeted delivery of miRNAs. Methods Mol Biol. 2016;1448:261-70.
- Ell B, Kang Y. MicroRNAs as regulators of bone homeostasis and bone metastasis. Bonekey Rep. 2014;3:549.
- Dedeoğlu BG. High-throughput approaches for microRNA expression analysis. Methods Mol Biol. 2014;1107:91-103.
- Qu K, et al. Circulating miRNA-21-5p as a diagnostic biomarker for pancreatic cancer: evidence from comprehensive miRNA expression profiling analysis and clinical validation. Sci Rep. 2017;7(1):1692.
- Xu H, et al. Engineered exosomes transporting the lncRNA, SVIL-AS1, inhibit the progression of lung cancer via targeting miR-21-5p. Am J Cancer Res. 2024;14(7):3335-47.
- Chawra HS, et al. MicroRNA-21's role in PTEN suppression and PI3K/AKT activation: implications for cancer biology. Pathol Res Pract. 2024;254:155091.
- Huang Y, Feng G. MiR-423-5p aggravates lung adenocarcinoma via targeting CADM1. Thorac Cancer. 2021;12(2):210-7.
- Hartsough EJ, et al. CADM1 is a TWIST1-regulated suppressor of invasion and survival. Cell Death Dis. 2019;10(4):281.
- Li H, Gao J, Zhang S. Functional and clinical characteristics of cell adhesion molecule CADM1 in cancer. Front Cell Dev Biol. 2021;9:714298.