Infekcja nicieniami nerkowatymi znacząco obniża plon bawełny i jakość włókna. Lignina wzmacnia ściany komórkowe roślin i przyczynia się do strukturalnej obrony przed szkodnikami, jednak jej rola w odporności bawełny na nicienie nerkowate nie została zbadana. Niniejsze badanie opisuje histochemiczny schemat postępowania służący do wizualizacji odkładania się ligniny w korzeniach genotypów bawełny (Gossypium arboreum) odpornych i podatnych na nicienie nerkowate z wykorzystaniem barwienia floroglucinolem.
Artykuł badawczy
Analiza histochemiczna różnic w zawartości ligniny pomiędzy genotypami bawełny odpornymi i podatnymi na nicienie nerkowate
W tym artykule
Podsumowanie
Streszczenie
Nematody nerkowate (Rotylenchulus reniformis) stanowią główną barierę w produkcji bawełny, szczególnie w południowych stanach USA. Nematoda nerkowata jest drugim najważniejszym szkodnikiem spośród ponad 400 gatunków nematod. Nematody te stanowią zagrożenie dla globalnego bezpieczeństwa żywnościowego. Rosnące obawy dotyczące środowiska i zdrowia ludzi oraz koszt nematycydów zwiększyły zainteresowanie odpornym materiałem genetycznym bawełny. Ściana komórkowa roślin, a zwłaszcza lignina, jest kluczowym biopolimerem uczestniczącym w odporności na stres biotyczny. Ponieważ nematody infekują tkanki korzeniowe, składniki ściany komórkowej, takie jak lignina, mogą przyczyniać się do obrony; jednak bariery pośredniczone przez ligninę w korzeniach bawełny nie są dobrze scharakteryzowane. W niniejszym badaniu zastosowano standaryzowany protokół barwienia histochemicznego floglucynol-HCl w celu wizualizacji różnic w osadzaniu ligniny w odpornych na nematody nerkowate (A2-514, A2-995) i podatnych genotypach bawełny (Gossypium arboreum) na etapie liścia właściwego w warunkach braku infekcji. Barwnik ten wiąże się specyficznie z hydroksycynamyloaldehydami, takimi jak aldehyd koniferylowy i aldehyd sinapilowy ligniny, w obecności kwasu i generuje różowo-fioletowy kolor w celu wizualizacji ligniny. Pomiędzy genotypami odpornymi a podatnymi zaobserwowano wyraźne wzorce barwienia ligniny, co potwierdza potencjalną rolę strukturalnych mechanizmów obronnych związanych z ligniną.
Wprowadzenie
Bawełna jest uprawiana na całym świecie ze względu na jej włókna i jest bardzo podatna na szkodniki glebowe, w szczególności nicienie, które mogą powodować znaczne straty w plonach. Wśród nich nicień nerkowaty (Rotylenchulus reniformis) jest głównym patogenem atakującym bawełnę i inne uprawy na świecie, z wyraźnym wpływem w południowych stanach USA, gdzie infestacje mogą zmniejszyć plony o ponad 50%1. Ten mikroskopijny organizm bytujący w glebie pasożytuje na korzeniach bawełny2, upośledzając wigor rośliny, biomasę i plon włókna poprzez zakłócenie pobierania wody i składników odżywczych oraz tworzenie miejsc żerowania (Ryc. 1). Infekcja nicieniem nerkowatym zmienia wzrost rośliny bawełny poprzez opóźnienie czasu kwitnienia, zmniejszenie wielkości i liczby torebek oraz obniżenie jakości włókien3. Poważne straty odnotowano w Missisipi, Alabamie i Luizjanie4. Do zwalczania infestacji nicieniami powszechnie stosuje się nematycydy, jednak ich wysoki koszt oraz negatywny wpływ na środowisko i zdrowie ludzi wymusiły potrzebę znalezienia alternatyw5,6. Opracowanie odpornej plazmy zarodkowej stanowi obiecujące podejście do ograniczenia szkód wyrządzanych przez nicienie nerkowate4. Ponieważ nicienie żerują wewnątrz tkanek korzenia, zakłada się, że mechanizmy obronne oparte na ścianie komórkowej, w szczególności lignifikacja, ograniczają inwazję, hamują pochodzące od patogenów enzymy degradujące ścianę komórkową oraz ograniczają tworzenie i rozszerzanie się miejsc żerowania nicieni7,8,9. Zwiększona lignifikacja była skorelowana ze zmniejszoną podatnością na patogeny u różnych gatunków roślin10,11,12,13,14. Wcześniejsze badania nad bawełną powiązały ekspresję genów ligniny i lakkazy z odpornością na Verticillium dahliae15, a badania nad odmianami odpornymi i podatnymi na Fusarium wykazały wyższe poziomy ligniny w odmianach odpornych16. Podobne obserwacje u Arabidopsis i ryżu, gdzie supresja genów biosyntezy ligniny zwiększyła podatność, podkreślają znaczenie lignifikacji w obronie roślin.
Lignina jest złożonym biopolimerem fenolowym występującym w wtórnych ścianach komórkowych roślin naczyniowych, gdzie nadaje sztywność strukturalną, wytrzymałość mechaniczną oraz hydrofobowość17. Syntetyzowana poprzez szlaki sykimianowy i fenylopropanoidowy, lignina jest drugim pod względem zawartości biopolimerem lądowym po celulozie, stanowiąc około 30% organicznego węgla na Ziemi18,19. Poprzez wzmacnianie sieci celulozowo-hemicelulozowej, lignina usztywnia tkanki nośne i wspiera ogólny rozwój rośliny. Lignina występuje szczególnie intensywnie w wysoce wyspecjalizowanych tkankach, takich jak ksylem, sklerenchyma, włókna łyka i peryderm, tworząc wodoodporną barierę niezbędną do efektywnego transportu wody i minerałów. Oprócz funkcji strukturalnych, lignina działa jako biochemiczna i fizyczna bariera ochronna, ograniczając wnikanie patogenów i minimalizując uszkodzenia spowodowane stresami biotycznymi i abiotycznymi20,21,22. Lignifikacja jest dynamicznym procesem kluczowym dla odporności na szerokie spektrum patogenów, w tym nekrotrofy, biotrofy i hemibiotrofy. Jej biosynteza z podstawowych monolignoli – alkoholu sinapylonego, koniferylowego i p-kumarylowego – różni się w zależności od gatunku, typu tkanki i stadium rozwojowego, co wpływa na stopień odporności. Inwazja patogenów lub stres abiotyczny często wyzwalają miejscowe odkładanie się ligniny, co dodatkowo wzmacnia mechanizmy obronne rośliny23,24.
Wyjaśnienie roli ligniny w odporności na nicienie nerkowate jest kluczowe dla rozwoju strategii zarządzania uprawami bawełny. Wizualna i biochemiczna charakterystyka rozmieszczenia ligniny pozwala zrozumieć przestrzenne i czasowe dynamiki modyfikacji ścian komórkowych, które leżą u podstaw wczesnych odpowiedzi obronnych. W niniejszym badaniu zastosowano histochemiczne barwienie floroglucinolem w celu analizy wzorców osadzania ligniny występujących naturalnie u genotypów bawełny odpornych i podatnych na nicienie nerkowate, co zapewnia praktyczne, wstępne ramy oceny cech odporności związanych ze ścianą komórkową i dostarcza informacji dla programów hodowlanych mających na celu zwiększenie odporności upraw.
Protokół
Eksperymenty przeprowadzono w szklarni, wykorzystując materiały roślinne opisane poniżej. Wszystkie odczynniki chemiczne, sprzęt i materiały wykorzystane w niniejszym badaniu szczegółowo opisano w Tabeli materiałów.
Materiał roślinny
Nasiona pozyskano zarówno dla materiału genetycznego podatnego (A2‑20, PI 129742; A2‑40, PI 183202), jak i odpornego (A2‑514, PI 616008; A2‑995, PI 629323). Dodatkowo w badaniu uwzględniono podatną odmianę Deltapine 16. Nasiona umieszczono w sterylnej wodzie i namaczano przez 24 h w temperaturze pokojowej. Po namaczaniu nasiona dokładnie wypłukano świeżą sterylną wodą w celu usunięcia pozostałości zanieczyszczeń. Wypłukane nasiona przeniesiono następnie na sterylne szalki Petri wyłożone uprzednio zwilżonymi, autoklawowanymi ręcznikami papierowymi i inkubowano przez 2 dni w temperaturze pokojowej, aby umożliwić kiełkowanie (Rysunek 2).
Sadzenie w szklarni
Plastikowe doniczki wypełniono uprzednio nawilżonym podłożem do doniczek z systemem kontroli wilgotności. Glebę namaczano przez dwa dni przed przesadzaniem. Wykiełkowane siewki ostrożnie przesadzono do nawilżonej gleby i utrzymywano w kontrolowanych warunkach szklarniowych w cyklach dzień/noc 28 °C/25 °C aż do stadium liści właściwych (Rysunek 2). Dla każdego genotypu posadzono trzy powtórzenia biologiczne.
Pobieranie próbek
Rośliny w stadium liści właściwych delikatnie usunięto z gleby, rozluźniając otaczające podłoże w celu zminimalizowania uszkodzeń korzeni. Korzenie przepłukano 2–3 razy wodą, aby usunąć przylegające cząsteczki gleby. Tkanki korzenia i pędu każdego genotypu pobrano do wykonania przekrojów (Rysunek 3).
Przygotowanie roztworu barwiącego z floroglucynolem
3% roztwór floroglukinolu przygotowano poprzez rozpuszczenie 0,45 g floroglukinolu w mieszaninie dwóch części 100% etanolu (10 mL) i jednej części stężonego HCl (5 mL) w dygestorium. Roztwór barwiący przygotowano zgodnie z wcześniej opisaną metodą16.
Przygotowanie przekrojów i procedura barwienia do analizy histochemicznej ligniny
Tkanki korzenia i pędu pocięto sterylnym ostrzem do golenia, aby uzyskać cienkie przekroje poprzeczne (Rycina 3). Świeże przekroje przeniesiono na szkiełka przedmiotowe i pokryto 20 µL 3% roztworu barwiącego z floroglucinolem na 1 min. Następnie przekroje przepłukano sterylną wodą, przykryto szkiełkami nakrywkowymi i wykonano zdjęcia (Rycina 4, Rycina 5, Rycina 6). Tę samą procedurę zastosowano w przypadku tkanek łodygi (Rycina uzupełniająca 1).
Obrazowanie mikroskopowe
Obrazowanie wykonano przy użyciu mikroskopu cyfrowego. Przygotowane szkiełka przedmiotowe zawierające barwione próbki tkanek umieszczono na platformie mikroskopu w celu wykonania zdjęć. Po uruchomieniu oprogramowania do obrazowania mikroskopowego, w trybie jasnego pola wybrano odpowiednie powiększenia: 100x, 200x oraz 300x. Dokonano wstępnego i precyzyjnego ustawienia ostrości, aby wyraźnie zwizualizować wzory barwienia ligniny w przekrojach tkanek. Obrazy zarejestrowano i zapisano wraz z odpowiednimi numerami identyfikacyjnymi próbek. Następnie przeprowadzono analizę porównawczą, badając obrazy genotypów odpornych i podatnych w celu oceny różnic w barwieniu ligniny. Obrazy genotypów odpornych i podatnych porównano za pomocą programu ImageJ, aby określić różnice w procencie powierzchni zabarwionej przy użyciu jednolitych progów. Wyniki wyeksportowano do plików CSV po przetworzeniu wszystkich trzech powtórzeń. Następnie przygotowano wykresy w celu porównania genotypów odpornych i podatnych.
Wyniki
Analiza histochemiczna genotypów bawełny odpornych i podatnych
Badanie histochemiczne przekrojów poprzecznych korzenia i łodygi w stadium prawdziwych liści ujawniło różnice wizualne między genotypami odpornymi a podatnymi, co przedstawiono na Rysunku 4, Rysunku 5 oraz Rysunku dodatkowym 1 (przekroje poprzeczne łodygi). Większe powiększenia (100x–300x) pozwoliły na szczegółowy wgląd w te różnice (Rysunek 4A–C oraz Rysunek 5A–C dla genotypów odpornych i Rysunek 4D–F oraz Rysunek 5D–F dla genotypów podatnych). Wzory barwienia ligniny różniły się w zależności od typów tkanek: genotypy odporne wykazywały niższe lub podobne wzory barwienia ligniny w łodygach, podczas gdy genotypy podatne wykazywały wizualnie względnie wyższy stopień lignifikacji łodygi (Rysunek dodatkowy 1A–D).
Ilościowa analiza obrazów po barwieniu ligniny
Deltapine 16, podatna odmiana uwzględniona w niniejszym badaniu, wykazywała słabsze barwienie ligniny (Rysunek 6A–C) przy wartościach procentowej powierzchni zabarwionej wynoszących odpowiednio 12, 17,8 oraz 16,3 (Rysunek 6D). Podatny genotyp A2-40 osiągnął wartości procentowej powierzchni zabarwionej na poziomie 25,2, 19,9 i 28,75, natomiast genotyp odporny, A2-995, wykazał wartości procentowej powierzchni zabarwionej wynoszące 54,95, 58,71 oraz 69,85 (Rysunek 7). Z kolei A2-20 miał wartości procentowej powierzchni zabarwionej wynoszące 16,6, 21,3 i 20,4, podczas gdy A2-514 wykazał wartości procentowej powierzchni zabarwionej równe 49,8, 34,1 oraz 43,38 (Rysunek 8). Porównanie to dało wartość p równą 0,06. Ponieważ wartości te zostały wygenerowane przy użyciu różnych progów, przeprowadzono analizę w programie ImageJ z jednolitym progiem, stosując identyczne progi barwy, nasycenia i jasności w celu zapewnienia powtarzalności między powtórzeniami. Genotyp odporny (A2-514) wykazał względnie silniejsze barwienie niż genotyp podatny (A2-20). Procentową powierzchnię zabarwioną obliczono jako stosunek pikseli dodatnich pod kątem ligniny do całkowitej liczby pikseli tkanki w przekroju. Ilościowe porównanie z jednolitym progiem dla genotypu podatnego A2-20 i genotypu odpornego A2-514 przedstawiono na Rysunku 9. Ogólnie analiza z jednolitym progiem wykazuje, że między tymi genotypami istnieją specyficzne dla genotypu różnice w lignifikacji.
DOSTĘPNOŚĆ DANYCH:
Surowe dane zostały dodane jako Plik uzupełniający.
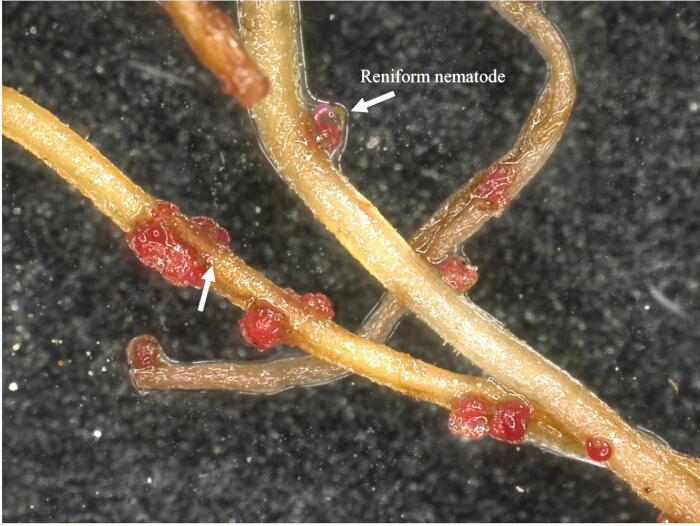
Rysunek 1: Widok mikroskopowy nicieni nerkowatych żerujących na korzeniach bawełny. Przedstawiono nicienie nerkowate żerujące na korzeniach bawełny przy powiększeniu 50x po barwieniu czerwonym barwnikiem spożywczym. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
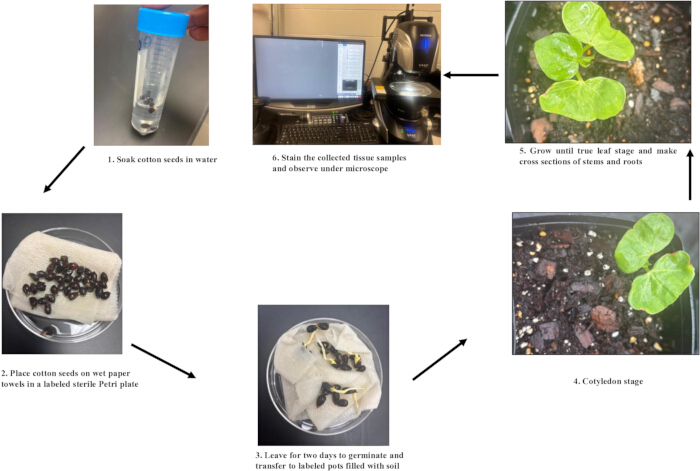
Rysunek 2: Przygotowanie materiału roślinnego do histochemicznej analizy ligniny. Procedura obejmuje następujące etapy: (1) namaczanie nasion bawełny w wodzie; (2) umieszczenie nasion na mokrych ręcznikach papierowych w opisanej sterylnej płytce Petriego; (3) pozostawienie nasion do kiełkowania przez 2 dni i przeniesienie siewek do opisanych doniczek z glebą; (4) hodowla siewek do stadium liści zasiedlowych; (5) dalsza hodowla roślin do stadium liści właściwych i przygotowanie przekrojów poprzecznych łodyg i korzeni; oraz (6) barwienie zebranych przekrojów tkanek i obserwacja ich pod mikroskopem. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
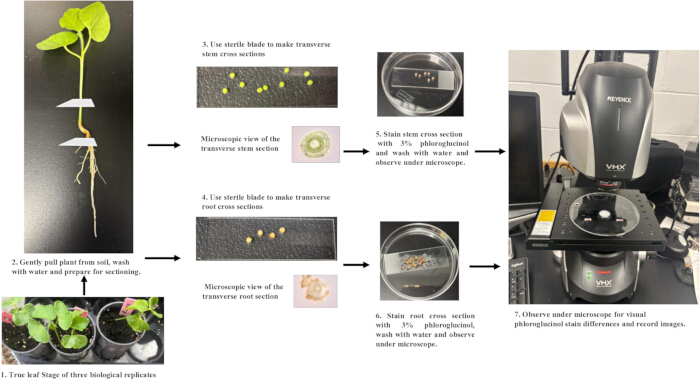
Rycina 3: Pobieranie i barwienie przekrojów korzenia i łodygi bawełny z użyciem floroglukinolu-HCl. Procedura składa się z następujących etapów: (1) hodowla trzech powtórzeń biologicznych do stadium liści właściwych; (2) ostrożne usunięcie roślin z gleby, przemycie wodą i przygotowanie do sekcjonowania; (3) przygotowanie poprzecznych przekrojów łodygi za pomocą sterylnego ostrza; (4) przygotowanie poprzecznych przekrojów korzenia za pomocą sterylnego ostrza; (5) barwienie przekrojów łodygi 3% floroglukinolem-HCl, płukanie wodą i obserwacja pod mikroskopem; (6) barwienie przekrojów korzenia 3% floroglukinolem-HCl, płukanie wodą i obserwacja pod mikroskopem; oraz (7) obserwacja zabarwionych przekrojów pod mikroskopem w celu wizualizacji różnic w barwieniu floroglukinolem i rejestracja obrazów. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
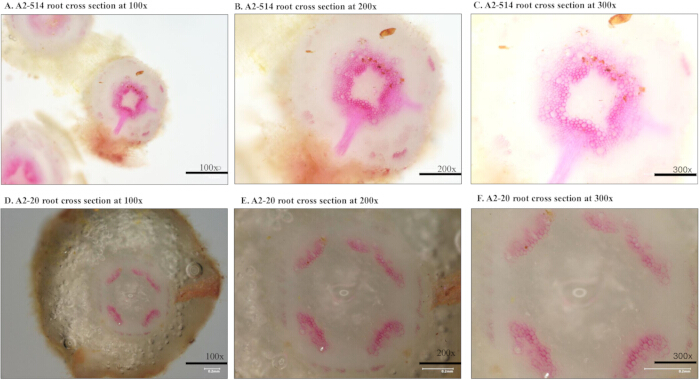
Rysunek 4: Barwienie ligniny w przekrojach poprzecznych korzeni genotypów bawełny A2-514 i A2-20. Przekroje poprzeczne korzeni genotypu odpornego A2-514 zabarwione na ligninę przy powiększeniu (A) 100x, (B) 200x i (C) 300x. Przekroje poprzeczne korzeni genotypu podatnego A2–20 zabarwione na ligninę przy powiększeniu (D) 100x, (E) 200x i (F) 300x. Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
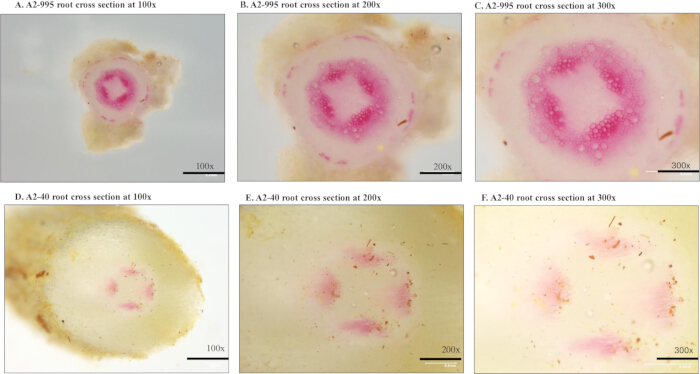
Rycina 5: Barwienie ligniny w przekrojach poprzecznych korzeni genotypów bawełny A2-995 i A2-40. Przekroje poprzeczne korzeni genotypu odpornego A2-995 zabarwione na ligninę przy powiększeniu (A) 100x, (B) 200x i (C) 300x. Przekroje poprzeczne korzeni genotypu podatnego A2-40 zabarwione na ligninę przy powiększeniu (D) 100x, (E) 200x i (F) 300x. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
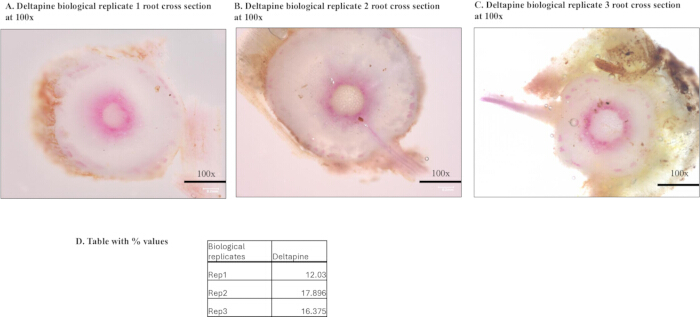
Rycina 6: Barwienie ligniną i analiza ilościowa przekrojów poprzecznych korzeni Deltapine 16. Barwione ligniną przekroje poprzeczne korzeni trzech powtórzeń biologicznych podatnej odmiany Deltapine 16 przy powiększeniu 100x: (A) powtórzenie biologiczne 1, (B) powtórzenie biologiczne 2 oraz (C) powtórzenie biologiczne 3. (D) Procent powierzchni zabarwionej dla trzech powtórzeń biologicznych wyznaczony za pomocą ilościowej analizy w programie ImageJ. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
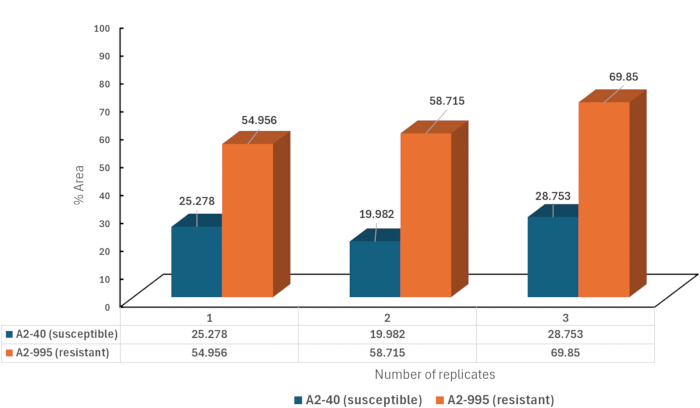
Rysunek 7: Analiza ilościowa barwienia ligniny w genotypach bawełny A2-40 i A2-995. Procent zabarwionej powierzchni wyznaczony za pomocą analizy w programie ImageJ dla trzech powtórzeń biologicznych genotypu podatnego A2-40 oraz genotypu odpornego A2-995. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
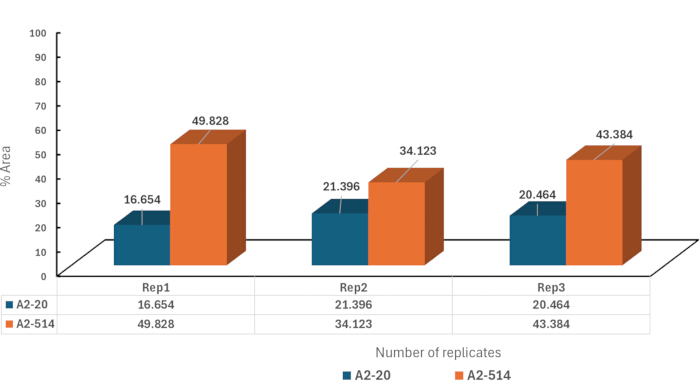
Rysunek 8: Analiza ilościowa barwienia ligniny w genotypach bawełny A2-20 i A2-514. Procent zabarwionego obszaru wyznaczony za pomocą analizy ImageJ dla trzech powtórzeń biologicznych genotypu podatnego A2-20 oraz genotypu odpornego A2-514. Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
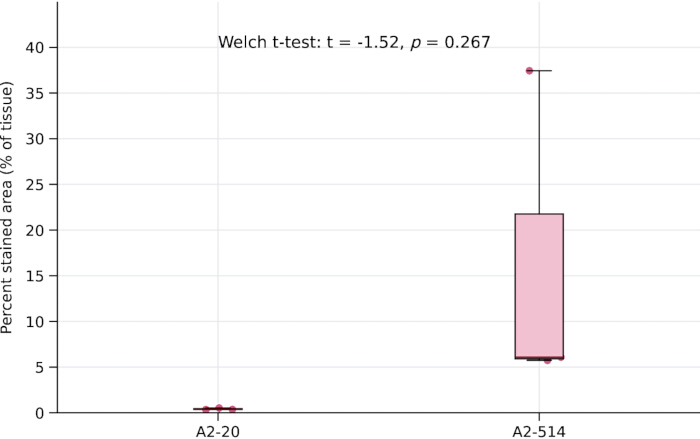
Rysunek 9: Ilościowe oznaczenie barwienia ligniną w genotypach bawełny A2-20 i A2-514 z zastosowaniem jednolitego progu. Procent barwionej powierzchni w genotypie podatnym A2-20 oraz genotypie odpornym A2-514 po analizie obrazu z zastosowaniem jednolitego progu. Porównanie statystyczne wykonano za pomocą testu t Welcha (t = −1.52, p = 0.267). Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
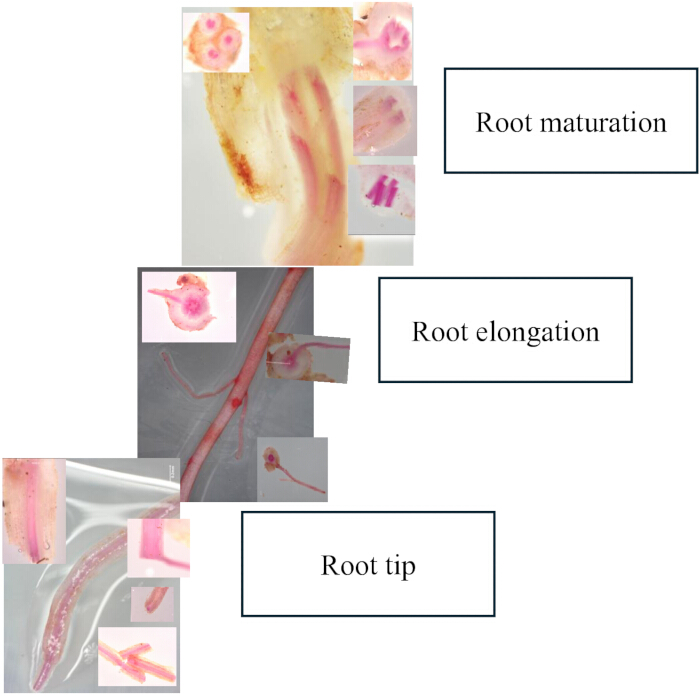
Rysunek 10: Wizualizacja barwienia ligniny w różnych regionach korzenia. Reprezentatywne obrazy przedstawiające barwienie ligniny w strefie dojrzewania korzenia, strefie wydłużania korzenia oraz w regionie wierzchołka korzenia. Proszę kliknąć tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Rycina uzupełniająca 1: Barwienie ligniny w poprzecznych przekrojach łodyg odpornych i podatnych genotypów bawełny. Przekroje poprzeczne łodyg zabarwione na ligninę przy powiększeniu 100x dla (A) podatnego A2-20, (B) odpornego A2-514, (C) podatnego A2-40 oraz (D) odpornego A2-995. Kliknij tutaj, aby pobrać ten plik.
Dyskusja
Lignina związana ze ścianami komórkowymi roślin stanowi ważną barierę fizyczną przeciwko szkodnikom, w tym nicieniom. W niniejszym badaniu odporne i podatne genotypy bawełny wykazały wyraźne różnice wizualne w barwieniu ligniny, zgodnie ze wzorcem podobnym do tego, który zgłoszono wcześniej w przypadku odmian odpornych i podatnych na Fusarium. Barwienie pozwoliło na wyraźną wizualizację rozmieszczenia ligniny w regionach korzenia — strefie dojrzewania, wydłużania oraz w czubku korzenia — gdzie intensywność ligniny wzrastała stopniowo od górnej części korzenia w kierunku czubka (Rycina 10). Choć wzorce te dostarczają użytecznych informacji anatomicznych, dynamika ligniny w odpowiedzi na infekcję nicieniami nie została oceniona w obecnym badaniu i wymaga potwierdzenia w przyszłych pracach. Poprzednie badania sugerują, że obecność patogenu może indukować biosyntezę ligniny, co podkreśla potrzebę zbadania zmian poziomu ligniny pod wpływem presji nicieni. Włączenie analiz biochemicznych ilości i składu ligniny dodatkowo wzmocniłoby interpretację wzorców barwienia zaobserwowanych u tych genotypów. Ogólnie rzecz biorąc, wyniki te podkreślają rolę strukturalnych mechanizmów obronnych opartych na ligninie w odporności bawełny na nicienie reniformne i demonstrują użyteczność barwienia floroglucinolem w charakteryzacji tych cech. Dalsza integracja podejść anatomicznych, biochemicznych i molekularnych pogłębi zrozumienie biosyntezy ligniny i jej wkładu w rozwój trwałej odporności na nicienie reniformne.
Oświadczenia
Autorzy nie zgłaszają żadnych konfliktów interesów.
Zastrzeżenia
USDA jest podmiotem zapewniającym równość szans jako dostawca, pracodawca i pożyczkodawca. Wzmianki o nazwach handlowych lub produktach komercyjnych w niniejszej publikacji służą wyłącznie celom informacyjnym i nie oznaczają rekomendacji ani poparcia ze strony Departamentu Rolnictwa USA. Wyniki i wnioski zawarte w tym artykule są opiniami autora/autorów i nie powinny być interpretowane jako oficjalne ustalenia lub polityka USDA bądź rządu USA.
Podziękowania
Autorzy dziękują dr Katherine Parys za umożliwienie dostępu do zaplecza laboratorium mikroskopii wykorzystanego w niniejszym badaniu. Autorzy dziękują również dr. Junping Chen oraz dr. Abdulraheem za sugestie i pomoc w udoskonaleniu tekstu manuskryptu. Badania zostały sfinansowane w ramach projektu USDA-ARS 6066-21000-053-00D.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Podłoże do doniczek z kontrolą wilgotności | Miracle-Gro | 073561005197 032247557832 | Strona internetowa Amazon |
| Mikroskop | Keyence VHX | VHX3000 | Można użyć dowolnego porównywalnego mikroskopu w jasnym polu |
| Sterylne żyletki | Workpro | W018057 | Strona internetowa Amazon |
| Deska do krojenia | Freshware | 15.75"L x 9.8"W x 0.3"Th | Strona internetowa Amazon |
| Lamelki i szkiełka podstawowe | Amscope | BS-50P-100S-22X4 | Można użyć dowolnej marki. Ta jest dostępna w serwisie Amazon. |
| Woda sterylna/ Woda destylowana/ woda autoklawowana | Gibco | 15230147 | Można użyć dowolnej marki/ sterylnej wody autoklawowanej |
| Barwnik floroglucynol | Fischer Scientific | AC241761000 | Dostępny w Fischer Scientific |
| Stężony HCl | Fischer Scientific | CAS: 7647-01-0 | Dostępny w Fischer Scientific |
| Etanol bezwodny | Fischer Scientific | 64-17-5 | Dostępny w Fischer Scientific |
| Doniczki | BTPLASTIK | B0DSBQMXHN | Można użyć dowolnych plastikowych doniczek, dostępnych w serwisie Amazon |
| Szalki Petriego | Kingdder | B0BS95MCGS | Dostępne w serwisie Amazon; można użyć dowolnej innej marki |
| Ręczniki papierowe | Tork | MB540A | Dostępne w serwisie Amazon; można użyć dowolnej innej marki |
| Image J | Oprogramowanie | Dostępne online | Darmowe oprogramowanie dostępne do użytku |
Bibliografia
- Robinson AF. Reniform in US cotton: when, where, why, and some remedies. Annu Rev Phytopathol. 2007;45(1):263-88.
- Li R, Erpelding JE, Stetina SR. Genome-wide association study of Gossypium arboreum resistance to reniform nematode. BMC Genet. 2018;19(1):52.
- Koebernick JC et al. Response to nematicide by cotton genotypes varying in reniform nematode resistance. Crop Sci. 2021;61(2):929-35.
- Singh B et al. Reniform nematode impact on cotton growth and management strategies: A review. Agron J. 2023;115(5):2140-58.
- Riga E. The effects of Brassica green manures on plant parasitic and free-living nematodes used in combination with reduced rates of synthetic nematicides. J Nematol. 2011;43(2):119.
- Khanal C, McGawley EC, Overstreet C, Stetina SR. The elusive search for reniform nematode resistance in cotton. Phytopathology. 2018;108(5):532-41.
- Moura JCMS et al. Abiotic and biotic stresses and changes in the lignin content and composition in plants. J Integr Plant Biol. 2010;52(4):360-76.
- Schutzendubel A, Polle A. Plant responses to abiotic stresses: heavy metal-induced oxidative stress and protection by mycorrhization. J Exp Bot. 2002;53(372):1351-65.
- Liu Q et al. Transcriptional and physiological analyses identify a regulatory role for hydrogen peroxide in the lignin biosynthesis of copper-stressed rice roots. Plant Soil. 2015;387(1-2):323-36.
- Fujimoto T, Mizukubo T, Abe H, Seo S. Sclareol induces plant resistance to root-knot nematode partially through ethylene-dependent enhancement of lignin accumulation. Mol Plant Microbe Interact. 2015;28(4):398-407.
- Wang Y et al. CmMYB19 over-expression improves aphid tolerance in chrysanthemum by promoting lignin synthesis. Int J Mol Sci. 2017;18(3):619.
- Mandal S, Kar I, Mukherjee AK, Acharya P. Elicitor-induced defense responses in Solanum lycopersicum against Ralstonia solanacearum. ScientificWorldJournal. 2013;2013(1):561056.
- Santiago R, Barros-Rios J, Malvar RA. Impact of cell wall composition on maize resistance to pests and diseases. Int J Mol Sci. 2013;14(4):6960-80.
- Gallego-Giraldo L et al. Elicitors and defense gene induction in plants with altered lignin compositions. New Phytol. 2018;219(4):1235-51.
- Smit F, Dubery IA. Cell wall reinforcement in cotton hypocotyls in response to a Verticillium dahliae elicitor. Phytochemistry. 1997;44(5):811-15.
- Mendu L et al. Lignin and cellulose content differences in roots of different cotton cultivars associated with different levels of Fusarium wilt race 4 (FOV4) resistance-response. J Agric Food Res. 2022;10:100420.
- Tiwari RK et al. Mechanistic insights on lignin-mediated plant defense against pathogen infection. Plant Physiol Biochem. 2025;228:110224.
- Ralph J et al. Lignins: Natural polymers from oxidative coupling of 4-hydroxyphenyl-propanoids. Phytochem Rev. 2004;3(1):29-60.
- Dixon RA et al. The phenylpropanoid pathway and plant defence-a genomics perspective. Mol Plant Pathol. 2002;3(5):371-90.
- Vance CP, Kirk TK, Sherwood RT. Lignification as a mechanism of disease resistance. Annu Rev Phytopathol. 1980;18(1):259-88.
- Nicholson RL, Hammerschmidt R. Phenolic compounds and their role in disease resistance. Annu Rev Phytopathol. 1992;30(1):369-89.
- Shah SWA et al. Lignin-based additive materials: A review of current status, challenges, and future perspectives. Addit Manuf. 2023;74:103711.
- Yadav S, Chattopadhyay D. Lignin: the building block of defense responses to stress in plants. J Plant Growth Regul. 2023;42(10):6652-66.
- Weng JK, Chapple C. The origin and evolution of lignin biosynthesis. New Phytol. 2010;187(2):273-85.