Niniejsza praca przedstawia protokół otrzymywania sklonowanych zarodków zagrożonego gatunku jelenia z wykorzystaniem enukleowanych oocytów bydlęcych. Opisano tutaj szczegółową metodologię międzygatunkowego transferu jąder komórek somatycznych oraz zastosowanie oocytów pozbawionych błony przejrzystej jako cytoplastów. Ponadto szczegółowo omówiono uzyskane wyniki.
Artykuł metodologiczny
Międzygatunkowy transfer jąder komórek somatycznych z wykorzystaniem oocytów bydła (Bos taurus) pozbawionych strefy przejrzystej i fibroblastów jelenia (Mazama americana)
W tym artykule
Podsumowanie
Streszczenie
Biotechnologie rozrodcze stosowane u zwierząt umożliwiają zwiększenie populacji gatunków o wysokiej wartości genetycznej. Ponadto technologie te wspomagają konserwację, przechowywanie i rozpowszechnianie materiału genetycznego osobników o doskonałych cechach. Ratowanie genetyczne wybranych osobników doprowadziło do licznych badań na gatunkach udomowionych, mających na celu ekstrapolację wyników na inne populacje zwierząt lub konkretne osobniki. Jednym z takich podejść jest wykorzystanie transferu jąder komórek somatycznych (SCNT), czyli klonowania, które służy do wytwarzania embrionów z materiałem genetycznym identycznym z materiałem istniejącego okazu. Wśród ograniczeń tej techniki znajduje się ograniczona dostępność oocytów od dzikich zwierząt. W związku z tym, jako alternatywa, pojawił się międzygatunkowy transfer jąder komórek somatycznych (iSCNT), w którym jako dawca jądra wykorzystywana jest komórka somatyczna (karyoplast) z gatunku podlegającego klonowaniu, a następnie wprowadza się ją do enukleowanego oocytu (cytoplastu) otrzymanego od gatunku należącego do innego rzędu lub taksonu. Podejście to umożliwia uzyskanie żywotnych klonowanych embrionów. W Brazylii występuje dziewięć gatunków jeleni, z których wiele jest zagrożonych z powodu niekontrolowanych polowań, utraty siedlisk i innych przyczyn. Jeleniek rudościwy (Mazama americana) jest jednym z gatunków dotkniętych tymi problemami. W związku z tym niniejsza praca przedstawia metodologię otrzymywania klonowanych embrionów jelenia rudościwego przy użyciu techniki iSCNT, w celu utworzenia banku embrionów do późniejszego transferu do samic biorców, co pomoże zapewnić przetrwanie tego gatunku.
Wprowadzenie
Rodzina Cervidae obejmuje obecnie 55 gatunków ssaków kopytnych z prawdziwymi porożami – kostnymi strukturami występującymi w górnej części czaszek samców, z wyjątkiem renifera (Rangifer tarandus), u którego poroże występuje u obu płci1, oraz jelenia wodnego (Hydropotes inermis), u którego nie występuje ono u żadnej z płci2. Jeleniowate należą do rzędu Cetartiodactyla, w skład którego wchodzą również rodziny antylop amerykańskich, wołowate, świnie, pekarie, wielbłądowate, tangowie, żyrafowate i hipopotamy. Generalnie jeleniowate są roślinożernymi przeżuwaczami, które zasiedlają szeroką gamę siedlisk na całym świecie, z wyjątkiem kontynentu Antarktydy3.
Obecnie w Brazylii rozpoznaje się dziewięć gatunków należących do rodziny Cervidae: Odocoileus virginianus (jeleń wirginijski), Blastocerus dichotomus (jeleń bagienny), Ozotoceros bezoarticus (jeleń pampasowy), Mazama americana, Mazama rufa, Mazama jucunda, Mazama nana, Subulo gouazoubira oraz Passalites nemorivagus4.
Niniejsza taksonomia odzwierciedla niedawne badania molekularne wykazujące, że rodzaj Mazama jest polifiletyczny5, co doprowadziło do uznania rodzajów Subulo6 oraz Passalites7 za odrębne i ważne jednostki taksonomiczne. Wiele z tych neotropikalnych jeleniowatych jest coraz bardziej zagrożonych presją antropogeniczną, w tym utratą siedlisk, fragmentacją krajobrazu i wynikającym z tego zmniejszeniem różnorodności genetycznej związanej z izolacją populacji8.
W ciągu ostatnich 100 lat techniki wspomaganego rozrodu zostały z sukcesem wdrożone początkowo u ssaków laboratoryjnych, a następnie stopniowo przenoszone na gatunki dzikie o wysokim priorytecie ochronnym9. W konsekwencji ogromna większość biotechnologii rozrodu ewoluowała z wykorzystaniem modelu ssaków, przez co grupa ta otrzymała największą uwagę badawczą. Wiele technologii rozrodu zostało z powodzeniem zaadaptowanych dla ssaków, w tym zapłodnienie sztuczne, transfer zarodków, zapłodnienie in vitro, sekscja gamet i zarodków oraz krio konserwacja zasobów genetycznych10. Jednak jedna technika w szczególności, transfer jąder komórek somatycznych (SCNT), wyróżniła się na tle pozostałych ze względu na uzyskane wyniki i potencjalny wpływ w przypadku zastosowania u gatunków zagrożonych11.
Wśród dostępnych biotechnologii rozrodu klonowanie umożliwia generowanie osobników identycznych genetycznie z zwierzęciem dawcą. Główną strategią stosowaną w klonowaniu jest transfer jąder komórek somatycznych (SCNT), polegający na wprowadzeniu jądra komórki somatycznej do enukleowanego oocytu. Jednak w odniesieniu do gatunków dzikich jego zastosowanie jest często ograniczone przez niedobór dawców oocytów oraz trudności techniczne związane z ich pozyskiwaniem12. Ograniczenia te doprowadziły do opracowania międzygatunkowego transferu jąder komórek somatycznych (iSCNT) jako podejścia uzupełniającego w programach ochrony przyrody, w którym oocyty zwierząt domowych służą jako cytoplasty biorcy dla jąder pochodzących od gatunków zagrożonych (Rycina 1). Wykonalność tego podejścia została udowodniona poprzez sukcesywną produkcję żywych potomstwa z kilku gatunków dzikich przy użyciu iSCNT13,14,15.
W zależności od sposobu manipulacji oocytami i komórkami dawcy zaproponowano różne strategie produkcji klonowanych embrionów. W podejściu konwencjonalnym oocyty z nienaruszoną błoną przejrzystą poddawane są enukleacji, po czym komórka dawcy jest wprowadzana do przestrzeni periwitellinarnej i łączona poprzez elektrofuzję16. Inną możliwością jest bezpośrednie wstrzyknięcie jądra somatycznego do oocytu otoczonego błoną przejrzystą przy użyciu technik mikromanipulacyjnych, takich jak mikroiniekcja17. W przeciwieństwie do nich, systemy pozbawione błony przejrzystej (ZP-free) upraszczają procedurę klonowania poprzez uniknięcie kilku etapów mikromanipulacji, ponieważ enukleacja może być przeprowadzona za pomocą pipety o tępych końcach bez konieczności stosowania złożonego sprzętu18. W niniejszym badaniu proponujemy wykorzystanie oocytów ZP-free jako cytoplastów podczas iSCNT w celu uzyskania klonowanych embrionów przy użyciu bydlęcego cytoplastu i jeleniego karyoplastu.
Protokół
Dorosła samica jelenia szkarłatnego została odnaleziona przez organy ochrony środowiska w Guaramiranga, Ceará, Brazylia (4°13'53.0'' S, 38°56'42.6'' W). Zwierzę zostało dostarczone martwe do Laboratorium Konserwacji Neotropikalnych Turaczejowatych (LACCERNE) Uniwersytetu Stanowego Ceará (UECE) w Fortaleza, Brazylia. Wyniki sekcji zwłok wykazały, że śmierć nastąpiła w wyniku wielonarządowych obrażeń traumatycznych spowodowanych pociskiem z broni palnej, który wniknął przez lewy grzbietowo-boczny region brzucha. Wykorzystanie tego okazu zostało zatwierdzone przez Komitet Etyki ds. Doświadczeń na Zwierzętach Uniwersytetu Stanowego Ceará (CEUA-UECE, protokół nr 450620/2022) oraz Brazylijski Instytut Środowiska i Odnawialnych Zasobów Naturalnych (IBAMA, protokół nr 02027.014734/99-34). Dodatkowo, wykorzystanie jajników bydlęcych zostało zatwierdzone przez CEUA/UECE (protokół nr 31032.004671/2024-81). Szczegółowe informacje o wszystkich użytych odczynnikach i sprzęcie znajdują się w Tabeli Materiałów. Dane wspierające niniejsze badanie są dostępne w serwisie Zenodo pod numerem DOI 10.5281/zenodo.22129414.
1. Roztwory i pożywki hodowlane
UWAGA: Wszystkie operacje filtrowania należy przeprowadzić przez sterylny filtr 0,22 µm, a filtrat przechowywać w temperaturze 4 °C przez maksymalnie jeden tydzień. Roztwór zapasowy należy przechowywać w temperaturze -20 °C.
- Medium transportowy: Dodać 8,1 g NaCl i 0,045 g pentabiotyku, a następnie uzupełnić wodą destylowaną do objętości 900 mL.
- Fosforanowy bufor solny (PBS): Dodać 0,4 g NaCl, 0,01 g KCl, 0,077 g NaH2PO4 oraz 0,01 g KH2PO4, a następnie uzupełnić wodą ultrapurą do objętości 50 mL.
- Medium do hodowli komórkowej: Dulbecco's Modified Eagle Medium (DMEM) uzupełniony o 10% (v/v) płodowej surowicy bydlęcej (FBS) oraz 1,0% (v/v) roztworu penicyliny, streptomycyny i amfoterycyny B (ATB).
- Roztwór do krio konserwacji fibroblastów: DMEM uzupełniony o 10% (v/v) FBS, 10% (v/v) dimetylosulfoksyd (DMSO) i 2,0% (v/v) roztworu ATB.
- Trypsyna-EDTA (0,25%).
- Medium do manipulacji: Medium Tyrode’a buforowane HEPES-em, zawierające albuminę, mleczan i pirogronian (H-TALP). Medium to należy stosować we wszystkich procedurach wykonywanych poza inkubatorem. Aby przygotować 1 L, dodać 6,763 g NaCl, 0,239 g KCl, 0,294 g CaCl2·2H2O, 0,048 g MgCl2, 0,168 g NaHCO3 oraz 3,575 g HEPES do 981,86 mL sterylnej wody do testów embrionalnych. Zamieszać i dodać 10 mL antybiotyku-antymykotyku, 1 mL czerwieni fenolowej, 1,44 mL mleczanu sodu, 1 mL roztworu zapasowego pirogronianu sodu 100 mM oraz 3 g albuminy surowicy bydlęcej (BSA). Dostosować osmolalność do 280 mOsm i pH do zakresu od 7,2 do 7,4. Rozdzielić na aliquoty po 50 mL i przechowywać w temperaturze 4 °C przez jeden miesiąc.
- Medium do dojrzewania in vitro: Medium 199 (TCM-199) uzupełnione o 10% (v/v) FBS, 10 ng/mL epidermalnego czynnika wzrostu (EGF), 1 mM pirogronianu sodu, 100 µM cysteaminy, 10 µg/mL hormonu folikulostymulującego (FSH), 1 µg/mL estradiolu i 1% (v/v) ATB. Dostosować pH do poziomu 7,2–7,4.
- Roztwór hialuronidazy (stężenie końcowe: 1 mg/mL): Rozpuścić 10 mg hialuronidazy w 10 mL H-TALP. Przygotować aliquoty po 200 µL w probówkach 1,5 mL, gotowe do użycia.
- Roztwór pronazy (stężenie końcowe: 1,5 mg/mL): Rozpuścić 15 mg pronazy w 10 mL H-TALP. Przygotować aliquoty po 200 µL w probówkach 1,5 mL, gotowe do użycia.
- Demekolcyna (stężenie końcowe: 0,4 µg/mL): Rozpuścić 5 mg demekolcyny (DMC) w 125 µL DMSO i przygotować aliquoty po 5 µL (roztwór zapasowy). Zamrozić aliquoty do czasu użycia. Rozcieńczyć poprzez zmieszanie 2 µL roztworu zapasowego z 1998 µL TCM w celu uzyskania roboczego roztworu zapasowego. Przed użyciem dodać 5 µL roboczego roztworu zapasowego do 495 µL syntetycznego płynu jajowodowego (SOF).
- Hoechst (stężenie końcowe: 10 µg/mL): Rozpuścić 1 mg/mL Hoechst 33342 w H-TALP. Przygotować aliquoty po 5 µL oraz rozcieńczenia 1:100 w medium hodowlanym SOF.
OSTROŻNIE: Hoechst 33342, stosowany do wizualizacji DNA jądrowego w świetle UV, jest agentem interkalującym i silnym mutagenem. Należy go obsługiwać przy użyciu odpowiednich środków ochrony osobistej. - Fitohemaglutynina (stężenie końcowe: 1 mg/mL): Rozpuścić 5 mg fitohemaglutyniny (PHA) w 500 µL H-TALP. Przygotować aliquoty po 10 µL w probówkach 200 µL. Przed użyciem dodać 90 µL H-TALP.
- Media do fuzji komórek: 0,3 M mannitolu, 0,1 mM MgSO4, 0,05 mM CaCl2, HEPES 0,5 mM i 1 mg/mL alkoholu poliwinylowego (PVA) w wodzie ultrapurej. Użyć w dniu przygotowania.
- Ionomycyna (stężenie końcowe: 5 µM): Dodać 1 mL DMSO do fiolki z ionomycyną (1 mg/fiolka). Dodać 1,67 mL TCM-199. Zamrozić aliquoty po 10 µL w probówkach 1,5 mL w temperaturze -20 °C. Przed użyciem dodać 990 µL H-TALP do zawartości każdej probówki 1,5 mL. Chronić przed światłem.
- 6-dimetyloaminopuryna (stężenie końcowe: 2 mM): Rozpuścić 10 mg 6-dimetyloaminopuryny (6-DMAP). Zamrozić aliquoty po 50 µL w probówkach 1,5 mL w temperaturze -20 °C. Przed użyciem dodać 950 µL SOF do zawartości każdej probówki 1,5 mL.
- Medium do hodowli embrionów: 0,2 mM L-glutaminy, 0,2 mM pirogronianu sodu, 2% niezbędnych aminokwasów Basal Medium Eagle (BME), 1% niezbędnych aminokwasów MEM 100×, 1,0% (v/v) roztworu ATB, 2,77 mM mio-inozytolu, 2,5% (v/v) FBS, 10 µL/mL ITS (mieszaniny insuliny, ludzkiej transferryny i selenitu sodu) oraz 3 g/L BSA.
2. Pobieranie i obróbka próbki tkanki dawcy
- Umyć i ogolić powierzchnię ucha samicy dawcy za pomocą wody z mydłem, a następnie zdezynfekować obszar alkoholem (70%).
- Pobrać niewielką próbkę ucha (1 × 2 cm) za pomocą ostrza skalpela, umieścić ją w roztworze PBS zawierającym 4% ATB i przetransportować do laboratorium w temperaturze 4 °C.
- Pokroić pobrany wycinek na małe fragmenty za pomocą ostrza skalpela i umieścić je w szalce Petriego o średnicy 35 mm pokrytej pożywką hodowlaną. Inkubować w temperaturze 38,5 °C przy nasyconej wilgotności i 5% CO₂.
- Wymieniać pożywkę hodowlaną co 48 h aż do momentu osiągnięcia konfluencji komórek, aby zapobiec kontaminacji.
- Usunąć pożywkę hodowlaną z konfluencyjnej płytki i dodać 1 mL 0,25% trypsyny-EDTA do szalki Petriego o średnicy 35 mm na 2 min.
- Aby inaktywować trypsynę, dodać 2 mL pożywki do hodowli komórkowych. Przenieść zawiesinę komórkową do probówki o pojemności 15 mL i odwirować przy 200 x g przez 10 min w temperaturze pokojowej (≈ 25 °C).
- Usunąć supernatant i resuspender pellet komórkowy w 10 mL pożywki hodowlanej. Przesiewać kulturę fibroblastów co 5 dni.
- Kriokonserwować fibroblasty poprzez resuspender pellet komórkowy w 1 mL roztworu do kriokonserwacji. Przenieść zawiesinę komórkową do krioprobówek, umieścić je w temperaturze -80 °C w pojemniku do zamrażania z kontrolowaną szybkością spadku temperatury na 18 h, a następnie przenieść do zbiornika z ciekłym azotem (-196 °C) do czasu użycia. Po kriokonserwacji fibroblastów manipulację komórkami można przerwać i wznowić dopiero w czasie synchronizacji cyklu komórkowego.
- Rozmrozić i hodować fibroblasty na 1-2 tygodnie przed ich wykorzystaniem do iSCNT.
3. Synchronizacja cyklu komórkowego
- Zsynchronizować cykl komórkowy poprzez doprowadzenie do konfluencji w fazie G0/G1.
- Usunąć medium hodowlane z konfluencyjnej płytki i dodać 1 mL 0,25% trypsyny-EDTA do szalki Petriego o średnicy 35 mm na 2 min w inkubatorze CO₂ w temperaturze 38,5 °C. Dodać 2 mL medium hodowlanego, aby inaktywować trypsynę.
- Przenieść zawiesinę komórkową do probówki 15 mL i odwirować przy 200 x g przez 10 min.
- Usunąć supernatant i resuspender osad komórkowy w 1-3 mL medium hodowlanego do iSCNT.
4. Pobieranie oocytów
- Pobrać jajniki bydlęce od jałówek lub krów bezpośrednio po uboju i przetransportować je do laboratorium w termosie z medium transportowym, utrzymując temperaturę 25-30 °C.
- Przemyć jajniki dwukrotnie medium hodowlanym i umieścić je w zlewce w kąpieli wodnej o temperaturze 38,5 °C.
- Odessać płyn pęcherzykowy z pęcherzyków o średnicy 2-8 mm, używając igły 18-gauge przymocowanej do strzykawki 10 mL zawierającej medium H-TALP.
- Przenieść odessany płyn pęcherzykowy do stożkowej probówki 50-mL i pozostawić go na co najmniej 15 min w kąpieli wodnej o temperaturze 38,5 °C.
5. Dojrzewanie i odcumowanie oocytów
- Po 15 min ostrożnie przenieść cały osad za pomocą plastikowej pipety Pasteura do szalki Petriego (100 × 15 mm).
- Używając stereomikroskopu, wybrać kompleksy cumulus-oocyt (COCs), które posiadają co najmniej trzy zwarte warstwy komórek cumulus i odpowiadają stopniom od I do III (Tabela 1)19.
- Przemyć COCs trzykrotnie za pomocą połowy objętości H-TALP, a następnie dwukrotnie w medium do dojrzewania in vitro.
- Przenieść od 20 do 25 COCs do każdej kropli 100 µL medium do dojrzewania in vitro przykrytej olejem mineralnym. Inkubować je w temperaturze 38,5 °C w atmosferze zawierającej 5% CO₂ i przy nasyconej wilgotności przez 20-22 h.
- Usunąć komórki z kompleksu COC poprzez delikatne pipetowanie w 200 µL roztworu hialuronidazy przez 2 min.
- Przemyć oocyty, aby usunąć komórki cumulus, w 2 mL medium H-TALP.
- Pod stereomikroskopem wybrać do kolejnych etapów oocyty wykazujące wydalenie pierwszego ciałka polarnego (metafaza II - MII).
6. Usuwanie strefy przejrzystej, enukleacja i rekonstrukcja oocytów pozbawionych strefy przejrzystej
- Inkubuj oocyty w stadium MII w 100-µL kropli roztworu pronazy w temperaturze 38,5 °C przez 1-2 min. Obserwuj pod stereomikroskopem, aż zona pellucida zacznie się przerzedzać.
- Natychmiast przenieś oocyty do pożywki hodowlanej uzupełnionej o 20% FBS, aby dezaktywować pronazę.
- Inkubuj oocyty pozbawione zona pellucida w pożywce SOF zawierającej 0,4 µg/mL demekolcyny przez 20 min, aby wywołać powstanie wypukłości cytoplazmatycznej zawierającej DNA, a następnie przeprowadź drugą 20-minutową inkubację w tej samej pożywce uzupełnionej o 10 µg/mL Hoechst.
- Przenieś oocyty pozbawione zona pellucida do kropli H-TALP i przeprowadź enukleację przy użyciu mikromanipulatorów przymocowanych do mikroskopu odwróconego.
- Umieść oocyt obok pipety trzymającej.
- Obracaj oocyt, aż wypukłość znajdzie się na godzinie trzeciej, a następnie odessij wypukłość wraz z 5-10% cytoplazmy za pomocą pipety iniekcyjnej z tępą końcówką o średnicy 25 µm.
- Potwierdź pomyślną enukleację, oglądając odessaną cytoplazmę w świetle ultrafioletowym (Rysunek 2).
UWAGA: Narażenie oocytów na barwniki DNA i światło ultrafioletowe uszkadza materiał genetyczny i wywołuje stres oksydacyjny. Zminimalizuj czas ekspozycji.
7. Fuzja komórek
- Zmontować komorę fuzyjną pod stereomikroskopem i napełnić ją 2 mL medium do fuzji o pH 7.
- W szalce Petriego o średnicy 60 mm przygotować pięć kropel H-TALP o objętości 100 µL oraz jedną kroplę o objętości 30 µL, a następnie dodać 50 µL PHA.
- Do 30 µL kropli H-TALP dodać 5 µL fibroblastów, wybrać jednorodne, refrakcyjne komórki i przenieść je do 100 µL kropli H-TALP.
- Przenieść enukleowane oocyty do 100 µL kropli H-TALP.
- Narażać oocyt na działanie kropli PHA przez 4 s, umieścić go na komórce i potwierdzić, że oba elementy przylegają do siebie. Następnie przenieść kompleks do pustej kropli TALP-H.
- Po przylegnięciu oocytu do komórki przenieść je na płytkę zawierającą 2 mL medium do fuzji, aby pozwolić im osiąść. Następnie umieścić kompleks w komorze fuzyjnej między elektrodami, pozycjonując komórkę na godzinie 6 lub 12.
UWAGA: Bufory aktywacyjne stosowane podczas elektrofuzji zawierają jonomycynę, która zaburza komórkową homeostazę wapnia. Pola elektryczne o wysokim napięciu stwarzają ryzyko porażenia prądem lub powstania łuku elektrycznego w przypadku zawilgocenia sprzętu lub niewłaściwej obsługi. - Przeprowadzić fuzję w mikrokomorze fuzyjnej z odstępem między elektrodami wynoszącym 0.2 mm. Przy użyciu elektroporatora przyłożyć pojedynczą serię impulsów składającą się z dwóch jednokierunkowych impulsów prądu stałego o natężeniu 0.72 kV/cm, gdzie każdy impuls trwa 30 µs, a odstęp między impulsami wynosi 0.1 s.
- Po przyłożeniu impulsu przenieść każdą parę oocyt-komórka indywidualnie do 5-µL mikrokropel SOF uzupełnionego o 2.5% FBS i inkubować w temperaturze 38.5 °C w atmosferze 5% CO₂.
- Ocenić fuzję indywidualnie po 30 min pod stereomikroskopem.
- Struktury niepodlegające fuzji poddać drugiej rundzie fuzji.
- Zfuzjonowane kompleksy traktować jako zrekonstytuowane embriony bez błony przejrzystej i inkubować przez 2 h do momentu aktywacji (czas reprogramowania).
8. Aktywacja oocytów i hodowla zarodków
- Inkubować zrekonstruowane struktury w kroplach 100 µL pożywki H-TALP zawierającej 5 µM jonomycyny przez 4 min.
- Przemyć zrekonstruowane struktury w czterech kroplach 100 µL pożywki H-TALP.
- Inkubować zrekonstruowane struktury w kroplach 100 µL pożywki SOF zawierającej 2 mM 6-DMAP przez 3 h.
- Przemyć zrekonstruowane struktury w czterech kroplach 100 µL pożywki SOF.
- Przygotować płytki z mikrowyjałkami, używając podgrzanej kapilary szklanej lekko dociskanej do dna szalki Petriego o wymiarach 35 × 10 mm. Wykonać od 20 do 25 mikrowyjałków, z których każdy ma średnicę 500 µm i głębokość 250 µm20.
- Umieścić zrekonstytuowane embriony pojedynczo w zmodyfikowanych dołkach mikropłytki, przykryć je 100 µL pożywki SOF, a na koniec pokryć 3 mL oleju mineralnego. Umieścić mikropłytki w inkubatorze trygazowym z zawartością 5% CO₂, 5% O₂ i 90% N₂ na 7 dni.
Wyniki
Wyniki przeanalizowano przy użyciu oprogramowania R (v.4.5.2). Odsetki podziałów i blastocyst porównano pomiędzy parami (jelenie/bydło vs bydło/bydło) za pomocą dokładnego testu Fishera. Wykonano dziesięć powtórzeń: cztery dla pary jelenie/bydło i sześć dla pary bydło/bydło. Ponadto dla wszystkich analiz przyjęto poziom istotności 5%.
W trakcie badania jako biorcy cytoplastów wykorzystano 472 oocyty bydlęce pozyskane z lokalnej rzeźni. Jednak po dojrzewaniu in vitro i następującej po nim elektrofuzji, 73 struktury nie uległy fuzji i zostały wykluczone z dalszych etapów, co dało 399 pomyślnie zfuzowanych struktur karioplast/cytoplast. Z tej całkowitej liczby wykorzystano następujące pary (karioplast/cytoplast): cztery powtórzenia jelenia/bydła (n = 175) oraz sześć powtórzeń bydła/bydła (n = 224) (Tabela 2).
Aby ocenić wpływ iSCNT, zrekonstruowane embriony pozbawione błony przejrzystej hodowano w mikrowdołach do 7. dnia. Reprezentatywne mikrofotografie moruli i blastocysty bez błony przejrzystej przedstawiono na Ryc. 3.
Tabela 2 przedstawia odsetki podziałów i blastocyst uzyskane w tym eksperymencie. Odsetek podziałów nie wykazał istotnych różnic (P = 0,74) między grupami (pary jelenia/bydła oraz bydła/bydła). Z drugiej strony, w odniesieniu do odsetka tworzenia blastocyst, zaobserwowano różnicę statystyczną (P=0,02), z wyższym procentem w grupie klonowania wewnątrzgatunkowego. Należy jednak podkreślić ograniczenie mocy statystycznej w tego typu eksperymentach, w których liczba klonów międzygatunkowych jest zazwyczaj niewielka.
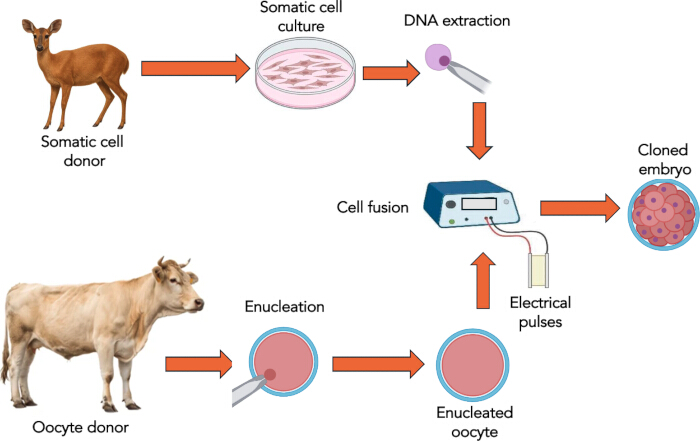
Rycina 1: Schemat etapów międzygatunkowego transferu jąder komórek somatycznych. Jako dawcy cytoplastów wykorzystane zostały krowy, natomiast jako dawcy karyoplastów jelenie. Po uzyskaniu sklonowanego zarodka można go przenieść do samic biorców lub poddać krio konserwacji w celu późniejszego transferu. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
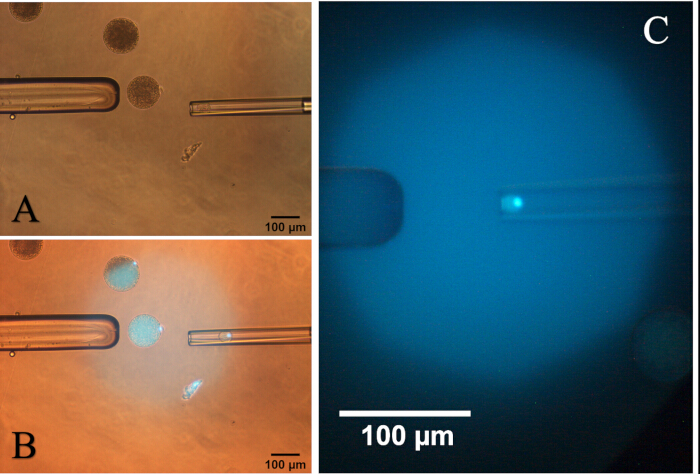
Rysunek 2: Fotomikrografia aktywnego oocytu z wypukłością cytoplazmatyczną. (A) Obrót oocytu w celu umieszczenia wypukłości na godzinie trzeciej. (B) Aspiracja wypukłości wraz z 5-10% cytoplazmy podczas ekspozycji na światło ultrafioletowe. (C) Cytoplazma i jej wypukłość w pipecie aspiracyjnej pod światłem ultrafioletowym. Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tego rysunku.
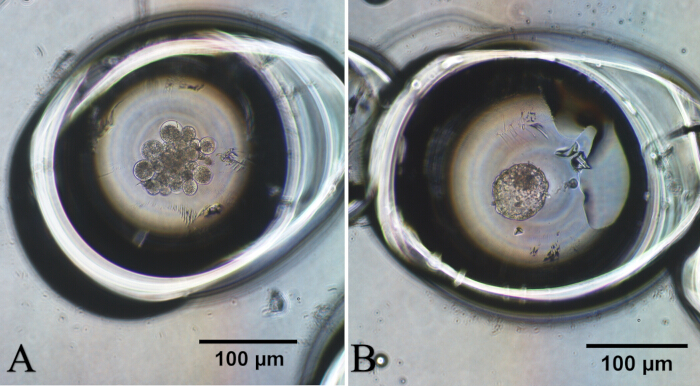
Rysunek 3: Fotomikrografie embrionów jeleni uzyskanych w drodze międzygatunkowego transferu jąder komórek somatycznych. (A) Klonowany embrion w stadium moruli. (B) Klonowany embrion w stadium blastocysty. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
| Stopień | Liczba warstw cumulus | Ekspansja łożyska cumulus |
| I | > 3 | Całkowite zachmurzenie typu cumulus z kilkoma zwartymi i lekko rozluźnionymi warstwami komórkowymi |
| II | 2 - 3 | Lekkie rozszerzenie zewnętrznych warstw komórkowych |
| III | 1 | Częściowe pokrycie chmur kłębiastych i luźne warstwy komórkowe |
| IV | 0 | Brak chmur cumulus |
Tabela 1: Klasyfikacja oocytów bydlęcych do późniejszej enukleacji i wykorzystania jako cytoplasty podczas międzygatunkowego transferu jąder komórek somatycznych (Adaptowano z Aguila et al.)19.
| Grupy (karioplast/cytoplast) | Liczba powtórzeń | Liczba zrekonstruowanych embrionów | Liczba rozszczepionych (%) | Liczba blastocyst (%) |
| Jelenie/bydło | 4 | 175 | 122 (69,7)a | 8 (4,6)a |
| Bydło | 6 | 224 | 160 (71,4)a | 24 (10,7)b |
| Różne litery w tej samej kolumnie oznaczają różnicę statystyczną. | ||||
| Wskaźnik fragmentacji: P = 0,74 | ||||
| Wskaźnik blastocysty: P = 0,02 | ||||
Tabela 2: Rozwój in vitro klonowanych embrionów jelenia szlachetnego z wykorzystaniem bydlęcych cytoplastów. Wykonano dziesięć powtórzeń: cztery dla pary jeleń/bydło i sześć dla pary bydło/bydło. Wskaźniki podziałów i blastocyst obliczono, przyjmując liczbę zrekonstruowanych embrionów jako mianownik.
Dyskusja
Jest już dobrze udokumentowane, że genom zagrożonych gatunków można przeprogramować z wykorzystaniem oocytów zwierząt hodowlanych, zwłaszcza bydła i świń, które stanowią największe źródło cytoplastów21. Jednym z największych osiągnięć w iSCNT było sklonowanie kozicy pirenejskiej (Capra pyrenaica pyrenaica), podgatunku, który wyginął po śmierci ostatniej znanej osobnika. Zrekonstruowane embriony uzyskano poprzez fuzję komórek nabłonkowych kozicy z oocytami kozy domowej (Capra hircus). Autorzy uzyskali narodziny samicy bez zewnętrznych wad morfologicznych. Jednakże potomstwo wykazało ciężką niewydolność oddechową i zmarło kilka minut po urodzeniu22.
Jednym z silniejszych kandydatów do „wskrzeszenia” jest mamut włochaty (Mammuthus primigenius). Aby klonowanie było możliwe, fundamentalna jest dostępność żywotnej tkanki z możliwymi do zidentyfikowania jądrami komórkowymi, co jest trudne w przypadku gatunku, który wyginął około 10 000 lat temu. Mimo to, ciała mamutów znalezione w zamarzniętej warstwie ziemi spełniają minimalne wymagania dla iSCNT23. Niemniej jednak, być może to gatunki zagrożone wyginięciem są bardziej odpowiednimi kandydatami, aby odnieść korzyść z zastosowania tej techniki.
Wskaźnik segmentacji zaobserwowany w naszym badaniu wykazał, że aktywacja oraz pierwszy podział embrionalny nie były uwarunkowane międzygatunkową kombinacją jądra i cytoplazmy. Podczas fazy rekonstrukcji manipulacja i fuzja struktur (karioplastu/cytoplastu) charakteryzowały się taką samą łatwością techniczną w obu grupach, co sugeruje kompatybilność strukturalną między gatunkami. W odniesieniu do odsetka blastocyst wyniki sugerują, że choć rekonstrukcja i wczesna aktywacja embrionu iSCNT nie stanowią czynnika ograniczającego, występuje niekompatybilność jądrowo-cytoplazmatyczna, która ujawnia się w późniejszych etapach rozwoju, prawdopodobnie w związku z niepełnym przeprogramowaniem epigenetycznym lub przejściem matczyno-zygotycznym, co wpływa na zdolność hybrydowego embrionu do osiągnięcia stadium blastocysty24. Efektywność iSCNT ma tendencję do wzrostu, gdy karioplasty i cytoplasty pochodzą z gatunków blisko spokrewnionych filogenetycznie, ponieważ naturalna produkcja żywotnego potomstwa hybrydowego wskazuje na pewien stopień kompatybilności nukleocytoplazmatycznej między dwoma gatunkami23. Zatem wykazano już, że SCNT między podgatunkami może prowadzić do narodzin zdrowego potomstwa. Autorzy wykorzystali cytoplast suki oraz fibroblast wilka i przenieśli embriony do 12 samic, co zaowocowało narodzinami potomstwa25.
Stosowanie iSCNT napotyka na znaczące „ograniczenie wydajności” w zakresie efektywności biologicznej i rozwojowej, która gwałtownie spada wraz ze wzrostem dystansu ewolucyjnego między jądrem dawcy a oocytem biorcy. Choć metoda ta okazuje się skuteczna w przypadku gatunków blisko spokrewnionych (np. bydła domowego i gaur)26, rutynowo zawodzi w próbach uzyskania żywotnego potomstwa lub stabilnych linii komórkowych z embrionów przy próbach przekraczania bardziej odległych granic taksonomicznych.
Klonowanie stanowi istotne narzędzie w programach hodowli i ochrony zwierząt, ponieważ umożliwia powielanie osobników o wyższych walorach genetycznych, wspiera generowanie zwierząt transgenicznych oraz przyczynia się do długoterminowego zachowania cennych zasobów genetycznych poprzez banki genów. Niemniej jednak, wdrożenie klonowania w programach hodowli zwierząt gospodarskich jest wciąż ograniczone przez niską liczbę urodzonych zwierząt w stosunku do liczby transferowanych embrionów18. Obecne podejścia do produkcji klonowanych embrionów są zazwyczaj podzielone na dwie kategorie: klonowanie konwencjonalne oraz klonowanie bez ZP (ZP-free). W podejściu konwencjonalnym wymagany jest mikromanipulator w celu usunięcia jądra oocytu i wprowadzenia somatycznej komórki dawcy do cytoplastu biorcy26. W przeciwieństwie do klonowania konwencjonalnego, metoda ZP-free jest przeprowadzana bez użycia mikromanipulacji27. Wyniki uzyskane w naszym badaniu były bardzo zbliżone do tych zweryfikowanych z użyciem iSCNT, zarówno w odniesieniu do tempa podziałów, jak i produkcji blastocyst20,21.
Na koniec, biorąc pod uwagę poszczególne etapy tej procedury, należy podkreślić punkty krytyczne oraz praktyczne rozwiązywanie problemów. W odniesieniu do usuwania ZP, klonowanie bez ZP oferuje szereg zalet, w tym łatwość wykonania, efektywność kosztową i porównawczo wyższy wskaźnik żywych urodzeń na transferowany embrion28. Potwierdzenie całkowitego usunięcia jądra (enenukleacji) bez wywołania krytycznych uszkodzeń cytoplastu decyduje o tym, czy zrekonstruowana struktura może skutecznie utrzymać sklonowany embrion. Chociaż wiadomo, że ekspozycja na UV wywołuje szkodliwe efekty29, jest ona rutynowo stosowana w większości laboratoriów klonowania. Wreszcie, hodowla embrionów bez ZP pozbawiona jest ochronnej zewnętrznej otoczki glikoproteinowej, co prowadzi do poważnych problemów, takich jak wysoka kruchość fizyczna podczas manipulacji i dysocjacja blastomerów30.
Podsumowując, wyniki uzyskane w naszym badaniu należy interpretować jako wstępny dowód na techniczną wykonalność protokołu iSCNT w kombinacji jelenia i bydła, a nie jako ostateczny dowód na jego efektywność produkcyjną. W związku z tym konieczne są dodatkowe badania z większą liczbą powtórzeń, aby potwierdzić te odkrycia.
Oświadczenia
Autorzy nie deklarują żadnych konfliktów interesów.
Podziękowania
Praca ta była wspierana przez Cearense Foundation for Scientific and Technological Development Support (FUNCAP, Fortaleza, Brazylia, numer grantu 11212233/2022) oraz National Institutes of Science and Technology (INCT/CNPq, numer grantu 406866/2022-8).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Igła aspiracyjna (18G) | LABIMPORT | 353601 | Igła jednorazowa, krótka |
| 6-dimetylaminopuryna (6-DMAP) | Sigma-Aldrich | D2629 | |
| Mieszanina antybiotyków–anty-myktycznych | Gibco, Thermo Fisher Scientific | 15240062 | |
| Albuminy surowicy bydlęcej | Sigma-Aldrich | A9647 | |
| Dwuwodny chlorek wapnia (CaCl2·2H2O) | Sigma-Aldrich | C7902 | |
| Klawisz do hodowli komórkowej T-25 | Corning | 430639 | |
| Mikroinjektor CellTram | Eppendorf | 5196 000.021 | |
| Wirówka | Eppendorf | 5702 | Stosowana do wirowania komórek przy 200 × g przez 10 minut w celu osadzenia i przemycia próbek przed procedurami transferu jąder. |
| Probówki wirówkowe (50 mL) | Corning | CLS430291 | |
| Krioprobówki (1,8 mL) | Nunc / Thermo Fisher | 368632 | |
| Cysteamina | Sigma-Aldrich | M9768 | |
| Demekolcyna | Sigma-Aldrich | D1925 | |
| Woda destylowana | _ | _ | |
| DMSO (do mrożenia komórek) | Sigma-Aldrich | D2650 | 10% krioprotektant do kriokonserwacji komórek donora |
| Podłoże DMEM (Dulbecco's Modified Eagle Medium) | Gibco / Thermo Fisher | 11995065 | |
| Pipeta do enukleacji (średnica wewnętrzna 20–25 µm) | Narishige | GD-1 | |
| Epidermalny czynnik wzrostu (EGF) | Sigma-Aldrich | E4127 | |
| Niezbędne aminokwasy BME | Sigma-Aldrich | M5550 | |
| Estradiol | Sigma-Aldrich | E8875 | |
| Inkubator EVE (5% O2, 5% CO2, 90% N2) | WTA medical | REF. 23578 | |
| Płodowa surowica bydlęca (FBS) | Bio Nutrientes, Induslab | FEN-500 | |
| FSH (Folltropin-V) | Vetoquinol | Q-7090-124 | |
| Szklana kapilara z filamentem | Narishige | GD-1 | Ta szklana kapilara służy do tworzenia mikrowypukłości w szalce Petriego |
| Płyta grzewcza | WTA medical | 17656 | |
| Hepes | Sigma-Aldrich | H6147 | |
| Hoechst 33342 (barwnik DNA) | Sigma-Aldrich | B2261 | |
| Pipeta trzymająca (średnica zewnętrzna 120 μm) | Narishige | GD-1 | |
| Hialuronidaza | Sigma-Aldrich | H4272 | |
| Mikroskop odwrócony ECLIPSE | Nikon | TE2000-U | |
| Ionomycyna (jonofor wapniowy A23187) | Sigma-Aldrich | I0634 | |
| ITS | Sigma-Aldrich | I2771 | |
| KCl | Sigma-Aldrich | P5405 | |
| KH2PO4 | Sigma-Aldrich | P5655 | |
| Komora z laminarnym przepływem powietrza Isocide | Esco | 2120765 | Komora z laminarnym przepływem powietrza zapewniająca sterylne środowisko pracy dla procedur hodowli zarodków i komórek. |
| L-glutamina | Sigma-Aldrich | G8540 | |
| Dewar do przechowywania ciekłego azotu | Nitroagro | Varies | |
| Siarczan magnezu (MgSO4) | Sigma-Aldrich | M2643 | |
| Podłoże do fuzji z mannitolem (0,3M) | Sigma-Aldrich | M9546 | |
| MgCl2 | Sigma-Aldrich | M8266 | |
| Mikrokuźnia MF-900 | Narishige | MF-900 | |
| System mikromanipulacyjny | Narishige | MM-89 / TransferMan 4r | |
| Wyciągacz mikropipet | Narishige | Narishige PC-100 | |
| Mikropipety (10 µL, 20 µL, 100 µL, 200 µL, 1000 µL) | Eppendorf | Research Plus Series | |
| Komora do mikrofuzji | Eppendorf | 12816532 | Specjalistyczne akcesorium ze szczeliną 0,2 mm przeznaczone do zastosowań w elektroporacji |
| Olej mineralny (testowany pod kątem zarodków) | Sigma-Aldrich | M8410 | |
| Multiporator | Eppendorf | 4308 000.015 | |
| Mio-inozytol | Sigma-Aldrich | I7508 | |
| NaCl | Sigma-Aldrich | S5886 | |
| NaH2PO4 | Sigma-Aldrich | S5011 | |
| NaHCO3 | Sigma-Aldrich | S4219 | |
| Niezbędne aminokwasy MEM | Sigma-Aldrich | M7145 | |
| Pentabiotyk | Zoetis | 10005048 | Fiolka 2 400 000 IU. |
| Szalka Petriego 35mm (testowana pod kątem zarodków) | Corning | 430165 | |
| Szalka Petriego 60mm (testowana pod kątem zarodków) | Corning | 430196 | |
| Czerwień fenolowa | Sigma-Aldrich | P0290 | |
| końcówki do pipet 1000 µL | Eppendorf | 9401030 | |
| końcówki do pipet 200 µL | Eppendorf | 94052300 | |
| Końcówki do pipet bez filtra (0,5–10 µL) | Axygen | T-300 | |
| Poly(alkohol winylowy) (PVA) | Sigma-Aldrich | P8136 | |
| Pronaza (proteaza z S. griseus) | Sigma-Aldrich | P8811 | |
| Mleczan sodu | Sigma-Aldrich | L7900 | |
| Pirowinian sodu | Sigma- Aldrich | P4562 | |
| Stereomikroskop | Nikon | SMZ800 | |
| Sterylna woda testowana pod kątem zarodków | Sigma-Aldrich | W3500 | |
| Filtr sterylny (0,22 μm) | Corning | 431154 | |
| TCM-199 | Sigma-Aldrich | M2154 | |
| Inkubator trygazowy (5% O2, 5% CO2, 90% N2) | WTA medical | REF. 23578 | |
| Trypsyna-EDTA (0,25%) | Gibco / Thermo Fisher | 25200056 | |
| Woda ultrazczystaáter | Sigma-Aldrich | W3500 | |
| Lampa UV / moduł fluorescencyjny | Leica / Olympus | Varies | Krótka ekspozycja na UV w celu weryfikacji enukleacji; minimalizacja fototoksyczności |
Bibliografia
- Flagstad O, Roed KH. Refugial origins of reindeer (Rangifer tarandus.) inferred from mitochondrial DNA sequences. Evolution. 2003;57(3):658-70.
- Schilling AM, Rössner GE. The (sleeping) beauty in the beast—a review on the water deer, Hydropotes inermis. Hystrix It J Mamm. 2017;28(2):121-33.
- Newman BA, D’Angelo GJ. A review of cervidae visual ecology. Animals (Basel). 2024;14(3):420.
- Rola LD. Integrating cryobiology and conservation: the role of biobanks for neotropical deer in Latin America. Biopreserv Biobank. 2025;23(6):575-88.
- Duarte JMB, González S, Maldonado JE. The surprising evolutionary history of South American deer. Mol Phylogenet Evol. 2008;49:17-22.
- Bernegossi AM, et al. Resurrection of the genus Subulo. for the gray brocket deer, with designation of a neotype. J Mammal. 2023;104(3):619-33.
- Morales-Donoso JA, et al. Revalidation of Passalites Gloger, 1841 for the Amazon brown brocket deer P. nemorivagus. (Cuvier, 1817) (Mammalia, Artiodactyla, Cervidae). ZooKeys. 2023;1167:241-64.
- El Bizri HR. Exposing illegal hunting and wildlife depletion in the world's largest tropical country through social media data. Conserv Biol. 2024;38:e14334.
- Pasquariello R, et al. Use of assisted reproductive technologies (ARTs) to shorten the generational interval in ruminants: current status and perspectives. Theriogenology. 2024;225(1):16-32.
- Herrick JR. Assisted reproductive technologies for endangered species conservation: developing sophisticated protocols with limited access to animals with unique reproductive mechanisms. Biol Reprod. 2019;100:1158-70.
- Iqbal A, et al. Conservation of endangered species through somatic cell nuclear transfer (SCNT). Conserv Genet Resour. 2021;13:349-57.
- Hwang I. Successful cloning of coyotes through interspecies somatic cell nuclear transfer (iSCNT) using domestic dog oocytes. Biol Reprod. 2012;87(1):56.
- Loi P, et al. Genetic rescue of an endangered mammal by cross-species nuclear transfer using post-mortem somatic cells. Nat Biotechnol. 2001;19:962-4.
- Gómez MC, et al. Birth of African wildcat cloned kittens born from domestic cats. Cloning Stem Cells. 2004;6:247-58.
- Wani NA, Vettical BS, Hong SB. First cloned Bactrian camel (Camelus bactrianus.) calf produced by interspecies somatic cell nuclear transfer: a step towards preserving the critically endangered wild Bactrian camels. PLoS One. 2017;12:e0177800.
- Ross PJ, Cibelli JB. Bovine somatic cell nuclear transfer. Methods Mol Biol. 2010;636:155-77.
- Choi YH, Velez IC, Macias-Garcia B, Hinrichs K. Timing factors affecting blastocyst development in equine somatic cell nuclear transfer. Cell Reprogram. 2015;17:124-30.
- Herrid H, Van Eenennaam H. Application of zona-free cloning technologies to livestock breeding programmes. Anim Reprod Sci. 2026;287:108107.
- Aguila L, et al. Oocyte selection for in vitro embryo production in bovine species: noninvasive approaches for new challenges of oocyte competence. Animals. 2020;10:2196.
- Vajta G, et al. New method for culture of zona-included or zona-free embryos: the well of the well (WOW) system. Mol Reprod Dev. 2000;55(3):256-64.
- Lagutina I, Fulka H, Lazzari G, Galli C. Interspecies somatic cell nuclear transfer: advancements and problems. Cell Reprogram. 2013;15:374-84.
- Folch J, et al. First birth of an animal from an extinct subspecies (Capra pyrenaica pyrenaica.) by cloning. Theriogenology. 2009;71:1026-34.
- Loi P, Saragusty J, Ptak G. Cloning the mammoth: a complicated task or just a dream. Adv Exp Med Biol. 2014;753:489-502.
- Mastromonaco GF, et al. The influence of nuclear content on developmental competence of gaur cattle hybrid in vitro fertilized and somatic cell nuclear transfer embryos. Biol Reprod. 2007;76:514-23.
- Kim MK, et al. Endangered wolves cloned from adult somatic cells. Cloning Stem Cells. 2007;9:130-7.
- Lanza RP, et al. Cloning of an endangered species (Bos gaurus.) using interspecies nuclear transfer. Cloning. 2000;2(2):79-90.
- Hill J, et al. The effect of donor cell serum starvation and oocyte activation compounds on the development of somatic cell cloned embryos. Cloning. 1999;1:201-8.
- Verma G, et al. Handmade cloning: recent advances, potential and pitfalls. J Anim Sci Biotechnol. 2015;6:43.
- Takenaka M, Horiuchi T, Yanagimachi R. Effect of light on development of mammalian zygote. Proc Natl Acad Sci U S A. 2007;104:14289-93.
- Madani S, Machaty Z, Vajta G. An alternative way to improve mammalian embryo development in vitro: culture of zona pellucida-free embryos. Cell Reprogram. 2022;24(3):111-7.
Przedruki i uprawnienia
Ten artykuł został opublikowany
Film wkrótce dostępny