Niniejszy protokół opisuje model krótkowzroczności u gryzoni, który nie wymaga stosowania gogli ani zaszywania powiek, indukowany podspółczunowymi zastrzykami z TGF-β2. Metoda ta aktywuje oś NLRP3/IL-1β-MMP2, prowadząc do wydłużenia osiowego oka, podczas gdy zastosowanie podzielonego schematu pomiarów biometrycznych minimalizuje artefakty anestezjologiczne, zapewniając wysoką wierność danych.
Artykuł metodologiczny
Ustanowienie modelu krótkowzroczności u gryzoni indukowanej przez TGF-β z wykorzystaniem iniekcji podspójówkowych
W tym artykule
Podsumowanie
Streszczenie
Krótkowzroczność jest poważnym globalnym problemem zdrowia publicznego, charakteryzującym się nadmiernym wydłużeniem osiowym oraz przebudową macierzy zewnątrzkomórkowej (ECM) twardówki. Choć modele eksperymentalne są niezbędne do badania tych mechanizmów, tradycyjne metody rozogniskowania optycznego u małych gryzoni wykazują ograniczenia techniczne. W niniejszej pracy opracowano i oceniono standaryzowalny farmakologiczny model krótkowzroczności poprzez wielokrotne podskórne iniekcje podspojówkowe czynnika wzrostu TGF-β (transforming growth factor-beta). Aby zapewnić celowane dostarczenie preparatu, opracowano technikę chirurgicznej stabilizacji oburęcznej w celu wywinięcia górnej powieki, co pozwala na wprowadzenie igły o rozmiarze 33G do spojówki powiekowej pod płytkim kątem 20°–30°. W badaniach przesiewowych in vivo u szczurów zidentyfikowano TGF-β2 (500 pg/oko) jako główny czynnik stymulujący wzrost tylnej części oka. Następująca miareczkowanie dawka-odpowiedź u myszy ujawniło profil w kształcie odwróconego litery U. W głównej kohorcie walidacyjnej najniższa dawka (250 pg/oko) wywołała wyraźne wydłużenie osiowe (0,197 ± 0,012 mm) i krótkowzroczne przesunięcia refrakcyjne (−1,58 ± 0,63 D). Na poziomie molekularnym powtarzamie podawanie TGF-β2 aktywowało kaskadę inflamasomu NLRP3 (NOD-like receptor family pyrin domain-containing 3) / IL-1β (interleukin-1β) w siatkówce oraz zwiększyło ekspresję metaloproteinazy macierzy 2 (MMP2) u obu gatunków. W połączeniu z dwudniowym, podzielnym schematem pomiarów biometrycznych, który minimalizuje artefakty związane z anestezją, protokół ten stanowi niezawodną i skalowalną platformę do oceny interwencji przeciwkrótkowzrocznościowych.
Wprowadzenie
Krótkowzroczność stała się istotnym problemem zdrowia publicznego na świecie, a przewiduje się, że do 2050 roku będzie ona dotyczyć niemal 50% populacji światowej1,2. Głównym patologicznym czynnikiem postępującej krótkowzroczności jest nadmierna elongacja osiowa oka, która powoduje aktywną przebudowę macierzy zewnątrzkomórkowej i degenerację tkanek, prowadząc do strukturalnego cieńczenia tylnych warstw oka3. Te dynamiczne zmiany obejmują zarówno przebudowę strukturalną (charakteryzującą się degradacją ECM twardówki, utratą kolagenu i cieńczeniem warstw tylnych), jak i przebudowę funkcjonalną (oznaczaną przez zmniejszoną sztywność biomechaniczną, zaburzoną perfuzję naczyniówki oraz aberracyjną sygnalizację zapalną w obrębie siatkówki i RPE), co łącznie zwiększa dożywotnie ryzyko wystąpienia powikłań zagrażających wzrokowi i nieodwracalnego upośledzenia widzenia, w tym makulopatii krótkowzrocznej, odwarstwienia siatkówki, jaskry i przedwczesnej katarakty4,5,6,7. Mimo znacznego obciążenia klinicznego i socjoekonomicznego wynikającego z tego stanu, dokładne molekularne mechanizmy regulujące aberracyjny wzrost oka pozostają nie w pełni poznane. Dlatego wyjaśnienie szlaków sygnalizacyjnych napędzających elongację osiową oraz opracowanie powtarzalnych, standaryzowanych modeli zwierzęcych są krytycznymi krokami w kierunku identyfikacji nowych celów terapeutycznych i opanowania globalnej epidemii krótkowzroczności.
Podczas gdy krótkowzroczność indukowana deprywacją formy (FDM) oraz krótkowzroczność indukowana soczewką (LIM) stanowią złote standardy w badaniach nad rozogniskowaniem optycznym i emmetropizacją8,9,10,11, wdrożenie tych modeli rozogniskowania optycznego u małych gryzoni — w szczególności u myszy — wiąże się ze znacznymi wyzwaniami technicznymi. Aktywne zachowania pielęgnacyjne myszy często prowadzą do odrywania gogli, co wymusza stosowanie stresujących środków przeciwdziałających, takich jak obroże ochronne12. Co więcej, tarcie mechaniczne, szycie powiek oraz zmienione mikrośrodowisko pod okluderem rutynowo powodują wtórne powikłania rogówkowe, takie jak zmętnienie lub owrzodzenie rogówki13,14,15. Chociaż FDM i LIM pozostają fundamentalnymi paradygmatami badania rozogniskowania wizualnego, wtórne powikłania powierzchni oka — takie jak zmętnienie rogówki, tarcie mechaniczne czy podrażnienie od szwów powiekowych — mogą zakłócać pomiary biometryczne optycznie15. Te artefakty proceduralne upośledzają stabilność filmu łzowego i przejrzystość rogówki, co prowadzi do wyższego wskaźnika wykluczeń eksperymentalnych i zwiększonego szumu pomiarowego13,16. W przeciwieństwie do nich, indukcja farmakologiczna omija fizyczne okludery, zachowując przejrzystość rogówki i umożliwiając niezawodną i powtarzalną biometrię optyczną oraz ultradźwiękową. W krótkowzroczności nadmierne wydłużenie gałki ocznej jest napędzane przez zmienione przebudowywanie macierzy zewnątrzkomórkowej (ECM) tylnej części twardówki17, gdzie izoformy czynnika wzrostu TGF-β (transforming growth factor-beta) pełnią rolę kluczowych regulatorów syntezy kolagenu i proteoglikanów18,19. Pojawiające się dowody sugerują, że sygnalizacja TGF-β może przecinać się z niskostopniowym zapaleniem oka i degradacją macierzy pośredniczoną przez metaloproteinazę macierzy 2 (MMP2)20, co potencjalnie przyczynia się do przebudowy twardówki i wydłużenia osiowego21,22,23,24. Potwierdzają to podwyższone poziomy czynnika wzrostu TGF-β2, interleukiny 6 (IL-6) oraz MMP2 raportowane w cieczy wodnistej oczu krótkowzrocznych25,26,27, a także aktywacja osi TGF-β / jądrowy czynnik kappa B (NF-κB) / MMP2 w modelach eksperymentalnych20,21. Choć wyniki te odzwierciedlają dynamiczną wewnątrzgałkową sygnalizację molekularną podczas progresji krótkowzroczności, względny wkład anatomiczny w markery cieczy wodnistej — czy to z lokalnego wydzielania przedniego, przepływu z depozytów podspójówkowych, czy dyfuzji z tylnej części ciała szklistego — nie został jeszcze w pełni wyjaśniony. Należy jednak uznać zakres i nieuniknione ograniczenia tego modelu farmakologicznego. Ponieważ podspójówkowe podawanie TGF-β omija rozogniskowanie optyczne i szlaki przetwarzania wizualnego, model ten jest najodpowiedniejszy do analizy kaskad biochemicznych działających w dół — a konkretnie przebudowy ECM twardówki pośredniczonej przez oś TGF-β2 / receptor z domeną pyrynową rodziny NOD 3 (NLRP3) / interleukinę 1β (IL-1β) / MMP2 — oraz do przesiewania kandyd ownych agentów terapeutycznych celujących w szlaki zapalne lub szlaki degradacji macierzy. W przeciwieństwie do tego, nie jest on odpowiedni do badania transdukcji sygnałów wizualnych działających w górę, sygnalizacji optycznej z siatkówki do twardówki lub mechanizmów emmetropizacji napędzanych światłem środowiskowym, gdzie tradycyjne modele FDM lub LIM pozostają niezastąpione.
Aby uzupełnić te luki metodologiczne, opracowano i zwalidowano model krótkowzroczności z wykorzystaniem powtarzalnych pod spojówkowych iniekcji TGF-β u szczurów i myszy, oferując udoskonalone podejście, które minimalizuje urazy mechaniczne i podrażnienie powierzchni oka. Dzięki wyeliminowaniu potrzeby stosowania fizycznych zasłon, protokół ten zapewnia precyzyjną kontrolę nad dawkowaniem farmakologicznym i harmonogramem eksperymentalnym, jednocześnie znacznie ograniczając potencjalne zakłócenia behawioralne związane z urządzeniami montowanymi na głowie. W niniejszej badaniu oceniono potencjał trzech rekombinowanych izoform ludzkiego TGF-β (które wykazują zwalidowaną funkcjonalną reaktywność krzyżową w tkankach gryzoni, co potwierdza konserwacja sekwencji28) u szczurów oraz zmapowano nieliniową kinetykę odpowiedzi dawka-efekt TGF-β2 u myszy. Co istotne, ten standaryzowany schemat skutecznie indukował krótkowzroczność fenotypową — charakteryzującą się jednoczesnym wydłużeniem osiowym i krótkowzrocznymi zmianami refrakcji — oraz aktywował oś inflamasomu NLRP3 (rodzina receptorów NOD-like z domeną pyrynową 3) / interleukiny-1β (IL-1β) w siatkówce oraz oś MMP2. Ostatecznie protokół ten dostarcza wykonalne, zdefiniowane molekularnie ramy dla celowania w późniejsze przebudowy twardówki, szczegółowo opisując jego konkretne granice operacyjne.
Protokół
Wszystkie eksperymenty na zwierzętach przeprowadzono zgodnie z wytycznymi i przepisami Komitetu ds. Opieki nad Zwierzętami i Użytkowania Zwierząt w Badaniach (IACUC) Chińskiego Uniwersytetu Medycznego (CMU). Wszystkie procedury były zgodne z oświadczeniem Stowarzyszenia ds. Badań nad Wzrokiem i Okulistyki (ARVO) dotyczącym użytkowania zwierząt w badaniach okulistycznych i dotyczących wzroku. Przed rozpoczęciem wszystkich eksperymentów uzyskano pełną zgodę CMU-IACUC. Zwierzęta były uśmiercanie na końcu eksperymentu ściśle zgodnie z wytycznymi Komitetu ds. Opieki nad Zwierzętami i Użytkowania Zwierząt w Badaniach (IACUC) Chińskiego Uniwersytetu Medycznego (CMU) oraz lokalnymi przepisami dotyczącymi dobrostanu zwierząt.
1. Zwierzęta i zatwierdzenie etyczne
- Uzyskaj samców szczurów linii Brown Norway (BN) (3–4 tygodnie życia, 60–80 g) i samce myszy C57BL/6 (B6) (3–4 tygodnie życia, 15–20 g) od odpowiedniego dostawcy zwierząt laboratoryjnych.
- Utrzymuj wszystkie zwierzęta w kontrolowanym środowisku (cykl 12 h światło/ciemność, 22 °C ± 2 °C, 50% ± 10% wilgotności względnej) z dostępem do pokarmu standardowego i wody ad libitum.
- Zapewnić co najmniej 3 dni aklimatyzacji przed rozpoczęciem jakichkolwiek procedur eksperymentalnych.
- Przypisz szczury lub myszy losowo do grup leczonych: grupa kontrolna z podaniem środka niosącego oraz grupa TGF-β2 grupa iniekcji. Użyj co najmniej N = 5 zwierząt w każdej kohorcie, aby zapewnić wystarczającą moc statystyczną.
UWAGA: Zastosowano projekt międzygrupowy. Oba oka pojedynczego zwierzęcia otrzymały identyczne zabiegi (albo kontrolę dwustronną za pomocą środka bezczynnego [1–2 µL BSS] lub dwustronne aktywne rhTGF-β2).- Zmierz parametry oczu (długość osi gałki ocznej i wadę refrakcyjną) po obu stronach u każdego zwierzęcia.
UWAGA: Upewnij się, że uzyskano pisemną zgodę CMU-IACUC oraz że cały personel wykonujący procedury został odpowiednio przeszkolony i posiada wymagane certyfikaty.
- Zmierz parametry oczu (długość osi gałki ocznej i wadę refrakcyjną) po obu stronach u każdego zwierzęcia.
2. Przygotowanie TGF-β2 roztwór
UWAGA: Wszystkie etapy rekonstytucji i rozcieńczania należy wykonywać w certyfikowanym szafie bezpieczństwa biologicznego, stosując rygorystyczne techniki aseptyczne.
- Odtwórz liofilizowany rekombinowany ludzki TGF-β2 w sterylnym 50% glicerolu zawierającym 0,1% albuminy surowicy wołowej (BSA), aby przygotować 100 µroztwór magazynowy w g/mL
- Przygotuj roztwory robocze poprzez serię rozcieńczeń roztworu macierzystego w sterylnym roztworze soli zbilansowanych (BSS).
- Dla grup szczurów (dawka 500 pg) rozcieńczyć roztwór macierzysty do stężenia końcowego 250 ng/mL (250 pg/µL) na 2 µobjętość wstrzyknięcia 1 L na oko
- Dla grup szczurzych badających zależność dawka-efekt, przygotuj trzy niezależne roztwory robocze o stężeniach 250 ng/mL, 375 ng/mL oraz 500 ng/mL (250, 375 i 500 pg/µL) na 1 µobjętość wstrzyknięcia 1 L na oko
- Przygotuj jednorazowe 15–20 µL alikwoty w sterylnych probówkach do wirowania mikrocentryfugowego, szybko zamrozić w ciekłym azocie i przechowywać w temperaturze -20 °C. Rozmrażaj porcje na lodzie bezpośrednio przed użyciem.
UWAGA: Azot ciekły może powodować ciężkie odmrożenia i stanowi zagrożenie niedotlenieniem. Należy stosować odpowiednie środki ochrony osobistej przeznaczone do pracy z kriogeniką oraz obsługiwać go w dobrze wentylowanym pomieszczeniu zgodnie z procedurami bezpieczeństwa obowiązującymi w danej instytucji. - Przygotuj równolegle roztwór kontrolny pojazdowy, używając sterylnego BSS wzbogaconego o odpowiednią matrycę zawierającą 50% glicerolu i 0,1% BSA.
3. Procedura iniekcji podspojówkowej
- Umieść zwierzęta w komorze indukcyjnej z 3–4% izoflurany do indukcji narkozy. Następnie przenieść zwierzę na maskę nosową podającą 1,5–2% izofluran do utrzymywania narkozy.
UWAGA: Izofluran jest lotnym środkiem znieczyniającym. Należy stosować odpowiedni system odsysania i postępować zgodnie z procedurami bezpieczeństwa i higieny pracy obowiązującymi w danej instytucji. - Sprawdź wystarczającą głębokość narkozy, potwierdzając brak odruchu wycofania stopy na ucisk palców.
- Umieść zwierzę w pozycji leżącej przodem pod światłem włókien optycznych. Delikatnie chwyć, unieś i lekko wywróć powiekę górną za pomocą mikropinset o cienkich końcówkach, by w pełni odsłonić spojówkę powiekową i szczyt spojówkowy.Rycina 1B).
- Nawilż wcześniej 10 µszklana mikroszczypka L i igła kalibru 33–3 razy roztworem roboczym w celu wyeliminowania martwego objętości. Wprowadź docelową objętość (2 µL dla szczurów lub 1 µL dla myszy) i usunąć wszystkie mikropęcherzyki.
UWAGA: Ostrożnie obchodzić się z igłami i innymi ostrzami oraz usuwać je do zatwierdzonego pojemnika na przedmioty ostry zgodnie z przepisami instytucji. - Ustaw igłę 33-G bevel-em do góry (bevel-up) i skieruj ją na wyznaczone miejsce wkłucia na odsłoniętej powierzchni spojówki powiekowejRycina 1B, C).
- Wprowadź koniec igły przez nabłonek spojówki pod niewielkim kątem 20°°–30° kąt (Rycina 1C).
- Delikatnie wsuń igłę przez wąską przestrzeń podśluzówkową, za sklerę koniunktewalną, w kierunku powiekowej przestrzeni podkonjunktywalnej (Rycina 1C).
KROK KRYTYCZNY (struktury do unikania): Należy ściśle unikać przebijania leżących głębiej gruczołów Meiboma lub przypadkowego przebicia innych głębszych struktur oka. Należy wizualnie potwierdzić prawidłowe powierzchowne umieszczenie igły pod światłem reflektora, upewniając się, że skośny brzeg igły pozostaje widoczny pod prześwietlaną powierzchnią spojówki na całym etapie zaśródania. - Wstrzyknij powoli roztwór przez 5–10 s. Przytrzymaj igłę w miejscu przez dodatkowe 5 s, zanim powoli ją wyjmiesz, aby zapobiec cofaniu się płynu.
UWAGA: Prawidłową infiltrację podspojówkową potwierdza natychmiastowe, lokalne podniesienie spojówki i jej pobladnięcie (powstanie bąbla).- Jeśli nie powstanie pęcherzyk lub wystąpi znaczne wyciekanie, wykonaj pojedynczą ponowną iniekcję w przestrzeń spojówkową płytki powiekowej dolnej i odnotuj odchylenie w dzienniku eksperymentu.
UWAGA: Ograniczyć ponowne wstrzykiwania ściśle do jednej próby na oko w jednej sesji; zwierzęta, u których występuje trwała niepowodzenie w dostarczaniu, wykluczyć z analizy długoterminowej.
- Jeśli nie powstanie pęcherzyk lub wystąpi znaczne wyciekanie, wykonaj pojedynczą ponowną iniekcję w przestrzeń spojówkową płytki powiekowej dolnej i odnotuj odchylenie w dzienniku eksperymentu.
- Sanityzuj komorę mikrostrzykawki między kolejnymi iniekcjami u poszczególnych zwierząt w tej samej grupie, przepłukując ją trzykrotnie sterylnym etanolem 70%, a następnie pięciokrotnie sterylnym roztworem soli fizjologicznej.
- Sprawdź czubek igły 33-G pod powiększeniem co 3–5 wstrzyknięć oraz natychmiast wymienić igłę, jeśli staje się tępa lub ulega wygięciu.
- Najpierw zastrzyknij wszystkie zwierzęta z grupy kontrolnej otrzymującej sam środek rozpuszczający, zanim przystąpisz do zwierząt z grup leczonych, aby wyeliminować ryzyko farmakologicznego zanieczyszczenia krzyżowego. Powtórz cykl dezynfekcji strzykawki przed przejściem do grup leczonych.
- Wypłucz cylinder strzykawki i tłok specjalnym roztworem do czyszczenia mikrostrzykawek, a następnie wodą ultra-czystą i etanolem absolutnym po każdej sesji eksperymentalnej i przechowuj w stanie suchym.
- Powtarzaj wstrzyknięcia podspojówkowe raz w tygodniu przez 3 kolejne tygodnie (dzień 0, 7 i 14). Wykonaj długoletnie oceny biometryczne w stanе wyjściowym (dni −1 i 0) oraz w punkcie końcowym (dzień 20 i 21), zgodnie z opisem w sekcji 4.
- Umieść zwierzę w ciepłej klatce do rekonwalescencji wyłożonej ręcznikami papierowymi po wstrzyknięciu. Obserwuj zwierzę nieprzerwanie, aż odzyska pełne mostkowe położenie ciała i normalną aktywność ruchową.
- Po odzyskaniu przeanalizuj oczy pod mikroskopem stereoskopowym, aby wykluczyć krwawienie wewnątrzgałkowe, nieprzejrzystość rogówki lub ostre urazy mechaniczne. Obserwuj codziennie zwierzęta pod kątem oznak niepokoju lub zakażenia miejscowego.
4. Metody walidacji modelu
- Ocena wady refrakcyjnej oka
- Umieść gryzonie na podgrzewanej podkładce z termostatem w celu utrzymania fizjologicznej temperatury ciała i zapobiegania zaćmie spowodowanemu narkozą. Utrzymuj zwierzęta w stanie lekkiej narkozy izofluranem (1–1,5%) za pomocą kapturka nosowego w celu zapewnienia stałej głębokości narkozy.
- Wkraplaj po 1 kroplę Mydrin-P (0,5% tropikamid i 0,5% chlorek fenylefryny) do każdego oka 10–15 minut przed pomiarem w celu wywołania pełnej cykloplegii i rozszerzenia źrenicy.
- Umieść zwierzę w pozycji leżącej na klatce piersiowej pod stłumionym, pośrednim oświetleniem otoczenia. Aplikuj sterylny roztwór BSS nieprzerwanie aż do momentu pozyskania obrazu optycznego, aby zachować przezroczystość rogówki.
- Zmierz refrakcję oczną za pomocą automatycznego fotorefraktometru podczerwieni w ściśle określonej odległości 5–10-minutowe okno po indukcji zniecznienia. U szczurów BN delikatnie cofnąć powieki ręcznie, aby w pełni odsłonić rozszerzoną źrenicę podczas akwizycji.
- Uzyskaj trzy niezależne odczyty optyczne dla każdego oka i uśrednij wartości, aby określić wyjściowy lub końcowy błąd refrakcji.
KROK KRYTYCZNY (Czas trwania & Sekwencja): Przeprowadź fotoreferekcję w dniu 1 cyklu oceny (dzień –1 dla stanu wyjściowego; dzień 20 dla punktu końcowego) w stłumionym oświetleniu przed wykonaniem jakichkolwiek procedur kontaktowych. Wykonywanie fotoreferekcji po ultrasonografii kontaktowej lub po nałożeniu żelu akustycznego znacznie zakłóca optykę rogówki, rozprasza światło podczerwone i uniemożliwia automatyczne pomiary refrakcji.
- Pomiar długości gałki ocznej za pomocą ultrasonografii B-skan z wykorzystaniem fal o wysokiej częstotliwości
- Następnego dnia (dzień 0 dla wartości wyjściowych lub dzień 21 dla punktu końcowego) ocenić długość osi gałki ocznej pod lekką narkozą izofluranem (1–1,5%) za pomocą przenośnej liniowej sondy ultradźwiękowej o częstotliwości 16 MHz, skalibrowanej do prędkości akustycznej tkanki gryzonia (1532–1550 m/s).
- Dla myszy lini C57BL/6 (bezpośredni kontakt rogówki): Nałóż bazową warstwę ochronną żelu Ginpol z karbomerem (0,2%) bezpośrednio na rogówkę, a następnie warstwę standardowego żelu akustycznego.
UWAGA: Upewnij się, że warstwa żelu całkowicie pokrywa powierzchnię rogówki, nie pozostawiając uwięzionych pęcherzyków powietrza, które powodują tłumienie akustyczne. - Dla szczurów BN (interfejs przez powiekowy): Umieść zwierzę z zamkniętymi powiekami, nałóż żel ultrasonograficzny na zewnętrzną powierzchnię powieki i wykonaj pomiary przez powiekowy.
UWAGA: Pomiar przez powiekę wyklucza bezpośredni kontakt z rogówką, znacznie zmniejszając ryzyko zeskrobienia rogówki u większych gryzoniów.
- Dla myszy lini C57BL/6 (bezpośredni kontakt rogówki): Nałóż bazową warstwę ochronną żelu Ginpol z karbomerem (0,2%) bezpośrednio na rogówkę, a następnie warstwę standardowego żelu akustycznego.
- Wyrównaj głowicę ultrasonograficzną i zmierz długość ośrodkową wzdłuż środkowej osi optycznej, od przedniej powierzchni oka do tylnej ściany echa twardówki.
- Uzyskaj dziesięć niezależnych powtórzeń śladów skanowania typu B dla każdego oka i oblicz średnią długość osi oka.
- Delikatnie spłukać resztki żelu akustycznego z oka za pomocą sterylnego BSS bezpośrednio po zakończeniu badania, aby zapobiec podrażnieniu rogówki po zabiegu.
KROK KRYTYCZNY (dotyk bez ciśnienia): Umieść sondę ultrasonograficzną na powierzchni żelu, stosując bardzo lekki, całkowicie bezciśnieniowy dotyk. Jakiekolwiek naciskanie w dół na wierzchołek rogówki sztucznie ściska głębię komory przedniej i powoduje fałszywe skrócenie długości osi gałki ocznej. - Zanotuj uśrednione pomiary długości osi oka i ugięcia światła do dalszej analizy.
- Następnego dnia (dzień 0 dla wartości wyjściowych lub dzień 21 dla punktu końcowego) ocenić długość osi gałki ocznej pod lekką narkozą izofluranem (1–1,5%) za pomocą przenośnej liniowej sondy ultradźwiękowej o częstotliwości 16 MHz, skalibrowanej do prędkości akustycznej tkanki gryzonia (1532–1550 m/s).
Wyniki
Ustanowienie i walidacja anatomiczna modelu iniekcji podspójówkowej
Aby wyeliminować zmienność techniczną związaną z zakładaniem gogli optycznych lub szyciem powiek, przestrzeń podspójówkowa między spojówką powiekową a spojówką gałkową została zwalidowana jako ukierunkowany, miejscowy rezerwuar leku (Rysunek 1A). Dostęp anatomiczny poprzez sklepienie górne zapewnił spójną ekspozycję miejsca docelowego przy jednoczesnym zachowaniu integralności powierzchni oka (Rysunek 1B). Prawidłowe ustanowienie modelu potwierdzono na podstawie specyficznych kryteriów operacyjnych i biometrycznych, w tym natychmiastowej weryfikacji za pomocą transiluminacji obecności miejscowego, wypełnionego płynem pęcherzyka podśluzówkowego (chemosis) w docelowej podspójówkowej przestrzeni powiekowej, bez perforacji twardówki, krwawienia tkankowego lub uszkodzenia gruczołów Meiboma (Rysunek 1C), a także podłużnej weryfikacji biometrycznej jednoczesnego wydłużenia osiowego (Δ AL > 0.15 mm u myszy; > 0.40 mm u szczurów) z towarzyszącą krótkowzroczną zmianą refrakcji (Δ Refraction < −1.0 D) w 21. dniu w stosunku do kontroli traktowanych nośnikiem. Przeciwnie, wyniki niepowodzenia lub wyniki suboptymalne identyfikowano na podstawie specyficznych technicznych i fizjologicznych trybów awarii. Błędy techniczne — takie jak przedwczesny refluks płynu po wycofaniu igły lub przypadkowa głęboka penetracja tkanek powieki/orbity — skutkowały minimalnym lub brakiem tworzenia pęcherzyka, co prowadziło do niewystarczającej retencji farmakologicznej i braku indukcji zmian krótkowzrocznych; zwierzęta wykazujące trwały wyciek były dokumentowane i wykluczane zgodnie z krokiem 3.8.1 protokołu. Dodatkowo, powikłania powierzchni oka wynikające z błędnego, głębokiego umieszczenia igły lub nadmiernej trakcji mechanicznej powodowały miejscowy krwotok podspójówkowy lub uraz rogówki, wprowadzając zakłócające odpowiedzi zapalne. Suboptymalne wyniki fenotypowe zaobserwowano również podczas oceny zależności dawka-odpowiedź, gdzie podanie stężeń ponadprogowych (np. 500 pg/oko u myszy) skutkowało osłabioną odpowiedzią w kształcie litery U z mniejszym wydłużeniem osiowym, co podkreśla fizjologiczną konieczność ścisłej optymalizacji dawki. Zweryfikowana miejscowa retencja leku przy zastosowaniu tych znormalizowanych kryteriów zapewniła wysoką precyzję targetowania tkanek dla późniejszych analiz biometrycznych i molekularnych.
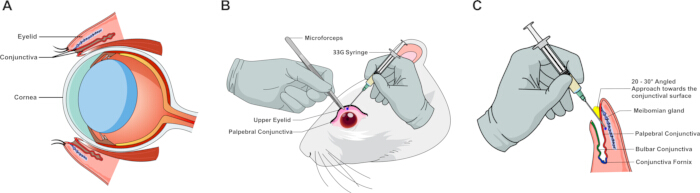
Rysunek 1: Punkty orientacyjne anatomiczne oraz schematyczna ilustracja procedury wstrzyknięcia podspójówkowego u gryzoni. (A) Przekrój strzałkowy oka gryzonia przedstawiający główne punkty orientacyjne anatomiczne, w tym powiekę, rogówkę, worek spojówkowy oraz docelową przestrzeń podspójówkową. (B) Demonstracja chirurgiczna stabilizacji tkanki i odsłonięcia spojówki powiekowej przy użyciu mikropincety; niebieska kropka wskazuje docelowe miejsce wprowadzenia igły do mikroiniekcji przy użyciu strzykawki 33-gauge. (C) Schemat w dużym powiększeniu ilustrujący orientację igły i trajektorię wprowadzenia względem powierzchni spojówki powiekowej, fornicse spojówkowego oraz leżących pod nimi struktur gałki ocznej. Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Przesiewowe badanie izoform TGF-β u szczurów oraz miareczkowanie zależności dawka-odpowiedź dla TGF-β2 u myszy w kontekście wydłużenia osiowego
Eksperymenty przeprowadzono w sekwencyjnych, niezależnych kohortach eksperymentalnych, obejmujących kohorty do przesiewowego doboru dawki (Rysunek 2) oraz kohorty do walidacji pierwotnej (Rysunek 3). W wszystkich kohortach mierzono parametry obustronne, przyjmując pojedyncze zwierzęta (N) jako podstawową replikę biologiczną. Zależności między oczami (OD względem OS u tego samego zwierzęcia) uwzględniono za pomocą dwuczynnikowej analizy wariancji z powtarzanymi pomiarami (ANOVA) lub modeli efektów mieszanych, w zależności od potrzeby. Dane ciągłe przedstawiono jako średnia ± SD. Różnice między grupą kontrolną a grupami badanymi oceniano za pomocą obustronnych testów t Studenta, jednoczynnikowej analizy ANOVA lub dwuczynnikowej analizy ANOVA z powtarzanymi pomiarami, w zależności od potrzeb. Wartość p < 0,05 uznano za istotną statystycznie.
Aby określić najbardziej aktywną izoformę czynnika wzrostu transformującego-β (TGF-β) oraz ustalić optymalny schemat dawkowania w celu indukowania wydłużenia osiowego, oceniono efekty powtarzanych iniekcji podspójówkowych u grup szczurów i myszy od momentu wyjściowego (dzień 0) do 21. dnia (Rycina 2). Pomiary biometryczne przeprowadzono w dwudniowym schemacie podzielonym, aby zapobiec artefaktom wywołanym przez znieczulenie.
Trzy rekombinowane ludzkie izoformy TGF-β (TGF-β1, TGF-β2 i TGF-β3) zostały najpierw przetestowane w kohorcie szczurów przy standaryzowanym stężeniu 500 pg/oko (Rysunek 2A). Jednoczynnikowa analiza wariancji (ANOVA) z następującymi testami post hoc dla porównań wielokrotnych wykazała, że wszystkie trzy izoformy znacząco stymulowały wzrost tylnej części oka w porównaniu z grupą kontrolną traktowaną placebo w okresie 21 dni. Choć zarówno TGF-β1 (0,444 ± 0,042 mm), jak i TGF-β3 (0,454 ± 0,049 mm) promowały znaczącą elongację osiową (p < 0,05 oraz p < 0,01 w stosunku do kontroli wynoszącej 0,328 ± 0,071 mm, odpowiednio), TGF-β2 wywołał największy wzrost długości osiowej (0,486 ± 0,074 mm) i wykazał najwyższą istotność statystyczną (p < 0,001), co ustanowiło go najskuteczniejszym induktorem fenotypu krótkowzrocznego.
Na podstawie wyników przesiewowych u szczurów przeprowadzono miareczkowanie zależności dawka-odpowiedź dla TGF-β2 w kohorcie myszy, testując trzy stężenia: 250, 375 i 500 pg/eye (Rycyna 2B). Podanie podspójówkowe TGF-β2 zaowocowało odwróconym U-kształtnym profilem zależności dawka-odpowiedź. Najniższa dawka (250 pg/eye) wywołała najistotniejsze przyspieszenie wydłużania osiowego w porównaniu z kontrolą nośnika (0.177 ± 0.038 mm względem 0.044 ± 0.011 mm; p < 0.0001). Przy wyższych dawkach (375 i 500 pg/eye) skala zmiany długości osiowej sukcesywnie malała, choć pozostawała istotnie wyższa niż w grupach kontrolnych (odpowiednio 0.123 ± 0.029 mm; p < 0.001 oraz 0.095 ± 0.024 mm; p < 0.01).
Wspólnie dane te wyznaczają cotygodniowy schemat podawania podspojówkowego w dawce 500 pg/oko dla szczurów i 250 pg/oko dla myszy jako optymalne parametry dla późniejszych badań strukturalnych i molekularnych.
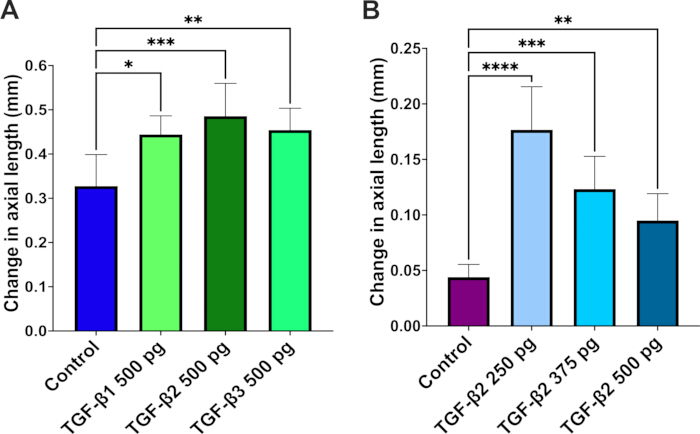
Rycina 2: Przesiewowe badanie doboru dawek izoform i stężeń czynnika wzrostu TGF-β (transforming growth factor-β) w odniesieniu do długości osiowej oczu szczurów i myszy. (A) Zmiana długości osiowej u szczurów (początkowa grupa przesiewowa), obliczona jako różnica między wartością wyjściową (dzień 0, przed pierwszym wtryskiem) a punktem końcowym (dzień 21), po trzech następujących po sobie podkonjunktywalnych wtryskach TGF-β1, TGF-β2 lub TGF-β3 (500 pg/oko podanych w dniach 0, 7 i 14), w porównaniu z grupą kontrolną traktowaną nośnikiem. (B) Zmiana długości osiowej u myszy (grupa doboru dawki), obliczona jako różnica między wartością wyjściową (dzień 0) a dniem 21, po trzech następujących po sobie podkonjunktywalnych wtryskach TGF-β2 w trzech różnych stężeniach (250, 375 lub 500 pg/oko podanych w dniach 0, 7 i 14), w porównaniu z grupą kontrolną traktowaną nośnikiem. Dane przedstawiono jako średnia ± SD (N = 5 zwierząt/grupa, co odpowiada 10 oczom na grupę). Istotność statystyczną oceniono za pomocą jednoczynnikowej analizy wariancji (ANOVA), a następnie testów wielokrotnych porównań post hoc; *p < 0,05, **p < 0,01, ***p < 0,001, ****p < 0,0001 względem grupy kontrolnej traktowanej nośnikiem. Aby zobaczyć powiększoną wersję tej ryciny, należy kliknąć tutaj.
Powtarzalne podkoniunktywalne iniekcje TGF-β2 indukują wydłużenie osiowe oka i przesunięcia krótkowzroczne u szczurów i myszy
Aby ocenić wpływ biometryczny powtarzalnego podawania TGF-β2 podkoniunktywalnie (3 iniekcje tygodniowo), monitorowano podłużne zmiany długości osiowej oka oraz błędu refrakcji od stanu wyjściowego do 3. tygodnia w modelach szczurzych i mysich (Rysunek 3). Dwudniowy protokół podzielony (pomiar stanu refrakcji w 20. dniu, a następnie ultrasonografia B-scan w 21. dniu) zminimalizował potencjalne artefakty anestetyczne i stres oka. Oba gatunki wykazały zmiany fenotypowe zgodne z rozwojem eksperymentalnej krótkowzroczności po zastosowaniu tego wielokrotnego schematu dawkowania.
W grupie szczurów zwierzęta otrzymujące powtarzalne iniekcje podspójniówkowe 500 pg/eye TGF-β2 wykazały znacznie większy przyrost długości osiowej w okresie 21 dni w porównaniu z grupą kontrolną otrzymującą nośnik (0,466 ± 0,045 mm wobec 0,388 ± 0,032 mm; p < 0,01; Rysunek 3A). Wydłużeniu temu towarzyszyła istotna zmiana w kierunku krótkowzroczności w błędzie refrakcji (p < 0,05; Rysunek 3B). Podczas gdy w oczach grupy kontrolnej zaobserwowano oczekiwany niewielki dryf w stronę nadwzroczności (+0,31 ± 0,93 D), oczy leczone TGF-β2 przeszły w stan refrakcji krótkowzrocznej (−1,38 ± 0,91 D).
Zgodnie z danymi uzyskanymi u szczurów, u myszy leczonych dawką 250 pg/oko TGF-β2 również zaobserwowano wyraźne zmiany strukturalne i refrakcyjne. Wydłużenie osiowe było znacząco większe u myszy leczonych TGF-β2 w porównaniu z grupą kontrolną otrzymującą nośnik (0.197 ± 0.012 mm w porównaniu z 0.110 ± 0.014 mm; p < 0.0001; Rycina 3C). Ponadto to wydłużenie strukturalne doprowadziło do istotnego przesunięcia w stronę krótkowzroczności (p < 0.05; Rycina 3D), co w efekcie zmieniło naturalną nadwzroczność obserwowaną u myszy kontrolnych (+2.25 ± 1.77 D) w profil krótkowzroczny (−1.58 ± 0.63 D).
Aby zweryfikować symetrię odpowiedzi międzyocznej i potwierdzić, że łączenie obustronnych pomiarów okulistycznych nie wprowadza błędu statystycznego, dynamikę wydłużenia osiowego oceniano oddzielnie dla lewego (OS, n = 5) i prawego (OD, n = 5) oka w każdej grupie (Supplementary Figure 1). Zarówno u szczurów (Supplementary Figure 1A), jak i u myszy (Supplementary Figure 1B) nie zaobserwowano statystycznie istotnych różnic między oczami OS i OD w grupach kontrolnych (vehicle) oraz w grupach leczonych TGF-β2, co potwierdza symetryczną dynamikę odpowiedzi w obu oczach. Ponadto zarówno w oczach OS, jak i OD zwierząt leczonych TGF-β2 stwierdzono spójne i wyraźne wydłużenie osiowe w stosunku do odpowiadających im kontroli vehicle (p < 0,05 dla szczurów; p < 0,0001 dla myszy), co potwierdza zasadność uwzględnienia pomiarów obustronnych w głównej analizie biometrycznej.
Wszystkie te wyniki dowodzą, że powtarzane podawanie TGF-β2 pod spojówkę skutecznie stymuluje wzrost tylnej części oka i odpowiadającą mu krótkowzroczną zmianę refrakcji w obu modelach gryzoni (Rycina 3 oraz Rycina uzupełniająca 1).
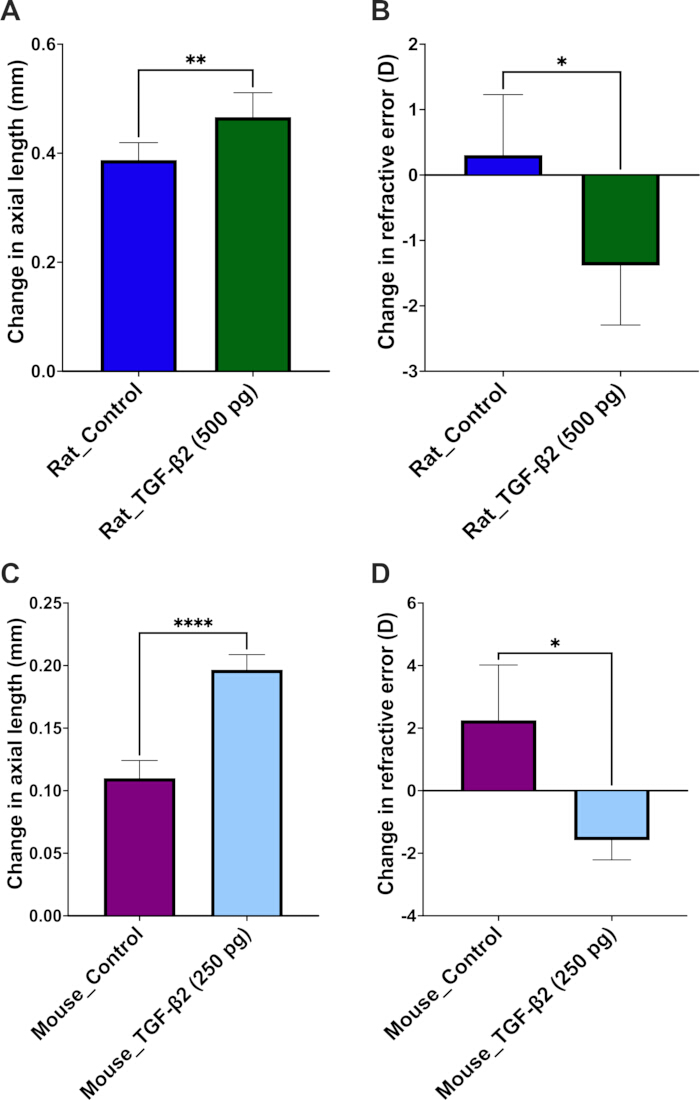
Rysunek 3: Pierwotna walidacja wpływu TGF-β2 na wydłużenie osiowe i błąd refrakcji w niezależnych kohortach szczurów i myszy. (A) Zmiana długości osiowej u szczurów, obliczona jako różnica między wartością wyjściową a końcowym punktem pomiarowym w 3. tygodniu w oczach otrzymujących podconjunktywalnie TGF-β2 (500 pg/oko podawane sekwencyjnie w dniach 0, 7 i 14) lub kontrolę nośnikiem. (B) Zmiana błędu refrakcji w tych samych oczach szczurów, wykazująca istotne przesunięcie w stronę krótkowzroczności w grupie traktowanej TGF-β2 w porównaniu z grupą kontrolną nośnikiem. (C) Zmiana długości osiowej u myszy (niezależna kohorta pierwotnej walidacji), obliczona jako różnica między wartością wyjściową a końcowym punktem pomiarowym w 3. tygodniu w oczach otrzymujących podconjunktywalnie TGF-β2 (250 pg/oko podawane w dniach 0, 7 i 14) lub kontrolę nośnikiem. (D) Zmiana błędu refrakcji w tych samych oczach myszy, wykazująca odpowiadające temu ujemne przesunięcie dioptryczne przy optymalnej indukcji TGF-β2. Dane przedstawiono jako średnia ± SD (N = 5 zwierząt/grupa, co reprezentuje 10 oczu na grupę). Istotność statystyczną rygorystycznie oceniano za pomocą nieparzystych dwustronnych testów t; *p < 0.05, **p < 0.01, ****p < 0.0001 w stosunku do odpowiadającej grupy kontrolnej nośnikiem. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Podkoniunktywalne podawanie TGF-β2 zwiększa ekspresję MMP2 w twardówce podczas postępu eksperymentalnej krótkowzroczności
Aby ocenić przebudowę tkanek wzdłuż osi siatkówkowo-twardówkowej, przeanalizowano ekspresję metaloproteinazy macierzy 2 (MMP2) w przekrojach twardówki po podkoniunktywalnym podaniu TGF-β2 (Rysunek 4). Ilościowa analiza immunofluorescencyjna przekrojów tylnej części oka w modelu szczurzym wykazała istotny wzrost poziomu białka MMP2 w zmyśle twardówki w oczach traktowanych TGF-β2 (500 pg/oko) w 21. dniu w porównaniu z grupą kontrolną otrzymującą nośnik (p < 0,0001; Rysunek 4A, B).
Wyraźny sygnał fluorescencyjny MMP2 zlokalizowano w całej macierzy twardówki znajdującej się pod nabłonkiem barwnikowym siatkówki (RPE) i warstwami naczyniówki, co potwierdziło miejscową przebudowę macierzy pozakomórkowej (ECM) związaną z MMP2 w zewnętrznej otoczce gałki ocznej podczas rozwoju eksperymentalnej krótkowzroczności. Te zmiany strukturalne w twardówce skłoniły do dalszych badań nad powyższymi zmianami molekularnymi w przyległej siatkówce.
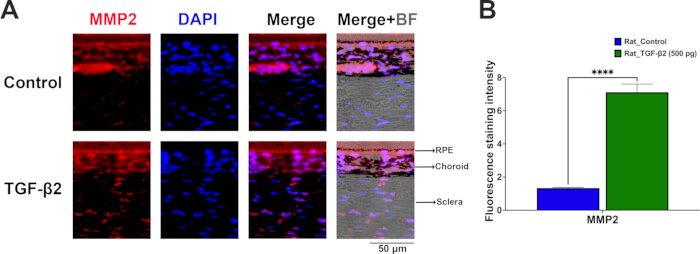
Rycina 4: Podspojówkowe podawanie TGF-β2 zwiększa ekspresję MMP2 w twardówce szczura. (A) Reprezentatywne obrazy immunofluorescencyjne poprzecznych przekrojów tylnej części oka ukazujące ekspresję MMP2 w twardówce (czerwony) u szczurów w grupie kontrolnej (vehicle) oraz traktowanych TGF-β2 (500 pg/oko) w 21. dniu. Jądra komórkowe wybarwiono DAPI (niebieski). Nałożenie obrazu w świetle przechodzącym (Merge+BF) wyznacza granice anatomiczne RPE, naczyniówki i twardówki. Pasek skali = 50 µm. (B) Analiza ilościowa intensywności barwienia fluorescencyjnego potwierdzająca istotny wzrost ekspresji MMP2 w twardówce oczu szczurów traktowanych TGF-β2. Dane przedstawiono jako średnia ± SD (N = 3 niezależne powtórzenia biologiczne na grupę, 1 oko na zwierzę). Istotność statystyczną oceniono za pomocą nieparzystego dwustronnego testu t; ****p < 0.0001 względem grupy kontrolnej (vehicle). Skróty: RPE, nabłonek barwnikowy siatkówki; BF, światło przechodzące. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
Indukcja TGF-β2 zwiększa ekspresję białek MMP2 oraz białek związanych z inflamasomem w siatkówkach szczurów i myszy
W celu zbadania molekularnych zmian następczych indukowanych przez powtarzalne iniekcje podspójniówkowe przeprowadzono barwienie immunofluorescencyjne w przekrojach tylnych części oka szczurów rasy Brown Norway oraz myszy C57BL/6 w 21. dniu (Ryc. 5A–D). Wszystkie oceny przeprowadzono na strzałkowych przekrojach siatkówki, ściśle wyrównanych względem główki nerwu wzrokowego, aby zapewnić spójną orientację przestrzenną. Analiza ilościowa wykazała, że cotygodniowe podawanie TGF-β2 istotnie zmieniło profile ekspresji specyficznych białek w warstwach siatkówki u obu gatunków w porównaniu z grupami kontrolnymi otrzymującymi nośnik (Ryc. 5E,F).
W modelu szczurzym podanie 500 pg/eye TGF-β2 doprowadziło do istotnego wzrostu poziomu TGF-β2 w siatkówce (p < 0.0001; Rycina 5A,E). Nadregulacji tej towarzyszyła zwiększona ekspresja metaloproteinazy macierzy 2 (MMP2) (p < 0.0001; Rycina 5B,E), co wskazuje na aktywną przebudowę macierzy zewnątrzkomórkowej. Ponadto leczenie TGF-β2 aktywowało kaskadę zapalną w siatkówce, co potwierdziła nadregulacja sensora inflamasomu NLRP3 (p < 0.0001; Rycina 5C,E) oraz cytokiny prozapalnej IL-1β (p < 0.0001; Rycina 5D,E).
Podobnie, u myszy leczonych dawką 250 pg/eye TGF-β2 zaobserwowano spójne tendencje wzrostowe tych biomarkerów (Ryc. 5F). Ekspresja TGF-β2 w siatkówce (p < 0,01; Ryc. 5A,F) oraz MMP2 (p < 0,001; Ryc. 5B,F) była znacząco podwyższona. W siatkówce myszy aktywowano również szlak inflamasomu, co objawiło się istotnym wzrostem ekspresji NLRP3 (p < 0,01; Ryc. 5C,F) oraz wyraźną upregulacją IL-1β (p < 0,0001; Ryc. 5D,F) w porównaniu do poziomu bazowego w grupie kontrolnej, który był niemal niewykrywalny.
Wspólnie wyniki te wykazują, że podkonjunktywalna administracja TGF-β2 promuje czynniki przebudowy macierzy zależnej od MMP2 w siatkówce oraz aktywuje szlak inflamasomu NLRP3/IL-1β w tylnej części siatkówki u obu gatunków gryzoni.
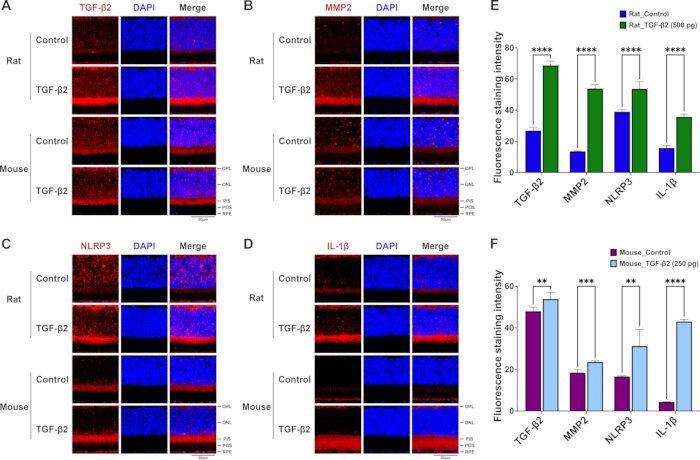
Rycina 5: Powtarzane podkonjunktywalne podawanie TGF-β2 zwiększa ekspresję MMP2 oraz białek związanych z inflamasomem w tylnej części siatkówki szczurów i myszy. (A–D) Reprezentatywne obrazy immunofluorescencyjne strzałkowych przekrojów siatkówki z grup kontrolnej i traktowanej TGF-β2 u szczurów (panele górne) i myszy (panele dolne), barwione na (A) TGF-β2, (B) MMP2, (C) NLRP3 oraz (D) IL-1β (czerwień), z przeciwbarwieniem jąder DAPI (niebieski). Pasek skali = 50 µm. Reprezentatywne pola wybiórczo pokazują zmiany w zewnętrznych warstwach siatkówki, podkreślając wyraźną ekspresję białek obejmującą obszar od zewnętrznej warstwy splotowej (OPL) w dół do podstawowego kompleksu nabłonka pigmentowego siatkówki (RPE). (E) Ilościowe oznaczenie intensywności barwienia fluorescencyjnego dla TGF-β2, MMP2, NLRP3 i IL-1β w siatkówkach szczurów z grupy kontrolnej i grupy traktowanej TGF-β2 (500 pg). (F) Ilościowe oznaczenie intensywności barwienia fluorescencyjnego dla TGF-β2, MMP2, NLRP3 i IL-1β w siatkówkach myszy z grupy kontrolnej i grupy traktowanej TGF-β2 (250 pg). Dane przedstawiono jako średnia ± SD (N = 3 niezależne powtórzenia biologiczne na grupę, 1 oko na zwierzę). Istotność statystyczną rygorystycznie oceniono za pomocą nieparzystych dwustronnych testów t; **p < 0.01, ***p < 0.001, ****p < 0.0001 względem odpowiedniej grupy kontrolnej z nośnikiem. Skróty: OPL, zewnętrzna warstwa splotowa; ONL, zewnętrzna warstwa jądrowa; PIS, wewnętrzne segmenty fotoreceptorów; POS, zewnętrzne segmenty fotoreceptorów; RPE, nabłonek pigmentowy siatkówki. Aby wyświetlić powiększoną wersję tej ryciny, kliknij tutaj.
Rycina uzupełniająca 1: Symetria międzyoczna i ocena bilateralnego łączenia danych po podaniu pod spojówkowym TGF-β2. (A) Analiza porównawcza zmian długości osiowej pomiędzy lewym okiem (OS, n = 5) a prawym okiem (OD, n = 5) u szczurów otrzymujących kontrolny wehikuł lub bilateralne podanie pod spojówkowe TGF-β2 (500 pg/oko). (B) Odpowiednie porównanie międzyoczne pomiędzy okiem OS (n = 5) a okiem OD (n = 5) u myszy w grupie kontrolnej (wehikuł) lub poddanych bilateralnemu leczeniu TGF-β2 (250 pg/oko). Analiza statystyczna potwierdziła brak istotnych różnic pomiędzy oczami OS a OD w obrębie tej samej kohorty terapeutycznej, co potwierdza, że bilateralne łączenie pomiarów nie wprowadza błędu międzyocznego. Jednocześnie oba oczy (OS i OD) u zwierząt leczonych TGF-β2 wykazały istotne wydłużenie osiowe w stosunku do odpowiednich kontroli z wehikułem. Dane przedstawiono jako średnia ± SD (N = 5 zwierząt na grupę, reprezentujących 5 oczu OS i 5 oczu OD na grupę). Istotność statystyczną oceniono za pomocą dwuczynnikowej analizy wariancji z powtarzanymi pomiarami (two-way repeated-measures ANOVA), a następnie testu post hoc Sidaka; *p < 0,05, ****p < 0,0001 względem odpowiedniej kontroli z wehikułem. Skróty: OS, oculus sinister (lewe oko); OD, oculus dexter (prawe oko). Kliknij tutaj, aby pobrać ten plik.
Rycina uzupełniająca 2: Ocena bezpieczeństwa strukturalnej integralności siatkówki i funkcji elektrofizjologicznej po podspojówkowym podaniu TGF-β2 podawanie. (A) Reprezentatywne barwienie hematoksyliną i eozyną (H&E)&Barwione przeciwciałem anty-E-kadheryną przekroje strzałkowe siatkówki z grupy kontrolnej oraz TGF-ββmyszy (250 pg/oko) i szczury (500 pg/oko) leczone preparatem 2 w 21. dniu, wykazujące zachowaną architekturę warstw siatkówki u obu gatunków (N = 3 niezależne powtórzenia biologiczne na grupę). Paski skali = 20 µm. (B) Reprezentatywne przebiegi elektroretinografii (ERG) w warunkach skotopowych zarejestrowane u myszy w 21. dniu, porównujące oczy kontrolne otrzymujące nośnik (szara linia) oraz TGF-βoczy traktowane preparatem 2 (czerwona linia). Porównywalna dynamika odpowiedzi fali a i fali b potwierdza zachowaną światłoczułość siatkówki oraz bezpieczeństwo elektrofizjologiczne (N = 3 myszy na grupę, co odpowiada 6 oczom na grupę). Skróty: GCL, warstwa komórek zwojowych; INL, wewnętrzna warstwa jądrowa; ONL, zewnętrzna warstwa jądrowa. Kliknij tutaj, aby pobrać ten plik.
Dyskusja
Wynikiem zasługującym na uwagę w badaniu jest nieliniowy, odwrócony profil dawka-odpowiedź w kształcie litery U wywołany przez TGF-β2 w grupie myszy, gdzie najniższa podana dawka (250 pg/oka) wywołała najbardziej widoczną elongację osiową (Rycina 2B). Ten dwufazowy fenomen jest charakterystyczny dla wielu silnych szlaków sygnalizacyjnych cytokin, w tym TGF-β nadrodzina29,30. Zbyt wysokie stężenia egzogennego TGF-β2 może prowadzić do nasycenia receptora lub uruchomienia wewnątrzkomórkowych pętli sprzężenia zwrotnego o charakterze hamującym—takie jak podwyższenie ekspresji hamującego członka rodziny SMAD, białka 7 (Smad7), lub endocytoza zależna od receptora—co prowadzi do osłabienia biologicznych odpowiedzi zachodnich31,32Dane immunofluorescencyjne dodatkowo potwierdzają istnienie tego okna farmakologicznego; dawka 250 pg u myszy (oraz 500 pg u szczurów) skutkowała umiarkowanym wzrostem stężenia TGF-β w siatkówceβ2 retencji, jednocześnie wywołał silny kaskadowy proces zapalny w dół strumienia (Rycina 5F). Sugeruje to, że zoptymalizowany próg niskiej dawki mieści się w bardzo wrażliwym oknie fizjologicznym, maksymalizując skuteczność działania na tkanki docelowe i unikając jednocześnie odwrażliwości wywołanej ligandem lub lokalnego przytłumienia33Dlatego te wyniki podkreślają konieczność starannego doboru dawek podczas tworzenia odtwarzalnych modeli gryzoniowych chemioindukowanej krótkowzroczności.
W porównaniu z tradycyjnym modelem krótkowzroczności spowodowanej ograniczeniem ostrości obrazu (FDM) lub modelem krótkowzroczności wywołanej soczewkami powodującymi rozogniskowanie hipermetropowe (LIM)—które wymagają niestandardowego sprzętu i są narażone na przesunięcie soczewki, oderwanie spowodowane czesaniem oraz powikłania rogówkowe—protokół podspojówkowy zapewnia bezpośrednią kontrolę farmakologiczną i minimalne koszty wyposażenia13,34. Zgodnie z wcześniejszymi badaniami wykazującymi, że dostarczanie leku w okolicy oczodołowej moduluje stwardnienie twardówki i siatkówki TGF-β sygnalizacja35, te dane wykazują odpowiedzi biologiczne segmentu tylnego oka po podanym do przodu pod spojówkową przestrzeni transformującego czynnika wzrostu TGF-β2 podania (Rycina 4 i Rysunek 5). Ta skuteczna posteriorna lokalizacja wynika z unikalnej budowy powiek i dynamiki płynów u małych gryzoni. Ze względu na krótką długość osi oka gryzoni (~3 mm u myszy i ~6 mm u szczurów), podanie leku pod spojówkę nawilża stosunkowo dużą część powierzchni nadtwardówkowej. Dzięki wysokiej przepuszczalności przez twardówkę oraz anatomicznej ciągłości przestrzeni podtwardówkowej (przestrzeni Tenona), wprowadzona formuła może dyfundować przez twardówkę i naczyniówkę w kierunku bieguna tylnego. Co istotne, droga ta wiąże się z efektami biologicznymi w tkankach oka tylnego odcinka, unikając jednocześnie poważnych ryzyk przebicia gałki ocznej i uszkodzenia nerwu wzrokowego, które są nieodłączne od głębokich iniekcji podtwardówkowych (podtenonowych) lub wewnątrzszklistkowych u małych gryzoni. Ta metoda pozwala również uniknąć zakłóceń behawioralnych i mechanicznych związanych z noszeniem soczewek zamocowanych na głowie.13,36, a także dobrze udokumentowane ryzyko odwarstwienia siatkówki i zapalenia wnętrza gałki ocznej związanego z wstrzyknięciem do ciała szklistego37,38Dodatkowo podział pomiarów biometrycznych na dwa krótkie sesje stanowi ulepszenie w porównaniu do konwencjonalnych jednosesyjnych schematów. Prolongowana ekspozycja na działanie środków znieczyniających powoduje często zaburzenia oczne.—takie jak zaćma spowodowana anestezją u myszy i samoistne zamknięcie powiek u szczurów—które wpływa negatywnie na dokładność pomiarów refrakcji i osi gałki ocznej39,40. Poprzez oddzielenie wad refrakcyjnych (dni –1 i 20) oraz ocen długości osi oka (dzień 0 i 21), protokół został zaprojektowany tak, aby zminimalizować potencjalne kumulatywne obciążenie oka i utrzymać stałe warunki obrazowania, co może pomóc ograniczyć zmienność wewnątrzeksperymentalną. Aby dodatkowo wyeliminować potencjalne zmienne zakłócające wynikające z ogólnoustrojowego wzajemnego zanieczyszczenia—takie jak wchłanianie naczyniowe układowe lub transport limfatyczny wpływające na tkanki niemieszczące się w obszarze docelowym—a także reakcje współczulne po stronie przeciwnej, zastosowano ścisły układ międzyosobniczy. Poprzez podawanie lewym i prawym środkiem kontrolnym lub aktywnym rhTGF-β2 u pojedynczych zwierząt ten schemat zapobiega zanieczyszczeniu międzysrogówkowemu, jednocześnie zapewniając wiarygodną ocenę farmakologiczną. Stale oddzielne analizy biometryczne sparowanych lewych i prawych oczu potwierdzały wysoką symetrię międzysrogówkową, co potwierdza, że łączenie danych z obu oczu nie wprowadziło obciążenia statystycznego ani fizjologicznego w ramach grup leczonychDodatkowy rysunek 1).
Ten model gryzonia skutecznie odtwarza TGF-β2–napędzana przez oś zapalną i przebudowującą macierz pozakomórkową, wcześniej wykazaną w badaniach autorów u szynszylowatych i szczurów brązowych Norwegii21,41. Poprzednie badania autorów wykazały, że egzogenne TGF-β lub TGF-β2 nasilenie zapalenia wewnątrzgałkowego—szczególnie poprzez NF-κB i IL-1β aktywacja—przy jednoczesnym zwiększaniu ekspresji MMP2, wyczerpywaniu kolagenu I w twardówce i napędzaniu wydłużenia osiowego42,43Z drugiej strony, osłabienie aktywności dopełniacza i inflamasomu za pośrednictwem czynnika przyspieszającego rozpad dopełniacza (CD55) hamowało zarówno stan zapalny lokalny, jak i postęp miopii41,44Podobne cechy przewlekłego stanu zapalnego, charakteryzujące się podwyższoną aktywacją MMP2 i wynikającą z tego utratą kolagenu typu I, obserwuje się również w klasycznych modelach deprywacji wzroku oraz u pacjentów z patologiczną wysoką krótkowzrocznością42,43,45,46. Co istotne, zamiast pełnić funkcję odosobnionego lub uniwersalnego pierwotnego induktora działającego jednolicie we wszystkich tkankach, TGF-β (szczególnie TGF-β2 izoforma) działa jako zależny od kontekstu mostek sygnalizacyjny. Łączy sygnalizację zapalną w siatkówce/pigmentowym nabłonku siatkówki na wczesnym etapie—szczególnie poprzez aktywację inflamasomu NLRP3 i układu dopełniacza—do dalszego przetwarzania pozamaczowego macierzy zewnątrzkomórkowej twardówki (ECM)21,41. Rozpoznanie tego przestrzennoczasowego przejścia wyjaśnia pozorne niejasności w literaturze dotyczącej TGF-β ekspresji, ponieważ jej dynamika zmienia się od wczesnej lokalnej amplifikacji zapalnej w siatkówce/pigmentowym nabłonku siatkówki (RPE) do późnej degradacji macierzy pośredniczonej przez metaloproteinazy macierzy zewnątrzkomórkowej (MMP) w twardówce47,48. W szczególności, mimo że degradacja strukturalna ECM twardówki ostatecznie determinuje fizyczne wydłużenie gałki ocznej (Rycina 4), wyniki molekularne wskazują na zewnętrzną warstwę siatkówki i nabłonek barwnikowy siatkówki (RPE) jako główne, pierwotne źródło sygnałówRycina 5). W niniejszym badaniu, choć wykorzystano wyłącznie ilościową immunofluorescencję (IF) w celu zmapowania przestrzennego rozmieszczenia in situ oraz warstwowego nasilenia tych markerów, ogólne dynamiki ekspresji genu i białka (odpowiednio za pomocą RT-qPCR i Western blot) fosforylowanego czynnika jądrowego kappa B (p-NF-κB)/IL-1βczynnik martwicy nowotworów-alfa (TNF-α)/kaskada NLRP3 w identycznych warunkach TGF-βZostały niezależnie opracowane dwa paradygmaty indukcji w poprzednich badaniach autorów46,49. Podspojówkowe TGF-β2 aktywuje NLRP3/IL-1β–kaskadę MMP2 w siatkówce/RPE, która rozprzestrzenia się wzdłuż osi siatkówkowo-choroidalno-twardówkowej, prowadząc do zwiększonej ekspresji MMP2 w twardówce i przebudowy macierzy zewnątrzkomórkowej. Te podobieństwa stanowią silne potwierdzenie kluczowej roli przewlekłego stanu zapalnego o niskim nasileniu oraz przebudowy macierzy zewnątrzkomórkowej twardówki (ECM) za pośrednictwem MMP w przyspieszonym wzroście gałki ocznej.
Mimo tych zalet proceduralnych, należy wziąć pod uwagę kilka ograniczeń obecnego protokołu. Po pierwsze, jako czysto farmakologiczny model oparty na dostarczaniu egzogennych cytokin, podejście to omija drogi transdukcji sygnału świetlnego od siatkówki do twardówki oraz defokus optyczny charakterystyczne dla tradycyjnych modeli krótkowzroczności wywołanej ograniczeniem formy (FDM) lub krótkowzroczności indukowanej soczewką (LIM).16,50. W związku z tym, mimo że jest bardzo odpowiedni do celowania w kaskady biochemiczne zależne—oś remodelowania zapalnego-MMP2—jest uzupełnieniem, a nie zamiennikiem modeli badających wczesne etapy przetwarzania informacji wzrokowej lub manipulacje optyczne51Po drugie, mimo że wstrzyknięcie pod spojówkę pozwala uniknąć toksyczności systemowej oraz ryzyka związanego z wstrzyknięciami do ciała szklistego, konieczność powtarzania mikrowstrzyków (raz w tygodniu przez 3 tygodnie) wiąże się z przemijającym, lokalnym zaburzeniem mechanicznym oraz krótkotrwałym narażeniem na działanie znieczulenia, co może subtelnie wpływać na homeostazę powierzchni gałki ocznej, jeśli procedura nie zostanie wykonana starannie.38,52. Odtwarzalne wywołanie doświadczalnej krótkowzroczności drogą podspojówkową w dużym stopniu zależy od precyzyjnego wykonania technicznego podczas podawania leku. Główne znaczenie dla powodzenia ma prawidłowe, płytkie wprowadzenie igły pod spojówkę powiekową w celu utworzenia lokalizowanego, wyraźnie ograniczonego pęcherzyka podśluzówkowego (chemosis). Natychmiastowa weryfikacja za pomocą transiluminacji zapewnia, że ciecz pozostaje w odpowiedniej warstwie tkaninowej, zapobiegając przypadkowemu przebiciu twardówki, ucieczce płynu do głębszych partii oczodołu lub uszkodzeniu drobnych naczyń krwionośnych. Aby zapobiec cofaniu się płynu po iniekcji lub aktywnemu wyciekowi—powszechny sposób awarii, który narusza skuteczne dawkowanie farmakologiczne—mikroigłę należy utrzymać w miejscu przez 5 s po podaniu, zanim zostanie powoli i równomiernie wycofana pod kontrolą wzrokową. W przypadkach, gdy natychmiast po wycofaniu występuje refl uks, niewystarczająca wysokość pęcherzyka lub przypadkowe krwawienie do tkanek, zwierzęta należy udokumentować i wykluczyć zgodnie z wcześniej określonymi kryteriami, aby uniknąć zakłócania wyników zmienną. Ścisłe przestrzeganie tych rygorystycznych kryteriów technicznych gwarantuje wierną, skierowaną retencję leku w tylnej części oka przy jednoczesnym minimalizowaniu urazów powierzchni oka. Co więcej, mimo że bezwzględne wartości refrakcji (np. -1,58 D u myszy i -1,38 D u szczurów) w modelach gryzoniowych mogą wydawać się niewielkie w porównaniu do ich wysokiej mocy dioptrycznej w stanie podstawowym, to całkowite przesunięcia w kierunku krótkowzroczności w stosunku do kontroli z użyciem środka nośnego są znaczne (+3,83 D u myszy i +1,69 D u szczurów; oba p < 0,05) i ściśle zgodne z osiowym wydłużeniem strukturalnym oraz zwiększoną ekspresją MMP2 w twardówce w dystalnych częściach u obu gatunków. Co istotne, oceny bezpieczeństwa i tolerancji fizjologicznej potwierdziły brak cytotoksyczności tego schematu podskórnego podania w niskiej dawce. Przekroje histologiczne (H&E) ujawniło dobrze zachowaną architekturę warstw siatkówki zarówno u myszy, jak i szczurów, podczas gdy elektroretinografia skotopowa (ERG) przeprowadzona w 21. dniu wykazała zachowane odpowiedzi fali a i fali b bez opóźnień czasu utajonego ani obniżenia amplitudy (Dodatkowy rysunek 2), potwierdzając, że lokalnie występujący TGF-β2. podanie indukuje ukierunkowane wydłużenie osi gałki ocznej bez powodowania strukturalnej retinopatii ani zaburzeń elektrofizjologicznych. Po trzecie, oceny punktu końcowego w 3. tygodniu obejmują ostry do podostrego odpowiedzi zapalne oraz przebudowę macierzy zewnątrzkomórkowej; konieczne są badania długoterminowe, aby określić, czy te zmiany fenotypowe utrzymują się po zakończeniu leczenia, czy też obserwuje się dynamikę powrotu do normy po ustąpieniu działania leku41,53Wreszcie, mimo bezpośrednich analiz farmakokinetyki i przenikania do tkanek ocznych egzogennego TGF-β2 wykraczały poza zakres tego badania walidacyjnego modelu, ale silne i spójne zmiany biometryczne (wydłużenie osiowe i zmiana ugięcia) wraz ze specyficznymi aktywacjami cząsteczkowymi w siatkówce/pigmentowym nabłonku siatkówki (RPE), ustalone we wcześniejszych badaniach przez autorów46,49, wspierają skuteczne działanie biologiczne w tylnych strukturach oka. Przyszłe badania obejmujące dodatkowe profilowanie ekspresji białek (np. Western blotting), RT-qPCR lub znakowane fluorescencyjnie TGF-βŚledzenie 2 pozwoli dokładniej określić jego rozkład tkankowy i kinetykę eliminacji. Zrozumienie tych ograniczeń pomoże badaczom w wyborze tego modelu do odpowiedniego przesiewu terapeutycznego oraz weryfikacji mechanizmów działania.
Poprzez wykazanie, że podspojówkowe TGF-β2 aktywuje ścieżkę NLRP3/IL-1β–oś MMP2 w zewnętrznej warstwie siatkówki i nabłonku barwnikowym siatkówki (RPE) szczurów rasy Brown Norway oraz myszy C57BL/6, protokół dostarcza farmakologicznie zdefiniowanego ujęcia, które potwierdza istnienie tych ścieżek zapalnych i przebudowy macierzy pozakomórkowej u gryzoni różnych gatunków. W konsekwencji, TGF-β2–model indukowany stanowi niezawodną platformę do standaryzacji indukcji wydłużenia osi gałki ocznej, analizy kaskad sygnałowych między siatkówką a twardówką oraz przesiewania wczesnych interwencji terapeutycznych skierowanych przeciwko TGF-β2, składniki dopełniacza, inflamasom lub MMP2
Oświadczenia
Autorzy nie mają do ujawnienia żadnych informacji ani konfliktów interesów związanych z niniejszym badaniem. Narzędzia językowe wspomagane przez AI zostały wykorzystane wyłącznie do edycji gramatycznej i udoskonalenia składni języka angielskiego podczas przygotowywania rękopisu. Generatywne narzędzia AI nie były używane podczas pozyskiwania danych, przetwarzania obrazów, analizy ilościowej ani konstruowania rycin.
Podziękowania
Eksperymenty i analizę danych wykonano częściowo w Wydziałowych Obiektach Badawczych ds. Medycyny, Biurze ds. Badań & Rozwój w Chińskiej Uniwersyteckiej Szkole Medycznej (China Medical University), Taichung, Tajwan, R.O.C. Autorzy serdecznie dziękują Narodowemu Centrum Modeli Biologicznych (NCB, NIAR, Tajwan) oraz firmie BioLASCO Taiwan Co., Ltd. za wyjątkowe wsparcie techniczne w zakresie umownego rozmnażania i dostaw zwierząt doświadczalnych. Dodatkowo, schematyczna architektura oraz procedury mikrochirurgiczne przedstawione na Ryc. 1 zostały zaprojektowane i dostosowane indywidualnie przy użyciu wektorowych materiałów o wysokiej rozdzielczości z Mind the Graph (mindthegraph.com, licencja Premium) oraz profesjonalnie zebranych i dopracowanych za pomocą programu Affinity Designer (Serif Europe Ltd.). Badania finansowane częściowo przez Rada Nauki i Technologii (National Science and Technology Council), Tajwan, R.O.C. (NSTC-112-2314-B-039-029; 115-2320-B-039-056), Szpital Uniwersytecki Chińskiej Szkole Medycznej, Taichung, Tajwan (DMR-114-091; DMR-115-117) oraz Chińską Uniwersytecką Szkołę Medyczną, Taichung, Tajwan (CMU114-MF-78; CMU-114-ASIA-10). Beneficjenci finansowania nie mieli wpływu na projekt badania, zbieranie i analizę danych, decyzję o publikacji ani przygotowanie manuskryptu. Organizacja sponsorująca lub finansująca nie miała wpływu na projekt ani prowadzenie tego badania.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Automatyczny podczerwony fotorefraktometr | StriaTech GmbH (TüBingen, Niemcy) | ST-PR.01 | Z ustawieniami wstępnymi specyficznymi dla gatunków myszy/szczura |
| Zrównoważony roztwór soli (BSS) | Alcon Laboratories, Inc. (Fort Worth, USA) | Brak danych | Sterylny roztwór do irygacji wewnątrzgałkowej |
| Albumina surowicy bydlęcej (BSA) | Sigma-Aldrich (St. Louis, USA) | A3059 | Proszek liofilizowany, frakcja V 0,1% |
| szczury rasy Brown Norway (BN) | BioLASCO Taiwan Co., Ltd. i/lub Narodowe Centrum Biomodeli (National Center for Biomodels) | Szczury norweskie (brązowe) Szczury norweskie (Rattus norvegicus) są powszechnie stosowane w badaniach biomedycznych ze względu na ich podobieństwo fizjologiczne i anatomiczne do ludzi. Są one idealnymi modelami do badań nad mechanizmami chorób, testowania nowych leków oraz przeprowadzania eksperymentów behawioralnych. Cechy: Szczury norweskie charakteryzują się wysoką inteligencją, zdolnością do uczenia się oraz stabilnym temperamentem, co czyni je doskonałymi obiektami w badaniach neuropsychologicznych i toksykologicznych. Zastosowania: - Badania farmakologiczne i toksykologiczne - Modele chorób metabolicznych i neurologicznych - Badania nad zachowaniem i kognicją - Immunologia i badania nad szczepionkami Dostępne warianty: Oferujemy szczury w różnych grupach wiekowych i wagowych, dostosowanych do specyficznych wymagań każdego projektu badawczego. Zapewniamy najwyższe standardy etyczne i jakościowe w hodowli naszych zwierząt laboratoryjnych, gwarantując zdrowie i jednorodność genetyczną populacji. | |
| myszy C57BL/6 (B6) | BioLASCO Taiwan Co., Ltd. i/lub National Center for Biomodels | Strona główna -> Modele zwierzęce -> Model świni Podstawowe informacje o modelu Model zwierzęcy: Świnia Nazwa szczepu: Landrace Opis: Świnie rasy Landrace są powszechnie stosowane w badaniach biomedycznych ze względu na ich podobieństwo anatomiczne i fizjologiczne do ludzi, szczególnie w układzie sercowo-naczyniowym, trawiennym oraz w strukturze skóry. Są one często wykorzystywane jako modele w badaniach nad transplantologią, kardiologią, dermatologią oraz w testach przedklinicznych nowych leków i wyrobów medycznych. Charakterystyka modelu: - Podobieństwo anatomiczne: Wysoki stopień podobieństwa do człowieka w zakresie wielkości organów i budowy tkanek. - Zastosowania: Badania nad regeneracją tkanek, modelowanie chorób metabolicznych, badania farmakokinetyki i farmakodynamiki. - Zalety: Możliwość wykonania wielu zabiegów chirurgicznych, możliwość pobierania dużych ilości próbek krwi i tkanek. Kluczowe parametry: - Masa ciała: Zależna od wieku (od kilku kilogramów po ponad 100 kg). - Cykl rozrodczy: Okres ciąży wynosi około 114-115 dni. - Zachowanie: Zwierzęta inteligentne, wymagające odpowiednich warunków socjalnych i środowiskowych w celu minimalizacji stresu.&nid=3&strona=0&typ=1 | |
| Roztwór DAPI (1 mg/ml) | Thermo Scientific (Thermo Fisher Scientific, Waltham, USA) | 62248 | Stosować w rozcieńczeniu roboczym 1:500 do immunofluorescencji. |
| Etanol absolutny (≥99.5%) | J.T.Baker (Avantor Performance Materials, Radnor, USA) | Nie dotyczy | czystości analitycznej, 75% do płukania, 20%–100% do odwodnienia |
| Oświetlacz Fiber-Lite (150 W, podwójny wysięgnik) | Stoelting Co. (Wood Dale, USA) | W związku z brakiem tekstu źródłowego do tłumaczenia, proszę o dostarczenie materiałów, które wymagają przetłumaczenia na język polski. | Wysokointensywne źródło światła |
| Mikropincety z cienkimi końcówkami | Stephens Instruments (Lexington, USA) | S5-1375 | Prosty, ząbkowany, z prowadnikiem |
| Żel do oczu Ginpol | Winston Medical Supply Co., Ltd. (Tainan, Tajwan) | N/D | Karbomer 0,2%, ochrona rogówki |
| Glicerol (biologia molekularna, ≥99.0%) | Sigma-Aldrich (St. Louis, USA) | G5516 | Odczynnikowa czystość, 50% roztwór roboczy matrycy |
| Przeciwciało wtórne kozie przeciwko IgG (H+L) królika, Alexa Fluor Plus 555 | Invitrogen (Thermo Fisher Scientific, Waltham, USA) | A32732 | Stosowany w rozcieńczeniu roboczym 1:800 do immunofluorescencji. |
| Przenośny wielogatunkowy system elektroretinografii (HMSERG) | OcuScience (Henderson, USA) | Model 2000 (HMsERG-2000), system pełno-polowej błyskawicznej ERG dla gryzoni z oprogramowaniem ERGView. | |
| Hartman′Fiksatyw s (fiksatyw Davidsona) | Sigma-Aldrich (St. Louis, USA) | H0290 | Szybki koktajl utrwalający do geometrii oka |
| Głowica ultradźwiękowa o wysokiej częstotliwości | ASUSTeK Computer Inc. (Tajpej, Tajwan) | LU710LH | Przenośny, częstotliwość 16 MHz |
| Igła do mikrowstrzykiwania (33 G) | Hamilton Company (Reno, USA) | 7803-05 | Styl końcówki 4, płytki kąt ścięcia |
| Strzykawka do mikroiniekcji (10 µL) | Hamilton Company (Reno, USA) | 80014 (#1701) | Mikrosyryka szczelna gazowo (mikrolitrowa) |
| Krople do oczu Mydrin-P | Santen Pharmaceutical Co., Ltd. (Osaka, Japonia) | N/A | 0,5% tropikamidu / 0,5% fenylefryny |
| Normalna surowica kozia | Jackson ImmunoResearch Laboratories, Inc. (West Grove, USA) | 005-000-121 | Stosowany jako 10% roztwór blokujący do immunofluorescencji. |
| Oprogramowanie do akwizycji danych fotorefraktometrycznych | StriaTech GmbH (TüBingen, Niemcy) | N/D | Zautomatyzowane przetwarzanie średniego ekwiwalentu sferycznego |
| Królicze przeciwciało monoklonalne anty-IL1 beta (HL1421) | GeneTex, Inc. (Irvine, USA) | GTX636887 | Stosowane w rozcieńczeniu roboczym 1:500 do immunofluorescencji. |
| Królicze przeciwciało poliklonalne przeciwko MMP2 | GeneTex, Inc. (Irvine, USA) | GTX104577 | Stosowany w rozcieńczeniu roboczym 1:500 do immunofluorescencji. |
| Królicze przeciwciało poliklonalne przeciwko NLRP3 | Abcam (Cambridge, UK) | ab214185 | Stosowany w rozcieńczeniu roboczym 1:400 w immunofluorescencji. |
| Królicze przeciwciało poliklonalne anty-TGF-beta 2 | AbboMax, Inc. (San Jose, USA) | 500-3784 | Stosowany w rozcieńczeniu roboczym 1:250 do immunofluorescencji. |
| Rekombinowany ludzki TGF-β1 | PeproTech (Thermo Fisher Scientific, Cranbury, USA) | 100-21 | Proszek liofilizowany, wysoka czystość |
| rekombinowany ludzki TGF-β2 | PeproTech (Thermo Fisher Scientific, Cranbury, USA) | 100-35 | Proszek liofilizowany, wysoka czystość |
| Rekombinowany ludzki TGF-β3 | PeproTech (Thermo Fisher Scientific, Cranbury, USA) | 100-36 | Proszek liofilizowany, wysoka czystość |
| Sterylny żel do badań ultrasonograficznych Aquasonic 100 | Parker Laboratories, Inc. (Fairfield, USA) | Tekst źródłowy nie został dostarczony. Proszę o przesłanie treści do tłumaczenia. | Standardowa matryca sprzęgania akustycznego |
| Oprogramowanie do obrazowania ultradźwiękowego | ASUSTeK Computer Inc. (Tajpej, Tajwan) | N/A | Do wizualizacji B-skanu w czasie rzeczywistym oraz pomiarów suwmiarką |
Bibliografia
- Holden BA, et al. Myopia: a growing global problem with sight-threatening complications. Community eye health. 2015;28(90):35.
- Holden BA, et al. Global prevalence of myopia and high myopia and temporal trends from 2000 through 2050. Ophthalmology. 2016;123(5):1036-42.
- McMonnies CW. An examination of the relation between intraocular pressure, fundal stretching, and myopic pathology. Clinical and Experimental Optometry. 2016;99(2):113-9.
- Fledelius HC. Myopia and significant visual impairment: global aspects [Presentation]. Presented at: 7th International Conference on Myopia; Taipei, Taiwan; 1998.
- Park SC, Liebmann JM, Ritch R. Glaucoma in myopia. Pathologic Myopia: Springer; 2013. p. 283-92.
- Gale J, Ikuno Y. Ii. B. Myopic Vitreopathy. Vitreous: In Health and Disease: Springer; 2014. p. 113-29.
- Saw SM, Gazzard G, Shih-Yen EC, Chua WH. Myopia and associated pathological complications. Ophthalmic and Physiological Optics. 2005;25(5):381-91.
- Tkatchenko TV, Shen Y, Tkatchenko AV. Mouse Experimental Myopia Has Features of Primate Myopia. Investigative Ophthalmology & Visual Science. 2010;51(3):1297-303.
- Morgan IG, Ashby RS, Nickla DL. Form deprivation and lens-induced myopia: are they different? Ophthalmic Physiol Opt. 2013;33(3):355-61.
- Barathi VA, Boopathi VG, Yap EP, Beuerman RW. Two models of experimental myopia in the mouse. Vision Res. 2008;48(7):904-16.
- Zhao HL, Wang RQ, Wu MQ, Jiang J. Dynamic changes of ocular biometric parameters: a modified form-deprivation myopia model of young guinea pigs. Int J Ophthalmol. 2011;4(5):484-8.
- Wu XH, et al. Unaltered retinal dopamine levels in a C57BL/6 mouse model of form-deprivation myopia. Invest Ophthalmol Vis Sci. 2015;56(2):967-77.
- Faulkner AE, Kim MK, Iuvone PM, Pardue MT. Head-mounted goggles for murine form deprivation myopia. J Neurosci Methods. 2007;161(1):96-100.
- Wang Y, Zhang Y, Tian N. Cause and Management of Suture-related Ocular Complications after Buried-suture Double-eyelid Blepharoplasty. J Plast Reconstr Aesthet Surg. 2021;74(12):3431-6.
- Pang K, Lennikov A, Yang M. Hypoxia adaptation in the cornea: Current animal models and underlying mechanisms. Animal Model Exp Med. 2021;4(4):300-10.
- Schaeffel F, Feldkaemper M. Animal models in myopia research. Clinical and Experimental Optometry. 2015;98(6):507-17.
- Harper AR, Summers JA. The dynamic sclera: extracellular matrix remodeling in normal ocular growth and myopia development. Exp Eye Res. 2015;133:100-11.
- Jobling AI, Nguyen M, Gentle A, McBrien NA. Isoform-specific changes in scleral transforming growth factor-beta expression and the regulation of collagen synthesis during myopia progression. J Biol Chem. 2004;279(18):18121-6.
- Vranka JA, Kelley MJ, Acott TS, Keller KE. Extracellular matrix in the trabecular meshwork: intraocular pressure regulation and dysregulation in glaucoma. Exp Eye Res. 2015;133:112-25.
- Tien P-T, et al. Diacerein inhibits myopia progression through lowering inflammation in retinal pigment epithelial cell. Mediators of Inflammation. 2021;2021(1):6660640.
- Ku H, et al. The role of transforming growth factor beta in myopia development. Molecular immunology. 2024;167:34-42.
- Yin X, Ge J. The role of scleral changes in the progression of myopia: a review and future directions. Clinical Ophthalmology. 2025:1699-707.
- Schippert R, Brand C, Schaeffel F, Feldkaemper MP. Changes in scleral MMP-2, TIMP-2 and TGFβ-2 mRNA expression after imposed myopic and hyperopic defocus in chickens. Experimental eye research. 2006;82(4):710-9.
- Xin J, et al. Crosstalk between myopia and inflammation: a mini review. International journal of medical sciences. 2024;21(9):1589.
- Zhang K, et al. Elevated Transforming Growth Factor-β2 in the Aqueous Humor: A Possible Explanation for High Rate of Capsular Contraction Syndrome in High Myopia. Journal of Ophthalmology. 2016;2016(1):5438676.
- Zhang M, et al. Complement and local ocular inflammatory response: Chronic immune factors in myopia. Science Progress. 2025;108(3):00368504251383046.
- Meng L, et al. Aqueous Humour Cytokines as Predictors of Axial Elongation in High Myopia: A 2-Year Longitudinal Cohort Study. Clinical & Experimental Ophthalmology. 2026;54(6):756-768.
- Miller DA, et al. Murine transforming growth factor-β2 cDNA sequence and expression in adult tissues and embryos. Molecular Endocrinology. 1989;3(7):1108-14.
- Langer JC, Henckaerts E, Orenstein J, Snoeck HW. Quantitative trait analysis reveals transforming growth factor-beta2 as a positive regulator of early hematopoietic progenitor and stem cell function. J Exp Med. 2004;199(1):5-14.
- Shinar DM, Rodan GA. Biphasic effects of transforming growth factor-beta on the production of osteoclast-like cells in mouse bone marrow cultures: the role of prostaglandins in the generation of these cells. Endocrinology. 1990;126(6):3153-8.
- Heldin CH, Moustakas A. Signaling Receptors for TGF-β Family Members. Cold Spring Harb Perspect Biol. 2016;8(8).
- Zhao B, Chen YG. Regulation of TGF-β Signal Transduction. Scientifica (Cairo). 2014;2014:874065.
- Akhurst RJ. Targeting TGF-β Signaling for Therapeutic Gain. Cold Spring Harb Perspect Biol. 2017;9(10).
- Pardue MT, Stone RA, Iuvone PM. Investigating mechanisms of myopia in mice. Exp Eye Res. 2013;114:96-105.
- Cordeiro MF, Gay JA, Khaw PT. Human Anti-Transforming Growth Factor-β2 Antibody: A New Glaucoma Anti-Scarring Agent. Investigative Ophthalmology & Visual Science. 1999;40(10):2225-34.
- Guo ZV, et al. Procedures for Behavioral Experiments in Head-Fixed Mice. PLOS ONE. 2014;9(2):e88678.
- Jager RD, Aiello LP, Patel SC, Cunningham ET, Jr. Risks of intravitreous injection: a comprehensive review. Retina. 2004;24(5):676-98.
- Lommatzsch AP, et al. Endophthalmitis als schwere Komplikation der intravitrealen Medikamentengabe. Klin Monbl Augenheilkd. 2013;230(11):1130-4.
- Li XT, Qin Y, Zhao JY, Zhang JS. Acute lens opacity induced by different kinds of anesthetic drugs in mice. Int J Ophthalmol. 2019;12(6):904-8.
- Tkatchenko TV, Tkatchenko AV. Ketamine-xylazine anesthesia causes hyperopic refractive shift in mice. J Neurosci Methods. 2010;193(1):67-71.
- Lin S-C, et al. The Function of Transforming Growth Factor 2 in Facilitating Inflammas ome Activation to Enhance the Development of Myopia via Complement Sys tem. Cells. 2025;14(16):1295.
- Wei CC, et al. Allergic Conjunctivitis-induced Retinal Inflammation Promotes Myopia Progression. EBioMedicine. 2018;28:274-86.
- Wei CC, et al. Corrigendum to "Allergic Conjunctivitis-induced Retinal Inflammation Promotes Myopia Progression" [EBioMedicine 28 (2018) 274-286]. EBioMedicine. 2019;41:717-8.
- Lin HJ, et al. Role of Chronic Inflammation in Myopia Progression: Clinical Evidence and Experimental Validation. EBioMedicine. 2016;10:269-81.
- Lin HJ, et al. Sclera-related gene polymorphisms in high myopia. Mol Vis. 2009;15:1655-63.
- Lin CF, et al. Harnessing Lactiplantibacillus plantarum EP21 and its membrane vesicles to inhibit myopia development. Gut Microbes. 2025;17(1):2534677.
- Chou Y-L, et al. Complement decay-accelerating factor inhibits inflammation-induced myopia development. Molecular Immunology. 2024;171:47-55.
- Ku H, et al. Myopia development in tree shrew is associated with chronic inflammatory reactions. Current Issues in Molecular Biology. 2022;44(9):4303-13.
- Chou Y-L, et al. Vitamin D3 Reshapes Gut Microbiota and Metabolite Profiles in a Rat Model of Inflammation-Induced Myopia. Biomolecules. 2026;16(7):939.
- Wallman J, Winawer J. Homeostasis of eye growth and the question of myopia. Neuron. 2004;43(4):447-68.
- Morgan IG, et al. IMI Risk Factors for Myopia. Investigative Ophthalmology & Visual Science. 2021;62(5).
- Wildsoet C, et al. IMI-interventions for controlling myopia onset and progression report. Investigative Ophthalmology and Visual Science. 2019;60(3):M106-M31.
- Rada JAS, Shelton S, Norton TT. The sclera and myopia. Experimental eye research. 2006;82(2):185-200.
Przedruki i uprawnienia
Ten artykuł został opublikowany
Film wkrótce dostępny