Niniejszy protokół opisuje powtarzalną metodę izolacji i hodowli pierwotnych komórek mięśni gładkich aorty myszy z obszarów klatki piersiowej i brzusznej. Metoda ta pozwala na uzyskanie żywych komórek odpowiednich do badań in vitro nad przebudową naczyń oraz biologią związaną z tętniakami.
Artykuł metodologiczny
Izolacja i hodowla pierwotnych komórek mięśni gładkich aorty myszy do badań in vitro dotyczących przebudowy naczyniowej i biologii tętniaka aorty
W tym artykule
Podsumowanie
Streszczenie
Izolacja i hodowla pierwotnych komórek mięśni gładkich (SMCs) aorty stanowią cenne podejście do badania mechanizmów komórkowych leżących u podstaw chorób naczyniowych, w tym tętniaków aorty. Niniejszy artykuł opisuje szczegółowy i zoptymalizowany protokół izolacji i hodowli mysich SMC aorty z segmentów aorty piersiowej i brzusznej. Obecna procedura obejmuje staranną dysekcję aorty, usunięcie otaczającej tkanki oraz dwuetapowe trawienie enzymatyczne z użyciem kolagenazy, elastazy i inhibitora trypsyny sojowej, a następnie dysocjację mechaniczną i ekspansję komórek w określonych warunkach hodowlanych. Szczególny nacisk położono na etapy poprawiające wydajność, czystość i powtarzalność uzyskania komórek, w tym usunięcie błony zewnętrznej oraz kontrolowany czas trawienia. Stosując to podejście, pierwotne SMC mogą zostać z powodzeniem wyizolowane i namnożone, wykazując charakterystyczną morfologię i wzorce wzrostu. Protokół ten zapewnia powtarzalną i adaptowalną metodę pozyskiwania pierwotnych SMC aorty i służy jako platforma do badań in vitro istotnych dla przebudowy naczyniowej i biologii tętniaków aorty.
Wprowadzenie
Komórki mięśni gładkich (SMCs) aorty są kluczowymi elementami ściany naczyniowej, przyczyniając się zarówno do integralności strukturalnej, jak i regulacji czynnościowej aorty. W zdrowych naczyniach SMCs utrzymują fenotyp kurczliwy, charakteryzujący się ekspresją białek kurczliwych, takich jak α-smooth muscle actin (α-SMA) oraz smooth muscle myosin heavy chain (MYH11)1,2,3. Fenotyp ten wspiera napięcie naczyniowe i zachowuje organizację macierzy zewnątrzkomórkowej. Jednak w stanach patologicznych, takich jak tętniak aorty brzusznej (AAA), SMCs ulegają modulacji fenotypowej w kierunku stanu syntetycznego i prozapalnego1,2,3. Przejście to wiąże się ze zwiększoną proliferacją, sekrecją cytokin oraz produkcją enzymów degradujących macierz, co w konsekwencji przyczynia się do osłabienia ściany aorty4,5.
Modele zwierzęce, w tym model tętniaka aorty indukowanego angiotensyną II (Ang II), znacząco przyczyniły się do zrozumienia patogenezy AAA1,6,7,8,9,10,11. Niemniej jednak modele te nie pozwalają na precyzyjną manipulację szlakami komórkowymi ani bezpośrednią obserwację mechanizmów specyficznych dla SMC. Systemy in vitro z wykorzystaniem pierwotnych SMC stanowią podejście komplementarne, umożliwiając szczegółowe badanie szlaków sygnalizacyjnych, regulacji genów oraz odpowiedzi komórkowych w kontrolowanych warunkach12.
Mimo swojej użyteczności, izolacja pierwotnych mysich komórek mięśni gładkich (SMC) aorty jest trudna pod względem technicznym. Mały rozmiar aorty mysiej, obecność otaczającej tkanki tłuszczowej i łącznej oraz ryzyko zanieczyszczenia fibroblastami z błony zewnętrznej mogą obniżyć czystość populacji komórek. Ponadto trawienie enzymatyczne musi być starannie kontrolowane, aby zrównoważyć dysocjację tkanki z zachowaniem żywotności komórek. Zmienność tych etapów często prowadzi do niespójnych wyników w różnych eksperymentach i laboratoriach.
Opublikowano kilka protokołów opisujących izolację i hodowlę pierwotnych komórek mięśni gładkich aorty myszy, z których większość opiera się na całkowitym mechanicznym usunięciu błony zewnętrznej przed trawieniem enzymatycznym i koncentruje się głównie na całych aortach lub segmentach aorty piersiowej13,14. Niniejszy protokół rozwija te metody poprzez wprowadzenie kilku ulepszeń technicznych, w tym krótkiego etapu wstępnego trawienia enzymatycznego w celu ułatwienia oddzielenia warstwy zewnętrznej od warstwy środkowej przed całkowitą dysocjacją tkanki, znormalizowanych warunków trawienia z przerywaną, łagodną dysocjacją mechaniczną oraz schematu postępowania w celu oddzielnej izolacji i hodowli komórek mięśni gładkich aorty piersiowej (THX) i brzusznej (ABD). Wspólnie ulepszenia te mają na celu poprawę spójności i powtarzalności przetwarzania tkanek, ułatwiając jednocześnie badania specyficzne dla danego regionu w zakresie przebudowy naczyniowej i biologii tętniaków. Otrzymane hodowle SMC nadają się do szerokiej gamy dalszych zastosowań, w tym do wyciszania genów, badań farmakologicznych oraz badań mechanistycznych istotnych dla przebudowy naczyniowej i biologii tętniaków. Chociaż pierwotne komórki SMC izolowane z aort niezachorowanych nie odtwarzają w sposób naturalny fenotypów tętniakowych, stanowią one kontrolowany system in vitro do badania szlaków komórkowych zaangażowanych w rozwój tętniaka po ukierunkowanej manipulacji eksperymentalnej.
Protokół
Do opisanej poniżej procedury wykorzystano dorosłe samice myszy C57BL/6J w wieku od 8 do 10 tygodni o masie ciała 18–20 g. Do jednej izolacji wykorzystano dwie myszy. Wszystkie procedury z udziałem zwierząt zostały przeprowadzone zgodnie z wytycznymi Instytucjonalnego Komitetu ds. Opieki i Użytkowania Zwierząt (IACUC) na Uniwersytecie w Kentucky i zostały zatwierdzone w ramach protokołu nr 2022-4153. Szczegółowe informacje o wszystkich użytych odczynnikach i sprzęcie znajdują się w Tabeli materiałów. Schematyczny przegląd pełnego procesu izolacji i hodowli przedstawiono na Rysunku 1.
UWAGA: Ketamina i ksylazyna są substancjami kontrolowanymi i powinny być obchodzone, przechowywane i utylizowane zgodnie z polityką instytucji oraz obowiązującymi przepisami. Kolagenaza typu II i elastaza są enzymami proteolitycznymi, które mogą powodować podrażnienia skóry, oczu i dróg oddechowych. Błękit trypanu jest niebezpiecznym barwnikiem i należy go używać przy zastosowaniu odpowiednich środków ochrony osobistej, unikając kontaktu ze skórą i oczami. Wszystkie niebezpieczne odczynniki należy obchodzić i utylizować zgodnie z instytucyjnymi wytycznymi dotyczącymi bezpieczeństwa oraz instrukcjami producentów.
1. Przygotowanie odczynników i pożywek hodowlanych
- Przygotować w dniu izolacji 10 mL świeżego roztworu do trawienia enzymatycznego w sterylnej probówce stożkowej o pojemności 15 mL:
- Dodać 10 mg kolagenazy typu II (stężenie końcowe 1 mg/mL) (patrz Tabela materiałów).
- Dodać 10 mg inhibitora trypsyny z soi (stężenie końcowe 1 mg/mL) (patrz Tabela materiałów).
- Dodać 71 µL zawiesiny elastazy (stężenie końcowe 0,744 U/mL) (patrz Tabela materiałów).
- Przygotować roztwór w buforze HBSS zawierającym wapń i magnez, bez czerwieni fenolowej (patrz Tabela materiałów).
- Dodać 100 µL penicyliny/streptomycyny (1% objętości końcowej) (patrz Tabela materiałów).
- Dokładnie wymieszać roztwór i wysterylizować poprzez filtrację za pomocą nylonowego filtra strzykawkowego 0,2 µm (patrz Tabela materiałów).
- Przygotować pełną pożywkę do hodowli SMC (500 mL):
- Dodać 385 mL pożywki DMEM/F12 (Dulbecco’s Modified Eagle Medium/Nutrient Mixture F-12) bez czerwieni fenolowej (patrz Tabela materiałów) jako pożywkę podstawową.
- Uzupełnić o 100 mL płodowej surowicy bydlęcej traktowanej węglem i dekstranem (20% objętości końcowej) (patrz Tabela materiałów).
- Dodać 10 mL penicyliny/streptomycyny (2% objętości końcowej) (patrz Tabela materiałów).
- Dodać 5 mL amfoterycyny B (1% objętości końcowej) (patrz Tabela materiałów).
- Wysterylizować pożywkę poprzez filtrację i przechowywać w temperaturze 4 °C.
- Wszystkie odczynniki podgrzać do 37 °C przed użyciem.
2. Przygotowanie do obróbki tkanek
- Przenieś odpowiednie ilości roztworu do trawienia enzymatycznego do 4 studni (po 2,5 mL do każdej) 6-dołkowej płytki hodowlanej i podgrzej w inkubatorze w temperaturze 37 °C przy 5% CO₂ przed przetworzeniem tkanek. 2 studnie należy oznaczyć jako „THX” i 2 jako „ABD” dla segmentów aorty. Wiele segmentów z tego samego regionu anatomicznego można przetwarzać w jednej studni.
- Przygotuj 2 oddzielne naczynia hodowlane (patrz Tablica materiałów) zawierające pełną pożywkę do hodowli SMC i oznacz je jako THX oraz ABD.
- Podgrzej naczynia hodowlane z pożywkami w inkubatorze z nawilżaczem.
- Przygotuj wcześniej 20 mL sterylnego HBSS do perfuzji naczyniowej i manipulacji tkankami.
- Przygotuj 2 dodatkowe naczynia hodowlane, z których każde zawiera 3 mL HBSS, do sekwencyjnego płukania wyizolowanych aort.
- Przygotuj opisane stożkowe probówki 15 mL (patrz Tablica materiałów) zawierające po 5 mL HBSS do tymczasowego przechowywania i rozdzielania segmentów aorty THX i ABD.
- Sterylizuj narzędzia chirurgiczne pomiędzy zwierzętami, stosując detergent, płukanie wodą destylowaną, dezynfekcję 70% etanolem oraz sterylizację w sterylizatorze koralikowym (patrz Tablica materiałów).
3. Przygotowanie zwierząt i wyizolowanie aorty
- Mysz znieczulono poprzez doszpikowe (IP) wstrzyknięcie ketaminy (300 mg/kg) i ksylazyny (30 mg/kg) (patrz Tabela materiałów), zgodnie z zatwierdzonym protokołem IACUC Uniwersytetu w Kentucky nr 2022-4153 dotyczącym procedur terminalnych.
- Potwierdź odpowiednią głębokość znieczulenia poprzez brak reakcji odruchowej na uciśnięcie palca u nogi.
- Zdezynfekuj pole operacyjne przy użyciu 70% etanolu.
- Podczas głębokiej anestezji chirurgicznej uśmierć myszy poprzez upuszczenie krwi drogą punkcji serca, a następnie przeprowadź perfuzję transkardialną roztworem HBSS, zgodnie z wytycznymi instytucjonalnymi oraz AVMA.
- Otwórz jamę klatki piersiowej i wykonaj punkcję serca w celu pobrania krwi.
- Przeprowadź perfuzję naczyń krwionośnych przez lewą komorę, używając strzykawki o pojemności 10 ml z igłą o rozmiarze 25G, aby powoli wstrzyknąć 10 ml sterylnego roztworu HBSS. Zaleca się zastosowanie szybkości perfuzji wynoszącej około 0,5 ml/s, aby zapewnić efektywne usunięcie pozostałości krwi.
- Ostrożnie usuń narządy sąsiadujące (wątrobę, płuca, śledzionę, przewód pokarmowy, nerki). Pozostaw fragment przepony połączony z aortą.
- Wyizoluj aortę od miejsca jej odejścia z serca do rozwidlenia tętnic biodrowych, zachowując nienaruszoną przeponę. Przepona stanowi granicę anatomiczną między obszarem klatki piersiowej (THX) a obszarem jamy brzusznej (ABD). (Rysunek 2B).
- Niezwłocznie przenieść aortę do sterylnego roztworu HBSS (Rysunek 2A).
4. Oczyszczanie i segmentacja aorty
- Umieść sterylną szalkę z aortą pod mikroskopem stereoskopowym (patrz Tabela materiałów).
- Ostrożnie usuń tkankę tłuszczową i tkankę łączną za pomocą precyzyjnej pęsety (patrz Tabela materiałów).
- Podziel aortę na segmenty klatki piersiowej (THX) i brzuszne (ABD).
UWAGA: Segment THX obejmuje odcinek aorty od obszaru tuż nad przeponą aż do pierścienia aorty, natomiast segment ABD obejmuje odcinek od obszaru aorty tuż pod przeponą w dół aż do rozwidlenia tętnic biodrowych (Rysunek 2B). - Przenieś oczyszczone segmenty do oddzielnych stożkowych probówek o pojemności 15 mL ze świeżym roztworem HBSS w celu dalszej obróbki.
5. Trawienie enzymatyczne i izolacja komórek
- Inkubować fragmenty aorty w roztworze enzymu w temperaturze 37 °C przez 8–10 min.
- Wyjąć fragmenty aorty z roztworu enzymu.
- Przenieść fragmenty do oddzielnych naczyń hodowlanych zawierających pełną pożywkę SMC przeznaczoną dla próbek THX i ABD.
- Usunąć błonę zewnętrzną aorty za pomocą pęsety grubej i precyzyjnej. Całkowite usunięcie błony zewnętrznej potwierdza gładka i półprzezroczysta powierzchnia zewnętrzna aorty, bez widocznych pozostałości tkanki łącznej lub tkanki tłuszczowej (Rysunek 2C).
- Przenieść fragmenty aorty do świeżego roztworu enzymu i rozdrobnić warstwę środkową na małe fragmenty bezpośrednio w roztworze (Rysunek 3A).
- Inkubować fragmenty tkanki w temperaturze 37 °C w inkubatorze z nawilżaniem i 5% CO₂ przez 1 h.
- Przeprowadzić delikatną dysocjację mechaniczną poprzez pipetowanie w górę i w dół około 10–15 razy w celu ułatwienia uwalniania komórek (Rysunek 3B).
- Powtarzać etap dysocjacji mechanicznej w odstępach 30–60 min podczas dalszej inkubacji, aż do całkowitego czasu trawienia wynoszącego 2–3 h lub do uzyskania homogenicznej zawiesiny komórkowej.
6. Zbieranie, przemywanie, wysiewanie i wstępna hodowla komórek
- Przenieść roztwór trawienia enzymatycznego zawierający dysocjowane komórki do oddzielnych probówek stożkowych o pojemności 15 mL (patrz Tabela Materiałów) przeznaczonych dla próbek THX i ABD.
- Przepłukać każdą studzienkę trawienną 5 mL pożywki hodowlanej i połączyć z odpowiednimi probówkami.
- Odwirować zawiesinę komórkową z prędkością 400 × g przez 5 min w temperaturze pokojowej.
- Powtórzyć wirowanie, jeśli tworzenie osadu jest niewystarczające.
- Usunąć nadsącz, nie naruszając osadu komórkowego (Rycina 3C).
- Resuspendować komórki w 5 mL świeżej pożywki hodowlanej i przeprowadzić dodatkowy etap płukania, a następnie wirowanie w tych samych warunkach.
- Usunąć nadsącz i resuspendować końcowy osad komórkowy w odpowiedniej objętości (zazwyczaj 6 mL) pełnej pożywki hodowlanej dla SMC.
- Wysiać całą zawiesinę komórkową uzyskaną z odcinka aorty piersiowej lub brzusznej do dwóch studni płytki hodowlanej 6-dołkowej (3 mL pożywki z zawiesiną na studnię) i inkubować w temperaturze 37 °C przy 5,0% CO₂. Komórki wysiewa się niezwłocznie po izolacji, bez wcześniejszego liczenia; w związku z tym na tym etapie nie stosuje się docelowej gęstości wysiewu.
- Utrzymywać hodowle bez zakłóceń przez 5–7 dni, aby umożliwić przyleganie komórek i ich wstępną ekspansję.
PRZERWA TECHNICZNA: Po wysianiu hodowle można utrzymywać w inkubatorze przez 5–7 dni przed przejściem do etapów utrzymania i ekspansji komórek opisanych w sekcji 7.
7. Utrzymanie i pasażowanie komórek
- Wymieniać pożywkę hodowlaną co 3–4 dni.
- Regularnie monitorować morfologię i konfluencję komórek.
- Przesiewać komórki, gdy osiągną około 80–90% konfluencji.
- Odssać pożywkę hodowlaną i przemyć komórki uprzednio ogrzanym solfizjologicznym roztworem buforowanym fosforanowo (PBS) (patrz Tabela materiałów).
- Dodać 0,05% trypsyny-EDTA i inkubować w 37 °C przez 5–10 min.
- Kontynuować procedurę, gdy 80%–90% komórek odklei się od podłoża.
- Delikatnie opukać płytkę hodowlaną, aby ułatwić odklejanie.
- Dodać taką samą objętość pełnej pożywki hodowlanej, aby zneutralizować trypsynę.
- Delikatnie pipetować, aby odkleić pozostałe komórki.
- Przenieść zawiesinę komórkową do probówek stożkowych i wirować przy 400 × g przez 5 min.
- Usunąć nadsącz i resuspendować osad komórkowy w świeżej pożywce hodowlanej.
- Wysiać komórki w stosunku 1:2 (lub w pożądanej gęstości eksperymentalnej) i inkubować w 37 °C w atmosferze 5% CO₂. Pozostawić komórki do przytwierdzenia bez zakłócania przez 24–48 h.
UWAGA: W dalszych eksperymentach należy używać komórek między 3 a 7 pasażem (P3–P7), aby zminimalizować indukowany hodowlą dryf fenotypowy. Komórki po 7 pasażu są bardziej podatne na dryf fenotypowy i mogą wykazywać zmienioną morfologię oraz funkcje.
8. Walidacja za pomocą barwienia immunofluorescencyjnego na α-SMA
- Hodowla komórek na podłożu odpowiednim do mikroskopii fluorescencyjnej.
- Wysiać komórki na 96-dołkową płytkę z dnem optycznym w zagęszczeniu 15 000 komórek na dołek. Pozostawić komórki do osiągnięcia pożądanej konfluencji.
- Przygotowanie komórek do fiksacji
- Odssać pożywkę hodowlaną z komórek adherentnych. Przemyć 3 razy, używając 200 µL na dołek soli buforowej Tris z 0,1% Tween 20 (TBS-T) , inkubując przez 5 min przy każdym przemyciu, a następnie odessać za pomocą odciągu w komorze z laminarnym przepływem powietrza.
- Fiksacja komórek
- Dodać 200 µL na dołek 4% paraformaldehydu (PFA) w 1x PBS. Inkubować przez 10–20 min w temperaturze pokojowej, a następnie odessać.
- Permeabilizacja
- Dodać 200 µL na dołek 0,1% Triton X-100 w 1x PBS. Inkubować przez 10–15 min w temperaturze pokojowej, a następnie odessać.
- Blokowanie wiązań niespecyficznych
- Przemyć komórki 3 razy, używając 200 µL na dołek TBS-T, inkubując przez 5 min przy każdym przemyciu. Dodać 200 µL na dołek 5% albuminy surowicy bydlęcej (BSA) w TBS-T.
- Umieścić płytkę na wytrząsarku orbitalnym przy prędkości około 200 rpm przez 1 h w temperaturze pokojowej.
- Barwienie przeciwciałem pierwotnym
- Przygotować przeciwciało pierwotne α-SMA w rozcieńczeniu 1:1 000 w 5% BSA w TBS-T.
- Zdjąć płytkę z wytrząsarki orbitalnej i odessać roztwór blokujący z dołków przeznaczonych do barwienia α-SMA. W przypadku kontroli z samym przeciwciałem wtórnym pominąć etap dodawania przeciwciała pierwotnego i pozostawić dołek kontrolny w 5% BSA w TBS-T.
- Dodać 200 µL na dołek rozcieńczonego przeciwciała pierwotnego α-SMA do dołków doświadczalnych. Inkubować dołki doświadczalne oraz dołki kontrolne z samym przeciwciałem wtórnym przez noc w temperaturze 4 °C na łagodnie działającej wytrząsarce orbitalnej.
- Barwienie przeciwciałem wtórnym
- Przygotować fluorescencyjne przeciwciało wtórne w rozcieńczeniu 1:2 500 w TBS-T zawierającym 0,1% Tween 20.
- Zdjąć płytkę z wytrząsarki orbitalnej i odessać zawartość wszystkich dołków.
- Przemyć wszystkie dołki 3 razy, używając 200 µL na dołek TBS-T, inkubując przez 5 min przy każdym przemyciu, a następnie odessać.
- Dodać 200 µL na dołek rozcieńczonego fluorescencyjnego przeciwciała wtórnego do wszystkich dołków, w tym do kontroli z samym przeciwciałem wtórnym.
- Chronić płytkę przed światłem i inkubować na wytrząsarce orbitalnej przy prędkości około 200 rpm przez 1 h w temperaturze pokojowej.
- Barwienie jąder komórkowych i obrazowanie fluorescencyjne
- Przygotować roztwór Hoechst 33342 o stężeniu 2 µg/mL.
- Przemyć komórki 3 razy, używając 200 µL na dołek TBS-T, inkubując przez 5 min przy każdym przemyciu. Dodać odpowiednią ilość roztworu barwiącego Hoechst 33342, aby pokryć komórki, i inkubować przez 10 min w temperaturze pokojowej, chroniąc przed światłem.
- Nabyć obrazy fluorescencyjne przy użyciu odwróconego mikroskopu fluorescencyjnego z powiększeniem 20x dla kultur THX i ABD barwionych na α-SMA oraz z powiększeniem 10x dla kontroli z samym przeciwciałem wtórnym, stosując wzbudzenie 385 nm dla Hoechst 33342 i wzbudzenie 475 nm dla przeciwciała wtórnego sprzężonego z fluorophorem. Kontrole z samym przeciwciałem wtórnym obrazowano przy powiększeniu 10x, aby w polu widzenia znalazła się wystarczająca liczba jąder.
- Kwantyfikacja komórek α-SMA-dodatnich.
- Ocenić obecność α-SMA poprzez zliczanie jąder Hoechst-dodatnich powiązanych z komórkami wykazującymi wyraźne, wrzecionowate barwienie cytoplazmatyczne α-SMA-dodatnie. Komórki z niejednoznacznym lub niedookreślonym sygnałem fluorescencyjnym klasyfikować konserwatywnie jako α-SMA-ujemne.
- Obliczyć odsetek komórek α-SMA-dodatnich, dzieląc liczbę komórek α-SMA-dodatnich przez całkowitą liczbę jąder Hoechst-dodatnich zliczonych w ocenianych polach mikroskopowych, a następnie mnożąc wynik przez 100.
Wyniki
W ciągu 24–48 h po izolacji podgrupa komórek zaczyna przylegać do powierzchni hodowli i rozprzestrzeniać się, wykazując początkowo morfologię obłą. Przywieranie komórek może być zmienne w wczesnych punktach czasowych, a hodowle mogą wydawać się rzadkie ze względu na ograniczoną liczbę żywych komórek odzyskanych podczas wstępnej izolacji. Między 3. a 5. dniem komórki adherentne stopniowo przyjmują charakterystyczną wrzecionowatą, wydłużoną morfologię typową dla komórek mięśni gładkich naczyń krwionośnych (SMCs) i zaczynają proliferować, tworząc małe skupiska. Schematyczny przegląd przebiegu eksperymentu, obejmujący izolację aorty, segmentację, trawienie enzymatyczne, dysocjację mechaniczną oraz wysiew komórek, przedstawiono na Rysunku 1.
Reprezentatywne obrazy izolacji aorty, segmentacji anatomicznej na obszary THX i ABD oraz usunięcia warstwy zewnętrznej (adwentycji) przedstawiono na Rysunku 2. Regiony aorty THX i ABD odróżniono na podstawie lokalizacji anatomicznej względem przepony, zgodnie z oznaczeniem na Rysunku 2B. Reprezentatywne obrazy trawienia enzymatycznego, dysocjacji mechanicznej oraz powstania widocznego osadu komórkowego po wirowaniu przedstawiono na Rysunku 3.
Liczbę i żywotność komórek oceniono w pasażu 3, wykorzystując metodę wykluczania błękitu trypanu (1:1) oraz automatyczny licznik komórek Countess. Dane uzyskano z 3 niezależnych izolacji z udziałem łącznie 6 myszy (2 myszy na izolację). Hodowle THX charakteryzowały się średnią liczbą komórek 5.10 × 10⁵ ± 7.81 × 10⁴ komórek (zakres: 4.20 × 10⁵–5.60 × 10⁵) i żywotnością 66.33 ± 18.18% (zakres: 46–81%). Hodowle ABD charakteryzowały się średnią liczbą komórek 4.63 × 10⁵ ± 2.31 × 10⁴ komórek (zakres: 4.50 × 10⁵–4.90 × 10⁵) i żywotnością 61.66% ± 12.01% (zakres: 50%–74%) (Tabela 1).
W dniach 5–7 hodowle zazwyczaj osiągają około 70%–90% konfluencji, tworząc gęstą i stosunkowo jednorodną warstwę monowarstwową. Komórki zazwyczaj ustawiają się równolegle, co odzwierciedla ich kurczliwy charakter linii komórkowych. Różnice w tempie proliferacji i gęstości komórek mogą być obserwowane pomiędzy SMC z obszaru THX i ABD, co jest zgodne ze znaną regionalną heterogenicznością aorty. Reprezentatywne obrazy w kontraście fazowym morfologii pierwotnych SMC z segmentów aorty THX i ABD przy niskim (10x) i większym (20x) powiększeniu przedstawiono na Rysunku 4.
SMC wykazywały charakterystyczną wydłużoną, wrzecionowatą morfologię, zorganizowane równoległe ułożenie w fazie konfluencji oraz jednolity wzór wzrostu, podczas gdy komórki fibroblastopodobne zazwyczaj wykazują bardziej spłaszczoną, nieregularną morfologię z mniej zorganizowaną orientacją i heterogennym rozprzestrzenianiem się. Te cechy morfologiczne i wzrostowe stanowią praktyczne i powtarzalne podejście do identyfikacji populacji SMC w hodowli pierwotnej w przypadku braku walidacji molekularnej. O pomyślnej izolacji świadczy wczesna adhezja komórek w ciągu 24–48 h, stopniowe nabywanie wrzecionowatej morfologii oraz utworzenie konfluentnej monowarstwy do 5–7 dnia. W wyższym stopniu konfluencji komórki zazwyczaj ustawiają się w równoległych rzędach, co jest zgodne z fenotypem mięśni gładkich. Suboptymalne wyniki mogą obejmować słabą adhezję komórek, niską wydajność komórkową lub obecność spłaszczonych, nieregularnych komórek, co może wskazywać na niepełne trawienie, nadmierną ekspozycję na enzymy lub zanieczyszczenie populacjami komórek innymi niż mięśnie gładkie.
Stabilna żywotność komórek oraz minimalne zanieczyszczenie komórkami fibroblastopodobnymi stanowią dodatkowe potwierdzenie skutecznej izolacji. W celu dalszej walidacji tożsamości SMC, w reprezentatywnych kulturach pierwotnych przeprowadzono immunobarwienie na α-SMA (Rysunek 5), stosując procedurę opisaną w sekcji 8. Zarówno kultury THX, jak i ABD wykazały charakterystyczny nitkowaty wzór barwienia α-SMA, oczekiwany dla naczyniowych SMC. Kwantyfikacja w czterech polach mikroskopowych wykazała 69 komórek α-SMA-dodatnich spośród 72 ocenionych komórek Hoechst-dodatnich, co odpowiada ogólnej dodatniości α-SMA na poziomie 95,8% (95% CI, 88,5%–98,9%). W szczególności 20/20 komórek THX i 49/52 komórek ABD były α-SMA-dodatnie. Rysunek 5 przedstawia reprezentatywne pola z tych poddanych ocenie.
W trakcie wczesnych pasaży komórki zachowują stabilną morfologię i zdolność do proliferacji. Jednak przy przedłużonej hodowli komórki mogą stopniowo wykazywać cechy modulacji fenotypowej, w tym zwiększone rozprzestrzenianie się, zmniejszone wyrównanie oraz zmienione wzorce wzrostu.
W tych warunkach pierwotne kultury SMC nadają się do dalszych zastosowań, w tym do wyciszania genów, zabiegów farmakologicznych oraz badań mechanistycznych nad szlakami zaangażowanymi w przebudowę naczyniową i rozwój tętniaka aorty.
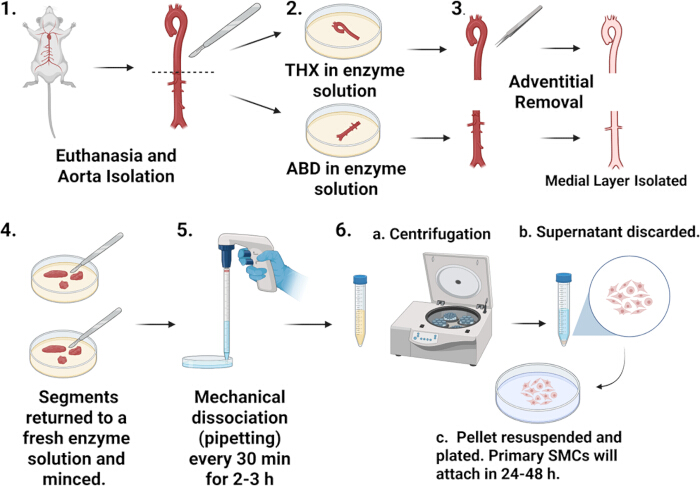
Rycina 1Schematyczny przegląd przebiegu prac. Schematyczny przedstawienie głównego toku postępowania przy izolacji komórek mięśni gładkich aorty myszy. Panel 1 pokazuje eutanazję i izolację aorty. Panel 2 pokazuje oddzielenie segmentów aorty THX i ABD do roztworu trawienia enzymatycznego. Panel 3 przedstawia usunięcie błony zewnętrznej i izolację warstwy środkowej. Panel 4 przedstawia ponowne przeniesienie fragmentów tkanki do świeżego roztworu enzymu oraz ich rozdrabnianie. Panel 5 pokazuje dysocjację mechaniczną poprzez pipetowanie co 30 min przez 2–3 h. Panel 6 przedstawia odzyskiwanie i wysiewanie komórek, w tym 6a wirowanie, 6b usuwanie supernatantu oraz 6c resuspensję osadu i wysiewanie. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
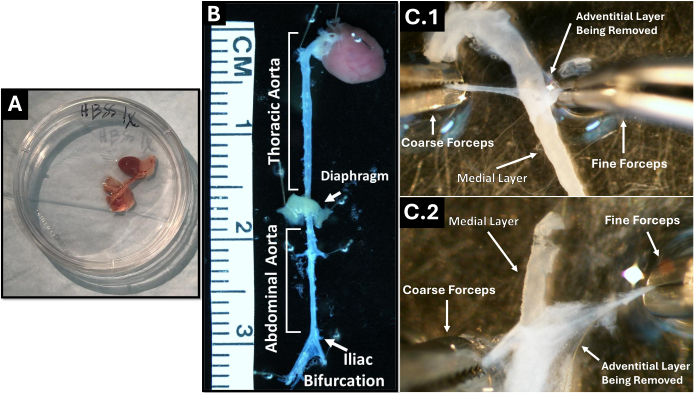
Rycina 2: Izolacja i przygotowanie segmentów aorty mysiej. (A) Cała aorta po izolacji umieszczona w naczyniu hodowlanym. (B) Oczyszczona aorta z zaznaczonymi punktami orientacyjnymi wskazującymi regiony THX i ABD, w tym przeponę oraz rozwidlenie biodrowe. (C) Reprezentatywne obrazy usuwania błony zewnętrznej z segmentów THX (góra) i ABD (dół) przy użyciu pęsety precyzyjnej i grubej, co odsłania leżącą poniżej warstwę środkową, kluczową dla izolacji komórek mięśni gładkich. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
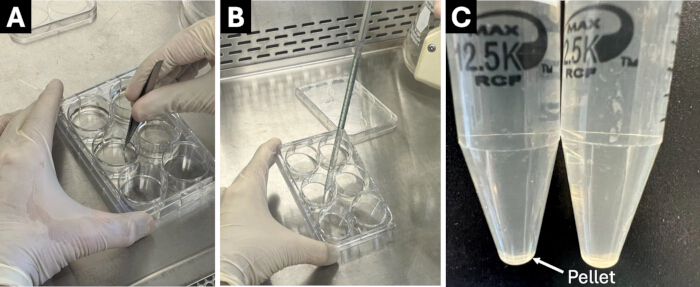
Rysunek 3: Trawienie enzymatyczne i dysocjacja mechaniczna tkanki aorty. (A) Po usunięciu warstwy zewnętrznej (adwentycji), warstwa środkowa (media) zostaje przeniesiona do świeżego roztworu enzymów i posiekana za pomocą małych nożyczek. (B) Przykład dysocjacji mechanicznej fragmentów aorty poprzez delikatne pipetowanie. (C) Po trawieniu enzymatycznym i wirowaniu widoczny jest osad komórkowy. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
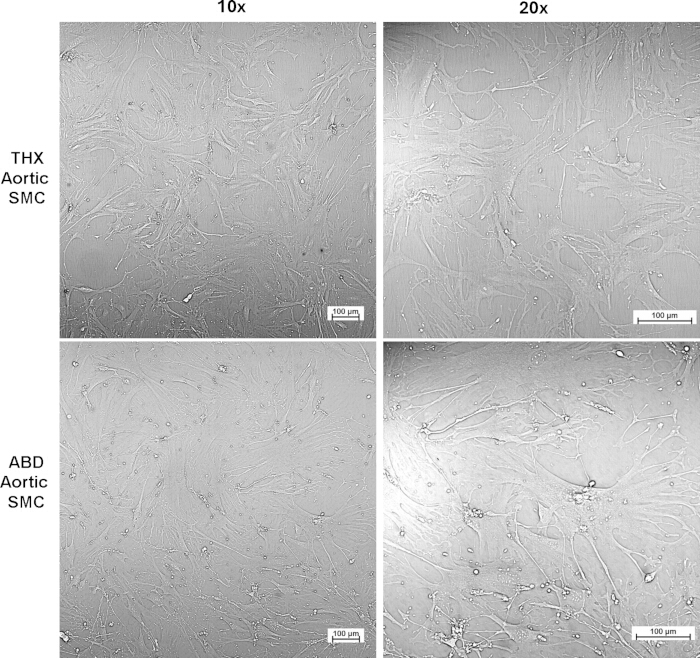
Rysunek 4: Reprezentatywna morfologia pierwotnych komórek mięśni gładkich (SMC) aorty mysiej. Pierwotne komórki SMC wyizolowane z odcinków aorty piersiowej i brzusznej hodowano w standardowych warunkach i obrazowano w 4. pasażu. Przedstawiono reprezentatywne obrazy w kontraście fazowym przy niskim (10x) i większym (20x) powiększeniu. Komórki wykazują charakterystyczną wrzecionowatą, wydłużoną morfologię i ułożenie zgodne z kurczliwym fenotypem SMC. Między komórkami SMC pochodzącymi z obszarów THX i ABD można zaobserwować różnice w gęstości i organizacji komórek, co odzwierciedla heterogeniczność regionalną. Paski skali = 100 µm. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
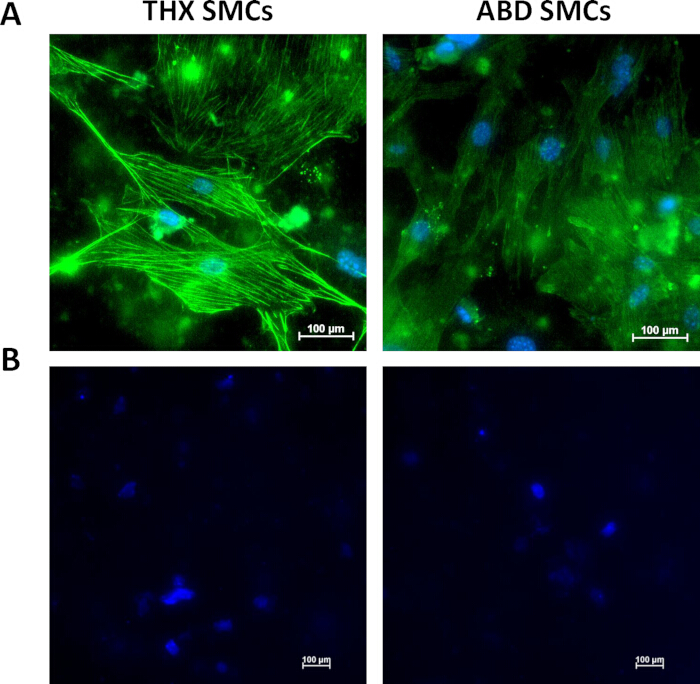
Rysunek 5: Walidacja immunofluorescencyjna pierwotnych mysich SMC aorty. (A) Reprezentatywne obrazy immunofluorescencyjne pierwotnych SMC wyizolowanych z aorty THX (lewo) i ABD (prawo) i barwionych na α-SMA (zielony). Jądra komórkowe przeciwbarwiono Hoechst 33342 (niebieski). Obrazy wykonano przy 20-krotnym powiększeniu. (B) Reprezentatywne obrazy kontrolne z samym przeciwciałem wtórnym dla pierwotnych SMC z THX (lewo) i ABD (prawo), opracowane bez użycia przeciwciała pierwszorzędowego α-SMA i przeciwbarwione Hoechst 33342 (niebieski). Obrazy wykonano przy 10-krotnym powiększeniu. Ilościowa analiza czterech pól mikroskopowych wykazała, że 69/72 komórki były dodatnie pod kątem α-SMA (95,8%). Paski skali = 100 µm. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
| Liczba komórek i żywotność pierwotnych kultur komórek mięśni gładkich aorty mysiej | |||
| Segment aorty | Niezależne izolacje, n | Liczba komórek (średnia) ± SD)* | Żywotność komórek (średnia ± SD)† |
| THX | 3 | 5,10 x 10⁵ ± 7,81 x 10⁴ komórki | 66.33 ± 18.18 % |
| ABD | 3 | 4,63 x 10⁵ ± 2,31 x 10⁴ komórki | 61.66 ± 12.01 % |
| Liczbę komórek określono w trzecim pasażu na podstawie 3 niezależnych izolacji. | |||
| †Liczbę oraz żywotność komórek określono metodą wykluczania błękitu trypanu w stosunku 1:1 przy użyciu automatycznego licznika komórek Countess. | |||
Tabela 1: Liczba i żywotność komórek w pierwotnych kulturach komórek mięśni gładkich aorty mysiej
| Krok | Problem | Możliwa przyczyna | Zalecany roztwór |
| Rozwarstwienie aorty | Niska wydajność komórkowa | Niepełne odzyskanie aorty lub uszkodzenie tkanki podczas sekcji | Zapewnić pełną izolację od poziomu pierścienia aorty do rozwidlenia tętnic biodrowych; obchodzić się z tkanką delikatnie, aby uniknąć jej uszkodzenia |
| Oczyszczanie aorty | Kontaminacja fibroblastami | Niepełne usunięcie tkanki błony zewnętrznej | Należy starannie usunąć błonę zewnętrzną po wstępnym trawieniu; jest to kluczowe dla czystości SMC |
| Trawienie wstępne | Trudności z usunięciem osłonki naczyniowej | Niewystarczające rozluźnienie enzymatyczne | Należy zapewnić odpowiedni czas inkubacji (8–10 min) przed przystąpieniem do mechanicznego usuwania warstwy. |
| Trawienie enzymatyczne | Niska wydajność komórek | Niedostateczne trawienie tkanki | Nieznacznie wydłużyć czas trawienia lub zwiększyć częstotliwość dysocjacji mechanicznej |
| Trawienie enzymatyczne | Słaba żywotność komórek | Nadmierne trawienie lub zbyt długa ekspozycja na enzymy | Skrócenie czasu trawienia i unikanie przedłużonej inkubacji |
| Dysocjacja mechaniczna | Słabe uwalnianie komórek | Niewłaściwe pipetowanie | Należy delikatnie, lecz wielokrotnie pipetować próbkę co 30–60 min. |
| Przyleganie komórek | Słaba adhezja do płytki | Uszkodzenie komórek lub zimne podłoże | Należy stosować podgrzane wcześniej podłoża i ograniczyć stres związany z manipulacją. |
| Wczesna hodowla | Brak wzrostu komórek | Niska żywotność lub kontaminacja | Potwierdzić warunki trawienia oraz sterylność; w razie potrzeby powtórzyć izolację |
| Morfologia komórki | Brak kształtu wrzecionowatego (utrzymują się komórki zaokrąglone/płaskie) | Kontaminacja lub dryf fenotypowy | Zweryfikować usunięcie osłonki zewnętrznej; unikać nadmiernego rozrostu i zbyt długiej hodowli |
| Wzrost komórek | Powolna proliferacja | Suboptymalne stężenie surowicy | Należy zastosować 20% FBS w początkowej fazie ekspansji |
| Zlewność | Nadmiernie konfluente komórki trudne do pasażowania | Opóźnione pasażowanie | Pasażować komórki przy 80-90% konfluencji |
| Pasażowanie | Słabe odrywanie | Komórki są nadmiernie konfluentne lub proces trypsynizacji był niewystarczający | Należy nieznacznie wydłużyć czas ekspozycji na trypsynę i wspomóc odrywanie komórek mechanicznie |
| Długoterminowa hodowla | Utrata fenotypu SMC | Wysoka liczba pasażowań lub przedłużona hodowla | Należy używać komórek z pasażami od 3 do 7. |
| Powtarzalność | Zmienność między izolatami | Różnice w technice lub zmienność biologiczna | Ustandaryzuj przygotowanie enzymów, czas trwania oraz sposób postępowania we wszystkich eksperymentach |
Tabela 2: Przewodnik rozwiązywania problemów dotyczący izolacji i hodowli pierwotnych komórek mięśni gładkich aorty mysiej. Podsumowanie częstych problemów technicznych występujących podczas izolacji, trawienia i hodowli pierwotnych komórek mięśni gładkich aorty mysiej, zawierające potencjalne przyczyny oraz zalecane rozwiązania w celu poprawy powtarzalności.
Dyskusja
Niniejszy protokół przedstawia solidną i powtarzalną metodę izolacji oraz hodowli pierwotnych komórek mięśni gładkich (SMC) aorty mysiej do badań in vitro. Poza użytecznością techniczną, podejście to jest wysoce istotne dla badania mechanizmów leżących u podstaw przebudowy naczyniowej i rozwoju tętniaka aorty. Biorąc pod uwagę udokumentowaną rolę układu renina-angiotensyna (RAS) oraz Ang II w zapaleniu naczyń i formowaniu tętniaków15,16, izolacja pierwotnych komórek SMC aorty stanowi cenne podejście do analizy tych szlaków na poziomie komórkowym.
Kluczowym czynnikiem sukcesu jest dokładne usunięcie tkanki osłonki. Osłonka zawiera fibroblasty i inne populacje komórek niebędące SMC, które mogą zdominować SMC w hodowli, jeśli nie zostaną odpowiednio usunięte. Krótki, wstępny etap trawienia enzymatycznego ułatwia mechaniczne oddzielenie osłonki od warstwy mięśniowej, co pozwala na bardziej precyzyjną dyssekcję. Nieskuteczne przeprowadzenie tego kroku jest jedną z najczęstszych przyczyn zanieczyszczeń i zmienności w protokołach izolacji SMC.
Warunki trawienia enzymatycznego muszą zostać również starannie zoptymalizowane. Połączenie kolagenazy typu II, elastazy oraz inhibitora trypsyny z soi pozwala na efektywny rozkład składników macierzy zewnątrzkomórkowej przy jednoczesnym zachowaniu żywotności komórek. Należy jednak ściśle monitorować proces trawienia. Niedostateczne trawienie prowadzi do niepełnej dysocjacji tkanki i zmniejszenia wydajności komórek, natomiast nadmierne trawienie może uszkodzić komórki, upośledzić ich przywieranie i obniżyć żywotność. Dlatego też dysocjacja mechaniczna poprzez delikatne, powtarzalne pipetowanie jest niezbędnym krokiem uzupełniającym, który sprzyja uwalnianiu komórek przy jednoczesnym minimalizowaniu nadmiernej ekspozycji na enzymy. Wspólnie kroki te podkreślają znaczenie zachowania równowagi między obróbką enzymatyczną a mechaniczną w celu optymalizacji zarówno wydajności, jak i żywotności komórek. Równie ważne dla poprawy powtarzalności między izolacjami jest utrzymanie spójnych czasów trawienia, sposobu obchodzenia się z tkanką oraz metod dysocjacji mechanicznej w trakcie całej procedury.
Warunki hodowli odgrywają kluczową rolę w utrzymaniu fenotypu i funkcji SMC. Pożywki z wysoką zawartością surowicy (20% płodowej surowicy bydlęcej) wspierają początkowe przyleganie i ekspansję pierwotnych komórek po izolacji. W celu zmniejszenia zmienności wynikającej z obecności hormonów i składników lipidowych w standardowych preparatach surowic wykorzystano surowicę traktowaną węglem aktywnym/dekstranem. Jednakże przedłużona ekspozycja na wysoką zawartość surowicy lub długi czas hodowli mogą promować dryf fenotypowy w stronę stanu syntetycznego lub fibroblastopodobnego. Aby zminimalizować te efekty, zaleca się stosowanie komórek z wczesnych i średnich pasaży (P3–P7) oraz unikanie nadmiernej konfluencji, która może zmienić morfologię i zmniejszyć zdolność do proliferacji.
Morfologia wyizolowanych komórek stanowi istotny wstępny wskaźnik jakości hodowli. Zdrowe SMC wykazują charakterystyczną wydłużoną morfologię wrzecionowatą i układają się w równoległe rzędy przy wyższej konfluencji. Odstępstwa od tej morfologii, w tym komórki spłaszczone lub o nieregularnym kształcie, mogą wskazywać na kontaminację, nieoptymalne warunki hodowli lub dryf fenotypowy. Cechy morfologiczne sugerujące przełączenie fenotypowe ze stanu kurczliwego na syntetyczny obejmują zwiększone rozprzestrzenianie się komórek, zmniejszenie morfologii wrzecionowatej, utratę równoległego ułożenia oraz bardziej heterogeniczne wzorce wzrostu.
Choć ocena morfologiczna jest pomocna, nie wystarcza ona do jednoznacznego określenia fenotypu SMC i powinna zostać uzupełniona o walidację molekularną z użyciem markerów takich jak α-SMA i MYH11, w zależności od zastosowania. W niniejszym badaniu immunofluorescencja α-SMA potwierdziła tożsamość izolowanych komórek i wykazała wysoką odsetek komórek pozytywnych pod kątem α-SMA w obu kulturach THX i ABD (Rysunek 5). Kluczową zaletą niniejszego protokołu jest możliwość izolacji SMC z odrębnych obszarów aorty, w tym segmentów THX i ABD. Regiony te wykazują wrodzone różnice biologiczne, w tym zmienność w składzie macierzy zewnątrzkomórkowej, pochodzenie embriologiczne oraz podatność na choroby. Izolacja specyficznych dla regionu komórek SMC umożliwia badanie heterogeniczności przestrzennej w biologii naczyniowej i może dostarczyć informacji na temat podatności poszczególnych regionów na tworzenie tętniaków16,17,18. Istniejące metody izolacji mysich VSMC z aorty wykorzystują albo całonocną digestię kolagenazą13, albo 4–6 h digestii enzymatycznej, przy czym zgłaszano, że czas 5–6 h zapewnia lepsze odzyskanie komórek14, w porównaniu do 2–3 h digestii następującej po 8–10 min wstępnej digestii zastosowanej w niniejszym protokole, przy całkowitym czasie przetwarzania wynoszącym około 4 h od eutanazji do wysiania komórek. Adhikari i wsp. zgłosili obecność 25–35 × 103 żywych komórek/mL po 5 dniach hodowli oraz 97%–99% pozytywności dla sm22α i Acta2, podczas gdy niniejszy protokół pozwolił uzyskać liczebność komórek w trzecim pasażu na poziomie 5.10 × 10⁵ ± 7.81 × 10⁴ komórek dla THX i 4.63 × 10⁵ ± 2.31 × 10⁴ komórek dla ABD, przy ogólnej pozytywności α-SMA wynoszącej 95,8%. Hubert i wsp. stosowali całonocną digestię, lecz nie podali ilościowej wydajności komórkowej ani procentowej czystości13,14. W przeciwieństwie do tego, metoda oparta na eksplantach zastosowana przez McMurraya i wsp. wymagała średniego okresu utajenia wynoszącego około 7,6 dnia przed przerostem SMC z normalnych eksplantów aorty, przy czym w >90% eksplantów przerost wystąpił do 10. dnia, a w >95% do 12. dnia, podczas gdy niniejsza metoda enzymatyczna umożliwia bezpośrednie wysianie izolowanych komórek w dniu izolacji18. Niniejszy protokół łączy krótki etap wstępnej digestii, który ułatwia usunięcie błony zewnętrznej, ze zestandaryzowanymi warunkami digestii i dysocjacji mechanicznej, aby zapewnić spójne przetwarzanie tkanki i odzysk komórek. Razem ze specyficzną dla regionu izolacją SMC z THX i ABD, krótszy czas przetwarzania oraz ilościowa charakterystyka odzysku komórek i pozytywności α-SMA stanowią praktyczne zalety dla powtarzalnych badań in vitro.
Metoda ta jest odpowiednia do badań mechanistycznych obejmujących manipulacje genetyczne i farmakologiczne. Pierwotne hodowle SMC mogą być wykorzystywane w podejściach do wyciszania genów, w tym w wyciszaniu za pomocą siRNA, a także w badaniach nad nadekspresją i w terapiach lekowych. Podejścia te umożliwiają bezpośrednią analizę szlaków sygnałowych zaangażowanych w przełączanie fenotypowe SMC, zapalenie oraz przebudowę macierzy zewnątrzkomórkowej, które są procesami kluczowymi dla rozwoju i progresji tętniaka aorty1,5.
Ważne jest, aby rozważyć ograniczenia tego protokołu w kontekście modelowania chorób. Komórki mięśni gładkich w niniejszym protokole są izolowane z aort myszy zdrowych, w związku z czym nie wykazują one wrodzonych fenotypów związanych z tętniakami. W związku z tym wymagane jest zastosowanie dodatkowych podejść eksperymentalnych, takich jak stymulacja farmakologiczna, manipulacje genetyczne lub integracja z modelami in vivo, aby odtworzyć procesy istotne dla przebiegu choroby, takie jak aktywacja zapalna, przebudowa macierzy zewnątrzkomórkowej i przełączanie fenotypowe. Poza opisanymi powyżej kwestiami, protokół ten posiada kilka ograniczeń. Zmienność w uzysku komórek i kinetyce wzrostu może występować pomiędzy poszczególnymi izolacjami ze względu na różnice biologiczne między zwierzętami lub niewielkie różnice w technice wykonania. Ponadto izolacja oparta na trawieniu enzymatycznym może wpływać na ekspresję receptorów powierzchniowych komórek lub szlaki sygnalizacyjne, co należy uwzględnić podczas interpretacji późniejszych badań funkcjonalnych. Pierwotne SMC stopniowo tracą swój fenotyp kurczliwy wraz ze zwiększaniem liczby pasaży, co może wpływać na wyniki eksperymentów. Staranna standaryzacja procedur oraz stosowanie komórek z wczesnych pasaży mogą pomóc zminimalizować te ograniczenia. Typowe problemy techniczne i rekomendowane rozwiązania dla tego protokołu zostały podsumowane w Tabeli 2.
Podsumowując, niniejszy protokół zapewnia wiarygodne i elastyczne ramy dla izolacji i hodowli pierwotnych mysich SMC aorty. W połączeniu z modelami in vivo podejście to umożliwia kompleksowe badanie mechanizmów komórkowych i molekularnych leżących u podstaw przebudowy naczyniowej oraz patogenezy tętniaka aorty.
Oświadczenia
Autorzy oświadczają, że nie mają żadnych konfliktów interesów. Program Grammarly został wykorzystany do edycji językowej i korekty gramatycznej; cała treść naukowa oraz interpretacja zostały opracowane przez autorów.
Podziękowania
Wsparcie finansowe zostało zapewnione w części przez University of Kentucky College of Medicine. Abstrakt graficzny (Rysunek 1) został stworzony przy użyciu strony BioRender.com na podstawie Akademickiej Licencji Publikacyjnej, z numerem umowy publikacyjnej GI2A3W9TY8.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Filtry strzykawkowe nylonowe 0,2 μm | VWR | 76439-080 | Filtracja sterylna |
| Probówki stożkowe 15 mL | VWR | — | Do przenoszenia aorty po oczyszczeniu oraz do zbierania komórek |
| Płytki hodowlane 6-dołkowe / 12-dołkowe (niepowlekane) | Corning | — | Hodowla komórkowa |
| Probówki stożkowe 50 mL | VWR | — | Zbieranie komórek |
| Mikropłytka 96-dołkowa z dnem optycznym | Thermo Fisher Scientific | 165305 | Do walidacji SMC |
| Przeciwciało przeciwko α-aktynie mięśni gładkich (monoklonalne) | Cell Signaling Technology | 19245S | Do walidacji SMC; rozcieńczenie robocze 1:1000 |
| Wtórne przeciwciało Alexa Fluor 488 IgG (poliklonalne) | Invitrogen | A-11008 | Do walidacji SMC; rozcieńczenie robocze 1:2500 |
| Amfoterycyna B | Thermo Fisher Scientific | 15290018 | Środek przeciwgrzybiczy |
| Seryjna albumina wołowa (BSA) | Sigma-Aldrich | A7906 | Do walidacji SMC |
| Inkubator CO2 (37 °C) | Różne | — | Warunki hodowli komórkowej |
| Kolagenaza typu II | Worthington Biochemical | LS004174 | Do trawienia enzymatycznego; użyto 260 U/mg |
| Automatyczny licznik komórek Countess | Invitrogen | C10281 | Do liczenia komórek |
| Mikroskop sekcyjny | Różne | — | Oczyszczanie tkanki |
| Pożywka DMEM/F12 | Thermo Fisher Scientific | 21041-025 | Podstawowa pożywka hodowlana |
| Elastaza | Worthington Biochemical | LS002279 | Do rozkładu macierzy; użyto 4,17 U/mg białka |
| Płodowa surowica wołowa (traktowana węglem/dekstranem) | Cytiva (Hyclone) | SH30068.03 | Użyta w stężeniu 20% do hodowli |
| HBSS z Ca2+ i Mg2+ | Thermo Fisher Scientific | 14025-092 | Użyty jako bufor do trawienia |
| Roztwór Hoechst 33342 | BD Pharmingen | 561908 | Do walidacji SMC |
| Sterylizator kuleczkowy na gorąco | Fine Science Tools | 18000-45 | Do ekstrakcji aorty |
| Ketamina | Dechra | — | Do znieczulenia myszy |
| Penicylina/Streptomycyna | Thermo Fisher Scientific | 15140122 | Antybiotyk |
| Bufor fosforanowy (PBS) | Thermo Fisher Scientific | 20012-027 | Bufor do mycia |
| Chlorek sodu | Fisher Scientific | BDH9286 | Do walidacji SMC; stężenie robocze 150 mM (8,8 g na 1 L) |
| Inhibitor trypsyny sojowy | Worthington Biochemical | LS003570 | Zapobiega nadmiernemu trawieniu |
| Tris (zasada) | Fisher Scientific | BP152 | Do walidacji SMC; stężenie robocze 20 mM (2,4 g na 1 L) |
| Triton X-100 | Fisher Scientific | BP151 | Do walidacji SMC; stężenie robocze 0,1% |
| Barwnik Trypan Blue | Thermo Fisher Scientific | T10282 | Do liczenia komórek |
| Trypsyna-EDTA (0,05%) | Thermo Fisher Scientific | 15400054 | Do pasażowania |
| Tween 20 | Fisher Scientific | BP337 | Do walidacji SMC; stężenie robocze 0,1% |
| Ksylazyna | Covetrus | 61035 | Do znieczulenia myszy |
| Materiały opcjonalne (jeśli użyte) | |||
| Kolby hodowlane (T25/T75) | Corning | — | Ekspansja komórek |
Bibliografia
- Ensor M, et al. Nicotine promotes Ang II-induced abdominal aortic aortopathies in female and male mice: role of sex hormones. Clin Sci (Lond). 2025;139(8):411-429.
- Ailawadi G, et al. Smooth muscle phenotypic modulation is an early event in aortic aneurysms. J Thorac Cardiovasc Surg. 2009;138(6):1392-1399.
- Frismantiene A, Philippova M, Erne P, Resink TJ. Smooth muscle cell-driven vascular diseases and molecular mechanisms of VSMC plasticity. Cell Signal. 2018;52:48-64.
- Alsiraj Y, et al. Female mice with an XY sex chromosome complement develop severe angiotensin II-induced abdominal aortic aneurysms. Circulation. 2017;135(4):379-391.
- Thatcher SE, et al. Exogenous 17-β estradiol administration blunts progression of established angiotensin II-induced abdominal aortic aneurysms in female ovariectomized mice. Biol Sex Differ. 2015;6:12.
- Daugherty A, Manning MW, Cassis LA. Angiotensin II promotes atherosclerotic lesions and aneurysms in apolipoprotein E-deficient mice. J Clin Invest. 2000;105(11):1605-1612.
- AlSiraj Y, et al. Monosomy X in female mice influences the regional formation and augments the severity of angiotensin II-induced aortopathies. Arterioscler Thromb Vasc Biol. 2021;41(1):269-283.
- Alsiraj Y, et al. Sex chromosome complement defines diffuse versus focal angiotensin II-induced aortic pathology. Arterioscler Thromb Vasc Biol. 2018;38(1):143-153.
- Alsiraj Y, et al. Therapeutic assessment of combination therapy with a neprilysin inhibitor and angiotensin type 1 receptor antagonist on angiotensin II-induced atherosclerosis, abdominal aortic aneurysms, and hypertension. J Pharmacol Exp Ther. 2021;377(3):326-335.
- AlSiraj Y, et al. Serotonin 3 receptor antagonism reduces angiotensin II-induced abdominal aortic aneurysms: contribution of periaortic fat-derived serotonin. J Pharmacol Exp Ther. 2025;392(2):100533.
- AlSiraj Y et al. Role of adipocyte angiotensinogen or angiotensin type 1A receptors in the development of diet-induced atherosclerosis or angiotensin II-induced abdominal aortic aneurysms. JVS Vasc Sci. 2025;7:100397.
- Alexander MR, Owens GK. Epigenetic control of smooth muscle cell differentiation and phenotypic switching in vascular development and disease. Annu Rev Physiol. 2012;74:13-40.
- Hubert MO, Rodriguez-Vita J, Wiedmann L, Fischer A. Isolation of murine primary aortic smooth muscle cells. Bio Protoc. 2021;11(3):e3907.
- Adhikari N, et al. Guidelines for the isolation and characterization of murine vascular smooth muscle cells. A report from the International Society of Cardiovascular Translational Research. J Cardiovasc Transl Res. 2015;8(3):158-163.
- AlSiraj Y, Woolley C, Thatcher SE, Cassis LA. Sex differences and the role of the renin-angiotensin system in atherosclerosis and abdominal aortic aneurysms. In: Sex Differences in Cardiovascular Physiology and Pathophysiology. Academic Press; 2019:167-184.
- Boese AC, et al. Sex differences in vascular physiology and pathophysiology: estrogen and androgen signaling in health and disease. Am J Physiol Heart Circ Physiol. 2017;313(3):H524-H545.
- Majesky MW. Developmental basis of vascular smooth muscle diversity. Arterioscler Thromb Vasc Biol. 2007;27(6):1248-1258.
- McMurray HF, Parrott DP, Bowyer DE. A standardised method of culturing aortic explants, suitable for the study of factors affecting the phenotypic modulation, migration and proliferation of aortic smooth muscle cells. Atherosclerosis. 1991;86(2-3):227-237.
Przedruki i uprawnienia
Ten artykuł został opublikowany
Film wkrótce dostępny