Niniejsze badanie łączy analizę par tkanek ludzkich, dwie linie komórkowe raka płaskonabłonkowego płuc, testy stabilności RNA i białek, eksperymenty z ratowaniem genetycznym oraz model ksenograftu z wyciszeniem genu FOXD1, aby zbadać regulację FOXD1 powiązaną z METTL3 i dostarczyć powtarzalnych ram badawczych do analizy potranskrypcyjnych mechanizmów onkogennych.
Artykuł badawczy
Regulacja FOXD1 związana z METTL3 promuje progresję płaskonabłonkowego raka płuc: wielomodelowe podejście eksperymentalne
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Rak płaskonabłonkowy płuca (LUSC) charakteryzuje się ograniczonymi opcjami terapeutycznymi, co motywuje do badania szlaków molekularnych wspierających wzrost komórek nowotworowych. Ekspresję białka Forkhead box D1 (FOXD1) oceniono za pomocą interaktywnej analizy profilowania ekspresji genów (GEPIA), ilościowej reakcji łańcuchowej polimerazy z odwrotną transkrypcją (qRT-PCR), western blottingu oraz immunohistochemii w parach tkanek i liniach komórkowych. W komórkach LUSC przeprowadzono wyciszenie FOXD1 lub metylotransferazy podobnej do 3 (METTL3), a następnie oceniono żywotność komórek, apoptozę, migrację, globalny poziom N6-metyloadenozyny (m6A), stabilność transkryptów oraz stabilność białek. W modelu ksenoprzeszczepu z wyciszeniem FOXD1 zbadano rolę FOXD1 in vivo; nie manipulowano poziomem METTL3 u zwierząt.
Ekspresja FOXD1 była wyższa w tkankach i komórkach LUSC niż w odpowiadających im kontrolach. Wyciszenie FOXD1 zmniejszyło żywotność i migrację, zwiększyło apoptozę oraz zahamowało wzrost ksenoprzeszczepów. Ekspresja METTL3 korelowała z FOXD1 w sparowanych tkankach LUSC. W hodowlach komórkowych wyciszenie METTL3 obniżyło ogólny poziom m6A i obfitość FOXD1, podczas gdy reekspresja FOXD1 częściowo przywróciła powiązane fenotypy. Badania z użyciem aktynomicyny D, cykloheksymidu i MG132 były zgodne ze zmianami stabilności RNA i białka FOXD1 związanymi z METTL3.
Dane te potwierdzają funkcjonalny związek między METTL3 a FOXD1 w komórkach LUSC. In vivo wyciszenie FOXD1 hamowało wzrost ksenoprzeszczepu i zmniejszało barwienie Ki-67, co wskazuje na rolę FOXD1 jako promotora wzrostu ksenoprzeszczepu. Bezpośrednie wiązanie METTL3–FOXD1, specyficzna dla miejsca modyfikacja m6A, zależność od białek czytających oraz walidacja in vivo pełnego szlaku METTL3–FOXD1 pozostają do ustalenia.
Wprowadzenie
Rak płuca pozostaje jedną z głównych przyczyn śmiertelności z powodu nowotworów na całym świecie1,2. Rak płaskonabłonkowy płuc (LUSC), główny podtyp histologiczny niedrobnokomórkowego raka płuca (NSCLC), często jest diagnozowany w stadium, w którym leczenie miejscowe o charakterze kuratywnym nie jest już możliwe3,4. Leczenie systemowe uległo poprawie, jednak wielu pacjentów nadal odnotowuje niekorzystne wyniki5. Zdefiniowanie programów molekularnych podtrzymujących wzrost LUSC może zatem pozwolić na odkrycie sprawdzalnych biomarkerów oraz hipotez terapeutycznych.
Forkhead box D1 (FOXD1) jest czynnikiem transkrypcyjnym zaangażowanym w raka jelita grubego, głowy i szyi, żołądka, płaskonabłonkowego raka jamy ustnej oraz raka piersi6,7,8,9,10. W przypadku NSCLC ekspresja FOXD1 została powiązana z niekorzystnym rokowaniem oraz z eksperymentalnym wzrostem i przerzutowaniem komórek11,12. MicroRNA-30a-5p hamuje również proliferację i migrację komórek LUSC poprzez celowanie w FOXD113. Obserwacje te wskazują na FOXD1 jako prawdopodobny regulator LUSC, jednak nie wyjaśniają, w jaki sposób jego ekspresja jest utrzymywana w tej chorobie.
N6-metyloadenozyna (m6A) jest odwracalną modyfikacją RNA, która jest wprowadzana, usuwana i interpretowana przez białka typu writer, eraser i reader. Ten system regulacyjny może wpływać na przetwarzanie, translację i degradację RNA, a jego zaburzenia wiąże się z fenotypami złośliwymi oraz odpowiedzią na leczenie14,15,16,17. Białko METTL3 (Methyltransferase-like 3) jest komponentem katalitycznym kompleksu writer m6A; jednak sama korelacja między METTL3 a FOXD1 nie pozwala wykazać bezpośredniej metylacji ani regulacji pośredniczonej przez białka typu reader.
Postawiliśmy hipotezę, że METTL3 wspomaga progresję LUSC poprzez utrzymywanie ekspresji FOXD1 za pomocą posttranskrypcyjnej regulacji związanej z m6A. Dzięki integracji dopasowanych próbek klinicznych, dwóch linii komórkowych nowotworu, testów utraty funkcji (loss-of-function) i ratunku (rescue), analiz stabilności transkryptów i białek oraz modelu ksenoprzeszczepu z wyciszeniem FOXD1, niniejsze badanie dostarcza funkcjonalnych ram do badania relacji METTL3–FOXD1, odróżniając korelację od bezpośredniej metylacji w konkretnym miejscu.
Protokół
Pobieranie tkanek ludzkich przeprowadzono zgodnie z Deklaracją Helsińską, a procedura została zatwierdzona przez Instytucjonalną Komisję Rewizyjną Pierwszego Szpitala Uniwersytetu w Jilin (numer zatwierdzenia 2022-339; 22 lipca 2022 r.); od wszystkich uczestników uzyskano pisemną świadomą zgodę. Protokół dotyczący zwierząt został zatwierdzony przez Komitet Zarządzania Zwierzętami Pierwszego Szpitala Uniwersytetu w Jilin (numer zatwierdzenia 2022-0015; 25 stycznia 2022 r.) i był realizowany zgodnie z instytucjonalnymi wytycznymi dotyczącymi opieki nad zwierzętami i ich wykorzystania.
Badani
Zarchiwizowane preparaty obejmowały 12 par pierwotnego LUSC oraz przyległych tkanek nietumorowych pobranych od pacjentów, którzy zostali poddani operacji między styczniem 2019 a grudniem 2020 roku. Kryteria kwalifikacji obejmowały patologicznie potwierdzone pierwotne LUSC, brak udokumentowanych przerzutów oraz brak leczenia skierowanego przeciwko LUSC w ciągu poprzednich 6 miesięcy. Przypadki wybrano za pomocą tabeli liczb losowych; w grupę weszło siedmiu mężczyzn i pięć kobiet w wieku 30–65 lat. Od wszystkich uczestników uzyskano pisemną zgodę na udział w badaniu.
Linie komórkowe
Ludzkie komórki nabłonka oskrzeli BEAS-2B (RRID: CVCL_0168), LUSC SK-MES-1 (RRID: CVCL_0630) oraz komórki NCI-H226 (RRID: CVCL_1544) pozyskano z Banku Komórek Chińskiej Akademii Nauk. Komórki hodowano w zmodyfikowanym podłożu Eagle'a Dulbecco z dodatkiem 10% płodowej surowicy bydlęcej i 1% penicyliny-streptomycyny w temperaturze 37 °C w atmosferze 5% CO2. Identyfikatory handlowe zostały zebrane w towarzyszącej Tabeli materiałów.
Przesiewanie i rescue za pomocą krótkich interferujących RNA
Przesiewowo przebadano trzy poszczególne małe interferujące RNA ukierunkowane na FOXD1 lub METTL3 w liniach komórkowych SK-MES-1 i NCI-H226. Wyciszenie genu oceniono 48 h po transfekcji za pomocą ilościowej reakcji polimerazy w łańcuchu z odwrotną transkrypcją (qRT-PCR) oraz analizy western blotting. Do dalszych testów funkcjonalnych FOXD1 wykorzystano FOXD1 siRNA-1, ponieważ spowodował on największą redukcję w obu liniach komórkowych. W dalszych eksperymentach dotyczących METTL3 zastosowano wybrany odczynnik si-METTL3 wyłoniony w badaniu przesiewowym. Zarchiwizowane dane nie określają produktu SmartPool ani nie zawierają sekwencji lub identyfikatora dostawcy, które można by przypisać z pewnością. W eksperymentach z przywróceniem funkcji komórki otrzymywały wybrany odczynnik si-METTL3, konstrukt do nadekspresji FOXD1 lub oba te elementy; poziom ekspresji oraz fenotypy komórkowe oceniono 48 h po transfekcji.
Izolacja RNA i qRT-PCR
Całkowite RNA wyizolowano z tkanek lub komórek przy użyciu odczynnika fenolowo-guanidyniowego, a następnie poddano odwrotnej transkrypcji z zastosowaniem komercyjnego zestawu do odwrotnej transkrypcji. qRT-PCR przeprowadzono z użyciem mieszaniny TB Green master mix na systemie PCR w czasie rzeczywistym (RRID: SCR_018051). Sekwencje starterów podano w Tabeli 1. Ekspresję względną znormalizowano względem dehydrogenazy glikeraldehydo-3-fosforanowej (GAPDH). Przygotowanie reakcji oraz cyklowanie termiczne przeprowadzono zgodnie z protokołem producenta dla wymienionego master mixu.
Western blotting
Tkanki lub komórki poddano lizie w buforze do radioimmunoprecypitacji (RIPA) zawierającym inhibitory proteaz. Równoważne ilości białek rozdzielono za pomocą elektroforezy żelowej z dodecylsiarczanem sodu i poliakryloamidem (SDS-PAGE), a następnie przeniesiono na membrany z polifluorku winydenu (PVDF). Membrany inkubowano przez noc w temperaturze 4 °C z przeciwciałami przeciwko FOXD1 (1:1,000), METTL3 (1:1,000; RRID: AB_2142033) lub GAPDH (1:2,000; RRID: AB_10622025), a następnie przez 1 h w temperaturze pokojowej z przeciwciałem anty-królika przeciwko immunoglobulinie G sprzężonym z peroksydazą chrzanową. Sygnały wywołano za pomocą wzmocnionej chemiluminescencji, przyjmując GAPDH jako kontrolę załadunku. Tabela materiałów zawiera identyfikatory handlowych przeciwciał pierwszorzędowych oraz opis odczynnika drugorzędowego jako przeciwciała detekcyjnego anty-królika przeciwko immunoglobulinie G.
Żywotność komórek i apoptoza
Do pomiarów żywotności komórki kontrolne i transfektowane komórki LUSC wysiano na płytki 96-dołkowe w zagęszczeniu 2 000 komórek na dołek. W odstępach 12-godzinnych do każdego dołka dodawano 10 µL odczynnika z zestawu do liczenia komórek CCK-8, płytki inkubowano przez 1 h w temperaturze 37 °C, a następnie rejestrowano absorbancję przy 450 nm. Do analizy apoptozy komórki wysiano na płytki 6-dołkowe w zagęszczeniu 1 × 10⁵ komórek na dołek i analizowano 48 h po transfekcji. Zebrane komórki przetworzono zgodnie z instrukcją zestawu Annexin V–fluoresceina izotiocyjanian (FITC)/jodek propidyny (PI), resuspendowano w 100 µL buforu wiążącego, barwiono 5 µL każdego z odczynników przez 30 min w temperaturze pokojowej w ciemności, a następnie analizowano metodą cytometrii przepływowej w ciągu 4 h.
Migracja w układzie Transwell
Transfekowane komórki LUSC umieszczono w medium bez surowicy w górnej komorze transwell; dolna komora zawierała 500 µL medium uzupełnionego o 10% płodowej surowicy bydlęcej. Po 24 h zmigrowane komórki utrwalono 4% paraformaldehydem i barwiono fioletem krystalicznym przez 10 min. Komórki, które nie zmigrowały i pozostały na górnej powierzchni membrany, usunięto za pomocą patyczka watnego. Zmigrowane komórki obrazowano za pomocą mikroskopu przy identycznych ustawieniach akwizycji, a następnie podliczono z wykorzystaniem programu ImageJ (RRID: SCR_003070).
modyfikacja metylacji m6A
Globalną zawartość m6A zmierzono za pomocą kolorymetrycznego testu metylacji RNA. Po ekstrakcji i ocenie jakości RNA do każdego dołka testowego naniesiono 200 ng RNA. Dodano przeciwciało wychwytujące (50 µL) na 60 min w temperaturze pokojowej. Dołki przemyto trzykrotnie, inkubowano z 50 µL przeciwciała detekcyjnego przez 30 min, przemyto czterokrotnie, a następnie inkubowano z roztworem wzmacniającym sygnał przez 30 min. Absorbancję zmierzono przy 450 nm. Wszystkie etapy przeprowadzono zgodnie z instrukcją dołączoną do zestawu.
Wykrywanie stabilności mRNA
Komórki LUSC wysiano na płytki 6-dołkowe i przetransfekowano negatywną kontrolną małą interferującą cząsteczką RNA (si-NC) lub małą interferującą cząsteczką RNA skierowaną przeciwko METTL3 (si-METTL3). Po 48 h dodano aktynomycynę D w stężeniu 5 µg/mL w celu zahamowania transkrypcji. Komórki zebrano w punktach czasowych 0 h, 2 h, 4 h i 6 h, wyizolowano całkowite RNA, a następnie za pomocą qRT-PCR zmierzono poziom transkrypcyjny FOXD1.
Analizy z użyciem cykloheksymidu (CHX) i MG132
W każdym teście punktu końcowego z inhibitorem porównano nieleczone komórki kontrolne z wektorem, komórki kontrolne z wektorem leczone inhibitorem oraz komórki z nadekspresją METTL3 leczone inhibitorem. MG132 zastosowano w stężeniu 10 µM, a CHX w stężeniu 20 µM; lizaty zebrano po 12 h do analizy western blotting. W przypadku przebiegu czasowego dla CHX, komórki przetransfekowane si-NC lub si-METTL3 poddano działaniu 20 µM CHX i zebrano w punktach czasowych 0 h, 3 h, 6 h i 9 h. Ilość białka FOXD1 zmierzono za pomocą metody western blotting.
In vivo eksperymenty
Pięciotygodniowe myszy athymic BALB/c nude przydzielono do grup kontrolnej ujemnej oraz grupy SK-MES-1 z knockdownem FOXD1 (n = 8 myszy na grupę). Każda mysz otrzymała podskórny zastrzyk z około 8 × 10⁶ komórek. Monitorowanie guza rozpoczęto 1 tydzień po implantacji; wielkość guza zapisywano co 4 dni przez 20 kolejnych dni. Myszy uśpiono zgodnie z zatwierdzonymi protokołami instytucjonalnymi w 27. dniu po inokulacji, bezpośrednio po ostatnim pomiarze, a następnie guzy wycięto, zważono i sfotografowano. Do implantacji wykorzystano stabilne populacje komórek SK-MES-1 z knockdownem FOXD1 oraz odpowiadające im populacje kontrolne ujemne.
Immunochemia
Wycięte guzy zatopiono w parafinie i pocięto na skrawki o grubości 4–5 µm. Skrawki odparafinowano, rehydratowano, inkubowano przez noc w temperaturze 4 °C z przeciwciałem pierwszorzędowym, a następnie inkubowano z odpowiednim przeciwciałem wtórnym przez 30 min. Komórki wykazujące obecność antygenu uwidoczniono za pomocą substratu diaminobenzydyny. Ekspresję białek FOXD1 i Ki-67 oceniono w ksenoprzeszczepach, przy czym powiązane skrawki przetwarzano w tej samej serii barwień i obrazowano przy identycznych ustawieniach akwizycji.
Analiza statystyczna
Analizy wykonano za pomocą programu GraphPad Prism w wersji 8 (RRID: SCR_002798) oraz języka R (RRID: SCR_001905). W porównaniach dwóch grup zastosowano test t-Studenta, a w porównaniach obejmujących więcej niż dwie grupy wykorzystano analizę wariancji. W analizach sparowanych tkanek ludzkich wykorzystano 12 par pacjentów; podsumowania in vitro reprezentują trzy niezależne eksperymenty biologiczne; w analizach ksenoprzeszczepów wykorzystano osiem myszy na grupę. Powtórzenia techniczne nie były traktowane jako niezależne obserwacje. Dane przedstawiono jako średnia ± odchylenie standardowe. Za statystycznie istotne uznano dwustronne P < 0,05.
Wyniki
Ekspresja FOXD1 jest podwyższona w ludzkich tkankach LUSC
Zapytanie w bazie Gene Expression Profiling Interactive Analysis (GEPIA) wykazało wyższą obfitość transkryptów FOXD1 w próbkach LUSC niż w normalnych próbkach płuc, natomiast w przypadku porównania z gruczolakorakiem płuca nie osiągnięto istotności statystycznej (Rycina 1A). Analiza 12 par tkanek LUSC oraz sąsiednich tkanek nietumorowych za pomocą qRT-PCR i western blottingu wykazała ten sam kierunek zmian (Rycina 1B,C). Barwienie immunohistochemiczne wykazało również silniejszy sygnał FOXD1 w przekrojach guzów niż w odpowiadających im sąsiednich tkankach (Rycina 1D).
Wyciszenie ekspresji FOXD1 zmniejsza żywotność i migrację oraz zwiększa apoptozę w komórkach LUSC
Obfitość transkrypcyjna FOXD1 była większa w komórkach SK-MES-1 i NCI-H226 niż w komórkach BEAS-2B (Rysunek 2A). Przesiewowo przetestowano trzy małe interferujące RNA ukierunkowane na FOXD1; siRNA-1 spowodowało największą redukcję wykrytą metodą qRT-PCR i western blotting, w związku z czym wybrano je do kolejnych analiz (Rysunek 2B,C). W porównaniu z kontrolą negatywną, wyciszenie FOXD1 zmniejszyło sygnał Cell Counting Kit-8 (Rysunek 2D), zwiększyło liczbę komórek dodatnich dla Aneksyny V (Rysunek 2E) oraz zmniejszyło migrację w systemie Transwell (Rysunek 2F) w obu liniach komórkowych LUSC. Do dalszych badań wykorzystano tylko jeden wybrany odczynnik, zatem wyniki funkcjonalne nie stanowią niezależnego od sekwencji wykluczenia efektów poza celem.
Ekspresja METTL3 koreluje z FOXD1 w próbkach LUSC
Metylowanie m6A jest dynamiczną i odwracalną modyfikacją chemiczną powszechnie występującą u eukariontów, regulowaną przez metylotransferazy i demetylazy oraz rozpoznawaną i przetwarzaną przez białka wiążące m6A18. Globalny sygnał m6A był wyższy w 12 tkankach LUSC niż w odpowiadających im tkankach sąsiednich, a także wyższy w obu liniach komórkowych LUSC niż w komórkach BEAS-2B (Rycina 3A). Transkrypty kodujące METTL3, METTL14, WTAP i RBM15 były zwiększone w dobranych próbkach nowotworowych (Rycina 3B). W danych GEPIA oraz w zbiorze 12 nowotworów FOXD1 wykazał najsilniejszą dodatnią korelację z METTL3; korelacja z RBM15 była słabsza (Rycina 3C,D). Analiza Western blotting dodatkowo wykazała wyższą zawartość METTL3 w tkankach nowotworowych (Rycina 3E). Analizy te wykazują współzmienność, a nie bezpośrednią regulację.
Wyciszenie genu METTL3 zmienia poziom FOXD1 i fenotypy komórek LUSC
Trzy małe interferujące RNA nakierowane na METTL3 przebadano w komórkach SK-MES-1 i NCI-H226 za pomocą qRT-PCR i western blottingu (Rycina 4A,B). Wyciszenie METTL3 obniżyło globalny sygnał m6A (Rycina 4C). Nadekspresja FOXD1 zwiększyła poziom FOXD1 bez zwiększenia poziomu METTL3 (Rycina 4D), a eksperyment ratunkowy przeprowadzony na czterech grupach potwierdził niższą zawartość FOXD1 po wyciszeniu METTL3 oraz jej przywrócenie za pomocą konstruktu FOXD1 (Rycina 4E,F). Wyciszenie METTL3 zmniejszyło żywotność i migrację oraz zwiększyło apoptozę; ponowna ekspresja FOXD1 częściowo przeciwdziałała tym zmianom (Rycina 4G–I). Zatem dane z eksperymentu ratunkowego są spójne z tezą, że FOXD1 działa w szlaku downstream względem METTL3 w hodowlach komórkowych.
Zaburzenie funkcji METTL3 wiąże się ze stabilnością RNA i białka FOXD1
Rosnąca liczba dowodów sugeruje, że modyfikacja mRNA m6A moduluje różne aspekty cyklu mRNA, w tym splicing pre-mRNA, translację, eksport nukleocytoplazmatyczny, degradację oraz splicing19,20. Narzędzie SRAMP zidentyfikowało potencjalne motywy m6A w RNA FOXD1, a m6A2Target wskazało METTL3 jako przewidywaną białko typu writer powiązaną z FOXD1 w komórkach H1299 (Rysunek 5A,B). Wyniki z tych baz danych służą do generowania hipotez i nie dowodzą wiązania ani specyficznego dla danej lokalizacji metylowania w komórkach LUSC. Po zablokowaniu transkrypcji za pomocą aktynomicyny D, poziom RNA FOXD1 spadał szybciej po wyciszeniu METTL3 niż w komórkach kontrolnych (Rysunek 5C). Obfitość FOXD1 była wyższa w komórkach z nadekspresją METTL3 traktowanych MG132 niż w kontrolnych komórkach z wektorem traktowanych MG132, natomiast wzorca tego nie zaobserwowano po traktowaniu CHX (Rysunek 5D,E). Kinetyka czasowa dla CHX wykazała szybszy zanik białka FOXD1 po wyciszeniu METTL3 (Rysunek 5F). Łącznie wyniki tych analiz są zgodne ze zmianami stabilności RNA i białka FOXD1 powiązanymi z METTL3, jednak nie identyfikują zmodyfikowanej adenozyny, nie dowodzą bezpośredniego wiązania ani nie definiują białka typu reader dla m6A.
Wyciszenie genu FOXD1 hamuje wzrost ksenoprzeszczepu LUSC
Aby przetestować funkcję FOXD1 in vivo, komórki SK-MES-1 kontrolne oraz z wyciszonym genem FOXD1 zaimplantowano podskórnie u myszy nude (n = 8 na grupę). Począwszy od 1 tygodnia po implantacji, wielkość guzów mierzono co 4 dni przez 20 dni, a następnie pobrano je w 27. dniu po inokulacji. Wycięte guzy były mniejsze w grupie z wyciszonym FOXD1 (Rycyna 6A), ich krzywe wzrostu rosły wolniej (Rycyna 6B), a ich końcowa masa była niższa (Rycyna 6C). W guzach z wyciszonym genem stwierdzono również zmniejszone barwienie na FOXD1 i Ki-67 (Rycyna 6D). Eksperymenty te oceniają wyłącznie efekt wyciszenia FOXD1; nie testują one inhibicji METTL3 in vivo.
Podsumowując, FOXD1 był nadmiernie ekspresowany w tkankach i komórkach płaskonabłonkowego raka płuc oraz wspomagał proliferację, migrację i wzrost ksenoprzeszczepów. Wyciszenie METTL3 obniżyło globalne poziomy m6A, zmniejszyło ekspresję FOXD1 i upośledziło złośliwe fenotypy komórkowe, podczas gdy ponowna ekspresja FOXD1 częściowo odwróciła te efekty. Testy stabilności potwierdzają związaną z METTL3 regulację posttranskrypcyjną FOXD1, ale nie wykazują bezpośredniej metylacji w konkretnych miejscach ani ratowania pełnej ścieżki in vivo. Projekt badania przedstawiono w Rysunku 7.
DOSTĘPNOŚĆ DANYCH:
Wszystkie dane przeanalizowane w niniejszym badaniu zostały zawarte w artykule oraz na towarzyszących mu rycinach. Zanonimizowane dane liczbowe stanowiące podstawę przedstawionych podsumowań są dostępne u autora korespondencyjnego na uzasadnioną prośbę, zgodnie z wymogami ładu instytucjonalnego oraz zasadami ochrony uczestników. Nie wykorzystano plików symulacyjnych ani niestandardowego kodu analitycznego.
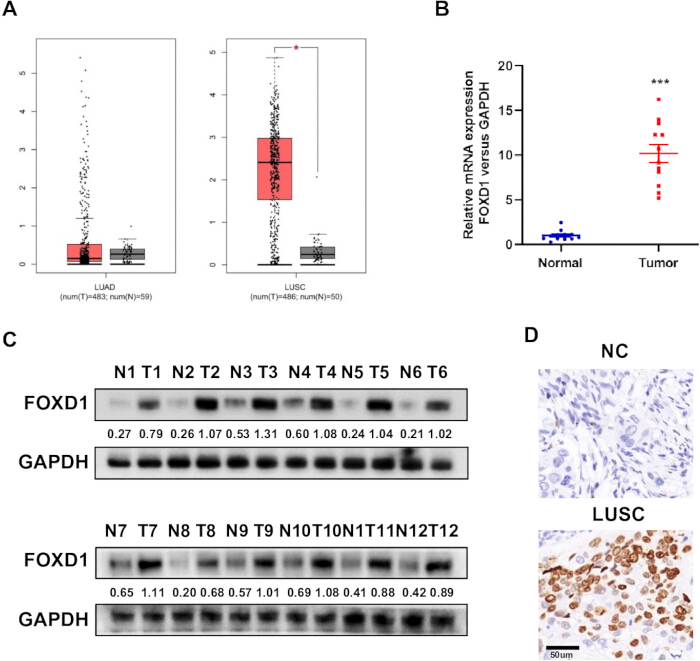
Rycina 1: Ekspresja FOXD1 w próbkach raka płuc u ludzi. (A) Porównanie GEPIA poziomu transkrypcji FOXD1 w gruczolczym raku płuca (LUAD) oraz płaskonakletkowym raku płuca (LUSC) w stosunku do prawidłowych próbek płuc. (B) Poziom transkrypcji FOXD1 w 12 parach tkanek LUSC i przyległych tkanek nietumorowych. (C) Poziom białka FOXD1 w tych samych parach tkanek. (D) Reprezentatywna immunohistochemia FOXD1. Tkanka ludzka n = 12 par; powtórzenia techniczne w stylu in vitro nie zmieniają liczby n na poziomie pacjenta. Pasek skali na panelu D = 50 µm. ***P < 0.001. Proszę kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.
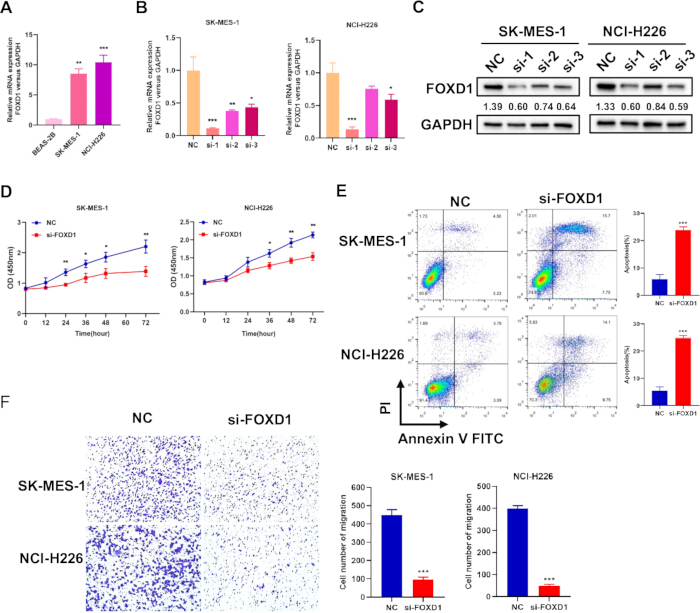
Rycina 2: Efekty wyciszenia genu FOXD1 w komórkach SK-MES-1 i NCI-H226. (A) Poziom transkrypcyjny FOXD1 w komórkach BEAS-2B, SK-MES-1 i NCI-H226. (B) Przesiew qRT-PCR trzech małych interferujących RNA celujących w FOXD1 48 h po transfekcji. (C) Przesiew Western-blot tych samych trzech małych interferujących RNA celujących w FOXD1. (D) Analiza przy użyciu zestawu do liczenia komórek CCK-8 po wyciszeniu FOXD1. (E) Analiza apoptozy z wykorzystaniem Aneksyny V–izotiocyjanianu fluoresceiny/jodku propidynyum po 48 h. (F) Migracja w układzie Transwell zmierzona 24 h po wysianiu transfektowanych komórek; zarchiwizowane obrazy pól widzenia przedstawiono bez retrospektywnego paska skali ze względu na brak dostępnych metadanych kalibracyjnych. Wykonano trzy niezależne eksperymenty biologiczne. *P < 0.05; **P < 0.01; ***P < 0.001. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
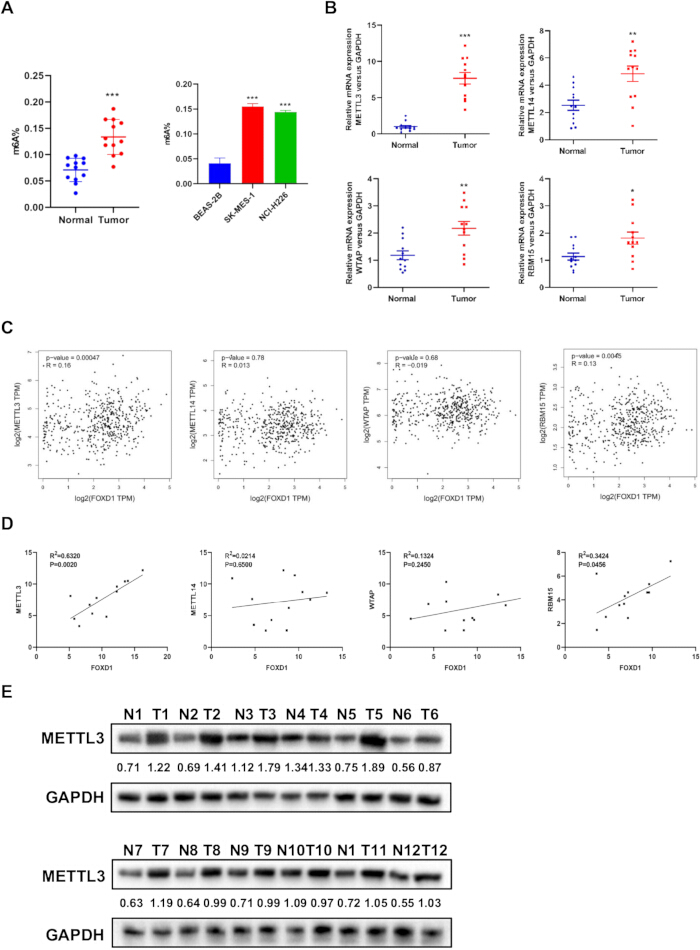
Rycina 3: Globalny poziom N6-metyloadenozyny oraz powiązanie między METTL3 a FOXD1. (A) Globalny sygnał m6A w tkankach sparowanych oraz w komórkach BEAS-2B, SK-MES-1 i NCI-H226. (B) Transkrypty METTL3, METTL14, WTAP i RBM15 w 12 sparowanych próbkach LUSC i tkanek sąsiadujących. (C) Korelacje GEPIA między FOXD1 a każdym z białek writer. (D) Korelacje między FOXD1 a transkryptami białek writer w 12 guzach LUSC. (E) Białko METTL3 w sparowanych próbkach LUSC i tkanek sąsiadujących. Tkanka ludzka n = 12 par; analizy komórkowe reprezentują trzy niezależne eksperymenty biologiczne. *P < 0.05; **P < 0.01; ***P < 0.001. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
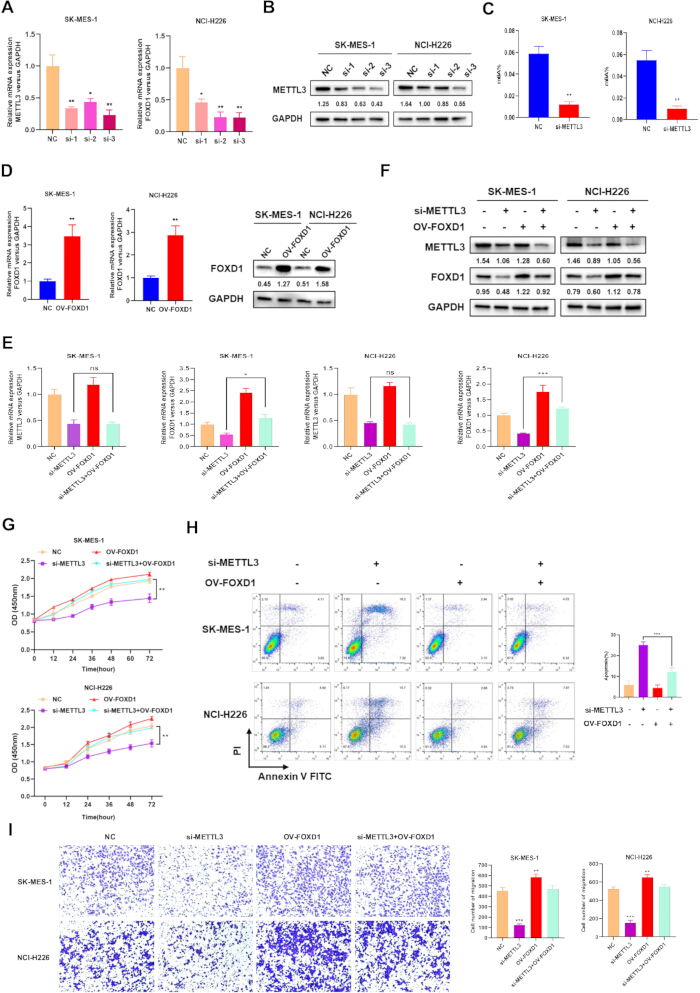
Rycina 4: Wyciszenie METTL3, ratunek FOXD1 i fenotypy komórek LUSC. (A) Przesiew qRT-PCR trzech małych interferujących RNA skierowanych przeciwko METTL3 przeprowadzony 48 h po transfekcji. (B) Przesiew Western-blot tych samych trzech małych interferujących RNA skierowanych przeciwko METTL3. (C) Globalny sygnał m6A po wyciszeniu METTL3. (D) Obfitość transkryptu i białka FOXD1 po nadekspresji FOXD1. (E) Obfitość transkryptów METTL3 i FOXD1 w warunkach kontrolnych, si-METTL3, ov-FOXD1 oraz w połączonej grupie si-METTL3 + ov-FOXD1, zmierzona za pomocą qRT-PCR. (F) Obfitość białek METTL3 i FOXD1 w tych samych grupach ratunkowych zmierzona za pomocą Western-blottingu. (G) Analiza z użyciem zestawu Cell Counting Kit-8. (H) Apoptoza określona metodą cytometrii przepływowej. (I) Migracja w systemie Transwell. Przeprowadzono trzy niezależne eksperymenty biologiczne. Liczby pod prążkami Western-blot wskazują znormalizowane stosunki białka docelowego/GAPDH. ns, brak istotności; *P < 0.05; **P < 0.01; ***P < 0.001. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
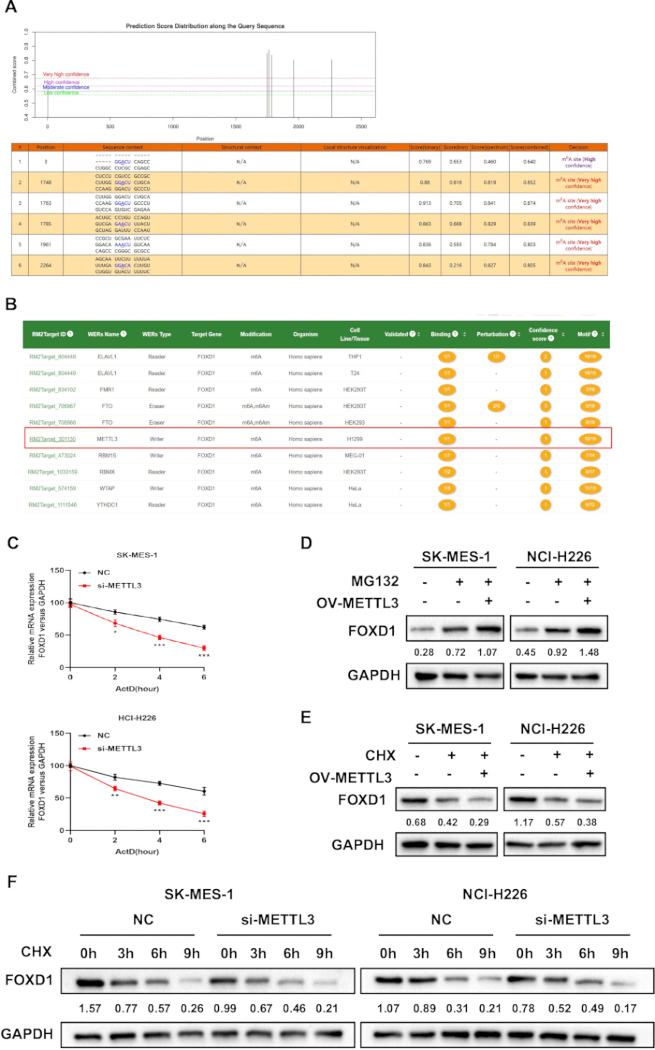
Rysunek 5: METTL3 wiąże się z regulacją transkrypcji i białka FOXD1. (A) Przewidywane przez SRAMP miejsca N6-metyloadenozyny w transkrypcie FOXD1. (B) Przewidywanie m6A2Target identyfikujące METTL3 jako kandydującego writera powiązanego z FOXD1. (C) Względna zawartość mRNA FOXD1 po traktowaniu aktynomycyną D w stężeniu 5 µg/mL w komórkach kontrolnych (negatywnych) i komórkach z wyciszeniem METTL3 w czasie 0 h, 2 h, 4 h i 6 h. (D) Zawartość białka FOXD1 w nietraktowanych komórkach kontrolnych z wektorem, komórkach kontrolnych z wektorem traktowanych MG132 oraz komórkach z nadekspresją METTL3 traktowanych MG132 (10 µM MG132). (E) Zawartość białka FOXD1 w nietraktowanych komórkach kontrolnych z wektorem, komórkach kontrolnych z wektorem traktowanych CHX oraz komórkach z nadekspresją METTL3 traktowanych CHX (20 µM CHX). (F) Ekspresja białka FOXD1 po traktowaniu CHX w stężeniu 20 µM przez 0 h, 3 h, 6 h i 9 h w komórkach kontrolnych (negatywnych) i komórkach z wyciszeniem METTL3. GAPDH posłużyło jako kontrola ładowania. Doświadczenia komórkowe przeprowadzono w trzech niezależnych powtórzeniach biologicznych. Przedstawione bloty są reprezentatywne; liczby poniżej prążków wskazują znormalizowane stosunki FOXD1/GAPDH. *P < 0.05; **P < 0.01; ***P < 0.001. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
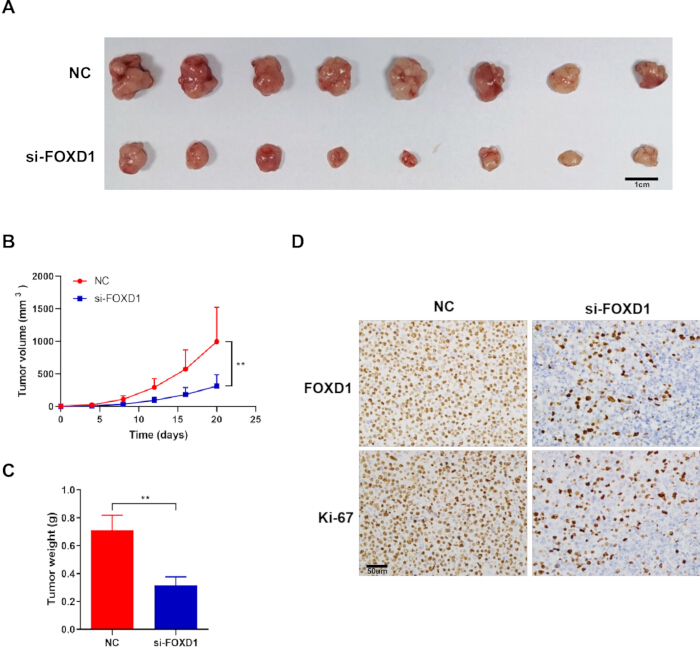
Rycina 6: Wyciszenie genu FOXD1 hamuje wzrost ksenoprzeszczepów SK-MES-1. (A) Wycięte guzy z grup kontrolnej ujemnej i grupy z wyciszeniem FOXD1; pasek skali = 1 cm. (B) Wzrost guza mierzony co 4 dni przez 20 dni, rozpoczynając 1 tydzień po implantacji, z pobraniem materiału w 27. dniu po inokulacji. (C) Masa guza w momencie pobrania. (D) Reprezentatywne obrazy immunohistochemiczne FOXD1 i Ki-67 w tkance ksenoprzeszczepu; pasek skali = 50 µm. n = 8 myszy na grupę; **P < 0.01. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
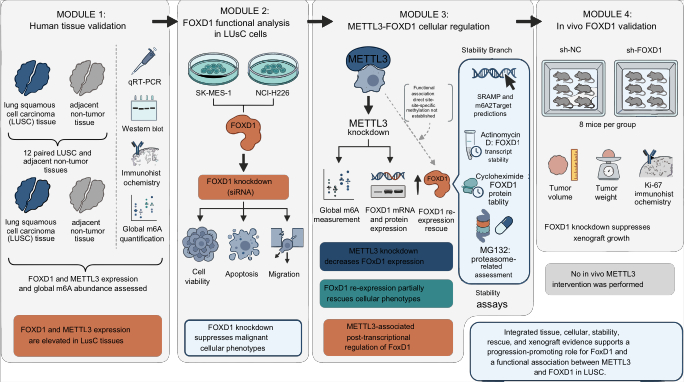
Rysunek 7: Ogólny schemat badania i granice dowodowe. Do profilowania FOXD1, METTL3 oraz globalnego m6A wykorzystano sparowane tkanki LUSC (n = 12 par) oraz linie komórkowe; po perturbacjach genetycznych i próbach ratowania przeprowadzono analizy żywotności, apoptozy, migracji i stabilności. Model ksenoprzeszczepu z wyciszeniem FOXD1 (n = 8 myszy na grupę) był monitorowany przez 20 dni. Schemat odróżnia dowody dotyczące METTL3 uzyskane na komórkach od dowodów specyficznych dla FOXD1 uzyskanych in vivo oraz wskazuje bezpośrednie wiązanie, specyficzne dla miejsca m6A, tożsamość czytnika oraz aktywność METTL3 in vivo jako elementów nieprzebadanych. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
| Gen | Kierunek | Sekwencja (5′–3′) |
| FOXD1 | Wstęp | TCTGAGTAACGCGTTATGCTT |
| FOXD1 | Odwrócenie | CGGAATCGGACGCAAGTCTT |
| GAPDH | Wstęp | GGAGCGAGATCCCTCCAAAAT |
| GAPDH | Odwrócenie | GGCTGTTGTCATACTTCTCATGG |
| METTL14 | Wstęp | CTGAAAGTGCCGACAGCATTGG |
| METTL14 | Odwrócenie | CTCTCCTTCATCCAGATACTTACG |
| METTL3 | Wstęp | CCAGCACAGCTTCAGCAGTTCC |
| METTL3 | Odwrócenie | GCGTGGAGATGGCAAGACAGATG |
| RBM15 | Przesunięcie w przód | GTTGTGGCTTATGTGGAGTTTAC |
| RBM15 | Odwrócenie | CACTTAAAACACCGGCATTGG |
| WTAP | Wstęp | GCAACAACAGCAGGAGTCTGCA |
| WTAP | Odwrócenie | CTGCTGGACTTGCTTGAGGTAC |
Tabela 1: Sekwencje starterów do ilościowej reakcji łańcuchowej polimerazy z odwrotną transkrypcją. Sekwencje podano w kierunku 5′–3′.
Dyskusja
Przedstawiony schemat badawczy potwierdza rolę FOXD1 w LUSC w obrębie par tkanek, dwóch linii komórkowych oraz modelu ksenoprzeszczepu. Poziom FOXD1 był wyższy w próbkach nowotworowych i komórkach LUSC, a jego wyciszenie zmniejszyło żywotność i migrację, jednocześnie zwiększając apoptozę. Wyniki te są zgodne z doniesieniami łączącymi FOXD1 ze wzrostem, inwazyjnością, opornością na terapię oraz niekorzystnym rokowaniem w kilku typach nowotworów 10,11,12,13,21,22,23,24,25,26,27,28. Rozszerzają one również wcześniejsze obserwacje dotyczące LUSC, łącząc fenotypy komórkowe z eksperymentem na ksenoprzeszczepach z wyciszonym FOXD1.
Analizy par tkanek oraz komórek dodatkowo powiązały poziom FOXD1 z METTL3 i globalnym poziomem m6A. W 12 parach nowotworowych podwyższony był poziom czterech genów writerów, lecz METTL3 wykazał najsilniejszą dodatnią korelację z FOXD1. W hodowlach komórkowych wyciszenie METTL3 zredukowało globalny poziom m6A oraz obfitość FOXD1, a reekspresja FOXD1 częściowo odwróciła związane z tym fenotypy przeżywalności, apoptozy i migracji. Dane te wspierają istnienie funkcjonalnej zależności METTL3-FOXD1 w badanych komórkach, co jest zgodne z szerokim wpływem regulacji m6A na fenotypy złośliwe29,30,31,32,33,34,35,36.
Kilka punktów protokołu jest istotnych dla zachowania powtarzalności. Efektywność wyciszenia genu powinna zostać potwierdzona w każdej linii komórkowej przed przeprowadzeniem testów funkcjonalnych, a warunki ratunkowe powinny weryfikować przywrócenie FOXD1, bez interpretowania konstruktu jako nadekspresji METTL3. W przypadku traktowania Actinomycin D, CHX i MG132 należy stosować stężenia i czasy pobierania próbek określone w protokole. W testach Transwell należy kontrolować gęstość komórek, gradient surowicy oraz spójność pola obrazowania. Jeśli badacz modyfikuje schemat pracy, w przypadku długotrwałych eksperymentów in vivo preferowane może być zastosowanie stabilnego krótkiego interferującego RNA (shRNA) lub edycji genomu, jednak alternatywy te wymagają niezależnej walidacji.
Badanie posiada kilka ograniczeń. Kohorta ludzka obejmowała 12 par próbek i nie została zaprojektowana do modelowania wyników. Do testów funkcjonalnych wybrano tylko jedno małe interferujące RNA, w związku z czym nie przeprowadzono walidacji efektów poza docelowych niezależnych od sekwencji. Interpretacja analizy Western-blot ogranicza się do znormalizowanych wartości przedstawionych na rycinach; nie przeprowadzono testów inferencyjnych post hoc. Przewidywania SRAMP i m6A2Target, globalne pomiary m6A oraz testy stabilności nie zastępują immunoprecypitacji RNA, immunoprecypitacji RNA zmetylowanego, mutogenezy celowanej ani ratunku specyficznego dla białek czytających. Nie zaburzano poziomu METTL3 in vivo, zatem dane z ksenograftów nie mogą stanowić podstawy dla twierdzeń dotyczących METTL3 in vivo.
Przyszłe badania powinny przetestować farmakologiczną inhibicję METTL3, zmapować miejsca m6A powiązane z FOXD1 oraz bezpośrednie wiązanie, zidentyfikować odpowiednie białko czytające (reader protein) i powtórzyć strategię ratunkową in vivo. Do oceny wyników klinicznych wymagana byłaby również większa, niezależnie adnotowana kohorta. W ramach obecnego zakresu badanie to potwierdza rolę FOXD1 jako funkcjonalnego regulatora LUSC i dostarcza dowodów w modelach komórkowych na to, że METTL3 wpływa na obfitość FOXD1; nie ustanawia ono jednak kompletnej ścieżki METTL3-m6A-reader-FOXD1.
Oświadczenia
Autorzy oświadczają, że nie występuje konflikt interesów.
Wkład autorów:
D.A. i Q.D. przyczynili się do gromadzenia danych i pozyskiwania informacji klinicznych. K.W. i S.F. przeprowadzili eksperymenty z zakresu biologii molekularnej oraz analizę danych. L.G. uczestniczył w projektowaniu badania i interpretacji danych. H.Z. przeprowadził analizę statystyczną i pomógł w walidacji danych. Y.S. przeprowadził doświadczenia na zwierzętach i analizę immunohistochemiczną. Q.P. przyczynił się do przeprowadzenia testów migracji oraz zapewnienia zasobów eksperymentalnych. G.L. opracował koncepcję i nadzorował badanie oraz przygotował projekt manuskryptu. Wszyscy autorzy zapoznali się z manuskryptem, wprowadzili poprawki i go zatwierdzili.
Podziękowania
Autorzy dziękują Zhe Tang oraz Yan Zhang za pomoc techniczną odpowiednio przy ilościowej reakcji łańcuchowej polimerazy oraz western blotting, a także Yang Li za pomoc w testach żywotności komórek i apoptozy. Badanie to zostało sfinansowane przez Natural Science Foundation of Tibet Autonomous Region (nr XZ202001ZR0040G).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 7500 Fast Real-Time PCR System | Applied Biosystems | 7500 Fast | qRT-PCR (RRID: SCR_018051) |
| Aktynomycyna D | Sigma-Aldrich | SBR00013 | Analiza stabilności RNA, 5 µg/mL |
| Zestaw do badania apoptozy Annexin V-FITC/PI | BD Biosciences | 556547 | Cytometryczna analiza apoptozy |
| Atymiczne myszy nagi BALB/c | N/A | N/A | Ksenoprzeszczep podskórny |
| BEAS-2B | Chinese Academy of Sciences Cell Bank | https://www.cellosaurus.org/CVCL_0168 | Referencyjna linia nieguza obecnych komórek nabłonka oskrzeli; RRID: CVCL_0168 |
| Cell Counting Kit-8 | Beyotime | C0037 | Żywotność komórek |
| Fiolet krystaliczny | N/A | N/A | Barwienie Transwell, 10 min |
| Cykloheksymida | MedChemExpress | HY-12320 | Analizy stabilności białek, 20 µM |
| Zestaw substratu DAB | N/A | N/A | Wizualizacja immunohistochemiczna |
| Pożywka Dulbecco's modified Eagle medium | Gibco | 11995065 | Hodowla komórek |
| Odczynnik do wzmocnionej chemiluminescencji | Thermo Fisher Scientific | A38556 | Detekcja w Western blot |
| Płodowa surowica bydlęca | Gibco | 10091148 | Hodowla komórek, 10% |
| Cytometr przepływowy | N/A | N/A | Pomiar apoptozy |
| Przeciwciało przeciwko FOXD1 | Thermo Fisher Scientific | PA5-27142 | Western blot, 1:1,000; immunohistochemia |
| Konstrukt nadekspresyjny FOXD1 | N/A | N/A | Rescue FOXD1 |
| Przeciwciało przeciwko GAPDH | Cell Signaling Technology | 5174 | Kontrola ładowania w Western blot, 1:2,000 (RRID: AB_10622025) |
| GEPIA | Peking University | http://gepia.cancer-pku.cn/ | Zapytania o ekspresję i korelację; RRID: SCR_018294 |
| GraphPad Prism | GraphPad Software | Version 8 | Analiza statystyczna; RRID: SCR_002798 |
| Koniugowany z peroksydazą chrzanową przeciwciało przeciwko króliczej immunoglobulinie G | N/A | N/A | Western blot, 1 h w temperaturze pokojowej |
| ImageJ | National Institutes of Health | https://imagej.nih.gov/ij/ | Kwantyfikacja obrazów migracji; RRID: SCR_003070 |
| Przeciwciało przeciwko Ki-67 | N/A | N/A | Immunohistochemia ksenoprzeszczepów |
| m6A2Target | Web resource | http://m6a2target.canceromics.org/ | Przewidywane powiązania regulatora m6A z celem |
| Przeciwciało przeciwko Methyltransferase-like 3 | Proteintech | 15073-1-AP | Western blot, 1:1,000; RRID: AB_2142033 |
| MG132 | MedChemExpress | HY-13259 | Analiza inhibicji proteasomów, 10 µM |
| Kolorymetryczny test na N6-metyloadenozynę | Epigentek | P-9005-96 | Globalny pomiar m6A |
| NCI-H226 | Chinese Academy of Sciences Cell Bank | https://www.cellosaurus.org/CVCL_1544 | Model komórkowy LUSC; RRID: CVCL_1544 |
| Mikroskop Olympus | Olympus | Model not recorded | Obrazowanie Transwell |
| Penicylina-streptomycyna | Gibco | 10378016 | Hodowla komórek, 1% |
| Membrana z polifluorowęglanu winylidenu | Merck | IPVH00010 | Transfer w Western blot |
| Zestaw odczynników do odwrotnej transkrypcji PrimeScript | Takara | RR037A | Synteza komplementarnego DNA |
| R Project for Statistical Computing | R Foundation | https://www.r-project.org/ | Analiza statystyczna; RRID: SCR_001905 |
| Bufor do lizy w analizie radioimmunoprecypitacji | Beyotime | P0013B | Ekstrakcja białek |
| RNAiso Plus | Takara | 9108 | Ekstrakcja RNA |
| Odczynniki siRNA | N/A | N/A | Wyciszanie FOXD1 i METTL3; wybrano siRNA-1 |
| SK-MES-1 | Chinese Academy of Sciences Cell Bank | https://www.cellosaurus.org/CVCL_0630 | Model komórkowy LUSC i ksenoprzeszczep; RRID: CVCL_0630 |
| SRAMP | Web resource | http://www.cuilab.cn/sramp | Przewidywanie kandydackich miejsc m6A w FOXD1 |
| TB Green PCR master mix | Takara | RR820A | qRT-PCR |
| Odczynnik do transfekcji | N/A | N/A | Dostarczanie siRNA i plazmidów |
| Wkładki Transwell | N/A | N/A | Analiza migracji |
Bibliografia
- Li MY, Liu LZ, Dong M. Progress on pivotal role and application of exosome in lung cancer carcinogenesis, diagnosis, therapy and prognosis. Mol Cancer. 2021;20(1):22.
- Hirsch FR, et al. Lung cancer: current therapies and new targeted treatments. Lancet. 2017;389(10066):299-311.
- Li Y, et al. Transcriptomic and functional network features of lung squamous cell carcinoma through integrative analysis of GEO and TCGA data. Sci Rep. 2018;8(1):15834.
- Fu L, et al. The value of CEP55 gene as a diagnostic biomarker and independent prognostic factor in LUAD and LUSC. PLoS One. 2020;15(5):e0233283.
- Chen TJ, et al. MicroRNA-665 facilitates cell proliferation and represses apoptosis through modulating Wnt5a/β-catenin and Caspase-3 signaling pathways by targeting TRIM8 in LUSC. Cancer Cell Int. 2021;21(1):215.
- Chen C, et al. CXCL5 induces tumor angiogenesis via enhancing the expression of FOXD1 mediated by the AKT/NF-κB pathway in colorectal cancer. Cell Death Dis. 2019;10(3):178.
- Wu Q, et al. FOXD1-AS1 regulates FOXD1 translation and promotes gastric cancer progression and chemoresistance by activating the PI3K/AKT/mTOR pathway. Mol Oncol. 2021;15(1):299-316.
- Chen Y, Liang W, Liu K, Shang Z. FOXD1 promotes EMT and cell stemness of oral squamous cell carcinoma by transcriptional activation of SNAI2. Cell Biosci. 2021;11(1):154.
- Liang H, et al. FOXD1 is a prognostic biomarker and correlated with macrophages infiltration in head and neck squamous cell carcinoma. Biosci Rep. 2021;41(7):BSR20202929.
- Zhao YF, et al. FOXD1 promotes breast cancer proliferation and chemotherapeutic drug resistance by targeting p27. Biochem Biophys Res Commun. 2015;456(1):232-7.
- Nakayama S, et al. FOXD1 expression is associated with poor prognosis in non-small cell lung cancer. Anticancer Res. 2015;35(1):261-8.
- Li D, et al. FOXD1 promotes cell growth and metastasis by activation of vimentin in NSCLC. Cell Physiol Biochem. 2018;51(6):2716-2731.
- Chen C, et al. miR-30a-5p inhibits proliferation and migration of lung squamous cell carcinoma cells by targeting FOXD1. Biomed Res Int. 2020;2020:2547902.
- Chen XY, Zhang J, Zhu JS. The role of m(6)A RNA methylation in human cancer. Mol Cancer. 2019;18(1):103.
- Jiang X, et al. The role of m6A modification in the biological functions and diseases. Signal Transduct Target Ther. 2021;6(1):74.
- Ma Z, Ji J. N6-methyladenosine (m6A) RNA modification in cancer stem cells. Stem Cells. 2020;38(12):1511-1519.
- Gao R, et al. m6A modification: a double-edged sword in tumor development. Front Oncol. 2021;11:679367.
- He L, et al. Functions of N6-methyladenosine and its role in cancer. Mol Cancer. 2019;18(1):176.
- Sun T, Wu R, Ming L. The role of m6A RNA methylation in cancer. Biomed Pharmacother. 2019;112:108613.
- An Y, Duan H. The role of m6A RNA methylation in cancer metabolism. Mol Cancer. 2022;21(1):14.
- Sack LM, et al. Profound tissue specificity in proliferation control underlies cancer drivers and aneuploidy patterns. Cell. 2018;173(2):499-514.e23.
- Vazquez A, et al. Cancer metabolism at a glance. J Cell Sci. 2016;129(18):3367-73.
- Cai K, et al. FOXD1 facilitates pancreatic cancer cell proliferation, invasion, and metastasis by regulating GLUT1-mediated aerobic glycolysis. Cell Death Dis. 2022;13(9):765.
- Zhou L, et al. Down-regulation of miR-30a-5p is associated with poor prognosis and promotes chemoresistance of gemcitabine in pancreatic ductal adenocarcinoma. J Cancer. 2019;10(21):5031-5040.
- Pan F, Li M, Chen W. FOXD1 predicts prognosis of colorectal cancer patients and promotes colorectal cancer progression via the ERK 1/2 pathway. Am J Transl Res. 2018;10(5):1522-1530.
- Qiu S, et al. Diagnostic and prognostic value of FOXD1 expression in head and neck squamous cell carcinoma. J Cancer. 2021;12(3):693-702.
- Wu T, et al. miR-30e-5p-mediated FOXD1 promotes cell proliferation by blocking cellular senescence and apoptosis through p21/CDK2/Rb signaling in head and neck carcinoma. Cell Death Discov. 2023;9(1):295.
- Sun Q, et al. FOXD1 promotes dedifferentiation and targeted therapy resistance in melanoma by regulating the expression of connective tissue growth factor. Int J Cancer. 2021;149(3):657-674.
- Wang T, Kong S, Tao M, Ju S. The potential role of RNA N6-methyladenosine in cancer progression. Mol Cancer. 2020;19(1):88.
- Zeng C, Huang W, Li Y, Weng H. Roles of METTL3 in cancer: mechanisms and therapeutic targeting. J Hematol Oncol. 2020;13(1):117.
- Haussmann IU, et al. m6A potentiates Sxl alternative pre-mRNA splicing for robust Drosophila sex determination. Nature. 2016;540(7632):301-304.
- Liu N, et al. N(6)-methyladenosine-dependent RNA structural switches regulate RNA-protein interactions. Nature. 2015;518(7540):560-4.
- Kennedy EM, et al. Posttranscriptional m6A editing of HIV-1 mRNAs enhances viral gene expression. Cell Host Microbe. 2016;19(5):675-685.
- Lin S, et al. The m(6)A methyltransferase METTL3 promotes translation in human cancer cells. Mol Cell. 2016;62(3):335-345.
- Han J, et al. METTL3 promote tumor proliferation of bladder cancer by accelerating pri-miR221/222 maturation in m6A-dependent manner. Mol Cancer. 2019;18(1):110.
- Li A, et al. Cytoplasmic m(6)A reader YTHDF3 promotes mRNA translation. Cell Res. 2017;27(3):444-447.