Niniejsze badanie analizuje związek między spożyciem witaminy B12 w diecie a cukrzycową chorobą nerek, wykorzystując dane NHANES oraz analizy transkrypcyjne. Wyższe spożycie witaminy B12 wiązało się z niższym prawdopodobieństwem wystąpienia cukrzycowej choroby nerek, a gen P2RY14 został zidentyfikowany jako kandydat do dalszych badań w ramach generowania hipotez.
Artykuł badawczy
Spożycie witaminy B12 a cukrzycowa choroba nerek: badanie przekrojowe w oparciu o dane NHANES z transkryptomiczną identyfikacją P2RY14
W tym artykule
Podsumowanie
Streszczenie
Cukrzycowa choroba nerek (DKD) jest poważnym powikłaniem cukrzycy, a związek między spożyciem witaminy B12 a DKD pozostaje niejasny. To badanie przekrojowe objęło 8 218 uczestników z National Health and Nutrition Examination Survey (NHANES) w latach 2011–2018. Wieloczynnikowa regresja logistyczna wykazała, że uczestnicy w najwyższym kwartylu spożycia witaminy B12 mieli niższe szanse na wystąpienie DKD niż osoby w najniższym kwartylu (iloraz szans (OR): 0,70; 95% przedział ufności (CI): 0,50–0,97). Analiza ograniczonego splotu sześciennego wskazała na istotny nieliniowy związek między spożyciem witaminy B12 a DKD. Analiza transkrypcyjna zidentyfikowała 493 geny o różnej ekspresji (DEG), z których 20 pokrywało się z genami związanymi z kobalaminą. P2RY14 był istotnie upregulowany w DKD i wykazał wstępną zdolność dyskryminacyjną w zbiorach GSE30528, GSE30529 oraz GSE142025. Analizy wzbogacenia funkcjonalnego zasugerowały powiązania między P2RY14 a oddziaływaniem receptorów macierzy zewnątrzkomórkowej, adhezją ogniskową oraz rozwojem nerek. Eksploracyjne dokowanie molekularne przewidziało potencjalny tryb wiązania między MC-1 a P2RY14, z wynikiem Vina wynoszącym −6,0 kcal/mol. Ogólnie wyniki te potwierdzają związek między spożyciem witaminy B12 a DKD i wskazują P2RY14 jako kandydata do dalszych badań w celu weryfikacji postawionych hipotez.
Wprowadzenie
Cukrzyca (DM) jest zaburzeniem metabolicznym charakteryzującym się przewlekłą hiperglikemią, wynikającą z bezwzględnego lub względnego niedoboru wydzielania insuliny i/lub aktywności insuliny. Dotyka ona około 537 milionów ludzi na całym świecie1. W ciągu ostatnich trzech dekad globalna rozpowszechnioność DM wzrosła niemal czterokrotnie; diagnozę tę stawia się u około jednej na jedenaście osób dorosłych, z czego 90% cierpi na cukrzycę typu 2 (T2DM)2. T2DM często prowadzi do licznych powikłań mikronaczyniowych i makronaczyniowych, w tym do chorób układu sercowo-naczyniowego, udaru mózgu, nefropatii, neuropatii i retinopatii3. Powikłania te w znacznym stopniu przyczyniają się do wzrostu wskaźników niepełnosprawności, obniżenia jakości życia oraz skrócenia oczekiwanej długości życia4,5. Szczególnym problemem jest cukrzycowa choroba nerek (DKD), częste powikłanie mikronaczyniowe cukrzycy, które rozwija się u około 20% pacjentów z DM6. DKD charakteryzuje się utrwaloną albuminurią i postępującym spadkiem współczynnika filtracji kłębuszkowej (GFR). Jeśli nie zostanie powstrzymana, DKD może ostatecznie doprowadzić do schyłkowej niewydolności nerek (ESKD), w której funkcja nerek zostaje poważnie upośledzona, co w celu przeżycia wymaga dializ lub transplantacji nerki7,8. Co więcej, pacjenci z DKD są narażeni na zwiększone ryzyko rozwoju chorób układu sercowo-naczyniowego, nawet we wczesnych stadiach, a ta choroba współistniejąca wiąże się ze zwiększonym ryzykiem śmiertelności, co stanowi znaczne obciążenie dla systemów opieki zdrowotnej9,10,11. Dlatego kluczowe jest dokładne zbadanie czynników przyczyniających się do progresji DKD. Głębsze zrozumienie tych czynników jest niezbędne do opracowania skutecznych strategii terapeutycznych mających na celu zapobieganie zarówno wystąpieniu, jak i postępowaniu DKD w praktyce klinicznej.
Witaminy z grupy B, grupa witamin rozpuszczalnych w wodzie, odgrywają kluczową rolę w metabolizmie komórkowym i homeostazie, utrzymując równowagę fizjologiczną, obronę przeciwutleniającą oraz syntezę krwinek czerwonych12. Głównym źródłem witamin z grupy B jest dieta. Ze względu na ich rozpuszczalność w wodzie, witaminy te są zazwyczaj trudne do zmagazynowania w organizmie człowieka12. Nadmiar witamin z grupy B jest łatwo wydalany z moczem; jednak indywidualna wchłanialność, wykorzystanie i metabolizm mogą się znacznie różnić13. Niedobór witamin z grupy B może wyraźnie upośledzić funkcje komórkowe i układ odpornościowy, prowadząc do stanu zapalnego związanego z hiperhomocystejnemią14. Czynniki takie jak niedobór witamin z grupy B mogą przyczyniać się do progresji przewlekłej choroby nerek (CKD), wpływając na procesy zapalne i stres oksydacyjny związane z upośledzeniem funkcji nerek oraz patologią tkanki nerkowej15. Wśród witamin z grupy B witamina B12, znana również jako kobalamina, jest niezbędną witaminą rozpuszczalną w wodzie, która odgrywa istotną rolę w metabolizmie, w szczególności w syntezie DNA, metylacji i metabolizmie mitochondrialnym15. U pacjentów z CKD i schyłkową niewydolnością nerek różne zaburzenia metaboliczne – w tym kwasica, systemowy stan zapalny i zaburzenia hormonalne – wraz z chorobami współistniejącymi i polifarmakoterapią mogą prowadzić do niedożywienia, co w konsekwencji skutkuje niedoborem witaminy B1216. Liczne badania wykazały korelację między niskimi stężeniami witaminy B12 w surowicy a takimi stanami jak podwyższony wskaźnik masy ciała (BMI), insulinooporność, T2DM, dyslipidemia i choroby układu sercowo-naczyniowego17. Z drugiej strony, potencjalna toksyczność związana z nadmiarem witaminy B12 może pogorszyć stan pacjentów z CKD18. Co więcej, niedawne badanie wykazało, że wyższe stężenia witaminy B12 wiążą się ze zwiększoną śmiertelnością z wszystkich przyczyn u pacjentów poddawanych hemodializie19. Jednak związek między spożyciem witaminy B12 a występowaniem DKD nie został jeszcze kompleksowo zbadany. Ponadto cechy molekularne, które potencjalnie łączą procesy biologiczne związane z witaminą B12 z DKD, pozostają niedostatecznie scharakteryzowane. Integracja populacyjnych dowodów epidemiologicznych z danymi transkryptomicznymi może zatem stanowić komplementarną strategię identyfikacji potencjalnych cech molekularnych istotnych dla zaobserwowanego związku oraz priorytetyzacji celów do późniejszych badań eksperymentalnych.
W związku z obecnym brakiem wiedzy w tym zakresie, przeprowadziliśmy badanie przekrojowe z wykorzystaniem danych z bazy NHANES, aby zbadać związek między spożyciem witaminy B12 a DKD, kontrolując szeroki zakres potencjalnych czynników zakłócających. Równolegle przeanalizowano zestawy danych transkrypomicznych DKD w celu zidentyfikowania genów o różnej ekspresji, które następnie zestawiono z genami związanymi z witaminą B12, aby wytypować cząsteczki kandydackie potencjalnie istotne dla DKD. To zintegrowane podejście może dostarczyć dalszych informacji na temat związku między witaminą B12 a DKD.
Protokół
Niniejsze badanie stanowiło wtórną analizę publicznie dostępnych i zanonimizowanych danych NHANES i nie obejmowało rekrutacji nowych uczestników, interwencji ani gromadzenia danych umożliwiających identyfikację osób. W związku z tym do przeprowadzenia niniejszej analizy nie była wymagana dodatkowa świadoma zgoda.
Populacja badawcza i wybór uczestników
Krajowe Badanie Egzaminacyjne Zdrowia i Żywienia (NHANES) wykorzystuje złożony, wieloetapowy probabilistyczny schemat doboru próby w celu zgromadzenia reprezentatywnych w skali kraju danych dotyczących zdrowia i żywienia populacji USA.
Wstępnie rozważono dane od 39 156 uczestników z czterech cykli NHANES (2011–2012, 2013–2014, 2015–2016 oraz 2017–2018). Uczestników wykluczono, jeśli spełnili którekolwiek z następujących kryteriów: (1) wiek < 18 lat; (2) brak danych dotyczących spożycia witaminy B12 w diecie; (3) niekompletne informacje niezbędne do oceny cukrzycy, w tym zgłoszony w wywiadzie wywiad w kierunku cukrzycy, poziom hemoglobiny glikowanej (HbA1c) lub poziom glukozy w plazmie na czczo (FPG); lub (4) niekompletne informacje niezbędne do oceny choroby nerek, w tym stosunek albumin do kreatyniny w moczu (ACR) lub szacowany współczynnik filtracji kłębuszkowej (eGFR) (Rysunek 1). Po tych wykluczeniach do niniejszej analizy włączono 8 218 uczestników z kompletem wymaganych danych.
Definicja DM, CKD i DKD
Zgodnie z kryteriami ustalonymi przez American Diabetes Association oraz wcześniejszymi badaniami, rozpoznanie DM postawiono na podstawie następujących czynników: (1) wcześniejszej diagnozy medycznej, (2) poziomu FPG ≥ 7.0 mmol/L, (3) poziomu HbA1c ≥ 6.5% lub (4) zgłoszonego przez pacjenta stosowania insuliny lub leków przeciwcukrzycowych. CKD zidentyfikowano20,21 u uczestników z ACR ≥ 30 mg/g lub eGFR (eGFR = 175 × (serum creatinine in mg/dL)-1.154 × (age in years)-0.203 x (0.742 if female) x (1.21 if black)) < 60 mL/min/1.73 m2. DKD zdefiniowano jako jednoczesne występowanie DM i CKD20. Uczestników spełniających oba kryteria DM i CKD zaklasyfikowano do grupy DKD, natomiast osoby, które nie spełniały obu kryteriów jednocześnie, przypisano do grupy Non-DKD. Grupa Non-DKD obejmowała zatem uczestników z DM bez CKD, uczestników z CKD bez DM oraz uczestników bez DM i CKD.
Zmienne współzależne
W niniejszym badaniu uwzględniono współzmienne, które mogły wpływać na związek między witaminą B12 a DKD. Zmienne demograficzne obejmowały wiek, płeć, rasę/pochodzenie etniczne, poziom wykształcenia, stosunek ubóstwa do dochodu (PIR), stan cywilny, spożycie alkoholu, palenie tytoniu, BMI, aktywność fizyczną (PA) oraz obecność nadciśnienia tętniczego i hiperlipidemii. Do analizy włączono uczestników w wieku 18 lat i więcej, których podzielono na dwie grupy wiekowe: osoby młode i w średnim wieku (18– < 60 lat) oraz osoby starsze (≥ 60 lat). Płeć sklasyfikowano jako męską lub żeńską. Klasyfikacje etniczne obejmowały: Meksykanów z USA, inne osoby pochodzenia hiszpańskiego, białych niehiszpańskojęzycznych, czarnych niehiszpańskojęzycznych oraz inne/wielorasowe. Poziom wykształcenia podzielono na trzy stopnie: poniżej szkoły średniej, absolwent szkoły średniej oraz studia wyższe lub wyższe. PIR podzielono na trzy kategorie: < 1,5, 1,5–3,49 oraz ≥ 3,521. Stan cywilny określono jako: w związku małżeńskim/zamieszkały z partnerem, nigdy nieżonaty/niezamężna lub wdowiec/wdowa/rozwiedziony/rozwiedziona. Status palenia podzielono na trzy grupy: aktualni palacze (palący codziennie i sporadycznie), byli palacze (osoby, które wypaliły > 100 papierosów w ciągu życia, ale już nie palą) oraz osoby nigdy niepalące (osoby, które wypaliły < 100 papierosów w ciągu życia). Status spożycia alkoholu podzielono na trzy kategorie: spożycie wysokie (kobiety: > 3 drinki dziennie; mężczyźni: > 4 drinki dziennie), spożycie umiarkowane (kobiety: 2 drinki dziennie; mężczyźni: 3 drinki dziennie) oraz spożycie niskie (kobiety: < 2 drinki dziennie; mężczyźni: < 3 drinki dziennie)22. Wartości BMI przypisano do przedziałów: < 25 kg/m2, 25–29,9 kg/m2 oraz ≥ 30 kg/m2. Poziomy PA skategoryzowano jako niskie (< 600 MET-min/tydzień), umiarkowane (od 600 do < 3000 MET-min/tydzień) i wysokie (≥ 3000 MET-min/tydzień). Hiperlipidemię potwierdzono na podstawie następujących kryteriów (spełnienie jednego z poniższych): (1) poziom cholesterolu całkowitego (TC) ≥ 200 mg/dL; (2) poziom triglicerydów całkowitych (TG) ≥ 150 mg/dL; (3) mężczyźni: poziom lipoprotein o wysokiej gęstości (HDL) < 40 mg/dL; kobiety: poziom HDL < 50 mg/dL; (4) poziom lipoprotein o niskiej gęstości (LDL) ≥ 130 mg/dL; lub (5) stosowanie leków przeciw hiperlipidemicznych.
Ponadto uwzględniono wskaźniki biochemiczne oraz spożycie z dietą, w tym stosunek albumin do kreatyniny w moczu (ACR), kwas moczowy w surowicy (μmol/L), eGFR (mL/min/1.73m2), kreatyninę w surowicy (Scr), azot moczowy we krwi (BUN), TC i TG w surowicy, alaninaminotransferazę w surowicy (ALT), asparaginianaminotransferazę w surowicy (AST) oraz składniki diety, takie jak spożycie energii (kcal), białka (g), węglowodanów (g), całkowitego tłuszczu (g), sodu (mg), potasu (mg) itp.
Zmienna niezależna
Spożycie witaminy B12 w diecie zostało wykorzystane jako główna zmienna ekspozycji. Dane dotyczące spożycia składników odżywczych pobrano z plików NHANES Total Nutrient Intake, które podsumowują dzienne spożycie składników odżywczych z żywności i napojów. Nie uwzględniono spożycia witaminy B12 z suplementów diety. Do analizy włączono wyłącznie uczestników z poprawnymi danymi z wywiadów żywieniowych dla obu dni, a średnie spożycie witaminy B12 z tych dwóch dni obliczono i wyrażono w μg/day. Wynikowe spożycie witaminy B12 w diecie podzielono na kwartyle (Q1–Q4) na potrzeby głównych analiz wielowymiarowych.
Źródła danych i gromadzenie zestawów genów
Zbiory danych dotyczących ekspresji w DKD GSE30528 i GSE30529 pobrano z bazy danych Gene Expression Omnibus (GEO). Oba zbiory danych zostały wygenerowane na platformie GPL571. GSE30528 obejmował 9 próbek kłębuszków nerkowych z DKD oraz 13 próbek kłębuszków nerkowych z grupy kontrolnej, natomiast GSE30529 obejmował 10 próbek kanalików nerkowych z DKD oraz 12 próbek kanalików nerkowych z grupy kontrolnej. Dla obu zbiorów danych z mikromacierzy bezpośrednio z GEO pobrano dane o ekspresji znormalizowane metodą RMA i poddane transformacji log2. Identyfikatory sond przypisano do symboli genów zgodnie z plikiem adnotacji platformy GPL571. W przypadku przypisania wielu sond do tego samego genu, do reprezentacji ekspresji na poziomie genu wykorzystano ich średnią wartość ekspresji.
W celu walidacji genów kandydackich dodatkowo uwzględniono zbiór danych RNA-seq GSE142025. Dane ekspresji TPM pobrano z bazy GEO i poddano transformacji log2 przed dalszą analizą. Adnotację genów wykonano przy użyciu adnotacji referencyjnego genomu hg19. Ponieważ każdy zbiór danych analizowano niezależnie, a macierze ekspresji z różnych zbiorów nie były bezpośrednio łączone, nie zastosowano korekty efektu seryjnego (batch-effect) między zbiorami danych.
Łącznie 716 genów związanych z kobalaminą (witaminą B12) pobrano z bazy danych GeneCards 13 marca 2026 r., używając słowa kluczowego „COBALAMIN”. Nie zastosowano żadnego progu punktowego istotności ani dodatkowych kryteriów filtrowania, a wszystkie 716 pobranych genów zachowano jako zestaw genów związanych z witaminą B12.
Analiza ekspresji różnicowej i wzbogacenia funkcjonalnego
Analizę różnicowej ekspresji między próbkami z DKD a próbkami prawidłowymi przeprowadzono przy użyciu pakietu R „limma” (wersja 3.56.2)23, a geny różnicowo ekspresjonowane (DEGs) zidentyfikowano na podstawie |log2FC| > 1 oraz współczynnika fałszywych odkryć (FDR) < 0,05. W celu zidentyfikowania genów kandydackich związanych z metabolizmem witaminy B12, wykorzystano pakiet R ggvenn (wersja 0.1.19) do przeprowadzenia analizy przecięcia między zidentyfikowanymi DEG a zestawem genów związanych z witaminą B12 pobranym z bazy danych GeneCards. Wspólne geny zwizualizowano za pomocą diagramu Venna i zachowano jako geny kandydackie do dalszych analiz. Następnie przeprowadzono analizę wzbogacenia funkcjonalnego DEG przy użyciu pakietu R „clusterProfiler” (wersja 4.8.3)24, obejmującą terminy Gene Ontology (GO) (proces biologiczny, funkcja molekularna i komponent komórkowy) oraz szlaki Kyoto Encyclopedia of Genes and Genomes (KEGG). Terminy wzbogacenia z dostosowaną wartością p-value < 0,05 uznano za statystycznie istotne.
Analiza wzbogacenia zestawów genów (GSEA)
W zestawie danych GSE30528 próbki podzielono na P2RY14wysoki i P2RY14-grupy niskie zgodnie z medianą P2RY14 poziom ekspresji. Następnie przeprowadzono analizę ekspresji różnicowej pomiędzy dwiema grupami, a wszystkie geny uszeregowano w kolejności malejącej zgodnie z otrzymanymi wartościami logFC. Następnie wykonano analizę GSEA przy użyciu pakietu R clusterProfiler (wersja 4.8.3)24Zbiory genów GO i KEGG pozyskano za pomocą pakietu msigdbr z bazy danych MSigDB (wersja v2025.1.Hs). Wzbogacone zbiory genów z dostosowaną wartością p < Wartości p < 0,05 uznano za istotne statystycznie.
Sieci oddziaływań białko-białko (PPI)
Analizę powiązań funkcjonalnych białek oraz sieci PPI przeprowadzono z wykorzystaniem bazy danych STRING (wersja 11.0) (https://string-db.org/)25z wyborem *Homo sapiens* jako organizmu i minimalnym wynikiem ufności interakcji wynoszącym 0,4. Powstałą sieć PPI zwizualizowano za pomocą oprogramowania Cytoscape26Dodatkowo, te same 20 nakładających się genów kandydatów wprowadzono do platformy internetowej GeneMANIA w celu dalszej charakterystyki ich powiązań funkcjonalnych. GeneMANIA zintegrowała wiele rodzajów dowodów, w tym koekspresję genów, oddziaływania fizyczne, oddziaływania genetyczne, wspólne domeny białkowe oraz informacje o szlakach, przy wyborze Homo sapiens jako organizmu i ustawieniu pozostałych parametrów na wartości domyślne.
Przesiewowe badanie interakcji lek–cel
W celu zidentyfikowania potencjalnych związków związanych z P2RY14, informacje o lekach i ich celach terapeutycznych pobrano z bazy danych GeneCards, co pozwoliło na wyłonienie pięciu kandydatów. Następnie kandydaci ci zostali zweryfikowani w bazie danych DGIdb. W obu bazach zidentyfikowano związek MC-1 (DrugBank ID: DB05315; PubChem CID: 1051), który został zatem wybrany do dalszej eksploracyjnej analizy dokowania molekularnego.
Analiza dokowania molekularnego
Aby zbadać potencjalny sposób wiązania między MC-1 a P2RY14, przeprowadzono dokowanie molekularne z wykorzystaniem platformy online CB-Dock2, która integruje detekcję kawern z silnikiem dokującym AutoDock Vina. Trójwymiarową strukturę MC-1 (PubChem CID: 1051) pobrano z bazy PubChem, a przewidywany model trójwymiarowy P2RY14 uzyskano z bazy AlphaFold Protein Structure Database (AF-Q15391-F1-model_v4). Średnia wartość wskaźnika pLDDT dla modelu P2RY14 wynosiła 87,12, natomiast lokalna wartość pLDDT dla przewidywanego regionu kieszeni wiążącej była > 90, co wskazuje na wysoką wiarygodność lokalnie przewidzianej struktury. Zastosowano strategię ślepego dokowania sterowanego kawernami. Poszukiwano potencjalnych kawern wiążących w całej strukturze P2RY14 i oceniono pięć kawern o największych przewidywanych objętościach. Podczas przygotowania receptora i liganda dodano atomy wodoru, aby przybliżyć stany protonowania w warunkach fizjologicznych (około pH 7,4). Receptor potraktowano jako sztywny, natomiast ligand jako elastyczny, dopuszczając rotację wiązań. Przeprowadzono osiem niezależnych serii dokowania. Pozę z najniższą wartością Vina score wybrano jako reprezentatywny przewidywany sposób wiązania. Powstały kompleks receptor–ligand zwizualizowano i przeanalizowano przy użyciu oprogramowania Discovery Studio (wersja 4.5).
Analiza statystyczna
Z uwagi na złożony, wieloetapowy, stratyfikowany probabilistyczny plan doboru próby w badaniu NHANES, we wszystkich analizach opartych na danych NHANES zastosowano odpowiednie wagi badawcze, strata oraz podstawowe jednostki próbkowania (PSU). Ponieważ witamina B12 spożycie obliczono na podstawie dwudniowego wywiadu żywieniowego, wykorzystując dwudniową wagę próby żywieniowej (WTDR2D). Dla czterech połączonych cykli NHANES (2011–2018) 8-letnią wagę próby żywieniowej obliczono jako WTDR2D/4, uwzględniając zmienne SDMVSTRA i SDMVPSU w celu skorygowania warstwowania i grupowania. Zmienne ciągłe przedstawiono jako średnią ± odchylenie standardowe (SD), a zmienne kategoryczne jako liczby i procenty. Różnice między grupami oceniano za pomocą ważonych testów t oraz ważonych testów chi-kwadrat. Wieloczynnikową regresję logistyczną zastosowano do oceny związku między witaminą B12 spożycie i DKD. Model 1 nie był korygowany; Model 2 był korygowany o wiek, płeć, rasę/pochodzenie etniczne, stan cywilny oraz poziom wykształcenia; a Model 3 był korygowany o wszystkie zmienne towarzyszące, w tym całkowite spożycie energii i inne zmienne dietetyczne. Wszystkie analizy regresji uwzględniały WTDR2D/4, SDMVSTRA oraz SDMVPSU. Witaminy B12 kwartyle spożycia (Q1–Q4) zastosowano jako główną ekspozycję, przy czym ciągły poziom witaminy B12 spożycie przeanalizowano dodatkowo jako ekspozycję uzupełniającą. Analizy w podgrupach przeprowadzono z uwzględnieniem wieku, płci, BMI, eGFR, ACR, nadciśnienia tętniczego oraz hiperlipidemii. W celu oceny potencjalnej nieliniowości przeprowadzono analizę za pomocą ograniczonych splajnów sześciennych (RCS), wykorzystując w pełni skorygowany Model 3. Cztery węzły rozmieszczono na poziomie 5., 35., 65. i 95. percentyla witaminy B12 pobór, z 3.24 μg/day wykorzystano jako wartość odniesienia w prezentacji graficznej. Wartość odniesienia ta została wyprowadzona z późniejszej eksploracyjnej analizy punktów przegięcia i nie była interpretowana jako klinicznie zalecany poziom spożycia. Analizy RCS uwzględniały również WTDR2D/4, SDMVSTRA oraz SDMVPSU, a nieliniowość oceniano za pomocą testu Walda. W przypadku wykrycia istotnej nieliniowości, potencjalne punkty przegięcia identyfikowano przy użyciu procedury rekurencyjnego wyszukiwania w połączeniu z minimalnym kryterium informacyjnym Akaike (AIC), a następnie przeprowadzano analizę regresji kawałkowej trójsegmentowej. Analizy wrażliwości wykonano przy użyciu alternatywnych specyfikacji RCS z trzema i pięcioma węzłami.27Przeprowadzono analizę krzywej ROC w celu wstępnej oceny zdolności dyskryminacyjnej P2RY14, przy czym dla wartości AUC podano 95% przedziały ufności. A wartość p < Wartość 0,05 uznano za statystycznie istotną. Wszystkie analizy statystyczne przeprowadzono przy użyciu oprogramowania R (wersja 4.4.1).
Wyniki
Charakterystyka wyjściowa
W badaniu wzięło udział łącznie 8 218 uczestników z NHANES 2011–2018, z czego 623 zaklasyfikowano do grupy z DKD, a 7 595 do grupy bez DKD. Istotne różnice między grupami DKD i Non-DKD zaobserwowano w zakresie wieku, płci, rasy/pochodzenia etnicznego, stanu cywilnego, poziomu wykształcenia, PIR, BMI, ciśnienia tętniczego, nadciśnienia, spożycia alkoholu, statusu palenia tytoniu, spożycia witaminy B12 oraz spożycia pokarmów (wszystkie p < 0,05). Istotne różnice odnotowano również w przypadku ACR, eGFR, Scr, BUN, TC oraz TG (Tabela 1).
Istotne różnice pomiędzy kwartylami spożycia witaminy B12 zaobserwowano w zakresie poziomu wykształcenia, nadciśnienia tętniczego, stanu DKD oraz spożycia energii. W przeciwieństwie do tego, nie odnotowano istotnych różnic między kwartylami w odniesieniu do wieku, stanu cywilnego, BMI, ciśnienia tętniczego, spożycia alkoholu, eGFR, ACR, poziomu kwasu moczowego w surowicy, Scr lub TG (Tabela 2).
Związek między witaminą B12 a DKD
Spożycie witaminy B12 podzielono na kwartyle (Q1–Q4), a wyniki wieloczynnikowych analiz regresji logistycznej przedstawiono w Tabeli 3. W pełnie skorygowanym Modelu 3 uczestnicy w najwyższym kwartylu spożycia witaminy B12 (Q4) mieli istotnie niższe szanse na wystąpienie DKD niż osoby w najniższym kwartylu (Q1) (OR = 0,70, 95% CI: 0,50–0,97, p = 0,034), podczas gdy dla Q2 (OR = 1,14, 95% CI: 0,85–1,53, p = 0,386) lub Q3 (OR = 0,94, 95% CI: 0,69–1,28, p = 0,684) nie zaobserwowano istotnych powiązań. Co więcej, trend liniowy w pełnie skorygowanym modelu nie osiągnął istotności statystycznej (p dla trendu = 0,086), mimo że ogólny kierunek powiązania był odwrotny. Wyniki te sugerują, że wyższe spożycie witaminy B12, szczególnie w najwyższym kwartylu, wiązało się z niższymi szansami na wystąpienie DKD, jednak wyniki nie potwierdzają istnienia stabilnej liniowej zależności dawka-odpowiedź między spożyciem witaminy B12 a DKD.
Analizy podgrup związku między witaminą B12 a DKD
Przeprowadzono analizy w podgrupach, aby zbadać, czy związek między spożyciem witaminy B12 a DKD był spójny w zależności od różnych cech uczestników. W Modelu 1 uczestnicy w najwyższym kwartylu spożycia witaminy B12 (Q4) mieli istotnie niższe szanse na wystąpienie DKD niż osoby w grupie Q1, zarówno w podgrupie mężczyzn, jak i kobiet (p < 0,05; Tabela 4). Związki w podgrupach ACR były bardziej niejednorodne. Wśród uczestników z ACR < 30 mg/g zaobserwowano istotne związki dla niektórych pośrednich kwartyli spożycia witaminy B12, natomiast wzorzec ten uległ osłabieniu po stratyfikacji według wyższych poziomów ACR. W podgrupach eGFR nie zaobserwowano istotnych związków.
Nieliniowa zależność między witaminą B12 a DKD
W pełni skorygowana analiza RCS wykazała istotną nieliniową zależność między spożyciem witaminy B12 a DKD (Rycina 2, p dla nieliniowości = 0,037). W modelu RCS zastosowano cztery węzły zlokalizowane na 5., 35., 65. i 95. percentylu rozkładu spożycia witaminy B12, przyjmując wartość 3,24 μg/day jako wartość referencyjną. Następnie analiza punktów przełamania zidentyfikowała dwa oparte na danych punkty przełamania przy 3,24 μg/day (95% CI: 2,86–3,62) oraz 8,36 μg/day (95% CI: 7,52–9,20), dzieląc spożycie witaminy B12 na trzy zakresy. Dla spożycia witaminy B12 < 3,24 μg/day nie zaobserwowano istotnej zależności z DKD (OR = 1,07, p = 0,575). W zakresie od 3,24 do 8,36 μg/day spożycie witaminy B12 było odwrotnie skorelowane z DKD (OR = 0,87, p = 0,025). Dla spożycia > 8,36 μg/day nie zaobserwowano istotnej zależności (OR = 1,00, p = 0,995) (Tabela 5). Wyniki te były zgodne z wzorcem nieliniowym, przy czym istotna odwrotna zależność została zaobserwowana jedynie w średnim zakresie spożycia. Aby ocenić wiarygodność tych wyników, przeprowadzono analizy wrażliwości z wykorzystaniem alternatywnych specyfikacji RCS z trzema i pięcioma węzłami. Zaobserwowano podobne ogólne wzorce zależności, z istotnymi statystycznie zależnościami ogólnymi w Modelach 1–3 dla obu specyfikacji węzłów, przy czym modele pięciowęzłowe dodatkowo potwierdziły nieliniową relację (Rycina uzupełniająca 1).
Identyfikacja potencjalnych genów związanych z witaminą B12 w DKD
W zbiorze danych GSE30528 zidentyfikowano 493 DEG pomiędzy próbkami z DKD a próbkami prawidłowymi, w tym 126 genów o zwiększonej ekspresji i 367 genów o zmniejszonej ekspresji (|log₂FC| > 1, FDR < 0,05; Rysunek 3A,B, Tabela uzupełniająca 1). Analiza ścieżek KEGG wykazała istotne wzbogacenie tych DEG w ścieżkach oddziaływań macierzy zewnątrzkomórkowej (ECM) z receptorami, adhezji ogniskowej, sygnalizacji integrynowej oraz regulacji cytoszkieletu aktynowego (Rysunek 3C, Tabela uzupełniająca 2). Analiza wzbogacenia GO dodatkowo wskazała, że DEG były przede wszystkim powiązane z ECM zawierającą kolagen, rozwojem kłębuszków nerkowych, adhezją ogniskową oraz rozwojem nefronów (Rysunek 3D, Tabela uzupełniająca 2).
Analiza przecięcia genów DEGs oraz zestawu genów związanych z witaminą B12 pozwoliła zidentyfikować 20 nakładających się genów kandydackich (Rysunek 3E). Geny te zostały następnie wykorzystane do skonstruowania sieci PPI przy użyciu bazy danych STRING, z filtrowaniem oddziaływań do minimalnego wyniku ufności wynoszącego 0,4. Powstała sieć składała się z 11 węzłów i 20 krawędzi, reprezentujących odpowiednio białka oraz ich oddziaływania (Rysunek 3F). Relacje pomiędzy 20 genami kandydackimi zostały dodatkowo zwizualizowane za pomocą programu GeneMANIA (Rysunek 3G).
Wstępna charakterystyka P2RY14 jako kandydującego genu związanego z witaminą B12 w DKD
W oparciu o zaobserwowaną korelację między spożyciem witaminy B12 a stanem DKD, następnie podjęto próbę zidentyfikowania kluczowych genów związanych z witaminą B12, które są zaangażowane w patogenezę DKD, wykorzystując analizę transkrypcyjną. spośród 20 wspólnych genów kandydackich, dalej porównano wzorce ich ekspresji w różnych zbiorach danych dotyczących DKD. W zbiorach danych GSE30528 i GSE30529 ekspresja P2RY14 była istotnie podwyższona w próbkach DKD w porównaniu z grupami kontrolnymi (Ryc. 4A,B). P2RY14 koduje receptor sprzężony z białkiem G i według doniesień bierze udział w chemotaksji komórek odpornościowych, reorganizacji cytoszkieletu, odpowiedziach zapalnych oraz stresie oksydacyjnym28,29. Jednak jego rola w DKD nie została jeszcze bezpośrednio zbadana. Biorąc pod uwagę spójny wzrost ekspresji w niezależnych zbiorach danych DKD oraz potencjalne znaczenie biologiczne, P2RY14 został wybrany do dalszej walidacji i analiz funkcjonalnych. Następnie przeprowadzono analizę krzywej ROC, aby wstępnie ocenić zdolność dyskryminacyjną P2RY14. W zbiorze danych odkrywczym GSE30528 AUC wyniosło 0,923 (95% CI: 0,807–1,000), natomiast we wstępnym zewnętrznym zbiorze walidacyjnym GSE30529 AUC wyniosło 0,883 (95% CI: 0,744–1,000). W dodatkowym zbiorze walidacyjnym GSE142025 AUC wyniosło 0,663 (95% CI: 0,478–0,847), co wskazuje na ograniczoną zdolność dyskryminacyjną (Ryc. 4C–E). Podsumowując, wyniki te dostarczają wstępnych dowodów na potencjalną wartość dyskryminacyjną P2RY14, choć jego wydajność diagnostyczna wymaga dalszej walidacji w większych, niezależnych kohortach.
Aby zbadać funkcje biologiczne i szlaki powiązane z P2RY14 ekspresja w DKD, próbki z GSE30528 zostały podzielone na P2RY14-wysoki i P2RY14– grupy o niskiej ekspresji, zgodnie z medianą poziomu ekspresji P2RY14Przeprowadzono analizę różnicowej ekspresji między dwiema grupami. Następnie wykonano analizy wzbogacenia GO i KEGG w celu scharakteryzowania funkcji biologicznych i szlaków związanych z ekspresją P2RY14. Analiza wzbogacenia GO wykazała, że P2RY14 wykazano związek z macierzą zewnątrzkomórkową (ECM) zawierającą kolagen, rozwojem kłębków nerkowych, składnikami strukturalnymi ECM oraz rozwojem nerek (Rysunek 4F, Tabela uzupełniająca 3). Analiza KEGG dodatkowo wskazała na zaangażowanie P2RY14 w oddziaływaniach ECM–receptor, adhezji ogniskowej oraz kaskadach dopełniacza i krzepnięcia (Rycina 4G, Tabela uzupełniająca 3).
Dodatkowo, analiza GSEA wykazała, że szlaki sygnalizacyjne NF-κB oraz TNF były istotnie wzbogacone w grupie z wysoką ekspresją P2RY14 , co sugeruje, że wysoka ekspresja P2RY14 może być związana z sygnalizacją zapalną w DKD (Rysunek 4H, Tabela uzupełniająca 3).
Eksploracyjne dokowanie molekularne MC-1 z P2RY14
Za pomocą przeglądu baz GeneCards i DGIdb zidentyfikowano pięć związków kandydackich powiązanych z P2RY14, z czego do wstępnej analizy dokowania molekularnego wybrano MC-1 (Rycina 5A). Przyjmując MC-1 jako ligand i P2RY14 jako receptor, analiza dokowania przewidziała potencjalną pozę wiązania MC-1 w obrębie kieszeni kandydackiej P2RY14, z wynikiem Vina wynoszącym −6.0 kcal/mol. Przewidywana poza obejmowała oddziaływania z resztami Tyr, Lys, Asn, Asp i Glu oraz utworzenie siedmiu wiązań wodorowych (Rycina 5B–D).
Oświadczenie o dostępności danych
Dane wykorzystane w niniejszym badaniu są ogólnodostępne. Dane NHANES z cykli badawczych 2011–2018 są dostępne w National Center for Health Statistics. Zbiory danych transkrypcyjnych GSE30528, GSE142025 oraz GSE30529 są ogólnodostępne w bazie danych Gene Expression Omnibus (GEO). Przetworzone wyniki różnicowej ekspresji, wzbogacenia funkcjonalnego oraz GSEA wygenerowane w tym badaniu znajdują się w Plikach Uzupełniających.
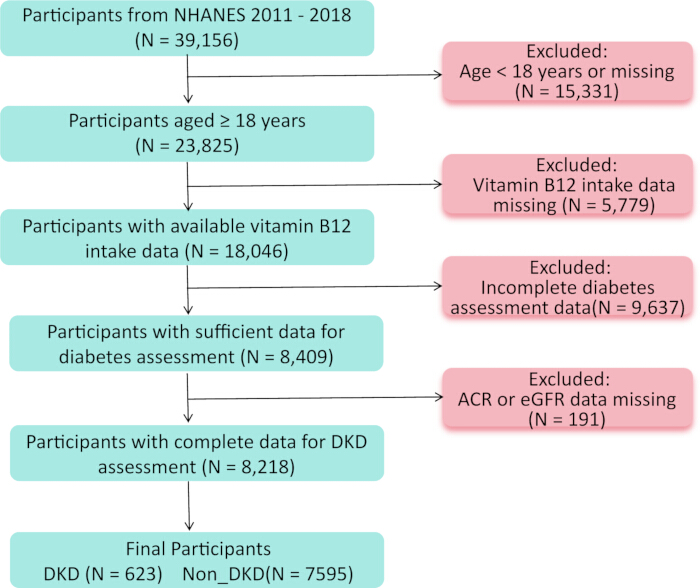
Rysunek 1: Schemat blokowy wyboru uczestników do analizy NHANES. Schemat przedstawia sekwencyjne kryteria wykluczenia zastosowane wobec uczestników cykli NHANES z lat 2011–2018 oraz końcową populację badawczą włączoną do analizy. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
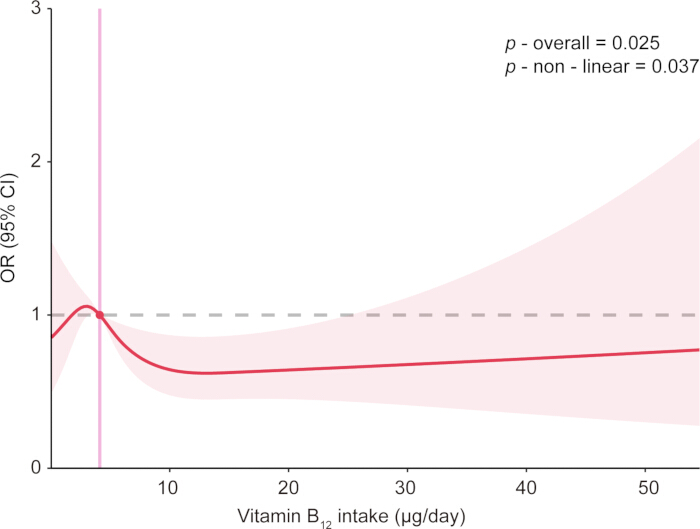
Rycina 2: Nieliniowy związek między spożyciem witaminy B12 a DKD z zastosowaniem modelu ograniczonego splotu sześciennego (restricted cubic spline).Linia ciągła reprezentuje szacowany iloraz szans dla DKD w zależności od spożycia witaminy B12 w diecie, a obszar zacieniowany reprezentuje 95% przedział ufności. Model został skorygowany o kowarianty uwzględnione w Modelu 3. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
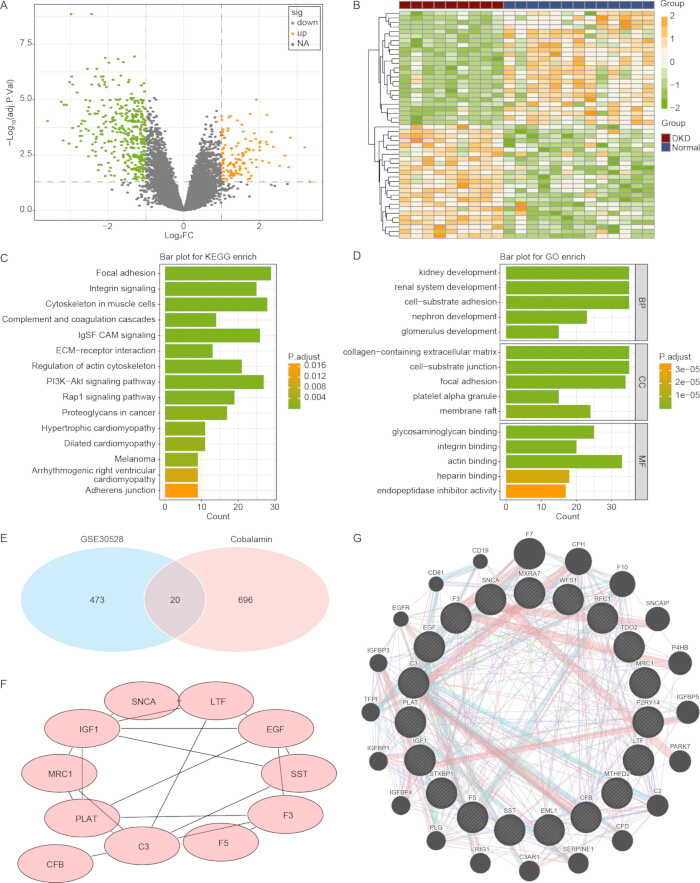
Rysunek 3: Identyfikacja potencjalnych genów związanych z witaminą B12 w DKD. (A,B) Wykres wulkaniczny oraz mapa ciepła przedstawiające profile ekspresji genów różnicowo wyrażonych (DEG) pomiędzy próbkami z cukrzycową chorobą nerek (DKD) a próbkami normalnymi w zbiorze danych GSE30528. (C,D) 15 najbardziej wzbogaconych ścieżek KEGG oraz terminów GO dla genów DEG. (E) Analiza krzyżowa między DEG a genami związanymi z witaminą B12. (F) Sieć oddziaływań białko-białko (PPI). (G) Sieć GeneMANIA dla 20 genów związanych z witaminą B12. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
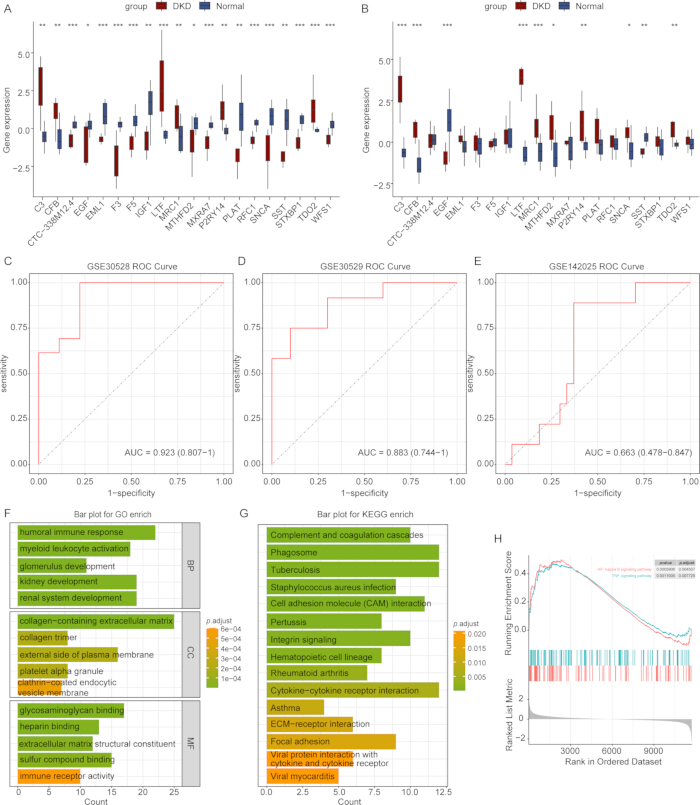
Rycina 4: Wstępna charakterystyka P2RY14 jako kandydującego genu związanego z witaminą B12 w DKD. (A,B) Wykresy pudełkowe przedstawiające poziomy ekspresji nakładających się genów kandydujących w próbkach DKD i normalnych kontrolach odpowiednio w zbiorach danych GSE30528 i GSE30529. (C–E) Analizy krzywej charakterystyki operacyjnej odbiornika (ROC) dla P2RY14 odpowiednio w zbiorach danych GSE30528, GSE30529 i GSE142025. (F) Analiza wzbogacenia Gene Ontology (GO). (G) Analiza wzbogacenia szlaków Kyoto Encyclopedia of Genes and Genomes (KEGG). (H) GSEA grup o wysokiej i niskiej ekspresji P2RY14 wykazująca wzbogacenie szlaków sygnalizacyjnych NF-κB i TNF w GSE30528. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
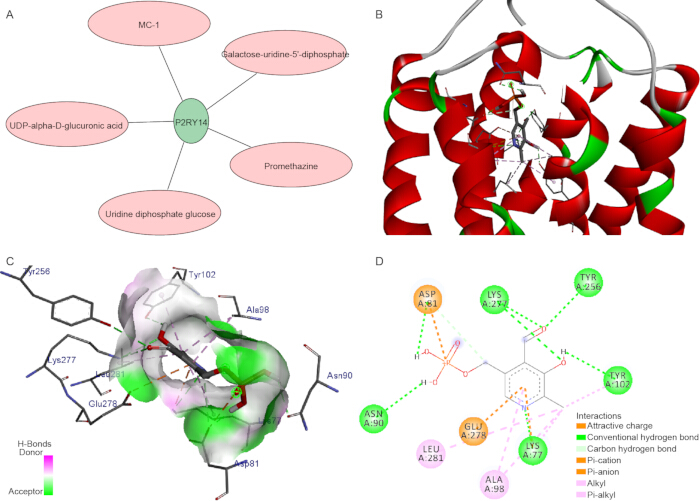
Rycina 5: Przesiewowe badanie interakcji lek–cel oraz eksploracyjna analiza dokowania molekularnego P2RY14. (A) Sieć interakcji lek–cel dla leków związanych z P2RY14. (B–D) Dokowanie molekularne MC-1 do białka P2RY14. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Tabela 1: Podstawowa charakterystyka populacji badawczej. Przedstawiono charakterystykę demograficzną, kliniczną, biochemiczną i dietetyczną uczestników w zależności od stanu DKD. Zmienne ciągłe i kategoryczne podsumowano przy użyciu analizy z wagami sondażowymi. Kliknij tutaj, aby pobrać tę tabelę.
Tabela 2: Podstawowe charakterystyki uczestników w podziale na kwartyle spożycia witaminy B12.Charakterystyki demograficzne, kliniczne, biochemiczne i dietetyczne populacji badawczej przedstawiono w podziale na kwartyle dietetycznego spożycia witaminy B12. Kliknij tutaj, aby pobrać tę tabelę.
Tabela 3: Związek między spożyciem witaminy B12 a statusem DKD u dorosłych w USA. Ilorazy szans (OR) i 95% przedziały ufności (CI) dla związku między dietetycznym spożyciem witaminy B12 a statusem DKD przedstawiono w modelach regresji logistycznej z progresywną korektą, przyjmując najniższy kwartyl spożycia witaminy B12 (Q1) jako grupę referencyjną. Kliknij tutaj, aby pobrać tę tabelę.
Tabela 4: Związek między spożyciem witaminy B12 a statusem DKD w analizach podgrup. Ilorazy szans (OR) i 95% przedziały ufności (CI) dla DKD przedstawiono w kwartylach spożycia witaminy B12, z podziałem na podgrupy według wieku, płci, BMI, eGFR, ACR, nadciśnienia tętniczego i hiperlipidemii, po skorygowaniu zgodnie z określonymi modelami. Kliknij tutaj, aby pobrać tę tabelę.
Tabela 5: Trzysegmentowa analiza regresji kawałkowej związku między spożyciem witaminy B12 a DKD. Zależności między spożyciem witaminy B12 w diecie a DKD przedstawiono dla trzech zakresów spożycia zdefiniowanych przez dwa punkty przegięcia wyznaczone na podstawie danych przy wartościach 3,24 i 8,36 μg/day. Kliknij tutaj, aby pobrać tę tabelę.
Rycina uzupełniająca 1: Analizy wrażliwości związku między spożyciem witaminy B12 w diecie a DKD z wykorzystaniem modeli ograniczonych kubaturowych funkcji sklejanych (restricted cubic spline). (A–C) Modele z trzema węzłami. (D–F) Modele z pięcioma węzłami. Linia ciągła reprezentuje szacowany OR, obszar zacieniowany reprezentuje 95% CI, a linia przerywana wskazuje OR = 1. Wartości p dla ogólnego związku i nieliniowości są przedstawione w każdym panelu.Kliknij tutaj, aby pobrać ten plik.
Tabela uzupełniająca 1: Geny różnicowo wyrażone pomiędzy próbkami z cukrzycową chorobą nerek (DKD) a próbkami prawidłowymi w zbiorze danych GSE30528.Wyniki różnicowej ekspresji dla genów zidentyfikowanych przy wartościach |log₂FC| > 1 i FDR < 0,05 przedstawiono obok zestawu genów związanych z kobalaminą, wykorzystanego do przesiewania genów kandydackich.Prosimy kliknąć tutaj, aby pobrać ten plik.
Materiały uzupełniające Table 2: Analiza wzbogacenia funkcjonalnego genów różnicowo wyrażonych w DKD. Przedstawiono wyniki wzbogacenia według ontologii genów (Gene Ontology, GO) oraz Kyoto Encyclopedia of Genes and Genomes (KEGG) dla genów różnicowo wyrażonych, zidentyfikowanych w zbiorze danych GSE30528.Kliknij tutaj, aby pobrać ten plik.
Tabela uzupełniająca 3 : Wyniki analizy wzbogacenia funkcjonalnego i analizy wzbogacenia zestawów genów powiązane z P2RY14 w zbiorze danych GSE30528. Przedstawiono wyniki GO, KEGG oraz GSEA wykorzystane do charakterystyki funkcji biologicznych i szlaków powiązanych z P2RY14.Prosimy kliknąć tutaj, aby pobrać ten plik.
Dyskusja
W tej reprezentatywnej dla całego kraju analizie przekrojowej przeprowadzonej wśród 8 218 dorosłych mieszkańców USA wykazano, że wyższe spożycie witaminy B12 wiązało się z niższym prawdopodobieństwem wystąpienia DKD, choć zależność ta nie miała prostego liniowego charakteru dawka-odpowiedź. U uczestników o wyższym spożyciu witaminy B12 odnotowano również tendencję do wyższego poziomu wykształcenia, niższą zapadalność na nadciśnienie tętnicze oraz DKD, a także większą podaż energii. Różnice te sugerują, że spożycie witaminy B12 może współwystępować z szerszymi uwarunkowaniami demograficznymi, zdrowotnymi i żywieniowymi, co należy uwzględnić przy interpretacji zaobserwowanej korelacji. Podsumowując, nasze wyniki potwierdzają istnienie związku między spożyciem witaminy B12 a statusem DKD.
Analiza oparta na kwartylach wykazała, że uczestnicy w Q4 mieli istotnie niższe prawdopodobieństwo wystąpienia DKD niż osoby w Q1, natomiast w przypadku Q2 lub Q3 nie zaobserwowano istotnych powiązań. Trend liniowy w obrębie kwartyli również nie był istotny statystycznie (p dla trendu = 0,086), co sugeruje, że zależność ta może nie odpowiadać prostemu liniowemu wzorcowi dawka-odpowiedź. Zgodnie z tym wynikiem, analiza RCS wykazała istotne nieliniowe powiązanie (p dla nieliniowości = 0,037). Następcza analiza punktów przełamania zidentyfikowała dwa oparte na danych punkty przełamania przy 3,24 i 8,36 μg/day. Istotna ujemna korelacja została zaobserwowana wyłącznie w zakresie pośrednim 3,24–8,36 μg/day, podczas gdy poniżej lub powyżej tego zakresu nie stwierdzono istotnych powiązań. Co ważne, punkty przełamania te zostały wyprowadzone z obecnego zbioru danych i powinny być traktowane jako eksploracyjne wartości statystyczne, a nie klinicznie ustanowione progi. W związku z tym przedział 3,24–8,36 μg/day nie powinien być interpretowany jako optymalny lub zalecany zakres spożycia bez zewnętrznej walidacji. Ogólnie rzecz biorąc, wyniki te wspierają potencjalnie nieliniowy związek między spożyciem witaminy B12 a DKD, zamiast stabilnej liniowej zależności dawka-odpowiedź.
Witaminy są niezbędnymi mikroskładnikami uczestniczącymi w wielu procesach metabolicznych i są wiązane ze zdrowiem kardiometabolicznym30,31. Wcześniejsze badania sugerowały również, że kilka witamin może mieć znaczenie w przebiegu cukrzycy i jej powikłań. Na przykład stwierdzono odwrotną korelację między poziomem witaminy B6 a cukrzycą i powikłaniami cukrzycowymi31, natomiast zaburzone poziomy witaminy D zgłaszano w przypadku DKD i nefropatii cukrzycowej32,33. Wyniki te podkreślają potencjalne znaczenie stanu zaopatrzenia w mikroskładniki w metabolicznych i nerkowych nieprawidłowościach związanych z cukrzycą oraz stanowią uzasadnienie dla dalszego badania związku między spożyciem witaminy B12 a DKD.
Badania epidemiologiczne dostarczyły niespójnych wyników dotyczących związku między statusem lub spożyciem witaminy B12 a wynikami związanymi z cukrzycą. W niedawnej analizie NHANES zgłoszono pozytywną korelację między czasem trwania cukrzycy a poziomem witaminy B12 w surowicy34. Z kolei badanie przeprowadzone w Ugandzie wykazało, że postępująca choroba nerek u pacjentów z T2DM wiązała się z niższym spożyciem witaminy B12 i wyższymi stężeniami homocysteiny35. Wu i wsp. donieśli ponadto, że łączna suplementacja kwasem foliowym i witaminą B12 u pacjentów z cukrzycą i nefropatią cukrzycową obniżyła poziomy homocysteiny i malondialdehydu w surowicy, zwiększyła aktywność tlenku azotu i dysmutazy ponadtlenkowej oraz zmniejszyła wydalanie mikroalbumin z moczem36. Inne badania zgłosiły również stosunkowo wysoką rozpowszechnienie niedoboru witaminy B12 wśród pacjentów z T2DM37,38,39,40,41. Zgodnie z przypuszczeniem, że status witaminy B12 może mieć znaczenie dla powikłań cukrzycowych, nasze badanie wykazało, że wyższe spożycie witaminy B12 w diecie wiązało się z niższym prawdopodobieństwem wystąpienia DKD.
Zaobserwowany odwrotny związek między spożyciem witaminy B12 a DKD może być biologicznie prawdopodobny, biorąc pod uwagę rolę witaminy B12 w metabolizmie homocysteiny, regulacji stresu oksydacyjnego, odpowiedziach zapalnych i komórkowym metabolizmie energetycznym42,43. Niedobór witaminy B12 był również wiązany z nieprawidłowościami metabolicznymi, a zaburzenie równowagi charakteryzujące się nadmiernym spożyciem folianów w połączeniu z niedoborem witaminy B12 może przyczyniać się do upośledzenia metabolizmu glukozy i T2DM44,45. Obserwacje te podkreślają znaczenie utrzymania odpowiedniego i zrównoważonego spożycia mikroskładników dla zdrowia metabolicznego. Zgodnie z tymi założeniami, w naszym badaniu stwierdzono, że wyższe spożycie witaminy B12 w diecie wiązało się z niższym prawdopodobieństwem wystąpienia DKD. Wskazane jest przeprowadzenie dalszych badań w celu wyjaśnienia zależności dawka-odpowiedź między spożyciem witaminy B12 a zdrowiem nerek u osób z cukrzycą, walidacji zakresów spożycia zaobserwowanych w niniejszym badaniu w niezależnych populacjach oraz ustalenia, czy suplementacja witaminą B12 jest istotna klinicznie w tej populacji.
Analiza transkryptomiczna pozwoliła dodatkowo zidentyfikować P2RY14 jako gen kandydujący powiązany z DKD. P2RY14 wykazywał stosunkowo wysokie wartości AUC w zestawach GSE30528 i GSE30529, podczas gdy jego zdolność różnicująca była bardziej umiarkowana w GSE142025. Ze względu na ograniczoną liczebność próbek, wyniki te należy uznać za wstępne i wymagają one walidacji w większych, niezależnych kohortach. Ponadto analizy wzbogacenia funkcjonalnego zasugerowały, że P2RY14 może być powiązany z organizacją ECM, adhezją ogniskową oraz rozwojem nerek, co uzasadnia dalsze badanie jego potencjalnej roli w DKD.
W szerszym ujęciu integracja populacyjnej epidemiologii żywieniowej z analizą transkryptomiczną dostarcza komplementarnych ram dla powiązania ekspozycji dietetycznych z molekularnymi cechami związanymi z chorobą. Takie podejście może ułatwić formułowanie hipotez w badaniach nad epidemiologią żywieniową oraz DKD i pomóc w ustaleniu priorytetów dla potencjalnych celów molekularnych do późniejszej walidacji eksperymentalnej. Niemniej jednak wyniki te mają charakter wstępny i nie potwierdzają użyteczności klinicznej, diagnostycznej ani terapeutycznej.
Głównym ograniczeniem niniejszego badania jest heterogeniczny skład grupy Non-DKD, która obejmowała uczestników o różnym statusie DM i CKD, zamiast być ograniczoną wyłącznie do osób z DM bez CKD. Pozostałe różnice w statusie cukrzycy, funkcji nerek i ogólnym stanie zdrowia mogły zatem wpłynąć na zaobserwowane powiązania. Ponadto, przekrojowy charakter badania uniemożliwia wyciąganie wniosków dotyczących relacji czasowych lub przyczynowych. W związku z tym wyniki epidemiologiczne należy interpretować jako powiązania na poziomie populacyjnym ze statusem DKD, a uzasadnione jest przeprowadzenie przyszłych badań prospektywnych koncentrujących się na osobach z cukrzycą. Co więcej, spożycie witaminy B12 w diecie zostało oszacowane na podstawie dwóch 24-godzinnych wywiadów żywieniowych, na które mógł wpłynąć codzienny zmienność diety oraz błąd przypomnienia, przez co mogą one nie odzwierciedlać w pełni nawykowego, długoterminowego spożycia witaminy B12. Mogło to wprowadzić pewien stopień błędu pomiaru ekspozycji. Należy również uznać kilka ograniczeń analiz transkryptomicznych i dokowania molekularnego. Dane z NHANES i GEO pochodziły z niezależnych populacji, a bezpośrednia regulacja P2RY14 przez witaminę B12 nie została oceniona eksperymentalnie. Nakładanie się DEG związanych z DKD i genów związanych z kobalaminą zostało wykorzystane do eksploracyjnego przesiewu kandydatów, a jego wzbogacenie ponad oczekiwania losowe nie zostało formalnie przetestowane. Zatem P2RY14 należy traktować jako kandydata generującego hipotezy, którego znaczenie biologiczne wymaga dalszej walidacji. Dodatkowo, przewidywana interakcja między MC-1 a P2RY14 opierała się wyłącznie na dokowaniu molekularnym i powinna być uznana za wstępną. Przyszłe badania obejmujące interwencję z witaminą B12, analizy funkcjonalne P2RY14 oraz bezpośrednie testy wiązania lub funkcjonalne testy receptorowe, takie jak powierzchniowy rezonans plazmonowy lub mikrotermeforeza, są niezbędne do dalszej oceny tych przewidywanych relacji.
Podsumowanie
Podsumowując, nasze badanie potwierdza związek między spożyciem witaminy B12 a występowaniem DKD, przy czym wyższe spożycie witaminy B12 wiąże się z niższym prawdopodobieństwem wystąpienia DKD i potencjalnie nieliniową zależnością. Analiza transkryptomiczna pozwoliła dodatkowo zidentyfikować P2RY14 jako kandydata do dalszych badań, który może być związany z DKD, podczas gdy eksploracyjne dokowanie molekularne przewidziało potencjalny tryb wiązania między P2RY14 a MC-1. Wyniki te stanowią podstawę do dalszych badań nad związkiem między spożyciem witaminy B12 a DKD, a także nad potencjalnym biologicznym znaczeniem P2RY14.
Oświadczenia
Autorzy nie deklarują żadnych konfliktów interesów.
Wkład autorów:
A.Z. napisał główną treść rękopisu. G.Z. i J.D. przygotowali ryciny i tabele. J.L. dokonał przeglądu i redakcji rękopisu. Wszyscy autorzy zapoznali się z treścią rękopisu.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Affymetrix Human Genome U133A 2.0 Array | Affymetrix; indeksowane przez NCBI GEO | https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi?acc=GPL571 | GPL571 (HG-U133A_2) |
| AlphaFold | Google DeepMind / EMBL-EBI | https://alphafold.ebi.ac.uk/ | / |
| AutoDock | Olson Laboratory, The Scripps Research Institute | https://autodock.scripps.edu/ | Wersja 4.2.6 (AutoDock 4.2.6) |
| autoReg | pakiet R | Wersja 0.3.3 (autoReg) | |
| CB-dock2 | / | http://183.56.231.194:8001/cb-dock2/index.php | CB-dock2 |
| clusterProfiler | Bioconductor; Yu et al. | Wersja 4.8.3 (PMID: 22455463) | |
| Cytoscape | Cytoscape Consortium | https://cytoscape.org/ | Wersja 3.7.2 (PMID: 14597658) |
| DGldb | / | https://dgib.org/ | DGldb |
| GeneMANIA | zespół GeneMANIA | http://genemania.org/ | GeneMANIA |
| Gene Expression Omnibus (GEO) | National Center for Biotechnology Information (NCBI), U.S. National Library of Medicine | https://www.ncbi.nlm.nih.gov/geo/ | GEO |
| GSE30528 | NCBI GEO | https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi?acc=GSE30528 | Publiczna seria GEO (GSE30528; BioProject PRJNA154757) |
| GSE30529 | NCBI GEO | https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi?acc=GSE30529 | Publiczna seria GEO (GSE30529) |
| GeneCards – The Human Gene Database | Weizmann Institute of Science / LifeMap Sciences | https://www.genecards.org/ | GeneCards |
| GSEA / MSigDB | / | https://www.gsea-msigdb.org/gsea/index.jsp | v2025.1.Hs (GSEA / MSigDB) |
| Gene Ontology (GO) | Gene Ontology Consortium | https://geneontology.org/ | GO |
| Kyoto Encyclopedia of Genes and Genomes (KEGG) | Kanehisa Laboratories | https://www.kegg.jp/ | KEGG |
| limma | Bioconductor; Ritchie et al. | Wersja 3.56.2 (PMID: 25605792) | |
| National Health and Nutrition Examination Survey (NHANES) | National Center for Health Statistics (NCHS), Centers for Disease Control and Prevention (CDC) | http://www.cdc.gov/nchs/nhanes/index.htm | 2011–2018 (cztery cykle 2011–2012; 2013–2014; 2015–2016; 2017–2018) |
| nhanesA | pakiet R | Wersja 1.0 (nhanesA) | |
| pROC | pakiet R | Wersja 1.18.5 (pROC) | |
| PubChem | NCBI, U.S. National Library of Medicine | https://pubchem.ncbi.nlm.nih.gov/ | PubChem |
| rms | pakiet R | Wersja 8.1-0 (rms) | |
| Oprogramowanie R | R Foundation for Statistical Computing | https://www.r-project.org/ | Wersja 4.4.1 |
| segmented | pakiet R | Wersja 2.1-4 (segmented) | |
| STRING | STRING Consortium | https://string-db.org/ | Wersja 11.0 (PMID: 30476243) |
| survey | pakiet R | Wersja 4.4-8 (survey; svydesign(); svyglm()) | |
| tableone | pakiet R | tableone; svyCreateTableOne() |
Bibliografia
- Forst T, et al. New strategies to improve clinical outcomes for diabetic kidney disease. BMC Med. 2022;20(1):337.
- Zheng Y, Ley SH, Hu FB. Global aetiology and epidemiology of type 2 diabetes mellitus and its complications. Nat Rev Endocrinol. 2018;14(2):88-98.
- Zhang Y, Sun X, Icli B, Feinberg MW. Emerging Roles for MicroRNAs in Diabetic Microvascular Disease: Novel Targets for Therapy. Endocr Rev. 2017;38(2):145-68.
- Lyssenko V, Vaag A. Genetics of diabetes-associated microvascular complications. Diabetologia. 2023;66(9):1601-13.
- Valencia WM, Florez H. How to prevent the microvascular complications of type 2 diabetes beyond glucose control. BMJ. 2017;356:i6505.
- Hung PH, Hsu YC, Chen TH, Lin CL. Recent Advances in Diabetic Kidney Diseases: From Kidney Injury to Kidney Fibrosis. Int J Mol Sci. 2021;22(21).
- McGrath K, Edi R. Diabetic Kidney Disease: Diagnosis, Treatment, and Prevention. Am Fam Physician. 2019;99(12):751-9.
- Lin YC, Chang YH, Yang SY, Wu KD, Chu TS. Update of pathophysiology and management of diabetic kidney disease. J Formos Med Assoc. 2018;117(8):662-75.
- Sabanayagam C, et al. Association of Diabetic Retinopathy and Diabetic Kidney Disease With All-Cause and Cardiovascular Mortality in a Multiethnic Asian Population. JAMA Netw Open. 2019;2(3):e191540.
- Saran R, et al. US Renal Data System 2018 Annual Data Report: Epidemiology of Kidney Disease in the United States. Am J Kidney Dis. 2019;73(3 Suppl 1):A7-A8.
- Miller RG, et al. Contemporary Estimate of Total Mortality and Cardiovascular Disease Risk in Young Adults With Type 1 Diabetes: The Pittsburgh Epidemiology of Diabetes Complications Study. Diabetes Care. 2016;39(12):2296-303.
- Lyon P, Strippoli V, Fang B, Cimmino L. B Vitamins and One-Carbon Metabolism: Implications in Human Health and Disease. Nutrients. 2020;12(9).
- Chazot C, Steiber AL, Kopple JD. Chapter 26 - Vitamin metabolism and requirements in chronic kidney disease and kidney failure. In: Kopple JD, Massry SG, Kalantar-Zadeh K, Fouque D, editors. Nutritional Management of Renal Disease (Fourth Edition): Academic Press; 2022. p. 413-65.
- Shakoor H, et al. Be well: A potential role for vitamin B in COVID-19. Maturitas. 2021;144:108-11.
- Green R, et al. Vitamin B(12) deficiency. Nat Rev Dis Primers. 2017;3:17040.
- Capelli I, et al. Folic Acid and Vitamin B12 Administration in CKD, Why Not Nutrients. 2019;11(2).
- Bamonti-Catena F, et al. Folate measurements in patients on regular hemodialysis treatment. Am J Kidney Dis. 1999;33(3):492-7.
- Andres E, Serraj K, Zhu J, Vermorken AJ. The pathophysiology of elevated vitamin B12 in clinical practice. QJM. 2013;106(6):505-15.
- Soohoo M, et al. Association of serum vitamin B12 and folate with mortality in incident hemodialysis patients. Nephrol Dial Transplant. 2017;32(6):1024-32.
- Zhang H, Liu N, Dang H. Association of the Controlling Nutritional Status (CONUT) score with all-cause and cause-specific mortality in patients with diabetic kidney disease: evidence from the NHANES 2009-2018. BMJ Open. 2024;14(4):e079992.
- Rahman HH, Niemann D, Munson-McGee SH. Association of albumin to creatinine ratio with urinary arsenic and metal exposure: evidence from NHANES 2015-2016. Int Urol Nephrol. 2022;54(6):1343-53.
- Phillips JA. Dietary Guidelines for Americans, 2020-2025. Workplace Health Saf. 2021;69(8):395.
- Ritchie ME, et al. limma powers differential expression analyses for RNA-sequencing and microarray studies. Nucleic Acids Res. 2015;43(7):e47.
- Yu G, Wang LG, Han Y, He QY. clusterProfiler: an R package for comparing biological themes among gene clusters. Omics : a journal of integrative biology. 2012;16(5):284-7.
- Szklarczyk D, et al. STRING v11: protein-protein association networks with increased coverage, supporting functional discovery in genome-wide experimental datasets. Nucleic Acids Res. 2019;47(D1):D607-D13.
- Shannon P, et al. Cytoscape: a software environment for integrated models of biomolecular interaction networks. Genome research. 2003;13(11):2498-504.
- Zhao L, et al. Non-linear association between composite dietary antioxidant index and depression. Front Public Health. 2022;10:988727.
- da Silva Ebone R, Doleski PH, Jantsch MH, da Silveira RP, Leal DBR. P2Y14 receptor activation and neutrophil signaling: linking inflammation to systemic pathophysiology. Purinergic Signal. 2026;22(1):5.
- Lazarowski ER, Harden TK. UDP-Sugars as Extracellular Signaling Molecules: Cellular and Physiologic Consequences of P2Y14 Receptor Activation. Mol Pharmacol. 2015;88(1):151-60.
- Survase S, Bajaj I, Singhal R. Biotechnological Production of Vitamins. Food Technology and Biotechnology. 2006;44.
- Mascolo E, Verni F. Vitamin B6 and Diabetes: Relationship and Molecular Mechanisms. Int J Mol Sci. 2020;21(10).
- Delrue C, Speeckaert R, Delanghe JR, Speeckaert MM. The Role of Vitamin D in Diabetic Nephropathy: A Translational Approach. Int J Mol Sci. 2022;23(2).
- Wang H, et al. In vitro and in vivo inhibition of mTOR by 1,25-dihydroxyvitamin D(3) to improve early diabetic nephropathy via the DDIT4/TSC2/mTOR pathway. Endocrine. 2016;54(2):348-59.
- Raizada N, Jyotsna VP, Sreenivas V, Tandon N. Serum Vitamin B12 Levels in Type 2 Diabetes Patients on Metformin Compared to those Never on Metformin: A Cross-sectional Study. Indian J Endocrinol Metab. 2017;21(3):424-8.
- Kibirige D, Mwebaze R. Vitamin B12 deficiency among patients with diabetes mellitus: is routine screening and supplementation justified J Diabetes Metab Disord. 2013;12(1):17.
- Wu HHL, Wang AY. Vitamin B12 and chronic kidney disease. Vitam Horm. 2022;119:325-53.
- Kumthekar AA, Gidwani HV, Kumthekar AB. Metformin associated B12 deficiency. J Assoc Physicians India. 2012;60:58-60.
- Nervo M, et al. Vitamin B12 in metformin-treated diabetic patients: a cross-sectional study in Brazil. Rev Assoc Med Bras (1992). 2011;57(1):46-9.
- Bell DS. Metformin-induced vitamin B12 deficiency presenting as a peripheral neuropathy. South Med J. 2010;103(3):265-7.
- Pflipsen MC, et al. The prevalence of vitamin B(12) deficiency in patients with type 2 diabetes: a cross-sectional study. J Am Board Fam Med. 2009;22(5):528-34.
- Liu KW, Dai LK, Jean W. Metformin-related vitamin B12 deficiency. Age Ageing. 2006;35(2):200-1.
- Halczuk K, Kazmierczak-Baranska J, Karwowski BT, Karmanska A, Cieslak M. Vitamin B12-Multifaceted In Vivo Functions and In Vitro Applications. Nutrients. 2023;15(12).
- Mohan A, Kumar R, Kumar V, Yadav M. Homocysteine, Vitamin B12 and Folate Level: Possible Risk Factors in the Progression of Chronic Heart and Kidney Disorders. Curr Cardiol Rev. 2023;19(4):e090223213539.
- Krishnaveni GV, Veena SR, Karat SC, Yajnik CS, Fall CH. Association between maternal folate concentrations during pregnancy and insulin resistance in Indian children. Diabetologia. 2014;57(1):110-21.
- Yajnik CS, et al. Vitamin B12 and folate concentrations during pregnancy and insulin resistance in the offspring: the Pune Maternal Nutrition Study. Diabetologia. 2008;51(1):29-38.