Niniejsze badanie wprowadza uproszczony wielokomórkowy model bariery krew-guz (BTB) in vitro, łączący kokulturę w systemie Transwell z trójwymiarowymi sferoidami nowotworowymi, co zapewnia fizjologicznie istotną platformę do badania przerzutów raka piersi do mózgu oraz przesiewania terapii celowanych.
Artykuł metodologiczny
Protokół oparty na wkładkach do hodowli komórkowych służący do konstruowania uproszczonego modelu wielokomórkowego In vitro Model bariery krew-guz w przerzutach raka piersi do mózgu
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Skuteczne metody leczenia przerzutów raka piersi do mózgu (BCBM) pozostają ograniczone, głównie ze względu na barierę krew-guz (BTB), która ogranicza przenikanie wielu agentów chemioterapeutycznych i celowanych do zmian przerzutowych w obrębie ośrodkowego układu nerwowego. Aby modelować wybrane cechy tego złożonego mikrośrodowiska in vitro, niniejsze badanie przedstawia zestandaryzowany protokół tworzenia uproszczonego wielokomórkowego trójwymiarowego modelu BTB. Metoda ta składa się z trzech głównych etapów. Po pierwsze, tworzona jest komora bariery krew-mózg (BBB) z wykorzystaniem insertów do hodowli komórkowych o rozmiarze porów 0,4 μm. Ludzkie komórki śródbłonka mikrokrążenia mózgowego (HBMECs) są wysiewane na stronę podstawną porowatej membrany, a dzień później, na stronę apikalną wysiewane są ludzkie astrocyty (HA) oraz ludzkie komórki mikrogleju HMC3 (HMC3). Przykładem są komórki SK-BR-3; komórki raka piersi są hodowane metodą wiszącej kropli w celu utworzenia jednolitych, regularnych trójwymiarowych sferoidów nowotworowych po 3 dniach hodowli. Sferoidy są następnie przenoszone na stronę apikalną porowatej membrany pokrytej macierzą błony podstawnej, co zapewnia separację fizyczną, umożliwiając jednocześnie komunikację chemiczną między komórkami bariery a sferoidami nowotworowymi podczas kokultury. Platforma ta pozwala na precyzyjną kontrolę harmonogramu eksperymentalnego i wywołuje zmiany morfologiczne oraz markerowe astrocytów zgodne z peritumoralną odpowiedzią reaktywną, umożliwiając jednocześnie ocenę integralności bariery śródbłonkowej i przepuszczalności parakomórkowej.
Wprowadzenie
Przerzuty do mózgu są częstym powikłaniem w późnych stadiach wielu złośliwych guzów litych, w tym raka piersi oraz raka płuc1,2. Rokowanie w tych przypadkach jest bardzo złe, a opcje terapeutyczne ograniczone1,2. W zdrowym ośrodkowym układzie nerwowym bariera krew-mózg (BBB) stanowi wysoce wyspecjalizowany i dynamiczny interfejs, utworzony głównie przez ściśle połączone komórki śródbłonka mikrokrążenia mózgowego, podczas gdy jej integralność i funkcja są wspierane przez błonę podstawną naczyń oraz skoordynowane interakcje z perycytami, astrocytami, neuronami, mikroglejem, komórkami linii oligodendrocytów oraz innymi komponentami jednostki naczyniowo-nerwowej3. Dzięki połączeniom ścisłym między komórkami śródbłonka oraz wsparciu obwodowych komórek glejowych, bariera ta ściśle ogranicza wnikanie substancji egzogennych do ośrodkowego układu nerwowego4. Po rozprzestrzenieniu się i osiedleniu komórek raka piersi w mózgu, zmiany przerzutowe powiększają się, wzrasta miejscowa hipoksja, nasilają się sygnały zapalne, a jednostka naczyniowo-nerwowa (NVU) ulega przebudowie, stopniowo rekonstruując barierę krew-guz (BTB)5. Chociaż lokalna przepuszczalność BTB jest wyższa niż BBB, różnice w przepuszczalności dla cząsteczek o różnej wielkości, w połączeniu z nierównomierną perfuzją krwi, prowadzą do słabej akumulacji leków w guzach mózgu6. W związku z tym zrozumienie biologii BTB i opracowanie strategii dostarczania leków zdolnych do przekroczenia tej bariery stało się istotnym priorytetem w neuroonkologii.
Do tej pory charakterystyka i mechanizmy transformacji BTB zostały opisane jedynie częściowo, a skuteczne opcje terapeutyczne w przypadku przerzutów raka piersi do mózgu (BCBM) pozostają ograniczone w praktyce klinicznej. Jednym z wyzwań jest ograniczona dostępność próbek klinicznych pochodzących z przerzutów do mózgu, wraz z niską dostępnością i niepełną charakterystyką funkcjonalną istniejących modeli BTB. Modele zwierzęce in vivo, w szczególności modele mysie7,8, są nadal powszechnie wykorzystywane w badaniach nad BTB. Jednak modele te mają swoje ograniczenia, w tym różnice gatunkowe, niską przepustowość oraz trudności w standaryzacji i powtarzalności, co może utrudniać badania mechanistyczne i opracowywanie leków9,10. Ponadto obecne modele BTB in vitro zazwyczaj wykorzystują kokultury komórek nowotworowych i komórek związanych z barierą w systemach wkładkowych do hodowli komórkowej lub w chipach mikroprzepływowych.
Istniejące modele często nie posiadają trójwymiarowej struktury guzów, przez co ich zdolność do odtworzenia cech przestrzennych istotnych dla przerzutów do mózgu jest ograniczona; dotyczy to m.in. gradientów gęstości komórek, obszarów hipoksycznych/nekrotycznych, ograniczonej dyfuzji molekularnej oraz heterogenicznego rozkładu komórkowego11,12. Aby wprowadzić zdefiniowany trójwymiarowy komponent nowotworowy, zastosowaliśmy model sferoidowy, który jest prosty, powtarzalny i kompatybilny z zastosowaniami przesiewowymi. W oparciu o to rozwiązanie opracowaliśmy uproszczony wielokomórkowy ludzki przedział BBB in vitro i zintegrowaliśmy go ze sferoidami nowotworowymi, aby stworzyć uproszczony model BTB (Rycina 1A), który oddaje wybrane cechy strukturalne i komórkowe mikrośrodowiska przerzutów do mózgu. Model ten jest łatwy w obsłudze, umożliwia ilościowe pomiary bariery oraz pozwala na wizualizację zmian przestrzennych w populacjach astrocytów i mikrogleju związanych z nowotworem.
Niniejszy protokół szczegółowo opisuje kluczowe etapy – od przygotowania i wysiewu komórek, przez generowanie sferoidów nowotworowych, nakładanie macierzy błony podstawnej, przygotowanie dopasowanej kontroli, aż po transfer sferoidów – zapewniając ustandaryzowany schemat postępowania w celu konstrukcji tego uproszczonego modelu BTB.
Protokół
Badanie to zostało przeprowadzone zgodnie z zasadami Deklaracji Helsińskiej i zostało zatwierdzone przez Komitet Etyki Drugiego Szpitala Uniwersytetu Medycznego w Dalian (numer zatwierdzenia JW2026-019-01). Wszystkie dane dotyczące pacjentów zostały zanonimizowane przed analizą. Narzędzia badawcze wykorzystane w niniejszym protokole są wymienione w Tabeli Materiałów.
1. Przygotowanie modelu bariery krew-mózg (BBB)
- Wymagania ogólne
- Wszystkie operacje należy przeprowadzać w sterylnej komorze z laminarnym przepływem powietrza, ściśle przestrzegając zasad aseptyki.
- Należy użyć 12-dołkowych insertów do hodowli komórkowych z membranami PET o rozmiarze porów 0,4 µm i efektywnej powierzchni membrany 1,12 cm2.
- Powlekanie kolagenem typu I
- Do każdej kolby lub naczynia hodowlanego należy dodać 1–2 mL roztworu powlekającego z kolagenem typu I i równomiernie rozprowadzić go po powierzchni dna.
- Do strony apikalnej i bazalnej każdego insertu do hodowli komórkowej należy dodać odpowiednio 200 µL i 800 µL roztworu powlekającego. Płytkę należy delikatnie wstrząsnąć, aby zapewnić pełny kontakt z membraną, unikając powstawania pęcherzyków powietrza pod membraną.
- Powlekłe naczynia i inserty należy inkubować w temperaturze 37 °C przy 5% CO₂ przez 1 h. Następnie należy usunąć roztwór powlekający i dwukrotnie przemyć PBS.
- Powlekłe kolby, naczynia i inserty do hodowli komórkowej należy przechowywać w temperaturze 37 °C przy 5% CO₂ i wykorzystać w ciągu 3 dni. Bezpośrednio przed użyciem należy je jednokrotnie przepłukać PBS.
- Naczynia hodowlane dla HBMEC i HA należy powlec kolagenem typu I przed hodowlą komórkową. Komórki HMC3-RFP nie wymagają powlekania kolagenem typu I.
- Przygotowanie roztworu powlekającego z kolagenem typu I
- Należy rozpuścić 60 µL octu lodowatego w 50 mL wody ultraczystej i schłodzić roztwór do 4 °C.
OSTRZEŻENIE: Ocet lodowaty jest substancją żrącą. Należy z nim pracować w dygestorium, stosując odpowiednie środki ochrony osobistej, w tym rękawice, fartuch laboratoryjny i ochronę oczu. Odpady z octu należy utylizować zgodnie z instytucjonalnymi procedurami usuwania odpadów chemicznych. - Roztwór należy przefiltrować przez filtr strzykawkowy 0,22 µm, dodać 500 µL kolagenu typu I (9,45 mg/mL), dokładnie wymieszać i przechowywać w temperaturze 4 °C do momentu użycia.
- Należy rozpuścić 60 µL octu lodowatego w 50 mL wody ultraczystej i schłodzić roztwór do 4 °C.
- Przygotowanie komórek
- Komórki HBMEC, HA i HMC3-RFP należy hodować do osiągnięcia konfluencji na poziomie 80%–90% przed użyciem.
OSTRZEŻENIE: Linie komórkowe pochodzenia ludzkiego oraz materiały związane z tkankami ludzkimi należy traktować jako potencjalnie biologicznie niebezpieczne. Należy stosować się do instytucjonalnych procedur bezpieczeństwa biologicznego i używać odpowiednich środków ochrony osobistej. Zanieczyszczone materiały hodowlane należy utylizować jako odpady biologiczne.
- Komórki HBMEC, HA i HMC3-RFP należy hodować do osiągnięcia konfluencji na poziomie 80%–90% przed użyciem.
- Wysiew HBMEC w dniu 0.
- Komórki HBMEC należy odczepić, używając rekombinowanej proteazy podobnej do trypsyny (1×), odwirować i resuspender osad w celu uzyskania zawiesiny pojedynczych komórek.
- Należy określić gęstość komórek i dostosować zawiesinę tak, aby 120 µL zawierało 1,5 × 10⁵ komórek HBMEC dla każdego insertu do hodowli komórkowej.
- Należy odwrócić płytkę i nanieść 120 µL zawiesiny HBMEC na stronę bazalną porowatej membrany. Podczas wysiewu należy unikać powstawania pęcherzyków powietrza (Rycina 1B).
- Należy przykryć dołki, utrzymać płytkę 12-dołkową w pozycji odwróconej i inkubować przez 6 h.
- Płytkę należy ustawić w pozycji pionowej, dodać odpowiednio 200 µL i 800 µL pełnej pożywki ECM do komory górnej i dolnej, a następnie kontynuować inkubację.
- Wysiew komórek HA i HMC3-RFP w dniu 1.
- Komórki HA należy odczepić rekombinowaną proteazą podobną do trypsyny (1×), a komórki HMC3-RFP trypsyną-EDTA 0,25%. Oba typy komórek należy odwirować i resuspender osobno.
- Należy określić gęstość komórek i połączyć 2,0 × 10⁵ komórek HA z 4,0 × 10³ komórek HMC3-RFP dla każdego insertu do hodowli komórkowej.
- Zmieszane komórki należy odwirować, usunąć nadsącz i resuspender osad w 200 µL mieszanej pełnej pożywki (pełna pożywka AM : pełna pożywka MEM = 5:1). 200 µL zawiesiny należy równomiernie dodać do komory górnej, unikając powstawania pęcherzyków powietrza (Rycina 1B).
- Do komory dolnej należy dodać 800 µL pełnej pożywki ECM, utrzymać płytkę w pozycji pionowej w inkubatorze i codziennie wymieniać pożywkę.
2. Przygotowanie trójwymiarowych sferoid nowotworowych
- Przygotowanie komórek SK-BR-3
- Hodować komórki SK-BR-3 do momentu osiągnięcia 80%–90% konfluencji przed przejściem do formowania sferoidów.
- Odczepić komórki SK-BR-3 przy użyciu 0,25% trypsyny-EDTA, odwirować komórki, a następnie resuspender osad w celu otrzymania zawiesiny pojedynczych komórek.
- Oznacz gęstość komórek i dostosuj zawiesinę tak, aby każda 30 µL kropla zawiera 2 × 10⁴ komórki
- Przygotowanie kropel wiszących
- Odwrócić 10 cmy płytkę do hodowli komórkowej i nalać 30 µL krople zawiesiny komórkowej na pokrywkę szalki. Na każdą pokrywkę nanieś około 20 kropli.
- Wymień dno naczynia i szybko odwróć złożone naczynie (Rycina 1B). Ponownie przygotuj kropelki, jeśli spłyną one z pokrywki lub stracą swój kształt.
- Hodowla sferoidów
- Dodać 5 ml PBS do naczynia i umieścić je w inkubatorze. Przez pierwsze 2 dni hodowli nie należy niepokoić naczynia.
- W przypadku hodowli długoterminowej należy dodać 10 µL pełnej pożywki do każdej kropli co 2 dni.
- Za pomocą końcówki pipety pobierz pożywkę z krawędzi każdej kropli, unikając kontaktu ze sferoidami nowotworowymi.
3. Przygotowanie uproszczonego modelu bariery krew–guz (BTB)
- Przygotowanie materiałów
- Powłokę odpowiednich naczyń do hodowli komórkowej oraz insertów do hodowli komórkowej (membrana PET, rozmiar porów 0,4 µm) pokryć kolagenem typu I i przechowywać w inkubatorze do momentu użycia.
- Odciąć końce końcówek pipet o pojemności 200 µL za pomocą nożyczek i wysterylizować zmodyfikowane końcówki w autoklawie.
- Ustanowienie modelu
- Dzień 0–1: Skonstruować model BBB i przygotować sferoidy nowotworowe zgodnie z powyższym opisem.
- Dzień 2: Rozmrozić macierz błony podstawnej na lodzie. Usunąć medium hodowlane z obu komór i przemyć obie komory PBS.
- Dodać 800 µL pełnego medium ECM do dolnej komory oraz 30 µL rozmrożonej macierzy błony podstawnej do górnej komory. Równomiernie rozprowadzić macierz błony podstawnej po porowatej membranie.
- Inkubować płytkę w temperaturze 37 °C przez 20 min, a następnie powoli dodać 200 µL mieszanego pełnego medium (AM:MEM = 5:1) wzdłuż ścianki bocznej górnej komory. Przenieść płytkę z powrotem do inkubatora (Rycina 1B).
- Przechowywać macierz błony podstawnej na lodzie i pracować szybko. Do aspiracji macierzy błony podstawnej używać schłodzonej uprzednio końcówki pipety.
- Dopasowana kontrola bez sferoidów/z macierzą błony podstawnej
- Przygotować inserty kontrolne, stosując tę samą objętość macierzy błony podstawnej (30 µL), skład medium, etapy płukania, czasy inkubacji oraz codzienny harmonogram wymiany medium co w warunkach BTB, z pominięciem przenoszenia sferoidów nowotworowych w dniu 3. W ten sposób dopasowana kontrola różni się od warunku BTB obecnością lub brakiem sferoidów nowotworowych, a nie ekspozycją lub manipulacją macierzą błony podstawnej.
- Przenoszenie sferoidów nowotworowych w dniu 3
- Obejrzeć sferoidy nowotworowe pod mikroskopem pionowym i potwierdzić, że mają regularny kształt i utworzyły zwarte sferoidy.
- Aspirować sferoidy nowotworowe do probówek do mikrocentryfugi o pojemności 1,5 mL za pomocą przyciętej końcówki pipety i przemyć je dwukrotnie PBS. Operować sferoidami ostrożnie, aby uniknąć ich rozpadu.
- Wymienić medium w dolnej komorze i usunąć medium hodowlane z górnej komory.
- Przenieść pięć sferoidów nowotworowych do każdej górnej komory za pomocą przyciętej końcówki pipety.
- Dodać 200 µL mieszanego pełnego medium hodowlanego (AM:MEM = 5:1) do górnej komory i delikatnie potrząsnąć płytką, aby zapobiec kontaktowi lub łączeniu się sferoidów (Rycina 1B).
- Przechowywać płytkę w inkubatorze i codziennie wymieniać medium.
- Pobieranie próbek
- Pobrać próbki w dniu 7 do dalszych eksperymentów lub dostosować czas pobierania do wymagań doświadczalnych.
4. Pomiar oporu elektrycznego przezbłonowego (TEER)
- Przygotowanie elektrod
- W pełni naładować miernik TEER i zanurzyć elektrody typu chopstick w 75% etanolu na 15 min.
UWAGA: Etanol jest łatwopalny. Przechowywać 75% etanol z dala od otwartego ognia, iskier i innych źródeł zapłonu oraz obchodzić się z nim zgodnie z instytucjonalnymi procedurami bezpieczeństwa chemicznego. - Naświetlać komorę bezpiecznej pracy z biosafety cabinet światłem ultrafioletowym przez 30 min w celu sterylizacji. Nie wystawiać elektrod bezpośrednio na promieniowanie ultrafioletowe.
- Wyjąć elektrody z etanolu, wyrównać ich stan w PBS przez 15 min, a następnie osuszyć w warunkach sterylnych.
- W pełni naładować miernik TEER i zanurzyć elektrody typu chopstick w 75% etanolu na 15 min.
- Równoważenie wkładów do hodowli komórkowej
- Wyjąć płytkę 12-dołkową zawierającą wkłady do hodowli komórkowej z inkubatora i pozostawić ją w temperaturze pokojowej na 15 min przed pomiarem.
- Pomiar oporności
- Przygotować pusty wkład do hodowli komórkowej bez komórek, wlewając 200 µL i 800 µL tej samej pełnej pożywki hodowlanej odpowiednio do komory górnej i dolnej.
- Ostrożnie wprowadzić elektrody typu chopstick wzdłuż krawędzi wkładu do hodowli komórkowej, nie dotykając porowatej membrany ani dna dołka.
- Przepłukać elektrody PBS i osuszyć je. Zmierzyć każdy wkład zawierający komórki, stosując tę samą procedurę, i zapisać wartość oporności jako R₍measured₎.
- Obliczanie TEER
- Obliczyć wartość transendotelialnej oporności elektrycznej (TEER), korzystając z następującego wzoru13:
TEER (Ω·cm²) = (R(measured) − R(blank) × S (1.1) - R(measured) to oporność przez porowatą membranę zawierającą warstwę komórek (Ω); R(blank) to oporność przez porowatą membranę bez komórek (Ω); a S to efektywna powierzchnia membrany (cm2). Efektywna powierzchnia membrany zastosowana w tej badaniu wynosi 1,12 cm2.
- Obliczyć wartość transendotelialnej oporności elektrycznej (TEER), korzystając z następującego wzoru13:
5. Test przepuszczalności parakomórkowej z użyciem FITC-dekstranu (kierunek apikalno-bazalny)
- Przygotowanie FITC-dekstranu
- Przed eksperymentem przygotować roztwór roboczy FITC-dekstranu (4 kDa) o stężeniu 2 mg/mL i chronić go przed światłem.
- Interpretacja kierunku analizy
- Obecną analizę należy interpretować jako odczyt integralności bariery parakomórkowej w kierunku od strony apikalnej do bazalnej, ponieważ komórki HBMECs są przytwierdzone do strony bazalnej membrany, natomiast astrocyty, mikroglej i sferoidy nowotworowe znajdują się w komorze apikalnej.
UWAGA: W badaniach mających na celu naśladowanie ekspozycji systemowej należy wprowadzić FITC-dekstran lub badany związek do dolnej komory skierowanej do śródbłonka (strony bazalnej) i pobrać próbki z górnej komory (strony apikalnej), stosując oddzielnie zwalidowany schemat pobierania próbek i obliczania Papp.
- Obecną analizę należy interpretować jako odczyt integralności bariery parakomórkowej w kierunku od strony apikalnej do bazalnej, ponieważ komórki HBMECs są przytwierdzone do strony bazalnej membrany, natomiast astrocyty, mikroglej i sferoidy nowotworowe znajdują się w komorze apikalnej.
- Płukanie i równoważenie
- Usunąć całą pożywkę hodowlaną z obu komór. Do górnej i dolnej komory dodać odpowiednio 400 µL i 1 mL wstępnie ogrzanej pożywki DMEM bez glukozy, delikatnie wypłukać raz, a następnie usunąć pożywkę.
- Do górnej i dolnej komory dodać odpowiednio 400 µL i 1 mL świeżej, wstępnie ogrzanej pożywki DMEM bez glukozy. Równoważyć przez 15 min w temperaturze 37 °C w atmosferze 5% CO₂, a następnie odessać cały płyn.
- Pomiar przepuszczalności
- Do strony apikalnej dodać 200 µL roztworu roboczego FITC-dekstranu o stężeniu 2 mg/mL, a do dolnej komory 800 µL pożywki DMEM bez glukozy. Inkubować przez 30 min w ciemności w temperaturze 37 °C w atmosferze 5% CO₂.
- Po 30 min pobrać 100 µL pożywki z dolnej komory każdego insertu eksperymentalnego. Przenieść trzy alikwoty z każdego insertu do czarnej płytki 96-dołkowej i chronić je przed światłem.
- Przygotowanie krzywej standardowej FITC-dekstranu
- Przygotować standardy FITC-dekstranu o stężeniach 0, 0,5, 1,0 i 1,5 mg/mL. Dodać 100 µL każdego standardu w trzech powtórzeniach do czarnej płytki 96-dołkowej i chronić płytkę przed światłem.
- Pomiar fluorescencji i obliczanie Papp
- Zmierzyć intensywność fluorescencji za pomocą wielofunkcyjnego czytnika płytek mikrodołkowych przy długości fali wzbudzenia 492 nm i długości fali emisji 520 nm. Zapisać dane i obliczyć pozorny współczynnik przepuszczalności (Papp), stosując następujące równania14.
- Najpierw dopasować liniowo stężenia roztworów standardowych FITC-dekstranu (C) do odpowiadających im intensywności fluorescencji (A), aby wyznaczyć krzywą standardową:
A = kC + b (1.2) - W powyższym równaniu k oznacza nachylenie krzywej standardowej, a b oznacza punkt przecięcia z osią.
- Następnie podstawić intensywność fluorescencji próbki (At) zmierzoną w czasie t do równania krzywej standardowej, aby uzyskać stężenie FITC-dekstranu (Ca) po stronie bazolateralnej w czasie t. Następnie podstawić Ca do poniższego wzoru, aby obliczyć Papp (cm/s):
- Papp = (Ca × Va)/(t × S × C0) (1.3)
- Gdzie Va to całkowita objętość bazolateralna (mL); t to czas permeacji (s); S to efektywna powierzchnia membrany porowatej (cm2); a C₀ to stężenie początkowe po stronie apikalnej.
6. Barwienie immunofluorescencyjne
- Fiksacja, przemywanie i permeabilizacja
- Usunąć całą pożywkę hodowlaną z insertów do hodowli komórkowej, przemyć dwukrotnie PBS i odessać cały pozostały płyn.
- Dodać odpowiednio 200 µL i 800 µL 4% paraformaldehydu do komory górnej i dolnej, a następnie fiksować komórki przez noc w temperaturze 4 °C.
UWAGA: Paraformaldehyd jest substancją niebezpieczną i należy z nim pracować w certyfikowanej dygestorze chemicznym, stosując rękawiczki, fartuch laboratoryjny oraz ochronę oczu. Odpady z paraformaldehydu należy zbierać oddzielnie i utylizować zgodnie z instytucjonalnymi procedurami dotyczącymi odpadów niebezpiecznych. - Usunąć paraformaldehyd i dodać odpowiednio 200 µL i 800 µL PBS do komory górnej i dolnej. Przemywać na wytrząsarce trzykrotnie po 5 min każde przemywanie.
- Dodać odpowiednio 200 µL i 800 µL 0,5% niejonowego surfaktantu do komory górnej i dolnej, a następnie permeabilizować przez 10 min w temperaturze pokojowej.
- Usunąć roztwór niejonowego surfaktantu i przemyć PBS trzykrotnie po 5 min każde przemywanie.
- Wycinanie i blokowanie błon
- Odwrócić inserty do hodowli komórkowej na pokrywkę naczynia do hodowli komórkowej, ostrożnie wyciąć porowate błony wzdłuż krawędzi skalpelem i przenieść je do płytki 24-dołkowej.
- Dodać 200 µL 3% BSA w PBS, aby przykryć każdą błonę, i blokować przez 90 min w temperaturze pokojowej. W razie potrzeby pociąć błony na mniejsze fragmenty do oddzielnego barwienia.
- Inkubacja z przeciwciałem pierwszorzędowym
- Rozcieńczyć przeciwciała pierwszorzędowe standardowym rozcieńczalnikiem do przeciwciał i dodać ilość roztworu wystarczającą do całkowitego przykrycia każdej błony.
- Dodać wodę ultrapurą do otaczających pustych dołków, aby zmniejszyć parowanie, i inkubować próbki przez noc w temperaturze 4 °C. Jako kontroli negatywnych użyć próbek bez specyficznego przeciwciała pierwszorzędowego.
- Następnego dnia usunąć roztwór przeciwciała pierwszorzędowego i przemyć błony 1 mL PBS na wytrząsarce trzykrotnie po 10 min każde przemywanie.
- Barwienie przeciwciałem drugorzędowym i DAPI
- Rozcieńczyć przeciwciała drugorzędowe rozcieńczalnikiem do przeciwciał fluorescencyjnych w warunkach ochrony przed światłem, całkowicie przykryć błony i inkubować przez 90 min w temperaturze pokojowej. Przemyć PBS trzykrotnie po 10 min każde przemywanie, chroniąc przed światłem.
- Dodać gotowy do użycia roztwór barwiący DAPI, aby przykryć błony, i inkubować przez 15 min w temperaturze pokojowej. Przemyć PBS trzykrotnie po 10 min każde przemywanie, chroniąc przed światłem.
- Klarowanie, montowanie i obrazowanie
- Dodać odpowiednią objętość odczynnika do klarowania 3D do hodowli komórkowej, aby przykryć błony, i inkubować przez 15 min w temperaturze pokojowej w warunkach ochrony przed światłem.
- Przenieść błony na szkiełka przedmiotowe za pomocą pęsety oftalmologicznej, dodać medium montażowe typu antifade i zamontować próbki w warunkach ochrony przed światłem. Obserwować i obrazować próbki przy użyciu konfokalnego skaningowego mikroskopu laserowego.
7. Raportowanie statystyczne
- W przypadku porównań funkcjonalnych n = 3 oznacza trzy niezależne powtórzenia biologiczne dla każdego stanu, a każde powtórzenie biologiczne traktowano jako jednostkę eksperymentalną. Przedstawiono pojedyncze punkty danych dla wszystkich trzech powtórzeń biologicznych. Dane przedstawiono jako średnia ± SD. Porównania przeprowadzono za pomocą obustronnych nieparzystych testów t Studenta, z dokładnymi wartościami t i p.
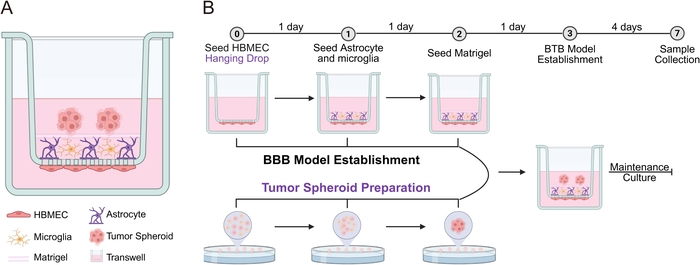
Rysunek 1: Schematyczny rysunek i przebieg konstrukcji modelu BTB. (A) Komórki HBMEC wysiano na stronę podstawną porowatej membrany wkładki do hodowli komórkowej, natomiast komórki HA i HMC3-RFP rozmieszczono na stronie apikalnej. Warstwa macierzy błony podstawnej została wykorzystana do oddzielenia sferoidów nowotworowych od przedziału z komórkami barierowymi. W przypadku dopasowanej kontroli bez sferoidów zastosowano tę samą nakładkę z macierzy błony podstawnej i taką samą procedurę, ale pominięto sferoidy nowotworowe. (B) Zakreślone liczby na górze wskazują odpowiadające im dni hodowli. Konstrukcję BBB oraz przygotowanie sferoidów nowotworowych przeprowadzono równolegle. Po dodaniu warstwy macierzy błony podstawnej na górną powierzchnię wkładki do hodowli komórkowej, sferoidy nowotworowe przeniesiono do górnej komory za pomocą przyciętego końcówki pipety. Model BTB utrzymywano następnie w hodowli do 1 tygodnia przed pobraniem próbek. Próbki można zazwyczaj pobrać w 7 dniu do dalszych eksperymentów. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
Wyniki
W kontrolnym układzie z warstwą barierową bez sferoidów, pokrytym taką samą ilością macierzy błony podstawnej, sygnały HMC3-RFP były stosunkowo szeroko rozłożone w warstwie apikalnej komórekRycina 2). W warunku BTB obrazy końcowe wykazywały sygnały HMC3-RFP głównie w obszarach niepokrytych sferoidami nowotworowymi, z obniżonym sygnałem pod sferoidami oraz w bezpośrednio przylegających regionach (Rysunek 2). Te dane wykazują przestrzeniową zależność między obecnością sferyd nowotworowych a rozmieszczeniem końcowym komórek HMC3-RFP. Ze względu na brak oceny początkowego rozmieszczenia komórek HMC3-RFP przed wprowadzeniem sferyd oraz brak długoterminowego śledzenia ruchu komórek, obecne dane nie potwierdzają aktywnej migracji mikrogleju, jego odpychania ani wykluczenia komórek spowodowanego przez guz.
Astrocyty wykazywały również różnice w sygnale markerów i morfologii w warunkach BTB (Rycina 2). W porównaniu z kontrolą bez sferoidów w macierzy błony podstawnej, reprezentatywne obrazy sugerowały silniejszą fluorescencję GFAP w zarówno okolicach przyosierodkowych, jak i odległych. Astrocyty na brzegu sferoidu wykazywały powiększone ciała komórkowe, grubsze i wydłużone wypustki oraz wypustki skierowane ku krawędzi sferoidu (Rycina 2). Te cechy końcowe są zgodne z fenotypem przypominającym aktywowane astrocyty, ale same w sobie nie pozwalają ustalić konkretnego programu reaktywnej astrogliozy ani jego podstawowego mechanizmu. Morfologicznie podobne struktury astrocytarne w okolicy guza obserwowano w przekrojach tkankowych przerzutów raka piersi do mózgu u ludzi, gdzie barwienie immunofluorescencyjne ujawniło cechy zgodne z reaktywną astrogliozą okołoguzową.Rycina 3A). Aby dalej scharakteryzować cechy astrocytów związanych z AQP4, wykonano barwienie immunofluorescencyjne AQP4 w odpowiadającym modelu BHE bez sferoidów oraz w regionach dystalnych i okołosferoidalnych modelu BTO (Rycina 3B). Przykładowe obrazy modelu BBB, dystalnego obszaru modelu BTB oraz obszaru okołosferycznego przylegającego do sferycznych guzów pokazano odpowiednio w pierwszym, drugim i trzecim wierszu (Rycina 3B). W modelu BTB astrocyty otaczające sferoidy wykazywały różnice morfologiczne w porównaniu z astrocytami położonymi dalej. Podsumowując, obserwacje dotyczące GFAP/AQP4 oraz morfologii wskazują na przebudowę astrocytów związanych z sferoidami nowotworowymi w tym modelu; podobieństwo do tkanki pacjenta należy interpretować jako podobieństwo fenotypowe, a nie jako dowód pełnego odtworzenia przez model ludzkiej astrogliozy okołonowotworowej.
Aby ocenić zmiany związane z guzowymi sferoidami w organizacji styków śródbłonkowych, wykonano barwienie immunofluorescencyjne białka stykowego ZO-1 w warstwie podstawnej HBMEC w uproszczonych modelach BBB i BTB, stosując warunki z i bez sferoidów, pokryte równymi ilościami macierzy błony podstawnej. Obrazowanie konfokalne skoncentrowano na obszarze odpowiadającym guzowym sferoidom (Rycina 4A). W kontrolnym warunku bez sferoidów, sygnał ZO-1 między HBMEC wykazywał stosunkowo ciągły, liniowy rozkład z wyraźnie zdefiniowanymi granicami międzykomórkowymi. W warunku BTB fluorescencja ZO-1 w obszarach odpowiadających sferoidom nowotworowym była rzadsza, z ogniskowymi przerwami i nieciągłościami (Rycina 4A). Te obrazy końcowe są zgodne z lokalną utratą organizacji połączeń szczelnych. Jednak bez dodatkowych, specyficznych dla BTB markerów molekularnych lub eksperymentów zaburzających mechanizmy, obecne dane nie pozwalają odróżnić konkretnego modelowania BTB od nieswoistego uszkodzenia śródbłonka związanego z guzem lub zakłócenia bariery.
Na poziomie funkcjonalnym pomiary OPTR oraz oznaczenia przepuszczalności dextranu oznaczonego FITC przeprowadzono równolegle w 7. dniu w warunkach kontrolnych zawierających sferoidy i macierzy podstawnej bez sferoidów oraz w warunkach BTB zawierających sferoidy (Rycina 4B). Poszczególne wartości ze wszystkich trzech niezależnych replik biologicznych przedstawiono jako punkty rozproszenia w Rycina 4B, a dane podsumowujące przedstawione jako średnia ± SD. Wartość TEER warunku BTB (106,0 ± 9.5255 Ω·cm2, n = 3 niezależne biologiczne repliki) było niższe niż odpowiedniego kontrolnego (168,0 ± 5.1325 Ω·cm2, n = 3 niezależne biologiczne powtórzenia). Zgodnie z tym, współczynnik pozornej przepuszczalności (Papp) zmierzony w teście FITC-dekstranu w kierunku apikalno-bazalnym był wyższy w warunku BTB (5,851) ± 1.2080 × 10⁻3 cm/s, n = 3 niezależne biologiczne repliki) niż w dopasowanym kontrolnym (2,656) ± 1.0937 × 10⁻3 cm/s, n = 3 niezależne biologiczne powtórzenia). Dwustronny niezależny test t-Studenta’testy t wykazały istotne różnice statystycznie [TEER: t(4) = 9,920, p = 0,0006; Papp: t(4) = 3,395, p = 0.0274] (Rycina 4B). W ramach tej konfiguracji eksperymentalnej jednoczesne zmniejszenie oporu elektrycznego oraz wzrost przepuszczalności dla FITC-dekstranu wskazują na obniżoną integralność bariery w obecności sferydoidów nowotworowych. Same w sobie te pomiary nie pozwalają ustalić konkretnego mechanizmu przebudowy bariery krew–mózg (BBB) w barierę krew–guz (BTB), a badanie przepuszczalności FITC-dekstranu w kierunku apikalno-bazalnym nie powinno być interpretowane jako eksperyment fizjologicznej dostawy leku z krwi do guza.
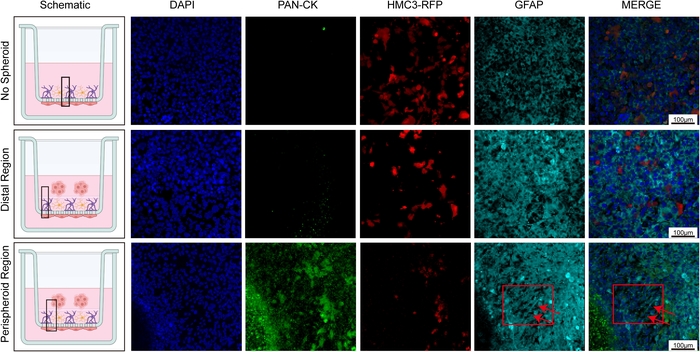
Rycina 2: Barwienie immunofluorescencyjne w modelu BHE Reprezentatywne obrazy immunofluorescencyjne barwienia Pan-CK i GFAP w warstwach komórkowych na powierzchni modelu kontrolnego BBB bez sferoidów i modelu BTB, oba nakryte równymi ilościami macierzy błony podstawnej, z dodatkowym sygnałem HMC3-RFP. Pierwsza kolumna przedstawia ilustracje schematyczne, a czarny kwadrat wskazuje obszar obserwacji w mikroskopii konfokalnej. Pierwszy wiersz pokazuje model kontrolny bez sferoidu (Brak sferoidu); drugi wiersz przedstawia obszary odległe od sferoidów nowotworowych w modelu BTB (Obszar odległy); trzeci wiersz pokazuje obszary przylegające do sferoidów nowotworowych w modelu BTB (Obszar okołosferoidalny). Strzałki wskazują obszary wykazujące cechy morfologiczne astrocytów zgodne z reaktywnym fenotypem. Jądra komórkowe wybarwiono kontrastowo za pomocą DAPI (niebieski), komórki nowotworowe oznaczono przeciwciałami przeciwko pan-cytokeratynie (Pan-CK; zielony), mikroglej komórki eksprymujące RFP pokazano na czerwono, a barwienie GFAP przedstawiono na cyjan. Skala = 100 µm. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
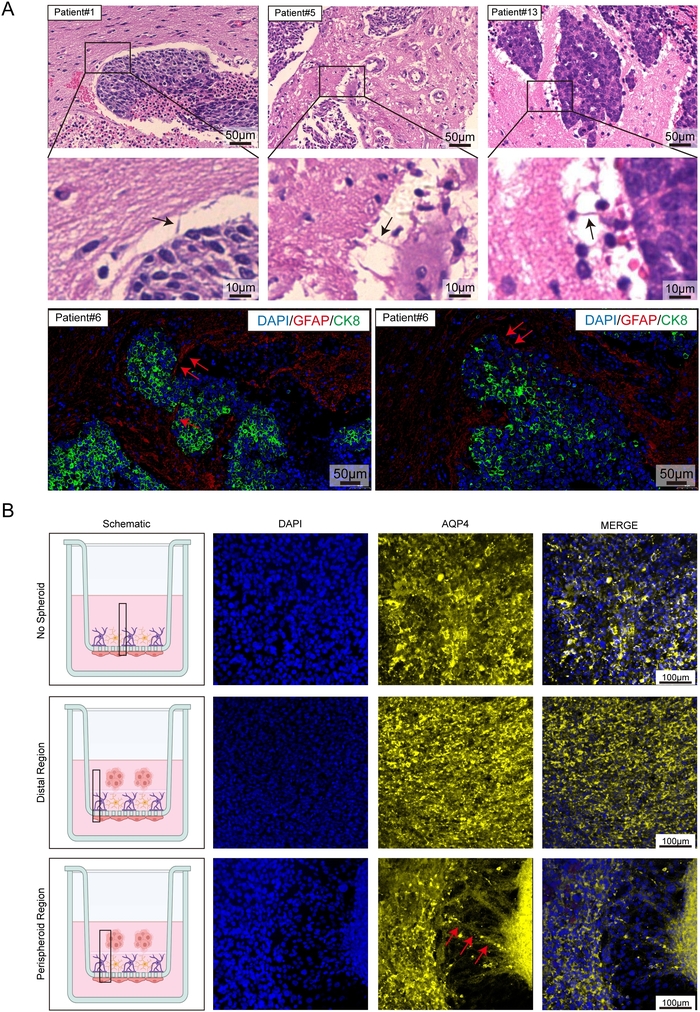
Rycina 3: Barwienie immunofluorescencyjne ujawnia cechy morfologiczne zgodne z reaktywną astroglioza okołotrzewienną w modelu BTB. (A) Przekroje tkanki mózgowej od pacjentów z przerzutami raka piersi do mózgu poddano analizie H&Barwienie E. Struktury astrocytarne na granicy między tkanką guza a miąższem mózgu lub naczyniami krwonymi wykazywały cechy morfologiczne zgodne z reaktywną astroglioza okołoguzową. Czarne strzałki wskazują reprezentatywne obszary. Barwienie immunofluorescencyjne ujawniło dodatkowo cechy morfologiczne astrocytów zgodne z fenotypem reaktywnym; czerwona strzałka wskazuje reprezentatywny obszar. Sztaby skali: 50 µm dla H&Obrazy po wybarwieniu E w pierwszym rzędzie, 10 µm dla H&Obrazy postrzone E w drugim rzędzie oraz 50 µm dla obrazów immunofluorescencyjnych w trzecim wierszu. (B) Barwienie immunofluorescencyjne AQP4 wykonano w dopasowanym modelu BNB bez sferoidów oraz w rejonach dystalnych i przyosferoidalnych modelu BNT. Pierwszy wiersz przedstawia reprezentatywne obrazy modelu BNB, drugi wiersz – reprezentatywne obrazy rejonu dystalnego modelu BNT, a trzeci wiersz – reprezentatywne obrazy rejonu przyosferoidalnego przylegającego do sferoidów nowotworowych. Strzałki wskazują zmiany morfologiczne astrocytów w rejonie przyosferoidalnym. Jądra komórkowe wybarwiono za pomocą DAPI i przedstawiono na niebiesko, natomiast AQP4 przedstawiono na żółto. Szerokość szkali = 100 µm. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
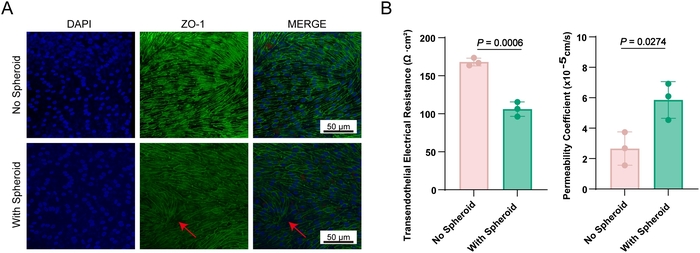
Rycina 4: Funkcjonalna charakterystyka modelu BTB. (A) Barwienie immunofluorescencyjne białka ZO-1 w warstwie podstawnej komórek śródbłonka w modelach BBB i BTB pokrytych równą ilością macierzy błony podstawnej. W pierwszej kolumnie przedstawiono schematyczne diagramy, przy czym czarne ramki wskazują obszary wybrane do obrazowania konfokalnego. Pierwszy wiersz przedstawia reprezentatywne obrazy warstwy podstawnej komórek w modelu BBB bez sferydów nowotworowych (Brak sferydów), a drugi wiersz – reprezentatywne obrazy warstwy podstawnej komórek w modelu BTB z sferydami nowotworowymi (Z sferydami). Czerwona strzałka wskazuje obszar o rzadkim fluorescencyjnym sygnale ZO-1 i ogniskowych nieciągłościach. Jądra komórkowe barwiono DAPI i przedstawiono je na niebiesko, natomiast ZO-1 przedstawiono na zielono. Szerokość skali = 50 µm. (B) Wartości TEER i pozorne współczynniki permeabilności (Papp) dla dextranu oznaczonego FITC (4 kDa) w warunkach kontrolnych BBB bez sferoidów (No Spheroid) oraz w warunkach BTB (With Spheroid), oba z warstwą macierzy błony podstawnej o tej samej objętości. n = 3 niezależne repliki biologiczne dla każdego warunku. Wykazano punkty danych dla wszystkich trzech replik biologicznych, a dane podsumowujące przedstawiono jako średnie ± Wartości Papp SD. FITC-dextran uzyskano w kierunku apikalno-do-podstawowego. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
Dyskusja
W celu wprowadzenia trójwymiarowego komponentu nowotworowego, zapewniającego organizację przestrzenną i ograniczenia dyfuzyjne, których nie oddaje konwencjonalna dwuwymiarowa hodowla komórek nowotworowych, zastosowano model sferoidów. Jego prostota i powtarzalność sprawiają, że jest on również kompatybilny z procesami zorientowanymi na screening. Sferoidy połączono z trójskładnikowym ludzkim przedziałem barierowym zawierającym komórki śródbłonka mikro naczyniowego mózgu, astrocyty i mikroglej, aby stworzyć uproszczony wielokomórkowy ludzki model BTB in vitro. System ten jest łatwy w obsłudze, kompatybilny z hodowlą w wielodołkowych płytkach oraz ilościowymi pomiarami barierowości (Rycina 1) i umożliwia wizualizację morfologii komórek oraz ich rozmieszczenia przestrzennego za pomocą barwienia immunofluorescencyjnego. Zaobserwowane zmiany astrocytarne związane z GFAP/AQP4 oraz ich podobieństwo morfologiczne do astrocytów okołoguzowych w tkance przerzutów raka piersi do mózgu potwierdzają przydatność modelu do badania wybranych interakcji nowotwór–glej–śródbłonek5, choć wyniki te nie wykazują pełnej równoważności z ludzką barierą BTB.
Do wytworzenia sferoidów nowotworowych wykorzystano metodę wiszącej kropli, a następnie poddano je współhodowli z ludzkimi mikro naczyniowymi komórkami śródbłonka mózgu, ludzkimi astrocytami oraz ludzką mikrogleją w celu stworzenia uproszczonego wielokomórkowego modelu ludzkiego in vitro platforma BTB. W badanych warunkach sferoidy nowotworowe wiązały się z obniżeniem TEER, zwiększoną przepuszczalnością FITC-dekstranu w kierunku apikalno-bazalnym, zaburzoną organizacją białka ZO-1 oraz zmianami markerów i morfologii astrocytów. Pomiary TEER i przepuszczalności są uznanymi metodami oceny integralności bariery w in vitro systemy barierowe13,14Wyniki te wykazują upośledzenie bariery związanej ze sferoidami nowotworowymi oraz przebudowę glejową w ramach tego zdefiniowanego systemu. Niemniej jednak platforma BTB ta nie zapewnia pełnej transformacji BBB w BTB, aktywnej migracji mikrogleju ani określenia konkretnego mechanizmu molekularnego przebudowy BTB. W związku z tym platformę tę należy postrzegać przede wszystkim jako przystępny model eksperymentalny służący do generowania hipotez i kontrolowanych badań nad oddziaływaniami nowotwór–glej–śródbłonek, przy czym modelowanie systemowego dostarczania leków wymaga zastosowania testów transportu o odpowiednim kierunku.
Ten uproszczony model posiada kilka istotnych ograniczeń. Po pierwsze, nie zawiera on pełnej jednostki naczyniowo-nerwowej ani mikrośrodowiska guza mózgu. Brak w nim perycytów, neuronów, fizjologicznie kompletnej błony podstawnej/macierzy zewnątrzkomórkowej oraz krążących komórek odpornościowych. Perycyty są ważnymi regulatorami funkcji naczyniowo-nerwowej i barierowej15,16,17, jednak ich włączenie do zstandaryzowanego ludzkiego modelu in vitro pozostaje trudne ze względu na ograniczoną dostępność i zmienność między partiami pierwotnych ludzkich perycytów. Dlatego model ten nie powinien być opisywany jako kompletna ludzka BTB, lecz raczej jako uproszczona platforma eksperymentalna. Po drugie, w obecnym badaniu wykorzystano SK-BR-3 jako jedyną linię komórkową raka piersi. Obserwowane fenotypy nie mogą zatem zostać uogólnione na całą biologię BCBM. Walidacja z dodatkowymi podtypami raka piersi, modelami o tropizmie mózgowym oraz sferoidami lub organoidami BCBM pochodzącymi od pacjentów będzie istotna dla ustalenia możliwości uogólnienia wyników i ich znaczenia klinicznego. Po trzecie, obecne dane HMC3-RFP są obserwacjami końcowymi i nie rozstrzygają, czy wzorzec przestrzenny wynika z aktywnej migracji, różnic w przeżywalności czy z istniejącego wcześniej rozkładu. Do rozróżnienia tych możliwości wymagane byłoby podłużne obrazowanie żywych komórek. Po czwarte, dane dotyczące ZO-1, TEER i FITC-dekstranu potwierdzają upośledzenie bariery, ale nie odróżniają przebudowy specyficznej dla BTB od niespecyficznego uszkodzenia śródbłonka; konieczna jest dodatkowa charakterystyka molekularna i kontrole mechanistyczne. Po piąte, ponieważ w tej konfiguracji HBMEC są wysiewane na powierzchnię podstawną membrany, opisany test FITC-dekstranu z kierunku apikalnego do podstawnego jest odczytem integralności bariery, a nie fizjologicznym testem transportu krwi do guza. Badania nad dostarczaniem systemowym powinny polegać na wprowadzeniu znacznika lub leku do dolnej/podstawnej komory skierowanej ku śródbłonkowi i walidacji transportu w kierunku górnej/apikalnej komory z guzem. Na koniec, obecne pomiary funkcjonalne oparto na trzech niezależnych powtórzeniach biologicznych dla każdego stanu. Chociaż taki projekt odróżnia powtórzenia biologiczne od technicznych, zwiększenie liczby niezależnych powtórzeń biologicznych dodatkowo wzmocniłoby ocenę powtarzalności. Wprowadzenie tych ulepszeń, w tym perycytów i materiału pochodzącego od pacjentów, mogłoby stopniowo zwiększyć fizjologiczną i translacyjną istotność platformy.
Oświadczenia
Autorzy nie mają żadnych konfliktów interesów do ujawnienia.
Podziękowania
To dzieło zostało sfinansowane przez Projekt Reformy Edukacyjnej prowincji Liaoning (JG24DB110), Projekt Planu Wskazówek dla Zdrowia Ludzi w Dalian (2025ZDJH01PT101), Program 1+X Drugiej Szpitala Uniwersytetu Medycznego Dalian (2024LCJSYL07) oraz Fundusz Zjednoczony Instytutu Fizykochemii Dalian, Chińskiej Akademii Nauk i Uniwersytetu Medycznego Dalian (DMU-2)&DICP UN202509)
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 0,25% Trypsyna-EDTA (1×) (odrywanie komórek HMC3-RFP) | NCM Biotech | C100C1 | Stosowana do odrywania komórek HMC3-RFP podczas przygotowania komórek. |
| Probówki do wirowania 1,5 mL | Jet Biofil | CFT001015 | Stosowane do zbierania, przemywania i przenoszenia sferoidów nowotworowych. |
| Płytka hodowlana z 12 dołkami | Jet Biofil | TCP011012 | Służy do utrzymania wkładów do hodowli komórkowej z 12 dołkami podczas konstrukcji modelu BBB/BTB. |
| Odczynnik do klarowania 3D hodowli komórkowych | Thermo Fisher | V11326 | Stosowany do klarowania barwionych membran hodowli komórkowych przed montowaniem i obrazowaniem konfokalnym. |
| Wtórne przeciwciało anty-królicze znakowane Alexa Fluor 488 | Proteintech | RGAR002 | Fluorescencyjne przeciwciało wtórne stosowane do detekcji przeciwciał pierwszorzędowych przeciw królikowi w immunofluorescencji. |
| Wtórne przeciwciało anty-mysie znakowane Alexa Fluor 647 | Proteintech | RGAM005 | Fluorescencyjne przeciwciało wtórne stosowane do detekcji przeciwciał pierwszorzędowych przeciw myszy w immunofluorescencji. |
| Rozcieńczalnik przeciwciał | Solarbio | A1800 | Stosowany do rozcieńczania przeciwciał pierwszorzędowych do barwienia immunofluorescencyjnego. |
| Medium montażowe zapobiegające zanikaniu fluorescencji (Anti-fade) | Solarbio | S2100 | Stosowane do montowania barwionych membran i ograniczania zaniku fluorescencji podczas obrazowania. |
| Suplement wzrostu astrocytów (AGS) | ScienCell | 1852 | Suplement stosowany do hodowli ludzkich astrocytów. |
| Medium dla astrocytów (AM) | ScienCell | 1801 | Pożywka hodowlana stosowana dla ludzkich astrocytów oraz jako składnik mieszanej pożywki do górnej komory. |
| Szalka do hodowli komórkowej | Servicebio | CCD-100 | Stosowana do rutynowej hodowli komórkowej i przygotowania sferoidów nowotworowych metodą wiszącej kropli. |
| Kolagen typu I | Corning | 354249 | Stosowany do powlekania naczyń hodowlanych i wkładów do hodowli komórkowej przed wysianiem komórek. |
| Szkiełka coverslip | Citotest | 10212450C | Stosowane do montowania i przygotowania preparatów mikroskopowych. |
| Roztwór barwiący DAPI | Servicebio | G1012-10ML | Stosowany do kontrastowego barwienia jąder podczas barwienia immunofluorescencyjnego. |
| Podstawowe DMEM (1×) | Gibco | C11995500BT | Stosowane jako pożywka podstawowa w teście przepuszczalności FITC-dekstranu. |
| Suplement wzrostu komórek endotelialnych (ECGS) | ScienCell | 1052 | Suplement stosowany do hodowli ludzkich mikro naczyniowych komórek endotelialnych mózgu. |
| Medium dla komórek endotelialnych (ECM) | ScienCell | 1001 | Pożywka hodowlana stosowana dla HBMEC oraz w dolnej komorze modelu BBB/BTB. |
| Płodowa surowica bydlęca (FBS) | Gibco | A5669701 | Suplement surowiczy stosowany w kompletnych pożywkach do hodowli komórkowej. |
| Dekstran znakowany FITC (MW 4 000) | Beyotime | ST2930-50mg | Fluorescencyjny znacznik stosowany do oceny przepuszczalności parakomórkowej i obliczania Papp. |
| Fluorescencyjny rozcieńczalnik przeciwciał | Solarbio | A1840 | Stosowany do rozcieńczania fluorescencyjnych przeciwciał wtórnych do barwienia immunofluorescencyjnego. |
| Lodowcowy kwas octowy | Sigma | 27225 | Stosowany do przygotowania roztworu powlekającego z kolagenu typu I. |
| HA | Ludzkie astrocyty | NA | Komponent astrocytarny do oceny odpowiedzi morfologicznej i markerowej związanej z nowotworem |
| HBMEC | Ludzkie mikro naczyniowe komórki endotelialne mózgu | NA | Komponent bariery endotelialnej BBB/BTB |
| HMC3-RFP | Znakowana RFP ludzka linia komórkowa mikrogleju HMC3 | NA | Komponent mikroglialny do śledzenia fluorescencyjnego |
| Matrigel | Corning | 354230 | Macierz błony podstawnej stosowana jako warstwa oddzielająca sferoidy nowotworowe od przedziału komórek bariery. |
| Kompletna pożywka MEM (z NEAA) (10) | Procell System | PM150410B | Pożywka stosowana jako składnik mieszanej pożywki do hodowli w górnej komorze. |
| Szkiełka przedmiotowe | Citotest | 188105 | Stosowane do montowania wyciętych, zabarwionych membran do obrazowania konfokalnego. |
| Mysie przeciwciało anty-ludzkie GFAP | EMD Millipore | MAB360-25μL | Przeciwciało pierwszorzędowe stosowane do detekcji GFAP w astrocytach za pomocą immunofluorescencji. |
| Paraformaldehyd | Servicebio | G1101-500ML | Stosowany do fiksacji komórek przed barwieniem immunofluorescencyjnym. |
| Proszek PBS (bufor fosforanowy) | Servicebio | G0002-2L | Stosowany do przemywania, równoważenia i etapów przygotowawczych w całym protokole. |
| Roztwór Penicyliny-Streptomycyny (P/S) | Servicebio | G4003-100ML | Suplement antybiotykowy stosowany w kompletnych pożywkach do hodowli komórkowej. |
| Pipeta | Eppendorf | 3123000250 | Stosowana do przenoszenia cieczy podczas hodowli komórkowej i procedur analitycznych. |
| Końcówki do pipet | MWM Bio | 800201 | Stosowane do rutynowego przenoszenia cieczy; zmodyfikowane końcówki z odciętym wierzchołkiem są używane do przenoszenia sferoidów nowotworowych. |
| Królicze poliklonalne przeciwciało anty-ludzkie PAN-CK | MedChemExpress | HY-P81164 | Przeciwciało pierwszorzędowe stosowane do identyfikacji komórek nowotworowych za pomocą immunofluorescencji. |
| Królicze przeciwciało anty-ludzkie ZO-1 | Proteintech | 21773-1-AP | Przeciwciało pierwszorzędowe stosowane do oceny organizacji połączeń ścisłych śródbłonka za pomocą immunofluorescencji. |
| SK-BR-3 | Ludzka linia komórkowa raka piersi | NA | Komponent sferoidu nowotworowego do konstrukcji BTB |
| Wkład do płytki do hodowli tkankowej (0,4 μm, membrana PET), płytki 12-dołkowe | Jet Biofil | TCS016012 | Porowaty wkład do hodowli komórkowej stosowany do konstrukcji modelu kokultury BBB/BTB. |
| Miernik oporu elektrycznego transepitelialnego (TEER) | Millicell | ERS-2 | Stosowany do pomiaru oporu elektrycznego w poprzek wkładu do hodowli komórkowej jako odczyt integralności bariery. |
| TrypLE Express (1×) (odrywanie komórek HBMEC i HA) | Gibco | 12605-010 | Stosowany do odrywania komórek HBMEC i HA podczas przygotowania komórek. |
Bibliografia
- Park M, et al. Breast cancer metastasis: mechanisms and therapeutic implications. Int J Mol Sci. 2022;23(12):6806. doi:10.3390/ijms23126806.
- Wang R, et al. The clinicopathological features and survival outcomes of patients with different metastatic sites in stage IV breast cancer. BMC Cancer. 2019;19(1):1091. doi:10.1186/s12885-019-6311-z.
- McConnell HL, Mishra A. Cells of the blood-brain barrier: an overview of the neurovascular unit in health and disease. Methods Mol Biol. 2022;2492:3–24.
- Dong X. Current strategies for brain drug delivery. Theranostics. 2018;8(6):1481–1493.
- Gril B, et al. Reactive astrocytic S1P3 signaling modulates the blood-tumor barrier in brain metastases. Nat Commun. 2018;9(1):2705. doi:10.1038/s41467-018-05030-w.
- Pitz MW, Desai A, Grossman SA, Blakeley JO. Tissue concentration of systemically administered antineoplastic agents in human brain tumors. J Neurooncol. 2011;104(3):629–638.
- Adkins CE, et al. Characterization of passive permeability at the blood-tumor barrier in five preclinical models of brain metastases of breast cancer. Clin Exp Metastasis. 2016;33(4):373–383.
- Lockman PR, et al. Heterogeneous blood-tumor barrier permeability determines drug efficacy in experimental brain metastases of breast cancer. Clin Cancer Res. 2010;16(23):5664–5678.
- Song H-T, et al. Rat model of metastatic breast cancer monitored by MRI at 3 tesla and bioluminescence imaging with histological correlation. J Transl Med. 2009;7:88. doi:10.1186/1479-5876-7-88.
- Miarka L, Valiente M. Animal models of brain metastasis. Neurooncol Adv. 2021;3(Suppl 5):v144–v156.
- Kim J-H, et al. Inflammatory mammary carcinoma with metastasis to the brain and distant organs in a spayed Shih Tzu dog. J Vet Diagn Invest. 2011;23(5):1079–1082.
- Wiese DA, Thaiwong T, Yuzbasiyan-Gurkan V, Kiupel M. Feline mammary basal-like adenocarcinomas: a potential model for human triple-negative breast cancer (TNBC) with basal-like subtype. BMC Cancer. 2013;13:403. doi:10.1186/1471-2407-13-403.
- Srinivasan B, et al. TEER measurement techniques for in vitro barrier model systems. J Lab Autom. 2015;20(2):107–126.
- Harding IC, et al. Developing a transwell millifluidic device for studying blood-brain barrier endothelium. Lab Chip. 2022;22(23):4603–4620.
- Liu X, et al. The role of neurovascular unit damage in the occurrence and development of Alzheimer’s disease. Rev Neurosci. 2019;30(5):477–484.
- Nikolakopoulou AM, et al. Pericyte loss leads to circulatory failure and pleiotrophin depletion causing neuron loss. Nat Neurosci. 2019;22(7):1089–1098.
- Bell RD, et al. Pericytes control key neurovascular functions and neuronal phenotype in the adult brain and during brain aging. Neuron. 2010;68(3):409–427.
Przedruki i uprawnienia
Ten artykuł został opublikowany
Film wkrótce dostępny