Niniejsza praca opisuje protokół ilościowego oznaczania amin biogennych w mózgach Drosophila z wykorzystaniem wysokosprawnej chromatografii cieczowej sprzężonej z detekcją elektrochemiczną (HPLC-ECD). Wykorzystując podatność genetyczną Drosophila oraz metodę HPLC-ECD, podejście to może pomóc badaczom w wyjaśnieniu molekularnych i genetycznych mechanizmów leżących u podstaw zmian w poziomie amin biogennych w zaburzeniach mózgu.
Artykuł metodologiczny
Wykorzystanie wysokosprawnej chromatografii cieczowej do badania zmian w poziomach amin biogennych w modelach zaburzeń mózgu u Drosophila
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Wiele zaburzeń neuropsychiatrycznych i neurodegeneracyjnych charakteryzuje się zaburzeniami neurotransmiterów w mózgu, w tym zmianami poziomów amin biogennych (BA), takich jak dopamina (DA) i serotonina (5-hydroksytryptamina; 5-HT), a także zaburzeniami ich uwalniania lub wychwytu zwrotnego. Zmiany neurochemiczne te korelują z wyraźnymi, kluczowymi fenotypami behawioralnymi, takimi jak m.in. deficyty lokomotoryczne, fragmentacja snu i zmienione reakcje na stres. Ze względu na fakt, że główne układy BA oddziałują na siebie, modele chorób często wykazują skoordynowane zmiany w obrębie wielu amin, a nie izolowane zmiany w jednym neurotransmiterze. Dlatego dokładne, jednoczesne ilościowe oznaczenie kilku BA jest niezbędne do interpretacji wyników behawioralnych i genetycznych. Drosophila melanogaster stanowi system podatny na modyfikacje genetyczne, który pozwala na modelowanie takich zaburzeń i zmian w neurotransmiterach, jednak BA występują w tkance mózgowej muchy w bardzo niskich stężeniach, od nanomolarnych do femtomolarnych, a niewielki rozmiar ośrodkowego układu nerwowego Drosophila sprawia, że ich wykrywanie jest trudne technicznie. W niniejszej pracy opisano protokół wykrywania i ilościowego oznaczania DA, 5-HT oraz oktopaminy w mózgach much z wykorzystaniem wysokosprawnej chromatografii cieczowej sprzężonej z detekcją elektrochemiczną (HPLC-ECD). Metodę HPLC-ECD zastosowano do wykrycia zmian poziomu DA i 5-HT w mózgu w modelu choroby Parkinsona u muchy, opartym na dopaminergicznej nadekspresji ludzkiej alfa-synukleiny. Zastosowanie tego protokołu w modelu choroby Parkinsona z alfa-synukleiną wykazało znacznie podwyższony poziom dopaminy, przy niezmienionym poziomie serotoniny w porównaniu z grupą kontrolną, co jest zgodne z wczesnymi kompensacyjnymi mechanizmami dopaminergicznymi. Podejście to zapewnia czułą, niskokosztową i łatwo dostępną metodę multipleksowego oznaczania BA z ograniczonej ilości tkanki Drosophila. Umożliwia ono również systematyczny screening modyfikatorów genetycznych i potencjalnych środków terapeutycznych celujących w szlaki monoaminergiczne istotne dla zaburzeń mózgu u ludzi.
Wprowadzenie
Neuroprzekaźniki monoaminergiczne, znane również jako aminy biogenne (BA), regulują szereg kluczowych cech neurologicznych i behawioralnych u różnych taksonów zwierząt, w tym m.in. stany motywacyjne, sen, uczenie się, pamięć oraz regulację nastroju1,2,3,4. Rozregulowanie poziomu BA, takich jak dopamina (DA) i serotonina (5-hydroksytryptamina; 5-HT), jest kluczową cechą schorzeń neurodegeneracyjnych, takich jak choroba Parkinsona, a także zaburzeń psychiatrycznych, np. schizofrenii3,5. Niemniej jednak zależność między progresją choroby a konkretnymi zmianami neurochemicznymi w poszczególnych obszarach mózgu i podtypach neuronów nie została jeszcze w pełni opisana. Odpowiedź na takie pytania wymaga systemu modelowego, który jest nie tylko podatny na manipulacje genetyczne, ale także zdolny do odtworzenia fenotypów fizjologicznych i behawioralnych istotnych dla przebiegu choroby. Drosophila melanogaster stała się potężnym systemem modelowym do tego celu6,7. Muszka owocówka posiada wyraźne, dobrze scharakteryzowane populacje neuronów dopaminergicznych i serotonergicznych7,8, a szlaki biosyntetyczne, transportery i rodziny receptorów sterujące tymi układami są funkcjonalnie konserwatywne w stosunku do ich ssaczych odpowiedników9. Taka konserwatywność stanowi podstawę mechanistyczną dla przenoszenia odkryć neurochemicznych uzyskanych u muchy na szerszy kontekst chorób ludzkich.
Użyteczność muszek w modelowaniu zaburzeń neurologicznych i psychiatrycznych wykracza daleko poza homologię genetyczną. Jako system podatny na manipulacje genetyczne, narzędzia dostępne w modelach much umożliwiają specyficzne dla komórek badania przesiewowe genów i szlaków, co pozwala ujawnić czynniki nasilające lub cofające objawy związane z chorobą, ułatwiając tym samym odkrywanie nowych celów terapeutycznych10. Co więcej, binarne systemy ekspresji mogą być skierowane nie tylko na konkretne podtypy neuronów monoaminergicznych, ale także na określone okna rozwojowe11, zapewniając tym samym niezwykłą precyzję przestrzenną i czasową. Model z muszką owocową zapewnia również zestaw mierzalnych zachowań, które mogą być wykorzystane do oceny odtworzenia objawów związanych z chorobą, a także do testowania strategii interwencyjnych w celu ich niwelowania7. Na przykład ugruntowane modele genetyczne choroby Parkinsona u much obejmują zwierzęta z mutacjami utraty funkcji Pink1 i parkin, a także muchy nadekspresujące wersje typu dzikiego lub wersje z mutacjami punktowymi ludzkiej α-synukleiny (α-syn), SNCA12,13,14. Wszystkie te modele much wykazują niektóre z najważniejszych cech charakterystycznych tej choroby, w tym deficyty ruchowe, degenerację neuronów dopaminergicznych, dysfunkcję mitochondriów oraz agregację α-syn u much niosących ludzką sekwencję15,16,17,18,19. Z drugiej strony, zaburzenia neurorozwojowe i aberracyjna sygnalizacja dopaminergiczna są również uważane za jedne z przyczyn schorzeń takich jak schizofrenia20. Zgodnie z tym, Drosophila była wykorzystywana do modelowania objawów przypominających schizofrenię, w tym nadaktywności, zmienionej reaktywności sensorycznej i obniżonego poziomu pobudzenia u dorosłych much21,22,23,24,25. Wspólnie modele te demonstrują, że Drosophila potrafi odzwierciedlić zarówno postęp zaburzeń neurodegeneracyjnych, jak i rozwojowe uwarunkowania zaburzeń psychiatrycznych.
Powiązanie zmian behawioralnych w modelach genetycznych ze zmianami neurochemicznymi wymaga dokładnych i powtarzalnych pomiarów ilościowych amin biogennych (AB). Ponadto w wielu chorobach dysregulacja monoamin nie ogranicza się do jednego systemu neurotransmiterów. U mutantów much Pink1B9 zawartość serotoniny jest obniżona, a aktywność transportera serotoniny jest upośledzona jeszcze przed pojawieniem się dysfunkcji motorycznych26. Wczesna farmakologiczna pomoc w sygnalizacji serotonergicznej zapobiega późniejszej utracie dotkniętych neuronów dopaminergicznych u mutantów much Pink1B9. Zmiany serotonergiczne mogą zatem wyprzedzać i przyczyniać się przyczynowo do patologii dopaminergicznej, co jest relacją niewidoczną w odczytach behawioralnych lub pomiarach pojedynczego analityku. Podobnie zmiany w systemie serotoninergicznym obserwuje się w modelach schizofrenii22,27,28. Ponadto główne aminy biogenne u Drosophila oddziałują na siebie w sposób częściowo redundantny i częściowo antagonistyczny, tak że stan jednego systemu jest słabym wskaźnikiem stanu pozostałych29. Dlatego ilościowe oznaczenie poszczególnych AB w tych modelach jest kwestią kluczową.
Aminy biogenne są elektrochemicznie aktywnymi monoaminami (np. katecholaminami, indolaminami), które występują w tkankach biologicznych w niskich stężeniach od nanomolarnych do femtomolarnych, co sprawia, że ich jednoczesne wykrywanie jest wymagające technicznie30,31. Rozwiązanie kwestii dotyczących genetycznych i molekularnych podstaw zmian poziomu BA w przebiegu chorób wymaga zatem zastosowania metody analitycznej zdolnej do rozdzielenia wielu strukturalnie podobnych amin. Metoda ta musi również pozwalać na wykrywanie stężeń istotnych biologicznie w niewielkich objętościach tkanek dostępnych w preparatach ośrodkowego układu nerwowego Drosophila. Wysokosprawna chromatografia cieczowa (HPLC) sprzężona z detekcją elektrochemiczną (ECD) spełnia te wymagania. HPLC jest techniką analityczną, która umożliwia rozdzielenie różnych cząsteczek w próbce na podstawie ich właściwości fizykochemicznych. Połączenie systemu chromatograficznego z detektorem elektrochemicznym pozwala na szybką i wysokoczułą analizę analitów aktywnych elektrochemicznie, takich jak aminy biogenne. Detektory elektrochemiczne działają poprzez indukowanie utleniania w momencie wypływu analitów z kolumny, przekształcając oddziaływania na powierzchni elektrody w mierzalny sygnał elektryczny. Inne techniki, takie jak spektrometria mas, mogą oferować porównywalną selektywność i czułość32,33. Jednak niski koszt analizy pojedynczej próbki oraz niezawodność HPLC-ECD sprawiają, że metoda ta jest idealna do rutynowego i dostępnego wykrywania amin biogennych w laboratoriach badawczych biologii. Połączenie tej techniki z potencjałem genetyki Drosophila umożliwia szybką i prostą analizę genetycznych i molekularnych podstaw zmian w układach aminergicznych.
W niniejszym badaniu wykorzystano genetyczny model choroby Parkinsona oparty na nadekspresji α-syn, aby przedstawić protokół służący do określania różnic w zawartości BA w próbkach mózgu Drosophila. Artykuł opisuje również, w jaki sposób podejście to może być wykorzystane do badania podstaw molekularnych zaburzeń mózgu.
Protokół
Surowe dane przedstawione w niniejszej pracy są dostępne pod adresem https://doi.org/10.6084/m9.figshare.33868519.
Odczynniki i sprzęt wykorzystane w procedurze wymieniono w Tabeli Materiałów.
1. Synchronizacja i zbieranie much
- Przed pobraniem próbek poddaj muszki o interesującym genotypie entrainowaniu w stałych cyklach 12 h światła i 12 h ciemności, w stałej temperaturze 25 °C, przez 3 dni. Aby zapewnić odpowiednią liczbę muszek dla każdego genotypu/warunku, entrainuj 3–9 replik biologicznych po 5 muszek każda.
- W dniu pobierania próbek umieść probówki o pojemności 1.5 mL na suchym lodzie. Użyj jednej probówki dla każdego genotypu/warunku muszek. Za pomocą lejka przelej muszki bezpośrednio do probówek, aby je błyskawicznie zamrozić.
UWAGA: Pobieranie próbek bezpośrednio na suchym lodzie umożliwia kolekcję o różnych porach dnia bez potencjalnie szkodliwego wpływu anestezji. Na tym etapie próbki można przechowywać w temperaturze -80 °C w nieskończoność lub przetworzyć natychmiast. Grupy eksperymentalne i kontrolne należy pobrać w tym samym czasie, aby uniknąć zakłóceń wynikających z dobowych wariacji. W przedstawionych reprezentatywnych wynikach muszki pobrano 3 h po przejściu w fazę światła.
2. Disekcja mózgu i przygotowanie próbek
- Aby przygotować się do sekcji tkanek, należy użyć niskoprofilowego pojemnika, np. pokrywki od pudełka z końcówkami do pipet, i wypełnić go lodem. Na wierzchu należy położyć szalkę Petriego o średnicy 30 mm, która będzie służyć jako platforma do sekcji. Przeprowadzanie sekcji tkanek na lodzie, zwłaszcza przy użyciu stereomikroskopu z lampami emitującymi ciepło, zapobiega degradacji tkanki.
- Na szalkę należy nanieść 200 µL kropli lodowatego 1x roztworu soli fosforowej w buforze (PBS), a następnie pod stereomikroskopem wypreparować każdą muchę za pomocą cienkich, ostrych pincet.
- Aby wypreparować mózg, należy chwycić muchę za odwłok jedną pincetą i zanurzyć ją w kropli PBS. Nie puszczając muchy, należy usunąć głowę, chwytając miejsce połączenia głowy z ciałem.
- Zarówno ciało, jak i głowa będą unosić się na PBS. Należy usunąć ciało z kropli i je odrzucić. Za pomocą pincety należy chwycić głowę za trąbkę, aby ponownie wcisnąć ją do kropli PBS.
- Używając drugiej pincety, należy chwycić krawędź oka, aby unieruchomić głowę, a następnie usunąć trąbkę.
- Należy chwycić tkankę wokół otworu powstałego po usunięciu trąbki i pociągnąć. Mózg powinien zostać odsłonięty.
- Mózg należy delikatnie oczyścić z resztek tkanek głowy, ponieważ pozostałe fragmenty mogą wpłynąć na kwantyfikację. Należy również wyjmować z probówki przechowywanej na suchym lodzie po jednej muszce na raz, aby zapobiec degradacji próbek.
- Za pomocą końcówki do pipety należy przenieść niewielką objętość zawierającą wypreparowany mózg bezpośrednio do probówki z lodowatym 1x PBS. Krok ten należy powtarzać, aż uzyska się łącznie pięć mózgów na jedną replikę biologiczną. Aby zapobiec przywieraniu mózgu do końcówki pipety, należy ją najpierw przygotować, pobierając i wydalając kilka razy roztwór z płytki do sekcji.
- Po zakończeniu sekcji należy przeprowadzić krótkie, 10-sekundowe wirowanie przy 2,000 x g, aby zebrać mózgi na dnie probówki.
- Należy ostrożnie zastąpić 1x PBS ilością 50 µL 0,2 N kwasu nadchlorowego (PCA) na lodzie.
UWAGA: PCA jest silnie żrący. Alikwoty należy przygotować wcześniej pod wyciągiem i używać odpowiednich środków ochrony osobistej podczas pracy. Obejmuje to gogle odporne na chemikalia, wytrzymałe rękawice neoprenowe oraz fartuch gumowy.
UWAGA: Alternatywnie mózgi można zbierać bezpośrednio w 50 µL 0,2 N PCA. W takim przypadku należy użyć igły do przenoszenia mózgów, aby uniknąć niepożądanego przeniesienia PBS. - Do homogenizacji tkanki należy użyć homogenizatora ultradźwiękowego. Należy kontrolować amplitudę, aby uniknąć generowania ciepła. W tym przypadku stosujemy 10 kHz w cyklach krótkich 3-sekundowych impulsów, po których następują 3 s na lodzie.
- Próbkę należy wirować przez 15 min przy 15,000 x g i 4 °C. Należy zebrać 40 µL nadnadciwiu do nowej probówki przechowywanej na lodzie. Przechowywanie próbek w PCA zapobiega utlenianiu BA. Należy unikać pobierania tkanki na tym etapie, ponieważ prawdopodobnie zapcha ona system. Jeśli zostanie pobrana tkanka, można zastosować filtry strzykawkowe, jednak wpłynie to negatywnie na odzysk próbki.
- Bezpośrednio przed analizą próbek należy dodać 8 µL 1 M octanu sodu. Pozwala to zbliżyć pH próbki do pH fazy ruchomej wynoszącego 3,5, co pozwala zachować kształt piku podczas przechodzenia próbki przez detektor. Próbki są gotowe do wstrzyknięcia.
3. Przygotowanie fazy ruchomej
- Przygotuj 1 L cytrynianowo-octanowej fazy ruchomej, wlewając 870 mL wody ultrapurej do szklanej butelki.
- Dodaj do naczynia 5,61 g trydratu octanu sodu oraz 8,79 g bezwodnego kwasu cytrynowego i mieszaj do całkowitego rozpuszczenia. Upewnij się, że pH wynosi 3,5; w przeciwnym razie odpowiednio je skoryguj.
- W dygestorium dodaj 130 mL metanolu klasy HPLC.
- Dodaj 130 mg uwodnionego 1-oktansulfonianu sodu i dokładnie wymieszaj.
- Przefiltruj roztwór przez filtr próżniowy 0,2 µm, mieszając go przez 1 h. Mieszanie pozwala na usunięcie pęcherzyków gazu z roztworu, a próżnia wspomaga ten proces oraz samą filtrację.
- Poddaj roztwór działaniu kąpieli ultradźwiękowej (42 kHz) przez 30 min w celu usunięcia pęcherzyków powietrza.
- Owiń pojemnik folią aluminiową i odpowiednio go opisz.
UWAGA: Jakość odczynników ma ogromny wpływ na czasy retencji. Stosowanie odczynników klasy HPLC pomaga zachować spójność pomiędzy poszczególnymi analizami. Używanie tych samych odczynników podczas ponownego przygotowywania fazy ruchomej zapewnia również powtarzalność wyników.
4. Przygotowanie standardów
- W celu przygotowania standardów należy odważyć oddzielnie 10 mg OA, DA oraz 5-HT na papierze wagowym.
- Odważone ilości należy umieścić w osobnych szklanych butelkach o pojemności 125 mL, aby przygotować poszczególne roztwory zapasowe. Należy ponownie zważyć pusty papier, aby obliczyć dokładną ilość OA, DA lub 5-HT, która trafiła do butelek.
- Oblicz ilość rozpuszczalnika, którą należy dodać, aby osiągnąć stężenie analitytu wynoszące 100 ng/µL. Jeśli dodano pełne 10 mg, należy użyć 100 mL rozpuszczalnika. W przypadku OA i DA jako rozpuszczalnika należy zastosować 0,1 M kwas solny. Dla 5-HT należy zamiast tego użyć 0,1 M kwasu octowego.
- Standardy należy uzupełnić o 2Na-EDTA do stężenia końcowego 1 mg/mL. Mieszać dokładnie do całkowitego rozpuszczenia. Butelkę należy owinąć folią aluminiową w celu ochrony przed światłem i przechowywać w temperaturze 4 °C.
UWAGA: Standardy można przechowywać w tych warunkach do 3 miesięcy.
5. Przygotowanie roztworów kalibracyjnych
UWAGA: Aby sporządzić krzywą kalibracyjną, należy przygotować trzy standardy z mieszaniną BA o różnych stężeniach. W tym przykładzie stosujemy roztwory robocze o stężeniach 0,03 ng/µL, 0,01 ng/µL i 0,001 ng/µL. Wstrzyknięcie 10 µL pozwoli uzyskać ilości standardów wynoszące odpowiednio 0,3 ng, 0,1 ng i 0,01 ng.
- Przygotuj roztwór stokowy o stężeniu 1 ng/µL, dodając 1 µL każdego z roztworów stokowych BA o stężeniu 100 ng/µL do 97 µL 0,02 M kwasu octowego z 1 mg/mL 2Na-EDTA. Dokładnie wymieszaj.
- Pobierz 2 µL roztworu stokowego 1 ng/µL i dodaj do 64,6 µL 0,02 M kwasu octowego z 1 mg/mL 2Na-EDTA. Dokładnie wymieszaj. Jest to roztwór roboczy o stężeniu 0,03 ng/µL.
- Pobierz 2 µL roztworu stokowego 1 ng/µL i dodaj do 18 µL 0,02 M kwasu octowego z 1 mg/mL 2Na-EDTA. Dokładnie wymieszaj. Jest to roztwór roboczy o stężeniu 0,1 ng/µL. Ten roztwór nie jest wstrzykiwany w tym protokole; służy on wyłącznie do rozcieńczeń seryjnych.
- Pobierz 4 µL roztworu stokowego 0,1 ng/µL i dodaj do 36 µL 0,02 M kwasu octowego z 1 mg/mL 2Na-EDTA. Dokładnie wymieszaj. Jest to roztwór roboczy o stężeniu 0,01 ng/µL.
- Na koniec pobierz 4 µL roztworu stokowego 0,01 ng/µL i dodaj do 36 µL 0,02 M kwasu octowego z 1 mg/mL 2Na-EDTA. Dokładnie wymieszaj. Jest to roztwór roboczy o stężeniu 0,001 ng/µL.
UWAGA: Przechowuj standardy w pudełku chroniącym przed światłem. Wszystkie standardowe roztwory robocze muszą być przygotowane na świeżo.
6. Konfiguracja i przeprowadzenie wtrysku
UWAGA: Wszystkie systemy HPLC działają według tych samych zasad. Jednak różnice w sprzęcie mogą znacząco wpłynąć na czas retencji i długość analizy. Ponadto czułość detektora ECD spowoduje uzyskanie różnych granic wykrywalności, które będą musiały zostać określone empirycznie. W niniejszym badaniu wykorzystano system wysokosprawnej chromatografii cieczowej (HPLC) wyposażony w kolumnę C18 w fazie odwróconej.
- Włącz urządzenie HPLC, w tym pompę oraz detektor elektrochemiczny. Ustaw prędkość przepływu na 100 µL/min i poczekaj, aż detektor elektrochemiczny osiągnie stabilną linię bazową. Powinno to zająć od 10 min do 30 min.
- Gdy próbki będą gotowe do wstrzyknięcia, ustaw prędkość przepływu na 500 µL/min. Pozostaw system do stabilizacji na 5 min. W tym czasie trzykrotnie przepłucz strzykawkę Hamiltona o pojemności 20 µL wodą ultrapure.
- Pobierz do strzykawki 10–20 µL próbki. Objętość zależy od pojemności pętli próbkowania. Więcej informacji znajduje się w instrukcji obsługi pętli próbkowania.
- Podczas wtryskiwania upewnij się, że w strzykawce nie ma pęcherzyków powietrza. Każdy uwięziony gaz będzie zakłócał prawidłowe pompowanie fazy ruchomej lub pomiary ECD. Jeśli obecne są pęcherzyki, zwróć próbkę i spróbuj ponownie napełnić strzykawkę.
- Wprowadź igłę całkowicie do portu wtryskowego. Ustaw dźwignię w pozycji załadunku i wstrzyknij próbkę, naciskając tłok strzykawki, aż cały płyn zostanie wypchnięty ze strzykawki. Przełącz dźwignię injektora do pozycji „inject”. Analiza została rozpoczęta i w tych warunkach powinna zakończyć się w ciągu 30–35 min.
- Jeśli do analizy pozostały kolejne próbki, pozwól systemowi pracować przez 10–15 min przy przepływie 500 µL/min przed wstrzyknięciem następnej.
UWAGA: Jeśli występują stałe fluktuacje sygnału ECD, sprawdź zmiany ciśnienia w systemie. Gaz uwięziony w układzie może powodować nierównomierny przepływ i tło wyższe niż normalnie. Aby rozwiązać ten problem, przepłucz system nowym roztworem z dużą prędkością, z pominięciem detektora ECD.
7. Pobieranie i analiza danych
UWAGA: Dostępnych jest wiele przetworników analogowo-cyfrowych oraz oprogramowania do zbierania i analizy tego typu danych. Mogą one różnić się sposobem przetwarzania danych, jednak opierają się na tych samych ogólnych zasadach. W niniejszym badaniu zastosowano odpowiednio oprogramowanie do konwersji danych oraz oprogramowanie do akwizycji i analizy danych chromatograficznych.
- Zmiany prądu/napięcia wynikające z utleniania BAs, rejestrowane przez ECD, zostaną przekształcone przez przetwornik analogowo-cyfrowy. Stężenie BAs jest proporcjonalne do zmiany prądu/napięcia.
- Należy wykorzystać pole pod krzywą uzyskane z wykresów zależności prądu od czasu z pomiarów standardowych BAs do wyznaczenia krzywej kalibracyjnej. Wartości zostaną przedstawione za pomocą regresji liniowej na wykresie Prąd/Napięcie (nA lub mV) względem Ilości (ng).
- Korzystając z równania liniowego, oblicz stężenie BAs w badanej próbce.
Wyniki
Związki biologiczne utleniają się przy różnych napięciach. W złożonej matrycy, takiej jak tkanki mózgowe, wybór odpowiedniego potencjału ECD umożliwi czystsze i dokładniejsze oznaczanie ilościowe. W tym przypadku wybrano dwa różne napięcia, aby wykazać wpływ tego czynnika na identyfikację i oznaczanie ilościowe OA, DA oraz 5-HT w próbkach mózgu Drosophila. Przy użyciu 950 mV możemy łatwo wykryć te 3 aminy w mieszaninie (Ryc. 1A), podczas gdy przy 650 mV obserwuje się jedynie dopaminę i serotoninę (Ryc. 1B). Jest to zgodne z napięciami utleniania tych związków: 900–1000 mV dla OA oraz 600–700 mV dla DA i 5-HT. Czasy retencji dla OA, DA i 5-HT wynoszą odpowiednio 6 min, 11 min i 29 min. Oznaczanie ilościowe trzech różnych ilości, 0,01 ng, 0,1 ng i 0,3 ng, daje porównywalne krzywe kalibracyjne dla 950 mV lub 650 mV (Ryc. 1C,D, odpowiednio). Krzywe te wykazują liniowość i czułość analizy dla każdego anality w badanym zakresie stężeń przy każdym potencjale detekcji.
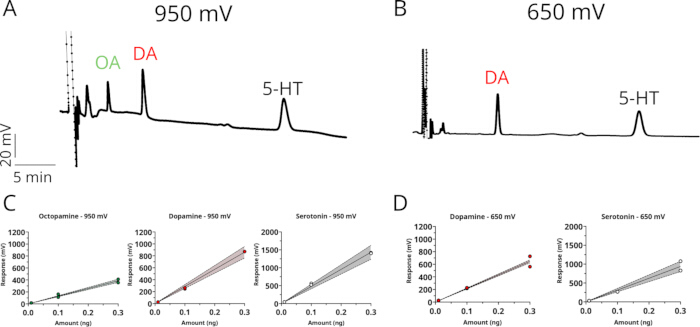
Rysunek 1: Detekcja i kwantyfikacja amin biogennych za pomocą HPLC-ECD przy dwóch potencjałach utleniania. (A,B) Reprezentatywne chromatogramy pokazujące rozdzielenie standardów oktopaminy (OA), dopaminy (DA) i serotoniny (5-HT) wykrytych przy zastosowanym potencjale (A) 950 mV lub (B) 650 mV. Oś pionowa: odpowiedź (mV); oś pozioma: czas retencji (5 min na jedną kreskę, wskazane przez pasek skali). (C,D) Krzywe kalibracyjne dla każdego analizowanego związku przy (C) 950 mV i (D) 650 mV, przedstawiające odpowiedź piku (mV) w funkcji ilości standardu (ng; 0,01–0,3 ng). Linie ciągłe reprezentują dopasowania regresji liniowej, zacienione pasy wskazują 95% przedziały ufności, a kółka wypełnione/puste reprezentują 2 pojedyncze wstrzyknięcia standardu na każdą koncentrację. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Złożone próbki, takie jak ekstrakty z mózgu, są zazwyczaj odpowiedzialne za znaczne tło biologiczne. Postępując zgodnie z opisanym tutaj protokołem, postanowiliśmy określić wpływ napięcia elektrody na detekcję i kwantyfikację BA w próbkach mózgu. Dorosłe samce much zbierano po włączeniu światła po 2 pełnych dniach synchronizacji, a mózgi wypreparowywano w lodowatym PBS, a następnie umieszczano w 0,2 N PCA na lodzie. Po dysocjacji tkanki i wirowaniu, nadsącz zrównoważono za pomocą 1 M octanu sodu i wstrzyknięto 10 µL. Ustawienie potencjału elektrody na 950 mV daje piki dla oktopaminy, dopaminy i serotoniny w odpowiednich czasach retencji (Rysunek 2A, linia czarna). Ich tożsamość została dodatkowo potwierdzona poprzez analizę próbki wzbogaconej o znane ilości (po 0,01 ng każdego) poszczególnych BA (Rysunek 2A, linia czerwona). Zaobserwowano jednak kilka dodatkowych pików w pobliżu analizowanych substancji, co może utrudniać kwantyfikację. Ustawienie potencjału elektrody na 650 mV rozwiązuje ten problem kosztem detekcji oktopaminy (Rysunek 2B). Podobnie jak na Rysunku 1, OA nie jest rozdzielana przy 650 mV, co jest zgodne z jej wyższym potencjałem utleniania.
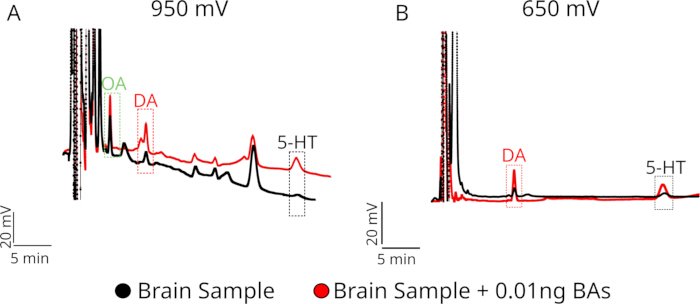
Rycina 2: Identyfikacja endogennych amin biogennych w próbkach mózgu poprzez wzmocnienie piku (spike-in) przy dwóch potencjałach utleniania. (A,B) Reprezentatywne chromatogramy ekstraktu z tkanki mózgowej analizowanego metodą HPLC-ECD przy przyłożonym potencjale (A) 950 mV lub (B) 650 mV, przedstawione przed (linia czarna, „Brain Sample”) i po (linia czerwona, „Brain Sample + 0.01 ng BAs”) dodaniu znanej ilości (0.01 ng) standardów octopaminy (OA), dopaminy (DA) i serotoniny (5-HT). Przerywane ramki wskazują okna czasu retencji dla każdego anality. Oś pionowa: odpowiedź (20 mV, wskazana skalą); oś pozioma: czas retencji (5 min, wskazany paskiem skali). Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
Postępując zgodnie z tym samym protokołem, wykorzystano metodę HPLC-ECD w celu wykrycia różnic w zawartości amin biogennych w mózgach much wykazujących ekspresję α$\alpha$-synukleina w neuronach dopaminergicznych (TH-T2A-GAL4 > UAS-SNCA.J34), model muchy w chorobie Parkinsona. Poprzednie badania z wykorzystaniem modelu PD opartego na mutacjach w genie Pink1 wykazali różnice w poziomach dopaminy u much w wieku od 0 do 3 dni35W niniejszym badaniu do porównania poziomu dopaminy i serotoniny wykorzystano muchy w wieku od 3 do 6 dni. Poziomy dopaminy były znacząco podwyższone u much z PD w porównaniu z muchami kontrolnymi (Rycina 3A), podczas gdy poziom serotoniny nie uległ zmianie (Rysunek 3B). Podwyższone poziomy dopaminy we wczesnych etapach mogą odzwierciedlać mechanizmy kompensacyjne przed wystąpieniem objawów PD w tym modelu (przegląd w Blesa J i wsp.36).
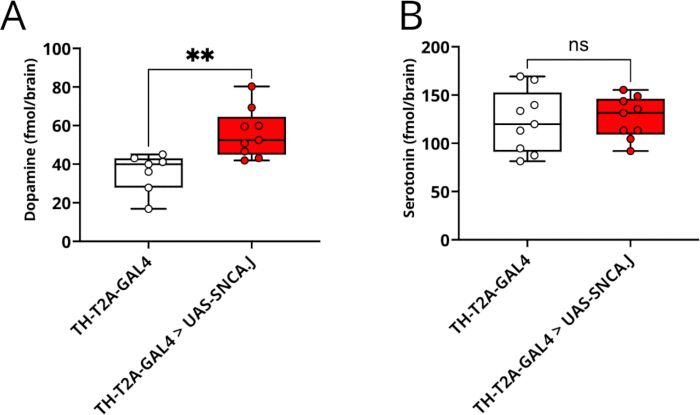
Rysunek 3: Ilościowe oznaczenie poziomu dopaminy i serotoniny w modelu choroby Parkinsona u Drosophila za pomocą HPLC-ECD. Poziomy dopaminy (A) i serotoniny (B) w tkance całego mózgu, wyrażone w fmol/brain, u much kontrolnych (TH-T2A-GAL4, n = 7 w A oraz n = 9 w B) i w modelu choroby Parkinsona (TH-T2A-GAL4 > UAS-SNCA.J, n = 9). W tym modelu zoptymalizowana pod kątem kodonów sekwencja ludzkiej α-synukleiny (SNCA.J) jest selektywnie nadeksprymowana w neuronach dopaminergicznych pod kontrolą drivera TH-T2A-GAL4. Dane przedstawiono na wykresach pudełkowych (mediana, rozstęp międzykwartylowy oraz min–max) z naniesionymi poszczególnymi punktami danych, z których każdy reprezentuje jedną powtórkę biologiczną (n) obejmującą 5 połączonych mózgów. Istotność statystyczną określono za pomocą nieparzystego t-test (**p < 0.01, ns, brak istotności). Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
Dyskusja
HPLC jest techniką rozdziału o wysokim stopniu możliwości dostosowania. W związku z tym wiele etapów niniejszego protokołu można modyfikować. Wiarygodność wyników zależy od dokładnego monitorowania i spójności tych modyfikacji. Względarna polarność fazy stacjonarnej i ruchomej definiuje tryb rozdziału: w fazie normalnej polarna faza stacjonarna jest zestawiona z niepolarną fazą ruchomą, natomiast w fazie odwróconej niepolarna faza stacjonarna jest zestawiona z polarną fazą ruchomą. Analiza amin biogennych w tkankach biologicznych zazwyczaj wykorzystuje warunki fazy odwróconej. W niniejszym badaniu zastosowano ruchomą fazę cytrynianowo-octową z metanolem jako głównym rozpuszczalnikiem; jednak podobne pomiary przeprowadzono pomyślnie z użyciem buforu fosforanowego z acetonitrylem jako rozpuszczalnikiem22,26,35. Zatem skład buforu może ulegać zmianie w zależności od pożądanej rozdzielczości i kształtu pików. Zmiana składu fazy ruchomej prawdopodobnie wpłynie na czasy elucji37. Może to spowodować nakładanie się pików, co utrudni lub uniemożliwi kwantyfikację. W celu rozwiązania tych problemów najskuteczniejszym rozwiązaniem są zmiany pH, ponieważ oddziaływanie analitu z kolumną zależy w dużym stopniu od jego pKa38.
Aminy mogą ulegać degradacji oksydacyjnej, dlatego pobieranie i traktowanie tkanek są kluczowymi punktami protokołu. Ważnym krokiem jest zbieranie próbek na suchym lodzie i przechowywanie ich w temperaturze -80 °C do momentu analizy. Po wypreparowaniu próbki muszą zostać szybko zhomogenizowane w warunkach kwasowych. Zapobiega to rozkładowi BAs30,39,40. W tym kontekście inne kwasy mogą być użyteczne, jeśli dostęp do PCA jest ograniczony. Do ekstrakcji można by również zastosować kombinację kwasu mrówkowego, będącego nieeksplozywną alternatywą utleniacza dla PCA, oraz metanolu; nie testowaliśmy jednak tej metody w próbkach mózgu Drosophila41.
Wybór detektora determinuje, co można zmierzyć i z jaką czułością; popularne opcje obejmują detektory UV/widzialne, fluorescencyjne oraz spektrometrię mas, z których każdy jest dostosowany do różnych właściwości analitu i wymagań dotyczących czułości. Detekcja elektrochemiczna jest szczególnie odpowiednia dla katecholamin i indolamin, takich jak DA i 5-HT, które utleniają się bezpośrednio na elektrodzie roboczej, generując prąd proporcjonalny do ich stężenia. ECD określano jako technikę prostszą i dokładniejszą w porównaniu z alternatywnymi metodami detekcji, takimi jak detekcja fluorescencyjna i ultrafioletowa, które często wymagają większej liczby etapów przed analizą próbek, co czyni je bardziej złożonymi lub czasochłonnymi42,43. HPLC-ECD oferuje wyjątkową czułość, umożliwiając wykrywanie analitów w próbkach biologicznych w stężeniach femtomolarnych44. Biorąc pod uwagę, że pojedynczy mózg Drosophila dostarcza jedynie bardzo małą ilość tkanki, taki poziom czułości jest niezbędny. Co krytyczne, HPLC-ECD pozwala również na jednoczesne oznaczanie ilościowe wielu amin biogennych z jednej próbki, co oznacza, że pełny profil monoamin preparatu ośrodkowego układu nerwowego Drosophila może zostać zarejestrowany w jednym cyklu analitycznym.
Metoda ta posiada wrodzone ograniczenia, które definiują jej zakres. Chociaż metoda ta jest wysoce czuła, ilościowe oznaczanie BA z próbek Drosophila wymaga łączenia mózgów. W związku z tym, podobnie jak w przypadku innych podejść, nie zgłoszono detekcji w pojedynczym mózgu45. Kolejną wadą jest zanieczyszczenie elektrody. Zanieczyszczenie elektrody może następować z czasem, gdy produkty utleniania tworzą cienką warstwę izolacyjną na powierzchni, co wpływa na czułość i powoduje dryft sygnału46. Jest to szczególnie widoczne w naszych wynikach przy zastosowaniu wyższego napięcia utleniania (Rycina 2). Aby uwzględnić takie zmiany, pomocne może być powtórzenie wstrzyknięć standardów po kilku przebiegach. Wstrzyknięcia standardów należałoby również powtarzać przy każdej zmianie fazy ruchomej lub potencjału detekcji, aby uwzględnić wszelkie przesunięcia obserwowanych pików. Okresowe czyszczenie elektrody może pomóc w rozwiązaniu tego problemu. Inną wadą jest to, że HPLC-ECD dostarcza zbiorowego, statycznego pomiaru zawartości amin zintegrowanej w całej tkance poddanej analizie. Nie dostarcza ono informacji o tym, gdzie w mózgu znajdują się te aminy, ani o wzglinnym udziale konkretnych populacji neuronalnych. Związki nieelektroaktywne, takie jak GABA i glutaminian, nie są wykrywalne w standardowych warunkach ECD i wymagają oddzielnych analiz. Być może najważniejsze jest to, że HPLC-ECD jest metodą celowaną. Nie można jej użyć do identyfikacji nieznanych cząsteczek, które mogą być skorelowane z fenotypem behawioralnym, ponieważ opiera się ona całkowicie na porównywaniu czasów retencji z known, dobrze scharakteryzowanymi standardami. Do niecelowanego odkrywania neurochemicznych korelatów zachowania bardziej odpowiednie byłyby techniki takie jak LC-MS/MS, jednak przy wyższym koszcie.
W ramach tych ograniczeń metoda HPLC-ECD pozwala na udzielenie precyzyjnie określonych i istotnych biologicznie odpowiedzi w modelach zaburzeń u Drosophila . Umożliwia ona ustalenie, czy dany genotyp lub zastosowane leczenie zmienia stacjonarne poziomy amin oraz czy zmiany te są selektywne dla jednego układu przekaźników, czy wpływają na szerszy profil monoamin. Metoda ta pozwala śledzić zmiany neurochemiczne w różnych etapach rozwoju lub w miarę postępu choroby, dostarczając dowodów na istnienie presymptomatycznych stanów biochemicznych, które poprzedzają wykrywalne fenotypy behawioralne47. Jest ona również odpowiednia do oceny, czy interwencja farmakologiczna lub genetyczna normalizuje, przekracza normę lub nie jest w stanie zniwelować deficytów amin w danym modelu26. Odpowiedzi na pytania dotyczące tego, na jakim etapie zmienia się poziom każdej z amin, czy naprawa jednego układu zaburza inny oraz czy zaburzenie rozwojowe pozostawia trwały ślad neurochemiczny, są dokładnie tym, do czego stworzono czułą metodę analizy masowej wielu amin. Stosowana wraz z testami behawioralnymi i narzędziami genetycznymi dostępnymi u Drosophila, technika HPLC-ECD dostarcza ilościowych danych biochemicznych, które znacząco rozszerzają zakres interpretacyjny tych modeli zaburzeń.
Oświadczenia
Autorzy declare, że nie występuje konflikt interesów.
Podziękowania
Praca ta była wspierana przez grant National Institutes of Health nr R00NS133470 (S.H.). Treść opracowania jest wyłączną odpowiedzialnością autorów i nie musi odzwierciedlać oficjalnych poglądów National Institutes of Health. R.V.Z jest wspierany przez Subvención a la Instalación en la Academia (SIA) N°85250142, a J.M.C jest wspierany przez FONDECYT 1231556, Agencia Nacional de Investigación y Desarrollo, Chile.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| (+-) Wodorochlorek octopaminy | Sigma Aldrich | 770-05-8 | |
| Jednostka filtrująca 500 ml | Thermo Scientific | FB12566504 | Membrana z aPES o rozmiarze porów 0,2 μm, średnica 75 mm |
| Kwas octowy lodowaty | Fisher Scientific | 64-19-7 | |
| Kwas cytrynowy bezwodny | USB | 77-92-9 | |
| Oprogramowanie do chromatografii Clarity | Wierzchołek danych | Wersja 10.1 | |
| Konwerter danych Colibrick | Data Apex | przetwornik A/C | |
| Chlorowodorek dopaminy | Sigma Aldrich | 62-31-7 | |
| pęseta Dumont #5 (Dumoxel Biology) | Fine Science Tools | 11252-30 | Pinceta anatomiczna |
| EDTA, sól disodowa, dwuwodnian, kryształy (2Na-EDTA) | J.T Baker | 6381-92-6 | |
| EICOMPAK-5ODS | Eicom | 680.060.00 | Kolumna do odwróconego rozdziału fazowego |
| Woda ultrazczysta (Typ 1) EMD Millipore Synergy UV-R | Millipore | ||
| Strzykawka Hamilton 25µl (22s/2)"/3) | Hamilton | 80465 | |
| HTEC-600 | Eicom | Urządzenie HPLC | |
| Kwas solny | Sigma Aldrich | 7647-01-0 | |
| Ręczniki nasączone do lekkiego czyszczenia tkanek | VWR | 82003-820 | |
| metanol klasy HPLC | Fisher Scientific | 67-56-1 | przefiltrowany przez filtr 0,2 μm |
| Kwas nadchlorowy, 70% w wodzie | Fisher Scientific | AC424032500 | Stosować dla 0,2 N PCA |
| hydrochlorowodorek serotoniny 98% | Fisher Scientific | 153-98-0 | |
| Hydrat 1-oktanosulfonianu sodu, stopień HPLC, 99+% | Thermo Scientific | 5324-84-5 | |
| Octan sodu, trihydrat, kryształy | J.T. Baker | 6131-90-4 | |
| Myjka ultradźwiękowa Bransonic Sonicator 1510 | Branson | Model nr: 1510R-MT | Sonikator |
| Sonikator (procesor ultradźwiękowy) | Fisherbrand | Model FB50 | Z użyciem sondy CL18 |
Bibliografia
- Barron AB, Søvik E, Cornish JL. The roles of dopamine and related compounds in reward-seeking behavior across animal phyla. Front Behav Neurosci. 2010;4:163.
- Cardozo Pinto DF, et al. Opponent control of reinforcement by striatal dopamine and serotonin. Nature. 2025;639(8053):143-152.
- Jiang Y, et al. Monoamine neurotransmitters control basic emotions and affect major depressive disorders. Pharmaceuticals (Basel). 2022;15(10):1203.
- Swallow JG, Bubak AN, Grace JL. The role of monoamines in modulating behavior. Curr Zool. 2016;62(3):253-255.
- Ramesh S, Arachchige ASPM. Depletion of dopamine in Parkinson's disease and relevant therapeutic options: A review of the literature. AIMS Neurosci. 2023;10(3):200-231.
- Elgueta-Reyes M, Hidalgo S, Campusano JM. Beyond vertebrates: Drosophila melanogaster as a model to study negative symptoms of schizophrenia. Front Psychiatry. 2025;16:1622281.
- Kasture AS, Hummel T, Sucic S, Freissmuth M. Big lessons from tiny flies: Drosophila melanogaster as a model to explore dysfunction of dopaminergic and serotonergic neurotransmitter systems. Int J Mol Sci. 2018;19(6):1788.
- Owald D, Lin S, Waddell S. Light, heat, action: Neural control of fruit fly behaviour. Philos Trans R Soc Lond B Biol Sci. 2015;370(1677):20140211.
- Rosikon KD, Bone MC, Lawal HO. Regulation and modulation of biogenic amine neurotransmission in Drosophila and Caenorhabditis elegans. Front Physiol. 2023;14:970405.
- Pandey UB, Nichols CD. Human disease models in Drosophila melanogaster and the role of the fly in therapeutic drug discovery. Pharmacol Rev. 2011;63(2):411-436.
- Duffy JB. GAL4 system in Drosophila: A fly geneticist's Swiss army knife. Genesis. 2002;34(1-2):1-15.
- Feany MB, Bender WW. A Drosophila model of Parkinson's disease. Nature. 2000;404(6776):394-398.
- Narwal S, Singh A, Tare M. Analysis of α-syn and parkin interaction in mediating neuronal death in Drosophila model of Parkinson's disease. Front Cell Neurosci. 2024;17:1295805.
- Park J, et al. Mitochondrial dysfunction in Drosophila PINK1 mutants is complemented by parkin. Nature. 2006;441(7097):1157-1161.
- Aryal B, Lee Y. Disease model organism for Parkinson disease: Drosophila melanogaster. BMB Rep. 2019;52(4):250-258.
- Clark IE, et al. Drosophila pink1 is required for mitochondrial function and interacts genetically with parkin. Nature. 2006;441(7097):1162-1166.
- Park S, Kozhushko N, Wight TH, Whitworth AJ. Insights into PINK1/Parkin function and dysfunction from Drosophila models. Biochem J. 2025;483(1):BCJ20253459.
- Mohite GM, et al. Parkinson's disease associated α-synuclein familial mutants promote dopaminergic neuronal death in Drosophila melanogaster. ACS Chem Neurosci. 2018;9(11):2628-2638.
- Ordonez DG, Lee MK, Feany MB. α-Synuclein induces mitochondrial dysfunction through spectrin and the actin cytoskeleton. Neuron. 2018;97(1):108-124.e6.
- Eyles D, Feldon J, Meyer U. Schizophrenia: Do all roads lead to dopamine or is this where they start? Evidence from two epidemiologically informed developmental rodent models. Transl Psychiatry. 2012;2(2):e81.
- Calcagno B, Eyles D, van Alphen B, van Swinderen B. Transient activation of dopaminergic neurons during development modulates visual responsiveness, locomotion and brain activity in a dopamine ontogeny model of schizophrenia. Transl Psychiatry. 2013;3(1):e206.
- Hidalgo S, et al. The behavioral and neurochemical characterization of a Drosophila dysbindin mutant supports the contribution of serotonin to schizophrenia negative symptoms. Neurochem Int. 2020;138:104753.
- Hidalgo S, Campusano JM, Hodge JJL. Assessing olfactory, memory, social and circadian phenotypes associated with schizophrenia in a genetic model based on Rim. Transl Psychiatry. 2021;11(1):292.
- Hidalgo S, Campusano JM, Hodge JJL. The Drosophila orthologs of the schizophrenia-associated CACNA1A and CACNA1B voltage-gated calcium channels regulate memory, sleep and circadian rhythms. Neurobiol Dis. 2021;155:105394.
- Shao L, et al. Schizophrenia susceptibility gene dysbindin regulates glutamatergic and dopaminergic functions via distinctive mechanisms in Drosophila. Proc Natl Acad Sci U S A. 2011;108(46):18831-18836.
- Zárate RV, et al. An early disturbance in serotonergic neurotransmission contributes to the onset of Parkinsonian phenotypes in Drosophila melanogaster. Cells. 2022;11(9):1544.
- Nakao K, et al. 5-HT2A receptor dysregulation in a schizophrenia relevant mouse model of NMDA receptor hypofunction. Transl Psychiatry. 2022;12(1):168.
- Zhou W, et al. DISC1 mutant macaques capture behavioral and neural hallmarks of psychiatric disease. Natl Sci Rev. 2026;13(8):nwag200.
- Chen A, et al. Dispensable, redundant, complementary, and cooperative roles of dopamine, octopamine, and serotonin in Drosophila melanogaster. Genetics. 2013;193(1):159-176.
- Plenis A, Olędzka I, Kowalski P, Miękus N, Bączek T. Recent trends in the quantification of biogenic amines in biofluids as biomarkers of various disorders: a review. J Clin Med. 2019;8(5):640.
- Fredj Z, Sawan M. Advanced nanomaterials-based electrochemical biosensors for catecholamines detection: challenges and trends. Biosensors (Basel). 2023;13(2):211.
- Hori A, Nitta T, Inamori Kichiro, Kanoh H, Kuraishi T. High-throughput single-fly LC-MS/MS for quantitative profiling of biogenic amines in Drosophila. PLoS One. 2026;21(1):e0341188.
- Davla S, et al. An LC-MS/MS method for simultaneous analysis of up to six monoamines from brain tissues. J Chromatogr B. 2023;1216:123604.
- Chouhan AK, et al. Uncoupling neuronal death and dysfunction in Drosophila models of neurodegenerative disease. Acta Neuropathol Commun. 2016;4(1):62.
- Molina-Mateo D, et al. Characterization of a presymptomatic stage in a Drosophila Parkinson's disease model: unveiling dopaminergic compensatory mechanisms. Biochim Biophys Acta Mol Basis Dis. 2017;1863(11):2882-2890.
- Blesa J, et al. Compensatory mechanisms in Parkinson's disease: circuits adaptations and role in disease modification. Exp Neurol. 2017;298(Pt B):148-161.
- Snyder LR, Quarry MA, Glajch JL. Solvent-strength selectivity in reversed-phase HPLC. Chromatographia. 1987;24(1):33-44.
- Lewis JA, et al. Computer simulation for the prediction of separation as a function of pH for reversed-phase high-performance liquid chromatography: I. Accuracy of a theory-based model. J Chromatogr A. 1992;592(1):183-195.
- Chan EC, Wee PY, Ho PC. Evaluation of degradation of urinary catecholamines and metanephrines and deconjugation of their sulfoconjugates using stability-indicating reversed-phase ion-pair HPLC with electrochemical detection. J Pharm Biomed Anal. 2000;22(3):515-526.
- Bicker J, Fortuna A, Alves G, Falcão A. Liquid chromatographic methods for the quantification of catecholamines and their metabolites in several biological samples: a review. Anal Chim Acta. 2013;768:12-34.
- Miękus N, et al. Comparison of three extraction approaches for the isolation of neurotransmitters from rat brain samples. Int J Mol Sci. 2018;19(6):1560.
- Van Dam D, Vermeiren Y, Aerts T, De Deyn PP. Novel and sensitive reversed-phase high-pressure liquid chromatography method with electrochemical detection for the simultaneous and fast determination of eight biogenic amines and metabolites in human brain tissue. J Chromatogr A. 2014;1353:28-39.
- Han S, et al. A sensitive HPLC-ECD method for detecting serotonin released by RBL-2H3 cells stimulated by potential allergens. Anal Methods. 2015;7(20):8918-8924.
- Guiard BP, Gotti G. The high-precision liquid chromatography with electrochemical detection (HPLC-ECD) for monoamines neurotransmitters and their metabolites: a review. Molecules. 2024;29(2):496.
- Fang H, Vickrey TL, Venton BJ. Analysis of biogenic amines in a single Drosophila larva brain by capillary electrophoresis with fast-scan cyclic voltammetry detection. Anal Chem. 2011;83(6):2258-2264.
- Hanssen BL, Siraj S, Wong DKY. Recent strategies to minimise fouling in electrochemical detection systems. Rev Anal Chem. 2016;35(1):1-28.
- Meissner WG. When does Parkinson's disease begin? From prodromal disease to motor signs. Rev Neurol (Paris). 2012;168(11):809-814.
Przedruki i uprawnienia
Ten artykuł został opublikowany
Film wkrótce dostępny