Niniejszy protokół stanowi przewodnik po obrazowaniu konfokalnym na żywo dynamiki mikrotubul z wykorzystaniem fluorescencyjnych markerów mikrotubul w neuronach sensorycznych larw Drosophila.
Artykuł metodologiczny
Obrazowanie dynamiki mikrotubul In vivo w Muszka owocówka Dendryty sensoryczne
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Drosophila neurony sensoryczne klasy IV w stadiach larwalnych znajdują się bezpośrednio pod kutykulą i charakteryzują się silnie rozgałęzionymi drzewami dendrytycznymi, które rozszerzają się izotropowo w dwóch wymiarach w miarę rozwoju larw. Wzrost tych drzew jest napędzany przez procesy stochastyczne obejmujące wzrost, kurczenie się i zatrzymywanie końcówek terminalnych dendrytów. Aby przetestować hipotezę, że dynamika końcówek jest napędzana przez dynamikę mikrotubul, opracowano protokoły obrazowania mikrotubul znakowanych fluorescencyjnie w obrębie dendrytów. Metoda ta umożliwia wizualizację dynamiki mikrotubul w cienkich dendrytach terminalnych neuronów sensorycznych klasy IV przy użyciu mikroskopii konfokalnej. Została ona zaprojektowana tak, aby zachować morfologię drzewa dendrytycznego podczas obrazowania, umożliwiając jednocześnie wizualizację mikrotubul wraz z markerem błony. Niniejszy artykuł opisuje procedury stosowane do przygotowania larw Drosophila do obrazowania na żywo oraz do wizualizacji fluorescencyjnie znakowanych mikrotubul w dendrytach. Protokół ten dostarcza zatem podejścia do badania zachowania mikrotubul w cienkich dendrytach terminalnych, pozostając jednocześnie kompatybilnym z kokolorowaniem błony.
Wprowadzenie
Neurony są silnie spolaryzowanymi komórkami, których architekturę definiuje cytoszkielet. Mikrotubule, będące jednym z komponentów cytoszkieletu neuronalnego, zapewniają wsparcie strukturalne i służą jako tory dla transportu ładunków na duże odległości1,2. Cytoszkielet mikrotubularny jest kluczowy dla rozwoju dendrytów3. Dendryty rosną stochastycznie poprzez procesy rozgałęziania, wydłużania i kurczenia się4. Neurony arboryzacji dendrytycznej (da) larw Drosophila stanowią potężny system modelowy in vivo do badania morfogenezy dendrytów. Te neurony sensoryczne są podzielone na cztery klasy (I–IV) w zależności od rosnącej złożoności dendrytycznej3,5. Neurony da klasy IV posiadają złożone, silnie rozgałęzione dendryty i pełnią funkcję multimodalnych nocyceptorów6,7,8. Dendryty tych neuronów tworzą stereotypowe pola recepcyjne wzdłuż segmentów brzusznych i znajdują się tuż pod przezroczystą kutykulą9,10. Taka anatomia, wraz z podatnością genetyczną Drosophila, sprawia, że neurony da klasy IV są odpowiednim systemem do wizualizacji rozwoju dendrytów in vivo z wysoką rozdzielczością przestrzenną i czasową. W miarę wzrostu dendrytów podczas rozwoju, ich końcówki stochastycznie przechodzą między stanami wzrostu, kurczenia się i pauzy11. Wzrost i kurczenie się końcówek wykazują wiele podobieństw kinetycznych do dynamiki mikrotubul12. W związku z tym wizualizacja dynamiki mikrotubul w tych komórkach jest przedmiotem dużego zainteresowania.
Powszechnym podejściem do wizualizacji dynamiki mikrotubul w żywych komórkach, w tym w komórkach larw Drosophila, jest obrazowanie fluorescencyjnie znakowanych białek wiążących końce, takich jak EB1 i EB313,14,15,16,17,18. Jednak interpretacja sygnałów EB-GFP może być niejednoznaczna. Na przykład dystalnie poruszający się punkt EB-GFP, oddalający się od ciała komórki, może reprezentować rosnący na zewnątrz koniec plus mikrotubuli lub rosnący do wewnątrz koniec plus mikrotubuli przesuwającej się w kierunku dystalnym. Chociaż EB-GFP znakuje głównie końce plus rosnących mikrotubul, może on również znakować rosnące końce minus19, co prowadzi do dodatkowej niejednoznaczności. Bezpośrednia wizualizacja mikrotubul może pomóc w ograniczeniu tych niejasności.
Alternatywnym podejściem w stosunku do EB-GFP jest bezpośrednie znakowanie mikrotubul z wykorzystaniem GFP-tubuliny20,21. Jednakże, choć fluorescencyjna tubulina skutecznie znakuje dendryty proksymalne22, nie pozwala ona na znakowanie dendrytów dystalnych23. Kolejną trudnością związaną z fluorescencyjną tubuliną jest fakt, że wysokie stężenie rozpuszczalnej tubuliny utrudnia rozróżnienie pojedynczych mikrotubul w wąskich wypustkach, takich jak dendryty terminalne. W związku z tym obrazowanie dynamiki mikrotubul w nienaruszonych neuronach w normalnych warunkach fizjologicznych wciąż pozostaje wyzwaniem.
Ten Muszka owocówka białko wiążące mikrotubule (MAP) Jupiter, homolog strukturalny ssaczych białek Tau, MAP2 oraz MAP4, zostało stosowane do znakowania mikrotubul w Muszka owocówka tkanki, w tym jajnik i zarodki24W dendrytach klasy IV wykorzystano mCherry-Jupiter oraz sfGFP-Jupiter do ilościowej oceny mikrotubul w gałęziach proksymalnych22,25,26Niniejszy protokół opisuje metodę obrazowania na żywo, która umożliwia wysokorozdzielczą obserwację w odstępach czasu zachowania mikrotubul neuronalnych w dystalnych dendrytach Muszka owocowa neurony klasy IV z wykorzystaniem linii much wyrażających znakowaną fluorescencyjnie domenę wiążącą tubulinę białka Jupiter.
Protokół
W badaniu tym wykorzystano Drosophila melanogaster, bezkręgowcowy model, dla którego nie było wymagane zatwierdzenie przez instytucjonalną komisję etyki ds. zwierząt. Narzędzia wykorzystane w protokole wymieniono w Tabeli materiałów.
1. Generowanie eksperymentalnych linii muszek
- Przeprowadź krzyżówkę w celu uzyskania pożądanej linii rodzicielskiej. Wykorzystaj binarny system GAL4/UAS do ekspresji mNeonGreen (mNG)-Jupiter w neuronach arboryzacji dendrytycznej (da) klasy IV wykazujących ekspresję GAL4 pod promotorem ppk.
- Skrzyżuj dziewicze samice z homozygotycznej linii UAS-mNG-Jupiter z samcami z homozygotycznej linii ppk-GAL4; CD4tdTomato. Uzyskaj potomstwo F1 niosące zarówno ppk-GAL4; CD4tdTomato, jak i UAS-mNG-Jupiter.
UWAGA: Potomstwo F1 niosące zarówno ppk-GAL4; CD4tdTomato, jak i UAS-mNG-Jupiter wykazuje silną ekspresję mNG oraz CD4tdTomato w neuronach da klasy IV. Obrazowanie należy przeprowadzić na larwach pochodzących z co najmniej trzech niezależnych krzyżówek genetycznych, obrazując minimum sześć larw z każdej krzyżówki. - Przetrzymaj muchy w butelce hodowlanej do zapłodnienia, nakładając na ściankę niewielką ilość pasty drożdżowej. Inkubuj w temperaturze 25 °C przez 2–3 dni.
UWAGA: Podawanie drożdży zwiększa liczbę składanych jaj i efektywność owipozycji. - Przygotuj pastę drożdżową, umieszczając łyżkę drożdży w małym zlewce i dodając kilka kropli wody. Mieszaj dokładnie szpatułką, aż pasta osiągnie półstałą konsystencję, dodając wodę kroplami w razie potrzeby.
- Przenoś muchy każdego dnia do nowej butelki hodowlanej zawierającej świeżą pastę drożdżową.
UWAGA: Upewnij się, że pasta drożdżowa nie jest zbyt miękka ani zbyt rzadka. Jeśli stanie się zbyt miękka, muchy mogą w niej utknąć. Dodatkowe szczegóły metodologiczne znajdują się w publikacjach Hales et al.27 oraz Roote i Prokop28.
2. Składanie jaj na płytkach z agarem winogronowym, zbieranie jaj i wyznaczanie stadiów larwalnych
- Przygotować około 0,5 L pożywki agarowej z winogronem, łącząc 376 mL wody destylowanej, 126 mL soku z winogron, 15 g agaru i 6 g sacharozy w zlewce o pojemności 1 L przystosowanej do mikrofalówki.
- Podgrzewać w mikrofalówce przez 3–5 min, mieszając co 1 min, aż agar całkowicie się rozpuści. Pozostawić mieszaninę do lekkiego ostygnięcia, a następnie dodać 10 mL etanolu i 5 mL kwasu octowego.
- Dokładnie wymieszać i przelać pożywkę do szalek Petriego o średnicy 60 mm w celu przygotowania płytek z agarem winogronowym. Płytki należy przygotować z wyprzedzeniem, przechowywać w temperaturze 4 °C, układając je do góry dnem i owijając w etui do szalek Petriego, oraz zużyć w ciągu 2 tygodni. Przed użyciem ogrzać płytki do temperatury pokojowej.
- Przenieść około 150 much, w tym 50 samców i 100 samic, z butelki hodowlanej do klatki do składania jaj.
- Przykryć klatkę do składania jaj płytką z agarem winogronowym 60 mm zawierającą niewielką ilość pasty drożdżowej.
- Pozostawić muchy do składania jaj w temperaturze 25 °C przez 2 h na płytce z agarem winogronowym z pastą drożdżową. Wymienić płytkę na nową płytkę z agarem winogronowym z pastą drożdżową i pozostawić do składania jaj przez kolejne 2 h.
- Zapewnić trzecią płytkę z agarem winogronowym 60 mm z pastą drożdżową i pozwolić muchom składać jaja przez 2 h.
- Wykorzystać trzecią płytkę jako płytkę eksperymentalną, a dwie pierwsze odrzucić, aby zminimalizować heterogeniczność wieku embrionów.
UWAGA: Początkowa kolekcja jaj często zawiera embriony na różnych etapach rozwoju, ponieważ samice Drosophila mogą zatrzymywać zapłodnione jaja w drogach rodnych przez kilka godzin przed ich złożeniem. Odrzucenie początkowych płytek pomaga uzyskać bardziej zsynchronizowane jaja. - W przypadku obrazowania etapowego po złożeniu jaj (AEL), pozwolić embrionom na płytkach eksperymentalnych dojrzewać w temperaturze 25 °C do czasu osiągnięcia pożądanego etapu: Etap 1, 24 h; Etap 2, 48 h; Etap 3, 72 h oraz Etap 4, 96–120 h.
3. Oczyszczanie larw
- Przemyj larwy 5 mL 5% roztworu sacharozy, a następnie 5 mL dH₂O, aby usunąć szczątki drożdży z powierzchni i zapobiec wysychaniu.
- Przenieś larwy, zazwyczaj od trzech do czterech, na pokrywkę naczynia do hodowli komórkowej o średnicy 35 mm, używając pędzla 3/0. Osusz larwy chusteczką laboratoryjną, aby usunąć nadmiar wody.
4. Znieczulenie
- Oczyścić i osuszyć larwy przed znieczuleniem.
- Przygotować wcześniej zestaw do znieczulenia (Rycina 1). Umieścić szalkę hodowlaną wewnątrz kartonowego pudełka, aby ograniczyć ruch powietrza nad szalką i zminimalizować zakłócenia działania znieczulenia izofluranem.
UWAGA: Izofluran jest lotnym środkiem znieczulającym. Należy go obchodzić i stosować przy odpowiedniej wentylacji laboratoryjnej oraz zgodnie z instytucjonalnymi procedurami bezpieczeństwa chemicznego. Unieruchomić larwy, dodając odmierzoną objętość izofluranu do drenu znieczulającego przymocowanego taśmą klejącą wewnątrz 35 mm szalki hodowlanej, która służy jako zbiornik odparowywania. - Umieścić pokrywkę szalki hodowlanej zawierającą oczyszczone i osuszone larwy na wierzchu szalki hodowlanej.
- Znieczulać larwy przez 2–3 min.
UWAGA: Objętość izofluranu oraz czas trwania znieczulenia zależą od stadium rozwojowego i liczby larw. Ilość należy ustalić empirycznie. Na przykład: zastosować 10–20 µL izofluranu przez 2 min, aby znieczulić trzy larwy w 72 h na około 30 min. Jako dawkę początkową do unieruchomienia przyjąć 5 µL izofluranu na larwę na minutę, niezależnie od stadium rozwojowego larw.
5. Montowanie
- Za pomocą wazeliny utwórz na czystym szkiełku przedmiotowym prostokątną lub okrągłą obwódkę, pozostawiając niewielką szczelinę w jednym z rogów (Rycina 1C). Do narysowania obwódki na szkiełku użyj dozownika do henny.
- Przenieś znieczulone larwy do obwódki, używając pędzla. Umieść larwy stroną grzbietową do góry w kropli oleju Halocarbon Oil 700.
- Na larwie umieść szkiełko zakrywkowe nr 1,5. Delikatnie dociśnij, aż wazelina uszczelni przestrzeń między szkiełkiem zakrywkowym a przedmiotowym, a larwa zostanie lekko spłaszczona na szkiełku przedmiotowym.
- Przystąp do obrazowania próbki niezwłocznie, w czasie do 30–45 min od etapu przenoszenia opisanego w kroku 5.2. Przerwij obrazowanie, jeśli w kanale błony zaobserwowany zostanie blebbing lub uszkodzenia neuronalne, w tym przerwanie dendrytów; w takim przypadku zastosuj niższą dawkę środka znieczulającego.
UWAGA: Po nałożeniu szkiełka zakrywkowego upewnij się, że w oleju Halocarbon Oil nie ma pęcherzyków powietrza. Unikanie pęcherzyków jest niezbędne dla uzyskania wysokiej jakości filmów dynamicznych oraz zminimalizowania dryftu. Aby ograniczyć powstawanie pęcherzyków powietrza, pozostaw niewielką szczelinę w jednym z rogów wazelinowej obwódki, co pozwoli na ucieczkę powietrza podczas nakładania szkiełka zakrywkowego. W razie potrzeby uszczelnij szczelinę za pomocą cienkiego pędzla.
6. Mikroskopia i akwizycja obrazów
- Przeprowadź obrazowanie na żywo próbek larwalnych przy użyciu konfokalnego mikroskopu z dyskiem obrotowym, wyposażonego w otwór pinhole o średnicy 50 µm oraz system automatycznego ostrzenia (perfect-focus).
- Ustaw linie laserowe 488 nm i 561 nm na 30% mocy maksymalnej (zakładając lasery 100 mW), aby zwizualizować marker mikrotubul, taki jak mNG-Jupiter, oraz marker błony komórkowej, CD4tdTomato.
- Ustaw czas ekspozycji na 200 ms. Przechwyć obrazy za pomocą kamery sCMOS z sensorami 6,5 µm oraz powiązanego oprogramowania do akwizycji obrazu.
- Zdobądź wszystkie obrazy przy użyciu obiektywu imersyjnego wodnego 40× o aperturze numerycznej 1,25 i rozmiarze piksela 0,1614 µm.
- Ręcznie ustaw ostrość próbki, aby zlokalizować drugi, trzeci i czwarty półsegmenty brzuszne powierzchni grzbietowej, gdzie neurony klasy IV są łatwo dostępne przez przezroczystą kutykulę.
- Dla każdego pomiaru wykonaj zestaw serii obrazów z-stack o głębokości do 10 µm z krokiem 1 µm. Wykonuj serie w odstępach 10 s przez 10 lub 15 min.
UWAGA: O ile nie wskazano inaczej, do obrazowania należy wykorzystać larwy w 72 h AEL.
7. Przetwarzanie i analiza obrazu
- Zaimportuj pozyskane filmy time-lapse w formacie .ND2 do programu FIJI (Fiji Is Just ImageJ), korzystając z importera Bio-Formats. Konwertuj filmy do formatu TIFF w celu przeprowadzenia dalszych analiz.
- Zstabilizuj filmy, aby skorygować dryf próbki, używając w programie FIJI wtyczki do stabilizacji obrazu z ustawieniami transformacji afinicznej.
- Wyklucz z analizy filmy, w których ruch jest nadmierny. Za nadmierny uznaj ruch przekraczający 1 µm/min i wyeliminuj takie filmy z analizy. Wyklucz również filmy, w których w kanale markera błony (CD4tdTomato) zaobserwowano blebbing.
- Zredukuj stosy z-stack do dwuwymiarowych serii czasowych poprzez wygenerowanie w programie FIJI projekcji maksymalnej intensywności wzdłuż osi z.
- Wyznacz w programie FIJI liniowe obszary zainteresowania (ROI) wzdłuż analizowanej struktury, aby ilościowo określić właściwości dynamiczne końcówek i mikrotubul. Użyj wtyczki Multi Kymograph w programie FIJI do generowania kymografów. Wygeneruj kymograf, stosując skan liniowy o szerokości 3 pikseli wzdłuż ROI, a następnie przetwórz go za pomocą wtyczki Multi Kymograph w programie FIJI.
- Wyodrębnij profile intensywności za pomocą narzędzia Plot Profile z szerokością linii wynoszącą 3 piksele. Wygeneruj wielokolumnowy plik CSV, w którym naprzemienne kolumny kodują pozycję i intensywność wzdłuż każdego skanu liniowego.
- Oszacuj intensywność tła z dopasowanego ROI w pustym obszarze pola widzenia. Odejmij intensywność tła od każdej klatki.
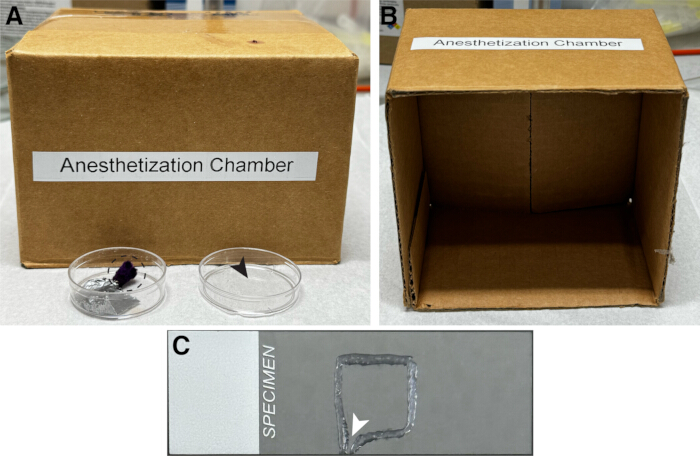
Rycina 1: Elementy zestawu do znieczulania. (A) Małe pudełko tekturowe zakrywające 35 mm szalkę hodowlaną, w której znajduje się dozownik z anestetykiem odparowywanym, przymocowany taśmą klejącą (czarne przerywane koło). Pokrywa szalki hodowlanej służyła do przechowywania czystych, suchych larw przed i w trakcie znieczulania (czarna strzałka). (B) Widok wnętrza pudełka. (C) Przedmiotowe szkiełko mikroskopowe z kwadratową obramówką z wazeliny, przygotowaną za pomocą dozownika do henny, w celu zabezpieczenia próbki larw podczas obrazowania. Mała szczelina (biała strzałka) ułatwia usuwanie powietrza podczas nakładania szkiełka nakrywki. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Wyniki
Zgodnie z opisanym powyżej protokołem, mikrotubule zostały pomyślnie zwizualizowane w neuronach z arborzacją dendrytyczną (da) klasy IV przy użyciu mNG-Jupiter w połączeniu z markerem błonowym CD4tdTomato (Rycyna 2A–C). Marker błonowy wyznaczył ogólną morfologię drzewa dendrytycznego, natomiast mNG-Jupiter oznakował regiony zawierające mikrotubule w obrębie dendrytów. Na dystalnych końcach dendrytów terminalnych fluorescencja mNG-Jupiter była słaba lub nieobecna w pobliżu końcówek dendrytów, podczas gdy fluorescencja CD4tdTomato pozostawała silna w odpowiadających im terminalach (Rycina 2D–F).
Drzewka dendrytyczne nie wykazywały wyraźnych różnic morfologicznych w porównaniu z larwami obrazowanymi w poprzednich badaniach przy użyciu wyłącznie markera błonowego11Aby ilościowo ocenić, czy ekspresja mNG-Jupiter spowodowała nieprawidłowości morfologiczne, policzono liczbę zakończeń dendrytycznych w drzewach dendrytycznych wykazujących ekspresję mNG-Jupiter oraz w drzewach kontrolnych w 72. godzinie po wykluciu (AEL). W ośmiu komórkach z ośmiu larw mNG-Jupiter liczba zakończeń w jednej czwartej drzewa dendrytycznego wyniosła 153. ± 25 (średnia ± OD), w porównaniu z 144 ± 27 (średnia ± SD) w larwach kontrolnych (Rycina 2G). Nie stwierdzono istotnych różnic przy użyciu testu Welcha Proszę podać tekst źródłowy do tłumaczenia.-test (patrz legenda do rysunku 2). Zatem ekspresja mNG-Jupiter nie zmieniła w sposób wykrywalny liczby rozgałęzień dendrytycznych.
Obrazowanie poklatkowe wykazało dynamiczne zachowanie sygnału mNG-Jupiter w dendrytach końcowych. Na reprezentatywnej sekwencji przedstawionej na Rysunku 3A pozycja jasnego końca mikrotubuli oznakowanej mNG-Jupiter zmieniała się w czasie. Kolejne skany liniowe sygnału mNG-Jupiter zostały zestawione chronologicznie, aby zwizualizować zmiany w pozycji i długości mikrotubuli. Powstały kymograf na Rysunku 3B pokazuje naprzemienne fazy wydłużania i skracania sygnału fluorescencyjnego, co jest zgodne z obserwowanym wzrostem i kurczeniem się oznakowanej mikrotubuli w dendrytach końcowych (Filmy 1 i 2). W grubszych dendrytach położonych bliżej somy większa liczba mikrotubul uniemożliwiła wizualizację dynamiki pojedynczych mikrotubul.
Wspólnie z reprezentatywnymi obrazami i nagraniami poklatkowymi pokazują one, że protokół ten umożliwia wizualizację zarówno morfologii dendrytycznej, jak i dynamicznych zmian fluorescencji związanej z mikrotubulami w nienaruszonych neuronach sensorycznych larw Drosophila. Marker błonowy stanowi punkt odniesienia dla struktury dendrytycznej, natomiast mNG-Jupiter pozwala na śledzenie zachowania mikrotubul wewnątrz dendryty w czasie (Rysunki 2 i 3).
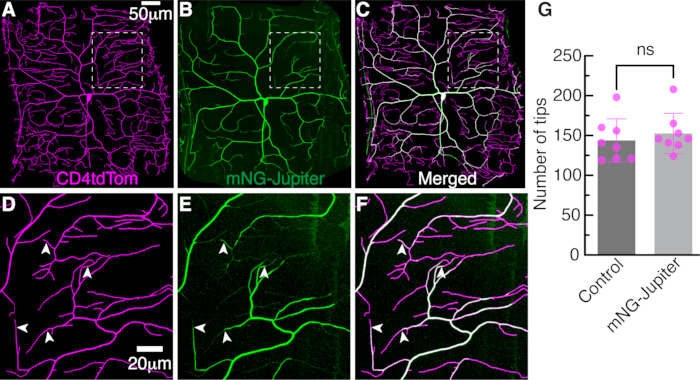
Rycina 2: Dendryty w neuronach klasy IV. Arboryzacja dendrytyczna neuronu klasy IV (da) obrazowana za pomocą konfokalnej mikroskopii dyskowej (spinning-disk) w 72 h po zniesieniu jaj (AEL). Mikrotubule są wizualizowane z wykorzystaniem binarnego systemu ekspresji GAL4/UAS. Specyficzny dla komórek klasy IV sterownik ppk-GAL4 (pickpocket) ułatwia ekspresję białka Jupiter z tagiem mNG (UAS-mNG-Jupiter). Membrany dendrytyczne są znakowane poprzez bezpośrednią ekspresję tdTomato połączonego z markerem błonowym CD4, zapośredniczoną przez promotor ppk (ppk-CD4tdTomato). (A) Marker błonowy, CD4tdTomato. (B) Marker mikrotubul, mNG-Jupiter. (C) Obraz nałożony (merged). (D–F) Powiększone widoki obszarów zaznaczonych białymi przerywanymi ramkami odpowiednio w A–C, ilustrujące rozkład markerów mikrotubul i błon. Białe groty strzałek wskazują rozkład mNG-Jupiter w dendrytach terminalnych. (G) Ilościowe oznaczenie liczby zakończeń dendrytycznych w neuronach kontrolnych i neuronach wykazujących ekspresję mNG-Jupiter w 72 h AEL. Każda kropka reprezentuje liczbę zakończeń policzonych w jednej czwarci pojedynczego neuronu z osobnej larwy. W każdej grupie przeanalizowano łącznie osiem neuronów z ośmiu niezależnych larw. Słupki błędu reprezentują średnią ± SD. Grupy porównywano za pomocą dwustronnego nieparzystego testu t Welcha; ns, brak istotności statystycznej (P > 0.05). Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
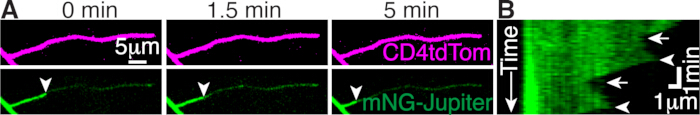
Rycina 3: Dynamika mikrotubul w dendrycie końcowym. (A) Trzy obrazy dendrytu końcowego wykazującego ekspresję CD4tdTomato (górny) i mNG-Jupiter (dolny) w wskazanych punktach czasowych. Grotowe strzałki wskazują koniec mikrotubuli. Słaby sygnał mNG jest widoczny poza jasnym sygnałem mikrotubuli. (B) Kymograf przedstawiający wzrost i skracanie się mikrotubul. Grotowe strzałki wskazują fazy wzrostu, a strzałki wskazują fazy skracania się. Kolejne skany liniowe sygnału mNG o szerokości 3 pikseli są ułożone jeden pod drugim, przy czym czas zwiększa się w kierunku w dół. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Wideo 1: Obrazowanie time-lapse mNG-Jupiter w neuronach klas IV arboryzacji dendrytycznej.Sekwencja time-lapse pokazująca fluorescencję mNG-Jupiter w dendrytach klas IV larw Drosophila. Sekwencja ilustruje zmiany fluorescencji związanej z mikrotubulami w czasie w obrębie arboryzacji dendrytycznej. Obrazy uzyskano w warunkach obrazowania żywych komórek opisanych w protokole. Pasek skali, 20 µm. Kliknij tutaj, aby pobrać ten plik.
Wideo 2: Obrazowanie time-lapse markera błonowego CD4tdTomato w neuronach klasy IV arboryzacji dendrytycznej. Sekwencja time-lapse pokazująca fluorescencję CD4tdTomato w odpowiadającym jej arborze dendrytycznej klasy IV larwy Drosophila. Marker błonowy stanowi punkt odniesienia dla morfologii dendrytów podczas okresu obrazowania. Obrazy uzyskano w warunkach obrazowania na żywo opisanych w Protokole. Pasek skali, 20 µm. Kliknij tutaj, aby pobrać ten plik.
Dyskusja
Niniejszy protokół demonstruje wykorzystanie transgenicznych linii muszek Jupiter do obrazowania na żywo dynamiki mikrotubul w neuronach sensorycznych Drosophila przy użyciu mikroskopii konfokalnej. Metoda ta umożliwia wizualizację fluorescencji związanej z mikrotubulami w nienaruszonych larwach przy jednoczesnym zachowaniu morfologii dendrytów, co oceniono za pomocą markera błonowego11,29. Podobne podejście zastosowano również do obrazowania dynamiki aktyny z wykorzystaniem GFP-actin i LifeAct-GFP w neuronach klasy IV22,30,31,32. W zasadzie to samo ogólne podejście można zastosować do obrazowania innych białek wiążących mikrotubule w komórkach klasy IV oraz w innych klasach neuronów o rozbudowanych drzewach dendrytycznych (klasy I, II i III). W szczególności połączenie fluorescencyjnego znakowania mikrotubul ze znakowaniem EB może zmniejszyć niejednoznaczność w interpretacji wzrostu mikrotubul. Na przykład brak komety EB mógłby wskazywać albo na brak mikrotubul, albo na obecność mikrotubul, które nie rosną aktywnie; bezpośrednia wizualizacja mikrotubul może pomóc rozróżnić te możliwości. Zatem współznakowanie mNG-Jupiter z fluorescencyjnym EB1 może umożliwić interpretację dynamiki wzrostu mikrotubul w lokalnym kontekście organizacji, liczebności i domniemanej orientacji mikrotubul.
Kilka etapów jest krytycznych dla uzyskania odpowiednich danych z obrazowania na żywo. Protokół wykorzystuje lotny środek znieczulający, izofluran, w ramach określonego, krótkiego schematu unieruchomienia. Dawka izofluranu musi być starannie kontrolowana podczas unieruchamiania, ponieważ niewystarczające znieczulenie umożliwia ruchy larw, natomiast nadmierne znieczulenie może prowadzić do degradacji neuronów. Podczas montowania należy również unikać pęcherzyków powietrza, ponieważ mogą one pogarszać jakość obrazu i przyczyniać się do dryftu próbki. Ponadto należy unikać nadmiernego nacisku szkiełka nakrywkowego, gdyż może on spowodować pęcherzykowanie dendrytów i w konsekwencji uszkodzenie neuronów. Kroki te są istotne dla zachowania stabilności próbki i morfologii dendrytów przez cały czas trwania obrazowania.
Ważnym ograniczeniem tego protokołu jest fakt, że metoda unieruchomienia i wizualizacji, obejmująca połączenie ekspozycji na środek znieczulający i fizycznego ograniczenia przez szkiełko cover-slip, może wpływać na dynamikę mikrotubul. Aby ustalić, czy w tych warunkach mikrotubule ulegają zaburzeniom, można zastosować alternatywne metody unieruchamiania, osobno lub w połączeniu z niniejszym protokołem. Takie podejścia obejmują obrazowanie embrionów oraz wykorzystanie mutantów wrażliwych na temperaturę, takich jak Shibirets 33, a następnie porównanie parametrów kinetycznych, takich jak szybkość wzrostu i częstotliwość katastrof.
Przy tym ograniczeniu obecny protokół pozwala na obrazowanie larw przez około 30 minut po zamontowaniu, bez powstawania pęcherzyków dendrytycznych, pogorszenia morfologii czy utraty wykrywalnej dynamiki mikrotubul i ich końcówek. Metoda ta umożliwia pozyskanie wysokorozdzielczych danych z lapse-time z nienaruszonych larw oraz wizualizację dynamicznego zachowania mikrotubul w dendrytach końcowych.
Oświadczenia
Autorzy nie deklarują żadnych konfliktów interesów.
Podziękowania
Autorzy dziękują wszystkim członkom laboratorium Howarda, w szczególności byłej członce laboratorium dr Maijia Liao za zainicjowanie projektu znakowania mikrotubul oraz dr Sonal Shree za opracowanie protokołu wizualizacji dynamiki dendrytów u Drosophila w laboratorium Howarda. Badania opisane w niniejszej publikacji były wspierane przez National Institutes of Health w ramach grantu nr R35 GM161634 (National Institute of General Medical Sciences) oraz grantu nr R01 NS118884 (National Institute of Neurological Disorders and Stroke) przyznanego J.H. Treść publikacji jest wyłączną odpowiedzialnością autorów i niekoniecznie odzwierciedla oficjalne stanowisko National Institutes of Health. Praca ta była również wspierana przez grant NSF PHY-2210464 oraz grant PEW Charitable Trusts 38044 przyznany J.H.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Kwas octowy (lodowaty, odczynnik ACS, ≥99,7%) | Sigma-Aldrich | 695092 | Używany do przygotowania podłoża agarowego z winogronem; 5 mL na około 0,5 L podłoża |
| Agar (bactoagar) | Becton Dickinson | 214010 | Używany do przygotowania podłoża agarowego z winogronem; 15 g na około 0,5 L podłoża |
| Przybora do znieczulania (Anesthetic wand) | Carolina Biological Supply Co. | 173010 | Służy do utrzymania izofluranu w zbiorniku parowania podczas znieczulania larw |
| Zlewka, 1 L, odporna na mikrofalowe podgrzewanie | Corning Inc. | 1000-1L | Używana do przygotowania około 0,5 L podłoża agarowego z winogronem |
| Zlewka, 100 mL | Corning Inc. | 1000-100 | Używana do przygotowania pasty drożdżowej |
| Importer Bio-Formats | Open Microscopy Environment Project | Nie dotyczy | Wtyczka do programu FIJI służąca do importowania plików time-lapse w formacie .ND2 |
| Kamera (sCMOS, Zyla 4.2 Plus) | Andor Technology | ZYLA-4.2P-USB3 | Czujnik 6,5 µm; używana do akwizycji obrazów |
| Pudełko tekturowe (5 × 5 × 3 in) | Uline | S-4579 | Używane do przykrycia zestawu do znieczulania i ograniczenia ruchu powietrza nad naczyniem do hodowli komórkowej |
| Naczynie do hodowli komórkowej | Corning Incorporated | 430165 | 35 × 10 mm; używane do manipulowania larwami oraz jako zbiornik parowania izofluranu |
| Kapturkowy szkiełko nakrywką | Globe Scientific Inc. | 1404-15 | 22 × 22 mm, nr 1,5; umieszczane nad zamontowaną larwą |
| Komora Darwina | Darwin Chambers | IN030-AA-LT-DA-MP | Używana do utrzymywania krzyżówek much, składania jaj i etapowania larw w temperaturze 25 °C |
| Woda destylowana, stopień czystości odczynników laboratoryjnych | Research Products International (RPI) | Nie dotyczy | Używana do przygotowania agaru z winogronem, pasty drożdżowej oraz do płukania larw |
| Taśma klejąca (duct tape) | Uline | S-6519 | Używana do mocowania przybory do znieczulania wewnątrz naczynia do hodowli komórkowej |
| Klatka do składania jaj / zbierania embrionów | Genesee Scientific | 59-100 | Rozmiar mały; pasuje do szalki Petriego 60 × 15 mm; używana do kontrolowanego zbierania jaj |
| Ethanol (bezwodny, 200 proof) | Decon Labs Inc. | V1001G | Używany do przygotowania podłoża agarowego z winogronem; 10 mL na około 0,5 L podłoża |
| FIJI (Fiji Is Just ImageJ) | NIH | Wersja 2.16.0/1.54p | Używany do importu obrazów, stabilizacji, projekcji maksymalnej intensywności, analizy ROI, generowania kymografów i ekstrakcji profili intensywności |
| Linie much: (1) w; ppk-Gal4; ppk-cd4-tdTom; (2) w; w+, UASt-mNeonGreen-Jupiter-RD/CyO | Bloomington Drosophila Stock Center(1); Howard Lab (2) | BDSC# 32078, BDSC# 35845 | Używane do ekspresji CD4tdTomato i mNG-Jupiter w neuronach arboryzacji dendrytycznej klasy IV |
| Sok winogronowy, 100% Concord grape | Welch's | Nie dotyczy | Używany do przygotowania podłoża agarowego z winogronem; 126 mL na około 0,5 L podłoża |
| Olej Halocarbon 700 | Sigma-Aldrich | H8898 | Używany do montowania larw do obrazowania na żywo |
| Dozownik do henny | ZEYER | ZEYER-1005 | Używany do formowania obramowania z wazeliny na szkiełku mikroskopowym |
| Stabilizator obrazu (Image Stabilizer) | Opracowany przez Kang Li | Nie dotyczy | Wtyczka do programu FIJI używana z ustawieniami transformacji afinicznej w celu korekcji dryftu próbki |
| Izofluran | Santa Cruz Biotechnology, Inc. | sc-470926 | Używany do unieruchomienia larw przed montowaniem i obrazowaniem |
| Ręczniki laboratoryjne (Kimwipes) | Kimberly-Clark Professional | 34120 | Używane do usuwania nadmiaru wody z wypłukanych larw przed znieczuleniem |
| Butelka do utrzymywania hodowli | Lab Express Inc. | 7001-PBT | Polipropylenowa butelka o kwadratowym dnie, 6 oz; zawiera pokarm dla much typu B (receptura Bloomington) i służy do utrzymywania linii i krzyżówek much |
| Kuchenka mikrofalowa | Panasonic | NN-SN686S | Używana do rozpuszczania agaru podczas przygotowywania podłoża agarowego z winogronem |
| Mikroskop odwrócony | Nikon Instruments Inc. | 736228 | Mikroskop odwrócony Ti Eclipse wyposażony w system Perfect Focus do obrazowania na żywo |
| Szkiełko mikroskopowe | Fisherbrand | 12550143 | Szkiełko Superfrost; używane do montowania larw do obrazowania |
| Multi Kymograph | Opracowany przez Jens Rietdorf, Arne Seitz i Johannes Schindelin | Nie dotyczy | Wtyczka do programu FIJI służąca do generowania kymografów dynamiki mikrotubul |
| Oprogramowanie Nikon Elements | Nikon Instruments Inc. | Wersja 5.21.03 | Używane do akwizycji obrazów z mikroskopii time-lapse i generowania plików .ND2 |
| Obiektyw z imersją wodną | Nikon Instruments Inc. | MRD77400 | 40×, 1,25 NA; używany do obrazowania na żywo |
| Pędzel | Dynasty | 2157r | Rozmiary 0 i 3/0; używane do przenoszenia larw i uszczelniania obramowania z wazeliny |
| Szalka Petriego | Falcon | 351007 | 60 × 15 mm; używana do płytek z agarem z winogronem |
| Spatułka | VWR | 82027-532 | 22,9 cm (9 in); używana do mieszania drożdży z wodą podczas przygotowania pasty drożdżowej |
| Jednostka konfokalna ze spinning-disk | Yokogawa CSU-W1 | SBW001 | Pinhole 50 µm; używana do konfokalnego obrazowania na żywo |
| Sacharoza | Sigma-Aldrich | 57-50-1 | Używana w podłożu agarowym z winogronem oraz jako 5% roztwór do płukania larw |
| Wazelina | Unilever | Nie dotyczy | Używana do formowania obramowania między szkiełkiem mikroskopowym a nakrywką |
| Drożdże (Red Star Active Dry Yeast) | Lesaffre Corporation | Nie dotyczy | Używane do przygotowania pasty drożdżowej i wspierania składania jaj |
Bibliografia
- Kapitein LC, Hoogenraad CC. Building the neuronal microtubule cytoskeleton. Neuron. 2015;87(3):492–506.
- Howard J, Hyman AA. Dynamics and mechanics of the microtubule plus end. Nature. 2003;422(6933):753–758.
- Jan YN, Jan LY. Branching out: mechanisms of dendritic arborization. Nature Reviews Neuroscience. 2010;11(5):316–328.
- Fujishima K, Horie R, Mochizuki A, Kengaku M. Principles of branch dynamics governing shape characteristics of cerebellar Purkinje cell dendrites. Development. 2012;139(18):3442–3455.
- Grueber WB, Jan LY, Jan YN. Tiling of the Drosophila. epidermis by multidendritic sensory neurons. Development. 2002;129(12):2867–2878.
- Hwang RY, et al. Nociceptive neurons protect Drosophila. larvae from parasitoid wasps. Current Biology. 2007;17(24):2105–2116.
- Grueber WB, et al. Dendrites of distinct classes of Drosophila. sensory neurons show different capacities for homotypic repulsion. Current Biology. 2003;13(8):618–626.
- Guo Y, et al. Identification of the peptide Vulnusin, a wound signal that mediates mechanical-injury-induced nociception in Drosophila. Neuron. 2025;113(20):3352–3362.e5.
- Han C, et al. Integrins regulate repulsion-mediated dendritic patterning of Drosophila. sensory neurons by restricting dendrites in a 2D space. Neuron. 2012;73(1):64–78.
- Grueber WB, et al. Projections of Drosophila. multidendritic neurons in the central nervous system: links with peripheral dendrite morphology. Development. 2007;134(1):55–64.
- Shree S, et al. Dynamic instability of dendrite tips generates the highly branched morphologies of sensory neurons. Science Advances. 2022;8(26):eabn0080. doi: 10.1126/sciadv.abn0080.
- Ouyang X, et al. Neurons exploit stochastic growth to rapidly and economically build dense dendritic arbors. Nature Communications. 2025;16(1):5903. doi: 10.1038/s41467-025-60800-7.
- Mimori-Kiyosue Y, Shiina N, Tsukita S. The dynamic behavior of the APC-binding protein EB1 on the distal ends of microtubules. Current Biology. 2000;10(14):865–868.
- Stepanova T, et al. Visualization of microtubule growth in cultured neurons via .the use of EB3-GFP (end-binding protein 3-green fluorescent protein). Journal of Neuroscience. 2003;23(7):2655–2664.
- Piehl M, Cassimeris L. Organization and dynamics of growing microtubule plus ends during early mitosis. Molecular Biology of the Cell. 2003;14(3):916–925.
- Ori-McKenney KM, Jan LY, Jan YN. Golgi outposts shape dendrite morphology by functioning as sites of acentrosomal microtubule nucleation in neurons. Neuron. 2012;76(5):921–930.
- Stone MC, Roegiers F, Rolls MM. Microtubules have opposite orientation in axons and dendrites of Drosophila. neurons. Molecular Biology of the Cell. 2008;19(10):4122–4129.
- Zheng Y, et al. Dynein is required for polarized dendritic transport and uniform microtubule orientation in axons. Nature Cell Biology. 2008;10(10):1172–1181.
- Zanic M, Stear JH, Hyman AA, Howard J. EB1 recognizes the nucleotide state of tubulin in the microtubule lattice. PLoS One. 2009;4(10):e7585. doi: 10.1371/journal.pone.0007585.
- Carminati JL, Stearns T. Microtubules orient the mitotic spindle in yeast through dynein-dependent interactions with the cell cortex. Journal of Cell Biology. 1997;138(3):629–641.
- Straight AF, Marshall WF, Sedat JW, Murray AW. Mitosis in living budding yeast: anaphase A but no metaphase plate. Science. 1997;277(5325):574–578.
- Nanda S, Bhattacharjee S, Cox DN, Ascoli GA. Distinct relations of microtubules and actin filaments with dendritic architecture. iScience. 2020;23(12):101865. doi: 10.1016/j.isci.2020.101865.
- Lee HH, Jan LY, Jan YN. Drosophila. IKK-related kinase Ik2 and Katanin p60-like 1 regulate dendrite pruning of sensory neuron during metamorphosis. Proceedings of the National Academy of Sciences of the United States of America. 2009;106(15):6363–6368.
- Karpova N, et al. Jupiter, a new Drosophila. protein associated with microtubules. Cell Motility and the Cytoskeleton. 2006;63(5):301–312.
- Poe AR, et al. Dendritic space-filling requires a neuronal type-specific extracellular permissive signal in Drosophila. Proceedings of the National Academy of Sciences of the United States of America. 2017;114(38):E8062–E8071.
- Nanda S, Bhattacharjee S, Cox DN, Ascoli GA. Local microtubule and F-actin distributions fully constrain the spatial geometry of Drosophila. sensory dendritic arbors. International Journal of Molecular Sciences. 2023;24(7):6741. doi: 10.3390/ijms24076741.
- Hales KG, Korey CA, Larracuente AM, Roberts DM. Genetics on the fly: a primer on the Drosophila. model system. Genetics. 2015;201(3):815–842.
- Roote J, Prokop A. How to design a genetic mating scheme: a basic training package for Drosophila. genetics. G3: Genes|Genomes|Genetics. 2013;3(2):353–358.
- Shree S, Howard J. Protocol for imaging the same class IV neurons at different stages of development. Bio-protocol. 2024;14(16):e5052. doi: 10.21769/BioProtoc.5052.
- Stürner T, et al. The branching code: a model of actin-driven dendrite arborization. Cell Reports. 2022;39(4):110746. doi: 10.1016/j.celrep.2022.110746.
- Nithianandam V, Chien CT. Actin blobs prefigure dendrite branching sites. Journal of Cell Biology. 2018;217(10):3731–3746.
- Kilo L, Stürner T, Tavosanis G, Ziegler AB. Drosophila. dendritic arborisation neurons: fantastic actin dynamics and where to find them. Cells. 2021;10(10):2777. doi: 10.3390/cells10102777.
- Liao M, Liang X, Howard J. The narrowing of dendrite branches across nodes follows a well-defined scaling law. Proceedings of the National Academy of Sciences. 2021;118(27):e2022395118. doi: 10.1073/pnas.2022395118.
Przedruki i uprawnienia
Ten artykuł został opublikowany
Film wkrótce dostępny