W niniejszym badaniu zastosowano farmakologię sieciową oraz dokowanie molekularne w celu zbadania przewidywanych mechanizmów działania Corydalis yanhusuo w zespole fibromialgii.
Artykuł badawczy
Wielocelowy mechanizm działania Corydalis yanhusuo przeciwko zespołowi fibromialgii: badanie z zakresu farmakologii sieciowej i dokowania molekularnego
W tym artykule
Podsumowanie
Streszczenie
Zespół fibromialgii (FMS) jest przewlekłym zaburzeniem bólowym o ograniczonych opcjach terapeutycznych. Celem niniejszego badania było przewidzenie wielocelowego mechanizmu działania Corydalis yanhusuo przeciwko FMS z wykorzystaniem farmakologii sieciowej i dokowania molekularnego. Składniki aktywne wyszukano w bazie danych i platformie analizy farmakologii systemowej tradycyjnej medycyny chińskiej (TCMSP), przyjmując biodostępność doustną (OB) ≥30% i podobieństwo do leku (DL) ≥0,18. Cele chorobowe pozyskano z GeneCards. Wspólne cele wykorzystano do analizy oddziaływań białko-białko (PPI), ontologii genów (GO) oraz bazy Kyoto Encyclopedia of Genes and Genomes (KEGG). Dokowanie molekularne przeprowadzono za pomocą CB-Dock2. Zidentyfikowano łącznie 49 składników aktywnych i 53 wspólne cele. Cele kluczowe (hub targets) obejmowały czynnik martwicy nowotworów (TNF), interleukinę 6 (IL6), interleukinę 1 beta (IL1B), receptor estrogenowy 1 (ESR1) oraz prostaglandynę-endoperoksydazę syntazę 2 (PTGS2). Analiza KEGG ujawniła szlaki interleukiny 17 (IL-17), TNF, jądrowego czynnika kappa B (NF-κB) oraz oddziaływań ligand-receptor neuroaktywne. Przewidywane wyniki dokowania mieściły się w zakresie od −10,1 do −6,5 kcal/mol, przy czym stigmasterol wykazał najniższą przewidywaną energię wiązania z muskarynowym receptorem cholinergicznym 3 (CHRM3) (−10,1 kcal/mol). Wyniki te sugerują, że C. yanhusuo może wywierać potencjalne działanie przeciwfibromialgiczne poprzez wieloskładnikowe, wielocelowe i wielościeżkowe mechanizmy, w szczególności poprzez modulowanie neurostanu zapalnego i sygnalizacji neurotransmiterów. Wymagana jest walidacja eksperymentalna.
Wprowadzenie
Zespół fibromialgii (FMS) jest przewlekłym zaburzeniem bólowym, które dotyka około 2–4% populacji światowej1,2,3. Występuje on głównie u kobiet i objawia się rozsianym bólem mięśniowo-szkieletowym, zmęczeniem, zaburzeniami snu oraz dysfunkcją poznawczą4,5,6. Jednocześnie zespół fibromialgii często pojawia się jako powikłanie różnych chorób, w tym reumatoidalnego zapalenia stawów i tocznia rumieniowatego układowego7,8,9. Mimo dziesięcioleci badań jego etiologia pozostaje nie do końca poznana10,11. Obecne dowody wskazują na centralną sensytyzację jako główny mechanizm, obejmujący aberracyjną amplifikację sygnałów bólowych w obrębie ośrodkowego układu nerwowego12. Proces ten jest dodatkowo modulowany przez zaburzenia równowagi neuroprzekaźników, takich jak serotonina, dopamina i norepinefryna, a także przez przewlekły stan zapalny układu nerwowego, stres oksydacyjny i podatność genetyczną13,14,15. Ta wieloaspektowa patofizjologia wyjaśnia nie tylko wyraźną heterogeniczność obrazów klinicznych, ale także uzasadnia ograniczoną skuteczność konwencjonalnych farmakoterapii, które zazwyczaj celują w jedną ścieżkę molekularną. Leki, w tym antydepresanty, leki przeciwdrgawkowe i opioidy, często przynoszą jedynie umiarkowaną ulgę i są często związane z działaniami niepożądanymi16,17,18,19. W związku z tym konieczny jest dalszy rozwój nowych terapii lekowych w celu osiągnięcia jednoczesnej modulacji wielu celów patogennych.
Farmakologia sieciowa to potężne podejście biologii systemowej, które integruje analizę sieci lek–cel–choroba w celu systematycznego wyjaśnienia synergistycznych mechanizmów terapii wieloskładnikowych20,21. W przeciwieństwie do konwencjonalnych strategii redukcjonistycznych, metoda ta umożliwia przewidywanie potencjalnych składników aktywnych, ich odpowiadających białkowych celów oraz biologicznych szlaków, które wspólnie modulują, oferując tym samym racjonalne ramy do badania mechanizmów działania leków ziołowych22,23,24. Dokowanie molekularne, jako uzupełniające narzędzie in silico, pozwala na dalszą ocenę przewidywanych oddziaływań ligand–cel oraz potencjalnych trybów wiązania między małymi cząsteczkami a ich celami, co znacząco zwiększa wiarygodność przewidywań opartych na sieciach25. C. yanhusuo, znane zioło przeciwbólowe bogate w alkaloidy izochinoliny, takie jak corydalina i dehydrocorydalina, wykazało obiecujące działanie w zaburzeniach związanych z bólem, jednak jego specyficzny mechanizm działania w przypadku FMS pozostaje w dużej mierze niewyjaśniony26,27. W niniejszym badaniu wykorzystaliśmy farmakologię sieciową w połączeniu z dokowaniem molekularnym, aby systematycznie zbadać wieloskładnikowy, wielocelowy i wieloszlakowy mechanizm działania C. yanhusuo w leczeniu FMS, dążąc do zapewnienia podstaw teoretycznych dla jego zastosowania klinicznego oraz dostarczenia spostrzeżeń w zakresie projektowania wielocelowych leków na złożone zespoły chronicznego bólu.
Protokół
Pozyskiwanie składników aktywnych i celów
W bazie danych i platformie analitycznej farmakologii systemowej tradycyjnej medycyny chińskiej Traditional Chinese Medicine Systems Pharmacology Database and Analysis Platform (TCMSP) (https://www.tcmsp-e.com, dostęp: 2 sierpnia 2026)28 wyszukano nazwę zioła „yanhusuo”, aby pobrać wszystkie dostępne składniki wraz z odpowiadającymi im identyfikatorami, nazwami, masami cząsteczkowymi, biodostępnością doustną (OB), podobieństwem do leku (DL) oraz wzorami strukturalnymi. Składniki o OB ≥30% i DL ≥0,18 wyselekcjonowano jako kluczowe składniki do późniejszej konstrukcji sieci regulacyjnej29,30. Następnie z bazy danych TCMSP pobrano cele powiązane z tymi kluczowymi składnikami. Uzyskane białka docelowe zostały następnie ustandaryzowane do oficjalnych symboli genów przy użyciu bazy danych UniProt (wersja 2025_01; https://www.uniprot.org; dostęp: 2 sierpnia 2026)31. Po usunięciu duplikatów pozostałe cele określono jako powiązane z lekiem.
Pozyskiwanie celów związanych z chorobą
Bazę danych GeneCards (https://www.genecards.org/, dostęp 2 sierpnia 2026 r.)32 przeszukano przy użyciu słowa kluczowego „fibromyalgia”. Wszystkie pobrane cele zostały zapisane i wykorzystane do późniejszej analizy przecięcia bez dodatkowego filtrowania progowego.
Konstrukcja sieci regulacyjnej „lek-kluczowe składniki-cele-choroba”
Wykonano część wspólną celów związanych z lekiem i chorobą, a nakładające się geny zidentyfikowano jako cele terapeutyczne C. yanhusuo w leczeniu fibromialgii. W arkuszach kalkulacyjnych ustalono powiązania odpowiednio między C. yanhusuo a jego kluczowymi składnikami, między kluczowymi składnikami a celami terapeutycznymi oraz między celami terapeutycznymi a fibromialgią. Dane o powiązaniach przekształcono następnie w pliki tekstowe (TXT). Następnie wykorzystano oprogramowanie Cytoscape (wersja 3.7.2, https://cytoscape.org/) do wizualizacji sieci, w której leki, kluczowe składniki, cele i choroby rozróżniono za pomocą różnych kolorów i symboli, a ich wzajemne połączenia przedstawiono graficznie33.
Analiza sieci oddziaływań białko-białko (PPI)
Skorzystano z bazy danych STRING (https://cn.string-db.org/, dostęp z dnia 2 sierpnia 2026 r.)34, a cele terapeutyczne C. yanhusuo w leczeniu fibromialgii wklejono w pole wyszukiwania „Multiple Proteins”, wybierając organizm „Homo sapiens”. Po uzyskaniu sieci PPI aktywne źródła interakcji ustawiono tak, aby obejmowały Textmining, Experiments, Databases, Co-expression, Neighborhood, Gene Fusion oraz Co-occurrence, natomiast minimalny wymagany wynik interakcji ustawiono na próg średniego poziomu ufności (0,400). Uzyskane powiązania sieci PPI wyeksportowano do pliku TSV, a następnie zaimportowano do oprogramowania Cytoscape. Po załadowaniu danych przeprowadzono kompleksową analizę topologiczną przy użyciu narzędzia Network Analyzer, a wszystkie węzły posortowano w kolejności malejącej według wartości Degree35. Na koniec 20 celów o najwyższej łączności w sieci PPI zwizualizowano za pomocą wykresu słupkowego.
Analiza wzbogacenia GO i KEGG
Cele terapeutyczne C. yanhusuo przeciwko fibromialgii zostały ujednolicone i przekonwertowane na odpowiadające im identyfikatory Entrez przy użyciu bazy danych National Center for Biotechnology Information (NCBI). Analiza wzbogacenia Gene Ontology (GO) tych celów została przeprowadzona przy użyciu pakietu clusterProfiler w oprogramowaniu R (wersja 4.3.1, https://www.r-project.org/), obejmując terminy procesów biologicznych (BP), komponentów komórkowych (CC) i funkcji molekularnych (MF)36,37. Wyniki wzbogacenia zwizualizowano za pomocą wykresów słupkowych i kołowych wykresów GO. W przypadku analizy wzbogacenia szlaków Kyoto Encyclopedia of Genes and Genomes (KEGG), do tego samego zestawu celów zastosowano funkcję enrichKEGG() w pakiecie clusterProfiler. Istotność wzbogacenia ustalono na poziomie p < 0.05, a do wizualizacji wykorzystano surowe wartości p. Uzyskane terminy szlaków KEGG przefiltrowano, aby wykluczyć dwie szerokie kategorie: „Human Diseases” oraz „Metabolism”, które w tym kontekście nie mają bezpośredniego znaczenia biologicznego. Następnie wybrano 15 najważniejszych szlaków sygnalizacyjnych (uszeregowanych według istotności) i zwizualizowano je za pomocą wykresów bąbelkowych. Ponadto powiązania między celami a szlakami zostały wyekstrahowane i zaimportowane do oprogramowania Cytoscape w celu wizualizacji sieci.
Wybór celu dokowania molekularnego
Cele dokowania wybrano z sieci regulacyjnej „lek–składnik aktywny–cel–choroba”, a nie z sieci PPI. W szczególności wszystkie węzły celów w sieci regulacyjnej uszeregowano według stopnia, a do dokowania molekularnego wybrano 10 węzłów o najwyższej łączności. Te 10 celami były PTGS2, PTGS1, KCNH2, ADRB2, CHRM3, OPRM1, OPRD1, SLC6A4, SLC6A3 oraz ESR1.
Dokowanie molekularne
Dwuwymiarowe (2D) struktury składników aktywnych pobrano z bazy danych PubChem (https://pubchem.ncbi.nlm.nih.gov/, dostęp 3 sierpnia 2026)38, korzystając z numerów PubChem CID wymienionych w Tabeli uzupełniającej 1, i zapisano w formacie Structure Data File (SDF) do wykorzystania jako ligandy w dokowaniu. Trójwymiarowe (3D) struktury 10 najważniejszych celów z sieci regulacyjnej pobrano z bazy danych struktur białek AlphaFold Protein Structure Database (https://alphafold.ebi.ac.uk/, dostęp 3 sierpnia 2026)39, korzystając z identyfikatorów wpisów AlphaFold DB wymienionych w Tabeli uzupełniającej 2 w formacie Protein Data Bank (PDB), aby służyły jako receptory dokowania. Choć dla niektórych z tych celów dostępne są eksperymentalne struktury krystaliczne, dla wszystkich 10 celów jednolicie zastosowano modele AlphaFold w celu zapewnienia spójności metodologicznej, ponieważ kilka celów nie posiada kompletnych lub wysokorozdzielczych struktur eksperymentalnych, a mieszanie źródeł strukturalnych mogłoby wprowadzić błąd systematyczny. Przed dokowaniem nie przeprowadzano żadnych ręcznych modyfikacji strukturalnych ani ligandów, ani receptorów. Każdy ligand sparowano z każdym receptorem i przekazano do obliczeń dokowania molekularnego za pomocą internetowej platformy do ślepego dokowania CB‑Dock2 (https://cadd.labshare.cn/cb-dock2/, dostęp 3 sierpnia 2026). CB-Dock2 automatycznie wykonało niezbędne kroki przygotowawcze, w tym usunięcie współkrystalizowanych cząsteczek wody, dodanie atomów wodoru, przypisanie ładunków i konwersję do formatów gotowych do dokowania. Platforma ta, oparta na algorytmie AutoDock Vina40, automatycznie identyfikuje i zamyka potencjalne kieszenie wiążące na powierzchni białka, aby przewidzieć konformacje dokowania między małymi cząsteczkami a białkami. Po dokowaniu wyeksportowano tabelę podsumowującą wszystkie kombinacje ligand–receptor, zawierającą najniższe wartości energii wiązania dla każdej pary. Dla każdej pary ligand–receptor pozę z najniższą przewidywaną energią wiązania wybrano jako reprezentatywny tryb wiązania. Uzyskane dane dokowania uporządkowano i zwizualizowano za pomocą mapy ciepła. Do wizualizacji 3D plik wynikowy dokowania oraz plik receptora zaimportowano jednocześnie do programu ChimeraX (wersja 1.1). Wybrano małą cząsteczkę ligandu, a następnie użyto narzędzia „Contact/H-bonds” w sekcji „Structural Analysis” z opcją „Limit by selection: with at least one end selected”, aby ujawnić atomy oddziałujących reszt i zarejestrować oddziaływania. Następnie wprowadzono polecenie „cartoon suppress false”, aby wyświetlić atomy reszt w miejscach, gdzie oddziaływania były połączone z wstęgą białka. Na koniec użyto polecenia „label @@display”, aby wyświetlić nazwy reszt. Dwuwymiarowe diagramy oddziaływań wygenerowano za pomocą programu LigPlus (wersja 2.3.1), aby kompleksowo przedstawić oddziaływania molekularne, w tym wiązania wodorowe i oddziaływania hydrofobowe.
Wyniki
Pozyskiwanie wspólnych genów dla C. yanhusuo w leczeniu fibromialgii
Przeszukiwanie bazy danych TCMSP pozwoliło na zidentyfikowanie 77 składników C. yanhusuo. Dalsza selekcja według kryteriów OB ≥30% i DL ≥0,18 pozwoliła wyłonić 49 aktywnych składników (Tabela 1). Z baz danych TCMSP i GeneCards pobrano odpowiednio łącznie 177 celów dla aktywnych składników C. yanhusuo oraz 485 celów związanych z fibromialgią. Analiza przecięcia obu zbiorów celów wykazała 53 wspólne cele, określone jako terapeutyczne cele C. yanhusuo w leczeniu fibromialgii (Rycina 1).
Konstrukcja sieci regulacyjnej „lek-składniki aktywne-cel-choroba”
Aby dalej zbudować sieć regulacyjną „lek–składniki aktywne–cel–choroba”, do sieci włączono jeden lek tradycyjnej medycyny chińskiej (C. yanhusuo), 49 składników aktywnych, 53 potencjalne cele oraz jedną chorobę (fibromialgię) (Rysunek 2). Przyjmując liczbę celów związanych z każdym składnikiem aktywnym jako kryterium przesiewowe, zidentyfikowano 10 głównych składników aktywnych, mianowicie: kwercetynę, izokorypalminę, hyndarinę, (R)-kanadynę, leontycynę, (S)-scoulerinę, fumarynę, clarkeanidinę, stigmasterol oraz kryptopin.
Analiza sieci PPI
Cele terapeutyczne C. yanhusuo w leczeniu fibromialgii poddano analizie sieci PPI, w wyniku czego uzyskano sieć obejmującą 53 węzły i 480 krawędzi oddziaływań (Rysunek 3A). Do 20 najwyżej sklasyfikowanych celów należały TNF, IL6, IL1B, ESR1, PTGS2, CXCL8, CCL2, IL1A, MMP9, ICAM1, IL10, IFNG, CRP, MYC, VCAM1, IL2, SERPINE1, CXCL10, ERBB2 oraz MMP1 (Rysunek 3B).
Analiza wzbogacenia GO
Analizę wzbogacenia GO przeprowadzono dla potencjalnych celów C. yanhusuo w leczeniu fibromialgii. Wzbogacone procesy biologiczne (BP) obejmowały odpowiedź na bodziec ksenobiotyczny, odpowiedź na etanol, transport monoamin, odpowiedź komórkową na lipopolisacharyd, szlak sygnalizacyjny receptora sprzężonego z białkiem G aktywującego fosfolipazę C, odpowiedź komórkową na cząsteczkę pochodzenia bakteryjnego, odpowiedź na lipopolisacharyd, dopaminergiczną transmisję synaptyczną, krążenie krwi oraz proces metaboliczny tlenku azotu. Komponenty komórkowe (CC) były wzbogacone w błonie postsynaptycznej, błonie synaptycznej, błonie presynaptycznej, ciele komórki neuronalnej, pęcherzyku gęstego rdzenia neuronu, ziarnistości gęstego rdzenia, kompleksie receptora sprzężonego z białkiem G, błonie pęcherzyka synaptycznego, błonie pęcherzyka egzocytowego oraz pęcherzyku synaptycznym. W przypadku funkcji molekularnych (MF), wzbogacone terminy obejmowały aktywność cytokin, wiązanie receptora cytokin, wiązanie receptora czynnika wzrostu, aktywność transmembranowego transportera monoamin, wiązanie katecholamin, wiązanie amin, aktywność symportera sodowo-chlorkowego, aktywność oksydoreduktazy działającej na grupę CH‑NH₂ donorów z tlenem jako akceptorem, aktywność chemokin oraz aktywność symportera anionu jednoatomowego i sodu (Rysunek 4A,B).
Analiza wzbogacenia KEGG
Analiza wzbogacenia KEGG dla genów wspólnych dla C. yanhusuo i fibromialgii ujawniła 102 wzbogacone szlaki sygnalizacyjne. Po wykluczeniu szlaków związanych z chorobami ludzkimi i metabolizmem ogólnym, zachowano 39 szlaków o wyraźnym znaczeniu regulacyjnym biologicznie. Do 15 najważniejszych szlaków należały: szlak sygnalizacyjny IL-17, sygnalizacja ligandów neuroaktywnych, szlak sygnalizacyjny TNF, oddziaływanie cytokina–receptor cytokinowy, oddziaływanie białek wirusowych z cytokinami i receptorami cytokin, szlak sygnalizacyjny NF-κB, synapsa serotonergiczna, sygnalizacja hormonalna, szlak sygnalizacyjny receptorów lektyny typu C, oddziaływanie ligand–receptor neuroaktywny, szlak sygnalizacyjny receptorów Toll-podobnych, jelitowa sieć immunologiczna dla produkcji IgA, starzenie się komórek, szlak sygnalizacyjny JAK‑STAT oraz szlak sygnalizacyjny HIF‑1 (Rycyna 5A). Następnie skonstruowano sieć cel–szlak, w której 10 najważniejszych celami były IL6, TNF, IL1B, CXCL8, PTGS2, IL10, IL2, CXCL10, CCL2 oraz IFNG (Rycina 5B).
Dokowanie molekularne
Przeprowadzono dokowanie molekularne pomiędzy 10 najbardziej aktywnymi składnikami a 10 głównymi celami z sieci regulacyjnej „lek–składnik aktywny–cel–choroba”. Celami tymi były PTGS2, PTGS1, KCNH2, ADRB2, CHRM3, OPRM1, OPRD1, SLC6A4, SLC6A3 oraz ESR1. Dla wszystkich kombinacji dokowania przewidywane energie wiązania nie przekroczyły -5 kcal/mol, a rozkład ogólnych wyników przedstawiono w formie mapy ciepła (Rycina 6A). Wśród wszystkich sparowanych modeli przewidywana energia wiązania między stigmasterolem a CHRM3 stanowiła minimum globalne (–10.1 kcal/mol). W związku z tym kompleks ten wybrano do dalszej wizualizacji, generując trójwymiarową strukturę konformacyjną oraz dwuwymiarowy schemat modelu wiązania ilustrujący kluczowe oddziaływania z resztami aminokwasowymi (Rycina 6B). Wartości te reprezentują przewidywane wyniki/energie dokowania, a nie eksperymentalnie określone powinowactwa wiązania. Dla wybranego kompleksu stigmasterol–CHRM3 przewidywany model wiązania był stabilizowany głównie przez kontakty hydrofobowe z resztami Thr215, Ser227, Asp518, Pro217, Leu226, Glu220, Asn514, Phe222, Lys523, Trp526, Tyr128 oraz Asn527. W tej pozie dokowania nie wykryto wyraźnych wiązań wodorowych. Oddziaływania te sugerują, że stigmasterol zajmuje odrębną przewidywaną kieszeń w CHRM3; jednak jego relacja do ustalonych miejsc wiązania ortosterycznych lub allosterycznych nie została niezależnie zwalidowana.
DOSTĘPNOŚĆ DANYCH:
Dane wspierające wyniki niniejszego badania są otwarcie dostępne w Science Data Bank pod adresem https://doi.org/10.57760/sciencedb.013nm. Dalsze szczegóły można uzyskać od autora korespondencyjnego na uzasadnioną prośbę.
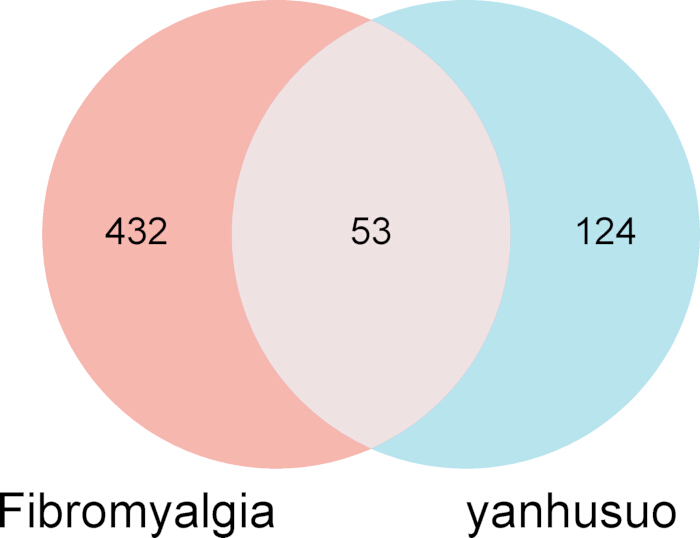
Rysunek 1: Diagram Venna przedstawiający część wspólną celów aktywnych składników C. yanhusuo oraz celów związanych z fibromialgią. Lewy okrąg reprezentuje cele związane z fibromialgią; prawy okrąg reprezentuje cele aktywnych składników C. yanhusuo. Obszar pokrycia reprezentuje 53 wspólne cele. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
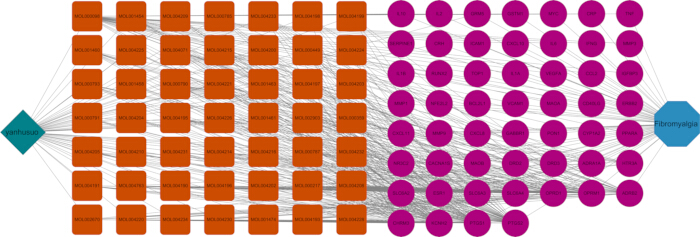
Rysunek 2: Sieć regulacyjna „lek–składnik aktywny–cel–choroba”. Węzły reprezentują leki, składniki aktywne, cele i choroby, z których każdy jest rozróżniony innym kolorem i kształtem. Krawędzie reprezentują powiązania między węzłami. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
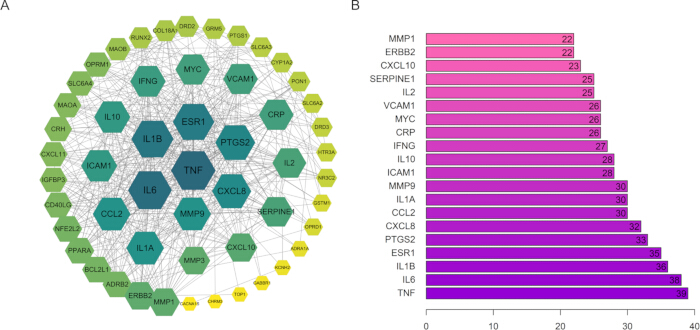
Rycina 3: Analiza sieci oddziaływań białko-białko celów terapeutycznych. (A) Sieć PPI 53 wspólnych celów terapeutycznych C. yanhusuo w leczeniu fibromialgii, zwizualizowana za pomocą programu Cytoscape. Wszystkie 53 cele zostały zmapowane i zachowane w sieci. Węzły reprezentują białka, a krawędzie reprezentują oddziaływania białko-białko. (B) 20 najważniejszych celów uszeregowanych według centralności stopnia. Oś X reprezentuje wartość stopnia, a oś Y reprezentuje symbole genów celów. Skróty: PPI = oddziaływanie białko-białko. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
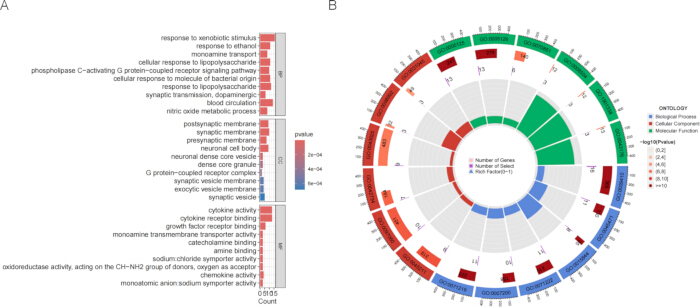
Rysunek 4: Analiza wzbogacenia GO dla celów składników aktywnych C. yanhusuo i celów fibromialgii. (A) Wykres słupkowy przedstawiający najlepiej wzbogacone terminy GO. Oś x reprezentuje liczbę genów; oś y reprezentuje terminy GO. (B) Wykresy kołowe wizualizujące wyniki wzbogacenia GO. Terminy GO są podzielone na procesy biologiczne (BP), składniki komórkowe (CC) i funkcje molekularne (MF). Skale kolorów wskazują surowe wartości p. Skróty: GO = Gene Ontology; BP = proces biologiczny; CC = składnik komórkowy; MF = funkcja molekularna. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
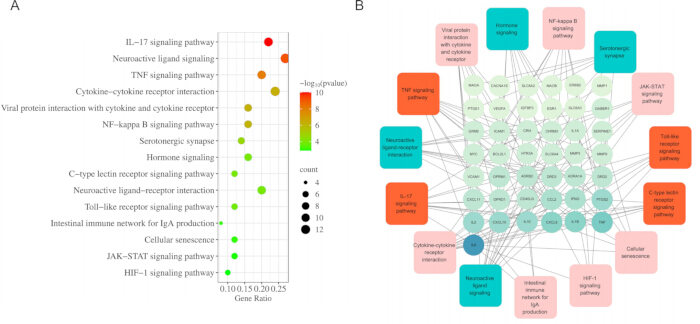
Rycina 5: Analiza wzbogacenia KEGG celów składników aktywnych C. yanhusuo oraz celów fibromialgii. (A) 15 najważniejszych szlaków sygnałowych. Oś x przedstawia stosunek genów (gene ratio); oś y przedstawia nazwy szlaków. Wielkość kropki wskazuje liczbę genów; kolor kropki wskazuje surową wartość p. (B) Powiązania między 15 najważniejszymi szlakami sygnałowymi a celami. Na panelu (B) węzły są pokolorowane zgodnie z kategorią szlaku: węzły czerwone/pomarańczowe reprezentują szlaki zapalne/immunologiczne, a węzły niebieskie reprezentują szlaki sygnałowe układu nerwowego. Wśród nich szlaki sygnałowe IL-17, TNF, receptorów Toll-podobnych oraz receptorów lektyny typu C działają jako wyzwalacze górnego rzędu (upstream); NF-κB, interakcje cytokina–receptor cytokinowy, kinaza Janus i przekaźnik sygnału oraz aktywator transkrypcji (JAK-STAT), czynnik 1 indukowany hipoksją (HIF-1), starzenie komórkowe oraz jelitowa sieć immunologiczna dla produkcji IgA działają jako efektory dolnego rzędu (downstream); natomiast sygnalizacja ligandów neuroaktywnych, interakcje ligandów neuroaktywnych z receptorami, synapsy serotonergiczne oraz sygnalizacja hormonalna służą jako wzmacniacze centralnej sensytyzacji. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
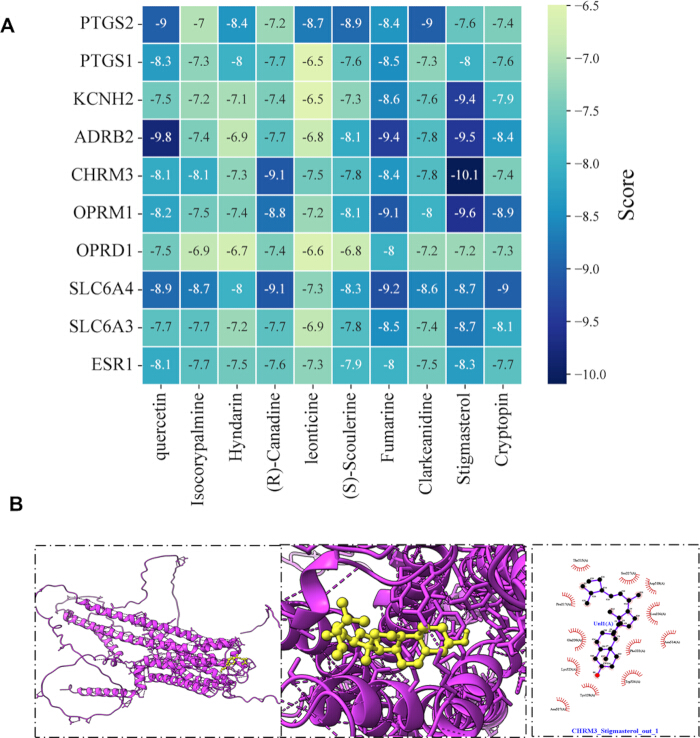
Rysunek 6: Analiza dokowania molekularnego głównych składników aktywnych i białek docelowych. (A) Mapa ciepła przewidywanych energii wiązania w dokowaniu molekularnym pomiędzy 10 najważniejszymi składnikami aktywnymi a 10 głównymi celami z sieci regulacyjnej „lek–składnik aktywny–cel–choroba” (PTGS2, PTGS1, KCNH2, ADRB2, CHRM3, OPRM1, OPRD1, SLC6A4, SLC6A3 oraz ESR1). (B) Trójwymiarowe (3D) i dwuwymiarowe (2D) schematy trybu wiązania stigmasterolu z CHRM3. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
| ID cząsteczki | Nazwa cząsteczki | MW | OB(%) | DL |
| MOL004193 | Clarkeanidine | 327.41 | 86.65 | 0.5 |
| MOL001460 | Cryptopin | 369.45 | 78.74 | 0.7 |
| MOL004234 | 2,3,9,10-tetramethoxy-13-methyl-5,6-dihydroisoquinolino[2,1-b]isoquinolin-8-one | 381.46 | 76.77 | 0.7 |
| MOL004071 | Hyndarin | 355.47 | 73.94 | 0.6 |
| MOL000791 | bikukulina | 367.38 | 69.67 | 0.9 |
| MOL004195 | KORYDALINA | 369.5 | 65.84 | 0.7 |
| MOL000785 | palmatyna | 352.44 | 64.6 | 0.7 |
| MOL004191 | Capaurine | 371.47 | 62.91 | 0.7 |
| MOL004200 | metyl-[2-(3,4,6,7-tetrametoksy-1-fenantrylo)etylo]amina | 355.47 | 61.15 | 0.4 |
| MOL001463 | Dihydrosanguinarine | 333.36 | 59.31 | 0.9 |
| MOL000787 | Fumaryna | 353.4 | 59.26 | 0.8 |
| MOL004232 | tetrahydroprotopapaveryna | 329.43 | 57.28 | 0.3 |
| MOL002903 | (R)-Kanadyna | 339.42 | 55.37 | 0.8 |
| MOL004226 | 24240-05-9 | 353.4 | 53.75 | 0.8 |
| MOL004196 | Corydalmina | 340.45 | 52.5 | 0.6 |
| MOL004230 | stylopina | 323.37 | 48.25 | 0.9 |
| MOL000793 | C09367 | 325.39 | 47.54 | 0.7 |
| MOL004203 | Dehydrocorybulbine | 352.44 | 46.97 | 0.6 |
| MOL000098 | kwercetyna | 302.25 | 46.43 | 0.3 |
| MOL004198 | 18797-79-0 | 367.43 | 46.06 | 0.9 |
| MOL004215 | leontycyna | 327.46 | 45.79 | 0.3 |
| MOL004190 | (-)-alfa-N-metylkanadyna | 354.46 | 45.06 | 0.8 |
| MOL004210 | (1S,8'R)-6,7-dimethoxy-2-methylspiro[3,4-dihydroisoquinoline-1,7'-6,8-dihydrocyclopenta[g][1,3]benzodioxole]-8'-ol | 369.45 | 43.95 | 0.7 |
| MOL004205 | Dehydrocorydalmina | 338.41 | 43.9 | 0.6 |
| MOL000449 | Stigmasterol | 412.77 | 43.83 | 0.8 |
| MOL004228 | saulatyna | 396.47 | 42.74 | 0.8 |
| MOL004204 | dehydrokorydalina | 366.47 | 41.98 | 0.7 |
| MOL004220 | N-metyllaurotetanina | 341.44 | 41.62 | 0.6 |
| MOL004216 | 13-metylpalmatrubina | 352.44 | 40.97 | 0.6 |
| MOL004214 | izokorybulbina | 368.51 | 40.18 | 0.7 |
| MOL004763 | Izoteolin | 327.41 | 39.53 | 0.5 |
| MOL004202 | dehydrokavidyna | 351.43 | 38.99 | 0.8 |
| MOL004208 | demetylkorydalmatyna | 327.41 | 38.99 | 0.5 |
| MOL004225 | pseudokoptysyna | 320.34 | 38.97 | 0.9 |
| MOL004199 | Corynoloxine | 365.41 | 38.12 | 0.6 |
| MOL001474 | sanguinaryna | 332.35 | 37.81 | 0.9 |
| MOL004197 | Korydyna | 341.44 | 37.16 | 0.6 |
| MOL000359 | sitosterol | 414.79 | 36.91 | 0.8 |
| MOL001454 | berberyna | 336.39 | 36.86 | 0.8 |
| MOL004209 | 13-metyldehydrokorydalmina | 352.44 | 35.94 | 0.6 |
| MOL000790 | Izokorypalmina | 341.44 | 35.77 | 0.6 |
| MOL002670 | Kavidyna | 353.45 | 35.64 | 0.8 |
| MOL004231 | Tetrahydrokoryzamina | 337.4 | 34.17 | 0.9 |
| MOL001461 | Dihydrochelerytryna | 349.41 | 32.73 | 0.8 |
| MOL000217 | (S)-Skuleryna | 327.41 | 32.28 | 0.5 |
| MOL004233 | ST057701 | 341.44 | 31.87 | 0.6 |
| MOL001458 | koptysyna | 320.34 | 30.67 | 0.9 |
| MOL004221 | norglaucing | 341.44 | 30.35 | 0.6 |
| MOL004224 | pontevedryna | 381.41 | 30.28 | 0.7 |
Tabela 1: Składniki aktywne C. yanhusuo zidentyfikowane na podstawie TCMSP oraz ich parametry farmakokinetyczne. MW, masa cząsteczkowa; OB, biodostępność doustna; DL, podobieństwo do leku (drug-likeness). Składniki z OB ≥30% i DL ≥0,18 zostały zachowane jako kluczowe składniki do późniejszego tworzenia sieci.
Tabela uzupełniająca 1: Ligandy PubChem użyte do dokowania molekularnego. Wymieniono 10 składników aktywnych użytych jako ligandy do dokowania wraz z ich nazwami, numerami PubChem CID oraz wzorami cząsteczkowymi. Wszystkie struktury ligandów zostały pobrane z bazy PubChem w formacie SDF przy użyciu wymienionych numerów CID.Kliknij tutaj, aby pobrać ten plik.
Tabela uzupełniająca 2: Struktury receptorów AlphaFold wykorzystane do dokowania molekularnego. Wymieniono 10 białek docelowych wykorzystanych jako receptory dokujące wraz z symbolami genów, numerami dostępu UniProt oraz identyfikatorami wpisów AlphaFold DB. Wszystkie struktury receptorów zostały pobrane z AlphaFold Protein Structure Database w formacie PDB.Kliknij tutaj, aby pobrać ten plik.
Dyskusja
W niniejszym badaniu zastosowano podejście farmakologii sieciowej w połączeniu z dokowaniem molekularnym, aby systematycznie przewidzieć wielocelowe mechanizmy działania C. yanhusuo w potencjalnym leczeniu FMS. Wyniki analiz in silico sugerują, że potencjalne efekty terapeutyczne C. yanhusuo przeciwko FMS mogą być pośredniczone przez złożoną sieć regulacyjną obejmującą 49 składników aktywnych, 53 wspólne cele oraz liczne szlaki sygnałowe. Ta kompleksowa analiza jest nie tylko zgodna z tradycyjnym zastosowaniem C. yanhusuo jako zioła przeciwbólowego, ale dostarcza również wstępnych, opartych na predykcjach informacji na poziomie molekularnym dotyczących potencjalnych mechanizmów łagodzenia wieloaspektowej symptomatologii FMS.
Konstrukcja sieci regulacyjnej „lek‑składniki aktywne‑cel‑choroba” pozwoliła zidentyfikować kwercetynę, izokorypalminę, hyndarynę, (R)‑kanadynę, leontycynę, (S)‑skoulerinę, fumarynę, klarkeanidynę, stigmasterol i kryptopin jako 10 głównych rdzeniowych składników aktywnych na podstawie stopnia łączności z celami. Kwercetyna jest powszechnym związkiem flawonoidowym o znaczącej aktywności biologicznej, w tym działaniu przeciwutleniającym, przeciwzapalnym i immunomodulującym41. W eksperymentalnych badaniach farmakologicznych zgłoszono, że interwencja z użyciem kwercetyny wyraźnie łagodzi hiperalgezję mięśniową, allodynię dotykową i allodynię zimnowrażliwą u szczurów w modelu fibromialgii indukowanej rezerpiną42. W modelu zwierzęcym wykazano, że stigmasterol w sposób zależny od dawki redukuje allodynię mechaniczną i zimnowrażliwą, termiczną hiperalgezję indukowaną ciepłem, mechaniczną allodynię okołogałkową, utratę siły mięśniowej oraz afektywno-motywacyjne zachowania bólowe w mysim modelu fibromialgii indukowanej rezerpiną43. Te wyniki in vivo stanowią pośrednie wsparcie farmakologiczne dla potencjalnej istotności tych związków w modelach fibromialgii, jednak nie potwierdzają one specyficznych celów molekularnych przewidzianych w niniejszym badaniu. Izokorypalmina, hyndaryna, (R)‑kanadyna, leontycyna, (S)‑skoulerina, fumaryna, klarkeanidyna oraz kryptopin są alkaloidami występującymi w C. yanhusuo, a alkaloidy te wykazują działanie przeciwbólowe poprzez blokowanie kanałów jonowych, regulację neurotransmiterów oraz hamowanie cyklooksygenazy-2 (COX-2).
Analiza sieci PPI pozwoliła przewidzieć TNF, IL6, IL1B, ESR1 oraz PTGS2 jako najwyżej sklasyfikowane cele typu hub, co sugeruje potencjalnie istotną rolę neurostanu zapalnego i modulacji immunologicznej w patofizjologii FMS. Aby wyjść poza proste rankingowanie, pogrupowaliśmy cele typu hub w trzy moduły funkcjonalne w oparciu o ich znane funkcje biologiczne i łączność sieciową: moduł zapalny/cytokinowy (TNF, IL6, IL1B, CXCL8), moduł receptorów neuroprzekaźników (CHRM3, ADRB2, ESR1) oraz moduł transdukcji sygnału (PTGS2, MMP9). Moduły te mogą współdziałać, napędzając błędne koło „obwodowej aktywacji immunologicznej → centralnej sensytyzacji” w FMS, zamiast działać w izolacji. Przewlekły stan zapalny o niskim nasileniu jest coraz częściej uznawany za czynnik przyczyniający się do centralnej sensytyzacji, która stanowi kluczowy mechanizm leżący u podstaw FMS. TNF i IL-1β są kluczowymi cytokinami prozapalnymi, które wzmacniają sygnalizację bólową poprzez aktywację komórek glejowych i zwiększenie pobudliwości synaptycznej w rdzeniu kręgowym oraz obszarach mózgu zaangażowanych w przetwarzanie bólu44,45,46. Przewidywana sieć sugeruje, że wiele aktywnych składników C. yanhusuo, takich jak kwercetyna i stigmasterol, może jednocześnie oddziaływać na te mediatory zapalne, co wskazuje na potencjalny szerokie spektrum działania przeciwneurozapalnego47,48,49. Jest to szczególnie istotne, biorąc pod uwagę, że konwencjonalne farmakoterapie, takie jak pregabalina i duloksetyna, są zaprojektowane przede wszystkim w celu modulacji poziomu neuroprzekaźników i mogą nie oddziaływać bezpośrednio na komponent zapalny FMS.
Analiza wzbogacenia GO dodatkowo pozwoliła przewidzieć procesy biologiczne, które C. yanhusuo może modulować, a do najważniejszych terminów należą: odpowiedź na bodziec ksenobiotyczny, transport monoamin, dopaminergiczna transmisja synaptyczna oraz odpowiedź komórkowa na lipopolisacharyd. Przewidywane wyniki te są zgodne ze znanymi rolami dopaminy i serotoniny w modulacji bólu i regulacji nastroju, które u pacjentów z FMS są często zaburzone. Analiza wzbogacenia ścieżek KEGG wykazała, że potencjalne cele C. yanhusuo mogą być przede wszystkim zaangażowane w ścieżkę sygnalizacyjną IL-17, oddziaływania ligand-receptor neuroaktywny, ścieżkę sygnalizacyjną TNF, oddziaływania cytokina-receptor cytokinowy oraz ścieżkę sygnalizacyjną NF-κB.
Szlak sygnalizacyjny IL‑17 okazał się kluczowym czynnikiem napędzającym ból przewlekły w stanach zapalnych i autoimmunologicznych, pośrednicząc w rekrutacji neutrofili i promując uwalnianie cytokin prozapalnych, takich jak TNF i IL‑650,51,52. Oddziaływanie C. yanhusuo na ten szlak sugeruje, że zioło to może łagodzić obwodową aktywację immunologiczną i następujące po niej centralne zapalenie układu nerwowego, które są coraz częściej uznawane za czynniki przyczyniające się do zaostrzeń objawów FMS. Ponadto szlak oddziaływania ligandów neuroaktywnych z receptorami stanowi punkt zbieżności dla wielu systemów neurotransmisyjnych, w tym sygnalizacji glutaminergicznej, GABAergicznej i cholinergicznej, z których wszystkie są zaangażowane w przetwarzanie bólu i dysfunkcje poznawcze w FMS50,51,52,53,54,55. Regulacja tego szlaku przez C. yanhusuo może częściowo wyjaśniać przewidywany potencjał tego zioła do modulowania nie tylko bólu, ale także zmęczenia, zaburzeń snu i zaburzeń nastroju związanych z FMS.
Wyniki dokowania molekularnego dostarczyły przewidywań in silico dotyczących potencjalnych oddziaływań wiążących pomiędzy 10 najaktywniejszymi składnikami a 10 głównymi celami z sieci regulacyjnej „lek–składnik aktywny–cel–choroba” (PTGS2, PTGS1, KCNH2, ADRB2, CHRM3, OPRM1, OPRD1, SLC6A4, SLC6A3 oraz ESR1). Co istotne, przewidywane energie wiązania dla wszystkich par ligand–receptor były niższe niż -5 kcal/mol, co wskazuje na umiarkowane do silnego przewidywane wiązanie. Najniższy przewidywany wynik dokowania zaobserwowano dla pary stigmasterol–CHRM3 (−10,1 kcal/mol), a następnie dla kwercetyna–ADRB2 (−9,8 kcal/mol) i stigmasterol–OPRM1 (−9,6 kcal/mol). Stigmasterol, fitosterol pochodzenia roślinnego wcześniej zidentyfikowany w C. yanhusuo, wykazał działanie przeciwzapalne i przeciwutleniające w różnych modelach chorób56,57,58. Jego przewidywane silne wiązanie z CHRM3 i ADRB2 sugeruje, że oprócz alkaloidów, składniki niealkaloidalne mogą również przyczyniać się do skuteczności terapeutycznej C. yanhusuo poprzez modulowanie sygnalizacji cholinergicznej i adrenergicznej, które są kluczowe dla regulacji autonomicznego układu nerwowego i modulacji bólu. Przewidywane silne wiązanie stigmasterolu z CHRM3 i ADRB2 może być związane z tradycyjną właściwością C. yanhusuo polegającą na „regulowaniu Qi i łagodzeniu bólu”. W przeciwieństwie do niesteroidowych leków przeciwzapalnych (NLPZ), C. yanhusuo może potencjalnie działać zarówno poprzez mediatory zapalne, jak i receptory neurotransmiterów autonomicznych, co sugeruje potencjalny podwójny mechanizm. Względny wkład cholinergicznej ścieżki przeciwzapalnej oraz klasycznej ścieżki TNF/IL-6 wymaga jeszcze walidacji eksperymentalnej. Wśród głównych składników kwercetyna może działać jako przeciwzapalny komponent o szerokim spektrum, podczas gdy stigmasterol może wykazywać stosunkowo silne przewidywane oddziaływania dokowania z wybranymi celami, takimi jak CHRM3 i ADRB2. Ten wzorzec „szerokiego pokrycia + wysokiej precyzji” może odpowiadać heterogennym charakterystykom bólu w FMS.
Przełożenie przewidywań na ograniczenia
Mimo że farmakologia sieciowa ma charakter predykcyjny, wyniki należy interpretować z ostrożnością. Na podstawie przewidywań stawiamy hipotezę, że najbardziej obiecującą klinicznie frakcją C. yanhusuo może być konkretny ekstrakt wzbogacony w kwercetynę i stigmasterol, a nie cała mieszanina. Hipoteza ta wymaga walidacji eksperymentalnej. Przyszłe badania powinny skupić się na izolacji i testowaniu takich wzbogaconych frakcji in vitro oraz in vivo w celu potwierdzenia przewidywanych celów i szlaków.
Podsumowanie
Niniejsze badanie sugeruje, że C. yanhusuo wykazuje przewidywane działanie terapeutyczne w zespole fibromialgii poprzez synergistyczny mechanizm obejmujący wiele składników, celów i szlaków, przy czym kluczowe działania koncentrują się potencjalnie na hamowaniu neurostanu zapalnego i neuromodulacji. Zintegrowane analizy farmakologii sieciowej oraz dokowania molekularnego ujawniają, że kluczowe składniki aktywne, takie jak kwercetyna i stigmasterol, mają wspólnie regulować kluczowe mediatory stanu zapalnego i neuroaktywne szlaki sygnalizacyjne, co może modulować zarówno obwodową aktywację immunologiczną, jak i centralną sensytyzację. Wyniki te stanowią wstępne, oparte na przewidywaniach uzasadnienie dla przyszłych badań eksperymentalnych i potencjalnego zastosowania klinicznego C. yanhusuo w FMS, a także mogą stać się podstawą do ukierunkowanego na hipotezy odkrywania wielocelowych leków na złożone zaburzenia bólu przewlekłego. Do potwierdzenia tych przewidywań wymagana jest walidacja eksperymentalna.
Ograniczenia:
Niniejsze badanie opiera się wyłącznie na metodach farmakologii sieciowej in silico oraz przewidywaniach dokowania molekularnego, którym brakuje walidacji eksperymentalnej i klinicznej. Progi OB ≥30% oraz DL ≥0,18 są standardami w farmakologii sieciowej, jednak mogą one wykluczać potencjalnie aktywne związki o niskim OB, takie jak niektóre alkaloidy przeciwbólowe. Ograniczeniem jest zastosowanie struktur przewidzianych przez AlphaFold zamiast eksperymentalnych struktur krystalicznych do dokowania molekularnego. Przyszłe badania nad dokowaniem powinny zweryfikować te przewidywania przy użyciu dostępnych struktur PDB, tam gdzie jest to możliwe. Dalsze analizy obejmą eksperymenty in vitro i in vivo w celu walidacji zidentyfikowanych celów i szlaków, a następnie badania kliniczne w celu oceny skuteczności terapeutycznej i bezpieczeństwa ekstraktu z C. yanhusuo u pacjentów z fibromialgią. Ostatecznie dążymy do opracowania zestandaryzowanego preparatu z C. yanhusuo do zastosowań klinicznych w zespole fibromialgii.
Oświadczenia
Autorzy oświadczają, że nie występuje konflikt interesów.
Ujawnienie użycia AI: Podczas przygotowywania niniejszej pracy autorzy wykorzystali Deepseek do korekty językowej i sprawdzenia gramatyki. Wszystkie treści przygotowane przy wsparciu AI zostały przejrzane i poprawione przez autorów, którzy ponoszą pełną odpowiedzialność za publikację.
Podziękowania
Autorzy oświadczyli, że nie otrzymali wsparcia finansowego na realizację niniejszej pracy i/lub jej publikację.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Baza danych struktur białek AlphaFold | DeepMind & EMBL-EBI | https://alphafold.ebi.ac.uk/ | Pobrano trójwymiarowe struktury (PDB) kluczowych białek docelowych jako receptory do dokowania. |
| CB-Dock2 | Internetowa platforma do ślepego dokowania | https://cadd.labshare.cn/cb-dock2/ | Dokowanie ślepe w programie AutoDock Vina; zidentyfikowano kieszenie wiążące, przewidziano konformacje i wyeksportowano najniższe energie wiązania. |
| ChimeraX | UCSF Resource for Biocomputing, Visualization, and Informatics | https://www.cgl.ucsf.edu/chimerax/ | Wizualizowane trójwymiarowe konformacje wiązania białka–kompleksy ligandów. Wersja 1.1 |
| Cytoscape | Konsorcjum Cytoscape | https://cytoscape.org/ | Skonstruowany i zwizualizowany lek–składnik–Proszę podać tekst źródłowy do tłumaczenia.–sieci chorób i PPI; analiza topologiczna za pomocą Network Analyzer (ranking stopni). Wersja 3.7.2 |
| GeneCards | Instytut Nauki Weizmanna, Izrael | https://www.genecards.org/ | Pobrano cele związane z fibromialgią przy użyciu słowa kluczowego “fibromialgia”wszystkie zidentyfikowane cele zostały zachowane bez dodatkowego filtrowania progowego. |
| LigPlus | Nie dotyczy | http://www.ebi.ac.uk/thornton-srv/software/LigPlus/ | Wygenerowane dwuwymiarowe diagramy oddziaływań przedstawiające wiązania wodorowe i oddziaływania hydrofobowe. Wersja 2.3.1 |
| PubChem | Krajowa Biblioteka Medyczna (NCBI), USA | https://pubchem.ncbi.nlm.nih.gov/ | Pobrane struktury 2D (SDF) 10 najaktywniejszych składników jako ligandów do dokowania. |
| R | R Foundation for Statistical Computing | https://www.r-project.org/ | Wykonano analizę wzbogacenia GO i KEGG przy użyciu pakietu clusterProfiler; wykluczono "Choroby ludzi" i "Metabolizm" ścieżki. Wersja 4.3.1 |
| Proszę podać tekst źródłowy do tłumaczenia. | Konsorcjum STRING (EMBL, SIB itd.) | https://string-db.org/ | Skonstruowana sieć PPI (Homo sapiens, poziom ufności ≥0,400); wyeksportowany plik TSV do programu Cytoscape. |
| TCMSP | Northwest A&Uniwersytet F, Chiny | https://www.tcmsp-e.com/ | Wyizolowano wszystkie składniki C. yanhusuo; przesiewowo wyłoniono substancje czynne (OB≥30%, DL≥0,18); otrzymano odpowiednie białka docelowe. |
| UniProt | Konsorcjum UniProt (EBI, SIB, PIR) | https://www.uniprot.org/ | Konwertowano białka docelowe na oficjalne symbole genów (Homo sapiens). Wersja 2025_01 |
Bibliografia
- Winslow BT, Vandal C, Dang L. Fibromyalgia: diagnosis and management. Am Fam Physician. 2023;107(2):137-144.
- Kocyigit BF, Akyol A. Fibromyalgia syndrome: epidemiology, diagnosis and treatment. Reumatologia. 2022;60(6):413-421.
- Berwick R, Barker C, Goebel A; Guideline Development Group. The diagnosis of fibromyalgia syndrome. Clin Med (Lond). 2022;22(6):570-574.
- Carrasco-Querol N, et al. Nutrition and chronobiology as key components of multidisciplinary therapeutic interventions for fibromyalgia and associated chronic fatigue syndrome: a narrative and critical review. Nutrients. 2024;16(2):182.
- Ughreja RA, Venkatesan P, Balebail Gopalakrishna D, Singh YP. Effectiveness of myofascial release on pain, sleep, and quality of life in patients with fibromyalgia syndrome: a systematic review. Complement Ther Clin Pract. 2021;45:101477.
- Favretti M, Iannuccelli C, Di Franco M. Pain biomarkers in fibromyalgia syndrome: current understanding and future directions. Int J Mol Sci. 2023;24(13):10443.
- Minhas D, Murphy A, Clauw DJ. Fibromyalgia and centralized pain in the rheumatoid arthritis patient. Curr Opin Rheumatol. 2023;35(3):170-174.
- Monteiro JAM, et al. Fibromyalgia comorbidity in systemic lupus erythematosus patients: assessing impact on quality of life. Adv Rheumatol. 2024;64(1):90.
- Chen G, Yan Z, Wang Y, Tao Q. Rheumatoid arthritis and fibromyalgia syndrome: a bibliometric and bioinformatics perspective on comorbidity research. J Multidiscip Healthc. 2025;18:6811-6827.
- Jurado-Priego LN, Cueto-Ureña C, Ramírez-Expósito MJ, Martínez-Martos JM. Fibromyalgia: a review of the pathophysiological mechanisms and multidisciplinary treatment strategies. Biomedicines. 2024;12(7):1543.
- Paroli M, Gioia C, Accapezzato D, Caccavale R. Inflammation, autoimmunity, and infection in fibromyalgia: a narrative review. Int J Mol Sci. 2024;25(11):5922.
- Marino Y, et al. Role of mitochondrial dysfunction and biogenesis in fibromyalgia syndrome: molecular mechanism in central nervous system. Biochim Biophys Acta Mol Basis Dis. 2024;1870(7):167301.
- Malik A, et al. Serotonin and norepinephrine reuptake inhibitors (SNRIs) for treatment of fibromyalgia: a comprehensive clinical review. Psychopharmacol Bull. 2025;55(2):24-40.
- García-Domínguez M. Fibromyalgia and inflammation: unrevealing the connection. Cells. 2025;14(4):271.
- Assavarittirong C, Samborski W, Grygiel-Górniak B. Oxidative stress in fibromyalgia: from pathology to treatment. Oxid Med Cell Longev. 2022;2022:1582432.
- Giorgi V, et al. Pharmacological treatment of fibromyalgia syndrome: a practice-based review. Curr Pain Headache Rep. 2024;28(12):1349-1363.
- Migliorini F, et al. Duloxetine for fibromyalgia syndrome: a systematic review and meta-analysis. J Orthop Surg Res. 2023;18(1):504.
- Moore A, et al. Effectiveness of pharmacological therapies for fibromyalgia syndrome in adults: an overview of Cochrane Reviews. Rheumatology (Oxford). 2025;64(5):2385-2394.
- Lum G, et al. Current pharmacological management, treatment challenges, and potential future treatment options for fibromyalgia syndrome. Expert Opin Pharmacother. 2025;26(18):2013-2025.
- Zhang P, et al. Network pharmacology: towards the artificial intelligence-based precision traditional Chinese medicine. Brief Bioinform. 2024;25(1):bbad518.
- Wang Y, El-Kott AF, El-Kenawy AE, Xue L. Decorated CuO nanoparticles over chitosan-functionalized magnetic nanoparticles: investigation of its anti-colon carcinoma and anti-gastric cancer effects. Arabian J Chem. 2021;14(7):103201.
- Zeng Y, et al. Fisetin micelles precisely exhibit a radiosensitization effect by inhibiting PDGFRβ/STAT1/STAT3/Bcl-2 signaling pathway in tumor. Chin Chem Lett. 2025;36(2):109734.
- Chen GY, et al. Mechanisms of total glucosides of paeony in alleviating methotrexate-induced liver injury. Drug Des Devel Ther. 2025;19:3407-3423.
- Chen GY, et al. Prediction of Rhizoma Drynariae targets in the treatment of osteoarthritis based on network pharmacology and experimental verification. Evid Based Complement Alternat Med. 2021;2021:5233462.
- Aguiar C, Camps I. Molecular docking in drug discovery: techniques, applications, and advancements. Curr Med Chem. 2025;32(28):5924-5938.
- Wu L, et al. Processing and compatibility of Corydalis yanhusuo: phytochemistry, pharmacology, pharmacokinetics, and safety. Evid Based Complement Alternat Med. 2021;2021:1271953.
- Alhassen L, et al. The analgesic properties of Corydalis yanhusuo. Molecules. 2021;26(24):7498.
- Ru J, et al. TCMSP: a database of systems pharmacology for drug discovery from herbal medicines. J Cheminform. 2014;6:13.
- Chen GY, et al. Integrating network pharmacology and experimental validation to explore the key mechanism of Gubitong recipe in the treatment of osteoarthritis. Comput Math Methods Med. 2022;2022:7858925.
- Jin Q, et al. Network and experimental pharmacology to decode the action of Wendan decoction against generalized anxiety disorder. Drug Des Devel Ther. 2022;16:3297-3314.
- UniProt Consortium. UniProt: the Universal Protein Knowledgebase in 2025. Nucleic Acids Res. 2025;53(D1):D609-D617.
- Stelzer G, et al. The GeneCards Suite: from gene data mining to disease genome sequence analyses. Curr Protoc Bioinformatics. 2016;54:1.30.1-1.30.33.
- Otasek D, et al. Cytoscape Automation: empowering workflow-based network analysis. Genome Biol. 2019;20(1):185.
- Szklarczyk D, et al. The STRING database in 2025: protein networks with directionality of regulation. Nucleic Acids Res. 2025;53(D1):D730-D737.
- Majeed A, Mukhtar S. Protein-protein interaction network exploration using Cytoscape. Methods Mol Biol. 2023;2690:419-427.
- Yu G, Wang LG, Han Y, He QY. clusterProfiler: an R package for comparing biological themes among gene clusters. OMICS. 2012;16(5):284-287.
- Feng S, et al. Harnessing gene editing technology for tumor microenvironment modulation: an emerging anticancer strategy. Chemistry. 2024;30(62):e202402485.
- Kim S, et al. PubChem in 2021: new data content and improved web interfaces. Nucleic Acids Res. 2021;49(D1):D1388-D1395.
- Varadi M, et al. AlphaFold Protein Structure Database: massively expanding the structural coverage of protein-sequence space with high-accuracy models. Nucleic Acids Res. 2022;50(D1):D439-D444.
- Eberhardt J, Santos-Martins D, Tillack AF, Forli S. AutoDock Vina 1.2.0: new docking methods, expanded force field, and Python bindings. J Chem Inf Model. 2021;61(8):3891-3898.
- He L, et al. Shape-based virtual screen for the discovery of novel CDK8 inhibitor chemotypes. Bioorg Med Chem Lett. 2019;29(4):549-555.
- Quinto-Ortiz YE, et al. Pharmacological interaction of quercetin derivatives of Tilia americana and clinical drugs in experimental fibromyalgia. Metabolites. 2022;12(10):916.
- Perazzio AC, et al. Stigmasterol attenuates nociplastic pain and fatigue-like symptoms in a reserpine-induced fibromyalgia model in mice. Inflammopharmacology. 2026;34(1):509-523.
- Ji RR, et al. Neuroinflammation and central sensitization in chronic and widespread pain. Anesthesiology. 2018;129(2):343-366.
- Biltz RG, Sawicki CM, Sheridan JF, Godbout JP. The neuroimmunology of social-stress-induced sensitization. Nat Immunol. 2022;23(11):1527-1535.
- Ahmed I, et al. Oral and gut health, (neuro)inflammation, and central sensitization in chronic pain: a narrative review of mechanisms, treatment opportunities, and research agenda. Int J Mol Sci. 2026;27(1):114.
- Wu J, et al. The role of quercetin in NLRP3-associated inflammation. Inflammopharmacology. 2024;32(6):3585-3610.
- Xiong QQ, et al. Hypericum aqueous extract promotes skin wound healing by modulating the PI3K/Akt signaling pathway. Food & Medicine Homology. 2026;3(4):9420125.
- Sun M, et al. Stigmasterol from Prunella vulgaris L. alleviates LPS-induced mammary gland injury by inhibiting inflammation and ferroptosis. Phytomedicine. 2025;137:156362.
- McNamee KE, et al. IL-17 induces hyperalgesia via TNF-dependent neutrophil infiltration. Pain. 2011;152(8):1838-1845.
- Jiang X, et al. Interleukin-17 as a potential therapeutic target for chronic pain. Front Immunol. 2022;13:999407.
- Gao SJ, et al. Interleukin-17: a putative novel pharmacological target for pathological pain. Curr Neuropharmacol. 2024;22(2):204-216.
- Yang Y, et al. Inhibition of neuroactive ligand-receptor interaction pathway can enhance immunotherapy response in colon cancer: an in silico study. Expert Rev Anticancer Ther. 2023;23(11):1205-1215.
- Li QR, et al. Unveiling the mechanism of Cibotium barometz in the treatment of rheumatoid arthritis: a study based on network pharmacology and experimental validation. Curr Med Chem. In press. https://www.eurekaselect.com/article/158465
- Chan RJ, et al. Perturbations in the neuroactive ligand-receptor interaction and renin angiotensin system pathways are associated with cancer-related cognitive impairment. Support Care Cancer. 2025;33(4):254.
- Cao W, et al. Structural elucidation of an active polysaccharide from Radix Puerariae lobatae and its protection against acute alcoholic liver disease. Carbohydr Polym. 2024;325:121565.
- Tong Y, et al. Stigmasterol exerts antioxidant effects through activation of the Keap1/Nrf2 signaling pathway in Parkinson's disease model. J Transl Med. 2026;24:9.
- Ohara Y, Osada K. Effect of dietary oxidized stigmasterol on the antioxidant system in mice. J Oleo Sci. 2024;73(12):1493-1503